Obecny protokół opisuje krok po kroku obrazowanie autofluorescencyjne i ocenę zmian fikobiliproteinowych u czerwonych alg na podstawie analizy spektralnej. Jest to bezznacznikowa i nieniszcząca metoda oceny adaptacji komórkowej do ekstremalnych siedlisk, gdy dostępny jest tylko rzadki materiał, a komórki rosną powoli lub wcale w warunkach laboratoryjnych.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Obrazowanie autofluorescencyjne w celu oceny fizjologii czerwonych alg
W tym artykule
Podsumowanie
Streszczenie
Czerwone algi (Rhodophyta) zawierają fikobiliproteiny i kolonizują siedliska przy słabym oświetleniu, jednak niektóre (np. niektóre gatunki Chroothece) mogą również rozwijać się w pełnym słońcu. Większość rodofitów jest czerwona, jednak niektóre mogą wydawać się niebieskawe, w zależności od proporcji niebieskich i czerwonych biliprotein (fikocyjaniny i fikoerytryny). Różne fikobiliproteiny mogą wychwytywać światło o różnych długościach fal i przekazywać je do chlorofilu a, co umożliwia fotosyntezę w bardzo różnych warunkach oświetleniowych. Pigmenty te reagują na zmiany siedlisk w świetle, a ich autofluorescencja może pomóc w badaniu procesów biologicznych. Wykorzystując Chroothece mobilis jako organizm modelowy i spektralny tryb skanowania lambda w mikroskopie konfokalnym, zbadano adaptację pigmentów fotosyntetycznych do różnych monochromatycznych świateł na poziomie komórkowym, aby odgadnąć optymalne warunki wzrostu gatunku. Wyniki pokazały, że nawet gdy badany szczep został wyizolowany z jaskini, przystosował się zarówno do słabego, jak i średniego natężenia światła. Przedstawiona metoda jest szczególnie przydatna do badania organizmów fotosyntetyzujących, które nie rosną lub rosną bardzo wolno w warunkach laboratoryjnych, co zwykle ma miejsce w przypadku organizmów żyjących w ekstremalnych siedliskach.
Wprowadzenie
Czerwone algi, takie jak rodzaj Chroothece, mogą rosnąć w ekstremalnych siedliskach, gdzie często muszą radzić sobie z wyraźnymi zmianami środowiskowymi1. Powodzie i susze są częste w regionach półpustynnych, gdzie można znaleźć ten rodzaj, a niektóre gatunki zostały zgłoszone w potokach, klifach, jaskiniach, a nawet wodach termalnych2. Jednak w większości przypadków zmienne biologiczne, takie jak konkurencja lub wypas, spychają gatunki do nieoptymalnych warunków dla ich wzrostu. Ponieważ organizmy te są często trudne do hodowli i albo nie rosną, albo rosną bardzo wolno w warunkach laboratoryjnych, jednym z głównych ograniczeń jest dostępna wielkość próbki. Dlatego bardzo ważne jest, aby stosować metody nieniszczące lub metody, które wymagają minimalnej manipulacji próbką3,4.
Umiejętności fizjologiczne potrzebne do przetrwania w tych trudnych warunkach mogą być monitorowane poprzez śledzenie zmian w ich systemach fotosyntetycznych. Mechanizmy metaboliczne, wydajność fotosyntezy i wrażliwość na światło lub warunki hodowli mogą być ujawnione przez profile emisji fluorescencji pigmentów, dzięki dokładnym zmianom w ich transferze energii lub pułapkowaniu5,6,7,8.
Autofluorescencja związków komórkowych może być używana jako marker do cytodiagnozy lub jako naturalny wskaźnik stanu komórkowego lub metabolizmu w odpowiedzi na sygnały zewnętrzne i wewnętrzne poprzez zmiany w emisji9. Może być również używany do rozróżniania taksonomicznie różnych grup organizmów fotosyntetyzujących10. W zależności od pozycji filogenetycznej mikroorganizmów fototroficznych można znaleźć różne cechy fluorescencji in vivo. W związku z tym kilkakrotnie podjęto próbę identyfikacji taksonomicznej na podstawie charakterystyki fluorescencji fototroficznej in vivo (w tym absorpcji fluorescencji i widm emisyjnych)11,12. Ze względu na różnorodność pigmentów dodatkowych wśród taksonów fitoplanktonu, różnice w długościach fal, przy których stymulowana jest fluorescencja chlorofilu a (Chl a) lub różnice w widmach emisyjnych, mogą być wykorzystane do wywnioskowania taksonomii13. Widma wzbudzenia fluorescencji i emisji in vivo tych próbek opierają się nie tylko na typie glonów, ale także na adaptacji fotosystemu14. Efektywność transferu energii do Chl a, czyli stosunek Chl a do pigmentów dodatkowych, oraz zawartość pigmentu komórkowego są wrażliwe na warunki wzrostu5.
Czerwone algi, szczególnie Chroothece, mają kilka dodatkowych pigmentów fluorescencyjnych - fikobiliproteiny i karotenoidy; te pierwsze koncentrują się w fikobilisomach przyłączonych do tylakoidów chloroplastów. Fikobiliproteiny (fikocyjanina, fikoerytryna i allofikocyjanina) mogą wychwytywać światło o różnych długościach fal i przekazywać je do Chl a, co umożliwia fotosyntezę w bardzo różnych warunkach oświetleniowych i hodowlanych15. Na przykład, gatunki Chroothece mogą rosnąć w jaskiniach lub prawie wyłaniać się w lekko zasolonych strumieniach wapiennych2.
Monochromatyczne światła wpływają na wzrost i skład pigmentu organizmów fotosyntetyzujących i były badane w celu zapobiegania lub kontrolowania wzrostu organizmów fotosyntetycznych w jaskiniach. Mulec i in. wykazali, że czerwone wzbogacone oświetlenie sprzyja rozwojowi sinic, glonów i roślin16. Wcześniejsze badania wykazały również, że zielone światło wpływa na skład pigmentu cyjanobakterii17, podczas gdy inne wykazały, że zielone światło zapobiega wzrostowi większości organizmów fotosyntetycznych, a niektóre cyjanobakterie wykazują zmniejszenie tylakoidów i słabszą średnią intensywność fluorescencji18.
Aby zrozumieć zdolność Chroothece jako organizmu modelowego do pokonywania trudnych warunków, hodowane komórki zostały wystawione na działanie zwiększonego natężenia światła i monochromatycznego światła (zielonego lub czerwonego)15, aby zobaczyć, jak radzi sobie z ciemnymi warunkami w jaskiniach (gdzie dominuje czerwone światło). Przedstawiony w niniejszym dokumencie protokół odtwarza wpływ wyżej wymienionych zmiennych na fikobiliproteiny Chroothece na poziomie komórkowym za pomocą własnej autofluorescencji.
Obecnie fluorescencja jest powszechnie używana jako narzędzie do badania fizjologicznych reakcji roślin naczyniowych, mikroalg, makroglonów i cyjanobakterii13,14,16. Spektralna konfokalna mikroskopia fluorescencyjna jest doskonałym narzędziem do badań in vivo do oceny fizjologii próbek fotosyntetycznych na poziomie pojedynczej komórki10,17,18,19,20, unikając problemów związanych z niskim tempem wzrostu w laboratorium i trudności z uzyskaniem wystarczającej ilości biomasy dla powiązanej biomasy Metody ekstrakcji i biochemicznej8. Po poddaniu komórek działaniu w różnych warunkach hodowli przez 2 tygodnie, można zmierzyć profil skanowania lambda in vivo. Chociaż istnieje kilka publikacji, w których zastosowano różne długości fal wzbudzenia za pomocą obrazowania konfokalnego3,4,10,17, większość fikobiliprotein i Chl a można wykryć za pomocą linii wzbudzenia o długości fali 561 nm, a wykryta emisja mieści się w zakresie od 570 do 760 nm długości fali. Kryteria te zostały oparte na wcześniej przeprowadzonej analizie10 z komercyjnymi czystymi pigmentami (Tabela 1) za pomocą obrazowania konfokalnego i uzyskanych wyników dla różnych gatunków glonów20,21,22.
szt. Rozdział TGL TGL TGL TGL| Pigmenty | λflmax (nm) | λ exc (nm) | |||||||
| 351 | 364 | Z numerem 458 | Okręg wyborczy 476 | Z numerem 488 | Okręg wyborczy 514 | Okręg wyborczy 543 | 633 | ||
| Chl a | 660,9-678,1 | 43,4 ± 1,8 | 11,2 ± 0,2 | 1,8 ± 0,05 | 2,0 ± 0,08 | 12,2 ± 0,7 | 6,0 ± 0,3 | 4,2 ± 0,16 | 80,7 ± 1,5 |
| R-PE | 569,2-583,3 | 5,9 ± 0,6 | 5,9 ± 0,16 | 11,1 ± 0,04 | 42,2 ± 0,3 | 100,0 ± 0 | 90,0 ± 0,3 | 99,2 ± 0,08 | - |
| 652,1-668,6 | - | - | 1,5 ± 0,01 | 3,7 ± 0,04 | 26,7 ± 0,5 | 8,7 ± 0,16 | 11,1 ± 0,16 | 11,3 ± 0,2 | |
| C-PC (Komputer Centralny) | 636,2-676,4 | 2,3 ± 0,04 | 1,0 ± 0,01 | 0,6 ± 0,004 | 0,7 ± 0,008 | 2,0 ± 0,08 | 2,0 ± 0,04 | 3,3 ± 0,16 | 33,6 ± 0,9 |
| Pakiet APC-XL | 667,3-683,8 | 15,1 ± 1,5 | 9,6 ± 0,98 | 1,0 ± 0,04 | 1,2 ± 0,08 | 5,9 ± 0,7 | 4,1 ± 0,5 | 23,2 ± 3,5 | 91,4 ± 2,3 |
Tabela 1: Czysta informacja o pigmentach użyta do przeprowadzenia analizy skanowania lambda. Poniższa tabela przedstawia piki emisji i maksima pasma ramion/fluorescencji różnych fluorochromów/pigmentów za pomocą spektrofotometrii obrazowania konfokalnego dla wszystkich długości fal wzbudzenia oraz procentowy udział emisji światła przez pigmenty/fluorochromy. Wartości obliczono według wzoru: = MIF*100/255. Każda wartość jest średnią ± SE (średnia ± błąd standardowy od średniej). Do kalibracji konfokalnego skaningowego mikroskopu laserowego użyto czystych pigmentów w następujący sposób1,2,10. Chlorofil a otrzymywano ze Spinacia oleracea, R-fikoerytrynę (R-PE) z Porphyra tenera, a C-fikocyjaninę (C-PE) ze Spirulina sp. Wszystkie gatunki rozpuszczono w przefiltrowanej wodzie destylowanej. Allofikocyjaninę-XL (APC-XL) otrzymano z Mastigocladus laminosus, którą rozpuszczono w siarczanie amonu (60%) i fosforanie potasu (pH = 7) do uzyskania stężenia 38 mM. Skany wykonano z 400 μl każdego roztworu pigmentu (stężenie 1 mg/ml) przy użyciu 8-dołkowej komory dolnej ze szkła.
Badanie pojedynczej długości fali wzbudzenia jest dość użytecznym pierwszym przybliżeniem. W tym przypadku konieczne jest jednak wyjaśnienie względnego udziału różnych kompleksów w sygnale fluorescencyjnym, co jest zalecane między innymi do przeprowadzenia współczynnika fluorescencji lub analizy widma na kilku długościach fal
.Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Do niniejszego badania wykorzystano gatunek alg Chroothece mobilis . Gatunek ten pozyskano z kolekcji kultur Microalgae Edaphic SE Spain, MAESE 20.29. Przegląd protokołu przedstawiono na Rysunku 1.

Rysunek 1: Przegląd badania. Chroothece mobilis jest inkubowany przez 2 tygodnie w ekstremalnych warunkach siedliskowych, takich jak różne światła monochromatyczne. Wpływ na fizjologię Chroothece jest oceniany na podstawie autofluorescencji białek zawartych w fykobilisomach i fotosystemach przy użyciu konfokalnego skaningowego mikroskopu laserowego. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
1. Przygotowanie próbek
- Przygotować inokulum Chroothece mobilis z kultury agarowej z kolekcji poprzez przeniesienie jej do płynnego medium SWES (Tabela 2).
UWAGA: SWES „Seewasser + Erddekokt + Salze” = medium na bazie wody morskiej23. - Utrzymywać wszystkie kultury przez 2 tygodnie przy fotoperiodzie 16:8 światło/ciemność w temperaturze 20 °C, w warunkach niskiego natężenia białego światła (LL: 80 µM/m2/s) i bez wytrząsania, aż do uzyskania pożądanej gęstości komórek (patrz krok 1.3).
UWAGA: Warunki oświetlenia podczas wzrostu to natężenie światła 80 µM/m2/s (czynne promieniowanie fotosyntetyczne, PAR). Warunki te są stosowane jako warunki niskiego oświetlenia (kontrola). Skład medium SWES znajduje się w Tabeli 2. - Przeprowadzić inokulacje dla poszczególnych eksperymentów w fazie wykładniczej kultury, przy gęstości komórek 5 x 10³ cells/mL w płytce 24-dołkowej, stosując 1 mL na dołek.
UWAGA: Odliczanie komórek należy przeprowadzić przy użyciu komory Neubauera24, a w razie potrzeby rozcieńczyć kulturę medium SWES.
| Skład pożywki SWES | |
| Składnik | Stężenie |
| KNO3 | 1.98 mM |
| K2HPO4 | 115 µM |
| MgSO4 | 81 µM |
| ZnSO4, 7H2O | 17 nM |
| MnSO4, 7H2O | 45 Nm |
| H3BO3, 4H2O | 3.1 mM |
| Co(NO3)2 | 17 mM |
| Na2MoO4, 6H2O | 21 nM |
| CuSO4, 2H2O | 0.1 nM |
| FeSO4, 5H2O | 13 µM |
| EDTA, 7H2O | 11 µM |
| Wit. B12 | 5 µg |
| Wyciąg z gleby | 30 mL |
| Filtrowana woda rzeczna | 455 mL |
Tabela 2: Skład pożywki SWES.
2. Rekonstrukcja ekstremalnych warunków siedliskowych glonów: wpływ monochromatycznego światła zielonego i czerwonego
- Do każdego dołka płytki 24-dołkowej wlej 1 mL hodowli komórkowej z kultury wyjściowej przygotowanej z wyżej wymienioną gęstością komórek (krok 1.2), aby zaszczepić każdą próbkę.
- Przez 2 tygodnie utrzymuj hodowlę komórkową pod przykryciem, aby odtworzyć efekt światła monochromatycznego.
- Użyj filtra zielonego, który przepuszcza światło zielone z zakresu od 470 do 570 nm z pikiem przy długości fali 506 nm (zgodnie ze specyfikacją producenta; patrz Tabela materiałów) i wystaw na nie hodowlę25.
- Użyj filtra czerwonego, który przepuszcza światło czerwone w zakresie od 590 do 720 nm z pikiem przy 678 nm (zgodnie ze specyfikacją producenta; patrz Tabela materiałów), aby wystawić na nie hodowlę25.
UWAGA: Warunek niskiego natężenia światła białego (LL: 80 µM/m2/s; patrz Tabela materiałów) służy jako kontrola natężenia światła w celu porównania uzyskanych efektów. Zastosowane jednostki natężenia światła to mikromol na sekundę i metr kwadratowy (µmol m-2 s-1) lub gęstość strumienia fotonów fotosyntetycznych (PPFD).
3. Obrazowanie autofluorescencyjne
UWAGA: Konfiguracja oprogramowania do obrazowania (patrz Tabela materiałów) przedstawiono na Rysunek 2.
- Włącz wszystkie komponenty odwróconego konfokalnego skaningowego mikroskopu laserowego (CLSM; patrz Tabela materiałów), w tym laser.
- Przenieś komórki z każdego dołka eksperymentalnego płytki 24-dołkowej w pożywce wzrostowej SWES do szalki z przeszklonym dnem o średnicy 35 mm (patrz Tabela materiałów) w celu obrazowania.
- Wybierz obiektyw imersyjny glicerynowy 63x/1.30 NA i nanieś glicerynę na soczewkę (patrz Tabela materiałów).
- Umieść płytkę do hodowli na stoliku mikroskopu i upewnij się, że preparat nie przemieszcza się podczas akwizycji obrazu.
- Wycentruj preparat w torze świetlnym i ustaw ostrość na centrum komórki, wybierając płaszczyznę o najwyższej intensywności fluorescencji.
- Otwórz oprogramowanie do akwizycji obrazu i wybierz xyλ z listy rozwijanej w trybie akwizycji26.
- Ustaw linię wzbudzenia lasera na 561 nm DPSS, zakres dynamiczny na 8 bitów oraz rozdzielczość na 1024 x 1024 pikseli.
UWAGA: Upewnij się, że mikroskop konfokalny jest wyposażony w laser 561 nm DPSS lub laser białego światła (WLL). - Zbierz widma emisji fluorescencji przy szerokości pasma 10 nm i kroku lambda wynoszącym 4 nm w zakresie 570-760 nm.
- Ustaw aperturę pinhole na 1 jednostkę Airy i uruchom akwizycję skanowania lambda.
- Powtórz ten proces tak wiele razy, jak to możliwe, w różnych polach widzenia, aby zebrać wystarczającą ilość danych do analizy statystycznej (zazwyczaj odchylenie standardowe poniżej 10%22).
- Powtórz ostatni krok w różnych warunkach (przy świetle czerwonym i zielonym) i zapisz dane.
UWAGA: Stosuj te same ustawienia akwizycji dla różnych próbek i warunków, aby umożliwić porównanie i przeprowadzenie analizy statystycznej.
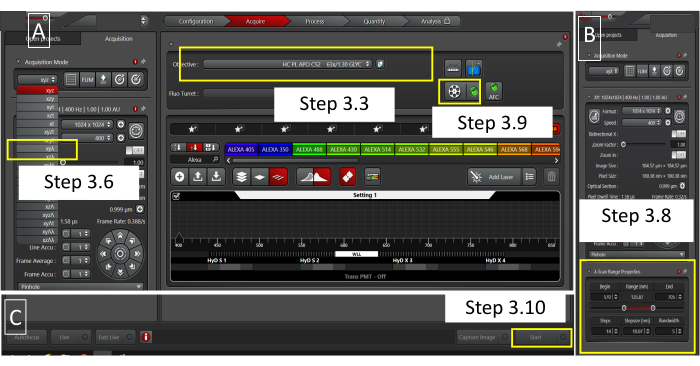
Rycina 2: Konfiguracja oprogramowania. Interfejs użytkownika oprogramowania do obrazowania służący do ustawienia parametrów skanowania lambda. (A) Od lewej do prawej: wybór trybu akwizycji xyλ z listy rozwijanej, co odpowiada krokowi 3.6 protokołu, oraz wybór odpowiedniego rodzaju obiektywu imersyjnego, co odpowiada krokowi 3.3 protokołu. Należy upewnić się, że w kroku 3.9 usunięto wszelkie filtry z drogi światła. (B) Panel konfiguracji parametrów skanowania lambda odpowiada krokowi 3.8 protokołu. (C) Uruchomienie skanowania lambda w kroku 3.10. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
4. Parametry służące do oceny fizjologii Chroothece
- Po uzyskaniu skanu lambda kliknij okno quantify na górze oprogramowania (jak pokazano na rycinie 3), aby ocenić zebrane widma emisji fluorescencji. Przejdź do okna Open project i wybierz jeden plik xyλ (rycina 3).
- W oprogramowaniu do obrazowania wybierz opcję Stack profile analysis.
- Zdefiniuj obszar zainteresowania (ROI) o powierzchni 4 µm2 w centrum komórki, aby przeanalizować średnią intensywność fluorescencji (MFI). Eksportuj dane w formacie CSV.
UWAGA: Ważne jest, aby unikać obecności czarnych pikseli (aby upewnić się, że wybrane piksele zawierają wartości dodatnie) i zawsze zachowywać ROI o tej samej wielkości. - Powtórz ten proces dla różnych komórek w różnych warunkach, aby uzyskać wystarczającą ilość danych do przeprowadzenia analizy statystycznej.
- Otwórz pliki CSV, aby wybrać poszczególne piki emisji fluorescencji z fikoobiliprotein i chlorofili dla wszystkich zmierzonych ROI.
- W pliku CSV wybierz odpowiednio dane fluorescencji dla fikoerytryny-fikocyjanobiliny (PE-PCB; 620 nm), C-fikocyjaniny (CPC; 648 nm), allofikocyjaniny (APC; 660 nm) oraz chlorofilu a (Chl a; 680 nm).
- Utwórz nową tabelę zawierającą wszystkie maksymalne wartości fluorescencji uzyskane z każdego piku fikoobiliprotein i chlorofili, a następnie przedstaw dane na wykresie.
- Przeprowadź analizę statystyczną.
- Przeanalizuj, czy uzyskane dane spełniają warunki normalności i homoskedastyczności27.
- Jeśli pierwszy warunek jest spełniony, przeprowadź analizę testem t-Studenta27,28. W przeciwnym razie wykonaj test U Manna-Whitneya29.
- Różnice uznaj za istotne statystycznie przy wartościach p <0,05.
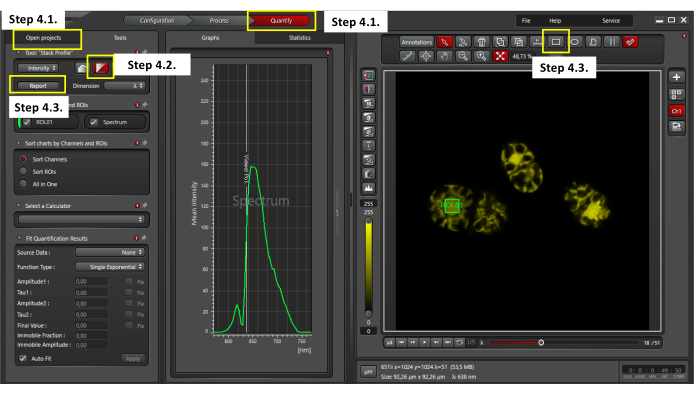
Rysunek 3: Ocena autofluorescencji Chroothece. Aby przeprowadzić analizę autofluorescencji, należy wybrać okno kwantyfikacji oraz jeden plik xyλ w oknie otwartych projektów (krok 4.1); wybrać wizualizację profilu stosu (stack profile visualization) (krok 4.2); zaznaczyć ROI o powierzchni 4 µm2 w centrum komórki i kliknąć przycisk raportu, aby wyeksportować dane skanowania lambda w formacie CSV (krok 4.3). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Chlorofil a zazwyczaj pochłania niebieskie i czerwone długości fal światła widzialnego, podczas gdy fykobiliproteiny wykorzystują długości fal zielone, żółte i pomarańczowe7. Autofluorescencja tych pigmentów umożliwia zastosowanie pierwszego podejścia do badania zachowania fykobiliprotein i chlorofilu w warunkach eksperymentalnych i terenowych.
Poprzez porównanie uzyskanych danych i przedstawienie ich na różnych wykresach można wyróżnić istotne zmiany w średniej intensy...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Niektóre jednokomórkowe lub kolonialne krasnorosty czerwone, takie jak Chroothece, rosną powoli in vitro, ale zawierają wiele związków autofluorescencyjnych, które można analizować za pomocą analizy spektralnej pod mikroskopem konfokalnym, gdzie można wykryć różnice w pikach emisji pigmentu. Spektralna konfokalna mikroskopia fluorescencyjna pozwoliła nam na przeprowadzenie badań in vivo w celu oceny adaptacji lub aklimatyzacji organizmów fotosyntetycznych
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do zadeklarowania konfliktu interesów.
Podziękowania
To badanie zostało przeprowadzone w ramach projektów TIN2015-68454-R i 20961/PI/18, finansowanych przez hiszpańskie Ministerstwo Gospodarki i Konkurencyjności oraz Fundację Séneca Regionu Murcji. Irene Hernández Martínez i Francisco Javier Ibáñez López z Sekcji Wsparcia Statystycznego Obszaru Naukowo-Badawczego Uniwersytetu w Murcji (Sección de Apoyo Estadístico (SAE), Área Científica y de Investigación (ACTI), Universidad de Murcia, (Rysunek 1 został narysowany na podstawie zdjęć z Servier Medical Art. Servier Medical Art by Servier jest dostępny na licencji Creative Commons Attribution 3.0 Unported (https://creativecommons.org/licenses/by/3.0/)
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| µ-Dish 35 mm, wysokie szklane dno | Ibidi | 81158-24 | |
| płytka studzienkowa | Ibidi | 82406 | płaskie i przezroczyste dno do mikroskopii wysokoprzepustowej |
| Inkubator glonów | Panasonic | MLR-352-PE | |
| Konfokalny laserowy mikroskop skaningowy | Leica Microsystems | SP8 TCS-Flask | |
| Fisher Scientific | 15380591 | Można kupić w lokalnym sklepie spożywczym lub sklepach internetowych. | |
| zielony filtr | PNTA, filtry LEE-Można | kupić w lokalnym sklepie spożywczym lub sklepach internetowych. | |
| HC PL APO 63X/1.30 GLYC CORR CS2 | Leica Microsystems | 506353 | Soczewki zanurzeniowe z glicerolem |
| Oprogramowanie do akwizycji obrazu. LAS X | Leica Microsystems | SP8 TCS-Źródło | |
| światła | Panasonic | FL40SSENW/37MLR-352-PE | |
| Fotoradiometr kwantowy | DeltaOhm | Oprogramowanie DO 9721-R | |
| R Core Team, 2020 | 4.0.2. | - | |
| czerwony filtr | PNTA, filtry LEE-Można | kupić w lokalnym sklepie spożywczym lub sklepach internetowych. | |
| SWES medium | Uniwersytet w Murcji | - | - |
| Ciecz zanurzeniowa typu G | Leica Microsystems | 11513910 | Glicerol |
Bibliografia
- Vis, M. L., Necchi, O. Freshwater Red Algae: Phylogeny, Taxonomy and Biogeography. , Springer Nature. (2021).
- Aboal, M., et al. Diversity of Chroothece (Rhodophyta, Stylonematales) including two new species. European Journal of Phycology. 53 (2), 189-197 (2018).
- Millach, L., Obiol, A., Solé, A., Esteve, I. A novel method to analyse in vivo the physiological state and cell viability of phototrophic microorganisms by confocal laser scanning microscopy using a dual laser. Journal of Microscopy. 268 (1), 53-65 (2017).
- Millach, L., Villagrasa, E., Solé, A., Esteve, I. Combined confocal laser scanning microscopy techniques for a rapid assessment of the effect and cell viability of Scenedesmus sp. DE2009 under metal stress. Microscopy and Microanalysis. 25 (4), 998-1003 (2019).
- Poryvkina, L., Babichenko, S., Leeben, A. Analysis of phytoplankton pigments by excitation spectra of fluorescence. Proceedings of EARSeL-SIG-Workshop LIDAR. , Dresden. (2000).
- Beutler, M., et al. A fluorometric method for the differentiation of algal populations in vivo and in situ. Photosynthesis Research. 72 (1), 39-53 (2002).
- Grigoryeva, N., Chistyakova, L. Fluorescence microscopic spectroscopy for investigation and monitoring of biological diversity and physiological state of cyanobacterial cultures. Cyanobacteria. , (2018).
- Grigoryeva, N. Fluorescence Methods for Investigation of Living Cells and Microorganisms. , (2020).
- Roshchina, V. V. Vital autofluorescence: application to the study of plant living cells. International Journal of Spectroscopy. 2012, 5-18 (2012).
- Roldán, M., Thomas, F., Castel, S., Quesada, A., Hernández-Mariné, M. Noninvasive pigment identification in single cells from living phototrophic biofilms by confocal imaging spectrofluorometry. Applied and Environmental Microbiology. 70 (6), 3745-3750 (2004).
- Hense, B. A., Gais, P., Jütting, U., Scherb, H., Rodenacker, K. Use of fluorescence information for automated phytoplankton investigation by image analysis. Journal of Plankton Research. 30 (5), 587-606 (2008).
- Millie, D. F., Schofield, O. M., Kirkpatrick, G. J., Johnsen, G., Evens, T. J. Using absorbance and fluorescence spectra to discriminate microalgae. European Journal of Phycology. 37 (3), 313-322 (2002).
- Richardson, T. L., et al. Spectral fluorometric characterization of phytoplankton community composition using the Algae Online Analyser. Water Research. 44 (8), 2461-2472 (2010).
- Kieleck, C., Bousquet, B., Le Brun, G., Cariou, J., Lotrian, J. Laser induced fluorescence imaging: application to groups of macroalgae identification. Journal of Physics D: Applied Physics. 34 (16), 2561-2571 (2001).
- Coronado-Parra, T., Roldán, M., Aboal, M. Confocal microscopy in ecophysiological studies of algae: a door to understanding autofluorescence in red algae. Microscopy and Microanalysis. 28 (1), 218-226 (2022).
- Mulec, J., Kosi, G. Lampenflora algae and methods of growth control. Journal of Cave and Karst Studies. 71 (2), 109-115 (2009).
- Nelissen, B., De Baere, R., Wilmotte, A., De Wachter, R. Phylogenetic relationships of nonaxenic filamentous cyanobacterial strains based on 16S rRNA sequence analysis. Journal of Molecular Evolution. 42 (2), 194-200 (1996).
- Roldán, M., Oliva, F., Gónzalez Del Valle, M. A., Saiz-Jimenez, C., Hernández-Mariné, M. Does green light influence the fluorescence properties and structure of phototrophic biofilms. Applied and Environmental Microbiology. 72 (4), 3026-3031 (2006).
- Topinka, J. A., Bellows, W. K., Yentsch, C. S. Characterization of marine macroalgae by fluorescence signatures. International Journal of Remote Sensing. 11 (12), 2329-2335 (1990).
- Roldán, M., Ascaso, C., Wierzchos, J. Fluorescent fingerprints of endolithic phototrophic cyanobacteria living within halite rocks in the atacama desert. Applied and Environmental Microbiology. 80 (10), 2998-3006 (2014).
- Solé, A., Diestra, E., Esteve, I. Confocal laser scanning microscopy image analysis for cyanobacterial biomass determined at microscale level in different microbial mats. Microbial Ecology. 57 (4), 649-656 (2009).
- Ramírez, O., García, A., Rojas, R., Couve, A., Härtel, S. Confined displacement algorithm determines true and random colocalization in fluorescence microscopy. Journal of Microscopy. 239 (3), 173-183 (2010).
- Universität Gottingen-Georg-August. SAG Culture Collection of Algae. Universität Gottingen-Georg-August. , www.uni-goettingen.de (2022).
- Zhang, M., et al. Improvement of cell counting method for Neubauer counting chamber. Journal of Clinical Laboratory Analysis. 34 (1), 23024(2020).
- Wolf, E., Schüßler, A. Phycobiliprotein fluorescence of Nostoc punctiforme changes during the life cycle and chromatic adaptation: Characterization by spectral confocal laser scanning microscopy and spectral unmixing. Plant, Cell and Environment. 28 (4), 480-491 (2005).
- Zucker, R. M., Rigby, P., Clements, I., Salmon, W., Chua, M. Reliability of confocal microscopy spectral imaging systems: Use of multispectral beads. Cytometry Part A. 71 (3), 174-189 (2007).
- Field, A. M. Discovering Statistics Using R. , (2013).
- Linnet, K. Limitations of the paired t-test for evaluation of method comparison data. Clinical Chemistry. 45 (2), 314-315 (1999).
- Rosner, B., Grove, D. Use of the Mann-Whitney U-test for clustered data. Statistics in Medicine. 18 (11), 1387-1400 (1999).
- Colin, L., et al. Imaging the living plant cell: from probes to quantification. The Plant Cell. 34 (1), 247-272 (2022).
- Borlinghaus, R. The white confical: continuous spectral tuning in excitation and emission. Optical Fluorescence Microscopy. , Springer. Berlin, Heidelberg. (2011).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
