Pupilometria, prosta i nieinwazyjna technika, jest proponowana jako metoda określania progów słyszenia w hałasie u normalnie słyszących zwierząt i modelach zwierzęcych różnych patologii słuchowych.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Pupilometria do oceny czucia słuchowego u świnek morskich
W tym artykule
Podsumowanie
Streszczenie
Narażenie na hałas jest główną przyczyną odbiorczego ubytku słuchu. Modele zwierzęce ubytku słuchu wywołanego hałasem pozwoliły uzyskać mechanistyczny wgląd w anatomiczne i fizjologiczne patologie leżące u podstaw ubytku słuchu. Jednak powiązanie deficytów behawioralnych obserwowanych u ludzi z ubytkiem słuchu z deficytami behawioralnymi w modelach zwierzęcych pozostaje wyzwaniem. W tym przypadku zaproponowano pupilometrię jako metodę, która umożliwi bezpośrednie porównanie danych behawioralnych zwierząt i ludzi. Metoda opiera się na zmodyfikowanym paradygmacie dziwacznym - przyzwyczajaniu badanego do powtarzającej się prezentacji bodźca i sporadycznego prezentowania bodźca dewiacyjnego, który różni się w pewien parametryczny sposób od powtarzającego się bodźca. Podstawowym założeniem jest to, że jeśli zmiana między powtarzającym się a odchylającym bodźcem zostanie wykryta przez badanego, wywoła to reakcję rozszerzenia źrenicy, która jest większa niż ta wywołana przez powtarzający się bodziec. Podejście to zostało zademonstrowane za pomocą zadania kategoryzacji wokalizacji u świnek morskich, modelu zwierzęcego szeroko stosowanego w badaniach słuchowych, w tym w badaniach nad ubytkiem słuchu. Przedstawiając wokalizacje z jednej kategorii wokalizacji jako bodźce standardowe, a drugą kategorię jako bodźce dziwaczne osadzone w szumie w różnych proporcjach sygnału do szumu, wykazano, że wielkość rozszerzenia źrenicy w odpowiedzi na kategorię dziwaczną zmienia się monotonicznie wraz ze stosunkiem sygnału do szumu. Analizy krzywej wzrostu można następnie wykorzystać do scharakteryzowania przebiegu czasowego i istotności statystycznej tych reakcji rozszerzenia źrenicy. W niniejszym protokole opisano szczegółowe procedury aklimatyzacji świnek morskich do układu, przeprowadzania pupilometrii oraz oceny/analizy danych. Chociaż technika ta została zademonstrowana u normalnie słyszących świnek morskich w tym protokole, metoda ta może być stosowana do oceny skutków sensorycznych różnych form ubytku słuchu u każdego pacjenta. Efekty te mogą być następnie skorelowane z równoczesnymi pomiarami elektrofizjologicznymi i obserwacjami anatomicznymi post hoc.
Wprowadzenie
Na średnicę źrenicy (PD) może wpływać wiele czynników, a pomiar PD, który zmienia się w czasie, jest znany jako pupillometria. PD jest kontrolowany przez mięsień zwieracza tęczówki (zaangażowany w zwężanie) i mięsień rozszerzający tęczówkę (zaangażowany w rozszerzanie). Mięsień zwężający jest unerwiony przez układ przywspółczulny i obejmuje projekcje cholinergiczne, podczas gdy rozszerzacz tęczówki jest unerwiony przez układ współczulny z udziałem projekcji noradrenergicznych i cholinergicznych1,2,3. Najbardziej znanym bodźcem wywołującym zmiany PD są reakcje zwężenia i rozszerzenia luminancji źrenicy, które mogą być wywołane przez zmiany intensywności światła otoczenia2. PD zmienia się również w funkcji odległości ogniskowej2. Od dziesięcioleci wiadomo jednak, że PD wykazuje również fluktuacje niezwiązane z luminancją4,5,6,7. Na przykład zmiany w wewnętrznych stanach psychicznych mogą wywoływać przejściowe zmiany PD. Źrenica rozszerza się w odpowiedzi na bodźce naładowane emocjonalnie lub zwiększa się wraz z pobudzeniem4,5,8,9. Rozszerzenie źrenicy może być również związane z innymi mechanizmami poznawczymi, takimi jak zwiększony wysiłek umysłowy lub uwaga10,11,12,13. Ze względu na ten związek między różnicami wielkości źrenic a stanami psychicznymi, zmiany PD zostały zbadane jako marker zaburzeń klinicznych, takich jak schizofrenia14,15, anxiety16,17,18, choroba Parkinsona19,20, oraz choroba Alzheimera21, między innymi. U zwierząt zmiany PD śledzą wewnętrzne stany behawioralne i są skorelowane z poziomem aktywności neuronalnej w obszarach korowych22,23,24,25. Wykazano również, że średnica źrenicy jest wiarygodnym wskaźnikiem stanu snu u myszy26. Te zmiany PD związane z pobudzeniem i stanem wewnętrznym zwykle występują w długich skalach czasowych rzędu kilkudziesięciu sekund.
W dziedzinie badań nad słuchem, zarówno u osób z prawidłowym słuchem, jak i u osób niedosłyszących, wysiłek słuchowy i percepcja słuchowa zostały ocenione za pomocą pupilometrii. Badania te zazwyczaj obejmują przeszkolone osoby badawcze27,28,29,30, które wykonują różnego rodzaju zadania wykrywania lub rozpoznawania. Ze względu na wyżej wymieniony związek między pobudzeniem a PD, wykazano, że zwiększone zaangażowanie w zadania i wysiłek związany ze słuchaniem są skorelowane ze zwiększonymi reakcjami rozszerzenia źrenic30,31,32,33,34,35. W związku z tym pupilometria została wykorzystana do wykazania, że zwiększony wysiłek słuchowy jest zużywany do rozpoznawania spektralnie zdegradowanej mowy u normalnie słyszących słuchaczy29,36. Dla osób niedosłyszących, takich jak osoby z ubytkiem słuchu związanym z wiekiem27,30,37,38,39,40,41 i użytkownicy implantów ślimakowych42,43odpowiedzi uczniów również wzrosły wraz ze spadkiem zrozumiałości mowy; Jednak słuchacze niedosłyszący wykazywali większe rozszerzenie źrenic w łatwiejszych warunkach słyszenia w porównaniu z osobami normalnie słyszącymi27,30,37,38,39,40,41,42,43. Ale eksperymenty, które wymagają od słuchacza wykonania zadania rozpoznawania, nie zawsze są możliwe - na przykład u niemowląt lub w niektórych modelach zwierzęcych. W związku z tym niezwiązane z luminancją reakcje źrenic wywołane przez bodźce akustyczne mogą być realną alternatywną metodą oceny wykrywania słuchowego w tych przypadkach44,45. Wcześniejsze badania wykazały przejściowe i związane z bodźcem rozszerzenie źrenic w ramach odruchu orientacyjnego46. Późniejsze badania wykazały wykorzystanie dylatacji źrenic związanych z bodźcem do wyprowadzenia krzywych wrażliwości na częstotliwość u sów47,48. Ostatnio metody te zostały zaadaptowane do oceny czułości odpowiedzi rozszerzenia źrenicy u niemowląt u ludzkich niemowląt48. Wykazano, że pupilometria jest wiarygodnym i nieinwazyjnym podejściem do szacowania progów wykrywania i dyskryminacji słuchowej u biernie słuchających świnek morskich (GP) przy użyciu szerokiego zakresu bodźców prostych (tony) i złożonych (wokalizacje GP) bodźców49. Te zmiany PD związane z bodźcem zwykle występują w szybszych skalach czasowych rzędu kilku sekund i są związane z czasem bodźca. W tym miejscu zaproponowano pupilometrię zmian PD związanych z bodźcem jako metodę badania behawioralnych skutków różnych rodzajów upośledzenia słuchu w modelach zwierzęcych. W szczególności protokoły pupillometryczne do stosowania w lekarzach pierwszego kontaktu, dobrze ugruntowany model zwierzęcy różnych typów patologii słuchowych50,51,52,53,54,55,56 (zobacz również reference57 w celu uzyskania wyczerpującej recenzji).
Chociaż ta technika jest demonstrowana u lekarzy pierwszego kontaktu z osobami normalnie słyszącymi, metody te można łatwo dostosować do innych modeli zwierzęcych i modeli zwierzęcych różnych patologii słuchowych. Co ważne, pupilometria może być łączona z innymi nieinwazyjnymi pomiarami, takimi jak EEG, a także z inwazyjnymi zapisami elektrofizjologicznymi w celu zbadania mechanizmów leżących u podstaw ewentualnych deficytów detekcji i percepcji dźwięku. Wreszcie, podejście to można również wykorzystać do ustalenia szerokich podobieństw między modelami ludzkimi i zwierzęcymi.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
W przypadku wszystkich procedur eksperymentalnych należy uzyskać zgodę Instytucjonalnego Komitetu Opieki i Wykorzystania Zwierząt (IACUC) oraz przestrzegać wytycznych NIH dotyczących opieki i wykorzystania zwierząt laboratoryjnych. W Stanach Zjednoczonych świnki morskie podlegają dodatkowo regulacjom Departamentu Rolnictwa Stanów Zjednoczonych (USDA). Wszystkie procedury w niniejszym protokole zostały zatwierdzone przez IACUC Uniwersytetu w Pittsburghu i są zgodne z wytycznymi NIH dotyczącymi opieki i wykorzystania zwierząt laboratoryjnych. W tym eksperymencie wykorzystano trzy samce dzikiego typu, pigmentowane świnki morskie w wieku od 4 do 10 miesięcy, o masie ciała ~600-1,000 g.
1. Procedura chirurgiczna
- Wszystkie eksperymenty pupillometryczne należy przeprowadzić na czuwających, z unieruchomioną głową i pasywnie słuchających pigmentowanych świniach gwinejskich (GPs). Zweryfikuj prawidłowy słuch u osobników doświadczalnych, wykorzystując rejestrację potencjałów wywołanych pnią mózgu (ABR) w odpowiedzi na bodźce klikowe i czyste tony58.
UWAGA: Chociaż samo gromadzenie danych pupillometrycznych jest nieinwazyjne, w niniejszym protokole zastosowano inwazyjną operację implantacji trzpienia do głowy w celu unieruchomienia głowy zwierzęcia podczas procedury. Alternatywy przedstawiono w sekcji Dyskusja. - W pierwszej kolejności wszystkim zwierzętom doświadczalnym należy zaimplantować stalowy trzpień do unieruchomienia głowy w znieczuleniu izofluranem. Wykorzystaj aseptyczne techniki chirurgiczne, aby przymocować trzpień do czaszki, stosując kombinację wkrętów kostnych i akrylu dentystycznego58.
- Zapewnij zwierzętom opiekę pooperacyjną, w tym podawanie ogólnoustrojowych i miejscowych leków przeciwbólowych. Po 2-tygodniowym okresie rekonwalescencji stopniowo aklimatyzuj zwierzęta do układu eksperymentalnego.
UWAGA: Procedura chirurgiczna opiera się na wcześniej opublikowanych metodach dla GPs58 oraz innych gatunków59,60 i nie stanowi głównego przedmiotu niniejszego protokołu.
2. Aklimatyzacja zwierząt do układu eksperymentalnego
UWAGA: Eksperymenty zazwyczaj przeprowadzane są w komorze lub kabinie wygłuszonej (patrz Tabela materiałów). Czas wymagany do oswojenia zwierzęcia z układem różni się w zależności od osobnika. Typowe czasy aklimatyzacji odnotowano poniżej. Dobrze zaaklimatyzowane zwierzę zniesie unieruchomienie głowy przy minimalnym ruchu ciała, co pozwoli na uzyskanie dokładniejszych pomiarów średnicy źrenicy.
- Po 2-tygodniowym okresie rekonwalescencji należy w pierwszej kolejności oswoić zwierzęta z obsługą i transportem (2-3 dni). Aklimatyzacja ta jest niezbędna w celu zmniejszenia stresu i lęku. Aby oswoić zwierzę z obsługą, umieść je w pojemniku transportowym na coraz dłuższy czas (10-30 min) i manipuluj zwierzęciem przez coraz dłuższy czas (10-30 min).
- Następnie należy aklimatyzować zwierzę do układu eksperymentalnego (2-3 dni), umieszczając je w zamknięciu na 10-45 min (Rycina 1A). Zamknięcie musi umożliwiać niewielkie zmiany pozycji ciała dla komfortu zwierzęcia podczas eksperymentu. Zapewnij możliwość niewielkich zmian pozycji ciała dla komfortu zwierzęcia podczas eksperymentu. Jednak wiadomo, że rozszerzenie źrenic poprzedza ruch49. Dlatego należy mierzyć ruch zwierzęcia i uwzględnić go w analizie danych (Rycina 1C).
- W ramach tej aklimatyzacji należy manualnie chwytać wszczepiony implant głowowy, tak jakby zwierzę miało zostać unieruchomione za głowę. Trzymaj implant głowowy przez coraz dłuższy czas (10-60 s).
- Po manualnej aklimatyzacji i w zależności od zachowania zwierzęcia, należy spróbować unieruchomić głowę zwierzęcia na sztywnej ramie za pomocą uchwytu implantu.
- Powoli zwiększaj czas unieruchomienia głowy (10-45 min), aż zwierzę stanie się spokojne i stosunkowo nieruchome podczas unieruchomienia głowy (2-3 dni).
- Oswoj zwierzę z obecnością kamery, źródła światła podczerwonego (IR) oraz białego źródła światła (1-2 dni). Włączaj białe światło, stopniowo zwiększając czas naświetlania (od 10 min do 30 min).
- Oswoj zwierzę ze stymulacją akustyczną, odtwarzając różnorodne dźwięki (np. tony czyste, kliknięcia, wokalizacje) na różnych poziomach głośności (1-2 dni, równolegle z krokiem 2.6). Aby zminimalizować habituację na bodźce eksperymentalne, w tym kroku należy używać dźwięków innych niż te zaplanowane do eksperymentów pupillometrycznych.
3. Kalibracja kamery źrenicy
UWAGA: Kamera wykorzystywana do pupillometrii generuje obraz wideo poprzez USB do zestawu oprogramowania do pupillometrii. Z tego nagrania wideo średnica źrenicy jest wyodrębniana za pomocą dopasowania elipsy oraz regulowanej przez użytkownika wartości progowej przez zestaw oprogramowania do pupillometrii (patrz Tabela materiałów). Następnie oprogramowanie komunikuje się z kartą przetwornika cyfrowo-analogowego. Karta generuje analogową wartość napięcia proporcjonalną do średnicy źrenicy. Wymagana jest kalibracja w celu przeliczenia tej wartości napięcia z powrotem na średnicę źrenicy wyrażoną w jednostkach długości.
- Umieść arkusz papieru z obrazami czarnych dysków o znanej średnicy w miejscu, w którym podczas pupillometrii znajdować się będzie oko świnki morskiej (GP). W przypadku świnek morskich średnica źrenicy (PD) mieści się w zakresie 4 mm. Należy zatem przeprowadzić kalibrację przy użyciu dysków o średnicach 3 mm, 4 mm i 5 mm.
- Umieść kamerę do pupillometrii (patrz Tabela materiałów) w tej samej odległości (25 cm), w której będą przeprowadzane eksperymenty. Dostosuj przysłonę i ostrość aparatu, aż do uzyskania wyraźnego obrazu tarczy o znanej średnicy.
- W oprogramowaniu do akwizycji danych pupillometrycznych (patrz Tabela materiałów), dostosuj próg tak, aby obrys dopasowanej elipsy ściśle odpowiadał obrazowi tarczy, a następnie zanotuj wartość analogowego napięcia wyjściowego oraz skalowanie.
- Powtórz tę procedurę dla dysków o średnicach 3 mm, 4 mm i 5 mm. Następnie przedstaw w formie tabeli rzeczywiste wartości średnic (w mm) odpowiadające wartościom napięcia wyjściowego sygnału analogowego.
4. Pozyskiwanie danych pupillometrycznych
- Wszystkie eksperymenty należy przeprowadzić w kabinie lub komorze dźwiękochłonnej, której wewnętrzne ściany są pokryte pianką anechoiczną.
- W celu podawania bodźców w polu swobodnym, zamontuj skalibrowany głośnik na ścianie komory dźwiękochłonnej, na wysokości odpowiadającej pozycji, w której znajdzie się zwierzę.
UWAGA: Wybór głośnika zależy od badanego gatunku oraz planowanych bodźców. W przypadku wokalizacji GP należy użyć głośnika szerokopasmowego o stosunkowo płaskiej charakterystyce częstotliwościowej (±3 dB) w zakresie częstotliwości wokalizacji od 0,5 do 3 kHz (Rycina 1A). - Umieść zwierzę w obudowie, upewniając się, że duże ruchy ciała nie są możliwe (Rycina 1A). Przymocuj głowę zwierzęcia do sztywnej ramy zgodnie z opisem w kroku 2 (Rycina 1A).
- Umieść czujnik piezoelektryczny pod obudową, aby wykrywać i rejestrować ruchy zwierzęcia (Rycina 1A).
- Aby przygotować podawanie podmuchu powietrza, użyj uchwytu przymocowanego do blatu stołu, aby umieścić końcówkę pipety w odległości ok. 15 cm przed pyszczkiem zwierzęcia. Podłącz rurkę silikonową (średnica ok. 3 mm) do końcówki pipety, a następnie podłącz rurkę do regulowanego cylindra z powietrzem.
- Utrzymuj ciśnienie powietrza w cylindrze w zakresie od 20 do 25 psi. Przeprowadź rurkę przez zawór zaciskowy, aby kontrolować czas i czas trwania podmuchu powietrza za pomocą sterowanego komputerowo przekaźnika.
- Oświetl oko za pomocą macierzy diod LED podczerwieni umieszczonej w odległości ok. 10 cm. Użyj białego oświetlenia LED o natężeniu ok. 2 000 cd/m2, aby oświetlić obrazowane oko i doprowadzić bazową średnicę źrenicy (PD) do ok. 3,5 mm. Utrzymuj stałe warunki oświetlenia w komorze eksperymentalnej podczas wszystkich sesji doświadczalnych.
UWAGA: Przy normalnym oświetleniu laboratoryjnym (ok. 500 cd/m2) źrenica GP jest dość rozszerzona, co nie pozwala na obserwację dalszego rozszerzenia wywołanego bodźcem. Dzięki zastosowaniu dodatkowego oświetlenia źrenica zostaje sprowadzona do średnicy bazowej ok. 3,5 mm, co zapewnia wystarczający zakres dynamiczny do obserwacji rozszerzenia powiązanego z bodźcem. Zapewnia to również spójne wartości bazowe pomiędzy sesjami i osobnikami. - Uruchom oprogramowanie do akwizycji źrenicy i zarejestruj wideo (przy 90 fps) źrenicy, używając kamery z obiektywem 16 mm (rozdzielczość przestrzenna 0,15° kąta widzenia) i filtrem podczerwieni (IR) umieszczonym w odległości 25 cm od obrazowanego oka. Upewnij się, że oko znajduje się w centrum obszaru obrazowania.
- Reguluj aperturę i ostrość kamery oraz poziom IR, aż kontur obrazowanej źrenicy będzie ostry.
- W oprogramowaniu do akwizycji źrenicy zdefiniuj obszar zainteresowania zawierający źrenicę, zaznaczając myszą obszar prostokątny.
- Użyj panelu sterowania oprogramowania do akwizycji źrenicy, aby dostosować jasność i kontrast zarejestrowanego wideo. Ustaw gęstość skanowania na 5 i dostosuj próg tak, aby dopasowana elipsa ściśle odpowiadała konturowi źrenicy na wideo.
- Używając oprogramowania procesora interfejsu neuronowego, zarejestruj i zapisz sygnał analogowy z przebiegu PD, przebieg napięcia z czujnika piezoelektrycznego rejestrującego ruch, czasy podawania bodźców oraz czasy podawania podmuchów powietrza.
5. Detekcja szumu tła oraz dyskryminacja kategoryczna z wykorzystaniem zmodyfikowanego paradygmatu oddball
UWAGA: Bodźce do eksperymentów pupillometrycznych stanowiły wokalizacje GP nagrane w kolonii zwierząt58. Próbki wokalizacji znajdują się w następnym repozytorium: https://github.com/vatsunlab/CaviaVOX. W szczególności do wywołania reakcji źrenic przedstawionych w reprezentatywnych wynikach wykorzystano wołania typu „wheek” i „whine”. Z każdej kategorii należy wybrać wokalizacje o zbliżonej długości. Aby uwzględnić różnice w amplitudzie nagrania i obwiedniach czasowych wokalizacji, w razie potrzeby należy znormalizować wokalizacje według ich wartości skutecznych (r.m.s.).
- Prezentuj bodźce słuchowe za pomocą programu MATLAB z zastosowaniem odpowiedniej częstotliwości próbkowania. Dla świni guinea (GP), która jest zwierzęciem słyszącym niskie częstotliwości, wystarczająca jest częstotliwość próbkowania 100 kHz.
- Wybierz po osiem różnych przykładów wokalizacji świni domowej (GP) o podobnej długości z dwóch różnych kategorii wokalizacji (np. kwikania i skomlenia). Jedna kategoria (osiem przykładów) będzie służyć jako bodźce standardowe, a druga kategoria (osiem przykładów) jako bodźce rzadkie (oddball) lub odchylone (Rysunek 2A).
- Aby wygenerować 1-sekundowe bodźce standardowe i dewariantne osadzone w szumie przy różnych poziomach stosunku sygnału do szumu (SNR), należy dodać do wezwań szum biały o tej samej długości (szum bramkowany). Zakres SNR badany w tym eksperymencie mieści się w przedziale od -24 dB do +40 dB.
- Stosując projekt blokowy, w każdej sesji eksperymentalnej (trwającej ok. 12 min) należy zebrać dane odpowiadające pojedynczemu poziomowi SNR. W każdej sesji należy wykorzystać osiem egzemplarzy jednej kategorii wokalizacji przy określonym SNR jako bodźce standardowe oraz osiem egzemplarzy drugiej kategorii wokalizacji przy tym samym poziomie SNR jako bodźce deviant.
UWAGA: Typowy blok eksperymentalny trwa około 12 minut. W zależności od zachowania zwierzęcia oraz habituacji odpowiedzi źrenicznych możliwe może być pozyskanie danych dla 3–4 bloków każdego dnia (około 45–60 min). Przez cały ten czas należy uważnie monitorować zwierzę za pomocą wideo źrenicy i śledzenia ruchu, a także bezpośrednio pomiędzy blokami. - Dla każdej sesji należy przygotować pseudolosową sekwencję prezentacji bodźców zawierającą bodźce standardowe >w 90% przypadków. Należy zapewnić, aby pomiędzy bodźcami odbiegającymi wystąpiło co najmniej 20 prób z bodźcami standardowymi (Rysunek 2B).
UWAGA: W zależności od eksperymentu, kolejność bodźców odbiegających w sekwencji prezentacji bodźców może być opracowana w układzie kwadratu łacińskiego, aby zapewnić, że każdy unikalny bodziec odbiegający zajmuje unikalną pozycję sekwencyjną w każdej sesji. Wyciągnięcie średniej ze wszystkich sesji pozwala w ten sposób zminimalizować wpływ pozycji bodźca odbiegającego w całej sekwencji bodźców. - Stosuj stałą intensywność bodźca (na przykład 85 dB SPL) podczas wszystkich prezentacji bodźców.
UWAGA: Należy użyć odpowiedniego przetwornika cyfrowo-analogowego do wygenerowania sygnału audio, osłabić go do pożądanego poziomu dźwięku za pomocą programowalnego tłumika, wzmocnić sygnał za pomocą wzmacniacza mocy i przekazać go przy użyciu skalibrowanego głośnika (np. sprzęt, patrz Tabela materiałów). - Prezentuj bodźce z wysoką regularnością czasową (1 s bodźca, po której następuje 3 s ciszy, zgodnie z reprezentatywnymi wynikami).
UWAGA: Reakcje rozszerzenia źrenic są powolne; zazwyczaj osiągają one szczyt około 1 s po pojawieniu się bodźca i powracają do poziomu bazowego po około 5 s49Częstotliwość prezentacji bodźców musi być wystarczająco niska, aby uwzględnić te powolne ramy czasowe. Regularność czasowa jest istotna, ponieważ przerwanie wzorca czasowego mogłoby samo w sobie zadziałać jako bodziec deviantny. - Aby utrzymać zaangażowanie zwierzęcia w bodźce i zminimalizować habituację, opcjonalnie można podać krótki podmuch powietrza (100 ms) po bodźcu deviant. Należy upewnić się, że moment podania podmuchu powietrza jest wystarczająco oddalony od czasu trwania bodźca (2,5 s od początku bodźca), tak aby wywołane bodźcem reakcje rozszerzenia źrenic osiągnęły szczyt przed wystąpieniem artefaktów mrugnięcia indukowanych podmuchem powietrza.
UWAGA: W klasycznym paradygmacie oddball nie stosuje się wzmocnień pozytywnych ani negatywnych. Ponieważ w niniejszej procedurze wykorzystano podmuch powietrza jako łagodne wzmocnienie awersyjne w celu utrzymania zaangażowania zwierzęcia w bodźce słuchowe, paradygmat ten określany jest jako zmodyfikowany paradygmat oddball.
6. Analiza i statystyka
UWAGA: Wszystkie analizy zostały przeprowadzone przy użyciu specjalistycznego kodu napisanego w programie MATLAB (dostępnego pod adresem https://github.com/vatsunlab/GP_Pupil). Opisano dwie główne metody analizy, które odnoszą się odpowiednio do rzetelności oraz przebiegu czasowego reakcji źrenic. Wybór jednej lub obu metod będzie zależał od projektu eksperymentalnego.
- Detekcja ruchu i wykluczanie prób
- Używając kodu pupil_avg_JOVE.m, przeprowadź detekcję ruchu i wykluczanie prób dla każdej sesji. Aby to zrobić, uruchom kod i wybierz plik danych z pojedynczej sesji w oknie dialogowym.
- Usuń liniowy trend z przebiegu PD i przekonwertuj jednostki z napięcia na mikrometry, korzystając z wcześniej opracowanej tabeli kalibracyjnej (patrz krok 3). Usuń również liniowy trend z przebiegu ruchu w trakcie całej sesji nagraniowej (~12 min).
- Przeanalizuj dane z sesji, wykreślając przebieg źrenicy (Rysunek 1B - górny rząd) oraz przebieg ruchu z usuniętym liniowym trendem (Rysunek 1B - dolny rząd) w czasie trwania sesji (~12 min), nałożone na znaczniki prób.
- Zmierz odchylenie standardowe (SD) przebiegu ruchu. Wyznacz czasy szczytów przebiegu ruchu za pomocą funkcji findpeaks w programie MATLAB. Za zdarzenie ruchowe uznaj szczyty, które przekroczyły próg 5 SD i są oddzielone od innych szczytów co najmniej 1 s49 (Rysunek 1B - dół).
- Odrzuć wszystkie próby (zarówno standardowe, jak i deviant), w których rozszerzenie źrenicy występuje w ciągu 7 s od zdarzenia ruchowego. Jeśli z powodu rozszerzenia źrenicy związanego z ruchem odrzucono więcej niż połowę liczby prób deviant, odrzuć całą sesję i powtórz ją.
- Wstępne przetwarzanie i wizualizacja danych
- Użyj kodu pupil_avg_JOVE.m, aby usunąć artefakty mrugania oczami, przetworzyć wstępnie dane i uzyskać średnie rozszerzenie źrenicy dla każdego bodźca w obrębie sesji. Aby to zrobić, uruchom kod i wybierz w oknie dialogowym wszystkie pliki danych przeznaczone do analizy.
- Wykryj mrugnięcia oczami (zmiany PD przekraczające 400 µm/ms) i usuń je poprzez liniową interpolację przebiegu PD w oknie czasowym 200 ms wycentrowanym na czasie wykrytego mrugnięcia. Odrzuć dane z sesji, jeśli więcej niż połowa prób deviant zawiera mrugnięcie okiem między początkiem bodźca a początkiem podmuchu powietrza.
- Zredukuj częstotliwość próbkowania danych PD z częstotliwości akwizycji 1 000 Hz do 10 Hz.
- Wyodrębnij przebiegi PD w oknie rozpoczynającym się 1 s przed początkiem bodźca i trwającym 5 s po zakończeniu bodźca. Oblicz średnią bazową wartość PD dla każdego bodźca w oknie 500 ms bezpośrednio przed początkiem bodźca. Odejmij bazową wartość PD od tych przebiegów, aby uzyskać zmianę PD wywołaną bodźcem.
- Oblicz średnie zmiany PD wywołane bodźcem dla każdego warunku bodźca w obrębie sesji dla każdego zwierzęcia, a następnie dla wszystkich zwierząt, aby wygenerować średnią odpowiedź rozszerzenia źrenicy dla każdego warunku bodźca (na przykład Rysunek 3A).
- Analiza krzywej wzrostu (GCA) w celu ilościowego określenia przebiegu czasowego zmian PD
UWAGA: Ta metoda analizy określa amplitudę i przebieg czasowy odpowiedzi rozszerzenia źrenicy i była stosowana w badaniach pupillometrycznych u ludzi27,36,40, a także u świni mórzwek49.- Połącz pionowo wszystkie wyniki z pupil_avg_JOVE.m dla wszystkich sesji, zwierząt, SNR i tłumień, aby skonstruować macierz zawierającą następujące kolumny: animalID, SNR, poziom dźwięku oraz wartości średnicy źrenicy (1-50). Używając kodu pupil_LME_JOVE.m, przeprowadź analizę krzywej wzrostu (GCA)27,36,40,49.
- Dopasuj liniowe modele mieszane z przecięciami na poziomie obiektu jako efektami losowymi oraz ortogonalnymi wielomianami czasu do drugiego stopnia jako efektami stałymi, traktując każdy deviant SNR jako oddzielną grupę, do fazy wzrostowej przebiegu średnicy źrenicy (od 0,1 do 2,1 s po początku bodźca).
- Zmodeluj fazę wzrostową przebiegu źrenicy za pomocą następującego wzoru36,49:
Pupildilation = (Intercept + Condition) + time1 * (βtime1 + βtime1: Condition) + time2* (βtime2+ βtime2: Condition) + r(subjectlevelintercept)
Gdzie time1 i time2 odpowiadają ortogonalnym liniowym i kwadratowym wielomianom czasu, a βs odpowiadają wagom. - Oszacuj średnie wagi (βs) i ich błędy standardowe za pomocą funkcji fitlme w programie MATLAB. Oszacuj istotność statystyczną wag za pomocą funkcji coeftest.
- Dla każdego SNR wykreśl wagi odpowiadające wyrazom przecięcia, liniowym i kwadratowym, aby zwizualizować wyniki (Rysunek 3B, C).
- Analiza prób wykazujących statystycznie istotne rozszerzenia źrenicy
UWAGA: Ta metoda analizy określa ułamek prób deviant, w których obserwuje się statystycznie istotną odpowiedź rozszerzenia źrenicy, co odpowiada niezawodności odpowiedzi rozszerzenia źrenicy.- Wybierz odpowiednie okno analizy (0,5-1 s) wycentrowane wokół szczytu odpowiedzi źrenicy (zazwyczaj ~1,5 s po początku bodźca). Oblicz średnią PD w tym oknie analizy dla wszystkich prób standardowych i deviant.
- Ustal, czy średnia PD dla każdej z prób deviant jest większa niż 2,33 błędu standardowego połączonego rozkładu średnich wartości PD dla prób standardowych. Policz próby deviant, które przekraczają ten próg, jako próby wykazujące istotne rozszerzenie źrenicy.
- Podziel liczbę prób deviant wykazujących istotne rozszerzenie źrenicy przez całkowitą liczbę prób deviant (dla każdego warunku), aby ilościowo określić ułamek prób wykazujących statystycznie istotne wzrosty PD w porównaniu z próbami bodźca standardowego.
- Wprowadź wszystkie procentowe wartości prób z istotnymi zmianami źrenicy dla każdej sesji do poszczególnych komórek tablicy komórkowej, gdzie komórki są ułożone od niższego do wyższego SNR. Używając kodu pupil_threshold_estimate_JOVE.m, oszacuj próg kategoryzacji call-in-noise.
- Wykreśl ułamek prób wykazujących statystycznie istotny wzrost PD jako funkcję SNR (Rysunek 3D). Do tych danych użyj funkcji fitnlm w programie MATLAB (w toolboxie statistics), aby dopasować funkcje psychometryczne w postaci61:
Ψ(x; α, β, λ) = (1 -λ) * F(x; α, β)
Gdzie F to funkcja Weibulla, zdefiniowana jako
F(x; α, β) =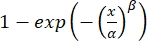 , α to parametr przesunięcia, β to parametr nachylenia, a λ to współczynnik błędów (lapse rate).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Pupillometrię przeprowadzono u trzech pigmentowanych samców świniGuiwek (GP) o wadze ok. 600-1 000 g w trakcie trwania eksperymentów. Zgodnie z opisem w niniejszym protokole, do oszacowania progów kategoryzacji sygnałów w szumie zastosowano paradygmat oddball do prezentacji bodźców. W paradygmacie oddball jako bodźce standardowe wykorzystano sygnały należące do jednej kategorii (piski/whines) osadzone w białym szumie przy danym poziomie SNR (Rysunek 2A), a jako bodźce odchylone sygnały z inn...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokół ten demonstruje zastosowanie pupilometrii jako nieinwazyjnej i wiarygodnej metody szacowania progów słuchowych u zwierząt słuchających biernie. Zgodnie z opisanym tutaj protokołem, oszacowano progi kategoryzacji wywołania hałasu u lekarzy pierwszego kontaktu z prawidłowym słuchem. Stwierdzono, że progi oszacowane za pomocą pupilometrii są zgodne z progami uzyskanymi przy użyciu treningu instrumentalnego62. Jednak w porównaniu z treningiem operacyjnym protokół pupillometrii był stosunkowo ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez NIH (R01DC017141), Pennsylvania Lions Hearing Research Foundation oraz fundusze z Wydziałów Otolaryngologii i Neurobiologii Uniwersytetu w Pittsburghu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Analogowa płytka wyjściowa | Measurement Computing Corporation, Norton, MA | PCI-DDA02/12 | |
| Pianka bezechowa | Sonex One, Pinta Acoustic, Minneapolis, MN | ||
| Mikrofon pojemnościowy | Behringer, Willich, Niemcy | C-2 | |
| Mikrofon swobodnego pola | Bruel & Kjaer, Dania) | Wpisz 4940 | |
| Matlab | Mathworks, Inc., Natick, MA | Wersja 2018a | |
| Monokularowa kamera zdalna i system oświetlacza | Arrington Research, Scottsdale, AZ | MCU902 | Matryca LED na podczerwień + kamera z filtrem podczerwieni |
| Wielofunkcyjne urządzenie I/O | National Instruments, Austin, TX | PCI-6229 | |
| Procesor interfejsu neuronowego | Ripple Neuro, Salt Lake City, UT | SCOUT | |
| Piezoelektryczny czujnik ruchu | SparkFun Electronics, Niwot, CO | SEN-10293 | |
| Zawór zaciskowy | Cole-Palmer Instrument Co., Vernon Hills, IL | EW98302-02 | |
| Programowalny tłumik | Tucker-Davis Technologies, Alachua, FL | PA5 | |
| Rurki silikonowe | Cole-Parmer | ~ 3 mm | |
| Komora tłumiąca dźwięk | IAC Acoustics | ||
| Speaker pełnozakresowy przetwornik | Tang Band Speaker, Tajpej, Tajwan | W4-1879 | |
| Wzmacniacz stereo | Tucker-Davis Technologies, Alachua, FL | SA1 | |
| Tabletop - CleanTop Optyczna | kontrola drgań TMC / Ametek, Peabody, MA | ||
| Oprogramowanie Viewpoint | ViewPoint, Arrington Research, Scottsdale, AZ |
Bibliografia
- Steinhauer, S. R., Siegle, G. J., Condray, R., Pless, M. Sympathetic and parasympathetic innervation of pupillary dilation during sustained processing. International Journal of Psychophysiology. 52 (1), 77-86 (2004).
- Strauch, C., Wang, C. A., Einhäuser, W., Vander Stigchel, S., Naber, M. Pupillometry as an integrated readout of distinct attentional networks. Trends in Neurosciences. 45 (8), 635-647 (2022).
- Turnbull, P. R., Irani, N., Lim, N., Phillips, J. R. Origins of Pupillary Hippus in the autonomic nervous system. Investigative Ophthalmology & Visual Science. 58 (1), 197-203 (2017).
- Bradley, M. M., Miccoli, L., Escrig, M. A., Lang, P. J. The pupil as a measure of emotional arousal and autonomic activation. Psychophysiology. 45 (4), 602-607 (2008).
- Oliva, M., Anikin, A. Pupil dilation reflects the time course of emotion recognition in human vocalizations. Scientific Reports. 8 (1), 4871(2018).
- Privitera, C. M., Renninger, L. W., Carney, T., Klein, S., Aguilar, M. Pupil dilation during visual target detection. Journal of Vision. 10 (10), 3(2010).
- Zekveld, A. A., Koelewijn, T., Kramer, S. E. The pupil dilation response to auditory stimuli: Current state of knowledge. Trends in Hearing. 22, 2331216518777174(2018).
- Alamia, A., VanRullen, R., Pasqualotto, E., Mouraux, A., Zenon, A. Pupil-linked arousal responds to unconscious surprisal. The Journal of Neuroscience. 39 (27), 5369-5376 (2019).
- Wang, C. A., et al. Arousal effects on pupil size, heart rate, and skin conductance in an emotional face task. Frontiers in Neurology. 9, 1029(2018).
- Hess, E. H., Polt, J. M. Pupil size in relation to mental activity during simple problem-solving. Science. 143 (3611), 1190-1192 (1964).
- Kahneman, D., Beatty, J. Pupil diameter and load on memory. Science. 154 (3756), 1583-1585 (1966).
- Lisi, M., Bonato, M., Zorzi, M. Pupil dilation reveals top-down attentional load during spatial monitoring. Biological Psychology. 112, 39-45 (2015).
- Zhao, S., Bury, G., Milne, A., Chait, M. Pupillometry as an objective measure of sustained attention in young and older listeners. Trends in Hearing. 23, 2331216519887815(2019).
- Steinhauer, S. R., Hakerem, G. The pupillary response in cognitive psychophysiology and schizophrenia. Annals of the New York Academy of Sciences. 658, 182-204 (1992).
- Thakkar, K. N., et al. Reduced pupil dilation during action preparation in schizophrenia. International Journal of Psychophysiology. 128, 111-118 (2018).
- Bitsios, P., Szabadi, E., Bradshaw, C. M. Relationship of the 'fear-inhibited light reflex' to the level of state/trait anxiety in healthy subjects. International Journal of Psychophysiology. 43 (2), 177-184 (2002).
- Burkhouse, K. L., Siegle, G. J., Gibb, B. E. Pupillary reactivity to emotional stimuli in children of depressed and anxious mothers. Journal of Child Psychology and Psychiatry. 55 (9), 1009-1016 (2014).
- Nagai, M., Wada, M., Sunaga, N. Trait anxiety affects the pupillary light reflex in college students. Neuroscience Letters. 328 (1), 68-70 (2002).
- Giza, E., Fotiou, D., Bostantjopoulou, S., Katsarou, Z., Karlovasitou, A. Pupil light reflex in Parkinson's disease: evaluation with pupillometry. International Journal of Neuroscience. 121 (1), 37-43 (2011).
- You, S., Hong, J. H., Yoo, J. Analysis of pupillometer results according to disease stage in patients with Parkinson's disease. Scientific Reports. 11 (1), 17880(2021).
- Fountoulakis, K. N., St Kaprinis, G., Fotiou, F. Is there a role for pupillometry in the diagnostic approach of Alzheimer's disease? a review of the data. Journal of the American Geriatrics Society. 52 (1), 166-168 (2004).
- McGinley, M. J., David, S. V., McCormick, D. A. Cortical membrane potential signature of optimal states for sensory signal detection. Neuron. 87 (1), 179-192 (2015).
- McGinley, M. J., et al. Waking state: Rapid variations modulate neural and behavioral responses. Neuron. 87 (6), 1143-1161 (2015).
- Schwartz, Z. P., Buran, B. N., David, S. V. Pupil-associated states modulate excitability but not stimulus selectivity in primary auditory cortex. Journal of Neurophysiology. 123 (1), 191-208 (2020).
- Vinck, M., Batista-Brito, R., Knoblich, U., Cardin, J. A. Arousal and locomotion make distinct contributions to cortical activity patterns and visual encoding. Neuron. 86 (3), 740-754 (2015).
- Yüzgeç, Ö, Prsa, M., Zimmermann, R., Huber, D. Pupil size coupling to cortical states protects the stability of deep sleep via parasympathetic modulation. Current Biology. 28 (3), 392-400 (2018).
- Kuchinsky, S. E., et al. Pupil size varies with word listening and response selection difficulty in older adults with hearing loss. Psychophysiology. 50 (1), 23-34 (2013).
- Winn, M. B., Wendt, D., Koelewijn, T., Kuchinsky, S. E. Best practices and advice for using pupillometry to measure listening effort: An introduction for those who want to get started. Trends in Hearing. 22, 2331216518800869(2018).
- Zekveld, A. A., Kramer, S. E. Cognitive processing load across a wide range of listening conditions: insights from pupillometry. Psychophysiology. 51 (3), 277-284 (2014).
- Zekveld, A. A., Kramer, S. E., Festen, J. M. Cognitive load during speech perception in noise: the influence of age, hearing loss, and cognition on the pupil response. Ear and Hearing. 32 (4), 498-510 (2011).
- Koelewijn, T., Zekveld, A. A., Festen, J. M., Kramer, S. E. Pupil dilation uncovers extra listening effort in the presence of a single-talker masker. Ear and Hearing. 33 (2), 291-300 (2012).
- McCloy, D. R., Lau, B. K., Larson, E., Pratt, K. A. I., Lee, A. K. C. Pupillometry shows the effort of auditory attention switching. The Journal of the Acoustical Society of America. 141 (4), 2440(2017).
- Piquado, T., Isaacowitz, D., Wingfield, A. Pupillometry as a measure of cognitive effort in younger and older adults. Psychophysiology. 47 (3), 560-569 (2010).
- Reilly, J., Kelly, A., Kim, S. H., Jett, S., Zuckerman, B. The human task-evoked pupillary response function is linear: Implications for baseline response scaling in pupillometry. Behavior Research Methods. 51 (2), 865-878 (2019).
- Zekveld, A. A., Kramer, S. E., Festen, J. M. Pupil response as an indication of effortful listening: the influence of sentence intelligibility. Ear and Hearing. 31 (4), 480-490 (2010).
- Winn, M. B., Edwards, J. R., Litovsky, R. Y. The impact of auditory Spectral Resolution on Listening Effort Revealed by Pupil Dilation. Ear and Hearing. 36 (4), 153-165 (2015).
- Ayasse, N. D., Wingfield, A. A Tipping point in listening effort: Effects of linguistic complexity and age-related hearing loss on sentence comprehension. Trends in Hearing. 22, 2331216518790907(2018).
- Koelewijn, T., Versfeld, N. J., Kramer, S. E. Effects of attention on the speech reception threshold and pupil response of people with impaired and normal hearing. Hearing Research. 354, 56-63 (2017).
- Kramer, S. E., Kapteyn, T. S., Festen, J. M., Kuik, D. J. Assessing aspects of auditory handicap by means of pupil dilatation. Audiology. 36 (3), 155-164 (1997).
- Kuchinsky, S. E., et al. Speech-perception training for older adults with hearing loss impacts word recognition and effort. Psychophysiology. 51 (10), 1046-1057 (2014).
- Wendt, D., Hietkamp, R. K., Lunner, T. Impact of noise and noise reduction on processing effort: A pupillometry study. Ear and Hearing. 38 (6), 690-700 (2017).
- Winn, M. B. Rapid release from listening effort resulting from semantic context, and effects of spectral degradation and cochlear implants. Trends in Hearing. 20, 2331216516669723(2016).
- Winn, M. B., Moore, A. N. Pupillometry reveals that context benefit in speech perception can be disrupted by later-occurring sounds, especially in listeners with Cochlear implants. Trends in Hearing. 22, 2331216518808962(2018).
- Selezneva, E., Brosch, M., Rathi, S., Vighneshvel, T., Wetzel, N. Comparison of pupil dilation responses to unexpected sounds in monkeys and humans. Frontiers in Psychology. 12, 754604(2021).
- Wetzel, N., Buttelmann, D., Schieler, A., Widmann, A. Infant and adult pupil dilation in response to unexpected sounds. Developmental Psychobiology. 58 (3), 382-392 (2016).
- Sokolov, E. N. Higher nervous functions; the orienting reflex. Annual Review of Physiology. 25, 545-580 (1963).
- Bala, A. D., Takahashi, T. T. Pupillary dilation response as an indicator of auditory discrimination in the barn owl. Journal of Comparative Physiology A. 186 (5), 425-434 (2000).
- Bala, A. D. S., Whitchurch, E. A., Takahashi, T. T. Human auditory detection and discrimination measured with the pupil dilation Response. Journal of the Association for Research in Otolaryngology. 21 (1), 43-59 (2020).
- Montes-Lourido, P., Kar, M., Kumbam, I., Sadagopan, S. Pupillometry as a reliable metric of auditory detection and discrimination across diverse stimulus paradigms in animal models. Scientific Reports. 11 (1), 3108(2021).
- Coomber, B., et al. Neural changes accompanying tinnitus following unilateral acoustic trauma in the guinea pig. European Journal of Neuroscience. 40 (2), 2427-2441 (2014).
- Fan, L., et al. Pre-exposure to lower-level noise mitigates cochlear synaptic loss induced by high-level noise. Frontiers in Systems Neuroscience. 14, 25(2020).
- Furman, A. C., Kujawa, S. G., Liberman, M. C. Noise-induced cochlear neuropathy is selective for fibers with low spontaneous rates. Journal of Neurophysiology. 110 (3), 577-586 (2013).
- Hickman, T. T., Hashimoto, K., Liberman, L. D., Liberman, M. C. Synaptic migration and reorganization after noise exposure suggests regeneration in a mature mammalian cochlea. Scientific Reports. 10 (1), 19945(2020).
- Huetz, C., Guedin, M., Edeline, J. M. Neural correlates of moderate hearing loss: time course of response changes in the primary auditory cortex of awake guinea-pigs. Frontiers in Systems Neuroscience. 8, 65(2014).
- Lin, H. W., Furman, A. C., Kujawa, S. G., Liberman, M. C. Primary neural degeneration in the Guinea pig cochlea after reversible noise-induced threshold shift. Journal of the Association for Research in Otolaryngology. 12 (5), 605-616 (2011).
- Shi, L., et al. Ribbon synapse plasticity in the cochleae of Guinea pigs after noise-induced silent damage. PLoS One. 8 (12), 81566(2013).
- Naert, G., Pasdelou, M. P., Le Prell, C. G. Use of the guinea pig in studies on the development and prevention of acquired sensorineural hearing loss, with an emphasis on noise. The Journal of the Acoustical Society of America. 146 (5), 3743(2019).
- Montes-Lourido, P., Kar, M., Pernia, M., Parida, S., Sadagopan, S. Updates to the guinea pig animal model for in-vivo auditory neuroscience in the low frequency regime. Hearing Research. 424, 108603(2022).
- Gao, L., Wang, X. Intracellular neuronal recording in awake nonhuman primates. Nature Protocols. 15 (11), 3615-3631 (2020).
- Lu, T., Liang, L., Wang, X. Neural representations of temporally asymmetric stimuli in the auditory cortex of awake primates. Journal of Neurophysiology. 85 (6), 2364-2380 (2001).
- Wichmann, F. A., Hill, N. J. The psychometric function: I. Fitting, sampling, and goodness of fit. Perception & psychophysics. 63 (8), 1293-1313 (2001).
- Kar, M., et al. Vocalization categorization behavior explained by a feature-based auditory categorization model. bioRxiv. , 483596(2022).
- Schaeffer, D. J., Liu, C., Silva, A. C., Everling, S. Magnetic resonance imaging of marmoset monkeys. ILAR Journal. 61 (2-3), 274-285 (2020).
- Drucker, C. B., Carlson, M. L., Toda, K., DeWind, N. K., Platt, M. L. Non-invasive primate head restraint using thermoplastic masks. Journal of Neuroscience Methods. 253, 90-100 (2015).
- Meyer, A. F., O'Keefe, J., Poort, J. Two distinct types of eye-head coupling in freely moving mice. Current Biology. 30 (11), 2116-2130 (2020).
- Nath, T., et al. Using DeepLabCut for 3D markerless pose estimation across species and behaviors. Nature Protocols. 14 (7), 2152-2176 (2019).
- DiNino, M., Holt, L. L., Shinn-Cunningham, B. G. Cutting through the noise: Noise-Induced cochlear synaptopathy and individual differences in speech understanding among listeners with normal audiograms. Ear and Hearing. 43 (1), 9-22 (2022).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
