Ta praca przedstawia zoptymalizowany protokół do powtarzalnego unieruchamiania i ilościowego oznaczania kolagenu typu I i III na mikropłytkach, a następnie ulepszony protokół testu wiązania in vitro do badania interakcji kolagen-związek przy użyciu metody fluorescencji rozdzielczej w czasie. Zapewniona jest późniejsza analiza danych i interpretacja danych krok po kroku.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Zoptymalizowane metody powierzchniowej immobilizacji kolagenów i oznaczania wiązania kolagenu
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Zwłóknienie występuje w różnych tkankach jako reakcja naprawcza na uraz lub uszkodzenie. Jednak nadmierne zwłóknienie może prowadzić do bliznowacenia tkanek i niewydolności narządów, co wiąże się z wysoką zachorowalnością i śmiertelnością. Kolagen jest kluczowym czynnikiem powodującym zwłóknienie, przy czym kolagen typu I i typu III jest głównym typem zaangażowanym w wiele chorób zwłóknieniowych. W przeciwieństwie do konwencjonalnych protokołów stosowanych do immobilizacji innych białek (np. elastyny, albuminy, fibronektyny itp.), kompleksowe protokoły powtarzalnego unieruchamiania różnych typów kolagenów w celu wytworzenia stabilnych powłok nie są łatwo dostępne. Unieruchomienie kolagenu jest zaskakująco trudne, ponieważ wiele warunków eksperymentalnych może wpływać na skuteczność unieruchomienia, w tym rodzaj kolagenu, pH, temperatura i rodzaj użytej mikropłytki. W tym miejscu przedstawiono szczegółowy protokół powtarzalnego unieruchamiania i ilościowego oznaczania kolagenów typu I i III, w wyniku czego powstają stabilne i powtarzalne żele/filmy. Ponadto praca ta pokazuje, jak wykonywać, analizować i interpretować badania in vitro czasowo-rozdzielczych wiązań fluorescencyjnych w celu zbadania interakcji między kolagenami a potencjalnymi związkami wiążącymi kolagen (np. peptydem sprzężonym z chelatem metalu przenoszącym, na przykład, europ [Eu(III)]). Takie podejście może być powszechnie stosowane w różnych zastosowaniach biomedycznych, w tym w dziedzinie obrazowania molekularnego w celu opracowania ukierunkowanych sond obrazowania, opracowywania leków, badań toksyczności komórek, badań proliferacji komórek i testów immunologicznych.
Wprowadzenie
Nagromadzenie włóknistej tkanki łącznej jako część naturalnego procesu gojenia się ran po uszkodzeniu tkanki jest znane jako zwłóknienie. Jeśli jednak odkładanie się tkanki włóknistej nie zakończy się i będzie kontynuowane poza to, co jest potrzebne do naprawy tkanki, zwłóknienie staje się nadmierne1,2. Nadmierne zwłóknienie upośledza fizjologię i funkcję narządów oraz może prowadzić do uszkodzenia narządów i potencjalnej niewydolności narządów3,4,5. Dwa główne czynniki powodujące zwłóknienie to białka macierzy zewnątrzkomórkowej (ECM), kolagen typu I i typu III6. Kolagen jest białkiem strukturalnym występującym w różnych narządach, które stanowi około jednej trzeciej całkowitej zawartości białka w ludzkim ciele1. Istnieje 28 różnych typów kolagenów zidentyfikowanych przez sekwencjonowanie ludzkiego genomu, a najliczniejsze są kolageny fibrillar collagens7. Podstawowym kolagenem fibrylarnym jest kolagen typu I, który zapewnia ECM wytrzymałość na rozciąganie i odporność na odkształcenia8. Kolagen typu III jest składnikiem strukturalnym, który zapewnia elastyczność i kolokalizuje się z kolagenem typu I. Ulega ekspresji podczas embriogenezy i naturalnie występuje w niewielkich ilościach w skórze, mięśniach i naczyniach krwionośnych dorosłych9.
Synteza kolagenu in vivo rozpoczyna się od procesu wewnątrzkomórkowego, w którym mRNA jest transkrybowane w jądrze, a następnie przemieszcza się do cytoplazmy, gdzie ulega translacji. Po translacji utworzony łańcuch ulega modyfikacji potranslacyjnej w retikulum endoplazmatycznym, gdzie powstaje prokolagen (prekursor kolagenu). Pro-kolagen następnie przemieszcza się do aparatu Golgiego w celu ostatecznej modyfikacji, zanim zostanie wydalony do przestrzeni zewnątrzkomórkowej10. Poprzez rozszczepienie proteolityczne prokolagen przekształca się w tropokolagen. Jest to następnie sieciowane albo za pośrednictwem enzymatycznego szlaku sieciowania, katalizowanego przez enzym oksydazę lizylową (LOX), albo za pośrednictwem nieenzymatycznego szlaku sieciowania obejmującego reakcję Maillarda11. Protokoły in vitro mające na celu unieruchomienie kolagenu opierają się głównie na zdolności kolagenu do samoorganizacji. Kolagen jest ekstrahowany z tkanek na podstawie jego rozpuszczalności, która w dużej mierze zależy od stopnia usieciowania poszczególnych włókien kolagenowych7. Kolagen fibrylarny rozpuszcza się w kwasie octowym, a włókna mogą się odkształcać, gdy pH i temperatura są dostosowane12. In vitro fibrylogenezę kolagenu można postrzegać jako proces dwuetapowy7. Pierwszym etapem jest faza zarodkowania, w której włókna kolagenowe tworzą dimery i włókienka trimerowe, zanim zostaną przegrupowane, tworząc strukturę potrójnej helisy. Druga faza to faza wzrostu, w której włókienka zaczynają rosnąć bocznie i powodują charakterystyczne tworzenie się pasma D, które jest zwykle obserwowane przez zmiany zmętnienia7. Badania mikroskopii sił atomowych (AFM) wykazały również, że kolagen typu I i typu III ma różne cechy (Tabela 1)13.
Aby zbadać interakcje wiążące między kolagenem a innymi związkami, kolagen musi być powtarzalnie unieruchomiony w studzienkach mikropłytek. Istnieją różne protokoły unieruchamiania rozpuszczalnego kolagenu14,15,16. Dostępne na rynku mikropłytki, które są wstępnie pokryte kolagenem, są zwykle używane do hodowli komórkowych. Jednak wstępnie powlekane mikropłytki mają bardzo cienką warstwę nieznanej ilości kolagenu pokrytą na studzienkach, co sprawia, że nie nadają się do testów wiązania in vitro. Istnieje kilka wyzwań związanych z unieruchamianiem kolagenu na płytce. Jednym z kluczowych wyzwań jest wybór odpowiedniego rodzaju mikropłytki, ponieważ różne rodzaje kolagenów (np. typ I i III) mają różne właściwości chemiczne, a co za tym idzie, unieruchamiają się stabilniej i skuteczniej w zależności od materiału, z którego wykonana jest mikropłytka. Kolejnym wyzwaniem są warunki eksperymentalne protokołu immobilizacji, ponieważ proces fibrylogenezy zależy od wielu czynników, w tym temperatury, pH, stężenia kolagenu i stężenia jonów w buffer7.
Do badania interakcji między kolagenem (celem) a innymi związkami (tj. peptydem docelowym), konieczne jest również opracowanie solidnego testu przesiewowego w celu zbadania specyficzności i selektywności związku w stosunku do celu poprzez pomiar stałej dysocjacji, Kd. Położenie równowagi tworzenia kompleksu dwucząsteczkowego między białkiem (kolagenem) a ligandem jest wyrażone w postaci stałej asocjacyjnejKå, której wielkość jest proporcjonalna do powinowactwa wiązania. Jednak najczęściej biochemicy wyrażają relacje powinowactwa w kategoriach stałej dysocjacji równowagi, Kd, kompleksu dwucząsteczkowego, który jest zdefiniowany jako Kd = 1/Ka (Kd i jest odwrotnościąKa ). Im niższa wartość Kd, tym silniejsza siła wiązania między białkiem a ligandem. Zaleta użycia Kd do porównania powinowactwa wiązania różnych ligandów dla tego samego białka (i na odwrót) jest związana z faktem, że jednostkami Kd dla kompleksu dwucząsteczkowego są mol/L (tj. jednostka stężenia). W większości warunków eksperymentalnych wartość Kd odpowiada stężeniu liganda, które prowadzi do 50% nasycenia dostępnych miejsc wiązania na celu w równowadze17,18. Stała dysocjacji jest zwykle ekstrahowana przez analizę ułamkowego zajętości receptora (FO), która jest definiowana jako stosunek zajętych miejsc wiązania do całkowitej liczby dostępnych miejsc wiązania, w funkcji stężenia ligandów. Można tego dokonać pod warunkiem, że dostępny jest test analityczny zdolny do rozróżnienia i zmierzenia ilości związanego liganda.
Testy wiązania ligandów in vitro mogą być wykonywane przy użyciu różnych metod bioanalitycznych, w tym fotometrii optycznej, metod radioligandowych, spektrometrii mas z plazmą sprzężoną indukcyjnie (ICP-MS) i powierzchniowego rezonansu plazmonów (SPR). Spośród metod fotometrycznych, te oparte na emisji fluorescencji zazwyczaj wymagają znakowania ligandów lub białek fluoroforami w celu zwiększenia czułości i poprawy granicy wykrywalności testu. Chelaty niektórych jonów lantanowca(III), takich jak Eu(III), są bardzo atrakcyjne jako fluorofory, ponieważ mają duże przesunięcia Stokesa, wąskie pasma emisji (zapewniające dobry stosunek sygnału do szumu), ograniczone fotobielenie i długi czas emisji. Co ważne, ta ostatnia właściwość umożliwia wykorzystanie fluorescencji czasowo-rozdzielczej (TRF) z fluoroforów Eu(III) w celu zniesienia autofluorescencji tła19. W teście immunologicznym na bazie Eu(III) opartym na Eu(III) w wersji testu immunologicznego na bazie Eu(III) ze wzmocnioną dysocjacją lantanowców ligandy znakowane nieluminescencyjnym chelatem Eu(III) są inkubowane z receptorem unieruchomionym na mikropłytkach. Znakowany kompleks ligand/receptor jest oddzielany od niezwiązanego liganda, a fluorescencja Eu(III) jest aktywowana przez dysocjację kompleksu Eu(III) przy kwaśnym pH, a następnie ponowne kompleksowanie chelatorem wzmacniającym fluorescencję, tworząc osadzony w miceli, wysoce fluorescencyjny kompleks Eu(III)20.
Etap dekompleksacji można osiągnąć za pomocą chelatorów, takich jak pentaoctan dietylenotriaminy (DTPA), które wykazują szybką kinetykę dekompleksacji. Jednak kompleksy Eu(III) z niektórymi makrocyklicznymi chelatorami, takimi jak DOTA (kwas 1,4,7,10-tetraazacyklododekan1,4,7,10-tetraoctowy) i jego pochodne monoamidowe (DO3AAm), wykazują wysoką stabilność termodynamiczną i bardzo dużą obojętność kinetyczną. W takim przypadku etapy dekompleksacji muszą być dokładnie zoptymalizowane, aby osiągnąć wystarczającą i powtarzalną aktywację TRF21 opartej na Eu(III). Warto zauważyć, że kompleksy lantanowców (Ln(III))-DOTA i Ln(III)-DO3AAm są najczęściej stosowane jako środki kontrastowe do obrazowania molekularnego in vivo technikami rezonansu magnetycznego (MRI)22. W związku z tym test TRF oparty na Ln (III) jest narzędziem z wyboru do badania in vitro powinowactwa wiązania sond molekularnych MRI z ich zamierzonymi celami biologicznymi. Obecnie brakuje kompleksowych i powtarzalnych protokołów immobilizacji kolagenu typu I i typu III oraz powtarzalnego procesu przeprowadzania eksperymentów z wiązaniem Eu(III) TRF in vitro. Aby przezwyciężyć te ograniczenia, opracowano powtarzalne metody samoorganizacji i immobilizacji kolagenu typu I i typu III oraz generowania stabilnych żeli i filmów o wystarczającym stężeniu kolagenu wymaganym do testów wiązania in vitro. Przedstawiono zoptymalizowany protokół dla Eu(III) TRF wysoce obojętnych kompleksów opartych na Eu(III)-DO3Aam. Na koniec pokazano zoptymalizowany test TRF in vitro mikropłytki Eu (III) do pomiaru Kd ligandów znakowanych Eu (III) w kierunku unieruchomionego kolagenu typu I i typu III (Rysunek 1).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Wszystkie informacje o produktach wykorzystanych w tej pracy zostały przedstawione w Tabeli materiałów.
1. Immobilizacja kolagenu
UWAGA: Należy upewnić się, że każda studzienka w mikropłytce używanej podczas testu wiązania ma wolne studzienki sąsiednie, aby uniknąć fluorescencji krzyżowej. Tę część protokołu należy przeprowadzić w lodzie, ponieważ kolagen samoorganizuje się przy wzroście temperatury i poziomu pH. Procedurę tę należy wykonać w dygestorium do hodowli tkanek i w warunkach sterylnych, ponieważ mikropłytki są następnie inkubowane w inkubatorze do hodowli tkanek (TC).
- Immobilizacja kolagenu typu I na mikropłytkach 96-dołkowych (Rycina 2)
Dzień 1- Przygotować silikonową tacę z lodem. Umieścić fiolkę zawierającą kolagen typu I, schłodzony 10x roztwór soli fizjologicznej w buforze fosforanowym (PBS) oraz mikropłytki na lodzie i spryskać wszystko 70% etanolem. Umieścić materiały pod dygestorium do hodowli tkankowej.
- Zneutralizować kolagen, mieszając równe objętości kolagenu typu I i 10x PBS (pH 7,4).
- Kilkakrotnie odwrócić naczynie z roztworem, upewniając się, że nie powstały pęcherzyki powietrza.
- Dodać 100 µL zneutralizowanego kolagenu do co drugiego dołka i co drugiego rzędu mikropłytki, a następnie inkubować w temperaturze 37 °C przez 18-20 h, aż kolagen całkowicie odparuje do suchości.
Dzień 2 - Przemyć mikropłytki dwukrotnie, używając 100 µL 1x PBS (pH 7,4), aby usunąć niezwiązany kolagen.
- Przenieść mikropłytki do inkubatora w temperaturze 37 °C na kolejne 2 h w celu wysuszenia przed wykorzystaniem ich w dalszych eksperymentach wiązania.
- Immobilizacja kolagenu typu III na mikropłytkach 96-dołkowych (Rycina 3)
Dzień 1- Przygotować silikonową tacę z lodem. Umieścić fiolkę zawierającą kolagen typu III, schłodzony 10x PBS oraz mikropłytki na lodzie i spryskać wszystko 70% etanolem. Umieścić materiały pod dygestorium do hodowli tkankowej.
- Zneutralizować kolagen, mieszając równe objętości kolagenu typu III i 10x PBS (pH 7,4).
- Dodać 70 µL zneutralizowanego kolagenu do co drugiego dołka i co drugiego rzędu mikropłytki, a następnie inkubować w temperaturze 37 °C przez 2 h, umieszczając mikropłytkę pod dygestorium do hodowli tkankowej, aż kolagen całkowicie odparuje do suchości.
Dzień 2 - Przemyć mikropłytki dwukrotnie, używając 70 µL 1x PBS (pH 7,4), aby usunąć niezwiązany kolagen.
- Przenieść mikropłytki do inkubatora na 1 h w temperaturze 37 °C, a następnie przełożyć je na blat laboratoryjny i pozostawić na 1 h do wyschnięcia przed wykorzystaniem w dalszych eksperymentach wiązania.
2. Ocena stabilności immobilizowanych żeli/filmów kolagenowych
- Inkubacja w PBS przez 1 h
UWAGA: Podczas eksperymentu wiązania inkubuj unieruchomiony kolagen z badanym związkiem. Ważne jest zbadanie stabilności powstałego żelu lub filmu kolagenowego. W tym celu zmierz stabilność w trzech warunkach: brak płukania = pomiar unieruchomionego kolagenu bezpośrednio po inkubacji; płukanie = pomiar unieruchomionego kolagenu po dwukrotnym wypłukaniu płytki 100 µL PBS; oraz naśladowanie 1 h w PBS i płukanie = pomiar unieruchomionego kolagenu po inkubacji przez 1 h w PBS, a następnie dwukrotnym płukaniu PBS. Poniżej wyjaśniono metodę inkubacji w PBS.- Do każdego z dołków pokrytych kolagenem dodaj 70 µL PBS (1x) i inkubuj mikropłytkę w temperaturze pokojowej przez 1 h.
- Odsuń nadmiar cieczy z każdego dołka za pomocą pipety i dwukrotnie wypłucz PBS (1x) przed przeprowadzeniem opisanego poniżej testu ilościowego białek.
- Ilościowe oznaczenie ilości unieruchomionego kolagenu za pomocą testu kwasu bicinchonininowego (BCA)
UWAGA: Użyj zestawu Pierce BCA Protein Assay Kit (Tabela materiałów) zgodnie z instrukcją producenta. Przygotuj odpowiednie standardy kolagenu do tego testu. Zakres stężeń dla kolagenu I wynosi 0-3 000 µg/mL, a dla kolagenu III 0-750 µg/mL. W sumie przygotuj 11 standardów dla każdego rodzaju kolagenu.- Przygotuj całkowitą objętość odczynnika roboczego (WR) zgodnie z instrukcją producenta.
- Do dołków mikropłytki dodaj 25 µL każdego standardu kolagenu (w dubletach). Roztwory te służą do wykreślenia krzywej standardowej.
- Do każdego z dołków zawierających standardy oraz do dołków pokrytych kolagenem o nieznanym stężeniu dodaj 200 µL roztworu odczynnika roboczego.
- Umieść mikropłytkę na wstrząsarce do płytek na 30 s. Przykryj mikropłytki i inkubuj w 37 °C przez 30 min.
- Wyjmij mikropłytki i pozwól im ostygnąć w temperaturze pokojowej. Zmierz absorbancję przy 560 nm za pomocą czytnika płytek.
- Wykreśl krzywą kalibracyjną, nanosząc A560 (AU) względem stężenia (µg/mL) 11 roztworów standardowych, a następnie wykorzystaj krzywą kalibracyjną do obliczenia ilości kolagenu.
3. Test wiązania ligandu TRF z europem(III) (Rycina 1)
UWAGA: Zastosowany związek to kandydacki peptyd wiążący kolagen (CBP) znakowany pojedynczym kompleksem Eu(III)-DO3AAm, określany jako Eu(III)-DO3AAm-CBP (Rysunek 4).
- Inkubacja płytek pokrytych kolagenem z związkiem Eu(III)-DO3AAm-CBP
- Przygotować roztwory związku Eu(III)-DO3AAm-CBP o stężeniach w zakresie od 0,1-15 µM (0,1 µM, 0,5 µM, 1 µM, 3 µM, 5 µM, 7 µM, 10 µM i 15 µM) w 1x PBS.
- Do studni pokrytych kolagenem (Płytka A) dodać 75 µL każdego stężenia związku. Eksperyment przeprowadzić w trzech powtórzeniach, aby obliczyć ilość związku wiążącego się z kolagenem.
- Użyć drugiej, niepokrytej płytki (Płytka B) i dodać 75 µL każdego związku do pustych studni, aby obliczyć niespecyficzne wiązanie związku z płytką. Dla każdego stężenia zastosować trzy powtórzenia.
- Inkubować mikropłytki przez 1 h w temperaturze pokojowej.
- Za pomocą pipety odessać i usunąć nadmiar roztworu z każdej studni, a następnie dwukrotnie przemyć studnie 1x PBS, aby usunąć nadmiar niezwiązanego związku. Krok ten przeprowadzić zarówno dla mikropłytek pokrytych kolagenem, jak i niepokrytych.
- Do trzeciej niepokrytej płytki (Płytka C) dodać 10 µL tych samych stężeń Eu(III)-DO3AAm-CBP (w dwóch powtórzeniach). Odczyt fluorescencji Eu(III)-DO3AAm-CBP w roztworze wykorzystać do sporządzenia krzywej kalibracyjnej.
UWAGA: Nie przemywać i nie odsysać roztworu z tej płytki.
- Ekstrakcja kwasowa europu(III) i pomiary fluorescencji rozdzielonej w czasie (TRF)
UWAGA: Należy zapoznać się z informacjami uzupełniającymi dotyczącymi przygotowania i kalibracji objętości roztworu kwasowego (AS) oraz roztworu buforującego (BS). W niniejszej pracy objętości AS i BS wymagane do powtarzalnego uzyskania optymalnego pH wynosiły odpowiednio 54 µL i 46 µL. Poniższe czynności przeprowadzić dla płytki A, płytki B i płytki C.- Do każdej studni dodać 54 µL roztworu kwasowego (AS), a następnie umieścić płytkę w inkubatorze w 37 °C na 90 min, przykrywając mikropłytki folią, aby uniknąć odparowania. Temperaturę i czas inkubacji należy ściśle kontrolować, aby uzyskać powtarzalną dekompleksację.
- Do każdej studni dodać 46 µL roztworu buforującego (BS) i delikatnie wstrząsać płytką przez 30 s.
- Dodać 100 µL roztworu wzmacniającego (ES) i wstrząsać płytką przez 30 s.
- Odczekać 30 min przed odczytem płytki za pomocą czytnika TRF. Użyć parametrów wymienionych w Tabeli 2.
4. Analiza danych
- Oznaczenie ilościowe stężenia kolagenu unieruchomionego w studzienkach
- Wyznaczenie równania krzywej kalibracyjnej A560 (AU) w funkcji stężenia (µg/mL) dla 11 roztworów wzorcowych.
- Należy wykorzystać odczyty absorbancji uzyskane ze studzienek zawierających standardy kolagenu.
- Należy zestawić wartości średnie z dubletów studzienek i wykreślić średnią absorbancję w funkcji znanych stężeń białka (kolagenu) (µg/mL), aby uzyskać równanie krzywej wzorcowej.
- Wykorzystanie wartości absorbancji do obliczenia masy (µg) i stężenia (M) unieruchomionego kolagenu.
- Należy obliczyć średnie wartości absorbancji dla trzech studzienek zawierających unieruchomiony kolagen i zapisać odchylenie standardowe.
- Należy użyć równania krzywej wzorcowej otrzymanego z krzywej standardowej kolagenu (krok 2.2.6), aby przeliczyć absorbancję zmierzoną w studzienkach pokrytych kolagenem na stężenie. Na tej podstawie należy obliczyć stężenie kolagenu unieruchomionego w studzienkach doświadczalnych w µg/mL.
- Stężenie obliczone w kroku 4.1.2.2 (µg/mL) należy najpierw przeliczyć na gramy/litr, a następnie, w oparciu o masę cząsteczkową kolagenu, na stężenie molowe (M).
- Na koniec należy obliczyć masę kolagenu unieruchomionego w każdej studzience, dzieląc stężenie przez objętość kolagenu dodaną do studzienki (100 µL dla kolagenu typu I i 70 µL dla kolagenu typu III).
- Wyznaczenie równania krzywej kalibracyjnej A560 (AU) w funkcji stężenia (µg/mL) dla 11 roztworów wzorcowych.
- Obliczanie stałej dysocjacji (Kd) (Rysunek 4)
- Ekstrakcja odczytów fluorescencji.
- Należy wyeksportować odczyty fluorescencji z czytnika płytek do arkusza kalkulacyjnego.
UWAGA: W testach wiązania ważne jest uwzględnienie potencjalnego nieswoistego wiązania związku z plastikową powierzchnią płytek. - Należy obliczyć wartości średnie z pomiarów w powtórzeniach trzykrotnych dla każdego stężenia związku dla trzech różnych płytek: odczyty wiązania swoistego ze studzienek pokrytych (Płytka A), wiązania nieswoistego ze studzienek niepokrytych (Płytka B) oraz całkowitej ilości Eu(III)-DO3AAm-CBP w roztworze w studzienkach niepokrytych (Płytka C).
- Wartości fluorescencji dla związku związanego należy wyznaczyć poprzez odjęcie odczytów fluorescencji ze studzienek niepokrytych (Płytka B) od odczytów ze studzienek pokrytych (Płytka A).
Równanie 1: Wyznaczanie fluorescencji związanej17:
Fluorescencja związana = Swoista (studzienki pokryte) - Nieswoista (studzienki niepokryte) - Należy sporządzić krzywą kalibracyjną, korzystając z odczytów związku znakowanego Eu(III) w roztworze (Płytka C). Należy wykreślić odczyty fluorescencji w funkcji stężenia związku znakowanego Eu(III). Następnie należy przeprowadzić liniową regresję.
- Należy wyeksportować odczyty fluorescencji z czytnika płytek do arkusza kalkulacyjnego.
- Przeliczenie odczytów fluorescencji na stężenia.
- Odczyty fluorescencji związanej (krok 4.2.3) należy przeliczyć na stężenie, korzystając ze standardowej krzywej fluorescencji uzyskanej z danych dla stężeń związku w roztworze (krok 4.2.1.4).
UWAGA: Przy porównywaniu właściwości wiązania jednego związku względem różnych białek docelowych, które są unieruchamiane w różnych stężeniach, te ostatnie muszą zostać uwzględnione podczas obliczania ilości związku związanego z celem (tj. stosunek związku związanego do białka). - Stężenie związku związanego należy podzielić przez stężenie białka unieruchomionego w studzience.
UWAGA: Do tych obliczeń należy użyć stężenia unieruchomionego kolagenu obliczonego po inkubacji studzienek z PBS przez 1 h (tzw. eksperyment z mimikiem PBS; sekcja 2.1 powyżej). Ma to na celu uwzględnienie potencjalnych strat kolagenu podczas etapu inkubacji i płukania, które nie będą przyczyniać się do końcowego sygnału fluorescencji. - Dane należy przedstawić na wykresie punktowym, gdzie na osi x znajduje się stężenie związku (µM), a na osi y stosunek związku związanego do białka.
- Odczyty fluorescencji związanej (krok 4.2.3) należy przeliczyć na stężenie, korzystając ze standardowej krzywej fluorescencji uzyskanej z danych dla stężeń związku w roztworze (krok 4.2.1.4).
- Wyznaczenie wartości Kd.
- Dane uzyskane w kroku 4.2.2.3 należy dopasować do dwóch możliwych modeli kinetyki wiązania: wiązania jednowarstwowego (one-site binding) oraz wiązania jednowarstwowego z nachyleniem Hill'a. Równania dla każdego modelu przedstawiono na Rysunku 6.
- Należy wybrać model, który zapewnia jednoznaczne dopasowanie z najwyższą wartością R-kwadrat podczas dopasowywania danych.
- Należy wykluczyć wartości odstające dla każdego zestawu odczytów fluorescencji na stężenie i płytkę.
- Należy obliczyć końcową wartość Kd i przedstawić dane jako średnią ± odchylenie standardowe z niezależnych eksperymentów.
UWAGA: Aby uzyskać wiarygodne wyniki, należy przeprowadzić pomiary w powtórzeniach trzykrotnych na każdej płytce oraz co najmniej trzy niezależne eksperymenty z użyciem różnych mikro płytek.
- Obliczanie stopnia zajętości (FO).
UWAGA: Z Równania 2 wynika, że stężenie celu jest nieznane, dlatego stosując algebrę oraz Kd z Równania 3, otrzymuje się praktyczne równanie do obliczania stopnia zajętości w formie Równania 4.
Równanie 2: Definicja stopnia zajętości17:

Równanie 3: Stała dysocjacji, Kd, czyli stężenie, przy którym związek zajmuje 50% celu w stanie równowagi17:

Równanie 4: Przekształcone równanie do obliczania FO17:
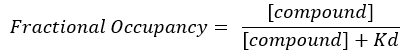
- Należy obliczyć FO, korzystając z niezależnych wartości Kd otrzymanych dla każdej poszczególnej płytki. Należy wykreślić wyniki (średnią i odchylenia standardowe FO) w funkcji stężenia związku.
- Wartości FO należy podawać w zakresie od 0 do 1 lub jako procent w zakresie od 0% do 100%.
- Ekstrakcja odczytów fluorescencji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Ocena stabilności i stężenia kolagenu typu I i typu III unieruchomionego w żelach/filmach
Ilościowe oznaczenie stężenia kolagenu unieruchomionego w każdej studzience przeprowadzono w trzech różnych wariantach: a) w studzienkach bez przemywania PBS po unieruchomieniu białek (brak przemywania); b) w studzienkach z etapem przemywania (dwukrotnie PBS) po unieruchomieniu w celu usunięcia nieprzywiązanego białka; c) w studzienkach po inkubacji z PBS przez 1 h (eksperyment symulujący PBS). Etap symulowanej ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W pracy przedstawiono powtarzalną metodę unieruchamiania kolagenu typu I i typu III. Demonstruje również protokół pozyskiwania, analizowania i interpretowania danych dotyczących wiązania in vitro Eu(III) TRF w celu scharakteryzowania właściwości wiązania ligandu kandydującego z kolagenem typu I i III. Przedstawione tutaj protokoły unieruchamiania kolagenu typu I i typu III zostały opracowane i zoptymalizowane z uwzględnieniem wcześniej opublikowanych prac dotyczących fibrylogenezy kolagenu typu I i typu III ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Jesteśmy wdzięczni następującym fundatorom za wsparcie tej pracy: (1) Brytyjska Rada Badań Medycznych (MR/N013700/1) oraz King's College London, członek MRC Doctoral Training Partnership in Biomedical Sciences; (2) Dotacja w ramach programu BHF RG/20/1/34802; (3) Dotacja dla projektu BHF PG/2019/34897; (4) Grant King's BHF Centre for Research Excellence RE/18/2/34213; (5) Program Milenijnej Inicjatywy Naukowej ANID - ICN2021_004; oraz (6) FB210024 grantu ANID Basal.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10x PBS | Gibco | 14200075 | Użyj tego, aby zrobić 1x PBS, rozcieńczając w wodzie (1:10) |
| 10x PBS | Gibco | 14200075 | Użyj tego, aby zrobić 1x PBS przez rozcieńczenie w wodzie (1:10) |
| 2M HCL | Wyprodukowano we własnym zakresie, a szczegóły znajdują się w dokumencie uzupełniającym | ||
| 2M HCL | Made in house, a szczegóły znajdują się w dokumencie uzupełniającym | ||
| 2M Wodorotlenek sodu +2M Glicyna | Wyprodukowano we własnym zakresie, a szczegóły znajdują się w dokumencie uzupełniającym | ||
| 2M Wodorotlenek sodu +2M Glicyna | Wyprodukowano we własnym zakresie, a szczegóły znajdują się w dokumencie uzupełniającym | ||
| Cell-star 96 dołk mikropłytka | Greiner Bio-One | 655 160 | |
| Cell-star 96 studni mikropłytka | Greiner Bio-One | 655 160 | |
| DELFIA roztwór do wzmacniania | Perkin Elmer | 1244-104 | |
| DELFIA roztwór do wzmacniania | Perkin Elmer | 1244-104 | |
| Lód | |||
| Lód | |||
| Czytnik mikropłytek Infinite 200 PRO NanoQuant | TECAN | ||
| Infinite 200 PRO NanoQuant | TECAN | ||
| Niewiążące (NBS) 96-dołkowe mikropłytki | Corning | 3641 | |
| Niewiążące (NBS) 96-dołkowe mikropłytki | Elektroda pH Corning | 3641 | |
| Inlab Routine | METTLER TOLEDO | ||
| Elektroda pH Inlab Routine | METTLER TOLEDO | ||
| 51343050 pH-metr (sevenCompact) | METTLER TOLEDO | ||
| pH-metr (sevenCompact) | METTLER TOLEDO | ||
| Zestaw do oznaczania białek Pierce BCA | Thermofisher | 23227 | |
| Zestaw do oznaczania białek Pierce BCA | Thermofisher | 23227 | |
| Inkubator do hodowli tkankowych (37 ° C, 5% CO2)Kolagen | |||
| bydlęcy typu I, 3 mg/ml | Corning | 354231 | |
| Ludzki kolagen łożyskowy typu III, 0,99 mg/ml | Advanced Biomatrix | 5021 |
Bibliografia
- Distler, J. H. W., et al. Review: Frontiers of antifibrotic therapy in systemic sclerosis. Arthritis and Rheumatology. 69 (2), 257-267 (2017).
- Wynn, T. A. Fibrotic disease and the TH1/TH2 paradigm. Nature Reviews Immunology. 4 (8), 583-594 (2004).
- Saha, P., et al. Magnetic resonance T1 relaxation time of venous thrombus is determined by iron processing and predicts susceptibility to lysis. Circulation. 128 (7), 729-736 (2013).
- Mirshahi, M., et al. Defective thrombolysis due to collagen incorporation in fibrin clots. Thrombosis Research. 8, 73-80 (1988).
- Comerota, A. J. The ATTRACT trial: Rationale for early intervention for iliofemoral DVT. Perspectives in Vascular Surgery and Endovascular Therapy. 21 (4), 221-225 (2009).
- Bateman, E. D., Turner-Warwick, M., Adelmann-Grill, B. C. Immunohistochemical study of collagen types in human foetal lung and fibrotic lung disease. Thorax. 36 (9), 645-653 (1981).
- Pawelec, K. M., Best, S. M., Cameron, R. E. Collagen: A network for regenerative medicine. Journal of Materials Chemistry B. 4 (40), 6484-6496 (2016).
- Frantz, C., Stewart, K. M., Weaver, V. M. The extracellular matrix at a glance. Journal of Cell Science. 123 (24), 4195-4200 (2010).
- Copes, F., Pien, N., Van Vlierberghe, S., Boccafoschi, F., Mantovani, D. Collagen-based tissue engineering strategies for vascular medicine. Frontiers in Bioengineering and Biotechnology. 7, 166(2019).
- Veis, A. The biochemistry of collagen. Annals of Clinical and Laboratory Science. 5 (2), 123-131 (1975).
- Bielajew, B. K., Hu, J. C., Athanasiou, K. A. Collagen: Quantification, biomechanics, and role of minor subtypes in cartilage. Nature Reviews Materials. 5, 730-747 (2020).
- Zhao, Z., et al. Structural and functional plasticity of collagen fibrils. DNA and Cell Biology. 38 (4), 367-373 (2019).
- Eryilmaz, E., Teizer, W., Hwang, W. In vitro analysis of the co-assembly of type-I and type-III collagen. Cellular and Molecular Bioengineering. 10 (1), 41-53 (2017).
- Jagnow, J., Clegg, S. Klebsiella pneumoniae MrkD-mediated biofilm formation on extracellular matrix- and collagen-coated surfaces. Microbiology. 149 (9), 2397-2405 (2003).
- O'Sullivan, D., O'Neill, L., Bourke, P. Direct plasma deposition of collagen on 96-well polystyrene plates for cell culture. ACS Omega. 5 (39), 25069-25076 (2020).
- Caravan, P., et al. Collagen-targeted MRI contrast agent for molecular imaging of fibrosis. Angewandte Chemie - International Edition. 46 (43), 8171-8173 (2007).
- Copeland, R. A. Enzymes: A Practical Introduction to Structure, Mechanism, and Data Analysis. , John Wiley & Sons, Ltd. Hoboken, NJ. (2000).
- Salahudeen, M. S., Nishtala, P. S. An overview of pharmacodynamic modelling, ligand-binding approach and its application in clinical practice. Saudi Pharmaceutical Journal. 25 (2), 165-175 (2017).
- Bünzli, J. C. G., Piguet, C. Taking advantage of luminescent lanthanide ions. Chemical Society Reviews. 34 (12), 1048-1077 (2005).
- Hemmilii, I. Luminescent lanthanide chelates - A way to more sensitive diagnostic methods. Journal of Alloys and Compounds. 225 (1-2), 480-485 (1995).
- De Silva, C. R., Vagner, J., Lynch, R., Gillies, R. J., Hruby, V. J. Optimization of time-resolved fluorescence assay for detection of europium-tetraazacyclododecyltetraacetic acid-labeled ligand-receptor interactions. Analytical Biochemistry. 398 (1), 15-23 (2010).
- Digilio, G., Lacerda, S., Lavin Plaza, B., Phinikaridou, A. Extracellular matrix targeted MRI probes. Analysis & Sensing. 3 (1), (2022).
- Phinikaridou, A., et al. Tropoelastin: A novel marker for plaque progression and instability. Circulation. Cardiovascular imaging. 11 (8), 007303(2018).
- Guzaeva, T. V., et al. Protein A used in DELFIA for the determination of specific antibodies. Immunology Letters. 35 (3), 285-289 (1993).
- Nasiri, A. H., Nasiri, H. R. Polymerase assays for lead discovery: An overall review of methodologies and approaches. Analytical Biochemistry. 563, 40-50 (2018).
- Capuana, F., et al. Imaging of dysfunctional elastogenesis in atherosclerosis using an improved gadolinium-based tetrameric MRI probe targeted to tropoelastin. Journal of Medicinal Chemistry. 64 (20), 15250-15261 (2021).
- Drescher, D. G., Drescher, M. J., Ramakrishnan, N. A. Surface plasmon resonance (SPR) analysis of binding interactions of proteins in inner-ear sensory epithelia. Methods in Molecular Biology. 493, 323-343 (2009).
- Murali, S., Rustandi, R. R., Zheng, X., Payne, A., Shang, L. Applications of surface plasmon resonance and biolayer interferometry for virus-ligand binding. Viruses. 14 (4), 717(2022).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Ten artykuł został opublikowany
Film wkrótce dostępny