Ten protokół opisuje budowę i działanie systemu mikro-respirometrii, który może być wykorzystany do zbadania fizjologicznych cech holobiontu koralowca.
Artykuł metodologiczny
Fizjologiczna charakterystyka holobionta koralowca przy użyciu nowego narzędzia do mikrorespirometrii
W tym artykule
Podsumowanie
Streszczenie
Aktywność metaboliczna, definiowana jako suma procesów organizmu związanych z energią, ma kluczowe znaczenie dla zrozumienia funkcji i ewolucji życia na Ziemi. Pomiar tempa metabolizmu organizmów jest zatem w centrum wyjaśniania stanów fizjologicznych organizmów, ich ról ekologicznych oraz wpływu zmian środowiskowych na gatunki w ekosystemach lądowych i wodnych. Na rafach koralowych pomiary metabolizmu wykorzystano do ilościowego określenia symbiozy funkcjonującej między koralowcami a ich obligatoryjnymi symbiontami glonów (Symbiodiniaceae), a także do oceny, w jaki sposób stresory środowiskowe, w tym zmiany klimatyczne, wpłyną na zdrowie koralowców. Pomimo tego znaczenia brakuje metod, a tym samym danych, odnoszących się do pomiarów tempa metabolizmu u potomstwa koralowców, prawdopodobnie ze względu na ich niewielkie rozmiary. Aby wypełnić tę lukę, badanie to miało na celu opracowanie niestandardowego zestawu do pomiaru oddychania w małych (zakres wielkości milimetrów) ekosystemach zwierząt morskich. Ten niski koszt i łatwa konfiguracja powinna pozwolić na lepszy pomiar tempa przemiany materii. Będzie to miało zasadnicze znaczenie dla stosowanych badań ekologicznych wykorzystujących produkcję płciową koralowców do odbudowy rafy.
Wprowadzenie
Oddychanie jest krytycznym pomiarem biologicznym, który sygnalizuje ogólną aktywność metaboliczną organizmu, ale podobnie jak inne krytyczne cechy (wzrost), jest trudny do zmierzenia w małych organizmach1. Oddychanie można zdefiniować jako utlenianie cząsteczek organicznych za pomocą tlenu. Proces ten generuje energię chemiczną potrzebną do funkcjonowania komórek (tj. metabolizmu), która jest niezbędna do przetrwania organizmów. Alternatywnie, metabolizm beztlenowy powoduje dług tlenowy2. Częstość oddechów można określić za pomocą optod, które mierzą zużycie (a tym samym spadek) stężenia tlenu w czasie w zamkniętej komorze, praktyka ogólnie znana jako respirometria3. Biorąc pod uwagę, że większość organizmów nie magazynuje tlenu, tempo metabolizmu można wywnioskować na podstawie bezpośredniej korelacji między oddychaniem a zużyciem węgla. Z tego powodu tempo oddychania może być przeliczone na dzienne zużycie węgla, co informuje o krytycznych funkcjach metabolicznych, takich jak wzrost, reprodukcja i zdolność do utrzymania homeostazy metabolicznej w czasach stresu środowiskowego4,5, w tym warunki fali upałów, które zazwyczaj prowadzą do stresu lub blaknięcia koralowców.
Rafy koralowe kurczą się globalnie w coraz szybszym tempie. Zwierzę koralowe jest domem dla konsorcjum partnerów (w tym bruzdnic Symbiodiniaceae, grzybów, bakterii i wirusów), wspólnie określanych jako "holobiont"6. Wraz ze wzrostem temperatury oceanów, koralowce, a tym samym rafy koralowe, znajdują się pod coraz większą presją, aby przetrwać, ponieważ wysokie temperatury prowadzą do utraty bruzdnic Symbiodiniaceae (zwanych dalej symbiontami), zjawisko znane jako bleaching7. Wiele składników odżywczych jest w inny sposób niedostępnych dla koralowców w oligotroficznych wodach tropikalnych, w tym nieorganiczny azot i fosfor8. Aby sobie z tym poradzić, koralowce tworzą obowiązkową symbiozę żywieniową ze swoimi symbiontami bruzdnic (Symbiodiniaceae), które dostarczają większość składników odżywczych potrzebnych gospodarzowi koralowca do przetrwania i odkładania ich szkieletów z węglanu wapnia9. Funkcjonująca symbioza może charakteryzować się wysokim poziomem współdzielenia węgla między partnerami10,11, a regulacja symbiozy obejmuje dynamiczną homeostazę12.
Podczas stresu cieplnego, ta dynamiczna regulacja i komunikacja są zakłócane, co skutkuje dysbiozą i bieleniem (przejrzane w reference13). Pomiary metaboliczne, takie jak fotosynteza i oddychanie, mają zatem potencjał do wyjaśnienia zarówno zdrowych, jak i nieregulowanych, dysbiotycznych stanów koralowców, a dokładny pomiar tych procesów w całej ontogenezie ma kluczowe znaczenie dla zrozumienia funkcjonowania organizmu. Jest to szczególnie ważne, ponieważ częstotliwość i skala masowych zdarzeń bielenia rośnie, co może wpływać na zmiany w dzieleniu się składnikami odżywczymi z symbiontów, w przypadku których stwierdzono, że transfer węgla zmniejsza się wraz ze wzrostem temperatury14. Może to być spowodowane mechanizmami kierowanymi przez sekwestrację składników odżywczych przez symbiont lub z twardych fizjologicznych kompromisów (zwiększona tolerancja termiczna, ale spadek przeżywalności gospodarza15,16,17). Zakłócenia w symbiozie mogą wynikać zarówno z symbiontu, jak i gospodarza, chociaż głównym czynnikiem jest prawdopodobnie nieprawidłowe działanie komórkowe symbiontu18. Jednak stres spowodowany wzrostem temperatury wody morskiej destabilizuje tę symbiozę; Udział węgla między symbiontem a gospodarzem jest zmniejszony19,20, co może doprowadzić do głodu koralowców. Może to być odzwierciedlone w zmniejszonych zapasach lipidów i węglowodanów w koralowcach z powodu zwiększonego użycia gospodarza ("zwiększony katabolizm związanego węgla"), prawdopodobnie z powodu zmniejszonego udziału symbiontów11. Wraz z wkładem fotosyntezy i oddychania symbiontów koralowców, oddychanie zwierzęcia koralowego jest ważną miarą zrozumienia zdrowia koralowców, wpływu bielenia i wymiany składników odżywczych między tymi partnerami oraz wzrostu holobiontu, fenotypu istotnego dla przetrwania zmian środowiskowych8,21,22. Wreszcie, biorąc pod uwagę, że wiele koralowców jest symbiotycznych, zastosowanie respirometrii do scharakteryzowania fotosyntezy oprócz oddychania jest szczególnie przydatne do kontekstualizacji proporcji P:R i zrozumienia, czy symbioza jest stabilna, czy nie (np. reference23).
Zmiany środowiskowe powodują zatem przesunięcia w budżetach energetycznych koralowca i jego symbiontów, prowadząc do różnic we wzroście14. Aby sobie z tym poradzić, gospodarz koralowca może zwiększyć oddychanie i zużycie lipidów, aby zaspokoić swoje wymagania metaboliczne; Stres cieplny może zmniejszyć produktywność netto o 60% z powodu zwiększonego oddychania14, mierzonego zmianą rozpuszczonego tlenu. Symbiodiniaceae mogą również zwiększać asymilację azotu i zatrzymywanie węgla14,24, a następnie wykorzystać te rezerwy do przesunięcia energii w kierunku własnych mechanizmów naprawczych i ochronnych25,26. Równowaga N i C jest ważna dla regulacji wzrostu, a w szczególności P27, co może objawiać się dynamiczną regulacją obfitości symbiontów. Rzeczywiście, dowody zebrane od koralowców na dużych obszarach raf (>1000 km) sugerują, że gospodarze mają zdolność do ograniczania wzrostu symbiontów poprzez regulację P, chociaż różni się to w zależności od gatunku koralowca27.
Podsumowując, badania te sugerują wzrost tolerancji na ciepło przy jednoczesnym spadku produkcji lub translokacji składników odżywczych (tj. skłonności do symbiozy) spowodowanym zmianami środowiskowymi. Skuteczne metody pojedynczego młodocianego osobnika, takie jak ilościowe określanie zużycia tlenu za pomocą mikrorespirometrii, powinny być zatem wykorzystywane do zrozumienia podstawowych mechanizmów związanych z metabolizmem, a następnie stosowane do kwestii ochrony, takich jak zrozumienie nabywania tolerancji na ciepło. Jest to tutaj przedstawione jako narzędzie mikrorespirometryczne do pomiarów fizjologicznych, mające na celu zbadanie relacji żywieniowych między młodocianymi koralowcami a ich symbiontami glonów, ale odpowiednie dla innych małych organizmów morskich.
Użycie lub produkcję tlenu przez organizmy można zmierzyć, umieszczając je w indywidualnych, hermetycznie zamkniętych komorach respirometrycznych lub 'respirometrach' (zwanych dalej komorami), gdzie zmiana tlenu jest mierzona za pomocą optodów3. Optody to sondy, które mierzą stężenie tlenu za pomocą impulsów świetlnych, a rejestrowanie pomiarów w czasie umożliwia obliczenie szybkości oddychania i/lub fotosyntezy. W praktyce pomiar oddychania jest podobny do pomiaru fotosyntezy u koralowców, z tą różnicą, że koralowce są inkubowane w całkowitej ciemności. Odjęcie całkowitego dziennego oddychania koralowców i symbiontów od całkowitej dziennej fotosyntezy daje różnicę tlenu (delta tlenu)2,3. Ogólnie rzecz biorąc, organizmy zużywają więcej tlenu niż produkują, co powoduje deficyt. Można to przeliczyć na ekwiwalenty węgla, ponieważ tlen i węgiel są zużywane w stałym stosunku2. Nadwyżka węgla może być wykorzystana przez koralowce do wzrostu, syntezy śluzu i rozmnażania oraz innych niezbędnych potrzeb metabolicznych12.
Ten protokół opisuje metodę mikrooddychania (Rysunek 1), która została zastosowana do pomiaru szybkości oddychania (R) dla poszczególnych młodych koralowców przy użyciu specjalnie wykonanej szklanej komory o pojemności 1,5 ml (fiolka z gwintem GL25 i wysokością 20 mm, z wypukłością/grzbietem, płasko szlifowanym brzegiem i nakrętką z otworem; patrz Tabela Materiałów) wypełniona przefiltrowaną wodą morską o grubości 0,5 μm. Optody światłowodowe (patrz Tabela Materiałów) zostały włożone do każdej komory przez otwór z boku pokrywy. Każdy pojedynczy koralowiec został przymocowany nad platformą mieszadła przepływowego o twardej siatce nad mieszadłem magnetycznym, aby zapewnić odpowiednie mieszanie wody w komorze. W reprezentatywnym przykładzie tutaj dwie kontrole lub "ślepe próby" (komory, które były identyczne, z wyjątkiem obecności próbki) były mierzone równolegle z trzema komorami na próbki, ponieważ mieliśmy wiele kontrolerów działających jednocześnie. Jednak przykład konfiguracji (Rysunek 2) pokazuje użycie tylko czterech kanałów; Wartość tę można zwiększyć za pomocą wielu sterowników i wielu stanowisk przepływowych. Temperaturę można również kontrolować w tym systemie, zanurzając każdą komorę w specjalnie przygotowanej łaźni wodnej z zaprogramowanymi temperaturami wody (27 °C dla kontroli lub 31 °C dla stresu wysokiej temperatury w przykładowych danych tutaj) za pomocą systemu przepływu recyrkulacyjnego (ciągły, łagodny przepływ ustawiony na 75 l/h). Platforma płyty mieszadła i płyta mieszadła z kołami zębatymi mogą mieć dowolny rozmiar i mogą być tak duże lub tak małe, jak to wymagane, aby pomieścić liczbę szklanych komór. W tym przykładzie platforma i płyta miały wymiary około 34 cm x 26 cm x 3 cm (tabela materiałów). Kalibrację optody przeprowadzano przed każdym uruchomieniem przy użyciu dwóch roztworów wzorcowych reprezentujących 0% i 100% nasycenia tlenem przy odpowiedniej temperaturze wody i zasoleniu dla tego eksperymentalnego ustawienia.
Protokół
1. Ustawienie sprzętu i koralowców w komorach oddechowych
UWAGA: Gotowe do reprodukcji koralowce (tj. te, które miały różowawo zabarwione wiązki jaj/plemniki widoczne z rozdrobnionych gałęzi kolonii gatunku Acropora tenuis) zostały usunięte z rafy na Magnetic Island (19° 6.249'S; 146° 51.728'E) w dniu pełni księżyca w październiku 2018 roku (numer zezwolenia: G12/35236.1), zebrane, i przyniesiono do laboratorium w celu tarła koralowców, gdzie hodowano i hodowano młode koralowce.
- W dniu pomiarów połączyć dwie płyty kąpieli wodnej za pomocą niebieskiej rurki polietylenowej i łączników (patrz Tabela materiałów; Rysunek 1 [5], Rysunek 2A,B). Będą one służyć jako inkubatory po podłączeniu niebieskiej rury polietylenowej do podgrzewacza wody/agregatu chłodniczego. Upewnij się, że płyta silnika jest wyraźnie widoczna przez przezroczyste płytki kąpieli wodnej, gdy komory respirometryczne nie są na swoim miejscu.
- Podłącz dwa węże do podgrzewacza wody/agregatu chłodniczego (patrz tabela materiałów). Włączyć podgrzewacz wody/agregat chłodniczy, a następnie ustawić żądaną temperaturę eksperymentalną (27 °C lub 31 °C).
- Podłącz podstawę łaźni wodnej (krok 1.1) do płyty silnika podstawy za pomocą kół zębatych magnetycznych (Rysunek 1 [6, 7] i Rysunek 3A), a następnie podłącz ten zespół do źródła zasilania (Rysunek 3B). Włącz źródło zasilania, aby aktywować koła zębate, które aktywują mieszadła w komorach.
- Moduluj przepływ wody zgodnie z wymaganiami (np. ciągły, łagodny przepływ ustawiony na 75 l/h z powolnym mieszaniem przy 30 obr./min) za pomocą pokręteł łącznika zaworu (Rysunek 3C).
- Aby zmontować komorę respirometryczną, dodaj kulkę magnetyczną (Rysunek 1 [1.5]) do szklanej komory (Rysunek 1 [1.6]), a następnie nieprzezroczystą plastikową podstawę stojaka przepływowego (Rysunek 1 [1.4]) do szklanej komory (Rysunek 4A). Wielkość komory i koralika magnetycznego będzie zależeć od organizmu i systemu badawczego, który Cię interesuje.
UWAGA: W plastikowej podstawie znajdują się otwory, które umożliwiają przepływ i cyrkulację wody z ruchu koralika magnetycznego w dnie. - Przyklej koralowiec za pomocą kleju akwariowego (patrz Tabela materiałów) do czarnej opaski zaciskowej umieszczonej w plastikowej podstawie (Rysunek 4B-D). Aby to zrobić, najpierw przyklej młodocianego koralowca do kawałka czarnego plastiku, a następnie przyklej ten kawałek do plastikowej podstawy. Po bezpiecznym przymocowaniu koralowca (utwardzenie kleju jest prawie natychmiastowe), przykręć pokrywkę z O-ringiem (Rysunek 4A) do szklanej komory. Wykonaj te czynności pod wodą w oddzielnej misce, aby upewnić się, że w komorze respirometrycznej nie ma powietrza.
UWAGA: Objętość wody w respirometrze (tj. objętość efektywna = 1,5 ml) została określona poprzez całkowite zanurzenie komory pod wodą. Zakłada się, że w stosunku do objętości wody, przemieszczenie od masy/gęstości bardzo małego koralowca jest znikome. Probówka do mikrowirówki o pojemności 1,5 ml jest pokazana tutaj dla skali (Rysunek 4A). - Mocno umieść komory w łaźniach wodnych (Rysunek 5A). Upewnij się, że szklane komory mają kontakt z wodą o kontrolowanej temperaturze na czas eksperymentu.
- Podłącz światłowodowe O2 (patrz Tabela materiałów) tak, aby stykały się z punktami czujnika tlenu (zwanymi dalej punktami; patrz Tabela materiałów), wkładając je do otworu wywierconego z boku komór pokrywy. Te małe plamki są wrażliwe na tlen i wykrywają i przesyłają sygnał z wnętrza komory przez światłowodowy.
- Dodaj taśmę hydrauliczną (biała cienka taśma samouszczelniająca), aby dobrze przylegał i pozostał mocno w komorze wodnej. Upewnij się, że pojedynczy koral jest widoczny (jak widać na Rysunek 5B), z brązowymi mackami skierowanymi do góry, wewnątrz komory (Rysunek 5B, Wideo 1).
UWAGA: Szacunkowe koszty elementów w aparacie przedstawiono w tabeli 1.
- Dodaj taśmę hydrauliczną (biała cienka taśma samouszczelniająca), aby dobrze przylegał i pozostał mocno w komorze wodnej. Upewnij się, że pojedynczy koral jest widoczny (jak widać na Rysunek 5B), z brązowymi mackami skierowanymi do góry, wewnątrz komory (Rysunek 5B, Wideo 1).
2. Standardowa procedura operacyjna pomiaru oddechu za pomocą systemu O2
- Otwórz oprogramowanie do pomiaru tlenu (patrz Tabela materiałów).
- Zmierz temperaturę w pomieszczeniu, w którym zostanie przeprowadzona kalibracja. Będzie to potrzebne później na etapie kalibracji (krok 2.8).
- Zamontuj czujniki optyczne i nasadki. Aby to zrobić, podłącz wszystkie światłowody do pasującego portu w module O2. Upewnij się, że zaślepka 1 jest dopasowana do czujnika 1, zaślepka 2 do czujnika 2 i tak dalej.
- Aby ustawić komory do kalibracji, najpierw zwilż kawałek czystej gąbki odrobiną wody z odwróconej osmozy (RO) i włóż go do każdej komory.
UWAGA: Gąbka nie powinna kapać, tylko być wilgotna. Może kapać na miejsce światłowodu. Upewnij się, że miejsce nie jest mokre przed przejściem do następnego kroku. - Umieść komory do góry nogami za pomocą pasującego światłowodu (Rysunek 6). Pozwoli to na odkręcenie komory bez dotykania światłowodu i dodanie siarczynu sodu do kalibracji 0%.
- Sprawdź sygnał każdego czujnika przed rozpoczęciem kalibracji. Przejrzyj wszystkie zakładki w interfejsie oprogramowania i sprawdź wartość sygnału (lewy górny róg) (Rysunek 7A), upewniając się, że nie różnią się one znacząco. Należy zapoznać się z instrukcją O2 w celu uzyskania dopuszczalnych wartości dla stanowiska doświadczalnego (w zależności od organizmu i warunków będących przedmiotem zainteresowania). Dla tej konkretnej konfiguracji, w temperaturze pokojowej 25,3 °C, dopuszczalny jest FTC (punktowy przepływ tlenu przez normalny zakres komórki) wynoszący 20,59 przy sygnale 179,5.
- Otwórz program i sprawdź ustawienia w oprogramowaniu, aby potwierdzić, że są poprawne, jak opisano poniżej. Jeśli wyskakujące okienko nie pojawi się natychmiast po otwarciu programu, można to zrobić, klikając przycisk Ustawienia w lewym dolnym rogu interfejsu oprogramowania.
- Sprawdź, czy zewnętrzny czujnik temperatury jest włączony (Rysunek 7B). Zmień ustawienie na Stała temperatura (Rysunek 7C). Następnie dodaj wartość temperatury w pomieszczeniu i kliknij kopiuj ustawienie do wszystkich innych kanałów.
- Zmień ustawienie na Zmniejsz dryft sygnału (Rysunek 7C). Następnie wybierz pozycję Ustawienia czujnika i wybierz poziom 2. W przeciwnym razie, jeśli używasz małych objętości, dryft będzie tak duży, że trudno będzie go skalibrować.
- Sprawdź ogólne ustawienia kanałów. Naciśnij przycisk OK, jeśli jest odpowiedni. Kliknij opcję Kopiuj ustawienia do wszystkich kanałów, a następnie kliknij przycisk OK.
- Skalibruj czujniki. Aby skalibrować kanał 1, przejdź do zakładki Kanał 1 i naciśnij przycisk Kalibruj. Wybierz 2-punktowy w wodzie lub wilgotnym powietrzu.
- W celu kalibracji "powietrznej" zanurz kawałek pianki w wodzie, umieść go w komorze i poczekaj, aż sygnał się ustabilizuje (patrz zdjęcia przed i po kalibracji powietrza). Gdy sytuacja się ustabilizuje, naciśnij "ustaw powietrze". Kliknij przycisk powietrza > Kalibruj > ustaw powietrze.
- Ustaw kalibrację 0% i 100% (Rysunek 7D). Wyjmij komorę z nasadki i umieść ją w następnej nasadce, tak aby sygnał kalibracji powietrza był gotowy po zakończeniu kalibracji 0% w pierwszym czujniku. Użyj pipety transferowej i napełnij nakrętkę 2% siarczynem sodu. Poczekaj, aż sygnał się ustabilizuje.
UWAGA: Stabilizacja sygnału zwykle zajmuje więcej czasu w porównaniu z kalibracją powietrza. Jeśli pojawi się komunikat ostrzegawczy informujący, że "wartości są poza typowym zakresem", upewnij się, że siarczyn sodu jest świeży. Powtórz ten sam proces kalibracji dla wszystkich kanałów. Przygotuj siarczyn sodu, dodając 2 g do 100 ml wody RO. - Po zakończeniu kalibracji należy dobrze wypłukać komory oddechowe i osuszyć komory oraz nasadki. Upewnij się, że w otworze światłowodowym nie ma wody.
- Umieść organizm (w tym przykładzie pojedyncze młode koralowce) w komorach oddechowych i zamknij pokrywkami. Zakładając pokrywy, upewnij się, że robisz to, gdy komory są całkowicie zanurzone i w środku nie ma absolutnie żadnego powietrza.
- Umieść komory mocno w płytce mieszającej i podłącz światłowody.
- Włącz zasilanie. Upewnij się, że woda w komorach jest całkowicie wymieszana. Ustaw temperaturę w chłodziarce/grzałce na wybrane temperatury eksperymentalne.
- Włącz pompę i grzałkę (kroki 1.2 i 1.4).
- Naciśnij log w interfejsie oprogramowania pomiarowego O2, aby rozpocząć nagrywanie.
Wyniki
Przetwarzanie i analiza danych
Choć istnieje wiele metod przetwarzania surowych danych z eksperymentów respirometrycznych, zaleca się stosowanie pakietu R respR28. Zgodnie z zasadami udostępniania powyższych protokołów, które promują otwartą naukę i powtarzalność, pakiet ten umożliwia udostępnianie przetwarzania i analizy danych w formie łatwej do odtworzenia i został zaprojektowany z myślą o tym celu. Jest to darmowa platforma o otwartym kodzie źródłowym, niezależna od systemu sond, którą można łatwo zainstalować z repozytorium CRAN lub GitHub. Pełny kod oraz przykłady dla respR są aktualizowane i dostępne pod adresem https://github.com/januarharianto/respR.
Pakiet respR zawiera funkcje służące do importowania, wizualizacji i kontroli jakości danych respirometrycznych, a także do obliczania szybkości oddychania w sposób automatyczny lub z ręcznie wybranych obszarów. Może on również korygować szybkości o tło oddechowe oraz przeliczać szybkości na powszechnie stosowane jednostki wyjściowe. Kroki niezbędne do przetworzenia danych z systemu mikrorespirometrii szczegółowo opisano poniżej. W niniejszym badaniu jako przykład wykorzystano dane z systemu respirometrycznego, jednak pakiet akceptuje również dane z większości komercyjnie dostępnych systemów sond tlenowych, a także generyczne obiekty danych R. Więcej szczegółów na temat pakietu, w tym pełną dokumentację i samouczki, można znaleźć na stronie internetowej pakietu pod adresem https://januarharianto.github.io/respR/index.html.
Importowanie surowych danych
Importowany jest surowy plik wyjściowy (.txt). respR rozpoznaje format i analizuje go do postaci ogólnej ramki danych R, która może być wykorzystana w kolejnych funkcjach. Należy jednak zauważyć, że jest to opcjonalne; pliki te oraz praktycznie każda seria czasowa danych dotyczących tlenu mogą być również importowane za pomocą funkcji podstawowych (podano poniżej) przez każdą osobę posiadającą podstawową wiedzę z zakresu języka R.
#ładuj respR
Library(respR)
#Import ---
Data <- import_file("file.txt")
#Wykryto plik Firesting-Pryo
Inspekcja i wizualizacja danych
Kluczową częścią każdego zadania analizy danych jest ich wykreślenie i inspekcja w celu poszukiwania oczywistych anomalii lub wzorców, a nawet po prostu w celu ułatwienia ich zrozumienia. Zastosowano tutaj funkcję inspect (Rycina 8A), która sprawdza problemy typowe dla danych respirometrycznych, takie jak wartości nienumeryczne lub brakujące.
#inspekcja pojedynczej kolumny tlenu
Insp <-inspect(data, time = 3, oxygen = 8, width = 0.2)
Funkcja ta wykreśla również szeregi czasowe tlenu i oblicza kroczącą szybkość (dolny panel), aby pomóc wyjaśnić, w jaki sposób szybkość ta może zmieniać się w trakcie eksperymentu. Wykresy kroczącej szybkości pomagają określić, które obszary tych krzywych szybkości należy wyekstrahować. W przypadku standardowych lub rutynowych szybkości metabolicznych pożądanymi obszarami są te, w których szybkość wykazuje stabilność (np. po około punkcie czasowym 3 000; Rycina 8B).
W tym przypadku spadek poziomu tlenu staje się wykrywalny dopiero po około 200. wierszu w pełnym panelu serii czasowej. Takie wzorce są bardzo powszechne w danych respirometrycznych; na początku eksperymentu często występuje przedłużony okres niestabilności, podczas którego system się stabilizuje, a badany okaz aklimatyzuje się do warunków doświadczalnych. Zaleca się, aby wartości szybkości wyznaczać z serii czasowej dopiero po tym początkowym okresie niestabilności, co dodatkowo podkreśla znaczenie wizualizacji danych.
Szybkości ekstrakcji
respR posiada dwie funkcje służące do ekstrakcji szybkości oddychania. Pierwszą z nich jest funkcja calc_rate(), która umożliwia ręczną ekstrakcję szybkości poprzez określenie przedziału czasu, wiersza lub poziomu tlenu. Jest to powszechnie stosowane w analizach respirometrycznych i w pełni akceptowalna metoda wyznaczania szybkości, pod warunkiem, że kryteria wyboru zostaną ustalone i stosowane konsekwentnie28.
Bardziej solidnym i obiektywnym sposobem jest użycie funkcji auto_rate(), która identyfikuje liniowe obszary danych. Są to obszary o stale utrzymujących się szybkościach oddychania, przypisywane automatycznie przy użyciu uczenia maszynowego. Funkcja ta jest również przydatna do wykrywania słabych sygnałów (jak w próbkach użytych w niniejszym badaniu, ze względu na niską biomasę w tym wieku). Funkcja ta umożliwia identyfikację najbardziej liniowych, minimalnych i maksymalnych szybkości przy użyciu niezależnych, obiektywnych i statystycznie wiarygodnych metod28. Przedstawiony tutaj przykład identyfikuje obszar liniowy występujący mniej więcej od punktów czasowych 3 000 do 5 000. Należy zauważyć, że można zidentyfikować wiele obszarów liniowych, ale ten odcinek jest obszarem o najwyższym rankingu, czyli najbardziej liniowym (Rysunek 8C).
#Wyznacz najbardziej liniową (tj. spójną) szybkość
rate <-auto_rate(insp)
Korekta tła
Wartości tła z eksperymentów kontrolnych można wyznaczyć w sposób podobny do powyższego przykładu i wykorzystać je do korekty wartości dla badanych próbek za pomocą funkcji adjust_rate() (Rysunek 9A; należy zauważyć, że nie przedstawiono tutaj pełnej analizy, a jedynie samą korektę). Pełne przykłady są szczegółowo opisane na stronie internetowej respR.
#Korekta szybkości o tło
rate_adj <-adjust_rate(rate, by = bg) #zapisany obiekt bg
print(rate_adj)
Przeliczanie szybkości
Ostatnim krokiem jest przeliczenie szybkości na pożądane jednostki wynikowe, wykorzystując oryginalne jednostki surowych danych, objętość efektywną respirometru oraz inne dane eksperymentalne, w tym normalizację względem pomiarów tła (Rysunek 9B). Wynikiem może być bezwzględna szybkość oddychania, czyli dla całego okazu, lub szybkość specyficzna w odniesieniu do masy lub powierzchni. W niniejszym przypadku zastosowano szybkość specyficzną dla powierzchni, która jest definiowana jako bezwzględna szybkość podzielona przez powierzchnię okazu (Rysunek 9C).
Jak omówiono powyżej, system ten został opracowany do pomiaru bardzo małych próbek. W związku z tym spodziewano się niskich wartości oraz potencjalnego nakładania się wyników z pomiarami tła (blankami). W próbkach tła oczekiwany jest pewien poziom sygnału, a po analizie stwierdzono, że wartości te mieszczą się w przewidywanym zakresie ogólnego szumu eksperymentalnego, co może wynikać z dryftu sondy, niewielkich zmian temperatury lub pęcherzyków powietrza na sondach. Ze względu na konstrukcję oraz mały rozmiar próbek, a tym samym małą objętość efektywną, stosowanie blanków jest tutaj szczególnie istotne, zwłaszcza dla każdego cyklu pomiarowego. Przykładowe wartości zostały przedstawione jako wzór (Rycina 10). Biorąc pod uwagę mały rozmiar próbek, zalecamy stosowanie blanków przy każdym uruchomieniu urządzenia w celu standaryzacji pomiarów w ramach danej serii.
Te wartości tła są następnie wykorzystywane do standaryzacji wartości pomiarów traktowanych. Biorąc pod uwagę, że koralowce oddychają oprócz produkcji tlenu, tempo metaboliczne może przyjmować wartości od ujemnych do dodatnich. Tutaj przedstawiono przykład reprezentatywnych wyników zakresu wartości oddychania wykrytych za pomocą narzędzia do mikro-respiracji. Wyniki te określono na podstawie udanego eksperymentu na pojedynczych młodych koralowcach (Rycina 10). Ogólnie przyjmuje się, że wykrycie oddychania w tym przykładowym zbiorze danych byłoby trudne (z założenia), ze względu na niewielki rozmiar próbek; podkreśla to wartość tej metody w wychwytywaniu tak niskiego progu sygnału. Te reprezentatywne wyniki pokazują oddychanie w ciemności dla najmniejszych badanych rozmiarów okazów, podkreślając minimalny próg detekcji tego systemu. Pomiary przeprowadzono również w dwóch warunkach (kontrolnym i stresie wysokotemperaturowym). Po standaryzacji względem tła zmierzonego w każdej serii, wartości wahały się od bliskich zeru (kontrola) do mediany ok. -5e-5 dla traktowania stresowego. Zgodnie z oczekiwaniami, poziom oddychania był niski. Wyniki te wyraźnie pokazują reprezentatywne wartości dla tła, a także porównanie grupy kontrolnej z grupą poddaną wysokiej temperaturze dla tych bardzo małych próbek.
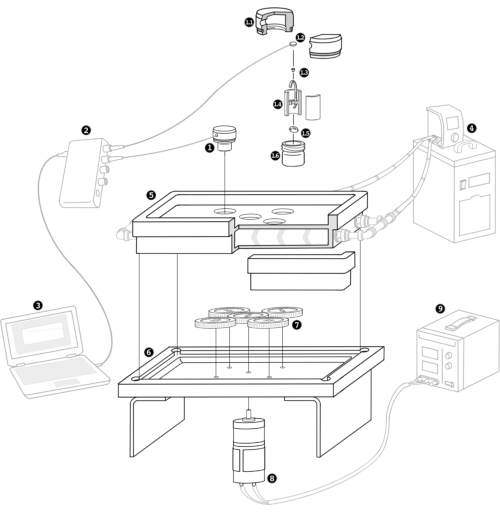
Rycina 1: Schematyczna reprezentacja nowego narzędzia do mikrorespirometrii służącego do charakterystyki fizjologicznej holobionta koralowca (polipa koralowca + symbionty) lub każdego małego organizmu (<1 mm). Wykonano niestandardowe komory respirometryczne (numer 1; 1.1-1.6). Obejmują one pokrywy (1.1) z punktami czujnika tlenu (1.2), a pojedynczy osobnik młodociany (1.3) jest umieszczany na stojaku przepływowym (1.4) ustawionym na mieszadle magnetycznym (1.5), z których wszystkie mieszczą się w szklanej komorze (1.6). Sterownik (2) jest połączony z punktem pomiarowym za pomocą kabla światłowodowego, który pasuje do pokrywy (1), i podłączony do komputera (3). Grzałka/chłodziarka (4) łączy się z płytą respirometryczną (5) za pomocą przepływającej wody (kierunek wskazany strzałkami), która spoczywa na płycie mieszającej (6) z przekładniami (7), zasilanej przez silnik (8) i zasilacz (9). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 2: Układ do mikrorespirometrii. Dostępnych jest kilka opcji, w tym (A) jedna płytka respirometryczna lub (B) połączenie z wieloma płytkami. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
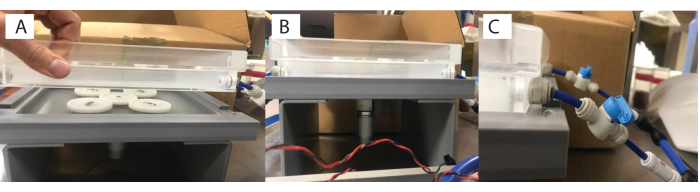
Rycina 3: Samodzielnie zbudowana płyta z mieszadłem magnetycznym umieszczona na płycie respirometrycznej. Każda komora posiada (A) magnes mieszający pod spodem, (B) napędzany silnikiem, przy czym (C) płyta respirometryczna jest połączona przewodami z grzałką/chłodziarką. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 4: Konfiguracja niestandardowej komory respirometrycznej. (A) Komponenty (od lewej do prawej: pokrywka, szklana fiolka, stojak, probówka 1,5 ml dla skali oraz mieszadło magnetyczne). (B) Pojedynczy stojak przepływowy, w którym umieszcza się okaz. (C) Widok z góry na stojak przepływowy. (D) Stojak umieszczony wewnątrz szklanej fiolki z przykręconą pokrywką. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
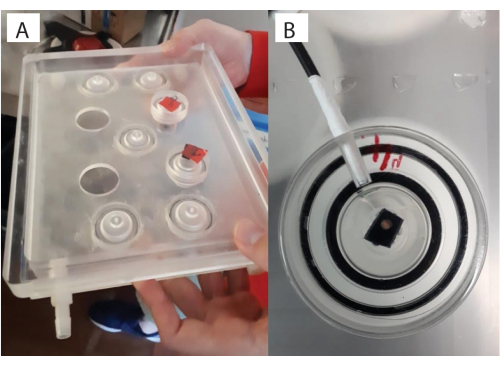
Rysunek 5: Fiolki szklane umieszczone na mieszalce magnetycznej. (A) Własnoręcznie wykonana płyta mieszalnika oraz (B) zbliżenie kompletnej fiolki szklanej z zestawem pokrywy. Tutaj przez pokrywę widoczny jest młody koralowiec (brązowa kropka), znajdujący się na opasce zaciskowej, z włóknem optycznym umieszczonym w otworze pokrywy. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 6: Komory umieszczone do góry dnem, gotowe do kalibracji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 7: Kluczowe kroki w oprogramowaniu do pomiaru tlenu. (A) Sprawdzenie sygnału każdego czujnika. Optymalny sygnał dla niniejszego badania i zastosowanych czujników pokazano dla czujnika tlenowego typu spot FTC (zakres normalny). (B) Sprawdzenie dryftu sygnału. (C) Ustawienie i sprawdzenie temperatur obróbki. (D) Ustawienie i sprawdzenie kalibracji 0% i 100%. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 8: Kroki generowania wyników analizy respR I. (A) Weryfikacja polecenia i wyniku. (B) Sprawdzenie stabilności stopy. (C) Wyznaczenie najbardziej liniowej stopy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 9: Etapy II wyjściowych wyników analizy respR. (A) Korekta szybkości względem tła, (B) Konwersja i (C) weryfikacja szybkości. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
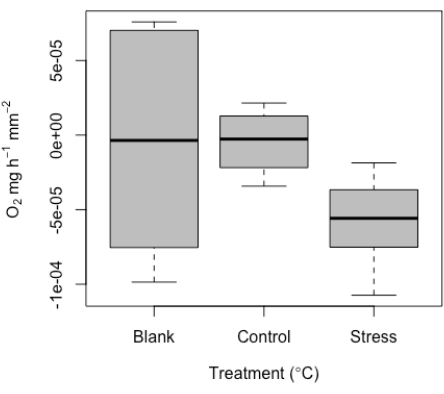
Rycina 10: Reprezentatywne wyniki uzyskane za pomocą narzędzia do mikrorespirometrii. Mediana respiracji (O2 ± błąd standardowy) powtórzeń pojedynczych młodych koralowców, obejmująca wartości próbek ślepych oraz respirację osobników w warunkach kontrolnych i w warunkach stresu wysokotemperaturowego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wideo 1: Widok z góry na komorę respirometryczną z młodym koralowcem wewnątrz podczas sesji pomiarowej. Kliknij tutaj, aby pobrać to wideo.
Tabela 1: Szacunkowe koszty komponentów aparatury respirometrycznej. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Praca ta przedstawia konstrukcję niestandardowego zestawu do mikrorespirometrii, który może być wykorzystany do ilościowego określenia ilości tlenu zużywanego i wytwarzanego przez małe osiadłe organizmy wodne. Krytyczne elementy tego protokołu obejmują konfigurację komór, w tym miejsc, oraz kalibrację niskiego sygnału za pomocą pakietu respR , w którym niski sygnał można zdefiniować jako szybkości typowe dla płytkich lub hałaśliwych zboczy. Niestandardowa komora i jej konfiguracja pozwala na wykrywanie nawet słabych sygnałów, podczas gdy zastosowanie pakietu R pomaga zabezpieczyć się przed problemami, w których występowanie płytkich lub hałaśliwych nachyleń może prowadzić do błędnej interpretacji wyników (np. wyniki fałszywie dodatnie).
Potencjalne modyfikacje, które będą potrzebne dla innych użytkowników, obejmują m.in. zabezpieczenie interesującego nas organizmu w specjalnie wykonanej komorze. W tym przypadku użyto małej, sztywnej opaski zaciskowej i kleju akwariowego, aby przymocować pojedynczego młodego osobnika do plastikowej podstawy, która następnie została przyklejona do krawata. Należy zauważyć, że w tym eksperymencie młode koralowce umieszczono na czarnej folii plastikowej. Plastik ten pozwolił na łatwe usunięcie młodocianych koralowców, które skutecznie zsuwały się z plastiku, aby nie wyrządzić im fizycznej szkody podczas usuwania. Młodociane koralowce przyczepiają się do podłoża, na którym się osiadają, dlatego zaleca się osadzenie ich na podobnym materiale z tworzywa sztucznego, przy użyciu sztucznego peptydu16 , aby ułatwić ich usunięcie w procesie klejenia. Aby jeszcze bardziej zminimalizować stres związany z obsługą i wpływ na reakcję oddechową, zaleca się, aby koralowce zamontowane na opaskach zaciskowych aklimatyzowały się przez 1-2 tygodnie, jak to ma miejsce w wielu eksperymentach ze stresem u dorosłych koralowców. Mogą być potrzebne inne modyfikacje, aby zabezpieczyć organizm powyżej miejsca w pokrywie i umożliwić cyrkulację wody. Innym kluczowym krokiem rozwiązywania problemów jest wykrywanie sygnału, w szczególności na nachyleniu szeregu czasowego tlenu, w którym należy określić dawki. Ostatecznie sprowadza się to do połączenia zdrowego osądu w celu wykluczenia ewidentnie niestabilnych danych oraz funkcji w ramach respR , które umożliwiają wyodrębnianie wskaźników ze spójnie wybranych regionów lub automatycznie poprzez identyfikację liniowych regionów danych. Więcej informacji na temat tego, jak to zrobić, można znaleźć na stronie internetowej firmy .
Metoda ta została opracowana w celu rozszerzenia pomiarów dolnej granicy oddychania na niezwykle małe, siedzące bezkręgowce morskie. Oczywistym ograniczeniem jest to, że protokół ten może być bardziej podatny na fałszywe alarmy w porównaniu z protokołami zaprojektowanymi dla większych biomas. Biorąc jednak pod uwagę, że taki był cel projektu - aby zmierzyć te dolne limity - zostało to uwzględnione w projekcie, a procedura może być stosowana z pakietem respR , aby lepiej chronić przed fałszywie dodatnimi wynikami. Ważne jest również, aby przyznać, że istnieją inne systemy do pomiaru oddechu30 i pomiaru małych organizmów, w tym respirometrii na pojedynczych widłonogach31 w mniejszych objętościach niż ta (~0,5-1 ml), ale są albo drogie, albo brakuje im określonych składników (zdolność mieszania). Jest to jednak system typu open source i stosunkowo niski koszt w porównaniu z systemami komercyjnymi (np. system Core Microplate). System ten uwzględnia również kluczowe względy metodologiczne, takie jak mieszanie, których innym systemom może brakować. Funkcja wewnętrznego mieszadła jest niezbędna do odtworzenia naturalnego mieszania wody przez wiele organizmów morskich (np. widłonogów poprzez pływanie), co często nie jest możliwe i może sprawić, że dane będą w dużej mierze bezużyteczne. W przeciwieństwie do tego, inne dostępne metody mieszania polegają na umieszczeniu całego respirometru na gigantycznej ławce bujanej, co wymaga dodatkowego wyposażenia i ma ograniczoną skuteczność w mieszaniu, lub mieszanie za pomocą wibracji, co może powodować zakłócenia w organizmie. Z tego powodu jest to jedyny system, który może wykonywać respirometrię na młodocianych koralowcach lub innych bardzo małych organizmach siedzących. Dla porównania, zakres wielkości uwzględnionych tutaj próbek wahał się od 2,1 do 3,6 polipów (co odpowiada zaledwie kilkumiesięcznemu wiekowi), przy czym średnia powierzchnia od minimalnej do maksymalnej wynosiła od 1,3 do 4,5 mm2.
Respirometria jest podstawowym środkiem w badaniach ekologicznych i istnieje wiele metod służących do tego celu. Większość z tych istniejących metod jest jednak ukierunkowana na próbki o wysokiej biomasie, w tym całe ryby, fragmenty koralowców lub trawy morskie 32,33,34. Ta metoda jest pierwszą, w której wykorzystuje się indywidualne młode koralowce. Ponadto istnieje wiele potencjalnych zastosowań tej metody, ponieważ dostarcza ona kluczowych informacji fizjologicznych na temat funkcjonowania organizmu. Może to być ważne w przypadku badań, które mają na celu scharakteryzowanie podstawowych szacunków zdrowotnych35, zrozumienie roli ostrego lub długotrwałego stresu podczas ontogenezy koralowców, takiej jak stres cieplny36, lub określenie progów, które menedżerowie mogą ustalić, aby pomóc w ochronie i poprawie zdrowia raf koralowych37. Biorąc pod uwagę, że koralowiec jest holobiontem, a społeczność symbiontów jest stosunkowo elastyczna na tym etapie i przez cały pierwszy rok życia38, interesujące byłoby powiązanie danych respirometrycznych ze zmianami w społecznościach w czasie, aby w pełni skontekstualizować funkcjonowanie organizmu jako całości. Co ważne, metoda ta przyczynia się do rozwoju technik "otwartej nauki", które pomagają zapewnić zarys tworzenia niestandardowych konfiguracji eksperymentalnych, które można udostępniać, ulepszać i standaryzować w sposób otwarty.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy chcieliby podziękować Samowi Noonanowi za pomoc i rady, Svenowi Uthicke'owi za użycie początkowych komór respirometrycznych, Benowi Shelabowi za ilustrację inżynierską, a warsztatom Australijskiego Instytutu Nauk o Morzu za indywidualną obróbkę adapterów i uchwytów do komór respirometrycznych. Koralowce zostały zebrane na podstawie następującego zezwolenia Parku Morskiego Wielkiej Rafy Koralowej na AIMS G12/ 35236.1. Koralowce nie wymagają pozwoleń etycznych.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Koszt | |||
| (1.1 – 1.6) Niestandardowe komory respirometryczne | LabGlass Party Ldt. | 1,5 ml | $407.26 |
| 1.1 pokrywki warsztatowe | AIMS | Fiolka GL25 gwint | ~ $10 |
| 1.2 plamki światłowodowe (optody światłowodowe FireStingO2 II) | PyroScience | Plamki czujnika tlenu, 125 i mikro; m folia PET, & Oslash; 5 mm, z izolacją optyczną, SN: 183801947 | $41.25 AUD za |
| 1.3 indywidualny organizm | NA | NA | |
| 1.4 Stojak przepływowy | Warsztat AIMS | Custom | w punktach 5 i 6 cena (warsztat dał mi szacunkową wartość pokrywek, stanowiska z kołami zębatymi, silnika, przepływu inkubacji przez |
| mieszadło magnetyczne 1,5 | Każdy producent jest odpowiedni | na | ~ 2 USD? |
| 1.6 szklana komora (fiolka GL25 gwint x 20 mm wysokości, z wypukłością/grzbietem, płasko szlifowana krawędź, zakrętka z otworem, Labglass Pty Ltd, Stafford QLD) | Labglass Pty Ltd, Stafford QLD | Vial GL25 gwint x 20 mm wysokości, z wypukłością/grzbietem, płasko szlifowana krawędź, zakrętka z otworem | $50.9 AUD |
| 2 Kontroler FireSting (2) | PyroSciences | NA | 4 czujniki to 4000 euro. 8 używanych tutaj czujników. |
| 3 komputer | NA | ||
| NA 4 nagrzewnica | VWR International | NA | Małe modele około $4,000 AUD 5 platforma |
| z płytą respirometryczną | AIMS warsztat | 34 cm x 26 cm x 3 cm (chociaż wszelkie wymiary są odpowiednie do dopasowania żądanej liczby komór) | $1250 AUD |
| 6 mieszadeł z kołami zębatymi (7) | Warsztat AIMS | 34 cm x 26 cm x 3 cm | $1250 AUD |
| 8 Zasilany silnikiem | Warsztat AIMS | Niestandardowy | $700 AUD |
| 9 zasilacz | Niespecyficzny | NA | ~$300 AUD |
| Klej akwariowy | Seachem Klej rafowy | 20g | $14 |
| Oprogramowanie do rejestratora tlenu | PyroScience | NA | NA |
| Polypipe i złącza | John Guest | NA | $20 |
| Siarczyn sodu | Sigma | S0505-250G (numer CAS 7757-83-7) | $54 |
Bibliografia
- Quigley, K. M. A fast, precise, in-vivo method for micron-level 3D models of corals using dental scanners. Methods in Ecology and Evolution. 13 (10), 2159-2166 (2022).
- Svendsen, M. B. S., Bushnell, P. G., Steffensen, J. F. Design and setup of intermittent-flow respirometry system for aquatic organisms. Journal of Fish Biology. 88 (1), 26-50 (2016).
- Lighton, J. R. B. Measuring Metabolic Rates: a Manual for Scientists. , Oxford University Press. (2018).
- Carey, N., Harianto, J., Byrne, M. Sea urchins in a high-CO2 world: partitioned effects of body size, ocean warming and acidification on metabolic rate. The Journal of Experimental Biology. 219 (Pt 8), 1178-1186 (2016).
- Clark, T. D., Sandblom, E., Jutfelt, F. Aerobic scope measurements of fishes in an era of climate change: respirometry, relevance and recommendations. The Journal of Experimental Biology. 216 (Pt 15), 2771-2782 (2013).
- Voolstra, C. R., et al. Extending the natural adaptive capacity of coral holobionts. Nature Reviews Earth & Environment. 2 (11), 747-762 (2021).
- Hoegh-Guldberg, O. Climate change, coral bleaching and the future of the world's coral reefs. Marine and Freshwater Research. 50 (8), 839-866 (1999).
- Morris, L. A., Voolstra, C. R., Quigley, K. M., Bourne, D. G., Bay, L. K. Nutrient availability and metabolism affect the stability of coral-symbiodiniaceae symbioses. Trends in Microbiology. 27 (8), 678-689 (2019).
- Yellowlees, D., Rees, T. A. V., Leggat, W. Metabolic interactions between algal symbionts and invertebrate hosts. Plant, Cell & Environment. 31 (5), 679-694 (2008).
- Rädecker, N., et al. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9, 214(2018).
- Matthews, J. L., et al. Optimal nutrient exchange and immune responses operate in partner specificity in the cnidarian-dinoflagellate symbiosis. Proceedings of the National Academy of Sciences. 114 (50), 13194-13199 (2017).
- Davy, S. K., Allemand, D., Weis, V. M. Cell biology of cnidarian-dinoflagellate symbiosis. Microbiology and Molecular Biology Reviews. 76 (2), 229-261 (2012).
- Weis, V. M. Cellular mechanisms of Cnidarian bleaching: stress causes the collapse of symbiosis. The Journal of Experimental Biology. 211 (Pt 19), 3059-3066 (2008).
- Baker, D. M., Freeman, C. J., Wong, J. C. Y., Fogel, M. L., Knowlton, N. Climate change promotes parasitism in a coral symbiosis. The ISME Journal. 12 (3), 921-930 (2018).
- Chakravarti, L. J., van Oppen, M. J. H. Experimental evolution in coral photosymbionts as a tool to increase thermal tolerance. Frontiers in Marine Science. 5, 227(2018).
- Quigley, K. M., Alvarez Roa, C., Beltran, V. H., Leggat, B., Willis, B. L. Experimental evolution of the coral algal endosymbiont, Cladocopium goreaui: lessons learnt across a decade of stress experiments to enhance coral heat tolerance. Restoration Ecology. 29 (3), e13342(2021).
- Buerger, P., et al. Heat-evolved microalgal symbionts increase coral bleaching tolerance. Science Advances. 6 (20), eaba2498(2020).
- Bieri, T., Onishi, M., Xiang, T., Grossman, A. R., Pringle, J. R. Relative contributions of various cellular mechanisms to loss of algae during cnidarian bleaching. PLoS One. 11 (4), e0152693(2016).
- Tremblay, P., Gori, A., Maguer, J. F., Hoogenboom, M., Ferrier-Pagès, C. Heterotrophy promotes the re-establishment of photosynthate translocation in a symbiotic coral after heat stress. Scientific Reports. 6, 38112(2016).
- Tremblay, P., Grover, R., Maguer, J. F., Hoogenboom, M., Ferrier-Pagès, C. Carbon translocation from symbiont to host depends on irradiance and food availability in the tropical coral Stylophora pistillata. Coral Reefs. 33 (1), 1-13 (2014).
- Wooldridge, S. A. Is the coral-algae symbiosis really 'mutually beneficial' for the partners. Bioessays. 32 (7), 615-625 (2010).
- Wooldridge, S. A. Breakdown of the coral-algae symbiosis: towards formalising a linkage between warm-water bleaching thresholds and the growth rate of the intracellular zooxanthellae. Biogeosciences. 10 (3), 1647-1658 (2013).
- Coles, S. L., Jokiel, P. L. Effects of temperature on photosynthesis and respiration in hermatypic corals. Marine Biology. 43, 209-216 (1977).
- Marubini, F., Davies, P. S. Nitrate increases zooxanthellae population density and reduces skeletogenesis in corals. Marine Biology. 127, 319-328 (1996).
- Iglesias-Prieto, R., Matta, J. L., Robins, W. A., Trench, R. K. Photosynthetic response to elevated temperature in the symbiotic dinoflagellate Symbiodinium microadriaticum in culture. Proceedings of the National Academy of Sciences. 89 (21), 10302-10305 (1992).
- Karako-Lampert, S., Katcoff, D. J., Achituv, Y., Dubinsky, Z., Stambler, N. Responses of Symbiodinium microadriaticum clade B to different environmental conditions. Journal of Experimental Marine Biology and Ecology. 318 (1), 11-20 (2005).
- Blanckaert, A. C. A., Reef, R., Pandolfi, J. M., Lovelock, C. E. Variation in the elemental stoichiometry of the coral-zooxanthellae symbiosis. Coral Reefs. 39, 1071-1079 (2020).
- Harianto, J., Carey, N., Byrne, M. respR-An R package for the manipulation and analysis of respirometry data. Methods in Ecology and Evolution. 10 (6), 912-920 (2019).
- Gamble, S., Carton, A. G., Pirozzi, I. Open-top static respirometry is a reliable method to determine the routine metabolic rate of barramundi. Lates calcarifer. Marine and Freshwater Behaviour and Physiology. 47 (1), 19-28 (2014).
- Burford, B. P., et al. Rapid range expansion of a marine ectotherm reveals the demographic and ecological consequences of short-term variability in seawater temperature and dissolved oxygen. The American Naturalist. 199 (4), 523-550 (2022).
- Morozov, S., McCairns, R. J. S., Merilä, J. FishResp: R package and GUI application for analysis of aquatic respirometry data. Conservation Physiology. 7 (1), coz003(2019).
- Leclercq, N., Gattuso, J. -P., Jaubert, J. Primary production, respiration, and calcification of a coral reef mesocosm under increased CO2 partial pressure. Limnology and Oceanography. 47 (2), 558-564 (2002).
- Anthony, K. R. N., Hoegh-Guldberg, O. Variation in coral photosynthesis, respiration and growth characteristics in contrasting light microhabitats: an analogue to plants in forest gaps and understoreys. Functional Ecology. 17, 246-259 (2003).
- Moulin, L., et al. Long-term mesocosms study of the effects of ocean acidification on growth and physiology of the sea urchin Echinometra mathaei. Marine Environmental Research. 103, 103-114 (2015).
- Quigley, K. M., Bay, L. K., van Oppen, M. J. H. Genome-wide SNP analysis reveals an increase in adaptive genetic variation through selective breeding of coral. Molecular Ecology. 29 (12), 2176-2188 (2020).
- Brunner, C. A., Ricardo, G. F., Uthicke, S., Negri, A. P., Hoogenboom, M. O. Effects of climate change and light limitation on coral recruits. Marine Ecology Progress Series. 690, 65-82 (2022).
- Quigley, K. M., Alvarez Roa, C., Torda, G., Bourne, D., Willis, B. L. Co-dynamics of Symbiodiniaceae and bacterial populations during the first year of symbiosis with Acropora tenuis juveniles. MicrobiologyOpen. 9 (2), e959(2020).
- Quigley, K. M., Bay, L. K., Torda, G., Willis, B. L. Leveraging new knowledge of Symbiodinium community regulation in corals for conservation and reef restoration. Marine Ecology Progress Series, 600. , 245-253 (2018).
Przedruki i uprawnienia
