Obecne metody analizy dynamiki wewnątrzkomórkowej spolaryzowanych pojedynczych komórek są często ręczne i brakuje im standaryzacji. Niniejszy manuskrypt wprowadza nowatorski potok analizy obrazu do automatyzacji ekstrakcji linii środkowej pojedynczych spolaryzowanych komórek i ilościowego określania zachowań czasoprzestrzennych na podstawie upływu czasu w przyjaznym dla użytkownika interfejsie online.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
AMEBaS: Automatyczna ekstrakcja linii środkowej i odejmowanie tła poklatkowych fluorescencji ratiometrycznej spolaryzowanych pojedynczych komórek
W tym artykule
Podsumowanie
Streszczenie
Polaryzacja komórek to makroskopowe zjawisko ustanowione przez zbiór przestrzennie skoncentrowanych cząsteczek i struktur, których kulminacją jest pojawienie się wyspecjalizowanych domen na poziomie subkomórkowym. Jest to związane z rozwojem asymetrycznych struktur morfologicznych, które leżą u podstaw kluczowych funkcji biologicznych, takich jak podział komórek, wzrost i migracja. Ponadto zakłócenie polaryzacji komórek zostało powiązane z zaburzeniami związanymi z tkankami, takimi jak rak i dysplazja żołądka.
Obecne metody oceny dynamiki czasoprzestrzennej fluorescencyjnych reporterów w pojedynczych spolaryzowanych komórkach często obejmują ręczne kroki w celu wytyczenia linii środkowej wzdłuż głównej osi komórek, co jest czasochłonne i podatne na silne odchylenia. Ponadto, chociaż analiza ratiometryczna może skorygować nierównomierny rozkład cząsteczek reporterowych za pomocą dwóch kanałów fluorescencyjnych, techniki odejmowania tła są często arbitralne i brakuje im wsparcia statystycznego.
Ten manuskrypt wprowadza nowatorski potok obliczeniowy do automatyzacji i ilościowego określania czasoprzestrzennego zachowania pojedynczych komórek przy użyciu modelu polaryzacji komórek: wzrostu łagiewki pyłkowej/włośnika korzeniowego i dynamiki jonów cytozolowych. Opracowano trzyetapowy algorytm do przetwarzania obrazów ratiometrycznych i wyodrębniania ilościowej reprezentacji dynamiki i wzrostu wewnątrzkomórkowego. Pierwszy krok segmentuje komórkę od tła, tworząc maskę binarną za pomocą techniki progowania w przestrzeni intensywności pikseli. Drugi krok śledzi ścieżkę przez linię środkową komórki poprzez operację szkieletyzacji. Wreszcie trzeci krok dostarcza przetworzone dane jako timelapse ratiometryczne i daje kimograf ratiometryczny (tj. profil przestrzenny 1D w czasie). Do porównania metody wykorzystano dane z obrazów ratiometrycznych uzyskanych za pomocą genetycznie kodowanych reporterów fluorescencyjnych z rosnących łagiewek pyłkowych. Ten potok pozwala na szybszą, mniej stronniczą i dokładniejszą reprezentację dynamiki czasoprzestrzennej wzdłuż linii środkowej spolaryzowanych komórek, rozwijając w ten sposób ilościowy zestaw narzędzi dostępnych do badania polaryzacji komórek. Kod źródłowy AMEBaS Python jest dostępny pod adresem: https://github.com/badain/amebas.git
Wprowadzenie
Polaryzacja komórki jest fundamentalnym procesem biologicznym, w którym skoordynowane działanie grupy przestrzennie skoncentrowanych cząsteczek i struktur prowadzi do ustanowienia wyspecjalizowanych morfologicznych domen podkomórkowych1. Podział, wzrost i migracja komórek zależą od takich miejsc polaryzacji, podczas gdy ich utrata jest powiązana z nowotworami w schorzeniach dotyczących tkanki nabłonkowej2.
Komórki wykazujące wzrost apikalny stanowią spektakularny przykład polarności, w której miejsce polaryzacji na wierzchołku zazwyczaj reorientuje się w odpowiedzi na sygnały zewnątrzkomórkowe.3Należą do nich rozwijające się neuryty, strzępki grzybów, włośniki korzeniowe oraz rurki pyłkowe, w których wiele procesów komórkowych wykazuje wyraźne różnice między wierzchołkiem a trzonem komórki. W rurkach pyłkowych w szczególności polimeryzacja aktyny, transport pęcherzykowy oraz stężenia jonowe są wyraźnie spolaryzowane, wykazując gradienty skupione w wierzchołku.4Wyrastające z ziaren pyłku rurki pyłkowe są męskimi gametofitami roślin kwiatowych i odpowiadają za dostarczenie komórek plemników do zalążka; rosną one wyłącznie w obrębie wierzchołka komórki, osiągając jedną z najszybszych prędkości wzrostu znanych dla pojedynczej komórki. Skoncentrowane na wierzchołku gradienty jonów, takich jak wapń5 (Ca2+) i protony6 (H+odgrywają kluczową rolę w podtrzymywaniu wzrostu rurki pyłkowej, co jest niezbędne do realizacji jej głównej funkcji biologicznej, której zwieńczeniem jest podwójne zapłodnienie5,6Zatem ilościowe metody analizy dynamiki czasoprzestrzennej wzdłuż linii środkowej komórek rosnących apikalnie są niezbędne do zbadania komórkowych i molekularnych mechanizmów leżących u podstaw wzrostu spolaryzowanego.7,8,9Badacze często wykorzystują kymografy, tzn. macierz przedstawiającą intensywność pikseli wzdłuż linii środkowej komórki (np. kolumny) w czasie (np. wiersze), co pozwala na wizualizację wzrostu i migracji komórek po przekątnej. (Rycina 1)Pomimo swojej użyteczności, kymografy są często analizowane poprzez ręczne wykreślanie linii środkowej, co jest pracochłonne oraz podatne na błędy ludzkie i stronniczość. Stwarza to potrzebę opracowania zautomatyzowanej metody ekstrakcji linii środkowej, która stanowi pierwszy etap przedstawionego tutaj procesu o nazwie AMEBaS: Aautomatyczny Mlinia prowadząca EEkstrakcja i BaWstęp Sodejmowanie ratiometrycznych obrazów czasowych fluorescencji spolaryzowanych pojedynczych komórek.
W odniesieniu do procedur eksperymentalnych, ilościowe obrazowanie jonów/cząsteczek/gatunków w pojedynczych komórkach można przeprowadzić za pomocą genetycznie kodowanych sond fluorescencyjnych10. Wśród stale rosnącej liczby dostępnych opcji, sondy ratiometryczne są jednymi z najdokładniejszych, ponieważ emitują fluorescencję o różnych długościach fal w zależności od tego, czy są związane, czy nie związane z interesującymi nas cząsteczkami11. Pozwala to na korekcję heterogeniczności przestrzennej wewnątrzkomórkowego stężenia sondy poprzez wykorzystanie stosunku dwóch kanałów po odjęciu specyficznego dla każdego z nich tła. Jednakże szacowanie progu tła dla każdego kanału i punktu czasowego może być złożonym zadaniem, ponieważ często zmienia się ono w przestrzeni ze względu na efekty takie jak cieniowanie (shading), gdzie narożniki obrazu wykazują zmienność jasności w stosunku do centrum, oraz w czasie z powodu zaniku fluorescencji fluoroforu (fotowyblakanie)12. Chociaż istnieje wiele możliwych metod, w niniejszym opracowaniu proponuje się automatyczne wyznaczanie natężenia tła przy użyciu progu segmentacji uzyskanego za pomocą algorytmu Isodata13, który następnie jest wygładzany w obrębie klatek za pomocą regresji wielomianowej jako standard. Komponenty przestrzenne wynikające z heterogeniczności fluorescencji niezwiązanej z komórką docelową, usunięte w12, zostały jednak pominięte w tej metodzie. Automatyczne progowanie może być realizowane za pomocą kilku metod, lecz algorytm Isodata przyniósł empirycznie najlepsze wyniki. Zatem automatyczne odejmowanie wartości tła i obliczenia ratiometryczne stanowią drugą główną funkcję programu AMEBaS (Rycina 1), który w całości przyjmuje jako dane wejściowe stos obrazów z mikroskopii fluorescencyjnej dwukanałowej, szacuje linię środkową komórki oraz tło specyficzne dla kanału, a następnie generuje kymografy obu kanałów oraz ich stosunek (główny wynik nr 1) po odjęciu tła, wygładzeniu i usunięciu wartości odstających, wraz ze stosem obrazów ratiometrycznych (główny wynik nr 2).
Program AMEBaS przetestowano za pomocą fluorescencyjnych filmów time-lapse z rosnących rurek pyłkowych Arabidopsis, uzyskanych pod mikroskopem przy użyciu ratiometrycznych sensorów Ca2+ (CaMeleon)8 lub pH (pHluorin)6 wyrazianych pod specyficznym dla pyłku promotorem LAT52. Obrazy z każdego kanału pobierano co 4 s przy użyciu mikroskopu odwróconego, kamery z oświetleniem czołowym (2560 pikseli × 2160 pikseli, wielkość piksela 6,45 μm), iluminatora fluorescencji oraz obiektywu imersyjnego w wodzie 63x, 1,2NA. Ustawienia filtrów dla CaMeleon wynosiły: wzbudzenie 426-450 nm (CFP) i 505-515 nm (YFP), emisja 458-487 nm (CFP) i 520-550 nm (YFP), natomiast dla pHluorin: wzbudzenie 318-390 nm (DAPI) i 428-475 nm (FITC), emisja 435-448 nm (DAPI) i 523-536 nm (FITC). Kompletny zestaw danych do testów zamieszczono w serwisie Zenodo (DOI: 10.5281/zenodo.7975350)14.
Ponadto potok przetwarzania został przetestowany na danych dotyczących włośników korzeniowych, gdzie obrazowanie przeprowadzono za pomocą mikroskopu z arkuszem światła (SPIM), zgodnie z wcześniejszym opisem15,16, wykorzystując włośniki korzeniowe Arabidopsis wykazujące ekspresję genetycznie zakodowanego reportera Ca2+ NES-YC3.6 pod kontrolą promotora UBQ1017. Autorskie oprogramowanie LabView, które sterowało akwizycją obrazu z kamery, przesunięciem próbki i migawką mikroskopu z arkuszem światła, umożliwiało obserwację dwóch kanałów (cpVenus i CFP), a także wizualizację ich stosunku w czasie rzeczywistym. Każdy obraz stosunku w serii czasowej stanowił maksymalną projekcję intensywności (MIP) pomiędzy obrazami kanałów fluorescencyjnych cpVenus i CFP, uzyskanymi z 15 przekrojów próbki rozmieszczonych w odstępach 3 μm. Seria czasowa stosunków cpVenus/CFP z obrazów MIP została zapisana i bezpośrednio wykorzystana do analizy AMEBaS.
Chociaż ten schemat postępowania może być stosowany dla wielu typów komórek rosnących i migrujących, został on zaprojektowany specjalnie do analizy komórek rosnących wyłącznie na wierzchołku, takich jak rurki pyłkowe, włośniki korzeniowe i strzępki grzybów, w których występuje odpowiedniość niegrowych obszarów cytoplazmatycznych pomiędzy klatkami. W przypadku braku takiej odpowiedniości użytkownik powinien wybrać opcję complete_skeletonization w kroku 1.3.1.1 (szczegóły znajdują się w sekcji Dyskusja).
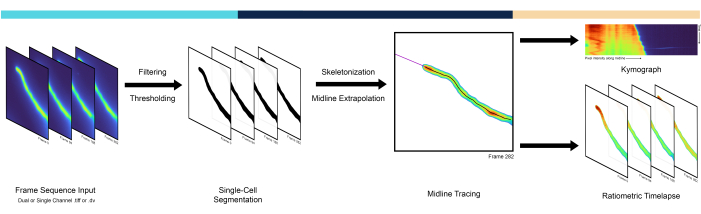
Rysunek 1: Przegląd schematu przepływu pracy (pipeline). Pipeline AMEBaS analizuje i przetwarza mikroskopowe nagrania time-lapse w trzech głównych krokach: segmentacji pojedynczych komórek, śledzeniu linii środkowej oraz generowaniu kymografów. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Protokół interaktywnego notatnika
Notatnik Jupyter można wykorzystać bezpośrednio w sieci za pomocą Google Colab pod adresem https://colab.research.google.com/github/badain/amebas/blob/main/AMEBAS_Colab.ipynb, na którym oparto poniższe instrukcje. Alternatywnie notatnik Jupyter jest dostępny pod adresem https://github.com/badain/amebas, skąd można go pobrać i skonfigurować do uruchomienia lokalnie w Jupyter (Anaconda umożliwia łatwy i międzyplatformowy proces instalacji). Kompletny zestaw danych testowych znajduje się w serwisie Zenodo (https://doi.org/10.5281/zenodo.7975350) i zawiera dane jednokanałowe oraz dwukanałowe z rurek pyłkowych Arabidopsis wykazujących ekspresję reporterów pH lub Ca2+14. Potok przetwarzania został podzielony na części, w których każdy krok można wykonać, klikając przycisk odtwarzania po ustawieniu opcji specyficznych dla użytkownika. Pliki niezbędne do niniejszego badania są dostępne w głównym folderze zip AMEBaS (Supplementary Coding File 1).
- Otwórz notatnik Jupyter i odczytaj pliki time-lapse.
- Przejdź do strony głównej interaktywnego notatnika w Google Colab wspomnianego powyżej lub pobierz i otwórz notatnik AMEBaS_Local.ipynb z GitHub.
- Przygotuj strukturę katalogów dla danych wejściowych i wyjściowych:
- W przypadku korzystania z wersji lokalnej umieść obraz fluorescencyjny time-lapse jako plik TIFF lub DV w folderze o nazwie data, który musi znajdować się w katalogu głównym programu. Należy utworzyć folder o nazwie out w celu zapisania wygenerowanych danych. Następnie uruchom blok kodu Setup.
- W przypadku korzystania z notatnika w Google Colab uruchom blok kodu Setup, aby automatycznie wygenerować foldery data i out.
- Uruchom blok kodu File Input, klikając przycisk play, aby odczytać dane time-lapse. W przypadku korzystania z wersji notatnika w Google Colab kliknij przycisk Choose File, aby bezpośrednio przesłać plik time-lapse do folderu data.
UWAGA: Liczba kanałów zostanie automatycznie wykryta na podstawie wymiarów obrazu. - Wybierz, czy mają być generowane dodatkowe wyniki dla każdego kroku, ustawiając parametr 'verbose' na True lub False.
- Wykryj główną komórkę i odseparuj ją od tła (Rycina 2).
- Uruchom blok kodu Single Cell Segmentation, klikając przycisk play, aby automatycznie oddzielić interesującą komórkę od tła.
UWAGA: W ramach etapu wstępnego przetwarzania zostaną zastosowane filtry medianowy i Gaussa w celu usunięcia niepożądanych szumów przed segmentacją pierwszego planu od tła za pomocą progowania Isodata oraz wyodrębnieniem obszaru o największej powierzchni w celu usunięcia niepożądanych artefaktów.- Dostosuj wartość sigma używaną przez filtr Gaussa w zmiennej 'sigma', aby precyzyjnie ustawić stopień wygładzenia maski segmentacji. Wartość domyślna to 2,0.
- Ustaw zmienną estimate na False, aby zapisać próg oszacowany z Isodata bezpośrednio, lub na True, aby wygładzić go w sąsiednich klatkach za pomocą lokalnej regresji wielomianowej (LOESS). Dostrój funkcję tę, zmieniając zmienną n_points. Wartość domyślna to 40.
- Uruchom blok kodu Single Cell Segmentation, klikając przycisk play, aby automatycznie oddzielić interesującą komórkę od tła.
- Wyznacz linię środkową wzdłuż wypustki komórkowej (Rycina 3).
- Uruchom blok kodu Cell Midline Tracing, klikając przycisk play, aby automatycznie przeprowadzić szkieletyzację komórki metodą Lee18 i przedłużyć koniec ostatniego szkieletu poprzez ekstrapolację liniową.
- Wybierz, czy wyznaczać linię środkową tylko na ostatniej klatce, czy w każdej klatce, dostosowując argument complete_skeletonization.
UWAGA: Gdy wszystkie klatki zostaną poddane szkieletyzacji, ekstrapolacja jest pomijana. - Ustaw ułamek punktów w szkieletcie, które mają zostać interpolowane podczas ekstrapolacji, dostosowując zmienną interpolation_fraction. Wartość domyślna to 0,25.
- Wybierz długość ekstrapolacji linii środkowej, zmieniając zmienną extrapolation_length. Wartość domyślna to -1, co przedłuża szkielet do najbliższej krawędzi.
- Wybierz, czy wyznaczać linię środkową tylko na ostatniej klatce, czy w każdej klatce, dostosowując argument complete_skeletonization.
- Uruchom blok kodu Cell Midline Tracing, klikając przycisk play, aby automatycznie przeprowadzić szkieletyzację komórki metodą Lee18 i przedłużyć koniec ostatniego szkieletu poprzez ekstrapolację liniową.
- Wygeneruj kymografy dla każdego kanału (Rycina 4).
- Uruchom pierwszy blok kodu Data Visualization, klikając przycisk play, aby automatycznie wygenerować kymografy dla obu kanałów.
- Wybierz rozmiar jądra Gaussa używanego do wygładzania, dostosowując zmienną kymograph_kernel.
UWAGA: Odpowiada to wielkości sąsiedztwa (w pikselach), w obrębie którego uśredniane są intensywności pikseli. Wartość domyślna to 3 piksele x 3 piksele. - Szkielety nieprzedłużone generują kymografy z ograniczonym zakresem, które wymagają niestandardowej mapy kolorów do prawidłowego wyświetlania intensywności. Wybierz procentowy ułamek intensywności, który zostanie przypisany do koloru tła (czarnego), dostosowując zmienną shift_fraction. Wartość domyślna to 0,7.
- Wybierz rozmiar jądra Gaussa używanego do wygładzania, dostosowując zmienną kymograph_kernel.
- Uruchom pierwszy blok kodu Data Visualization, klikając przycisk play, aby automatycznie wygenerować kymografy dla obu kanałów.
- Oblicz stosunek między kanałami (Rycina 5).
- Uruchom drugi blok kodu Data Visualization, klikając przycisk play, aby automatycznie wygenerować ratiometryczny kymograf oraz ratiometryczny obraz time-lapse (Rycina 6).
UWAGA: Ten krok jest dostępny tylko w przypadku korzystania z dwukanałowych obrazów time-lapse. Próg intensywności tła zapisany w kroku 1.2.1.2 jest odejmowany od każdego kanału.- Dostosuj zmienną switch_ratio, aby zmienić kolejność kanałów używanych jako licznik i mianownik podczas obliczeń stosunku. Wartość domyślna to False.
- Wybierz, czy ratiometryczny obraz time-lapse ma zostać dodatkowo wygładzony filtrem medianowym, dostosowując zmienną smooth_ratio. Wartość domyślna to False.
- Wybierz, czy usuwać wartości odstające spowodowane niskim sygnałem kanału mianownika, manipulując zmienną reject_outliers. Wartość domyślna to True; wartości odstające definiowane są jako wartości przekraczające trzeci kwartyl (gdzie znajduje się 75% wartości) o 1,5 raza rozstęp międzykwartylny.
- Wybierz, czy tło w ratiometrycznym wyniku ma zostać wyeksportowane, dostosowując zmienną background_ratio. Wartość domyślna to False, co zastępuje je zerami.
- Uruchom drugi blok kodu Data Visualization, klikając przycisk play, aby automatycznie wygenerować ratiometryczny kymograf oraz ratiometryczny obraz time-lapse (Rycina 6).
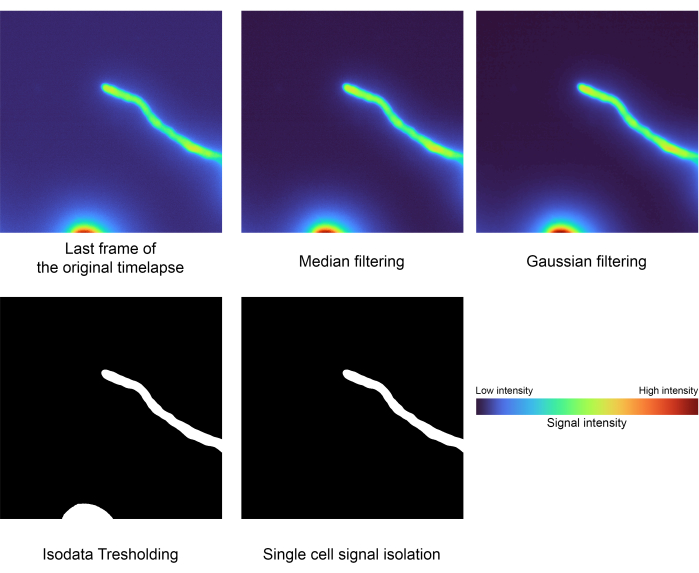
Rysunek 2: Etap segmentacji pojedynczych komórek. Do izolacji sygnału będącego przedmiotem zainteresowania wykorzystuje się techniki przetwarzania obrazu, takie jak filtrowanie, progowanie i etykietowanie obszarów (krok 1.2). W przypadku tych konkretnych danych wartości wynosiły: najniższa intensywność: 2556, mediana: 3441 oraz najwyższa intensywność: 32125. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 3: Przegląd śledzenia linii środkowej- Linia środkowa pojedynczej komórki jest uzyskiwana poprzez obliczenie jej szkieletu (biały). Koniec (magenta) jest ekstrapolowany liniowo z ostatnich punktów na końcu szkieletu (krok 1.3). Na tej kompozycji zarówno linia środkowa, jak i jej koniec są nałożone na oryginalną komórkę. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Kymografy z obrazowania timelapse- Porównanie kymografów dla każdego kanału wygenerowanych przy wyłączonej opcji „complete_skeletonization” (krok 1.4). Oś pionowa opisuje upływ czasu, a oś pozioma przedstawia średnią intensywność ekstrapolowanej ścieżki linii środkowej przebytej przez pojedynczą komórkę. Dla tych konkretnych danych mapa kolorów reprezentuje następujące wartości dla Kanału 1: najniższa intensywność: 2886, mediana: 3167, najwyższa intensywność: 21021. Kanał 2: najniższa intensywność: 3030, mediana: 3400, najwyższa intensywność: 29688. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
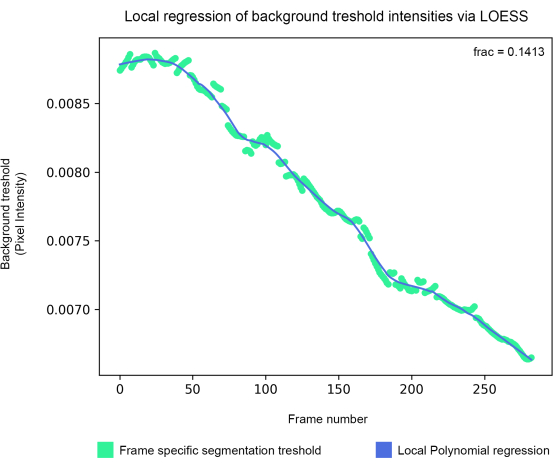
Rysunek 5: Wygładzanie progu tła- Próg segmentacji tła jest szacowany za pomocą algorytmu isodata, a następnie wygładzany poprzez lokalną regresję wielomianową (krok 1.5). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rysunek 6: Wyniki ratiometryczne- (A) Porównanie ostatniej klatki ratiometrycznego nagrania timelapse z segmentowanym obrazem oryginalnym pierwszego kanału. (B) Kymograf wygenerowany z ratiometrycznego nagrania timelapse (krok 1.5). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Protokół w trybie seryjnym
- Pobierz plik pipeline.py z repozytorium AMEBaS na GitHubie i umieść go w tym samym katalogu co dane.
- Wprowadź ścieżkę do pliku w wierszu poleceń po nazwie pliku programu.
- Jeśli chcesz wyświetlić wewnętrzne kroki potoku (pipeline), dodaj --v jako argument pozycyjny.
- Użyj --s , aby wybrać wartość sigma stosowaną w etapie wstępnego przetwarzania filtrem Gaussa w przygotowaniu do segmentacji komórek. Wartość domyślna to 2.
- Użyj --a, aby wyznaczyć linię środkową dla każdej klatki filmu poklatkowego. Domyślnie potok wykorzystuje tylko ostatnią klatkę.
- Użyj --f, aby wybrać ułamek [0,1] szkieletu, który zostanie wykorzystany w interpolacji. Wartość domyślna to 0.25.
- Użyj -e, aby wybrać długość w pikselach ekstrapolowanego szkieletu. Wartość domyślna to -1, co rozciąga szkielet do najbliższej krawędzi.
- Użyj --sf, aby wybrać ułamek zakresu kolorów, który zostanie przesunięty do tła w nieekstrapolowanych kymografach. Wartość domyślna to 0.7.
- Użyj --k, aby określić rozmiar jądra (kernel) stosowanego w filtrowaniu Gaussa kymografu. Wartość domyślna to 3.
- Użyj --eb, aby oszacować globalny próg intensywności tła za pomocą regresji wielomianowej LOESS intensywności progów tła dla poszczególnych klatek.
- Dostosuj liczbę punktów wykorzystywanych w wygładzaniu LOESS wartości progowych tła, modyfikując parametr --n. Wartość domyślna to 40.
- Jeśli film poklatkowy posiada dwa kanały, użyj -r lub --switch_ratio, aby zamienić kanały pełniące rolę licznika i mianownika podczas obliczeń stosunku. Domyślnie drugi kanał jest licznikiem, a pierwszy mianownikiem.
- Za pomocą argumentu --sm określ, czy film poklatkowy obrazujący stosunek (ratio timelapse) powinien zostać dodatkowo wygładzony za pomocą filtra medianowego. Wartość domyślna to False.
- Użyj -o, aby odrzucić piksele o anormalnych intensywnościach podczas generowania ratiometrycznego filmu poklatkowego.
- Użyj argumentu --b, aby zdecydować, czy tło w ratiometrycznym wyniku powinno zostać wyeksportowane. Wartość domyślna to False, co zastępuje tło zerami.
- Naciśnij enter, aby uruchomić program. Wynik zostanie wygenerowany w tym samym katalogu, w którym znajduje się plik programu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Potok przetwarzania AMEBaS automatyzuje ekstrakcję dynamiki linii środkowej spolaryzowanych pojedynczych komórek ze stosów obrazów mikroskopii fluorescencyjnej, co czyni ten proces mniej czasochłonnym i mniej podatnym na błędy ludzkie. Metoda ta kwantyfikuje te zmiany w czasie poprzez generowanie kymografów i ratiometrycznych stosów obrazów (Rysunek 1) w rosnących pojedynczych komórkach. Może ona zostać dostosowana do pracy z migrującymi pojedynczymi komórkami, jednak wymagane są dalsze eksp...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiona tutaj nowatorska metoda jest potężnym narzędziem usprawniającym i automatyzującym analizę stosów obrazów mikroskopii fluorescencyjnej spolaryzowanych komórek. Obecne metody opisane w literaturze, takie jak wtyczki ImageJ Kymograph, wymagają ręcznego śledzenia linii środkowej spolaryzowanej komórki będącej przedmiotem zainteresowania, co jest zadaniem nie tylko czasochłonnym, ale także podatnym na błędy ludzkie. Ponieważ definicja linii środkowej w tym potoku jest wspierana przez metodę numeryczną
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy niniejszego manuskryptu deklarują, że nie istnieją konkurencyjne interesy finansowe ani inne konflikty interesów.
Podziękowania
Autorzy są wdzięczni grantom FAPESP 2015/22308-2, 2019/23343-7, 2019/26129-6, 2020/06744-5, 2021/05363-0, CNPq, grantom NIH R01 GM131043 oraz grantom NSF MCB1714993, MCB1930165 za wsparcie finansowe. Dane dotyczące włośników zostały opracowane przy użyciu infrastruktury i pod nadzorem prof. Andrei Bassi i prof. Alexa Costy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Github | Github | https://github.com/badain/amebas | |
| Google Colab | https://colab.research.google.com/github/badain/amebas/blob/main/AMEBAS_Colab.ipynb |
Bibliografia
- Drubin, D. G., Nelson, W. J. Origins of cell polarity. Cell. 84 (3), 335-344 (1996).
- Wodarz, A., Näthke, I. Cell polarity in development and cancer. Nature Cell Biology. 9 (9), 1016-1024 (2007).
- Palanivelu, R., Preuss, D. Pollen tube targeting and axon guidance: parallels in tip growth mechanisms. Trends in Cell Biology. 10 (12), 517-524 (2000).
- Portes, M. T., et al. The Pollen Tube Oscillator: Integrating Biophysics and Biochemistry into Cellular Growth and Morphogenesis. Rhythms in Plants: Dynamic Responses in a Dynamic Environment. , Springer. Cham. (2015).
- Wudick, M. M., et al. CORNICHON sorting and regulation of GLR channels underlie pollen tube Ca2+ homeostasis. Science. 360 (6388), 533-536 (2018).
- Hoffmann, R. D., et al. Plasma membrane H+-ATPases sustain pollen tube growth and fertilization. Nature Communications. 11 (1), 1-15 (2020).
- Michard, E., et al. Glutamate receptor-like genes form Ca2+ channels in pollen tubes and are regulated by pistil D-serine. Science. 332 (6028), 434-437 (2011).
- Damineli, D. S., Portes, M. T., Feijó, J. A. Oscillatory signatures underlie growth regimes in Arabidopsis pollen tubes: computational methods to estimate tip location, periodicity, and synchronization in growing cells. Journal of Experimental Botany. 68 (12), 3267-3281 (2017).
- Li, K., et al. An optimized genetically encoded dual reporter for simultaneous ratio imaging of Ca2+ and H+ reveals new insights into ion signaling in plants. New Phytologist. 230 (6), 2292-2310 (2021).
- Sadoine, M., et al. Designs, applications, and limitations of genetically encoded fluorescent sensors to explore plant biology. Plant Physiology. 187 (2), 485-503 (2021).
- Grenzi, M., et al. Illuminating the hidden world of calcium ions in plants with a universe of indicators. Plant Physiology. 187 (2), 550-571 (2021).
- Munglani, G., Vogler, H., Grossniklaus, U. Fast and flexible processing of large FRET image stacks using the FRET-IBRA toolkit. PLoS Computational Biology. 18 (4), 1009242(2022).
- Ridler, T., Calvard, S. Picture thresholding using an iterative selection method. IEEE Transactions on Systems, Man, and Cybernetics. 8 (8), 630-632 (1978).
- Portes, M. T., Feijó, J. Growing Arabidopsis pollen tubes expressing genetically encoded reporters for calcium and pH. , (2023).
- Candeo, A., Doccula, F. G., Valentini, G., Bassi, A., Costa, A. Light sheet fluorescence microscopy quantifies calcium oscillations in root hairs of Arabidopsis thaliana. Plant & Cell Physiology. 58 (7), 1161-1172 (2017).
- Romano Armada, N., et al. In vivo light sheet fluorescence microscopy of calcium oscillations in Arabidopsis thaliana. Methods in Molecular Biology. 1925, 87-101 (2019).
- Krebs, M., et al. FRET-based genetically encoded sensors allow high-resolution live cell imaging of Ca2+ dynamics. The Plant Journal. 69 (1), 181-192 (2012).
- Lee, T. -C., Kashyap, R. L., Chu, C. -N. Building skeleton models via 3-D medial surface axis thinning algorithms. CVGIP: Graphical Models and Image Processing. 56 (6), 462-478 (1994).
- Nunez-Iglesias, J., Blanch, A. J., Looker, O., Dixon, M. W., Tilley, L. A new Python library to analyse skeleton images confirms malaria parasite remodelling of the red blood cell membrane skeleton. PeerJ. 6, 4312(2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
