Ten protokół opisuje mikroiniekcję i elektroporację in vivo dla regionalnie ograniczonej edycji genomu za pośrednictwem CRISPR w jajowodzie myszy.
Artykuł metodologiczny
Somatyczne modele myszy z inżynierią genomu przy użyciu mikroiniekcji in vivo i elektroporacji
W tym artykule
Podsumowanie
Streszczenie
Genetycznie modyfikowane modele myszy (G-GEMMs) linii zarodkowej dostarczyły cennych informacji na temat funkcji genów in vivo w rozwoju, homeostazie i chorobie. Jednak czas i koszty związane z tworzeniem i utrzymaniem kolonii są wysokie. Ostatnie postępy w edycji genomu za pośrednictwem CRISPR umożliwiły generowanie somatycznych GEMM (S-GEMM) poprzez bezpośrednie ukierunkowanie na komórkę/tkankę/narząd będący przedmiotem zainteresowania.
Jajowód, czyli jajowód u ludzi, jest uważany za tkankę pochodzenia najczęstszego raka jajnika, surowiczego raka jajnika wysokiego stopnia (HGSC). HGSC inicjują się w okolicy jajowodu dystalnie do macicy, położonej w sąsiedztwie jajnika, ale nie w bliższym jajowodzie. Jednak tradycyjne mysie modele HGSC są ukierunkowane na cały jajowód, a zatem nie podsumowują kondycji ludzkiej. Przedstawiamy metodę mikroiniekcji roztworu DNA, RNA lub rybonukleoproteiny (RNP) do światła jajowodu oraz elektroporacji in vivo w celu ukierunkowania komórek nabłonka błony śluzowej w ograniczonych obszarach wzdłuż jajowodu. Istnieje kilka zalet tej metody do modelowania raka, takich jak: 1) wysoka zdolność adaptacji w celowaniu w obszar/tkankę/narząd i region elektroporacji, 2) wysoka elastyczność w docelowych typach komórek (giętkość komórkowa) w połączeniu ze specyficznymi promotorami ekspresji Cas9, 3) wysoka elastyczność w liczbie elektroporowanych komórek (stosunkowo niska częstotliwość), 4) nie jest wymagana specyficzna linia myszy (immunokompetentne modelowanie choroby), 5) wysoka elastyczność w kombinacji mutacji genowych oraz 6) możliwość śledzenia komórek elektroporowanych w połączeniu z linią reporterową Cre. W ten sposób ta opłacalna metoda podsumowuje inicjację raka u ludzi.
Wprowadzenie
Jajowód, zwany jajowodem u myszy, jest rurkowatą strukturą, która łączy macicę z jajnikiem. Odgrywa istotną rolę w rozrodzie ssaków, zapewniając środowisko do wewnętrznego zapłodnienia i rozwoju preimplantacyjnego1,2. Pomimo jego znaczenia, niewiele wiadomo o jego funkcji i homeostazie, częściowo ze względu na rozwój technik zapłodnienia in vitro, które omijają wszelkie problemy związane z niepłodnością związaną z tym narządem3. Stwierdzono jednak, że zmiany przedrakowe surowiczego raka jajnika o wysokim stopniu złośliwości (HGSC), agresywnego histotypu raka jajnika, który odpowiada za około 75% przypadków raka jajnika i 85% powiązanych zgonów4, są ograniczone do dystalnego nabłonka jajowodu5,6,7,8. Oznacza to, że nie wszystkie komórki w naszym ciele są jednakowo podatne na onkogenne zniewagi, ale raczej tylko unikalne/podatne komórki w każdej tkance/narządzie stają się komórką pochodzenia raka - określaną jako elastyczność komórkowa9. W związku z tym wykazano, że komórki nabłonkowe dystalnego jajowodu, znajdujące się w sąsiedztwie jajnika, różnią się od reszty jajowodu10,11. Tak więc tradycyjne mysie modele HGSC, które celują we wszystkie komórki w jajowodzie, nie podsumowują kondycji ludzkiej. W niedawnym badaniu zastosowaliśmy kombinację edycji genomu za pośrednictwem CRISPR, elektroporacji jajowodu in vivo i śledzenia linii opartej na Cre, aby skutecznie indukować HGSC poprzez mutację czterech genów supresorowych guza w dystalnym jajowcu myszy 12,13. Niniejszy manuskrypt przedstawia protokół krok po kroku opisujący procedurę mikroiniekcji i elektroporacji in vivo w celu ukierunkowania nabłonka błony śluzowej jajowodu myszy.
Ta metoda ma kilka zalet. Można go dostosować do innych tkanek/narządów, w tym miąższu narządu14. Chociaż inne metody dostarczania genów in vivo, takie jak systemy lentiwirusowe i adenowirusowe, mogą być stosowane w celu osiągnięcia podobnego ukierunkowania specyficznego dla tkanki/narządu, obszar celowania jest łatwiejszy do dostosowania przy użyciu różnych rozmiarów elektrod typu pęseta do dostarczania opartego na elektroporacji. W zależności od stężenia DNA/RNA/rybonukleoprotein (RNP), parametrów elektroporacji i wielkości elektrod, liczba elektroporowanych komórek może ulec zmianie. Co więcej, określone typy komórek mogą być ukierunkowane, gdy są stosowane w połączeniu z promotorami ekspresji Cas9, bez bezwzględnej potrzeby stosowania genetycznie modyfikowanych modeli myszy linii zarodkowej (G-GEMM). Ponadto, w przeciwieństwie do systemów dostarczania wirusów, elektroporacja pozwala na wielokrotne dostarczanie plazmidu do pojedynczych komórek i mniejsze ograniczenia w rozmiarze wstawienia DNA15. Badania przesiewowe in vivo mutacji genowych mogą być również przeprowadzane ze względną łatwością ze względu na tę wysoką elastyczność. Co więcej, elektroporowane ogniwa mogą być śledzone lub śledzone, gdy ta metoda jest używana w połączeniu z liniami reporterowymi Cre, takimi jak Tdtomato lub Confetti16,17.
Protokół
Zwierzęta utrzymywano w statycznych klatkach do mikroizolacji z filtrami w górnej części, znajdujących się w wydzielonym pomieszczeniu z komorą bezpieczeństwa biologicznego typu II. Wszystkie prace ze zwierzętami były prowadzone zgodnie z wytycznymi instytucjonalnymi i zostały zatwierdzone przez Komitet ds. Opieki nad Zwierzętami Wydziału Medycyny i Nauk o Zdrowiu Uniwersytetu McGill (AUP #7843).
1. Przygotowanie igły do mikrowstrzykiwania
- Wyciągnij szklaną kapilarę do postaci ostrej końcówki, używając wyciągarki do mikropipet z następującymi parametrami programu: P = 500, Heat = 576, PULL = 50, VEL = 80, DEL = 70.
- Za pomocą pęsety z bardzo cienkimi końcówkami odetnij zaostrzony koniec wyciągniętej kapilary pod mikroskopem stereoskopowym, aby stworzyć otwór, jak pokazano na Rysunku 1A,B. Upewnij się, że otwór nie jest zbyt duży, ponieważ mogłoby to uszkodzić jajowód i uniemożliwić powolną iniekcję.

Rycina 1: Przygotowanie igły do mikrowstrzykiwania. (A,B) Wyciągnięta kapilara z zaostrzonym końcem (A), który został odcięty w celu utworzenia otworu (B). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
2. Przygotowanie środka znieczulającego do iniekcji doprzewnowej
- Przygotować przefiltrowany, rozcieńczony avertin w dniu zabiegu. Roztwór zapasu avertinu (2,2,2-tribromoetanolu) przygotowuje się w stężeniu 1,6 g/mL w alkoholu tert-amylowym poprzez intensywne mieszanie, a następnie przechowuje w ciemności.
- Rozcieńczyć roztwór zapasu avertinu izotonicznym roztworem soli fizjologicznej 1,25% v/v do stężenia końcowego 20 mg/mL wewnątrz dygestorium. Rozcieńczony avertin wymieszać na wortexie i przefiltrować przez sterylny filtr 0,22 µm. Przechowywać w ciemności.
3. Przygotowanie obszaru operacyjnego
- Obszar operacyjny powinien stanowić dedykowane sterylne środowisko, najlepiej komora laminarna lub komora bezpieczeństwa biologicznego. Rozmieścić sterylny sprzęt chirurgiczny, mikroskop, mikromanipulator oraz elektroporator zgodnie z potrzebami. Przykład takiej konfiguracji przedstawiono na Rysunku 2.
- Rozgrzać podkładkę/dysk grzewczy i umieścić go pod czystą, w pełni wyposażoną klatką. Klatka ta będzie służyć do przebywania myszy po operacji.
- Nalać sterylny 1x roztwór soli fizjologicznej z buforem fosforanowym (PBS) do sterylnej płytki Petriego. Za pomocą czystych nożyczek wyciąć z papieru chłonnego kwadraty o przybliżonych wymiarach 1 cm x 1 cm. Wrzucić te kawałki papieru chłonnego do 1x PBS, aby je namoczyć.
4. Przygotowanie roztworu i igły do iniekcji
- Przygotować roztwór do iniekcji w dniu operacji. Wymieszać DNA/RNA/RNP z filtrowanym błękitem trypanowym do uzyskania minimalnego stężenia końcowego odpowiednio 200 ng/µL dla kwasów nukleinowych/białek oraz 5% dla barwnika. Przechowywać w temperaturze pokojowej przed iniekcją.
UWAGA: Użyć strzykawki 1 mL do pobrania 100% błękitu trypanowego i przefiltrować go przez sterylny filtr 0,22 µm przed użyciem. - Zamocować wyciągniętą igłę kapilarną, zwaną dalej igłą do mikroiniekcji, do mikromanipulatora z uchwytem zaciskowym stabilizowanego za pomocą mocowania magnetycznego (układ przedstawiony na Rysunku 2B).
- Napipekować 2 µL roztworu do iniekcji na sterylną płytkę Petriego. Obserwując pod mikroskopem, powoli pobrać 1-2 µL tego roztworu do igły do mikroiniekcji za pomocą strzykawki ciśnieniowej przymocowanej do mikromanipulatora. Należy unikać powstawania pęcherzyków powietrza lub ich pobierania do igły do mikroiniekcji.

Rysunek 2: Przygotowanie obszaru operacyjnego. (A) Konfiguracja obszaru operacyjnego wewnątrz komory z laminarnym przepływem powietrza. (B) Ustawienie mikroskopu dissectingowego i mikromanipulatora dla osoby praworęcznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
5. Eksponowanie drogi rodnej samicy
- Zanurzyć w narkozie samicę myszy w wieku 6-8 tygodni, podając dobrany, rozcieńczony avertin (środek znieczulający) drogą dostępu do jamistej w dawce 0,25-0,5 mg/g. Następnie podać karprofen (analgetyk zapobiegawczy) podskórnie w dawce 5 mg/kg.
UWAGA: Innymi alternatywami, które można zastosować jako środek znieczulający, są izofluran lub ketamina/ksylazyna. - Umieścić papier chłonny na czystej, podgrzewanej podkładce/dysku. Następnie położyć znieczuloną mysz na tym podgrzewanym papierze chłonnym grzbietem do góry. Nanieść smar do oczu na każde oko, aby zapobiec ich wysychaniu podczas operacji.
UWAGA: Potwierdzić, że podkładka/dysk grzewczy jest lekko ciepły w dotyku, sprawdzając to grzbietem dłoni. - Sprawdzić głębokość narkozy, ściskając palec znieczulonej myszy pęsetą. Usunąć sierść grzbietową wokół planowanego miejsca nacięcia (lokalizacja pokazana na Rysunku 3A) i przetrzeć odsłoniętą skórę środkiem antyseptycznym.
- Za pomocą prostej pęsety tępej uchwycić odsłoniętą skórę i wykonać nacięcie o długości 1 cm wzdłuż linii środkowej ciała, używając sterylnych, ostrych nożyczek tępych. Oczyścić obszar wokół nacięcia środkiem antyseptycznym.
- Uchwycić i unieść jedną stronę miejsca nacięcia za pomocą sterylnej pęsety Adsona. Następnie, używając sterylnej zakrzywionej pęsety z ząbkami, delikatnie oddzielić skórę od ściany ciała, zaczynając od nacięcia w linii środkowej i przesuwając się bocznie.
- Zlokalizować poduszeczkę tłuszczową pod nerką. Używając sterylnej prostej pęsety tępej, uchwycić ścianę ciała bezpośrednio nad poduszeczką tłuszczową. Wykonać niewielkie nacięcie w ścianie ciała za pomocą sterylnych, ostrych nożyczek preparacyjnych, uważając, aby nie uszkodzić naczyń krwionośnych.
- Trzymając ścianę ciała prostą pęsetą tępą, wprowadzić sterylną zakrzywioną pęsetę tępą do nacięcia i poszerzyć otwór wykonany w ścianie ciała.
- Chwycić widoczną poduszeczkę tłuszczową zakrzywioną pęsetą tępą i wyciągnąć ją przez otwór, aby odsłonić jajnik, przewód jajeczkowy i macicę.
- Aby utrzymać drogi rodne w odsłonięciu, zacisnąć poduszeczkę tłuszczową sterylnym zaciskiem typu bulldog, jak pokazano na Rysunku 3B.
6. Iniekcja do jajowodu i elektroporacja in vivo
- Ostrożnie umieść podgrzany papier chłonny oraz zanestezjowaną mysz z odsłoniętym drogiem rodnym na stoliku mikroskopu stereoskopowego w taki sposób, aby droga rodna była widoczna. Przykład widoku pod mikroskopem przedstawiono na Rysunku 3B.
- Wyreguluj mikromanipulator tak, aby igła do wstrzykiwania z roztworem była również widoczna pod mikroskopem.
- Za pomocą sterylnej pęsety z bardzo cienkimi, stożkowatymi końcówkami unieruchom odcinek jajowodu, w który ma zostać wykonana iniekcja. Odcinek ten musi znajdować się w jednej linii z kierunkiem igły do mikroiniekcji.
UWAGA: W razie potrzeby użyj zacisku typu bulldog, którym przymocowano tkankę tłuszczową i drogi rodne, aby delikatnie obrócić lub przesunąć drogi rodne do optymalnej pozycji. - Wyreguluj mikromanipulator, aby przebić jajowód igłą do mikroiniekcji, jednocześnie nasuwając jajowód na igłę za pomocą pęsety z bardzo cienkimi, stożkowatymi końcówkami. Delikatnie przesuń igłę do mikroiniekcji, aby potwierdzić, że została wprowadzona do wnętrza jajowodu.
UWAGA: Wprowadź igłę do mikroiniekcji w prosty odcinek, a nie w miejsce zagięcia zwiniętego jajowodu, aby zapobiec wielokrotnym nakłuciom i wyciekowi roztworu iniekcyjnego. - Powoli wstrzyknij do jajowodu do 1 µL roztworu, obserwując pod mikroskopem przemieszczanie się niebieskiego roztworu i rozszerzanie się światła jajowodu. Należy uważać, aby nie wprowadzić do światła żadnych pęcherzyków powietrza. Reprezentatywne obrazy jajowodów po wstrzyknięciu 100% błękitu trypanu przedstawiono na Rysunku 3C,D.
- Wyjmij igłę z jajowodu. Przykryj obszar docelowy kawałkiem papieru chłonnego nasączonego sterylnym 1x PBS (z kroku 3.3).
- Chwyć nasączony papier oraz obszar docelowy pęsetą do elektroporacji (1 mm, 3 mm lub 5 mm, w zależności od wielkości obszaru) i odciągnij je od ciała, a następnie przeprowadź elektroporację, stosując następujące ustawienia generatora impulsów/elektroporatora: 30 V, trzy impulsy, odstęp 1 s, czas trwania impulsu 50 ms, jednobiegunowo.
UWAGA: Odległość między elektrodami powinna być ustawiona tak, aby mogły one objąć obszar docelowy bez deformacji jajowodu. Zalecana odległość wynosi około 1 mm. - Po elektroporacji usuń papier chłonny i umieść mysz (z podgrzanym papierem chłonnym pod spodem) z powrotem na macie grzewczej. Rozluźnij zacisk typu bulldog i ostrożnie wsuń odsłonięte drogi rodne z powrotem pod ścianę brzuszną. Powtórz sekcję 5, aby odsłonić drogi rodne po drugiej stronie.
UWAGA: Elektroporacja jest skuteczna niezależnie od fazy cyklu estralnego myszy, pod warunkiem, że światło jajowodu jest wypełnione roztworem. - Przykryj odsłonięte drogi rodne papierem chłonnym nasączonym sterylnym 1x PBS, aby zapobiec ich wysychaniu, a następnie przygotuj igłę do mikroiniekcji do drugiego wstrzyknięcia, powtarzając kroki 4.2 i 4.3.
UWAGA: W razie potrzeby wymień igłę do mikroiniekcji. Zapobiegaj wysychaniu odsłoniętej tkanki, aplikując sterylny 1x PBS w razie potrzeby. - Powtórz powyższe kroki, aby wstrzyknąć roztwór i przeprowadzić elektroporację jajowodu po przeciwnej stronie.
UWAGA: W razie potrzeby ponownie zaaplikuj lubrykant do oczu w trakcie i po zabiegu. - Po przeprowadzeniu elektroporacji w obu jajowodach i ich umieszczeniu z powrotem pod ścianą brzuszną, zaszyj lub zszyj miejsce nacięcia grzbietowego. Do szycia użyj hemostatu do uchwycenia igły jedwabnych szwów plecionych (3/8 okręgu; rozmiar: 5-0; rozmiar igły: 18 mm; długość nici: 75 cm). Ściśnij i unieś jedną stronę miejsca nacięcia za pomocą sterylnej zakrzywionej pęsety ząbkowanej, a następnie za pomocą hemostatu poprowadź szew, aby zamknąć ranę.
- Przenieś mysz do czystej klatki umieszczonej na podgrzewanej macie/podkładce (z kroku 3.2) i monitoruj ją do momentu odzyskania aktywności.
- Podawaj 5 mg/kg karprofenu podskórnie co 24 h przez kolejne 3 dni i monitoruj stan zwierzęcia przez następne 10 dni.
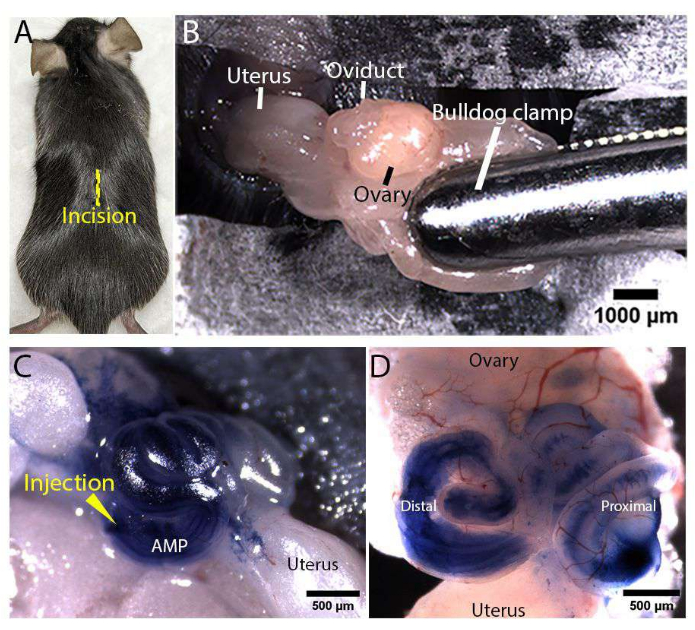
Rycina 3: Ekspozycja żeńskiego układu rozrodczego i mikrowstrzykiwanie. (A) Lokalizacja nacięcia w linii środkowej (zaznaczonego żółtą linią) na stronie grzbietowej myszy Rosa-LSLtdTomato. (B) Ekspozycja żeńskiego układu rozrodczego. Poduszka tłuszczowa została zaciśnięta za pomocą sterylnego zacisku typu bulldog, aby ustabilizować układ i utrzymać go w ekspozycji. (C,D) Reprezentatywne obrazy wstrzykiwania do jajowodu in vivo. Igłę do mikrowstrzykiwania wprowadzono do dystalnej części ampully (oznaczonej jako AMP) i wstrzyknięto przefiltrowany 100% błękit trypanu do światła jajowodu podczas ekspozycji układu (C). Reprezentatywny obraz wypreparowanego jajowodu, wykazujący, że wstrzyknięty roztwór błękitu trypanu rozprzestrzenia się w całym świetle dystalnej i proksymalnej części jajowodu (D). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wyniki
Rysunek 1 oraz Rysunek 2 przedstawiają odpowiednio przygotowanie igły do mikroiniekcji i konfigurację obszaru operacyjnego dla mikroiniekcji in vivo i elektroporacji jajowodu myszy. Podczas operacji drogi rodne samicy odsłonięto poprzez nacięcia wykonane w skórze grzbietowej (Rysunek 3A) i ścianie ciała znieczulonej myszy Rosa-LSLtdTomato (Gt(ROSA)26Sortm14(CAG-tdTomato)Hze/J)17. Do poduszki tłuszczowej nad drogami rodnymi przyłożono zacisk typu bulldog, aby utrzymać je w pozycji odsłoniętej i zakotwiczonej (Rysunek 3B). Roztwór do iniekcji zawierający plazmidy PCS2 CreNLS18 w stężeniu 400 ng/µL wstrzyknięto do kątnicy (oznaczonej jako AMP) zwiniętego jajowodu i pozostawiono do rozprzestrzenienia się w świetle jajowodu (Rysunek 3C,D). Chociaż plazmidy PCS2 CreNLS zostały użyte do uzyskania reprezentatywnych wyników w niniejszym opracowaniu, opisana metoda może być stosowana z łatwo wymiennymi DNA/RNA/RNP w roztworze do iniekcji w celu edycji genów za pomocą CRISPR/Cas w jajowodzie myszy. Następnie ustawiono elektrody pęsetowe o szerokości 1 mm lub 3 mm w taki sposób, aby dystalna część jajowodu znajdowała się pomiędzy elektrodami w celu dostarczenia materiału za pomocą elektroporacji.
Przewody jajowe pobrano 4 dni po operacji i rozciągnięto poprzez usunięcie krezowca jajowodu, aby zwizualizować specyficzność elektroporacji. Przy użyciu elektrod pęsetowych o szerokości 1 mm lub 3 mm obszar docelowy, znakowany TdTomato, ograniczono do nabłonka dystalnej części przewodu jajowego (Rycina 4A,D). Wielkość tego obszaru docelowego była dodatkowo kontrolowana poprzez zastosowanie elektrod o różnych rozmiarach. Używając elektrod pęsetowych o rozmiarze 3 mm, objęliśmy znacznie większy obszar AMP (Rysunek 4B,C), w porównaniu do celowania wyłącznie w najbardziej dystalny wierzchołek, INF (Rysunek 4E,F), przy użyciu elektrod pęsetowych o rozmiarze 1 mm. Pobrane w ten sposób jajowody utrwalono, poddano obróbce gradientem sacharozy, a następnie wykonano ich przekroje za pomocą kriostatu w celu przeprowadzenia szczegółowych analiz. Przekroje poddano barwieniu kontrastowym za pomocą Hoescht 33342 oraz falloidyny, aby odpowiednio zabarwić jądra komórkowe i cytoszkielet, a następnie obrazowano przy użyciu konfokalnego mikroskopu punktowego. W obszarze docelowym komórki poddane elektroporacji, oznaczone TdTomato, były rozmieszczone losowo pomiędzy komórkami niepoddanymi elektroporacji (TdTomato-ve) (Rycina 4G). Dodatkowo komórki poddane elektroporacji ograniczały się do nabłonka śluzowego i nie stwierdzono ich obecności w leżącej pod nim warstwie zrębu lub mięśniowej (Rysunek 4G,HW celu potwierdzenia edycji genów za pomocą systemu CRISPR-Cas, komórki TdTomato+ można wyizolować metodą fluorescencyjnego sortowania komórek (FACS) w celu izolacji DNA i sekwencjonowania MiSeq.12.

Rysunek 4: Walidacja pomyślnej iniekcji in vivo i elektroporacji komórek nabłonkowych jajowodu, 4 dni po zabiegu. (A-C) Elektroporacja przy użyciu elektrod pęsetowych o rozmiarze 3 mm. Jajowód został rozwinięty poprzez usunięcie mezosalpinksu w celu lepszej wizualizacji specyficzności elektroporacji (A). Obszar elektroporacji, zidentyfikowany na podstawie ekspresji TdTomato, był ograniczony do dystalnej części jajowodu, oznaczonej jako AMP (B,C). (D-F) Elektroporacja przy użyciu elektrod pęsetowych o rozmiarze 1 mm. Jajowód został rozwinięty poprzez usunięcie mezosalpinksu w celu lepszej wizualizacji specyficzności elektroporacji (D). Obszar elektroporacji był ograniczony do lejka (oznaczonego jako INF), najbardziej dystalnego końca jajowodu (E,F). (G,H) Przekrój poprzeczny dystalnej części jajowodu 4 dni po elektroporacji plazmidami PCS2 CreNLS. Elektroporowane komórki znakowane TdTomato (G) były ograniczone do jednowarstwowego nabłonka (H). Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Kluczowymi krokami w tym szczegółowym protokole są mikroiniekcja roztworu DNA/RNA/RNP do światła jajowodu oraz kontrola siły i obszaru elektroporacji. Wyciek roztworu DNA/RNA/RNP podczas mikroiniekcji może spowodować transfekcję niepożądanych obszarów/komórek. Aby uzyskać spójną i wydajną elektroporację, zaleca się wypełnienie światła jajowodu roztworem (rysunek 3C,D). Dzieje się tak, ponieważ obszar elektroporacji jest kontrolowany głównie przez rozmiar i umiejscowienie elektrody. Słaba elektroporacja zmniejsza liczbę elektroporowanych ogniw, a ostra elektroporacja może powodować elektroporację niepożądanych komórek lub zaburzać strukturę tkanki. Liczbę elektroporowanych ogniw można zmieniać, dostosowując stężenie roztworu DNA/RNA/RNP lub parametry elektroporacji. Ponieważ jednak wysokie napięcie/wytwarzanie ciepła podczas elektroporacji może uszkodzić tkankę, parametry te należy przetestować przed użyciem na żywych/znieczulonych myszach. Wreszcie, ze względu na wymagający charakter tej procedury, zaleca się ćwiczenie ekspozycji przewodu pokarmowego i mikroiniekcji na martwych myszach przed wykonaniem tej operacji na żywych/znieczulonych myszach.
Uznaje się, że wiele genów jest zaangażowanych w inicjację raka, dlatego rekapitulacja tego wydarzenia wymaga wieloallelicznej modyfikacji kilku genów. Ponadto wiadomo również, że nie wszystkie komórki są jednakowo podatne na mutacje onkogenne9. Modelowanie raka wymaga zatem specyficznych linii myszy Cre, aby osiągnąć ścisłą kontrolę onkogennych urazów. Jednak ich dostępność i swoistość powoduje różne wyzwania, w tym wpływ na tkanki niedocelowe i śmiertelność19. Co więcej, tradycyjne G-GEMM wiążą się z wysokimi kosztami konserwacji i wymagają czasu na wygenerowanie linii myszy. Rozwój technologii edycji genomu CRISPR/Cas9 i poprawa dostarczania genów do określonych komórek somatycznych pozwoliły nam przezwyciężyć te problemy. W tym protokole przedstawiamy metodę dostarczania DNA/RNA/RNP do manipulacji genomem somatycznym, która może być wykorzystana do modelowania raka, bez bezwzględnej potrzeby stosowania określonych linii myszy12. Poprzez wstrzykiwanie roztworów DNA/RNA/RNP do światła i używanie różnych rozmiarów elektrod typu pęseta do dostarczania opartego na elektroporacji, celuje się w ograniczone obszary nabłonka błony śluzowej jajowodu myszy (ryc. 4A-F). Jest to szczególnie przydatne w modelowaniu inicjacji HGSC, które pochodzą z dystalnego końca jajowodu.
Przedstawiona metoda mikroiniekcji i elektroporacji in vivo jest bardzo uniwersalna w celowaniu w tkanki/narządy za pomocą światła. Za pomocą tej metody można również celować w miąższ narządu14. Metody dostarczania wirusa, takie jak systemy lentiwirusowe i adenowirusowe, mogą być również wykorzystywane do podobnych celów. Jednak zalety elektroporacji w porównaniu z metodami dostarczania wirusa to: 1) dostarczanie wielu plazmidów do pojedynczych komórek, 2) brak ograniczeń co do rozmiaru wkładki15 oraz 3) łatwa kontrola obszaru i czasu podawania. Ponadto swoistość kierowania można poprawić, stosując promotory specyficzne dla linii. Jest to czasami trudne w systemach wirusowych ze względu na limit opakowań wirusowych.
Podobnie jak natura elektroporacji, elektroporowane komórki nabłonkowe są losowo przeplatane zdrowymi, nieedytowanymi komórkami (ryc. 4G). Jednak ta mozaikowość w genetycznie zmodyfikowanych i niezmodyfikowanych komórkach może być korzystna dla badania inicjacji raka, ponieważ podsumowuje sporadyczny charakter wczesnej inicjacji raka w immunokompetentnym mikrośrodowisku. Częstotliwość elektroporowanych ogniw można regulować, zmieniając stężenia roztworu DNA/RNA/RNP i/lub parametry elektroporacji. Korzystając z edycji genów za pośrednictwem CRISPR-Cas w połączeniu z przedstawionym protokołem, łatwo jest przeprowadzić badania przesiewowe wielu genów i wygenerować heterogeniczne wzorce mutacji/kombinacji alleli w docelowych genach; Jest to szczególnie przydatne w modelowaniu nowotworów, które prezentują znaczną liczbę zmian genomowych, takich jak HGSC 20,21. Ponadto, poprzez sekwencjonowanie docelowych genów podczas progresji raka, możliwe jest śledzenie ewolucji klonalnej in vivo guzów i przerzutów u myszy immunokompetentnych12.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują Katie Teng i Dr. Matthew J. Fordowi za dostarczenie plazmidów używanych do generowania reprezentatywnych wyników i optymalizacji protokołu. K.H. był wspierany przez Fonds de recherche du Québec - Santé (FRQS) grant doktorski, Fundację Donnor, Delta Kappa Gamma World Fellowship, Centrum Badań nad Rozrodem i Rozwojem (CRRD), Hugh E. Burke, Rolande i Marcel Gosselin, oraz stypendia podyplomowe Alexandra McFee.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,22 &mikro; m Sterylna jednostka filtrująca | LifeGene | SF0,22PES | |
| 1 ml | Terumo Medical Corportation | SS-01T | |
| Elektrody typu pęseta 1 mm | BEX CO., LTD | ||
| Elektrody pęsetowe 3 mm | BEX CO., LTD | ||
| Igła 30G x 1/2 | Igła BD | 305106 | jest dołączona do strzykawki 1 ml podczas stosowania środka znieczulającego lub przeciwbólowego do wstrzykiwań. |
| Kleszcze Adson | Fisher Scientific | 10-000-451 | |
| Strzykawka pod ciśnieniem powietrza | BD | B302995 | Podłączona do mikromanipulatora; jak pokazano na rysunku 2B |
| Przeciwbólowe | - | karprofen, dawka: 5 mg / kg. | |
| Antyseptyczny | Cardinal Health | OMEL0000017 | Baxedin: 2% chlorheksydyna w 70% alkoholu izopropylowym |
| Avertin (2,2,2-tribromoetanol) - Znieczulenie | Sigma Aldrich | T48402-25G | |
| Mikromanipulator do montażu zaciskowego | AD Instruments | MM-33 | |
| Zakrzywione ząbkowane kleszcze | Fisher Scientific | NC0696845 | |
| Mikroskop | preparacyjnyZeiss | SteREO Discovery.V8 | Apochromat S, 0,63X, FWD 107mm. Dołączona dioda KL 200 LED do światła górnego, oznaczona jako źródło światła na rysunku 2B. |
| Smar do oczu | Maść Alcon-Systane (Smarująca maść do oczu) | ||
| Szklane igły kapilarne | Sutter Instrument Co. | B100– 50-10 | Średnica zewnętrzna: 1 mm, średnica wewnętrzna: 0,5 mm, długość: 10 cm |
| Hmostatyki Hartmana | Fisher Scientific | 50-822-711 | |
| Poduszka grzewcza/tarcza | - | W tym protokole użyto podkładki grzewczej do kuchenki mikrofalowej SnuggleSafe Pet Bed. Kuchenka mikrofalowa przez 2-5 minut i przetestuj grzbietem dłoni w rękawiczce. | |
| Uchwyt magnetyczny do mikromanipulatora | AD Instruments | MB-B | Służy do utrzymywania mikromanipulatora z mocowaniem zaciskowym stabilnie i w pozycji pionowej podczas wstrzykiwania. |
| Zacisk Micro Bulldog | Fisher Scientific | 50-822-230 | 3 cm |
| Ściągacz do mikropipet | Sutter Instrument Co. | P-97 | P-97 Ściągacz do mikropipet typu płomieniowego/brązowego. Zastosowany program: P = 500, Heat = 576, PULL = 50, VEL = 80, DEL = 70 |
| Szalka Petriego | Fisher Scientific | 263991 | Można również stosować autoklawowane/sterylne szklane szalki Petriego. |
| Sól fizjologiczna buforowana fosforanami (PBS) | Bio Basic Inc. | PD8117 | 10X PBS rozcieńczono do 1X wodą DI. Autoklaw przed użyciem. |
| Generator impulsów/Elektroporator | BEX CO., LTD | CUY21 EDIT II | Ustawienia elektroporacji: 30 V, 3 impulsy, interwał 1 s, długość P. = 50 ms, jednobiegunowe |
| Rosa-LSLtdMyszy pomidorowe | Laboratorium Jacksona | 7914 | Gt(ROSA)26Sortm14(CAG-tdTomato)Hze/J |
| Ostro-nożyczki preparacyjne | Fisher Scientific | 28251 | |
| Nożyczki preparacyjne z ostrym zakończeniem | Fisher Scientific | Golarka SDI130 | |
| - | można również użyć kremu do depilacji. | ||
| Jedwabne nici plecione | Ethicon | 682G | 3/8 koło, grubość: 5-0, rozmiar drutów: 18 mm, długość gwintu: 75 cm. Można również użyć zszywek. |
| Stożkowe kleszczyki z ultracienką końcówką | Fisher Scientific | 12-000-122 | |
| Cienki papier chłonny | Kimberly-Clark Professional | 34120 | Kimwipes |
| Trypan blue | STEMCELL Technologies | 7050 | Filtrowane za pomocą 0,22 i mikro; m sterylny filtr przed użyciem do mikroiniekcji. |
Bibliografia
- Avilés, M., Coy, P., Rizos, D. The oviduct: A key organ for the success of early reproductive events. Animal Frontiers. 5 (1), 25-31 (2015).
- Li, S., Winuthayanon, W. Oviduct: roles in fertilization and early embryo development. The Journal of Endocrinology. 232 (1), R1-R26 (2017).
- Briceag, I., et al. Fallopian tubes--literature review of anatomy and etiology in female infertility. Journal of Medicine and Life. 8 (2), 129-131 (2015).
- Perets, R., et al. Transformation of the fallopian tube secretory epithelium leads to high-grade serous ovarian cancer in Brca;Tp53;Pten models. Cancer Cell. 24 (6), 751-765 (2013).
- Labidi-Galy, S. I., et al. High grade serous ovarian carcinomas originate in the fallopian tube. Nature Communications. 8 (1), 1093(2017).
- Shaw, P. A., Rouzbahman, M., Pizer, E. S., Pintilie, M., Begley, H. Candidate serous cancer precursors in fallopian tube epithelium of BRCA1/2 mutation carriers. Modern Pathology. 22 (9), 1133-1138 (2009).
- Soong, T. R., et al. Evidence for lineage continuity between early serous proliferations (ESPs) in the Fallopian tube and disseminated high-grade serous carcinomas. The Journal of Pathology. 246 (3), 344-351 (2018).
- Lee, Y., et al. A candidate precursor to serous carcinoma that originates in the distal fallopian tube. The Journal of Pathology. 211 (1), 26-35 (2007).
- Puisieux, A., Pommier, R. M., Morel, A. P., Lavial, F. Cellular pliancy and the multistep process of tumorigenesis. Cancer Cell. 33 (2), 164-172 (2018).
- Harwalkar, K., et al. Anatomical and cellular heterogeneity in the mouse oviduct-its potential roles in reproduction and preimplantation development. Biology of Reproduction. 104 (6), 1249-1261 (2021).
- Ford, M. J., et al. Oviduct epithelial cells constitute two developmentally distinct lineages that are spatially separated along the distal-proximal axis. Cell Reports. 36 (10), 109677(2021).
- Teng, K., et al. Modeling high-grade serous ovarian carcinoma using a combination of in vivo fallopian tube electroporation and CRISPR-Cas9-mediated genome editing. Cancer Research. 81 (20), 5147-5160 (2021).
- Ford, M. J., Yamanaka, Y. Reprogramming mouse oviduct epithelial cells using in vivo electroporation and CRISPR/Cas9-mediated genetic manipulation. Methods in Molecular Biology. 2429, 367-377 (2022).
- Maresch, R., et al. Multiplexed pancreatic genome engineering and cancer induction by transfection-based CRISPR/Cas9 delivery in mice. Nature Communications. 7, 10770(2016).
- Braun, C. J., Adames, A. C., Saur, D., Rad, R. Tutorial: design and execution of CRISPR in vivo screens. Nature Protocols. 17 (9), 1903-1925 (2022).
- Livet, J., et al. Transgenic strategies for combinatorial expression of fluorescent proteins in the nervous system. Nature. 450 (7166), 56-62 (2007).
- Madisen, L., et al. A robust and high-throughput Cre reporting and characterization system for the whole mouse brain. Nature Neuroscience. 13 (1), 133-140 (2010).
- Chazaud, C., Yamanaka, Y., Pawson, T., Rossant, J. Early lineage segregation between epiblast and primitive endoderm in mouse blastocysts through the Grb2-MAPK pathway. Developmental Cell. 10 (5), 615-624 (2006).
- Heyer, J., Kwong, L. N., Lowe, S. W., Chin, L. Non-germline genetically engineered mouse models for translational cancer research. Nature Reviews. Cancer. 10 (7), 470-480 (2010).
- Kroeger Jr, P. T., Drapkin, R. Pathogenesis and heterogeneity of ovarian cancer. Current Opinion in Obstetrics & Gynecology. 29 (1), 26-34 (2017).
- Cancer Genome Atlas Research Network. Integrated genomic analyses of ovarian carcinoma. Nature. 474 (7353), 609-615 (2011).
Przedruki i uprawnienia
