To badanie przedstawia metodę analizy morfologii mitochondriów na podstawie barwienia immunologicznego i analizy obrazu w tkance mózgowej myszy in situ. Opisano również, w jaki sposób pozwala to na wykrycie zmian w morfologii mitochondriów wywołanych przez agregację białek w modelach choroby Parkinsona.
Artykuł metodologiczny
Badanie histologiczne morfologii mitochondriów w modelu choroby Parkinsona
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Mitochondria odgrywają kluczową rolę w metabolizmie energetycznym komórek, a ich funkcja jest szczególnie ważna dla neuronów ze względu na ich wysokie zapotrzebowanie na energię. Dlatego dysfunkcja mitochondriów jest patologicznym znakiem rozpoznawczym różnych zaburzeń neurologicznych, w tym choroby Parkinsona. Kształt i organizacja sieci mitochondrialnej jest wysoce plastyczna, co pozwala komórce reagować na sygnały i potrzeby środowiskowe, a struktura mitochondriów jest również ściśle związana z ich zdrowiem. W tym miejscu przedstawiamy protokół badania morfologii mitochondriów in situ w oparciu o barwienie immunologiczne białka mitochondrialnego VDAC1 i późniejszą analizę obrazu. Narzędzie to może być szczególnie przydatne w badaniach nad zaburzeniami neurodegeneracyjnymi, ponieważ może wykrywać subtelne różnice w liczbie i kształcie mitochondriów indukowane przez agregaty α-synukleiny, białka podatnego na agregację, silnie zaangażowanego w patologię choroby Parkinsona. Metoda ta pozwala stwierdzić, że neurony dopaminergiczne z istotą czarną pars compacta zawierające zmiany pS129 wykazują fragmentację mitochondriów (co sugeruje ich obniżony współczynnik proporcji, AR) w porównaniu z ich zdrowymi sąsiednimi neuronami we wstępnie uformowanym modelu Parkinsona z fibrylowym wstrzyknięciem wewnątrzczaszkowym.
Wprowadzenie
Centralny układ nerwowy ma duże zapotrzebowanie na ATP: neurony używają ATP do wspierania gradientów jonowych, syntezy neuroprzekaźników, mobilizacji, uwalniania i recyklingu pęcherzyków synaptycznych oraz do umożliwienia lokalnej translacji i degradacji białek. Ponad 95% ATP wykorzystywanego przez mózg jest wytwarzane przez mitochondria1. Nic więc dziwnego, że dysfunkcja mitochondriów jest szczególnie szkodliwa dla neuronów. W rzeczywistości upośledzenie funkcji mitochondriów odgrywa ważną rolę w wielu chorobach neurologicznych, w tym w stanach neurodegeneracyjnych, takich jak choroba Parkinsona (PD) i choroba Alzheimera (AD)2,3.
Wiele genów jest jednoznacznie powiązanych z białkami kodującymi PD, które są istotne dla funkcji mitochondriów i homeostazy, takich jak Parkin4,5,6, kinaza 1 indukowana przez PTEN (PINK1)7,8 oraz DJ-19. Kolejnym dowodem na rolę dysfunkcji mitochondriów w chorobie Parkinsona jest to, że leczenie inhibitorami kompleksu I mitochondrialnego łańcucha transportu elektronów (takimi jak rotenon i MPTP) podsumowuje kilka aspektów PD in vitro i in vivo10. Jednak ważne jest, aby stwierdzić, że wiele procesów patologicznych może prowadzić do utraty neuronów w PD, wraz z deficytami mitochondrialnymi: stres oksydacyjny, zmieniona homeostaza wapnia, niewydolność systemów ubikwityna-proteasom i autofagii-lizosomów oraz agregacja białek należą do najczęściej badanych (recenzowane w11,12,13 i).
Mitochondria mają niejednorodny kształt: oprócz pojedynczych jednostek, są często spotykane jako rozbudowane sieci siatkowate i rurkowe. Struktura i lokalizacja komórkowa mitochondriów mają kluczowe znaczenie dla ich funkcji14; W rzeczywistości sieci mitochondrialne są niezwykle dynamiczne, przechodzą częste procesy rozszczepienia, fuzji i mitofagii, aby zaspokoić potrzeby komórek i reagować na sygnały środowiskowe15,16. Ponadto morfologia mitochondriów jest ściśle związana z ich stanem zdrowia. Na przykład w ludzkim zaniku nerwu wzrokowego mutacje genetyczne, które zmniejszają aktywność mitochondriów, prowadzą do nieprawidłowych, smukłych i nadmiernie rośniętych mitochondriów17. Z drugiej strony, wiele chorób u ludzi charakteryzuje się nieprawidłową morfologią mitochondriów, w tym fragmentacją mitochondriów lub nadmierną fuzją mitochondriów, które mają szkodliwy wpływ na funkcję mitochondriów (recenzja w18). W kontekście choroby Parkinsona my i inni wykazaliśmy wcześniej, że nieprawidłowy kształt mitochondriów koreluje z dysfunkcją w odpowiedzi na agregaty α-synukleiny19. Chociaż morfologia mitochondriów była intensywnie badana in vitro zarówno w kontekście PD, jak i innych chorób20,21,22, brakuje protokołów oceny morfologii mitochondriów na podstawie odcinków in vivo. To sprawia, że badanie in vivo mitochondriów w kontekście chorób takich jak PD jest wysoce zależne od zwierząt transgenicznych23 lub oceny ekstraktów śródmózgowia, które nie mogą zapewnić rozdzielczości komórkowej.
Tutaj przedstawiono protokół do badania morfologii mitochondriów in situ jako wskaźnika ich funkcjonalnego statusu i zdrowia, oparty na barwieniu immunologicznym białka mitochondrialnego VDAC124, a następnie analizie obrazu w skrawkach tkanek zatopionych w parafinie. Pokazujemy również wyniki tego protokołu w modelach PD in vitro i in vivo: komórki nerwiaka zarodkowego z nadekspresją SNCA (synukleiny alfa) i tkanka mózgowa od myszy poddanych wewnątrzczaszkowemu wstrzyknięciu wstępnie uformowanych włókienek α-synukleiny (PFF). Jednoczesne barwienie immunologiczne przeciwciałem przeciwko α-synukleinie (w komórkach) lub fosfoSer129-α-synukleinie pS129 (w mózgach myszy) pozwoliło nam zidentyfikować komórki z patologią białka zbiorczego (odpowiednio nadekspresja włókienek α-synukleiny i α-synukleiny) w próbkach, podczas gdy komórki ujemne służyły jako niepatologiczna kontrola w tych samych próbkach. Dzięki tej analizie i opisanym tutaj danym zaobserwowano zmniejszony współczynnik kształtu, wskazujący na fragmentację mitochondriów w komórkach z nadekspresją SNCA lub prezentujących zmiany pS129.
Protokół
Wszystkie procedury opisane w tej sekcji zostały wykonane zgodnie z ramami etycznymi dostarczonymi przez Uniwersytet Kraju Basków (numer referencyjny M20/2022/212), rząd Kraju Basków, rząd hiszpański oraz Unię Europejską.
1. Analiza morfologii mitochondriów w komórkach SH-SY5Y z nadekspresją SNCA
UWAGA: Tutaj znajduje się krótki opis generowania materiału in vitro do badania, który posłuży jako porównanie dla uzyskanych wyników in situ. Zaleca się, aby ten rodzaj analizy został przeprowadzony przed rozpoczęciem eksperymentu in vivo dotyczącego morfologii mitochondriów, ponieważ zapewni to wszystkie odpowiednie ustawienia obrazowania i analizy.
- Aby zwiększyć przyczepność komórkową i ułatwić adhezję komórkową na płaskich płytkach 96-dołkowych z dnem optycznym, dodaj 25 μl/dołek matrycy powlekającej 1:1000 w DMEM F12 przez pipetowanie (patrz Tabela materiałów). Inkubować płytki przez 1 godzinę w temperaturze 37 °C i 5% CO2 .
- Policz SH-SY5Y za pomocą komory Neubauera. Usunąć matrycę powlekającą przez pipetowanie i wysiać 10 000 komórek/basenik na powlekanej 96-dołkowej płytce w 50 μl/basenik DMEM F-12 uzupełnionym 10% FBS, 2 mM glutaminą i penicyliną/streptomycyną (patrz Tabela materiałów).
- Inkubować komórki w temperaturze 37 °C i 5% CO2przez 24 godziny.
- Przygotować mieszaninę 250 ng pcDNA3.1 zawierającego ludzki SNCA typu dzikiego, 0,250 μl odczynnika do transfekcji, 0,250 l adiuwantu do transfekcji i pożywki do transfekcji do 50 μl dla każdej studzienki (patrz tabela materiałów). Przygotuj rozwiązanie główne, biorąc pod uwagę całkowitą liczbę studzienek w eksperymencie.
- Usunąć pożywkę za pomocą ręcznego pipetowania i dodać 50 μl/basenik roztworu przygotowanego w kroku 1.4 przez pipetowanie. Inkubować w temperaturze 37 °C, 5% CO2 .
- h po transfekcji usunąć pożywkę do transfekcji przez pipetowanie i dodać 25 μl/studzienkę 4% paraformaldehydu (PFA) w PBS.
UWAGA: Paraformaldehyd jest toksycznym utrwalaczem; używać odpowiednich środków ochrony indywidualnej. - Inkubować przez 5 minut w temperaturze pokojowej (RT). Usunąć roztwór utrwalający przez pipetowanie i przemyć raz, dodając 50 μl/studzienkę PBS. Usunąć PBS za pomocą pipetowania.
- Odpipetować 25 μl/studzienkę TBS z 0,05% Tween (TBS-T) i 10% normalnej surowicy osła (NDS, patrz Tabela Materiałów). Inkubować przez 1 godzinę w R.T., aby zablokować wszelkie niespecyficzne sygnały.
- Przygotować roztwór przeciwciała króliczko-anty-α-synukleinowego MJFR1 1:1000 wraz z mysim przeciwciałem anty-TOMM20 1:100 w TBS-T (patrz tabela materiałów) zgodnie z liczbą studzienek do analizy.
- Usunąć roztwór blokujący z kroku 1.8 przez pipetowanie i dodać 25 μl/basenik mieszaniny przeciwciał pierwszorzędowych przygotowanych w kroku 1.9. Inkubować przez noc w temperaturze 4 °C.
- Usunąć pierwszorzędowy roztwór przeciwciała i przemyć trzykrotnie, dodając i usuwając 50 μl/basenik TBS-T za pomocą pipetowania.
- Przygotować roztwór zielonego przeciwciała drugorzędowego anty-Mouse 1:1000 wraz z czerwonym przeciwciałem drugorzędowym anty-Rabbit 1:1000 w TBS-T (patrz tabela materiałów) zgodnie z liczbą studzienek do analizy.
- Po zaessaniu PBS z ostatniego przemycia opisanego w kroku 1.11, dodać 25 μl/basenik mieszaniny przeciwciał wtórnych za pomocą pipety i inkubować płytkę przez 1 godzinę w temperaturze R.T.
- Usunąć drugorzędowy roztwór przeciwciała przez pipetowanie i dodać 25 μl/basenik 2 g/ml DAPI do TBS-T. Inkubować płytkę przez 5 minut w temperaturze R.T.
- Usunąć roztwór DAPI za pomocą pipety i przemyć trzykrotnie, dodając i usuwając pipetą 50 μl/studzienkę TBS-T.
- Odpipetować 80 μl/studzienkę PBS 0,02% azydkiem sodu i przechowywać płytkę w temperaturze 4 °C.
UWAGA: Azydek sodu jest toksyczny; używać odpowiednich środków ochrony indywidualnej. - Rejestruj obrazy za pomocą automatycznego mikroskopu fluorescencyjnego o wysokiej zawartości lub równoważnego systemu obrazowania konfokalnego wyposażonego w obiektyw 60x (patrz tabela materiałów).
- Wykonaj analizę sygnału TOMM20 pojedynczych komórek przy użyciu Fidżi, wykonując kroki 3.15-3.21. Unikaj komórek ulegających apoptozie, martwicy lub mitozie.
UWAGA: Aby to zrobić, wykluczamy z analizy komórki wykazujące te cechy morfologiczne apoptozy, martwicy lub mitozy, które są widoczne pod mikroskopem, takie jak kurczenie się komórek, pęcherzenie błony, odklejanie komórek, kondensacja jądrowa, fragmentacja DNA i skondensowana chromatyna jądrowa zorganizowana w grube pasma ustawione w jednej płaszczyźnie.
2. Generowanie PFF i iniekcji wewnątrzczaszkowych PFF u myszy
UWAGA: Generowanie materiału iniekcyjnego i proces iniekcji wewnątrzczaszkowej są przedstawione tutaj. Ten protokół jest zaadaptowany z Luk et al.25.
- Aby uzyskać PFF, umieścić probówkę/kolbę zawierającą 0,5 ml α-Syn (5 mg/ml; Peptyd, patrz Tabela materiałów) na wytrząsarce w temperaturze 37 °C i 250 obr./min przez 7 dni w celu wywołania agregacji α-synukleiny.
- Sonizować zagregowaną α-synukleinę przy 20% amplitudzie i obciążeniu 0,25 cyklu, aż do osiągnięcia optymalnej fragmentacji i zaobserwowania przez ujemne barwienie próbek za pomocą transmisyjnej mikroskopii elektronowej.
- Aby przygotować samce i samice myszy C57Bl/6 typu dzikiego (w wieku 3 miesięcy) do wstrzyknięć PFF prążkowia, należy podać podskórnie Meloksykam/Metacam (5 mg/kg) w roztworze soli fizjologicznej. Należy również podać 1 ml sterylnego roztworu soli fizjologicznej w dwóch zastrzykach podskórnych po 0,5 ml na zwierzę. Zabiegi te zapobiegają odwodnieniu, stanom zapalnym i bólowi.
- Wywołaj znieczulenie 4% izofluranem i 0,7 l/minO2 w komorze indukcyjnej. Sprawdź głębokość znieczulenia na podstawie braku reakcji pedału.
- Ogol górną część głowy myszy i delikatnie włóż zwierzę w ramę aparatu stereotaktycznego na macie grzewczej.
- Utrzymuj płaszczyznę znieczulającą, podając znieczulenie wziewne zwierząt (1%-2% izofluranu w 0,7 l/minO2) przez maskę na twarz podczas całego procesu wstrzykiwania.
- Umieść zwierzę na ramie stereotaktycznej. Zdezynfekuj obszar operacyjny trzema rundami naprzemiennego peelingu chlorheksydyny i 70% etanolu. Marcainę/bupiwakainę należy stosować miejscowo (około 100 μl) jako naciek podskórny 0,25%.
- Wykonaj 0,5 cm nacięcie skóry, aby odsłonić czaszkę i wywierć otwór o średnicy 1 mm w czaszce, aby odsłonić powierzchnię mózgu, w następujących współrzędnych od Bregma: - 0,5 mm przednio-tylny, +/- 2,5 mm przyśrodkowy .
- Wstrzyknąć 1,5 l PFF uzyskanych w kroku 2.2 przez stereotaktyczne dostarczanie do współrzędnych wskazanych w kroku 2.8 z Bregma i -2,7 mm grzbietowo-brzusznie (od górnej części mózgu) przy natężeniu przepływu 100 nl/min za pomocą strzykawki Hamiltona 32-G. Strzykawkę należy wyjąć 5 minut po wstrzyknięciu.
- Zszyj (rozmiar: 4-0, 45 cm, patrz tabela materiałów) ranę za pomocą trzech do pięciu szwów w razie potrzeby i zwiąż każdy z nich 2 podwójnymi węzłami, a następnie pojedynczym węzłem. Przerwij inhalację środka znieczulającego i wyjmij mysz z ramki.
- Pozostaw mysz do odzyskania sił w odpowiedniej klatce regeneracyjnej przed powrotem do klatki domowej.
- W ciągu następnego tygodnia wykonuj codzienne kontrole pooperacyjne. Każdemu zwierzęciu, który odczuwa ból, niepokój lub dyskomfort, należy podawać Meloksykam/Metacam zgodnie z zaleceniami w kroku 2.3 co 24 godziny.
- Trzy miesiące później wstrzyknij 300 μl pentobarbitalu sodu o stężeniu 200 mg/ml w roztworze soli fizjologicznej we wstrzyknięciu dootrzewnowym. Po utracie odruchu bólowego wykonaj nacięcie (2-3 cm) na klatce piersiowej i unieś żebra, aby odsłonić serce.
- Perfuzja przezskórna z 10 ml PBS i 35 ml 4% paraformaldehydu w PBS jeden po drugim z prędkością 5 ml/min za pomocą strzykawki o pojemności 50 ml podłączonej do igły motylkowej 23 G.
- Usunąć mózg i przyrostek w 4% PFA przez dodatkowe 24 godziny w temperaturze 4 °C. Przechowywać w 70% etanolu w temperaturze 4 °C po zabiegu PFA.
- Umieść mózg w odpowiednich plastikowych pudełkach do osadzania (patrz Tabela Materiałów) i inkubuj w 95% etanolu przez 1 godzinę w R.T. Powtórz ten krok w świeżym 95% etanolu i ponownie inkubuj przez 1 godzinę.
- Przenieś mózgi do 100% etanolu na 1 godzinę w RT Powtórz krok w świeżym 100% etanolu i ponownie inkubuj przez 1 godzinę.
- Przenieść mózgi do ksylenu lub substytutu ksylenu przez 1 godzinę w R.T. Powtórzyć w świeżym roztworze i ponownie inkubować przez 1 godzinę.
- Usunąć ksylen lub substytut ksylenu i inkubować próbkę w ciepłej parafinie przez 1 godzinę. Zastąpić parafinę i inkubować przez dodatkową godzinę.
- Zamontuj mózg na pudełkach do zatapiania z ciepłą parafiną i pozostaw do wyschnięcia na noc. Przygotować skrawki o grubości 5 μm za pomocą mikrotomu (patrz tabela materiałów) i zamontować je na szkiełkach podstawowych.
3. Analiza morfologii mitochondriów metodą immunohistochemiczną na zatopionych w parafinie wycinkach mózgu myszy z wstrzyknięciem PFF
- Odwoskuj szkiełka, zanurzając dziesięć razy w substytucie ksylenu. Inkubować szkiełka przez 2 minuty w substytucie ksylenu. Zanurz ponownie dziesięć razy w substytucie ksylenu.
UWAGA: Ten krok jest konieczny do usunięcia parafiny i umożliwienia ponownego uwodnienia próbek. - Ponowne nawodnienie: powtórzyć procedurę opisaną w kroku 3.1 z następującymi roztworami: 100% EtOH, 95% EtOH, 70% EtOH i dwa razy z ddH2O w kolejności.
- Wykonaj pobieranie antygenu i barwienie immunologiczne, wykonując poniższe czynności.
- Zacznij od przeniesienia próbek do pojemnika nadającego się do kuchenki mikrofalowej o zawartościddH 2O.
- Podgrzej 100x bufor cytrynianowy pH 6 (patrz Tabela materiałów) przechowywany w temperaturze 4 °C (detergenty mogły się wytrącić) i przygotuj 350 ml świeżego buforu 1x cytrynian. Następnie wlej bufor cytrynianowy do wygodnego plastikowego pojemnika z pokrywką.
- Umieść szkiełka w pojemniku z buforem cytrynianowym (KRYTYCZNIE: sprawdź, czy szkiełka znajdują się poniżej poziomu buforu) i przykryj pokrywką.
UWAGA: Upewnij się, że pokrywka NIE jest całkowicie zamknięta, w przeciwnym razie pojemnik może pęknąć w kuchence mikrofalowej. - Kuchenka mikrofalowa o mocy 700 W: 4 min + 5 min odpoczynku, 1,5 min + 5 min odpoczynku. Uzupełnij bufor cytrynianu i ponownie kuchenka mikrofalowa 1,5 min + 5 min odpoczynku, 1,5 min + 5 min odpoczynku, 1,5 min + 5 min odpoczynku.
- Schłodzić próbki w buforze cytrynianowym na lodzie przez 20 minut. Przemyć próbkę za pomocą ddH2O.
UWAGA: Pobieranie antygenu może się różnić w zależności od określonych wymagań dotyczących przeciwciał.
- Osusz szkiełka podstawowe ręcznikiem papierowym, nie dotykając chusteczki. Narysuj prostokąty pisakiem (patrz Spis materiałów) wokół kawałków tkanki.
- Przenieś wszystkie szkiełka do pudełka do barwienia immunologicznego i delikatnie umyj kilka razy za pomocą TBS + 0,05 % TWEEN (TBS-T). Sprawdź, czy krople TBS-T pozostają w prostokątach pióra pap.
- Usuń TBS-T z próbek, stukając w ręcznik papierowy. Dodać 50 μl roztworu blokującego (10% NDS w TBS-T) do każdego prostokąta (bez dotykania tkanki) i inkubować przez 1 godzinę w temperaturze RT.
UWAGA: Objętości mogą się różnić w zależności od wielkości tkanki; Spróbuj upewnić się, że: (1) obszar zapisany przez PAP jest podobny we wszystkich próbkach oraz (2) obszar jest w pełni pokryty wybraną objętością buforową. - Usunąć roztwór blokujący z próbek, stukając w ręcznik papierowy. Delikatnie odpipetować 50 μl/prostokąt następującej mieszaniny przeciwciał pierwszorzędowych w TBS-T: hydroksylaza anty-tyrozyny 1:250 wraz z anty-VDAC1 1:100 i anty-pSer129 α-synukleiny EP1536Y 1:2000 (patrz tabela materiałów).
- Inkubować przez noc w temperaturze 4 °C.
- Umyć, pipetując TBS-T na szkiełka podstawowe i wyjąć, stukając w ręcznik papierowy. Powtórz trzy razy.
- Dodać pipetując 50 μl/prostokąt mieszaniny przeciwciał drugorzędowych: zielony drugorzędowy anty-Kurczak, czerwony drugorzędowy anty-Mouse i dalekiej czerwonej drugorzędowy anty-Rabbit 1:1000 w TBS-T (patrz tabela materiałów). Inkubować w temperaturze 37 °C przez 1 godzinę w ciemności.
- Umyć trzy razy TBS-T zgodnie z opisem w kroku 3.13.
- Inkubować z DAPI 2 μg/ml w TBS-T przez 1 minutę. Usuń roztwór DAPI, stukając w ręcznik papierowy. Umyć trzy razy TBS-T zgodnie z opisem w kroku 3.13.
- Zamocuj szklane szkiełko nakrywkowe na próbkach za pomocą 2 kropli/szkiełko odczynnika montażowego (patrz Tabela materiałów). Delikatnie docisnąć szkiełko nakrywkowe, aby usunąć pęcherzyki powietrza, i pozostawić próbki do wyschnięcia przez 1 godzinę w temperaturze R.T. Następnie przechowywać w temperaturze 4 °C w ciemności.
- Zobrazuj co najmniej 50 komórek w różnych polach za pomocą systemu obrazowania fluorescencyjnego z oświetleniem strukturalnym, wyposażonego w 60-krotny obiektyw olejowy lub technologię konfokalną.
- Wykonaj analizę sygnału VDAC1 pojedynczych komórek przy użyciu Fidżi, jak wskazano w poniższych krokach.
- Najpierw wybierz i wyizoluj obszar zainteresowania (ROI), rysując kontur wokół komórki dodatniej lub ujemnej (odpowiednio) i korzystając z funkcji "Przytnij". Aby uniknąć stronniczości w wyborze ROI, wybierz go, biorąc pod uwagę sygnał fluorescencyjny markera niezwiązanego z analizą (tj. Nie markera mitochondrialnego).
- Opcjonalnie: jeśli obraz jest nadmiernie rozpikselowany, użyj funkcji "wygładzenie", aby uzyskać wyższą rozdzielczość krawędzi.
UWAGA: Jeśli funkcja wygładzania zostanie zastosowana do obrazu, należy ją zastosować do wszystkich kolejnych obrazów. - Opcjonalnie: użyj funkcji "Convolve" (tryb jądra, w filtrach procesu >), aby zmniejszyć tło.
UWAGA: Jest to opcjonalne i zwykle nie jest konieczne w przypadku stosowania odcinków o długości 5 m ze względu na cieńszy charakter sekcji. - Aktywuj deskryptory kształtu i ogranicz do opcji progowych w funkcji "Ustaw pomiar" (upewnij się, że są one aktywowane przez analizę).
- W menu "Dostosuj" wybierz funkcję progu i dostosuj poziom progu. Ustawienia progowe muszą być zachowane dla wszystkich komórek tej samej próbki.
- Postaraj się zapewnić odpowiednią wizualizację sieci mitochondrialnej, jak pokazano na reprezentatywnych obrazach tego artykułu, odrzucając piksele tła.
- Użyj narzędzia Analizuj cząstki na karcie Analizuj. Ustaw odpowiedni rozmiar, aby uchwycić mitochondria. W tym przykładzie size: 25-Infinity, activate: Pixel units i wybierz: Pokaż: Maski zostały użyte do wizualizacji wyniku. Fidżi obliczy i wyświetli liczby, współczynnik proporcji (AR) i inne parametry kształtu w nowym panelu.
- W stosownych przypadkach należy przeprowadzić analizę statystyczną danych. W tym eksperymencie test t został wykorzystany do analizy różnicy w średnim współczynniku proporcji (AR) i liczbach obliczonych przez Fidżi między grupami eksperymentalnymi po testach normalności za pomocą testów normalności D'Agostino i Pearsona.
Wyniki
Aby zapewnić odpowiednie warunki obrazowania i analizy do oceny morfologii mitochondriów w tkance in situ, zaleca się przeprowadzenie analizy morfologii mitochondriów in vitro w odpowiedzi na znany modulator morfologii mitochondrialnej (Sekcja 1). Przykładowo, w komórkach SH-SY5Y zastosowano genetyczną nadekspresję SNCA w celu wywołania zmian w morfologii mitochondriów, zgodnie z wcześniejszymi opisami26. Innymi czynnikami, które można wykorzystać jako kontrolę w celu pogorszenia morfologii mitochondriów, byłyby głodzenie lub zastosowanie inhibitorów aktywności mitochondrialnej, takich jak MPP+. Komórki poddano transfekcji i barwieniu na α-synukleinę (AS), aby oddzielić komórki SNCA+ (AS+) od komórek SNCA- (AS-). Zabarwiono je również TOMM2027, aby zwizualizować sieć mitochondrialną komórek. Aby analiza ta była jak najbardziej zbliżona do analizy 5 µm przekroju tkanki, analizowano jedną płaszczyznę konfokalną zamiast projekcji maksymalnej z wielu płaszczyzn. Analiza morfologiczna jednej płaszczyzny konfokalnej TOMM20 wykazała, że zarówno całkowita liczba mitochondriów, jak i ich współczynnik kształtu, czyli AR (który koreluje z wydłużeniem organellum), uległy zmniejszeniu w odpowiedzi na nadekspresję SNCA (Rycina 1).
Immunobarwienie białka mitochondrialnego VDAC1 przeprowadzono w 5 µm przekrojach mózgu myszy zatopionych w parafinie, pobranych od zwierząt wstrzykniętych PFF, zgodnie z opisem w powyższej sekcji protokołu. Neurony dopaminergiczne istoty czarnej części zwartej (SNc), które ulegają degeneracji w chorobie Parkinsona, wykazano poprzez wspólne immunobarwienie z przeciwciałami przeciwko hydroksylazie tyrozynowej (TH), a następnie oddzielono regionalnie od pola brzusznego nakrywy oraz istoty czarnej części bocznej. Z kolei barwienie przeciwciałami przeciwko fosfo-Ser129-α-synukleinie (pS129) pozwoliło na rozróżnienie komórek zawierających zmiany pS129 od komórek zdrowych (pS129+ versus pS129-). Wykonano obrazy SNc trzech różnych zwierząt, a następująca analiza obrazów barwienia VDAC1 w neuronach TH-dodatnich wykazała zmniejszenie zarówno liczby mitochondriów, jak i ich współczynnika kształtu (aspect ratio) w neuronach z zmianami pS129 w porównaniu do neuronów pozbawionych tych zmian (Rysunek 2). Wyniki te wskazują, że morfologia mitochondriów w neuronach zawierających zmiany pS129 jest zaburzona w porównaniu z komórkami bez zmian pS129.
Choć niniejszy eksperyment wykazuje spadek AR, co podkreśla skrócenie mitochondriów wraz ze zmniejszeniem ich całkowitej liczby, co z kolei wskazuje na pogorszenie morfologii mitochondrialnej, interpretacja danych powinna zależeć od konkretnego doświadczenia. Na przykład spadek AR i liczby mitochondriów może wskazywać na globalne zmniejszenie zawartości mitochondriów oraz ich fragmentację, podczas gdy spadek AR przy jednoczesnym wzroście całkowitej liczby wskazywałby na fenotyp fragmentacji mitochondrialnej. Dlatego ważne jest interpretowanie danych w kontekście obu tych parametrów.
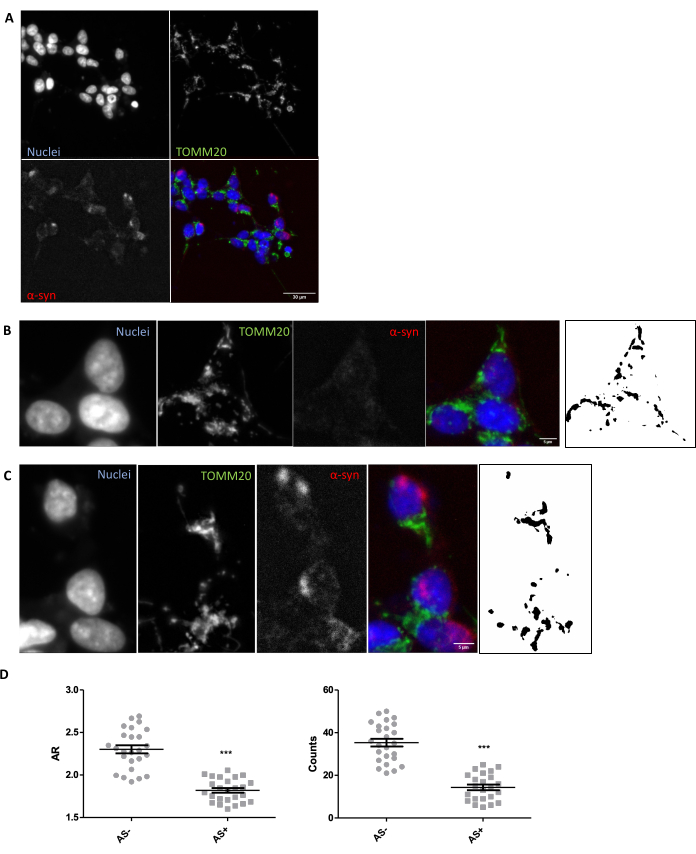
Rycina 1: Morfologia mitochondriów w modelu in vitro z nadekspresją SNCA. Podwójne barwienie immunofluorescencyjne dla TOMM20 (zielony), α-synukleiny (AS, czerwony) i DAPI (niebieski) w komórkach z nadekspresją SNCA i bez nadekspresji (odpowiednio AS+ i AS-) (A). Szczegóły komórki AS- (B) i komórki AS+ (C). Obrazy czarno-białe w panelach (B) i (C) przedstawiają maski sygnału TOMM20 po zastosowaniu funkcji programu Fiji opisanej w sekcji Protokół. Maska ta umożliwia kwantyfikację kształtu powstałych struktur. Liczba mitochondriów oraz wartości współczynnika kształtu (Aspect Ratio, AR) w komórkach AS- i AS+ (N = 25 komórek na warunek) zostały zmierzone i przedstawione jako wartości indywidualne oraz średnia ± SEM; **p-value < 0.05 test t (D). Normalność rozkładu oceniono za pomocą testów normalności D'Agostino i Pearsona. Paski skali: A, 30 µm; B,C, 5 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
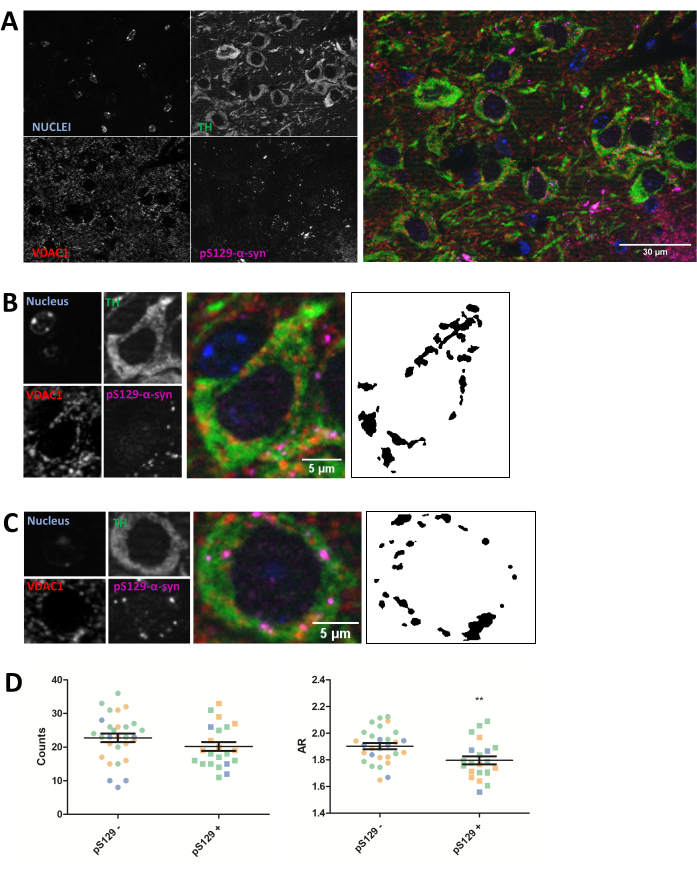
Rycina 2: Morfologia mitochondriów jest zaburzona w neuronach zawierających zmiany pS129. Podwójne barwienie immunocytochemiczne na TH (zielony), VDAC1 (czerwony), fosfo-S129-α-synukleinę (magenta) oraz DAPI (niebieski) w obrębie SNc myszy po wstrzyknięciu PFF (A). Szczegół obrazu neuronu dopaminergicznego ujemnego pod kątem fosfo-S129-α-synukleiny (pS129-) (B) oraz neuronu dopaminergicznego dodatniego pod kątem fosfo-S129-α-synukleiny (pS129+) (C). Obrazy czarno-białe w panelach (B) i (C) przedstawiają maski sygnału TOMM20 po zastosowaniu funkcji Fiji opisanej w sekcji Protokół. Maska ta umożliwia kwantyfikację kształtu powstałych struktur. Komórki ujemne i dodatnie policzono w próbkach od trzech różnych zwierząt, co zilustrowano różnymi kolorami poszczególnych wartości na wykresie (niebieskim, zielonym i pomarańczowym). Liczbę mitochondriów oraz kwantyfikację AR dla pS129- (N = 29) w porównaniu z pS129+ (N = 22) w neuronach dopaminergicznych przedstawiono jako średnią ± SEM, a także jako indywidualne wartości dla komórek; **p-value < 0.05 test t (D). Normalność rozkładu oceniono za pomocą testów normalności D'Agostino i Pearsona. Paski skali: A, 30 µm; B,C, 5 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Ogólnie rzecz biorąc, badanie to pokazuje, że barwienie immunologiczne w połączeniu z analizą obrazu jest wiarygodną metodą analizy morfologii mitochondriów. W rzeczywistości pozwala na ilościowe określenie liczby mitochondriów, a także niektórych parametrów morfologicznych, takich jak proporcje zarówno w hodowli komórkowej, jak i tkance. Liczba mitochondriów jest bezpośrednio związana ze stanem funkcjonalnym mechanizmów rozszczepienia i fuzji próbek, podczas gdy wartość AR zależy od wydłużenia organelli. Metoda ta może być szczególnie cenna dla szybkiej oceny nieprawidłowości mitochondrialnych w modelach PD, w których zmieniona morfologia, dynamika i funkcje mitochondriów są dobrze znanymi mechanizmami patologicznymi28,29. α-synukleina również odgrywa istotną rolę w chorobie Parkinsona: w rzeczywistości α-synukleina jest jednym ze składników ciał Lewy'ego, cytoplazmatycznych agregatów fibrylarnych, które są używane do diagnozy pośmiertnej pacjentów z chorobą Parkinsona30. Ponadto mutacje w genie SNCA stwierdzono u pacjentów zarówno ze znaną, jak i sporadyczną chorobą Parkinsona (przegląd w31). Wykazano, że fosforylacja α-synukleiny w Ser129 w znacznym stopniu oznacza patologię podobną do ciała Lewy'ego, która pojawia się po obrazie PFF i wywołuje różne efekty toksyczne32,26.
Korzystając z przedstawionego tutaj narzędzia, udało nam się wykryć zmniejszenie liczby mitochondrialnej i wartości AR w obecności zarówno nadekspresji, jak i zagregowanej α-synukleiny (komórki z barwieniem α-synukleiny i neurony zawierające odpowiednio zmiany fosfoSer129α-synukleinowo-dodatnie) w porównaniu z komórkami bez takich zmian (komórki α-synukleinowe i fosfonukleinowe-ujemne). Wyniki te zgadzają się z wcześniejszymi doniesieniami pokazującymi, w jaki sposób bezpośrednie interakcje α-synukleina-mitochondria wywierają toksyczny wpływ na funkcję mitochondriów i homeostazę w PD26,33 34. Rzeczywiście, doniesiono, że myszy z mutacjami α-synukleiny wykazują zwiększone uszkodzenie mitochondrialnego DNA35 i mitofagię36,37. Ponadto opisano, że zwiększone poziomy α-synukleiny sprzyjają rozszczepieniu/fragmentacji mitochondriów, indukują reaktywne formy tlenu w mitochondriach i rozregulowują ekspresję białek mitochondrialnych w liniach komórkowych i modelach mysich z nadekspresją α-synukleiny 26,38,39.
Należy podkreślić, że narzędzie to w dużym stopniu zależy od przeciwciał użytych w badaniu; Staranna ocena morfologiczna zastosowanego barwienia przeciwciałami jest niezbędna do wykrycia odpowiedniego przedziału subkomórkowego. Ponieważ technika ta opiera się na przekrojach 5 μm i dlatego wymaga pojedynczych płaszczyzn ogniskowych do analizy struktur mitochondrialnych, brak fenotypu nie wyklucza istnienia fenotypu, ponieważ możliwe jest, że subtelne różnice w morfologii mitochondriów mogą nie zostać wykryte tą metodą.
Chociaż w tej i innych pracach stosowano wcześniej podobne podejścia do oceny morfologii mitochondriów in vivo40, istnieje potrzeba udostępnienia społeczności naukowej szczegółowego protokołu do tej oceny. Znaczenie tego badania polega na tym, że możliwe jest zastosowanie tej metody do różnych modeli chorób in vivo w celu oceny nieprawidłowości morfologicznych mitochondriów i identyfikacji potencjalnej patologii, co może ostatecznie ułatwić badania przesiewowe związków ołowiu w leczeniu takich zaburzeń. Chociaż analiza ta jest obecnie ograniczona do tkanki osadzonej w parafinie, zaletą tej metody jest to, że można ją zastosować do dowolnego modelu choroby po pobraniu tkanki końcowej, co czyni ją bardzo wszechstronnym narzędziem.
Oświadczenia
Nie chcemy zgłaszać żadnych konfliktów interesów.
Podziękowania
Pragniemy podziękować fundatorom tego badania, w szczególności Ikerbasque, hiszpańskiemu Ministerstwu Nauki i Innowacji, Fundacji Michaela J. Foxa, IBRO oraz Baskijskiemu Centrum Neuronauki Achucarro.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 32 G Strzykawka Hamilton | Hamilton | 7632-01 | |
| 4',6-diamidino-2-fenilindol, dihidrocloruro (DAPI) | Invitrogen | D1306 | |
| 4/0 USP 45 cm szew | SSa90 pga | 32345n-36u | |
| Alexa fluor 488/594-Oślica przeciw myszy | Invitrogen | A21202; A21203 | zielony / czerwony barwnik-Osioł anty-Myszy |
| Alexa fluor 594/647-Osioł anty-Królik | Invitrogen | A21207 A31573 | czerwony/daleki czerwony barwnik-Osioł anty-Królik |
| AlexaFluor 488-Osioł anty-Kurczak | Jackson ImmunoResearch | 703-545-155 | zielony barwnik-Osioł anty-Kurczak |
| Przeciwciało anty-PSer129 i alfa;-synukleiny EP1536Y (królika) | Abcam | ab51253 | |
| Przeciwciało anty-TOM 20 (mysz) | Santa Cruz | sc-17764 | |
| Przeciwciało przeciw hydroksylazie tyrozyny (kurczak) | Abcam | ab76442 | |
| Przeciwciało anty-VDAC1 (myszy) | Santa Cruz | sc-390996 | |
| Przeciwciało anty-&alfa;-synukleinowe MJFR1 (królik) | Abcam | ab138501 | |
| Bufor cytrynianu 100X zapas: 120mM bufor cytrynianowy, 5% Tween w wodzie (pH 6) | Domowa | ||
| jednorazowa forma bazowa do zatapiania tkanek | Fisher | 22-363-553 | Plastikowe pudełka do zatapiania |
| D-MEM F12 | Gibco | A321331020 | |
| EVOS System obrazowania M7000 | ThermoFisher Scientific | Automatyczny mikroskop fluorescencyjny o wysokiej zawartości | |
| Surowica bydlęca | płodu Gibco | 10270106 | |
| Płaskie płytki 96-dołkowe z dnem optycznym | Greiner | 675090 | |
| Odczynnik FluorSave | Millipore | 345789-20ML | Odczynnik montażowy |
| Glutamina 200 mM | Gibco | 25030-024 | |
| ImmEdge Hydrofobowy długopis | Vector Laboratories | H-4000 | PAP-pen |
| Lipofectamina i odczynnik Plus | Invitrogen | 11668-019; 11514-015 | Odczynnik do transfekcji i adiuwant do transfekcji |
| Matrigel | Corning | 354230 | Matryca powlekająca |
| Microtome | ThermoFisher Scientific | ||
| Normal Serum dla osła | Gibco | PCN5000 | |
| Opti-MEM | Gibco | 31985070 | Podłoże transfekcyjne |
| Plazmid PCDNA4 (szkielet) | Addgene | 41036 | |
| Roztwór penicyliny/streptomycyny | Gibco | 15140-122 | |
| SH-SY5Y komórki/studnia | ATCC | HTB-11 | |
| Substytut ksylenu | Labbox | 22L36504 | |
| Zeiss Axio Imager Apotome 2 | Carl Zeiss | System obrazowania fluorescencyjnego z oświetleniem | |
| &ALFA;-SYNUKLEINA PEPTYD | RPEPTIDE&NBSP; | S-1010-2 |
Bibliografia
- Yang, Y., Lu, B. Mitochondrial morphogenesis, distribution, and parkinson disease. Journal of Neuropathology and Experimental Neurology. 68 (9), 953-963 (2009).
- Schapira, A. H. Mitochondria in the aetiology and pathogenesis of Parkinson's disease. The Lancet Neurology. 7 (1), 97-109 (2008).
- Swerdlow, R. H. Mitochondria and mitochondrial cascades in alzheimer's disease. Journal of Alzheimer's Disease. 62 (3), 1403-1416 (2018).
- Hedrich, K., et al. type, and origin of Parkin mutations: Review and case studies. Movement Disorders. 19 (10), 1146-1157 (2004).
- Kahle, P. J., Haass, C. How does parkin ligate ubiquitin to Parkinson's disease. EMBO reports. 5 (7), 681-685 (2004).
- Dawson, T. M., Dawson, V. L. The role of parkin in familial and sporadic Parkinson's disease. Movement Disorders. 25, S32-S39 (2010).
- Pickrell, A. M., Youle, R. J. The Roles of PINK1, Parkin, and Mitochondrial Fidelity in Parkinson's Disease. Neuron. 85 (2), 257-273 (2015).
- Zhi, L., et al. Loss of PINK1 causes age-dependent decrease of dopamine release and mitochondrial dysfunction. Neurobiology of Aging. 75, 1-10 (2019).
- Bonifati, V., et al. DJ-1(PARK7), a novel gene for autosomal recessive, early onset parkinsonism. Neurological Sciences. 24 (3), 159-160 (2003).
- Chia, S. J., Tan, E. -K., Chao, Y. -X. Historical Perspective: Models of Parkinson's Disease. International Journal of Molecular Sciences. 21 (7), 2464(2020).
- Wilson, D. M., Cookson, M. R., Den Bosch, L. V. an, Zetterberg, H., Holtzman, D. M., Dewachter, I. Hallmarks of neurodegenerative diseases. Cell. 186 (4), 693-714 (2023).
- Moore, D. J., West, A. B., Dawson, V. L., Dawson, T. M. Molecular pathophysiology of Parkinson's disease. Annual Review of Neuroscience. 28 (1), 57-87 (2005).
- Olanow, C. W., Tatton, W. G. Etiology and pathogenesis of Parkinson's disease. Annual Review of Neuroscience. 22 (1), 123-144 (1999).
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Okamoto, K., Shaw, J. M. Mitochondrial Morphology and Dynamics in Yeast and Multicellular Eukaryotes. Annual Review of Genetics. 39 (1), 503-536 (2005).
- Malpartida, A. B., Williamson, M., Narendra, D. P., Wade-Martins, R., Ryan, B. J. Mitochondrial Dysfunction and Mitophagy in Parkinson's Disease: From Mechanism to Therapy. Trends in Biochemical Sciences. 46 (4), 329-343 (2021).
- Zou, W., et al. Nanoscopic quantification of sub-mitochondrial morphology, mitophagy and mitochondrial dynamics in living cells derived from patients with mitochondrial diseases. Journal of Nanobiotechnology. 19 (1), 136(2021).
- Navaratnarajah, T., Anand, R., Reichert, A. S., Distelmaier, F. The relevance of mitochondrial morphology for human disease. The International Journal of Biochemistry & Cell Biology. 134, 105951(2021).
- Zambon, F., et al. Cellular α-synuclein pathology is associated with bioenergetic dysfunction in Parkinson's iPSC-derived dopamine neurons. Human Molecular Genetics. 28 (12), 2001-2013 (2019).
- Cherubini, M., Lopez-Molina, L., Gines, S. Mitochondrial fission in Huntington's disease mouse striatum disrupts ER-mitochondria contacts leading to disturbances in Ca2+ efflux and Reactive Oxygen Species (ROS) homeostasis. Neurobiology of Disease. 136, 104741(2020).
- Parihar, M. S., Parihar, A., Fujita, M., Hashimoto, M., Ghafourifar, P. Alpha-synuclein overexpression and aggregation exacerbates impairment of mitochondrial functions by augmenting oxidative stress in human neuroblastoma cells. The International Journal of Biochemistry & Cell Biology. 41 (10), 2015-2024 (2009).
- Wiemerslage, L., Lee, D. Quantification of mitochondrial morphology in neurites of dopaminergic neurons using multiple parameters. Journal of Neuroscience Methods. 262, 56-65 (2016).
- Liu, Y. -T., et al. Mt-Keima detects PINK1-PRKN mitophagy in vivo with greater sensitivity than mito-QC. Autophagy. 17 (11), 3753-3762 (2021).
- Shoshan-Barmatz, V., Shteinfer-Kuzmine, A., Verma, A. VDAC1 at the intersection of cell metabolism, apoptosis, and diseases. Biomolecules. 10 (11), 1485(2020).
- Luk, K. C., et al. Pathological α-Synuclein transmission initiates parkinson-like neurodegeneration in nontransgenic mice. Science. 338 (6109), 949-953 (2012).
- Ryan, B. J., et al. REST protects dopaminergic neurons from mitochondrial and α-synuclein oligomer pathology in an alpha synuclein overexpressing BAC-transgenic mouse model. The Journal of Neuroscience. 41 (16), 3731-3746 (2021).
- Yamamoto, H., et al. Dual role of the receptor Tom20 in specificity and efficiency of protein import into mitochondria. Proceedings of the National Academy of Sciences. 108 (1), 91-96 (2011).
- Exner, N., Lutz, A. K., Haass, C., Winklhofer, K. F. Mitochondrial dysfunction in Parkinson's disease: molecular mechanisms and pathophysiological consequences. The EMBO Journal. 31 (14), 3038-3062 (2012).
- Grünewald, A., Kumar, K. R., Sue, C. M. New insights into the complex role of mitochondria in Parkinson's disease. Progress in Neurobiology. 177, 73-93 (2019).
- Baba, M., et al. Aggregation of alpha-synuclein in Lewy bodies of sporadic Parkinson's disease and dementia with Lewy bodies. The American journal of pathology. 152 (4), 879-884 (1998).
- Vázquez-Vélez, G. E., Zoghbi, H. Y. Parkinson's disease genetics and pathophysiology. Annual Review of Neuroscience. 44 (1), 87-108 (2021).
- Mahul-Mellier, A. -L., et al. The process of Lewy body formation, rather than simply α-synuclein fibrillization, is one of the major drivers of neurodegeneration. Proceedings of the National Academy of Sciences. 117 (9), 4971-4982 (2020).
- Ganguly, U., et al. Interaction of α-synuclein and Parkin in iron toxicity on SH-SY5Y cells: implications in the pathogenesis of Parkinson's disease. Biochemical Journal. 477 (6), 1109-1122 (2020).
- Ganjam, G. K., et al. Mitochondrial damage by α-synuclein causes cell death in human dopaminergic neurons. Cell Death & Disease. 10 (11), 865(2019).
- Martin, L. J., et al. Parkinson's Disease α-synuclein transgenic mice develop neuronal mitochondrial degeneration and cell death. The Journal of Neuroscience. 26 (1), 41-50 (2006).
- Choubey, V., et al. Mutant A53T α-Synuclein induces neuronal death by increasing mitochondrial autophagy. Journal of Biological Chemistry. 286 (12), 10814-10824 (2011).
- Chen, L., Xie, Z., Turkson, S., Zhuang, X. A53T Human α-synuclein overexpression in transgenic mice induces pervasive mitochondria macroautophagy defects preceding dopamine neuron degeneration. The Journal of Neuroscience. 35 (3), 890-905 (2015).
- Kamp, F., et al. Inhibition of mitochondrial fusion by α-synuclein is rescued by PINK1, Parkin and DJ-1. The EMBO Journal. 29 (20), 3571-3589 (2010).
- Nakamura, K., et al. Direct membrane association drives mitochondrial fission by the parkinson disease-associated protein α-synuclein. Journal of Biological Chemistry. 286 (23), 20710-20726 (2011).
- Park, J., et al. Abnormal mitochondria in a non-human primate model of MPTP-induced Parkinson's disease: Drp1 and CDK5/p25 signaling. Experimental Neurobiology. 28 (3), 414-424 (2019).
Przedruki i uprawnienia
