Platforma obrazowania "The Lifespan Machine" automatyzuje obserwację dużych populacji przez całe życie. Pokazujemy kroki wymagane do wykonania testów długości życia, odporności na stres, patogenezy i behawioralnego starzenia się. Jakość i zakres danych pozwalają naukowcom badać interwencje w procesie starzenia się pomimo obecności zmienności biologicznej i środowiskowej.
Artykuł metodologiczny
Wysokoprzepustowe testy behawioralnego starzenia się i długości życia przy użyciu maszyny Lifespan Machine
W tym artykule
Podsumowanie
Streszczenie
Genetycznie identyczne zwierzęta trzymane w stałym środowisku wykazują szeroki rozkład długości życia, odzwierciedlający duży niegenetyczny, stochastyczny aspekt starzenia się zachowany we wszystkich badanych organizmach. Ten komponent stochastyczny oznacza, że aby zrozumieć starzenie się i zidentyfikować skuteczne interwencje, które przedłużają życie lub poprawiają zdrowie, naukowcy muszą jednocześnie monitorować duże populacje zwierząt doświadczalnych. Tradycyjna ręczna ocena zgonu ogranicza przepustowość i skalę wymaganą do testowania hipotez na dużą skalę, co prowadzi do opracowania zautomatyzowanych metod wysokoprzepustowych testów długości życia. Lifespan Machine (LSM) to wysokowydajna platforma obrazowania, która łączy zmodyfikowane skanery płaskie z niestandardowym oprogramowaniem do przetwarzania obrazów i walidacji danych w celu śledzenia nicieni przez całe życie. Platforma stanowi duży postęp techniczny, generując dane o długości życia dużych populacji zwierząt o wysokiej rozdzielczości czasowej na niespotykaną dotąd skalę oraz z precyzją statystyczną i dokładnością równą testom ręcznym wykonywanym przez doświadczonych badaczy. Ostatnio LSM został dalej rozwinięty w celu ilościowego określenia zmian behawioralnych i morfologicznych obserwowanych podczas starzenia się oraz powiązania ich z długością życia. W tym miejscu opisujemy, jak zaplanować, uruchomić i przeanalizować zautomatyzowany eksperyment dotyczący długości życia przy użyciu LSM. Ponadto podkreślamy kluczowe kroki wymagane do pomyślnego zebrania danych behawioralnych i wysokiej jakości krzywych przeżycia.
Wprowadzenie
Starzenie się to złożony, wieloaspektowy proces charakteryzujący się spadkiem fizjologicznych funkcji organizmu, co prowadzi do wzrostu ryzyka chorób i śmierci w miarę upływu czasu1. Długość życia, mierzona jako czas od urodzenia lub początku dorosłości do śmierci, zapewnia jednoznaczny wynik starzenia się2 oraz pośredni, ale rygorystycznie ilościowy wskaźnik zastępczy do pomiaru względnego tempa starzenia się między populacjami3. Badania nad starzeniem się często opierają się na dokładnych pomiarach długości życia, podobnie jak w badaniach klinicznych, w celu porównania wyników między jedną populacją narażoną na interwencję a nienarażoną grupą kontrolną. Niestety, problemy z odtwarzalnością przenikają badania nad starzeniem się, czasami z powodu statystycznie słabych eksperymentów4, a często z powodu wrodzonej wrażliwości testów długości życia na subtelne zmiany w środowisku5. Solidne eksperymenty wymagają wielu powtórzeń dużych populacji, a proces ten szczególnie korzysta z eksperymentalnej skalowalności oferowanej przez automation6.
Rygorystyczne wymagania testów długości życia wynikają z nieprzewidywalności samego procesu starzenia. Osobniki izogeniczne żyjące w identycznych środowiskach wykazują różne czasy śmierci i tempo spadku fizjologicznego7, co sugeruje, że długość życia wiąże się z wysokim stopniem stochastyczności7,8. W związku z tym duże populacje są potrzebne do pomiaru ilościowych zmian w procesie starzenia, takich jak zmiany średniej lub maksymalnej długości życia, oraz do przezwyciężania uprzedzeń wynikających ze zmienności indywidualnej. Ponadto zdolność do wysokoprzepustowych testów żywotności ma kluczowe znaczenie dla wspierania badań kształtów krzywych przeżycia i modeli dynamiki starzenia się9.
Nicień Caenorhabditis elegans jest nieocenionym modelem do badań nad starzeniem się ze względu na jego krótką żywotność, podatność genetyczną i szybki czas generacji, co podkreśla jego przydatność do wysokoprzepustowych testów starzenia i długości życia. Tradycyjnie, długość życia w C. Elegans został zmierzony poprzez śledzenie zsynchronizowanej, małej populacji około 50-100 zwierząt w czasie na pożywkach stałych i zapisywanie czasu poszczególnych zgonów. W miarę starzenia się zwierząt i utraty mobilności, ręczne określanie czasu śmierci wymaga indywidualnego szturchania zwierząt i sprawdzania, czy nie ma małych ruchów głowy lub ogona. Jest to zwykle żmudny i pracochłonny proces, chociaż podjęto wysiłki, aby go przyspieszyć10,11,12. Co ważne, powolne procesy eksperymentalne utrudniają postęp w naszym zrozumieniu starzenia się i skuteczności badanych interwencji.
Aby sprostać wymaganiom starzejących się badań nad danymi ilościowymi, opracowano wiele technologii automatyzujących zbieranie danych, w tym niezwykły zakres podejść od komór mikroprzepływowych po skanery płaskie13,14,15,16,17,18. LSM różni się od innych metod obszerną optymalizacją pod kątem gromadzenia wysoce precyzyjnych i dokładnych danych o żywotności, co osiąga się dzięki opracowaniu starannych protokołów kalibracji sprzętu w połączeniu z obszernym pakietem oprogramowania, który pozwala użytkownikom walidować, poprawiać i udoskonalać automatyczne analizy13. Chociaż oprogramowanie może być w zasadzie stosowane do różnych metod obrazowania, w praktyce większość użytkowników korzysta ze skanerów płaskich zmodyfikowanych tak, aby umożliwić precyzyjną kontrolę nad temperaturą i wilgotnością otoczenia - czynnikami o krytycznym znaczeniu ze względu na ich duży wpływ na długość życia19. LSM wykonuje zdjęcia nicieni co 20 minut w odstępach od dni do miesięcy, w zależności od warunków środowiskowych i genotypu. Uzyskane dane mają znacznie wyższą rozdzielczość czasową w porównaniu z danymi z testów ręcznych, a zebrane obrazy zapewniają trwały wizualny zapis pozycji nicieni przez całe życie. Korzystając z metod uczenia maszynowego, czasy śmierci są automatycznie przypisywane do każdej osoby. Wyniki te można szybko, ręcznie zweryfikować za pomocą oprogramowania klienckiego o nazwie "Worm Browser". Dzięki swojemu sprzętowi i oprogramowaniu, LSM może generować krzywe przeżycia, które są statystycznie nie do odróżnienia od ręcznej oceny zgonów z rąk doświadczonych badaczy, z dodatkową zaletą w postaci zmniejszonego obciążenia pracą i wyższej skalowalności13.
Najnowsza wersja LSM pozwala również na badanie behawioralnego starzenia się poprzez zbieranie danych morfologicznych i behawioralnych przez całe życie nicieni i raportowanie ich wraz z długością życia każdego osobnika. W szczególności LSM rejestruje czas zaprzestania energicznego ruchu (VMC) każdego zwierzęcia, co jest punktem orientacyjnym często używanym do ilościowego określania "długości zdrowia" osobnika w odróżnieniu od jego długości życia. Poprzez jednoczesne gromadzenie danych dotyczących długości życia i behawioralnego starzenia się, LSM wspiera badanie interwencji, które mogą mieć zróżnicowany wpływ na różne fenotypowe wyniki starzenia się20. Do badania behawioralnego starzenia się można wykorzystać różne makroskopowo obserwowalne fenotypy, takie jak ruchy ciała lub pompowanie gardła21, tissue integrity22 oraz prędkość ruchu lub obracanie wywołane bodźcem17. Porównania między różnymi fenotypami starzenia się mogą pomóc w analizie struktury przyczynowej procesów starzenia. Na przykład porównanie VMC i długości życia zostało niedawno wykorzystane do scharakteryzowania dwóch odrębnych procesów starzenia się u C. elegans23.
Chociaż początkowo opracowany do pomiaru długości życia C. elegans, LSM wspiera zbieranie danych o przeżywalności i zachowaniu wielu gatunków nicieni, w tym C. brygsae, C. tropicalis, C. japonica, C. brenneri i P. pacificus23. Technologia ta ułatwia badanie wpływu interwencji biologicznych i środowiskowych na długość życia, odporność na stres i oporność na patogeny i może być połączona z narzędziami eksperymentalnymi, takimi jak celowane testy interferencji RNA lub systemy degradacji białek indukowanych auksyną. Do tej pory był używany w literaturze naukowej w szerokim zakresie zastosowań6,24,25,26,27,28,29,30.
Tutaj przedstawiamy krok po kroku protokół przeprowadzania eksperymentu z użyciem Maszyny do Długości Życia przy użyciu płytek agarowych, od początkowych etapów konfiguracji eksperymentalnej do wyniku wynikowych krzywych przeżycia. Charakterystyczną cechą LSM jest to, że wysiłek jest wysoce skoncentrowany na początku, co oznacza, że większość czasu badacza spędza podczas konfiguracji eksperymentalnej i, w niewielkim stopniu, podczas akwizycji po uzyskaniu obrazu. Zbieranie danych jest całkowicie zautomatyzowane przez cały czas trwania eksperymentu i pozwala badaczowi na "wolne ręce". Opisane tutaj kroki są wspólne dla wielu różnych typów testów przeżycia - ta sama konfiguracja eksperymentalna jest wykonywana dla testów długości życia, termotolerancji, stresu oksydacyjnego i patogenezy. W sekcji dotyczącej reprezentatywnych wyników omawiamy podzbiór danych z niedawno opublikowanego manuskryptu, aby zilustrować skuteczność potoku analizy i podkreślić najważniejsze kroki podczas analizy obrazu23.
Protokół
1. Wymagania sprzętowe i programowe
- Skanery płaskie: W zasadzie system LSM może być zaimplementowany przy użyciu różnych urządzeń obrazujących. Szczegółowe instrukcje dotyczące modyfikacji skanerów i ustawiania ostrości są dostępne w innym źródle13. Sprzęt LSM przedstawiono na Rysunku uzupełniającym 1.
- Narzędzia do analizy danych: Oprogramowanie LSM składa się z trzech współdziałających komponentów: pakietu oprogramowania do sterowania skanerem opartego na systemie Linux, pakietu do zarządzania metadanymi w przeglądarce internetowej oraz pakietu oprogramowania do analizy obrazów dla klientów systemów Windows i Linux. Należy zapoznać się z instrukcjami instalacji narzędzi programistycznych opublikowanymi w repozytorium GitHub (https://github.com/nstroustrup/lifespan).
- Oprogramowanie do wizualizacji i walidacji danych: Do planowania eksperymentów, walidacji analizy obrazów, ręcznej adnotacji ruchu nicieni oraz eksportu danych o przeżywalności należy użyć programu klienckiego Worm Browser. Pliki wykonywalne Worm Browser są dostarczane dla systemów Windows 7, Windows 8 i Windows 10, a w przypadku systemu Linux lub Apple iOS program Worm Browser jest kompilowany z kodu źródłowego. Przewodnik instalacyjny jest dostępny w wyżej wspomnianym repozytorium GitHub.
Rysunek uzupełniający 1: Sprzęt Lifespan Machine. Jedna jednostka skanera płaskiego z otwartą pokrywą, ukazująca załadowane płytki, które są umieszczone stroną skierowaną w dół w 16 otworach wyciętych w gumowej macie. Gumowa mata jest położona na powierzchni szklanego skanera. Etykiety z warunkami są zapisane na bokach płytek, aby uniknąć problemów podczas analizy obrazu. Taśma oznakowująca z numerem („1”) i/lub nazwą urządzenia („Jabba”) ułatwia późniejszą weryfikację lokalizacji próbki podczas pracy z wieloma skanerami. Więcej szczegółów na temat komponentów sprzętowych LSM znajduje się w innym miejscu13. Kliknij tutaj, aby pobrać ten plik.
2. Przygotowania przed dniem eksperymentu
- Kalibracja temperatury inkubatora: Temperatura otoczenia jest głównym czynnikiem determinującym długość życia C. elegans19. Aby uzyskać dokładne wyniki, należy przeprowadzać akwizycję obrazów w starannie skalibrowanej temperaturze, utrzymywanej na stałym poziomie przez cały czas trwania eksperymentu. W tym celu na kilka dni przed rozpoczęciem eksperymentu należy zmierzyć i skalibrować temperaturę powierzchni każdego skanera podczas pracy. Należy użyć precyzyjnych termopar, zgodnie z opisem w innym źródle31 (patrz: Tabela materiałów).
- Układ płytek w skanerze: Przed rozpoczęciem eksperymentu należy zaplanować optymalny układ płytek hodowlanych dla każdego skanera.
UWAGA: Celem tego działania jest uniknięcie wprowadzenia czynników zakłócających wynikających z różnic temperatury pomiędzy skanerami oraz w obrębie powierzchni każdego skanera. Skanery subtelnie różnią się średnią temperaturą powierzchni, ponadto wykazują niewielkie odchyłki temperatury na swojej powierzchni31.- Pozycja płytki w skanerze: Aby kontrolować te efekty termiczne w późniejszej analizie danych, należy zrandomizować wszelkie biologiczne współzmienne dotyczące pozycji skanera oraz ustandaryzować położenie płytek we wszystkich skanerach.
- Liczba próbek w skanerach: Przy zastosowaniu układu 16 mat gumowych (patrz: Tabela materiałów), należy umieścić cztery płytki na każdy warunek w każdym skanerze, korzystając z co najmniej czterech skanerów. Zapewnia to rozdzielenie każdego warunku pomiędzy wiele skanerów, dzięki czemu podczas analizy danych można zidentyfikować i usunąć zakłócenia wynikające z temperatury skanera13. Aby uprościć tę analizę, na każdym skanerze należy umieścić wspólną próbkę referencyjną (np. próbki typu dzikiego).
UWAGA: Zazwyczaj ze względu na rozmieszczenie wentylatorów skanera, płytki w prawym górnym rogu maty gumowej są bardziej narażone na wysychanie. Jeśli to konieczne, należy pozostawić to miejsce puste.
- Przygotowanie płytek i próbek
- Przygotowanie płytek hodowlanych: Aby zapewnić optymalne wysuszenie płytek hodowlanych do skanera (patrz: Tabela materiałów), należy wlać pożywkę agarową 4 dni przed naniesieniem nicieni. Choć ostrość skanera jest regulowana, co pozwala na dodawanie różnych objętości agaru do płytek, standardowa objętość płytki wynosi 8 mL.
UWAGA: W przypadku dużych eksperymentów pomocne może być nalewanie pożywki za pomocą pompy perystaltycznej. - Zasiewanie płytek: Płytki należy zasiać pożądaną kulturą bakteryjną co najmniej 2 dni przed rozpoczęciem eksperymentu, aby umożliwić prawidłowe wyschnięcie i wzrost trawnika bakteryjnego. Zazwyczaj 200 µL kultury bakteryjnej wystarcza do utworzenia trawnika, który będzie żywił 40 nicieni przez kilka tygodni.
UWAGA: Płytki stosowane do obrazowania są zazwyczaj szczelniej zamknięte niż standardowe szalki Petriego do hodowli; dlatego zaleca się zasiewanie i suszenie płytek w komorze z laminarnym przepływem powietrza, zazwyczaj przez około 1 h lub do momentu całkowitego wyschnięcia.
- Przygotowanie płytek hodowlanych: Aby zapewnić optymalne wysuszenie płytek hodowlanych do skanera (patrz: Tabela materiałów), należy wlać pożywkę agarową 4 dni przed naniesieniem nicieni. Choć ostrość skanera jest regulowana, co pozwala na dodawanie różnych objętości agaru do płytek, standardowa objętość płytki wynosi 8 mL.
- Obsługa nicieni
- Wielkość populacji: Liczba nicieni, których można niezawodnie obrazować na pojedynczej płytce, zależy od genotypu, wieku nicieni w momencie przenoszenia na płytki oraz ilości pokarmu dodanego do każdej płytki. W eksperymentach dotyczących długości życia, które rozpoczynają się we wczesnej dorosłości, należy nanieść około 40 osobników na płytkę. Liczba ta zapewnia wystarczającą ilość pokarmu i zapobiega tłoczeniu się zwierząt.
- Hodowla dużych populacji: Aby przygotować się do ekspansji i synchronizacji populacji, należy zacząć od liczby nicieni odpowiedniej dla wybranej metody synchronizacji (patrz. poniżej). Synchronizację zwierząt należy przeprowadzić w wieku maksymalnej produkcji jaj, co dla osobników typu dzikiego N2 przypada na 2. dzień dorosłości32.
UWAGA: Innym powodem synchronizacji populacji przy użyciu osobników w drugim dniu dorosłości jest usunięcie wieku matki jako czynnika przyczyniającego się do heterogeniczności populacji. Wykazano, że wiek matki u C. elegans wpływa na wiele cech sprawności potomstwa, przy czym osobniki typu dzikiego w 2. dniu produkują potomstwo „najwyższej jakości”33. - Przeprowadzanie synchronizacji wieku: Aby uzyskać dokładne wyniki, należy zsynchronizować wiek zwierząt jak najprecyzyjniej. W niniejszym protokole synchronizacja wieku jest przeprowadzana przy użyciu zmodyfikowanej obróbki podchlazynianem34. Inne metody mogą obejmować synchronizację poprzez zbiór jaj, zatrzymanie rozwoju larw L1 lub ręczne wybieranie larw L4.
UWAGA: W przypadku synchronizacji wieku za pomocą obróbki podchlazynianem należy spodziewać się uzyskania od trzech do czterech jaj z każdego dorosłego hermafrodyty. - Utrzymywanie populacji bez potomstwa: Populacje bez potomstwa utrzymuje się poprzez narażenie nicieni w późnym stadium L4 na 5-fluoro-2'-deoksyurydynę (FUdR)35.
UWAGA: W niskich dawkach FUdR jest letalny dla rozwijających się embrionów, nie powodując makroskopowo widocznych zmian w linii zarodkowej ani nie zmieniając tempa produkcji oocytów. Inne metody obejmują stosowanie mutantów sterylnych termicznie, używanie sterylizujących konstruktów RNAi lub po prostu oczekiwanie do czasu postreprodukcyjnej senescencji przed przeniesieniem nicieni na płytki do obrazowania. - Przenoszenie populacji: Przy przenoszeniu tysięcy zwierząt między płytkami standardowy protokół z użyciem drutu platynowo-irydowego staje się uciążliwy. Metody wykorzystujące zawiesinę ciekłą nicieni ułatwiają transfer i zwiększają jego wydajność. Nicienie należy zebrać w buforze M9 + Mg (Na2HPO4 42,27 mM, KH2PO4 22,05 mM, NaCl 85,56 mM, MgSO4 1 mM), zmniejszyć całkowitą objętość po osadzeniu się nicieni pod wpływem grawitacji, a następnie szybko przenieść nicienie na płytki używane do obrazowania.
UWAGA: Przenoszenie nicieni w zawiesinie ciekłej może prowadzić do zmienności w liczbie zwierząt przeniesionych na każdą płytkę. Należy starać się zachować stałą liczbę nicieni na każdej płytce, aby uniknąć zmienności eksperymentalnej. - Stosowanie interwencji: Przerywanie i ponowne uruchamianie akwizycji obrazów podczas eksperymentu komplikuje analizę obrazu (patrz. dyskusja). Dlatego eksperymenty LSM należy rozpoczynać dopiero po zakończeniu wszystkich niezbędnych czynności związanych z obsługą nicieni.
- Sterylizacja mat gumowych: Należy autoklawować dużą liczbę mat jednocześnie, zawijając każdą z nich oddzielnie w folię aluminiową.
UWAGA: Maty gumowe powinny być sterylizowane między użyciami, aby uniknąć nagromadzenia zanieczyszczeń grzybowych lub bakteryjnych. Większość typów gumy zazwyczaj stosowanych ulega degradacji pod wpływem agresywnej obróbki etanolem.
3. Przygotowanie w dniu eksperymentu
- Przygotowanie podkładki pod płytki i szkła skanera: Aby ułatwić manipulację płytkami, nie należy kłaść szalek Petri bezpośrednio na powierzchni skanera, lecz stabilizować je za pomocą gumowych mat wspartych na taflach szkła (patrz Tabela materiałów). Populacje są obrazowane przez to szkło, dlatego należy dbać o jego czystość oraz stosować powłoki zapobiegające parowaniu, hydrofobowe i sterylizujące (patrz Tabela materiałów).
- Przed umieszczeniem płytek w inkubatorze należy oczyścić powierzchnię szkła podkładowego z obu stron środkiem do szyb zapobiegającym parowaniu.
- Przed położeniem płytek na szkło podkładowe należy nałożyć ochronny hydrofobowy preparat do szkła (patrz Tabela materiałów), aby zminimalizować parowanie po stronie szkła, która będzie stykać się z gumową matą. Należy dokładnie rozprowadzić preparat i pozostawić go na szkle na 5-10 min przed przejściem do następnego kroku. Po aplikacji należy intensywnie wyczyścić powierzchnię, aby usunąć wszelkie pozostałości.
- Należy zastosować 70% etanol w celu zdezynfekowania powierzchni szkła, która będzie miała kontakt z gumową matą. Pozostawić na 1-2 min, a następnie usunąć szmatką lub ręcznikiem papierowym.
- Umieszczanie płytek w skanerach
- W pierwszej kolejności należy położyć autoklawowane gumowe maty na przygotowanym szkle podkładowym.
- Należy zdjąć pokrywki z płytek z załadowanymi nicieniami przeznaczonych do obrazowania i umieścić je w miejscach na gumowej macie, przylegając powierzchnią do szkła. Należy upewnić się, że gumowa mata ściśle przylega do wszystkich płytek, np. poprzez położenie na górze kolejnej tafli szkła i upewnienie się, że leży ona płasko, lub poprzez opukanie każdej płytki (luźne płytki lekko przesuną się i uderzą o szkło, wydając dźwięk, podczas gdy mocno zabezpieczone płytki nie będą się poruszać podczas opukiwania).
UWAGA: Warto indywidualnie oznaczyć każdą taflę szkła podkładowego taśmą oznakowawczą, podając informacje o zawartości płytki i przeznaczonym skanerze. Dane te mogą być wykorzystane po zakończeniu eksperymentu do rozstrzygnięcia ewentualnych niejasności dotyczących lokalizacji płytek. - Przed umieszczeniem płytek w skanerach należy odłączyć wentylatory skanera, aby chronić palce eksperymentatora podczas ładowania płytek.
- Należy delikatnie wsunąć płytki wraz z podtrzymującą je taflą szkła na powierzchnię skanera.
UWAGA: Należy unikać wywierania bezpośredniego nacisku na gumową matę, ponieważ powoduje to jej przesuwanie się po szkle podkładowym. Gdy maty się przesuwają, płytki często wysuwają się z maty. - Należy ponownie uruchomić wentylatory skanera i wizualnie potwierdzić, że wentylatory przednie i boczne są zasilane. Jeśli skanery są wyłączone, należy je w tym momencie włączyć.
4. Pozyskiwanie obrazu wstępnego
UWAGA: Kompleksowy schemat blokowy podsumowujący wszystkie kroki programowe podczas akwizycji obrazu przedstawiono na Rysunku 1.
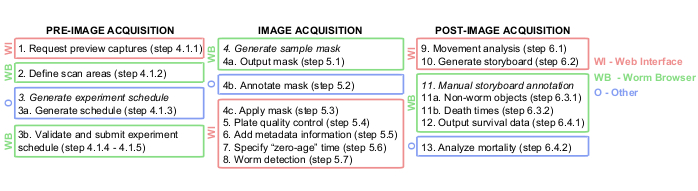
Rysunek 1: Graficzny przegląd potoku analizy obrazów Lifespan Machine. Kroki przed, w trakcie i po akwizycji obrazów są w dużej mierze wykonywane w interfejsie internetowym (WI, na czerwono) oraz w przeglądarce Worm Browser (WB, na zielono). Niektóre kroki są realizowane na innych platformach (O, na niebiesko), takich jak dokumenty TXT w kroku 3a, Photoshop lub odpowiednik w kroku 4b oraz JMP lub odpowiednik w kroku 13. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Konfiguracja akwizycji obrazów: Wygeneruj plik określający harmonogram eksperymentu oraz rozmieszczenie płytek na każdym skanerze w celu skonfigurowania akwizycji obrazów.
UWAGA: Plik ten zawiera ważne metadane, takie jak tytuł eksperymentu, częstotliwość przechwytywania obrazów oraz całkowity czas trwania eksperymentu. Zazwyczaj plik ten nie jest generowany de novo dla każdego eksperymentu, lecz zamiast tego wykorzystuje się pliki z poprzednich eksperymentów jako szablony. W przypadku pierwszego eksperymentu użytkownika udostępniany jest plik szablonu (Plik uzupełniający 1).- Przechwytywanie podglądu: określ położenie wszystkich płytek na każdym skanerze. Do przyspieszenia tego procesu udostępniono kilka narzędzi. Najpierw użyj skanera, aby uzyskać obraz całej powierzchni skanera, nazywany „przechwytywaniem podglądu”. Upewnij się, że obrazy z przechwytywania podglądu wyraźnie przedstawiają całą powierzchnię każdej płytki przeznaczonej do obrazowania (Rysunek 2A) bez smug i bez przycięcia krawędzi płytki.
- Korzystając z interfejsu internetowego, znajdź Pozyskiwanie obrazów sekcja strony głównej, a następnie należy przejść do łącza o nazwie Urządzenia do akwizycji obrazu i serwery obrazówNa tej stronie kliknij przycisk opisany jako Wyszukiwanie nowych urządzeń (t.j. skanerów) w Serwery przechwytywania i przetwarzania obrazów pole. Monitoruj postępy serwera w wykrywaniu skanerów, klikając w [dziennik] połączenie obok serwera.
UWAGA: Przed wykonaniem tego kroku należy upewnić się, że wymagane skanery są włączone i podłączone do serwera. - Na tej samej stronie interfejsu internetowego należy upewnić się, że każdy skaner podłączony do serwera pojawia się na Urządzenia do rejestracji obrazu pole. Etykieta „Brak” (Missing) w sekcji „Aktualny status” (Current status) nie jest już wyświetlana, jeśli urządzenie zostało pomyślnie wykryte. Zaznacz pole wyboru odpowiadające każdemu skanerowi zawierającemu nowo załadowane płytki.
- Na dnie Urządzenia do akwizycji obrazu sekcja, kliknij w Podgląd przechwytywania żądań przycisk. W ciągu 1 lub 2 minut skanery powinny się zaświecić i rozpocząć skanowanie.
UWAGA: Początkową pozycję szklanych płyt podkładowych często należy skorygować, aby wszystkie płytki znalazły się w zakresie widoczności. Pozycje można poprawić, analizując obrazy z podglądu i korygując położenie płytek, a następnie ponownie wykonując obrazy podglądu. Jeśli skanowanie przebiega bardzo powoli (kilka minut dla jednego skanu podglądu) lub jeśli obrazy z podglądu zawierają długie białe smugi, jest to sygnał, że płytka, gumowa mata lub inny obiekt blokuje światło w obszarze kalibracji skanera (oznaczonym białymi strzałkami na powierzchni skanera). Wszystkie obiekty należy przemieścić w taki sposób, aby w tym obszarze znajdowała się wyłącznie szklana płyta podkładowa.
- Korzystając z interfejsu internetowego, znajdź Pozyskiwanie obrazów sekcja strony głównej, a następnie należy przejść do łącza o nazwie Urządzenia do akwizycji obrazu i serwery obrazówNa tej stronie kliknij przycisk opisany jako Wyszukiwanie nowych urządzeń (t.j. skanerów) w Serwery przechwytywania i przetwarzania obrazów pole. Monitoruj postępy serwera w wykrywaniu skanerów, klikając w [dziennik] połączenie obok serwera.
- Definiowanie obszarów skanowania: Wykonaj następujące kroki w programie Worm Browser, aby przeanalizować obrazy z podglądu i połączyć je w jeden obraz kompozytowy, który służy do określenia położenia każdej płytki na potrzeby analizy danych. Upewnij się, że otrzymany obraz wygląda podobnie do Rysunek 2B.
- Najpierw, korzystając z Worm Browser, otwórz każdy obraz podglądu, wybierając odpowiednią opcję z menu Plik > Otwórz obrazi wybierz żądany obraz.
- Na każdym obrazie kliknij, aby zaznaczyć kolumny dla obszarów z płytkami (jeśli mata gumowa posiada 16 miejsc na płytki, zaznacz 4 kolumny).
UWAGA: Obszary skanowania należy określać jako wysokie kolumny (a nie szerokie rzędy), ponieważ skaner rejestruje obrazy wolniej w przypadku obszarów o większej szerokości, co prowadzi do powstawania rozmytych obrazów ze względu na ruch nicieni. - Po zdefiniowaniu wszystkich obrazów należy wyeksportować specyfikacje obszarów na dysk, wybierając odpowiedni element menu Pozyskiwanie obrazów > Zdefiniuj obszary skanowania > Zapisz wybrane obszary skanowania na dysku oraz wybierając pożądaną lokalizację.
- Wygeneruj harmonogram eksperymentu:
- Zgodnie z formatem Plik uzupełniający 1stworzyć plik zawierający nazwę eksperymentu, fizyczne położenie każdej kolumny na skanerach (skopiowane z pliku obszarów skanowania wygenerowanego w kroku 4.1.2.3), całkowity czas trwania eksperymentu oraz częstotliwość przechwytywania obrazów, a następnie zapisać go zarówno w formacie TXT, jak i XML.
- Następnie w Worm Browser kliknij Pozyskiwanie obrazów > Prześlij harmonogram eksperymentui wybierz wygenerowany plik XML. Worm Browser zapyta, czy wyświetlić podsumowanie harmonogramu, czy uruchomić eksperyment. Kliknij w Wygeneruj plik podsumowania.
- Weryfikacja pliku podsumowania: Po przesłaniu harmonogramu eksperymentu, Worm Browser wygeneruje podsumowanie harmonogramu. Podsumowanie to zostanie wyświetlone na ekranie oraz zapisane na dysku. Należy je przeczytać i zweryfikować daty zaplanowanych akwizycji, a także lokalizację, nazwę i liczbę skanerów.
- Prześlij harmonogram eksperymentu: Po upewnieniu się, że plik podsumowania jest poprawny, ponownie załaduj do Worm Browser plik XML z harmonogramem eksperymentu, wybierając odpowiednią opcję z menu Pozyskiwanie obrazów > Prześlij harmonogram eksperymentuWorm Browser ponownie zapyta, czy wygenerować podsumowanie harmonogramu, czy uruchomić eksperyment. Tym razem należy kliknąć Uruchom! .
UWAGA: Kilka minut po uruchomieniu eksperymentu zaleca się skorzystanie z interfejsu internetowego, aby potwierdzić, że eksperyment został pomyślnie przesłany, a wszystkie skanery zbierają dane. W przypadku dużych eksperymentów często zdarza się pominięcie pierwszych kilku skanów. - Organizowanie eksperymentów w interfejsie sieciowym: Obciążony klaster skanerów może generować setki zestawów danych eksperymentalnych gromadzonych przez wielu różnych użytkowników. Aby uporządkować tę listę, należy przypisać eksperymenty do osobnych grup, na przykład odpowiadających nazwisku użytkownika odpowiedzialnego za dany eksperyment.
- Utwórz nową grupę lub zmodyfikuj istniejącą: Twórz nowe grupy w interfejsie internetowym, klikając w Zarządzanie grupami eksperymentalnymi pod polem o nazwie Akwizycja obrazuNa nowej stronie, która się pojawi, wpisz żądaną nazwę w Utwórz nową grupę i kliknij w UtwórzAby zmienić nazwę istniejącej grupy, w tym samym polu wybrano żądaną grupę obok Modyfikuj istniejącą grupęa następnie wybierz Modyfikuj.
- Przypisywanie eksperymentów do grupy: Aby przypisać nowe eksperymenty do konkretnej grupy, należy przejść do interfejsu internetowego i odnaleźć wybrany eksperyment, który domyślnie zostanie przypisany do Brak grupy grupa na dole listy eksperymentów. Kliknij łącze po prawej stronie sekcji eksperymentu, w miejscu, gdzie widnieje napis Edytuja następnie z listy rozwijanej należy wybrać nazwę grupy do wykorzystania. Następnie należy wybrać Zapisz.
- Anuluj eksperyment:
UWAGA: LSM będzie pracować autonomicznie aż do momentu wykonania końcowych skanów określonych w harmonogramie eksperymentu. Po zakończeniu harmonogramu eksperymentalnego LSM domyślnie będzie kontynuować zbieranie skanów, ale natychmiast odrzuci dane obrazowe w procesie zwanym autoskanowanieAutomatyczne skanowania te są przeprowadzane w celu zapobieżenia wyłączaniu się i chłodzeniu skanerów oraz utrzymania standardnego profilu temperatury, aby wyłączenie pozostałych skanerów nie wpływało na inne eksperymenty prowadzone w tej samej przestrzeni (ale będące częścią innego badania).- Zatrzymywanie automatycznego skanowania: Aby zatrzymać automatyczne skanowanie podczas trwającego eksperymentu w interfejsie internetowym, należy kliknąć Edytuj obok wybranego eksperymentu, następnie Anuluj oczekujące skanowania, i wybierz Anuluj zaplanowane akwizycje.
- Przechwytywanie podglądu: określ położenie wszystkich płytek na każdym skanerze. Do przyspieszenia tego procesu udostępniono kilka narzędzi. Najpierw użyj skanera, aby uzyskać obraz całej powierzchni skanera, nazywany „przechwytywaniem podglądu”. Upewnij się, że obrazy z przechwytywania podglądu wyraźnie przedstawiają całą powierzchnię każdej płytki przeznaczonej do obrazowania (Rysunek 2A) bez smug i bez przycięcia krawędzi płytki.
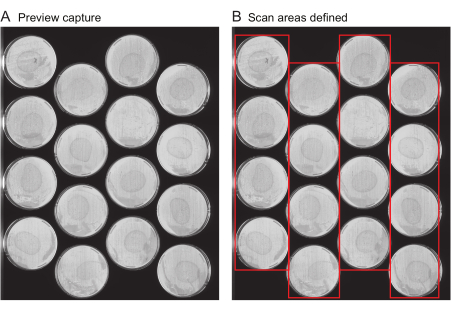
Rycina 2: Obraz podglądu i wybór obszaru skanowania. (A) Dla każdego skanera w eksperymencie generowany jest obraz podglądu. (B) Wybór jednego rzędu płytek naraz (czerwone ramki), co zwiększa prędkość skanowania i zapobiega rozmyciu obrazu wywołanemu ruchem nicieni w wyniku skanowania zbyt szerokich obszarów. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
5. Akwizycja obrazu
UWAGA: Następujące kroki można wykonać zarówno w trakcie trwania eksperymentu, jak i po jego zakończeniu.
- Wygeneruj plik maski eksperymentu: surowe dane obrazowe ze skanerów zawierają wiele obszarów, których nie trzeba przetwarzać (obszary poza płytkami). Aby skupić analizę na każdej płytce z osobna, tworzy się „maskę”, która określa obszar zajmowany przez każdą płytkę na każdym skanerze. Wygeneruj tę maskę, zaznaczając pozycję każdej płytki jako nakładkę na obrazach zebranych przez skanery.
- W programie Worm Browser wybierz żądany eksperyment, przechodząc do File > Select Current Experiment, a następnie kliknij nazwę eksperymentu.
- Ponownie w Worm Browser wybierz Image Acquisition > Define Sample Masks > Generate Experiment Mask Composite i zapisz maskę w wybranym miejscu. Upewnij się, że wynikowy plik wygląda podobnie do Ryc. 3A.
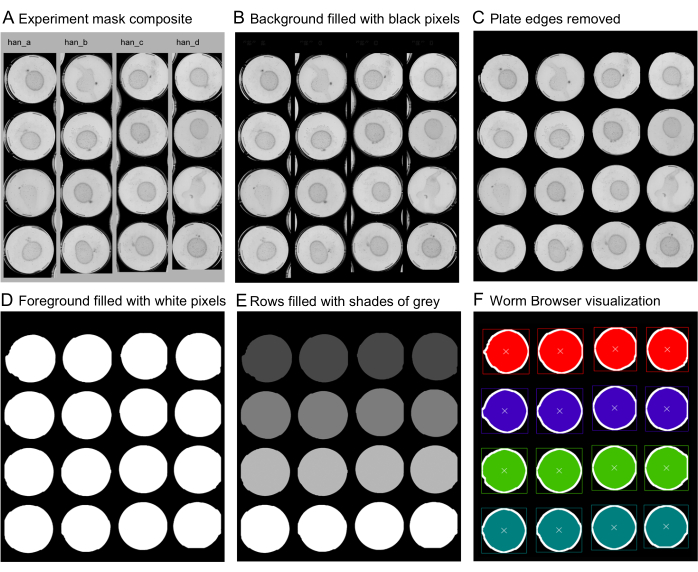
Rycina 3: Specyfikacja lokalizacji płytek dla każdego skanera przy użyciu przykładowych masek. Aby zapewnić niezależną analizę płytek w ramach wyborów kolumn przedstawionych na Rycini 1, poszczególne płytki muszą zostać zidentyfikowane poprzez wygenerowanie kompozytowej maski obrazu. (A) Zrzut ekranu skanów z urządzeń jest otwierany w oprogramowaniu do edycji grafiki (zwróć uwagę na nazwę skanera „han” nad zaznaczonym obszcem oraz oznaczenia „a-d” odnoszące się do poszczególnych kolumn). (B) Poszczególne kroki generowania maski w celu oznaczenia lokalizacji każdej płytki w kompozycie wymagają ustawienia tła na kolor czarny, (C) usunięcia poszarpanych krawędzi oraz krawędzi płytek niewybranych poprzez rozszerzenie, a następnie zwężenie tła, oraz (D) wybrania płytek na pierwszym planie i całkowitego wypełnienia tych obszarów białymi pikselami. (E) Aby LSM mógł rozpoznać poszczególne płytki w zeskanowanych rzędach, każdy biały obszar w rzędzie jest wypełniany innym odcieniem szarości, zazwyczaj o rosnącej jasności. (F) Na tym etapie maska zostaje zapisana (kompresja LZW bez określonych warstw w przypadku generowania w programie Photoshop). Następnie maska jest skanowana przez Worm Browser, a oprogramowanie generuje jej wizualizację. Prawidłowa wizualizacja maski powinna wyświetlać jeden zdefiniowany kwadrat na każdą płytkę z małym krzyżykiem w centrum oraz inny kolor dla każdego rzędu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Adnotuj maskę eksperymentu: otwórz plik wygenerowany w poprzednim kroku w programie do edycji grafiki (takim jak Photoshop lub GIMP), aby zaznaczyć położenie każdej płytki na obrazie. Poniżej opisano przegląd wszystkich etapów edycji maski w programie Photoshop.
- W programie Photoshop wybierz narzędzie Fill (Wypełnienie) z tolerancją ustawioną na zero, zaznaczoną opcją przyległości (contiguous) i wyłączonym wygładzaniem krawędzi (anti-aliasing). Kliknij szare tło, aby całkowicie zmienić je na kolor czarny. Upewnij się, że wynikowy obraz wygląda podobnie do Rysunku 3B.
- Użyj narzędzia magiczna różdżka, aby zaznaczyć czarne tło, z wyłączonym wygładzaniem krawędzi, tolerancją ustawioną na zero i zaznaczoną opcją przyległości. Aby wygładzić krawędzie, rozszerz zaznaczone tło o 30 pikseli, klikając Select > Modify > Expand (Zaznaczenie > Zmodyfikuj > Rozszerz). Następnie zmniejsz zaznaczenie o 20 pikseli w menu Select > Modify > Contract (Zaznaczenie > Zmodyfikuj > Zmniejsz). Upewnij się, że wynikowy obraz wygląda podobnie do Rysunku 3C.
- Wypełnij wygładzone tło całkowicie czarnymi pikselami, na przykład ustawiając tolerancję narzędzia Fill na 255 i wypełniając wybrany obszar. Następnie kliknij Select > Inverse (Zaznaczenie > Odwróć), aby odwrócić zaznaczenie i wybrać pierwszy plan. Wypełnij nowy obszar całkowicie białymi pikselami, np. ustawiając tolerancję narzędzia wypełniania na 255 i wypełniając obszar kolorem białym. Upewnij się, że wynikowy obraz wygląda podobnie do Rysunku 3D.
- Aby rozdzielić każdą płytkę w obrębie jednego obszaru, wypełnij każdy rząd innym gradientem szarości o rosnącej jasności. Można to zrobić za pomocą narzędzia Wypełnienie, wybierając pożądany kolor przy tolerancji ustawionej na 0. Upewnij się, że wynikowy obraz wygląda podobnie do Rysunku 3E. Zapisz go z kompresją LZW, nie określając „warstw” (Layers).
UWAGA: Kolejność płytek jest określona przez kolor przypisanych obszarów. Aby ponumerować płytki 1-4 w kolejności od góry do dołu, przypisz kolory o rosnącej jasności dla każdego rzędu. - W programie Worm Browser wybierz Image Acquisition > Define Sample Masks > Analyze Plate Locations Drawn on Experiment Mask Composite i wybierz plik wygenerowany w poprzednim kroku. Oprogramowanie poświęci teraz kilka chwil na analizę przesłanej maski.
- Worm Browser wyświetli wizualizację maski. Sprawdź maskę pod kątem potencjalnych błędów w pliku. Upewnij się, że każdy rząd płytek jest wypełniony innym kolorem i obramowany kolorowym prostokątem. Upewnij się, że wynikowy obraz wygląda podobnie do Rysunku 3F.
UWAGA: Jeśli jedna płytka przedstawia dwa lub więcej kół, lub jeśli dwa koła mają ten sam kolor, wróć do kroku 5.2, aby poprawić plik maski, a następnie ponownie załaduj go do Worm Browser. - Po zweryfikowaniu poprawności wizualizacji maski w programie Worm Browser wybierz Image Acquisition > Define Sample Masks > Submit Analyzed Experiment Mask Composite to Cluster. Serwer analizy obrazów przeanalizuje teraz położenie wszystkich płytek w eksperymencie.
- Zastosuj maskę: LSM wykorzystuje maski do podziału surowych danych obrazu na pojedyncze płytki. Aby rozpocząć ten proces, zaplanuj zadanie zastosowania maski za pomocą interfejsu internetowego.
- Przed przesłaniem zadania upewnij się, że wszystkie skanery zidentyfikowały obszary w masce. Przejdź do strony głównej interfejsu internetowego, zlokalizuj nazwę eksperymentu i kolumnę o nazwie Image Analysis, a następnie kliknij Run Analysis. Sprawdź, czy wszystkie urządzenia w sekcji Experiment Samples mają zidentyfikowane obszary.
- Aby zastosować maskę, w tym samym interfejsie kliknij New Job for All Samples. W polu o nazwie Schedule a Job for Individual Images zaznacz pole Apply Mask, a następnie Save Job.
UWAGA: Maska zostanie zastosowana do wszystkich obrazów już zarejestrowanych, a także do wszystkich obrazów zarejestrowanych w przyszłości.
- Wykonaj kontrolę jakości płytek:
UWAGA: Płytki dotknięte kontaminacją, wysuszeniem lub zaparowaniem są odrzucane na tym etapie analizy obrazu. Przykład płytek kontaminowanych, wysuszonych, zaparowanych i optymalnych przedstawiono na Rysunku 4. Inne powody odrzucenia to głodzenie, puste płytki lub larwy w populacjach sterylnych. Nieprawidłowe płytki często zawierają złożone kształty, które maszyna może błędnie zinterpretować jako nicienie. Ważne jest wykluczenie nieprawidłowych płytek na tym etapie, aby zapobiec długiemu czasowi przetwarzania w późniejszych krokach analizy obrazu.- Używając interfejsu internetowego, wyklucz płytki do odrzucenia, odnajdując odpowiedni eksperyment oraz kolumnę o nazwie Annotate Plate Information i wybierając opcję By Image.
- Aby przejrzeć płytki, kliknij Display images.
UWAGA: Jeśli etap wyświetlania obrazów nie działa poprawnie, serwer Linux może być niewłaściwie skonfigurowany. Instrukcje dotyczące konfiguracji znajdują się w przewodniku instalacji oprogramowania w wyżej wspomnianym repozytorium GitHub. - Aby wykluczyć płytki, zaznacz pole Censor, wybierz opcję z listy rozwijanej o nazwie Reason Censored, a następnie kliknij Save dla każdej strony.
- Dodaj informacje o metadanych: Metadane opisują zawartość każdej płytki w eksperymencie. Informacje te są następnie włączane do wszystkich generowanych później plików z danymi statystycznymi.
- Aby dodać informacje o metadanych dotyczące szczepu, genotypu, temperatury, pożywienia itp., przejdź do strony głównej interfejsu internetowego, znajdź odpowiedni eksperyment i kolumnę o nazwie Annotate Plate Information, a następnie wybierz By Position.
- Wprowadź etykiety i wybierz skanery, dla których mają zostać zapisane metadane, klikając Save to Devices w lewym dolnym rogu.
- Aby ponownie wykorzystać metadane między różnymi skanerami bez konieczności ponownego wpisywania wszystkich etykiet, przejdź do Load from Device w prawym górnym rogu, wybierz skaner, z którego chcesz przenieść metadane, i kliknij Load from Device.
- Określ czas „zero-age” (wiek zero): Domyślnie LSM mierzy czas w odniesieniu do początku epoki UNIX. Rzadko jest to wygodne, dlatego wymagane jest określenie czasu referencyjnego (na przykład daty, w której wszystkie osobniki wykluły się lub osiągnęły dojrzałość).
- Aby określić informacje o czasie wieku zero, przejdź do strony głównej interfejsu internetowego, znajdź odpowiedni eksperyment i kolumnę o nazwie Image Analysis, a następnie wybierz Run Analysis.
- Na nowej stronie, która się pojawi, wybierz New Job for All Regions. W polu o nazwie Update Region Information wybierz Time at which Animals had 0 Age, wprowadź informacje, a następnie kliknij Update Selected Fields.
UWAGA: Jeśli nie wszystkie zwierzęta mają ten sam czas wieku zero, wybierz zamiast tego New Job for Specific Animal Types i powtórz powyższe kroki dla każdej grupy.
- Zaplanuj detekcję nicieni: LSM może zautomatyzować detekcję każdego nicienia na podstawie jego położenia na płytce.
- Aby rozpocząć automatyczną detekcję nicieni dla każdego obrazu, przejdź do strony głównej interfejsu internetowego, znajdź odpowiedni eksperyment i kolumnę o nazwie Image Analysis, a następnie wybierz Run Analysis.
- Na nowej stronie, która się pojawi, kliknij New Job for All Regions, następnie w polu o nazwie Schedule a Job for Individual Images zaznacz pola Median Filter > Threshold > Worm Detection > Save Job. Zadania te zostaną zastosowane do wszystkich zarejestrowanych obrazów z przeszłości i przyszłości.
UWAGA: Aby zaplanować zadanie tylko dla konkretnego szczepu lub warunku, kliknij zamiast tego Jobs for Specific Animal Types. Klasyfikacja obiektów jest wykonywana przy użyciu modeli SVM określonych w plikach przechowywanych w podfolderze Models katalogu pamięci długotrwałej LSM. Zestawy parametrów detekcji nicieni V2.0 dla LSM można pobrać z repozytorium GitHub.
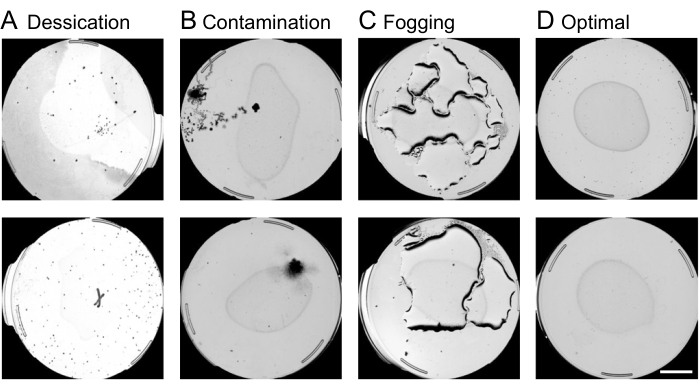
Rycina 4: Kontrola jakości płytek za pomocą interfejsu internetowego. Odsiewanie nieoptymalnych płytek w interfejsie internetowym przed analizą ruchu nicieni jest kluczowe dla przyspieszenia procesu przetwarzania obrazów. Przykłady płytek kwalifikujących się do usunięcia obejmują stany takie jak (A) wysychanie, (B) zanieczyszczenie lub (C) zaparowanie. (D) Optymalne płytki do włączenia w dalszą analizę. Na obrazie podglądu naniesiono pasek skali o długości 10 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
6. Po akwizycji obrazów
UWAGA: Po zakończeniu detekcji nicieni wszystkie dane zebrane podczas eksperymentu muszą zostać zagregowane w czasie, aby śledzić każdą osobniczą jednostkę w trakcie jej cyklu życia i określić czas śmierci wszystkich osobników. Należy poczekać, aż wszystkie zwierzęta biorące udział w eksperymencie zginą i aż wszystkie zadania detekcji nicieni zostaną ukończone, a następnie wykonać następujące kroki:
- Zaplanuj analizę ruchu:
- Analiza ruchu integruje wszystkie dane eksperymentalne w czasie, aby oszacować momenty śmierci. Aby rozpocząć to zadanie, przejdź do strony głównej interfejsu WWW i znajdź odpowiedni eksperyment w kolumnie o nazwie Image Analysis. Wybierz łącze Run Analysis.
- Na nowej stronie, która się pojawi, kliknij łącze New Job for All Regions, a następnie z menu rozwijanego Schedule a Job for an Entire Region wybierz opcję Analyze Worm Movement i kliknij przycisk Save Job.
- Serwer akwizycji obrazów LSM automatycznie rozpocznie analizę ruchu na wszystkich płytkach.
UWAGA: Analiza ruchu jest najbardziej czasochłonnym zadaniem. Na nowoczesnym procesorze wielordzeniowym analiza każdej płytki z eksperymentu trwającego miesiąc może zająć 20 min lub więcej.
- Wygeneruj storyboard: Po zakończeniu analizy ruchu storyboard LSM umożliwia użytkownikom ręczną walidację automatycznych wyników i upewnienie się, że oprogramowanie przyjmuje poprawne założenia dotyczące morfologii i zachowania nicieni.
- Na stronie głównej interfejsu WWW zlokalizuj wybrany eksperyment i kolumnę o nazwie Image Analysis, a następnie wybierz Run Analysis. Na nowej stronie kliknij New Experiment Job. Następnie w sekcji Schedule a Job for an Entire Region wybierz Generate Animal Storyboard i kliknij Save Job.
- Po zakończeniu generowania storyboardu przez LSM przejdź do Worm Browser i wybierz odpowiedni eksperyment. W menu głównym wybierz Validation > Browse Entire Experiment > Immediately after Each Worm's Death.
- Opisz storyboardy w Worm Browser: Typowy storyboard w Worm Browser powinien wyglądać jak na Rysunku 5.
- Opisz obiekty „niebędące nicieniami”
UWAGA: Każdy obiekt wykryty podczas ruchu jest wyświetlany na storyboardzie, uporządkowany według szacowanego czasu śmierci. Jeśli użytkownik nie określi inaczej, każdy obiekt zostanie uwzględniony w wynikowych krzywych przeżywalności. Klasyfikacja obiektów w LSM jest celowo skalibrowana tak, aby uzyskać wysoką częstotliwość wyników fałszywie dodatnich, co stanowi kompromis w celu zminimalizowania liczby niewykrytych nicieni. Wykluczenie obiektów niebędących nicieniami jest istotne dla uzyskania wysokiej jakości krzywych przeżywalności (patrz: reprezentatywne wyniki). Duża liczba obiektów niebędących nicieniami znajduje się zazwyczaj na pierwszej i ostatniej stronie storyboardu, co pozwala na ich szybkie, masowe ręczne wykluczenie.- Aby wykluczyć obiekty niebędące nicieniami na storyboardzie, kliknij raz prawym przyciskiem myszy na obraz obiektu. Wykluczony obiekt zostanie teraz obramowany białą ramką. Aby wykluczyć wiele obiektów jednocześnie, przytrzymaj klawisz Ctrl i kliknij raz prawym przyciskiem myszy na dowolnym obiekcie – wówczas wszystkie obiekty na stronie storyboardu zostaną wykluczone.
- Po wykluczeniu obiektu z analizy można go ponownie uwzględnić, klikając dwa razy prawym przyciskiem myszy.
- Aby zapisać adnotacje wprowadzone podczas opisywania storyboardu, kliknij przycisk Save. Zaleca się częste zapisywanie postępów podczas adnotowania.
- Opisz momenty śmierci:
UWAGA: Bez interwencji użytkownika LSM dokładnie szacuje momenty śmierci dla większości populacji. Zaleca się jednak rutynowe potwierdzanie dokładności automatycznych wyników poprzez ręczną walidację losowej podgrupy osobników z każdego eksperymentu. Szczególną uwagę należy zwrócić na osobniki najkrótszym i najdłuższym żyjące, ponieważ błędy w analizie automatycznej mają tendencję do skupiania się w tych grupach.- Kliknij raz lewym przyciskiem myszy na dowolny obiekt na storyboardzie, aby otworzyć nowe okno wyświetlające szczegółowe informacje z serii czasowej o tym obiekcie. Okno to umożliwia przegląd wszystkich obrazów obiektu zebranych w trakcie eksperymentu, a także ilościową ocenę dynamiki ruchu i morfologii obiektu. Korzystając z tego samego interfejsu, ręcznie opisz momenty śmierci. Interfejs adnotacji czasu śmierci pokazano na Rysunku 6.
- Aby ręcznie opisać momenty śmierci, kliknij lewym przyciskiem myszy na dolnym pasku w punkcie odpowiadającym czasowi śmierci. Użyj spacji oraz strzałek prawego lub lewego klawisza klawiatury, aby przemieszczać się między klatkami czasowymi, lub kliknij bezpośrednio na pasku w pożądanym punkcie czasowym.
UWAGA: Wizualizacja przedstawia stan ruchu zwierząt w czasie, przypominając poziomy wykres słupkowy z osią x wyznaczającą czas. Różowy/fioletowy odcinek wskazuje okres, w którym obiekt porusza się intensywnie, żółty wskazuje słaby ruch, czerwony wskazuje zwierzęta nieruchome, a zielony wskazuje okres rozszerzenia powiązanego ze śmiercią. Nicienie wykazują charakterystyczne zdarzenia morfologiczne związane ze śmiercią: stopniowy skurcz ciała, który zazwyczaj następuje przed śmiercią, a następnie szybkie rozszerzenie ciała w trakcie lub bezpośrednio po śmierci (Rysunek 6B). Obiekty niebędące nicieniami, takie jak kurz lub cienie, nie wykazują takiej dynamiki rozmiaru ciała, lecz zazwyczaj wykazują liniową, stopniową zmianę rozmiaru i intensywności w czasie. Różnice w dynamice rozmiaru ciała stanowią szybką i prostą metodę błyskawicznej klasyfikacji i ręcznego wykluczania. - W zależności od podejścia analitycznego, czas śmierci można uznać albo za moment ustania ruchu (początek czerwonego paska w wizualizacji ruchu), albo za moment rozszerzenia powiązanego ze śmiercią (zielony pasek w wizualizacji ruchu). Aby ręcznie opisać zdarzenia skurczu i rozszerzenia, kliknij prawym przyciskiem myszy na dolnym pasku w wybranym punkcie czasowym.
- W kliencie Worm Browser dostępne są podstawowe wizualizacje danych o śmiertelności. Krzywe przeżywalności i diagnostyka czasu śmierci są wyświetlane dla każdej populacji obecnej na storyboardzie (Rysunek 7). Po lewej stronie storyboardu znajdują się krzywe przeżywalności, a po prawej wykres rozrzutu porównujący czas ustania intensywnego ruchu (VMC) z czasem śmierci dla każdego osobnika.
UWAGA: Możliwe jest grupowanie tych wyników według różnych parametrów eksperymentalnych poprzez filtrowanie na dolnym pasku dla warunków takich jak konkretne szczepy, skanery lub płytki. Pojedyncze nicienie można wybrać na podstawie ich czasu śmierci, klikając lewym przyciskiem myszy w poszczególne punkty na wykresie VMC w funkcji czasu śmierci.
- Opisz obiekty „niebędące nicieniami”
- Zapisywanie danych o śmiertelności na dysku: LSM generuje dane o śmiertelności w formie plików CSV. Wykreśl uzyskane krzywe przeżywalności i przeanalizuj je w dowolnym oprogramowaniu statystycznym, takim jak R, SAS, STATA lub JMP.
- Aby wygenerować te pliki, wybierz eksperyment w Worm Browser, a w menu wybierz Data Files, Death Times, a następnie kliknij Generate Death Times for Current Experiment. LSM wygeneruje plik wyjściowy z danymi o przeżywalności eksperymentu, który zostanie zapisany w katalogu wyników.
- Jeśli wykonano ręczne adnotacje na storyboardzie, pojawi się komunikat w Worm Browser z pytaniem o sposób postępowania z adnotacjami ręcznymi. Kliknij „Immediately”, aby uwzględnić adnotacje ręczne w wyjściowym pliku z czasami śmierci.
UWAGA: Pliki z danymi o śmiertelności są zapisywane w katalogu wyników określonym w pliku imageserver.ini. Zapisywanych jest wiele plików, ale najczęściej używaną wersją jest „survival_simple/survival=machine_hand”, która zawiera wszystkie adnotacje ręczne wprowadzone za pomocą storyboardu. - Przeanalizuj dane o śmiertelności w wybranym oprogramowaniu statystycznym.
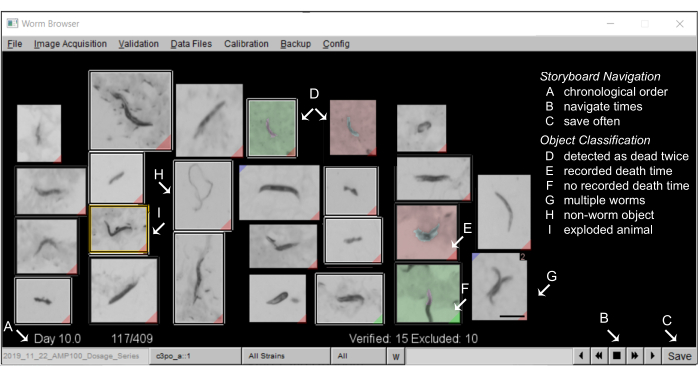
Rycina 5Schemat zwierzęcia w przeglądarce Worm Browser. (A) Wszystkie nieruchome nicienie przedstawiono w chronologicznym porządku czasu śmierci naniesionego przez program. Aby nawigować po storyboardzie, należy nacisnąć przyciski na (B) prawy dolny róg, a (C) często zapisuj adnotacje. (DObrazy z tłem innym niż szare przedstawiają dwa zdarzenia śmierci nicieni (wczesna śmierć zaznaczona kolorem zielonym, późniejsza śmierć kolorem czerwonym), co może wynikać albo z faktu, że dwa nicienie padły w bliskim sąsiedztwie, albo z przemieszczenia martwego nicienia przez innego, przechodzącego osobnika, wywołującego tym samym ponowne wykrycie stanu śmierci.. (E) Czerwony znacznik w dolnym rogu obrazu identyfikuje nicienie, u których wykryto czas śmierci; (F) zielony znacznik wskazuje obiekt, który nie pozostawał w bezruchu wystarczająco długo, aby zarejestrować czas zgonu. (GWielu nicieni w tej samej klatce można oznaczyć, naciskając klawisz Shift i klikając lewym przyciskiem myszy.H) Obiekty niebędące nicciami są wykluczane z analizy poprzez kliknięcie prawym przyciskiem myszy.(I) Nicie, które uległy rozrywaniu, są usuwane z analizy poprzez kliknięcie odpowiedniego obrazu (otwiera się okno adnotacji ręcznej), a następnie naciśnięcie klawisza Shift i kliknięcie prawym przyciskiem myszy do momentu pojawienia się komunikatu „animal exploded”.. Pasek skali o długości 0,5 mm oraz etykiety zostały nałożone na zrzut ekranu okna programu Worm Browser. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
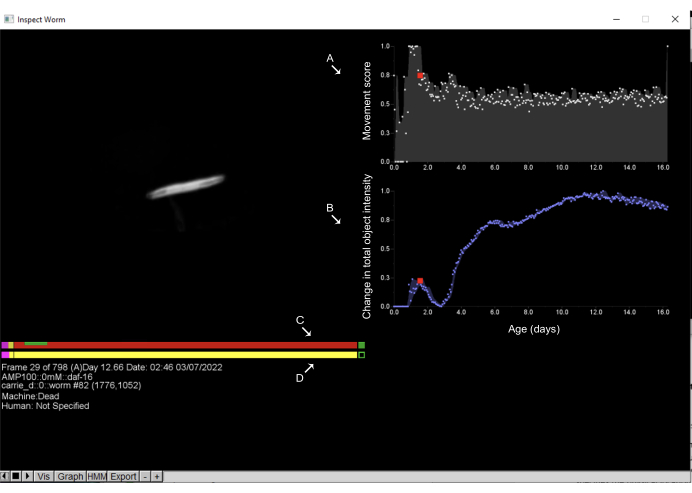
Rycina 6: Inspekcja obiektów i adnotacja czasu śmierci w programie Worm Browser. Lewy klik na dowolny obiekt w storyboardzie Worm Browser otwiera nowy interfejs i pozwala użytkownikowi na analizę dynamiki ruchu obiektu. Po prawej stronie wyświetlany jest (A) wynik ruchu, który ilościowo określa ruch obiektu; jest on szacowany na podstawie zmiany intensywności pikseli pomiędzy kolejnymi obserwacjami. Dodatkowo, po prawej stronie, (B) wyświetlana jest zmiana całkowitej intensywności obiektu, co ilościowo określa zmiany rozmiaru obiektu. Po lewej stronie górny pasek przedstawia (C) automatyczną estymację czasu śmierci, natomiast dolny pasek to (D) adnotacja wykonana ręcznie przez człowieka. Kliknięcie w dowolny punkt pasków i naciśnięcie klawisza spacji pozwala użytkownikowi na nawigację po klatkach czasowych, w których obrazowano nicienia. Na tych paskach kolor różowy reprezentuje czas intensywnego ruchu, czerwony reprezentuje czas po śmierci, a żółty wszystkie stany pośrednie. Czas poświęcony na ekspansję i kontrakcję po czasie śmierci jest zaznaczony na zielono. Etykiety są nałożone na zrzut ekranu okna Worm Browser. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
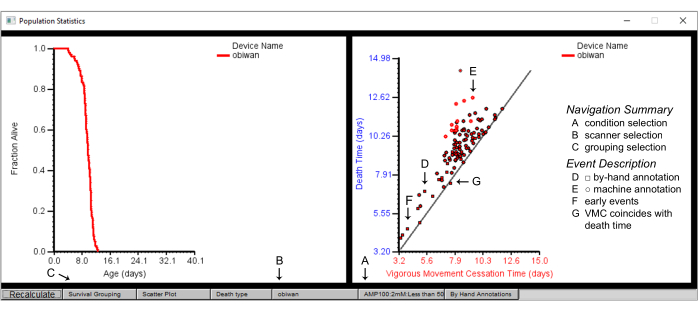
Rycina 7: Podsumowanie statystyk populacyjnych w przeglądarce Worm Browser. Statystyki populacyjne dla skanera „obiwan” z wykresem przeżywalności (panel lewy) oraz wykresem rozrzutu czasu zaprzestania gwałtownych ruchów (VMC) w stosunku do czasu śmierci (panel prawy). Przedstawione zostały szczegółowe dane dla (A) jednego warunku, uzyskane z (B) jednego skanera poprzez uprzednie wybranie (C) grupowania przeżywalności według szczepu. (D) Kształty kwadratowe na wykresie rozrzutu przedstawiają zdarzenia naniesione ręcznie, natomiast (E) kształty koliste przedstawiają zdarzenia naniesione automatycznie przez maszynę. (F) Adnotacja ręczna jest często wymagana w przypadku zdarzeń śmierci, które występują wcześnie lub (G) takich, w których czas zaprzestania gwałtownych ruchów pokrywa się z czasem śmierci. Etykiety są naniesione na zrzut ekranu okna przeglądarki Worm Browser. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Wyniki
Powtarzalność eksperymentalna w testach długości życia jest problematyczna i wymaga zarówno ściśle kontrolowanych warunków eksperymentalnych, jak i dużych populacji, aby osiągnąć wystarczającą rozdzielczość statystyczną4,36. LSM jest wyjątkowo odpowiedni do monitorowania dużych populacji zwierząt w stałym środowisku z wysoką rozdzielczością czasową. Aby zaprezentować możliwości LSM, wyróżnić kluczowe etapy analizy i pomóc badaczom w optymalizacji nakładów pracy, przedstawiamy podzbiór danych z optymalnego, wcześniej opublikowanego eksperymentu23. Ze względu na charakter tego eksperymentu jako testu zależności dawka-odpowiedź, do wiarygodnego wykrycia zmian w długości życia wymagana była znaczna liczba zwierząt. Ręczne przeprowadzenie tego eksperymentu wymagałoby ogromnego nakładu czasu wielu badaczy, a w przypadku zmniejszenia skali mogłoby doprowadzić do uzyskania wyników o niskiej mocy statystycznej. Zbiór danych obejmował pomiar ilościowych zmian w długości życia po usunięciu genu podjednostki (b) polimerazy RNA II (RPB-2), niezbędnej do transkrypcji mRNA. Wykorzystując system indukowany auksyną37 u C. elegans, endogenne locus RPB-2 oznakowano sekwencją degronu, aby warunkowo ubikwitynować i zdegradować RPB-2 przy użyciu różnych stężeń auksyny (kwasu α-naftalenooctowego). Eksperyment przeprowadzono na szczepie AMP100 [rpb-2 (cer135); eft-3p::TIR-1], gdzie cer135 odpowiada wstawionemu metodą CRISPR znacznikowi AID rpb-2::GFPΔpiRNA::AID::3xFLAG23. Warunki eksperymentalne obejmowały temperaturę 20 °C oraz zastosowanie dezaktywowanych promieniami UV E. coli. NEC937 (OP50 ΔuvrA; KanR)38. Hermafrodyty sterylizowano poprzez przenoszenie nicieni w późnym stadium L4 na płytki zawierające 5-fluoro-2-deoksyurydynę (FUdR). Nicienie przeniesiono w drugim dniu dorosłości na płytki zawierające różne stężenia auksyny. W oryginalnej pracy autorzy wykazali, że w obecności auksyny degradacja RPB-2 skraca długość życia w sposób zależny od dawki23.
W niniejszej pracy demonstrujemy wpływ walidacji i adnotacji danych po zakończeniu eksperymentu na końcowy przebieg krzywej przeżywalności (Rysunek 8). W końcowych etapach analizy obrazu w ramach storyboardu Worm Browser porównaliśmy surowe krzywe przeżywalności wygenerowane przed adnotacją w storyboardzie z krzywymi przeżywalności otrzymanymi po manualnym wykluczeniu obiektów niebędących niciami, a także z krzywymi przeżywalności wygenerowanymi po adnotacji zarówno obiektów niebędących niciami, jak i poszczególnych momentów śmierci (Rysunek 8A-C). Stwierdzono, że początkowe krzywe przeżywalności wygenerowane przed adnotacją w storyboardzie (Rysunek 8A) były zniekształcone przez błędne włączenie obiektów niebędących niciami, co było najbardziej widoczne w końcowych fragmentach krzywych. Przed manualną adnotacją krzywe przeżywalności obejmowały wszystkie obiekty wykryte przez maszynę jako potencjalne nicie, z których około połowa – ze względu na celowo wysoki wskaźnik wyników fałszywie dodatnich – nie była niciami i musiała zostać manualnie wykluczona (Rysunek 8D). Jest to rozwiązanie celowe, ponieważ algorytmy są skalibrowane tak, aby wykazywać stosunkowo wysoki wskaźnik wyników fałszywie dodatnich w celu uniknięcia wyników fałszywie ujemnych, gdyż znacznie łatwiej jest wykluczyć błędnie włączone obiekty, niż wyszukiwać i odzyskiwać obiekty błędnie wykluczone. Po wyeliminowaniu obiektów niebędących niciami podczas manualnej adnotacji w storyboardzie, otrzymane krzywe przeżywalności charakteryzowały się znacznie wyższą rozdzielczością (Rysunek 8B,E), a dalsza manualna adnotacja momentów śmierci w storyboardzie spowodowała zmiany średniej długości życia nie większe niż ~4%. Wykazujemy zatem, że usunięcie obiektów niebędących niciami podczas procesu analizy obrazów w systemie LSM jest kluczowym krokiem w celu uzyskania wyraźnych krzywych przeżywalności.

Rysunek 8: Wpływ ręcznej walidacji danych na krzywe przeżywalności. Degradacja RPB-2 skraca czas życia C. elegans w obecności auksyny (K-NAA: kwas α-naftalenooctowy) w sposób zależny od dawki. (A) Krzywe przeżywalności wykreślone z surowych wyników LSM po kontroli jakości płytek i bez ręcznej adnotacji obiektów nicieni na storyboardzie Worm Browser. (B) Krzywe przeżywalności wykreślone po ręcznej adnotacji obiektów nicieni na storyboardzie. (C) Krzywe przeżywalności wykreślone po ręcznej adnotacji obiektów nicieni oraz czasu śmierci na storyboardzie. (D) Podsumowanie wszystkich obiektów wykrytych przez LSM. Ocenzurowane obiekty nicieni obejmowały obiekty wykluczone automatycznie (na przykład z powodu przemieszczenia się nicieni poza obszar skanowania) lub ręcznie przez eksperymentatora (na przykład z powodu pęknięcia nicieni). (E) Tabelaryczna reprezentacja szacowanej średniej długości życia po ręcznej adnotacji obiektów nicieni (lewo) i dodatkowej ręcznej adnotacji czasu śmierci (prawo). Procentowa różnica w średniej długości życia między sąsiednimi grupami o różnych stężeniach auksyny oraz statystyczna moc detekcji. Wszystkie wykresy zostały sporządzone w oprogramowaniu statystycznym JMP. Dane do tego rysunku zostały opracowane za zgodą Oswal i wsp.23. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Wykraczając poza długość życia jako jedyny punkt końcowy w badaniu starzenia, rozważyliśmy starzenie behawioralne i zbadaliśmy, które etapy analizy obrazu po eksperymencie były najistotniejsze dla jego pomiaru. Koncentrując się na związku między ustaniem energicznego ruchu (VMC) a długością życia, porównaliśmy wyniki LSM na różnych etapach analizy i walidacji obrazu (Rysunek 9A-D). Stwierdzono, że obiekty niebędące nicniami wykazywały specyficzny związek między pozornym VMC a długością życia, przy czym oba te zdarzenia były adnotowane jako następujące niemal jednocześnie w każdym obiekcie (Rysunek 9A). W przeciwieństwie do nich, prawdziwe nicienie zazwyczaj przestawały poruszać się energicznie na kilka dni przed momentem śmierci (Rysunek 9A). Ta różnica w relacji między VMC a długością życia stanowi dodatkowy sposób szybkiej identyfikacji i wykluczania obiektów niebędących nicniami.

Rycina 9: Wpływ ręcznej walidacji danych na analizę zaprzestania energicznego ruchu (VMC).(A) Dane dotyczące starzenia behawioralnego bez ręcznej adnotacji obiektów nicieni na storyboardzie Worm Browser, przedstawiające zależność między czasem śmierci a czasem VMC w obiektach niebędących nicieniami (na czarno) w porównaniu z obiektami nicieni (na czerwono). (B) Dane dotyczące starzenia behawioralnego wykreślone po ręcznej adnotacji obiektów nicieni na storyboardzie. (C) Dane dotyczące starzenia behawioralnego wykreślone po ręcznej adnotacji obiektów nicieni oraz czasu śmierci na storyboardzie.(D) Tabularna reprezentacja średniej pozostałej długości życia (ARL; uzyskanej z punktu przecięcia wieku śmierci i wieku VMC) na różnych etapach potoku analizy obrazów oraz procentowa różnica w ARL między adnotacją obiektów nicieni a dodatkową adnotacją czasu śmierci. (E) Graficzna reprezentacja szacowanych wartości ARL na różnych etapach analizy po akwizycji obrazu oraz ich związku z długością życia nicieni (która zależy od stężenia auksyny: kwasu α-naftaleno-octowego). Dopasowanie splajnowe wykonano metodą splajnów sześciennych. Wszystkie wykresy sporządzono przy użyciu oprogramowania statystycznego JMP. Dane do tej ryciny zostały zaadaptowane za zgodą Oswal et al.23. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Stwierdzono, że adnotacja i wykluczenie obiektów niebędących nicciami za pomocą Worm Browser były wystarczające do uzyskania przybliżonego oszacowania zależności między VMC a czasem śmierci (Rycina 9A-C), co odzwierciedla oczekiwane dynamiki fizjologicznego spadku sprawności u nicieni23. Aby pogłębić te analizy, wykorzystano ten sam zestaw danych dla polimerazy RNA II i oszacowano średnią pozostałą długość życia (ARL) po VMC dla każdej subpopulacji jako punkt przecięcia modelu regresji liniowej wiążącego długość życia z VMC. Aby zrozumieć wpływ adnotacji danych na ARL, przeliczono ARL po każdym etapie adnotacji danych (Rycina 9E). Zaobserwowano, że manualna adnotacja czasu śmierci w analizie starzenia behawioralnego była szczególnie istotna w przypadku nicci o dłuższym czasie życia, w tym przypadku tych wystawionych na najniższe stężenia auksyny (Rycina 9D,E). W przeciwieństwie do minimalnego wpływu na krzywe przeżywalności, manualna adnotacja czasu śmierci miała istotny wpływ na ilościową zależność między VMC a długością życia, zwiększając szacowany ARL, na przykład przy 0 µM auksyny, z 8,09 dnia do 10,42 dnia po adnotacji czasu śmierci; stanowi to różnicę ARL na poziomie 29%. Zauważono zatem, że zależność między VMC a czasem śmierci wyjaśniana przez ARL była znacznie bardziej wrażliwa na ręczną adnotację czasu śmierci w porównaniu do pomiarów czasu śmierci dla samej długości życia. Wrażliwość tę można wyjaśnić względnym czasem trwania ARL i długości życia; te same korekty czasu śmierci będą zazwyczaj niewielkie w stosunku do długości życia, ale znaczne w stosunku do ARL. Zatem korekty czasu śmierci będą miały większy relatywny wpływ na ARL niż na długość życia.
Plik uzupełniający 1: Struktura pliku harmonogramu eksperymentu maszyny do badania długości życia (Lifespan Machine).Harmonogram eksperymentu składa się z trzech części. Pierwsza zawiera podstawowe informacje o eksperymencie, takie jak nazwa i specyfikacja akwizycji. W tej części, dla każdego nowego eksperymentu, zazwyczaj należy zmienić jedynie nazwę eksperymentu. Druga część dokumentu jest generowana poprzez eksport obszarów skanowania z Worm Browser i określa fizyczną lokalizację obszarów skanowania dla każdego skanera (w tym przykładzie: „asuna”, „bulma”, „moscow”, „rio”, „yuno” i „yuki”). Są one zastępowane przy każdym nowym eksperymencie i kopiowane z plików TXT generowanych oddzielnie dla każdego skanera podczas kroku 4.1.2.3. Trzecia część dokumentu dostarcza informacji o czasie trwania eksperymentu, który również powinien być zmodyfikowany dla każdego nowego eksperymentu, oraz o częstotliwości akwizycji. Urządzenie będzie skanować każdy zdefiniowany obszar po kolei w określonych odstępach czasu przez cały czas trwania eksperymentu. Aby pobrać ten plik, kliknij tutaj.
Dyskusja
W tym miejscu udostępniamy szczegółowy, dostępny protokół do przeprowadzania eksperymentu przy użyciu najnowszej wersji Lifespan Machine. Wykazaliśmy, że kluczowym krokiem dla osiągnięcia dobrze rozdzielonych krzywych przeżycia jest ręczne wykluczanie obiektów niebędących robakami podczas akwizycji po pobraniu obrazu. Ręczna adnotacja czasu zgonu ma niewielki wpływ na ogólny kształt krzywych przeżycia, co pokazuje, że w pełni zautomatyzowane szacowanie czasu zgonu jest skuteczne nawet bez ręcznej adnotacji (Rysunek 8). Wręcz przeciwnie, uzyskanie wysokiej jakości danych dotyczących starzenia się wymaga dokładniejszego opisywania czasu śmierci, zwłaszcza u osób długowiecznych (ryc. 9). W związku z tym ilość czasu potrzebna na ręczne adnotacje do scenorysu będzie ostatecznie zależeć od konkretnego mierzonego wyniku. Ogólnie rzecz biorąc, stwierdzamy, że podczas pracy z LSM wysiłki badacza są najbardziej kluczowe podczas konfiguracji eksperymentalnej i, w mniejszym stopniu, podczas analizy po akwizycji obrazu. Na koniec podkreślamy wartość wysokowydajnych, zautomatyzowanych testów w tworzeniu wysoce rozdzielczych danych dotyczących przeżycia i behawioralnego starzenia się, przy jednoczesnym zwiększeniu produktywności badaczy i wspieraniu odtwarzalności eksperymentalnej.
LSM umieszcza nicienie na płytkach agarowych, odtwarzając klasyczny test długości życia w zautomatyzowanym kontekście. Inne narzędzia zostały opracowane w celu zautomatyzowania pomiaru długości życia C. elegans przy użyciu różnych metod ograniczania nicieni. Należą do nich podejścia, w których pojedyncze nicienie są trzymane w pożywkach stałych (WorMotel15) lub w urządzeniu mikroprzepływowym (Lifespan-on-a-chip11) lub te, które śledzą większą populację zwierząt za pomocą mikroprzepływów (WormFarm14). Do zalet platform mikroprzepływowych należy możliwość precyzyjnej kontroli środowiska w czasie rzeczywistym oraz automatyczne usuwanie potomstwa poprzez wykluczenie wielkości. Jednak wspomniane urządzenia do tej pory nie okazały się łatwe do skalowania, ponieważ wymagają rozległej obsługi ręcznej i często polegają na codziennym przechwytywaniu obrazu lub wideo uruchamianym przez eksperymentatora. Inne platformy, takie jak Stress-Chip39, wykorzystują zmodyfikowane skanery płaskie zaprojektowane dla LSM do obrazowania niestandardowych urządzeń mikroprzepływowych.
W przeciwieństwie do innych metod, LSM posiada rozbudowane możliwości adnotacji i walidacji danych, umożliwiając w ten sposób użytkownikom systematyczne przeprowadzanie kontroli jakości wymaganej do zbierania precyzyjnych i dokładnych danych o wysokiej rozdzielczości w kontekście wysokiej przepustowości13. Technika ta jest wszechstronna ze względu na wykorzystanie obecnych protokołów laboratoryjnych opartych na płytkach agarowych i oferuje wyjątkową przewagę w zakresie skalowalności eksperymentalnej ze względu na względną łatwość ustawiania dużych grup skanerów płaskich. Chociaż LSM wymaga początkowej inwestycji czasowej w zbudowanie i obsługę oraz przeszkolenie użytkowników w zakresie specjalistycznego oprogramowania, koszty te są równoważone przez solidną, wysokowydajną produkcję danych o żywotności. Klaster maszyn składający się z 50 lub więcej skanerów został wdrożony w kilku laboratoriach, działających nieprzerwanie przez ponad dekadę40.
LSM ma ograniczenia. Zwierzęta są umieszczane w skanerach podczas automatycznego zbierania danych dotyczących przeżycia, co ogranicza zdolność badaczy do wykonywania interwencji eksperymentalnych równolegle z obserwacją i wymaga sterylizacji zwierząt lub rozpoczęcia eksperymentów po fazie rozrodczej nicieni. Zmiany temperatury są rzadkim wyjątkiem od ograniczenia interwencji, ponieważ temperaturę otoczenia można modulować bez konieczności otwierania skanerów i uzyskiwania dostępu do zwierząt. W przypadkach, w których konieczne jest zastosowanie interwencji praktycznych w odniesieniu do nicieni w średnim wieku, powszechnym rozwiązaniem jest opóźnienie rozpoczęcia automatycznej obserwacji do czasu przeprowadzenia niezbędnego postępowania ze zwierzętami. Ponadto istnieje nieodłączna różnica w rozmieszczeniu płyt wewnątrz skanerów i w ich poprzek. Mogą one podlegać niewielkim, lokalnym różnicom w warunkach środowiskowych (takich jak temperatura, światło, wentylacja itp.), które mogą wpływać na C. Długość życia eleganów 19. Ten wpływ środowiska można dodatkowo określić ilościowo i zbadać za pomocą modeli przyspieszonej regresji czasu awarii41. Sposobem na złagodzenie tego efektu jest po prostu skalowanie liczby płyt i skanerów w celu uzyskania rygorystycznego pomiaru niezależnego od wahań środowiska. Zazwyczaj płytki z tym samym schorzeniem są losowo rozmieszczone w każdym skanerze, a populacje wielkości większe niż 500 osób na stan i między skanerami wykazały statystycznie solidne szacunki przeżycia31.
Ogólnie rzecz biorąc, LSM pozwala na bardzo dokładne i duże gromadzenie danych dotyczących przeżycia i starzenia się behawioralnego, a także może umożliwić przeprowadzanie wcześniej niewykonalnych badań przesiewowych w sposób ilościowy. W ten sposób LSM przyczynia się do znacznego postępu technicznego w ustandaryzowanym zbiorze krzywych przeżycia i zapewnia nowatorskie ramy dla sprzężonych badań nad długością życia i starzeniem się behawioralnym nicieni.
Oświadczenia
Autorzy oświadczają, że nie mają sprzecznych interesów.
Podziękowania
Dziękujemy Julianowi Ceronowi i Jeremy'emu Vicencio (IDIBELL Barcelona) za wyprodukowanie allelu rpb-2(cer135). Projekt ten został sfinansowany przez Europejską Radę ds. Badań Naukowych (ERBN) w ramach programu Unii Europejskiej w zakresie badań naukowych i innowacji Horyzont 2020 (umowa o grant nr 852201), hiszpańskie Ministerstwo Gospodarki, Przemysłu i Konkurencyjności (MEIC) w ramach partnerstwa EMBL, Centro de Excelencia Severo Ochoa (CEX2020-001049-S, MCIN/AEI /10.13039/501100011033), program CERCA/Generalitat de Catalunya, nagrodę MEIC Excelencia BFU2017-88615-P, oraz nagrodę przyznaną przez Glenn Foundation for Medical Research.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas 1-naftaleneoctowy (auksyna) | Sigma | N0640 | Rozpuścić auksynę w 1M wodorotlenku potasu i dodać do stopionego agaru |
| 5-fluoro-2-deoksyurydynę (FUDR) | Sigma | F0503 | 27,5 μ g/ml FUDR zastosowano do eliminacji potomstwa z populacji na bakteriach inaktywowanych promieniowaniem UV |
| Płyn do mycia szkła | Kristal-M | QB-KRISTAL-M125ml | |
| Hydrofobowa powłoka przeciwmgielna do szkła | Rain-X Scheibenreiniger | C. 059140 | |
| Guma matowa | Lokalny crafstman | Wycięte na arkuszu gumy EPDM o wysokiej wytrzymałości | |
| Szkło skanera | Lokalny dostawca | 9 "x 11,5" cala arkusz szkła | |
| Płytki skanera Nauki | biologiczne | 351006 | 50 mm x 9 mm, polistyrenowa szalka Petriego |
| Termometr referencyjny USB | Brando | ULIFE055500 | Do kalibracji temperatury skanerów |
Bibliografia
- Harman, D. The aging process: Major risk factor for disease and death. Proceedings of the National Academy of Sciences of the United States of America. 88 (12), 5360-5363 (1991).
- Vaupel, J. W. Biodemography of human ageing. Nature. 464 (7288), 536-542 (2010).
- Mair, W., Goymer, P., Pletcher, S. D., Partridge, L. Demography of dietary restriction and death in Drosophila. Science. 301 (5640), 1731-1733 (2003).
- Petrascheck, M., Miller, D. L. Computational analysis of lifespan experiment reproducibility. Frontiers in Genetics. 8, 92(2017).
- Lucanic, M., et al. Impact of genetic background and experimental reproducibility on identifying chemical compounds with robust longevity effects. Nature Communications. 8 (1), 14256(2017).
- Banse, S. A., et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 41 (6), 945-960 (2019).
- Herndon, L. A., et al. Stochastic and genetic factors influence tissue-specific decline in ageing C. elegans. Nature. 419 (6909), 808-814 (2002).
- Kirkwood, T. B., et al. What accounts for the wide variation in life span of genetically identical organisms reared in a constant environment. Mechanisms of Ageing and Development. 126 (3), 439-443 (2005).
- Stroustrup, N., et al. The temporal scaling of Caenorhabditis elegans ageing. Nature. 530 (7588), 103-107 (2016).
- Hamilton, B., et al. A systematic RNAi screen for longevity genes in C. elegans. Genes & Development. 19 (13), 1544-1555 (2005).
- Lee, S. S., et al. A systematic RNAi screen identifies a critical role for mitochondria in C. elegans longevity. Nature Genetics. 33 (1), 40-48 (2003).
- Cornwell, A. B., Llop, J. R., Salzman, P., Thakar, J., Samuelson, A. V. The replica set method: A high-throughput approach to quantitatively measure Caenorhabditis elegans lifespan. Journal of Visualized Experiments. (136), e57819(2018).
- Stroustrup, N., et al. The Caenorhabditis elegans lifespan machine. Nature Methods. 10 (7), 665-670 (2013).
- Xian, B., et al. WormFarm: A quantitative control and measurement device toward automated Caenorhabditis elegans aging analysis. Aging Cell. 12 (3), 398-409 (2013).
- Churgin, M. A., et al. Longitudinal imaging of Caenorhabditis elegans in a microfabricated device reveals variation in behavioral decline during aging. Elife. 6, 26652(2017).
- Hulme, S. E., et al. Lifespan-on-a-chip: Microfluidic chambers for performing lifelong observation of C. elegans. Lab on a Chip. 10 (5), 589-597 (2010).
- Kerr, R. A., Roux, A. E., Goudeau, J. F., Kenyon, C. The C. elegans observatory: High-throughput exploration of behavioral aging. Frontiers in Aging. 3, 932696(2022).
- Javer, A., Ripoll-Sánchez, L., Brown, A. E. Powerful and interpretable behavioural features for quantitative phenotyping of Caenorhabditis elegans. Philosophical Transactions of the Royal Society B: Biological Sciences. 373 (1758), 20170375(2018).
- Miller, H., et al. Genetic interaction with temperature is an important determinant of nematode longevity. Aging Cell. 16 (6), 1425-1429 (2017).
- Bansal, A., Zhu, L. J., Yen, K., Tissenbaum, H. A. Uncoupling lifespan and healthspan in Caenorhabditis elegans longevity mutants. Proceedings of the National Academy of Sciences of the United States of America. 112 (3), E277-E286 (2015).
- Huang, C., Xiong, C., Kornfeld, K. Measurements of age-related changes of physiological processes that predict lifespan of Caenorhabditis elegans. Proceedings of the National Academy of Sciences of the United States of America. 101 (21), 8084-8089 (2004).
- Garigan, D., et al. Genetic analysis of tissue aging in Caenorhabditis elegans: A role for heat-shock factor and bacterial proliferation. Genetics. 161 (3), 1101-1112 (2002).
- Oswal, N., Martin, O. M., Stroustrup, S., Bruckner, M. A. M., Stroustrup, N. A hierarchical process model links behavioral aging and lifespan in C. elegans. PLoS Computational Biology. 18 (9), 1010415(2022).
- Sen, I., et al. DAF-16/FOXO requires protein phosphatase 4 to initiate transcription of stress resistance and longevity promoting genes. Nature Communications. 11 (1), 138(2020).
- Schiffer, J. A., et al. et al.Caenorhabditis elegans processes sensory information to choose between freeloading and self-defense strategies. Elife. 9, 56186(2020).
- Bazopoulou, D., et al. Developmental ROS individualizes organismal stress resistance and lifespan. Nature. 576 (7786), 301-305 (2019).
- Guerrero-Rubio, M. A., Hernández-García, S., García-Carmona, F., Gandía-Herrero, F. Extension of life-span using a RNAi model and in vivo antioxidant effect of Opuntia fruit extracts and pure betalains in Caenorhabditis elegans. Food Chemistry. 274, 840-847 (2019).
- Janssens, G. E., et al. Transcriptomics-based screening identifies pharmacological inhibition of Hsp90 as a means to defer aging. Cell Reports. 27 (2), 467-480 (2019).
- Kasimatis, K. R., Moerdyk-Schauwecker, M. J., Phillips, P. C. Auxin-mediated sterility induction system for longevity and mating studies in Caenorhabditis elegans. G3: Genes, Genomes, Genetics. 8 (8), 2655-2662 (2018).
- Lin, X. -X., et al. DAF-16/FOXO and HLH-30/TFEB function as combinatorial transcription factors to promote stress resistance and longevity. Nature Communications. 9 (1), 4400(2018).
- Stroustrup, N., et al. The temporal scaling of Caenorhabditis elegans ageing. Nature. 530 (7588), 103-107 (2016).
- Byerly, L., Cassada, R., Russell, R. The life cycle of the nematode Caenorhabditis elegans: I. Wild-type growth and reproduction. Developmental Biology. 51 (1), 23-33 (1976).
- Perez, M. F., Francesconi, M., Hidalgo-Carcedo, C., Lehner, B. Maternal age generates phenotypic variation in Caenorhabditis elegans. Nature. 552 (7683), 106-109 (2017).
- Wilkinson, D. S., Taylor, R. C., Dillin, A. Analysis of aging in Caenorhabditis elegans. Methods in Cell Biology. 107, 353-381 (2012).
- Hosono, R. Sterilization and growth inhibition of Caenorhabditis elegans by 5-fluorodeoxyuridine. Experimental Gerontology. 13 (5), 369-373 (1978).
- Lithgow, G. J., Driscoll, M., Phillips, P. A long journey to reproducible results. Nature. 548 (7668), 387-388 (2017).
- Zhang, L., Ward, J. D., Cheng, Z., Dernburg, A. F. The auxin-inducible degradation (AID) system enables versatile conditional protein depletion in C. elegans. Development. 142 (24), 4374-4384 (2015).
- Baeriswyl, S., et al. Modulation of aging profiles in isogenic populations of Caenorhabditis elegans by bacteria causing different extrinsic mortality rates. Biogerontology. 11 (1), 53(2010).
- Banse, S. A., Blue, B. W., Robinson, K. J., Jarrett, C. M., Phillips, P. C. The Stress-Chip: A microfluidic platform for stress analysis in Caenorhabditis elegans. PLoS One. 14 (5), e0216283(2019).
- Banse, S. A., et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 41 (6), 945-960 (2019).
- Swindell, W. R. Accelerated failure time models provide a useful statistical framework for aging research. Experimental Gerontology. 44 (3), 190-200 (2009).
Przedruki i uprawnienia
