Choroby zwyrodnieniowe oczu, które wpływają na warstwę nabłonka barwnikowego siatkówki, mają pochodzenie monogenowe i poligenowe. Opracowano kilka modeli chorób i aplikację LipidUNet w celu badania mechanizmów choroby, a także potencjalnych interwencji terapeutycznych.
Artykuł metodologiczny
Oparta na uczeniu maszynowym metoda charakterystyki i kwantyfikacji złogów lipidowych LipidUNet przy użyciu nabłonka barwnikowego siatkówki pochodzącego z iPSC
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Nabłonek barwnikowy siatkówki (RPE) to monowarstwa sześciokątnych komórek znajdujących się w tylnej części oka. Zapewnia odżywienie i wsparcie dla fotoreceptorów i naczyń włosowatych naczyniówki, przeprowadza fagocytozę zewnętrznych segmentów fotoreceptorów (POS) i wydziela cytokiny w sposób spolaryzowany w celu utrzymania homeostazy siatkówki zewnętrznej. Dysfunkcyjny RPE, spowodowany mutacjami, starzeniem się i czynnikami środowiskowymi, powoduje zwyrodnienie innych warstw siatkówki i powoduje utratę wzroku. Charakterystyczną cechą fenotypową degenerującego się RPE są wewnątrz- i subkomórkowe złogi bogate w lipidy. Złogi te są powszechnym fenotypem w różnych chorobach zwyrodnieniowych siatkówki. Aby odtworzyć fenotyp złogów lipidowych monogenowych zwyrodnień siatkówki in vitro, z fibroblastów pacjentów wygenerowano indukowane pluripotencjalne RPE pochodzące z komórek macierzystych (iRPE). Linie komórkowe wygenerowane od pacjentów z chorobą Stargardta i zwyrodnieniem siatkówki o późnym początku (L-ORD) były karmione POS przez 7 dni w celu odtworzenia fizjologicznej funkcji RPE, która spowodowała patologię wywołaną fagocytozą POS w tych chorobach. Aby wygenerować model zwyrodnienia plamki żółtej związanego z wiekiem (AMD), choroby poligenowej związanej z alternatywną aktywacją dopełniacza, w ramach projektu iRPE podano anafilatoksyny alternatywnego dopełniacza. Wewnątrz- i subkomórkowe złogi lipidowe scharakteryzowano za pomocą czerwieni nilowej, boru-dipyrrometenu (BODIPY) i apolipoproteiny E (APOE). Aby określić ilościowo gęstość złogów lipidowych, opracowano oprogramowanie oparte na uczeniu maszynowym, LipidUNet. Oprogramowanie zostało przeszkolone na obrazach projekcyjnych iRPE o maksymalnej intensywności na powierzchniach hodowlanych. W przyszłości zostanie przeszkolony w zakresie analizy obrazów trójwymiarowych (3D) i ilościowego określania objętości kropelek lipidów. Oprogramowanie LipidUNet będzie cennym źródłem informacji na temat leków, które zmniejszają akumulację lipidów w modelach chorób.
Wprowadzenie
Nabłonek barwnikowy siatkówki (RPE) to jednowarstwowa warstwa komórek znajdująca się w tylnej części oka, sąsiadująca z fotoreceptorami siatkówki. RPE odgrywa kluczową rolę w utrzymaniu prawidłowego wzroku, zapewniając wsparcie metaboliczne i strukturalne fotoreceptorom. Zdrowe komórki RPE charakteryzują się wyraźną morfologią sześciokątną. Są one połączone przez połączenia ścisłe, które pozwalają RPE pełnić funkcję bariery między choriocapillaris znajdującą się po stronie podstawnej a fotoreceptorami położonymi po stronie apikalnej. Aby utrzymać ekosystem siatkówki, RPE transportuje kluczowe metabolity, np. glukozę, do fotoreceptorów w sposób, który minimalizuje zużycie glukozy w samym RPE1. Ze względu na to ograniczenie, RPE polega na innych metabolitach w celu zaspokojenia swoich potrzeb metabolicznych, w tym na kwasach tłuszczowych, które RPE przekształca w ketony poprzez β-oksydację2. Biorąc pod uwagę skłonność RPE do wykorzystywania kwasów tłuszczowych, które prawdopodobnie pochodzą z recyklingu podczas trawienia zewnętrznych odcinków fotoreceptorów (POS), jako źródła energii, niekorzystne zmiany w szlakach przetwarzania lipidów w RPE często prowadzą do degeneracyjnych chorób siatkówki o podłożu monogenicznym i poligenicznym lub są w nich uwikłane3.
Związana z wiekiem zwyrodnienie plamkiżółtej (AMD) to poligeniczna choroba zwyrodnieniowa oka powodująca degenerację RPE, która została również powiązana z zaburzeniami autofagii i metabolizmu lipidów w warstwie RPE. Niezdolność dysfunkcjonalnej warstwy RPE do przetwarzania POS i wykonywania innych krytycznych funkcji prowadzi do powstawania zewnątrzkomórkowych (pod-RPE) złogów nazywanych bazalnymi złogami liniowymi (BLinD), zlokalizowanych pomiędzy RPE a błoną Brucha – co jest charakterystyczną cechą patologii AMD. Główne składniki BLinD to lipoproteiny, z których najliczniejszą jest apolipoproteina E (APOE)4. Nagromadzenie cienkich warstw BLinD może prowadzić do powstania miękkich druz, które są rozpoznawane jako objaw kliniczny AMD5,6.
Kilka grup badawczych wykazało, że pochodzące z komórek macierzystych modele chorób in vitro, w których dochodzi do dysfunkcji RPE, charakteryzują się akumulacją lipidów pod RPE7,8,9. Hallam i wsp. (2017) uzyskali RPE pochodzące z indukowanych pluripotencjalnych komórek macierzystych (iRPE) od pacjentów z wysokim ryzykiem wystąpienia AMD ze względu na polimorfizm genu CFH. W iRPE stwierdzono akumulację druz, znakowaną przez APOE, przy czym RPE wysokiego ryzyka wykazywało większe złogi niż iRPE uzyskane od pacjentów niskiego ryzyka10.
Aby stworzyć model in vitro odtwarzający cechy komórkowe AMD, takie jak kropelki lipidowe i odkładanie się druz, opracowano linie iRPE generowane z próbek krwi pacjentów, wykorzystując wcześniej opublikowany protokół kierowany rozwojowo11. Komórki iRPE poddano działaniu surowicy ludzkiej z aktywnym układem dopełniacza (CC-HS), czyli roztworu zawierającego anafilatoksyny, które naśladują jedną z możliwych przyczyn AMD: zwiększone sygnalizowanie alternatywnej drogi dopełniacza8. Wynikowe odkładanie się lipidów na poziomie komórkowym i podkomórkowym mierzono przy użyciu powszechnie stosowanych markerów lipidów i lipoprotein: APOE, Nile Red oraz BODIPY. Za pomocą tych markerów wykazano, że aktywowane sygnalizowanie dopełniacza poprzez CC-HS nasilało akumulację lipidów w komórkach iRPE8.
W celu opracowania modelu choroby monogenicznej degeneracji siatkówki, stworzono linie iRPE z pacjentów cierpiących na chorobę Stargardta – schorzenie wywołane mutacjami genu ABCA4 w RPE. Wykazano wcześniej, że po wyeliminowaniu genu ABCA4 wewnątrz RPE gromadzi się lipofuscyna A2E, wewnątrzkomórkowy złóg znany z wysokiej zawartości fosfolipidów i produktów peroksydacji lipidów zależnej od światła12. Równolegle z liniami pacjentów opracowano linie z nokautem ABCA4, a obie poddano podawaniu POS. iRPE z chorobą Stargardta wykazały patologię wywołaną fagocytozą POS, przejawiającą się zwiększoną akumulacją lipidów, co określono ilościowo za pomocą barwienia BODIPY. RPE pochodzące z iPSC z nokautem ABCA4 poddano traktowaniu CC-HS; analiza ilościowa sygnału BODIPY wykazała defekt w gospodarce lipidowej również w modelu choroby Stargardta9.
Biorąc pod uwagę powszechność tych chorób i potrzebę opracowania skutecznych terapii, a także opisane powyżej odpowiednie modele chorób, istnieje potrzeba ustanowienia rzetelnych metod ilościowego określania skuteczności potencjalnych leków. Aby w sposób obiektywny, zautomatyzowany i ustandaryzowany określić ilość złogów lipidowych, stworzono oprogramowanie oparte na uczeniu maszynowym, LipidUNet, które w połączeniu z narzędziami do analizy masek pozwala na szybką i skuteczną identyfikację odkładania się lipidów przy użyciu powszechnych markerów, takich jak Nile Red, BODIPY i APOE. Statystyki podsumowujące uzyskane przy użyciu tego potoku analitycznego mogą być następnie analizowane i przedstawiane graficznie, co umożliwia łatwe porównanie warunków leczenia. Schemat protokołu przedstawiono na Rysunku 1.

Rysunek 1: Schemat protokołu: Komórki RPE są hodowane na płytce 96-dołkowej i poddawane działaniu aktywnej ludzkiej surowicy lub oczyszczonych zewnętrznych segmentów pręcików bydlęcych w celu modelowania różnych typów degeneracji siatkówki in vitro. Komórki RPE są utrwalane i barwione pod kątem złogów lipoprotein za pomocą Nile Red, BODIPY oraz APOE. Mikroskop konfokalny jest wykorzystywany do pozyskiwania stosów Z (Z-stacks) fluorescencyjnie znakowanych cząsteczek lipidów, które następnie są przetwarzane na dwuwymiarowe projekcje maksymalnej intensywności. Algorytm uczenia maszynowego został przeszkolony w celu rozpoznawania i prawidłowej segmentacji cząsteczek lipoprotein. Generowane są tabele podsumowujące zawierające liczbę cząsteczek oraz różne parametry kształtu, które mogą być wykorzystane do późniejszego wykreślania i analizy statystycznej. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
Protokół
Wszystkie etapy protokołu są zgodne z wytycznymi ustanowionymi przez komisję etyki badań nad ludźmi NIH. Prace nad komórkami macierzystymi oraz pobieranie próbek od pacjentów zostały zatwierdzone przez Combined NeuroScience Institutional Review Board (CNS IRB) w ramach Office of Human Research Protection (OHRP), NIH, zgodnie z wytycznymi rządu USA zawartymi w 45 CFR 46. Próbki od pacjentów pobrano przy użyciu zatwierdzonego przez CNS IRB formularza zgody, zgodnie z kryteriami określonymi w Deklaracji Helsińskiej pod numerem protokołu NCT01432847 (https://clinicaltrials.gov/ct2/show/NCT01432847?cond=NCT01432847&draw=2&rank=1).
1. Generowanie iRPE
- Wygenerować iRPE z iPSC pochodzących z krwi pacjenta zgodnie z opublikowanym protokołem opracowanym przez Sharmę i wsp., 202211 (Rysunek 2 oraz Rysunek 3).

Rysunek 2: Schemat różnicowania i dojrzewania iRPE. W celu otrzymania iRPE zastosowano uznany protokół różnicowania, a następnie pozwolono komórkom dojrzewać przez 5 tygodni. Otrzymana hodowla komórkowa służy jako model in vitro, który można modyfikować za pomocą różnych zabiegów, aby naśladować dysfunkcję RPE w schorzeniach takich jak AMD i choroba Stargardta. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rycina 3: Reprezentatywne obrazy udanego i nieudanego różnicowania oraz dojrzewania RPE. Przedstawiono dwa obrazy w świetle przechodzącym przy 10-krotnym powiększeniu RPE TJP1 w 42. dniu protokołu iRPE. (A) Udane różnicowanie i dojrzewanie objawia się obecnością konfluencyjnego RPE z pigmentacją i poligonalną morfologią. (B) Nieudane różnicowanie i dojrzewanie objawia się skupiskami obumierających komórek, jak pokazano na tym obrazie. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
2. Przygotowanie pożywki do utrzymania RPE (RPE-MM)
- Rozmrozić suplement N2 w temperaturze 4 °C przez noc. Pozostałe odczynniki rozmrozić w temperaturze pokojowej (RT).
- W warunkach sterylnych dodać odczynniki wymienione w Tabeli 1 zgodnie z podanymi czynnikami rozcieńczenia, według protokołu opracowanego przez Sharma et al., 202211.
- Dokładnie wymieszać pożywkę i przefiltrować ją za pomocą jednostki filtrującej o rozmiarze porów 0,22 µm.
UWAGA: Pożywka nadaje się do użytku w ciągu 2 tygodni, jeśli jest przechowywana w temperaturze 4 °C.
3. Wysiewanie komórek na płytki 96-dołkowe
- Rozmrozić alikwot witronektyny w temperaturze pokojowej (RT) przez 3-5 min lub do całkowitego roztopienia lodu.
- Rozcieńczyć witronektynę w 1x Dulbecco's phosphate-buffered saline (DPBS), aby uzyskać pożądany roztwór roboczy, stosując rozcieńczenie 1:200 (witronektyna: DPBS). W przypadku płytki 96-dołkowej każdy dołek pokryć 200 µL roztworu roboczego.
- Połączyć rozmrożony inhibitor ROCK (Y-27632 dihydrochloride) z RPE-MM w rozcieńczeniu 1:1000, aby uzyskać stężenie końcowe 10 µM. Jest to pożywka do wysiewu komórek RPE.
- Rozmrozić fiolkę z iRPE za pomocą zautomatyzowanego systemu rozmrażania komórek i przenieść zawiesinę komórek iRPE do probówki o pojemności 50 mL.
- Rozcieńczyć zawiesinę komórkową pożywką do wysiewu w stosunku 1:10. Odwirować probówkę przy 400 x g przez 5 min.
- Ostrożnie odprowadzić supernatant i resuspenderć komórki w 10 mL pożywki do wysiewu.
- Wymieszać 400 µL pożywki do wysiewu ze 100 µL resuspendertej zawiesiny komórkowej w celu policzenia komórek. Wykorzystać ten alikwot do oznaczenia stężenia żywych komórek w zawiesinie za pomocą licznika żywotności komórek.
- Rozcieńczyć zawiesinę komórkową pożywką do wysiewu do stężenia końcowego 60 000 komórek/mL.
- Całkowicie odprowadzić roztwór do pokrywania witronektyną z płytki 96-dołkowej i nanieść po 200 µL zawiesiny komórkowej do każdego dołka. Pozwoli to na uzyskanie około 12 000 komórek/dołek lub ~200 komórek/mm2.
- Inkubować płytki z wysianymi komórkami przez 48 h w 37 °C i 5% CO2. Po 48 h wymienić pożywkę na RPE-MM bez dodatku inhibitora ROCK. Wymieniać pożywkę co 2-3 dni w ciągu 5-tygodniowego okresu dojrzewania.
4. Modele chorób in vitro
- Obróbka z użyciem ludzkiej surowicy z aktywnym dopełniaczem (CC-HS)
- Rozmrozić ludzką surowicę z aktywnym dopełniaczem w temperaturze 4°C przez noc.
- Przygotować podłoża z CC-HS oraz ludzką surowicą z nieaktywnym dopełniaczem (CI-HS).
- Aby przygotować podłoże 5% CC-HS, zmieszać rozmrożoną ludzką surowicę z aktywnym dopełniaczem z RPE-MM w rozcieńczeniu 1:20. Przed użyciem przefiltrować roztwór przez filtr do pożywek o rozmiarze porów 0.22 µm.
- Aby przygotować podłoże z 5% ludzką surowicą z nieaktywnym dopełniaczem (CI-HS), najpierw przeprowadzić inaktywację termiczną CC-HS w kąpieli wodnej o temperaturze 57 °C przez 30 min, a następnie zmieszać z podłożem hodowlanym w rozcieńczeniu 1:20. Przed użyciem przefiltrować roztwór przez filtr do pożywek o rozmiarze porów 0.22 µm.
- Poddać komórki działaniu surowicy, dodając 200 µL podłoża 5% CC-HS lub 5% CI-HS na całkowity czas inkubacji 48 h, wymieniając podłoże po 24 h.
- Przemyć komórki 1x DPBS i utrwalić 4% paraformaldehydem przez 20 min w RT. Przemyć ponownie 1x DPBS i przechowywać próbki w temperaturze 4 °C, zanurzone w 200 µL DPBS.
- OPCJONALNIE: Jeśli jest to wymagane, zlizować komórki z płytki, aby uwidocznić jedynie odkładanie lipidów pod RPE.
- Aby zlizować komórki i pozostawić jedynie osady lipidowe, usunąć podłoże i dodać 200 µL wody dejonizowanej do każdej studni.
- Inkubować przez 10-15 min, pipetować w górę i w dół, aż komórki zostaną usunięte. Przemyć ponownie 200 µL wody dejonizowanej i natychmiast utrwalić komórki 4% paraformaldehydem.
- Potwierdzić skuteczność usunięcia komórek poprzez barwienie jąder za pomocą Hoechst. Dodać Hoechst w rozcieńczeniu 1:2000 do roztworu 1x DPBS zawierającego 1% albuminy surowicy bydlęcej (BSA), 0.5% Tween 20 oraz 0.5% Triton-X 100. Inkubować w RT przez 1 h w ciemności. Następnie przemyć 1x DPBS.
- Obróbka z użyciem zewnętrznych segmentów fotoreceptorów (POS) na iRPE
- Przygotowanie POS
- Wyjąć probówkę z osadem POS z przechowywania w -80 °C i rozmrozić przez noc w temperaturze 4 °C w przykrytym pojemniku z lodem.
- Przygotować bufor do przemywania POS, mieszając 10 g sacharozy w 40 mL podwójnie dejonizowanej wody H2O (ddH2O).
- Podgrzewać mieszaninę w temperaturze 40-50 °C przy delikatnym mieszaniu przez 15 min. Dodać do mieszaniny 840 mg wodorowęglanu sodu i mieszać podczas podgrzewania przez 10 min.
- Dopełnić całkowitą objętość bufora do przemywania POS do 100 mL za pomocą ddH2O i dostosować pH roztworu do 8.3 za pomocą 1 N HCl lub 1 N NaOH, jeśli to konieczne. Przefiltrować roztwór do przemywania za pomocą filtra 0.22 µm.
UWAGA: W tym miejscu można przerwać procedurę; bufor do przemywania POS można przechowywać w temperaturze 4 °C przez noc. - Po rozmrożeniu zawiesić osad w 15 mL buforu do przemywania POS. Należy robić to delikatnie, aby zapewnić integralność POS. Centryfugować zawiesinę POS przy 600 x g w temperaturze 4 °C przez 20 min, a następnie odessać nadsącz.
- Resuspendować osad POS w 10 mL buforu do przemywania POS.
- Pobrać 100 µL alikwoty POS + bufor do przemywania POS (roztwór POS) i rozcieńczyć w 400 µL 1x DPBS. Nanieść 50 µL rozcieńczonego roztworu POS na płytkę z agarem krwi oraz na płytkę z agarozy, aby sprawdzić obecność zanieczyszczeń bakteryjnych i grzybiczych. Przygotować kontrole pozytywne dla każdej z nich i inkubować wszystkie płytki przez 48 h w temperaturze 37 °C.
- Przeprowadzić analizę qPCR, dodając 1 µL roztworu POS do studni detekcyjnej w celu przetestowania obecności mikoplazm. Aby amplifikować fragmenty DNA, przeprowadzić 40 cykli denaturacji (95°C, 15 s) oraz hybrydyzacji i elongacji (60°C, 1 min). Primery bezpośrednie i odwrotne do wykrywania mikoplazm w próbce POS są następujące:
Primer bezpośredni: GGA TTA GAT ACC CTG GTA GTC CAC G
Primer odwrotny: CGT CAA TTC CTT TAA GTT TCA CTC TTG GC - Zmierzyć stężenie POS za pomocą analizatora komórkowego i podzielić na alikwoty zgodnie z potrzebą. Dla jednej studni płytki 96-dołkowej z komórkami RPE wystarczająca jest ilość 3 x 10⁶ POS. Pożądany stosunek to 10 POS na jedną komórkę RPE. Przechowywać alikwoty w temperaturze 80 °C do późniejszego użycia.
- Dodanie POS do komórek
- Rozmrozić fiolki z POS w kąpieli lodowej.
- Zmieszać obliczoną ilość przygotowanego POS z RPE-MM i traktować komórki POS raz dziennie przez 7 dni.
UWAGA: Roztwór POS należy przygotowywać codziennie na świeżo. - Przemyć komórki 1x DPBS, a następnie utrwalić 4% paraformaldehydem przez 20 min w RT. Przemyć ponownie DPBS i przechowywać próbki w temperaturze 4 °C, zanurzone w 200 µL DPBS.
- Przygotowanie POS
5. Barwienie złogów pod-RPE
- Protokół barwienia czerwienią Nilową (Nile red)
- Po fiksacji PFA przemyć próbki 3 razy 1x DPBS.
UWAGA: Jeśli próbki nie są używane natychmiast, procedurę można tutaj przerwać, jednak próbki muszą być przechowywane w roztworze 1x DPBS + 0,02% azotku sodu w temperaturze 4 °C. - Aby przygotować roztwór zapasowy czerwieni Nilowej, rozpuścić proszek Nile Red w acetonie do stężenia 3 mg/mL. Inkubować przez 15 min w temperaturze pokojowej (RT), okresowo mieszając. Przefiltrować roztwory przez filtr 0,22 µm raz lub dwa razy, zależnie od ilości pozostałego w roztworze osadu.
UWAGA: Chronić roztwór zapasowy przed światłem. - Aby przygotować roztwór roboczy, rozcieńczyć roztwór zapasowy w stosunku 1:500 w 1x DPBS. Dodać 200 µL roztworu roboczego do próbki i inkubować przez 30 min w temperaturze pokojowej na wytrząsarce, chroniąc przed światłem.
- Przemyć 3 razy 1x PBS i przechowywać próbki w temperaturze 4 °C, zanurzone w 200 µL DPBS.
UWAGA: W przypadku prowadzenia eksperymentu na transwellach zamiast na płytce 96-dołkowej, próbki można zamontować na szkiełku za pomocą medium montażowego, przykryć szkiełkiem nakrywką i uszczelnić przezroczystym lakierem do paznokci. Należy zadbać o to, aby zamontować próbkę komórkami skierowanymi do góry.
- Po fiksacji PFA przemyć próbki 3 razy 1x DPBS.
- Protokół barwienia BODIPY
- W celu przygotowania roztworu zapasowego rozpuścić BODIPY w bezwodnym sulfotlenku dimetylu (DMSO), aby uzyskać stężenie zapasowe 3,8 mM.
- W przypadku próbek utrwalonych w PFA rozcieńczyć zapas BODIPY w stosunku 1:300 w 1x DPBS. Dodać 200 µL do komórek i inkubować przez noc na kołysarce w temperaturze pokojowej.
- Przemyć 3 razy 1x DPBS i przechowywać próbki w temperaturze 4 °C, zanurzone w 200 µL DPBS.
UWAGA: W przypadku prowadzenia eksperymentu na transwellach zamiast na płytce 96-dołkowej, próbki można zamontować na szkiełku za pomocą medium montażowego, przykryć szkiełkiem nakrywką i uszczelnić przezroczystym lakierem do paznokci. Należy zadbać o to, aby zamontować próbkę komórkami skierowanymi do góry.
- Protokół immunobarwienia APOE
- Połączyć 1x DPBS z 1% albuminą surowicy bydlęcej (BSA), 0,5% Tween 20 i 0,5% Triton-X 100, aby przygotować roztwór buforowy.
- W przypadku próbek utrwalonych w PFA zablokować i permeabilizować próbkę w 200 µL roztworu buforowego przez 1 h w temperaturze pokojowej.
- Dodać przeciwciało pierwszorzędowe przeciwko APOE rozcieńczone 1:100 w roztworze buforowym i inkubować przez noc w temperaturze pokojowej.
- Następnego dnia przemyć próbki 3 razy 1x DPBS.
- Dodać przeciwciało drugorzędowe w rozcieńczeniu 1:1000 w roztworze buforowym i dodać 200 µL roztworu do komórek na 1 h w temperaturze pokojowej.
- Przemyć 3 razy 1x DPBS i przechowywać próbki w temperaturze 4 °C, zanurzone w 200 µL DPBS.
UWAGA: W przypadku prowadzenia eksperymentu na transwellach zamiast na płytce 96-dołkowej, próbki można zamontować na szkiełku za pomocą medium montażowego (Fluoromount), przykryć szkiełkiem nakrywką i uszczelnić przezroczystym lakierem do paznokci. Należy zadbać o to, aby zamontować próbkę komórkami skierowanymi do góry.
6. Automatyzacja i przetwarzanie obrazów
- Zautomatyzowane skanowanie obrazu
UWAGA: W badaniu tym wykorzystano odwrócony konfokalny mikroskop skanujący Zeiss LSM 800 oraz oprogramowanie ZEN 3.2 (blue edition). Przed obrazowaniem należy upewnić się, że płytka 96-dołkowa została ogrzana do RT przez co najmniej 60 min, aby uniknąć dryfu płaszczyzny ogniskowania podczas skanowania, wynikającego ze zmiany współczynnika załamania światła medium pod wpływem zmiany temperatury.- Używając mikroskopu konfokalnego i obiektywu 40x, należy stworzyć profil skanowania z odpowiednimi kanałami fluorescencyjnymi dla zastosowanego markeru lipidowego oraz wszelkich dodatkowych przeciwciał.
- Aby skonfigurować automatyzację obrazowania, należy zaznaczyć pole Tiles. W celu kalibracji płytki 96-dołkowej należy upewnić się, że wprowadzono i wybrano poprawne wymiary nośnika próbek. Następnie należy kliknąć przycisk Calibrate, aby skalibrować płytkę zgodnie z instrukcją, co wymaga użycia obiektywu 10x.
- Należy wybrać widok Advanced Setup, aby zaznaczyć odpowiednie dołki i dodać 3 różne punkty obrazowania w pobliżu centrum dołka za pomocą funkcji Positions. Można to zrobić ręcznie w podzakładce Position lub losowo, korzystając z karty Position Setup i wybierając opcję Setup by Carrier. Czynność należy powtórzyć dla wszystkich dołków z tym samym barwieniem.
- W celu optymalnego ustawienia ostrości i pozycjonowania stosu Z podczas automatyzacji, należy przejść do karty Focus Strategy i wybrać opcję Use Focus Surface/Z values Defined by Tiles Setup. Można zastosować inne strategie ustawiania ostrości, jednak dla uzyskania najbardziej spójnych wyników zaleca się to ustawienie.
- W karcie Tiles należy kliknąć Verify Positions i ręcznie ustawić centralną płaszczyznę Z dla każdej pozycji. Ustawienia w podzakładce Options określą kolejność akwizycji obrazów, dlatego należy je sprawdzić przed rozpoczęciem obrazowania. Aby uzyskać obrazy w kolejności wyboru pozycji, należy odznaczyć pola Tile Regions/Positions oraz Carrier Wells/Container. W celu ułatwienia przetwarzania obrazów należy zaznaczyć opcję Split Scenes into Separate Files.
- Należy upewnić się, że w karcie Z-Stack wybrano opcję Center, wprowadzono zakres zgodny z preferencjami użytkownika, a przycisk Optimal został wybrany w celu ustawienia odstępu między przekrojami.
- Po zoptymalizowaniu kart Acquisition Mode, Channels, Focus Strategy, Z-Stack oraz Tiles można rozpocząć eksperyment.
- Przetwarzanie obrazów
- Stosując metodę wsadowego przetwarzania obrazów, należy stworzyć projekcje maksymalne z każdego stosu Z metodą Extended Depth of Focus.
- Stosując metodę wsadowego przetwarzania obrazów, należy wyeksportować pliki projekcji maksymalnych jako 16-bitowe obrazy TIFF. Kompresję należy ustawić na None i upewnić się, że zaznaczono opcję Original Data. Wynikowy obraz powinien być czarno-białą projekcją maksymalną TIFF wyłącznie dla kanału fluorescencyjnego, w którym ekspresowany jest marker lipidowy.
7. Segmentacja i kwantyfikacja
UWAGA: Program LipidUNet został wytrenowany na obrazach o powiększeniu 40x z płytki 96-dołkowej. Zaleca się stosowanie obrazów uzyskanych przy użyciu obiektywu 40x.
- Zainstaluj oprogramowanie LipidUNet. LipidUNet można pobrać z następnego repozytorium GitHub: https://github.com/RPEGoogleMap/LipidUNet
- Zidentyfikuj obrazy TIFF reprezentujące Nile Red, Bodipy lub APOE i przenieś je do folderu o nazwie imgs wewnątrz katalogu o nazwie Nile_Red, Bodipy lub APOE, w zależności od stosowanej metody.
UWAGA: Aby program LipidUNet mógł rozpoznać katalogi, należy zastosować dokładne konwencje nazewnictwa. - Otwórz oprogramowanie LipidUNet (Ryc. 4).
- W karcie Predict oprogramowania wybierz odpowiedni katalog (Nile_Red, Bodipy lub APOE), klikając wielokropek i przechodząc do nazwanego katalogu. Potwierdź, że program LipidUNet poprawnie zidentyfikował obrazy, sprawdzając wpis Class.
- Wybierz próg prawdopodobieństwa dla algorytmu z zakresu od 0,01 do 0,99. Wyższa wartość wyeliminuje więcej wyników fałszywie dodatnich, ale może spowodować więcej wyników fałszywie ujemnych, natomiast niższe wartości mogą wprowadzić więcej wyników fałszywie dodatnich, eliminując jednocześnie więcej wyników fałszywie ujemnych. Wartość 0,65 jest domyślna i zalecana.
- Kliknij Predict.
UWAGA: Oprogramowanie automatycznie przeanalizuje wszystkie obrazy i utworzy nowy folder o nazwie predicted_masks w wybranym katalogu. - Użyj narzędzia Mask Analysis do analizy wygenerowanych masek i uzyskania ilościowego przeliczenia progowych złogów lipidowych z obrazów masek.
- Przeanalizuj wygenerowane dane liczbowe, aby porównać warunki traktowania.
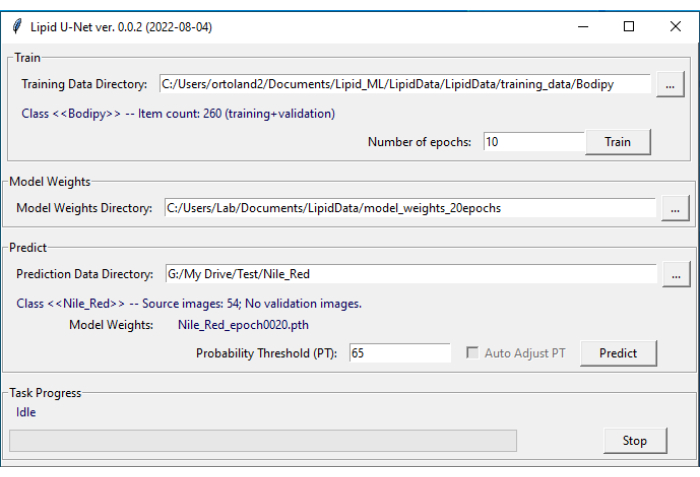
Rysunek 4: Interfejs użytkownika LipidUNet.Oprogramowanie LipidUNet posiada różne sekcje służące do wyboru katalogu danych treningowych, w którym obrazy złogów lipidowych zostały prawidłowo zidentyfikowane; katalogu wag modelu, które są generowane na podstawie danych treningowych; oraz katalogu danych do predykcji, w którym użytkownik wprowadza własne obrazy do segmentacji. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
Wyniki
Niniejszy protokół przedstawia schemat postępowania w celu identyfikacji złogów lipidowych barwionych Nile Red, BODIPY i APOE. Opracowane oprogramowanie potrafi automatycznie identyfikować i kwantyfikować złogi lipidowe, wykazując najwyższą skuteczność przy zastosowaniu zoptymalizowanego opisanego protokołu. Dołączono przykłady dobrze zróżnicowanych komórek RPE (Rysunek 3A) oraz słabo zróżnicowanych komórek RPE (Rysunek 3B), ponieważ jakość modelu komórkowego ma znaczący wpływ na jakość prawidłowej segmentacji obrazu.
Dwa z trzech markerów opisanych w protokole, Nile Red oraz BODIPY, są identyfikowane jako małe okrągłe punkty, które są wyraźnie jasne na obrazach fluorescencyjnych (Rysunek 5 oraz Rysunek 6). Obrazem „pozytywnym” w ramach protokołu byłaby właściwa identyfikacja tych wyraźnych złogów (Rysunek 5A-D oraz Rysunek 5E-H). Wynik „negatywny” wykazywałby błędną segmentację obrazu, polegającą na pomyleniu fluorescencji tła ze złogiem, co może wynikać znikłego barwienia (Rysunek 6A-C oraz Rysunek 6D-F) lub z wysokiej intensywności tła (Rysunek 6G-I).
Osady APOE mają różżne rozmiary i kształty, przyjmując formę bardziej owalną lub nieregularną, w przeciwieństwie do kolistych osadów Nile Red i BODIPY. Osady te są również mniej punktowe, a intensywność sygnału może różnić się między nimi ze względu na zmienną stopień permeabilizacji próbki. Prawidłowa identyfikacja pozwoli na wykrycie każdego osadu, w tym tych o mniejszym nasyceniu (Rysunek 5I-L), podczas gdy błędna segmentacja nie wykryje tych osadów (Rysunek 6J-L). Dlatego ważne jest zoptymalizowanie metod barwienia i obrazowania, aby uniknąć drastycznych różnic. Jednym ze sposobów jest zachowanie szczególnej uwagi podczas etapów permeabilizacji próbek w trakcie immunobarwienia. Aby zoptymalizować sygnał fluorescencyjny, można poddać komórki lizie przed fiksacją i immunobarwieniem na APOE, co skutkuje równomiernym nasyceniem i lepszą segmentacją osadów APOE.
Dostarczono również segmentowane obrazy komórek dojrzewających na platformie hodowlanej innej niż płytka 96-dołkowa. Oprogramowanie LipidUNet zostało zastosowane do obrazów komórek hodowanych na wkładce transwell; chociaż złogi lipidowe zostały poddane progowaniu, zrobiono to również w przypadku porów w membranie transwell (Rysunek 6M-O). Ze względu na podobieństwo kształtu i rozmiaru, oprogramowanie LipidUNet w obecnej formie będzie maskować bez rozróżnienia zarówno złogi lipidowe, jak i pory transwell.
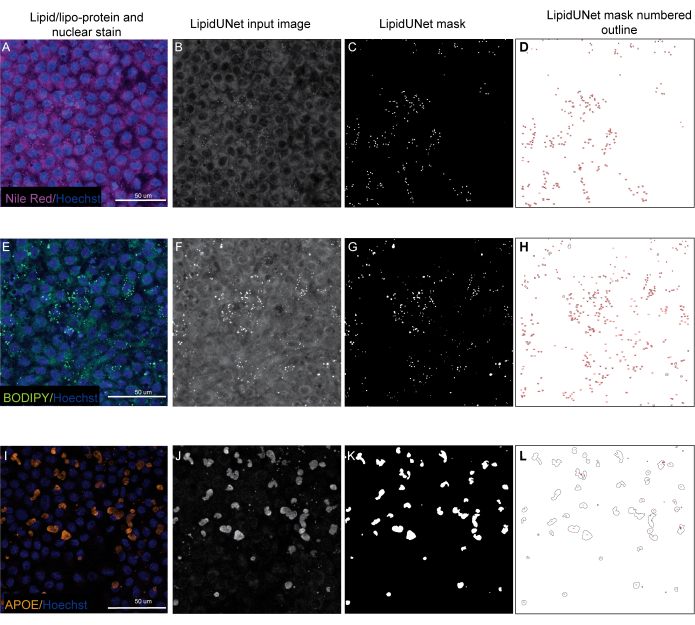
Rysunek 5: Reprezentatywne wyniki. (A,E,I) Komórki RPE w płytce 96-dołkowej poddane barwieniu jądra Hoechst (niebieski) oraz barwieniu Nile Red (magenta), BODIPY (zielony) lub APOE (pomarańczowy); przedstawiono maksymalne projekcje intensywności stosu Z. (B,F,J) Wejściowe obrazy w skali szarości dla oprogramowania LipidUNet po procesowaniu obrazu. (C,G,K) Maski wygenerowane przez LipidUNet, w których wszystkie depozyty zostały poprawnie zidentyfikowane. (D,H,L) Ponumerowane obrysy każdej zamaskowanej cząstki. Etykiety te pozwalają powiązać każdą cząstkę na obrazie z wpisem w arkuszu kalkulacyjnym z surowymi danymi. (A-D) przedstawia barwienie Nile Red; oprogramowanie jest w stanie dokładnie rozpoznać depozyty na tle, mimo słabszego sygnału. (E-H) pokazuje silny kontrast między sygnałem BODIPY a tłem, co jest stanem idealnym. LipidUNet poprawnie identyfikuje każdy depozyt na obrazie. (I-L) przedstawia silny sygnał APOE i obrazuje zmienność saturacji sygnału, która często występuje przy tym barwieniu. Mimo to segmentacja obrazu pozwala zidentyfikować granice każdego depozytu APOE. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
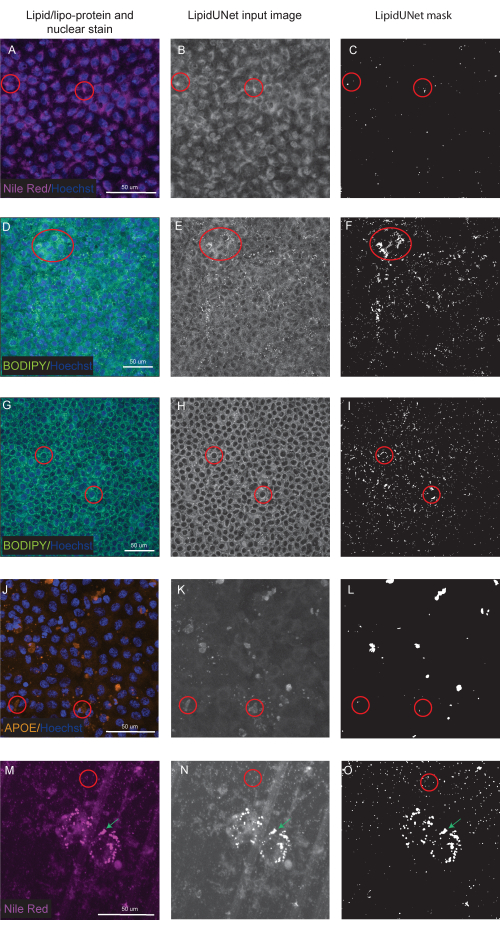
Rycina 6: Nieoptymalne wyniki. (A,D,G,J,M) Komórki RPE w płytce 96-dołkowej barwione Hoechst (jądra komórkowe, kolor niebieski) oraz Nile Red (magenta), BODIPY (zielony) lub APOE (pomarańczowy); przedstawiono projekcje maksymalnej intensywności ze stosu Z. (B,E,H,K,N) Obrazy wejściowe w skali szarości dla oprogramowania LipidUNet po procesowaniu obrazu. (C,F,I,L,O) Błędne maski wygenerowane przez LipidUNet. Czerwone okręgi wskazują miejsca, w których oprogramowanie błędnie zidentyfikowało złóg lipidowy. (A-C) Procesowanie Nile Red jest błędne, ponieważ oprogramowanie zidentyfikowało barwienie tła jako złóg. Może to zdarzać się częściej przy wysokim poziomie tła i niewielkiej liczbie złogów lipidowych na obrazie. Przedstawiono dwa przykłady barwienia BODIPY: obraz słabej jakości wynikający ze (D-F) słabego barwienia BODIPY oraz (G - I) silny sygnał BODIPY z wysokim poziomem tła. W obu przypadkach oprogramowanie nie jest w stanie odróżnić małych, okrągłych złogów lipidowych od okrągłego pierścienia tła otaczającego jądro. Chociaż barwienie i obrazowanie powinny zostać zoptymalizowane, aby uniknąć tych błędów, najnowsza wersja LipidUNet została w znacznym stopniu ulepszona pod kątem takich obrazów. (J-L) Błędna segmentacja APOE. Ze względu na większą zmienność rozmiaru i nasycenia sygnału złogów, oprogramowanie ma trudności z rozpoznaniem niektórych z nich. (M-O) RPE wysiane na transwell i barwione Nile Red. Przedstawiono przekrój stosu Z z widocznymi złogami lipidowymi Nile Red oraz porami transwell. Oprogramowanie nie potrafi odróżnić tych dwóch elementów, co obrazuje czerwony okrąg zawierający pory transwell oraz zielona strzałka wskazująca złogi Nile Red. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
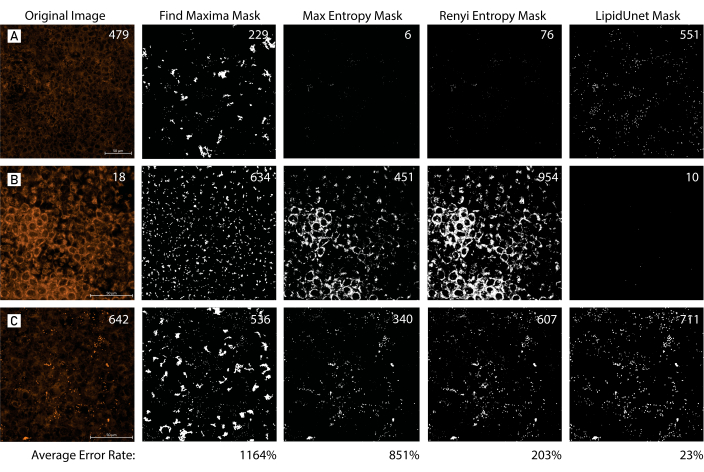
Rysunek 7: Porównanie narzędzi do tworzenia masek. (A,B,C) Komórki RPE w płytce 96-dołkowej z różnym stopniem odkładania lipidów zostały zidentyfikowane za pomocą Nile Red (czerwony). Obrazy zamaskowano przy użyciu trzech różnych powszechnych metod maskowania: Find Maxima, Max Entropy i Renyi Entropy, a następnie porównano z maską wygenerowaną przez LipidUNet. Obrazowi oryginalnemu towarzyszy ręczne przeliczenie złogów lipidowych, natomiast maski wyświetlają liczby przewidziane przez każdą metodę segmentacji. Średni współczynnik błędów dla każdej metody segmentacji obliczono według następującego wzoru: średnia[(|Liczba Przewidziana - Liczba Ręczna|/Liczba Ręczna) x 100]. Maska wygenerowana przez LipidUNet dokładniej identyfikuje złogi lipidowe na obrazach o zróżnicowanym stopniu odkładania w porównaniu z innymi metodami maskowania (Średnie współczynniki błędów: 23% LipidUnet, 1164% Find Maxima, 851% Max Entropy, 203% Renyi Entropy). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Składnik | Nr katalogowy | Stężenie zapasu | Stężenie końcowe | mL |
| MEM alpha | 12571-063 | NA | 500 | |
| Suplement N2 | 17502-048 | NA | 1% | 5 |
| FBS inaktywowany ciepłem | SH30071.03 | NA | 5% | 25 |
| NMEM NEAA | 11140-050 | 10mM | 0.01mM | 5 |
| Pirowinian sodu | 11360-070 | 100mM | 1mM | 5 |
| Penicylina-streptomycyna | 15140-122 | 10000u/mL | 100U/mL | 5 |
| Tauryna | T4571 | 50mg/mL | 250ug/mL | 2.5 |
| Hydrokortyzon | H6909 | 18.1mg/L | 20ug/L | 0.553 |
| T3 | T5516 | 20ug/L | 0.013ug/L | 0.33 |
| Objętość całkowita, mL | 548.383 | |||
Tabela 1: Skład odczynników RPE-MM. Lista odczynników i optymalne stężenia dla RPE-MM.
Dyskusja
Protokół ten zapewnia metodę skutecznego znakowania, obrazowania i ilościowego oznaczania złogów lipidów w monogenowych i poligenicznych modelach chorób in vitro dla zwyrodnieniowych chorób oczu. Oprogramowanie oparte na sztucznej inteligencji, LipidUNet, można zastosować do trzech popularnych markerów lipidowych: APOE, czerwieni Nilowej i BODIPY, i zapewnia szybką, automatyczną metodę analizy, która pozwala na standardowe i bezstronne określanie ilościowe.
Głównym ograniczeniem LipidUNet jest fakt, że zestaw danych treningowych dla sztucznej inteligencji był ograniczony do obrazów komórek hodowanych na 96-dołkowej płytce w 40-krotnym powiększeniu. W wyniku zestawu obrazów treningowych, LipidUNet w swojej obecnej formie ogranicza się do analizy obrazów w powiększeniu 40x. Oprogramowanie może być używane do analizy 40-krotnych obrazów komórek hodowanych na innych powierzchniach hodowlanych poza płytką 96-dołkową, ale należy zachować ostrożność w celu zbadania wygenerowanych masek wyjściowych w celu sprawdzenia dokładnego progowania przez oprogramowanie. Potrzeba więcej zestawów obrazów (przy różnych powiększeniach), aby rozszerzyć zakres próbek/obrazów, które może analizować.
Protokół składa się z kilku krytycznych kroków. Na etapie markera lipidowego użytkownik powinien potwierdzić, że wybrany przez niego związek znakujący (BODIPY, APOE, czerwień nilowa) skutecznie oznaczył próbkę. Dojrzałe komórki RPE są często silnie pigmentowane, co może osłabiać sygnał fluorescencyjny barwienia immunologicznego przeciwciał. Gdy sygnał fluorescencyjny jest słaby lub gdy występuje zbyt duże zabarwienie tła, LipidUNet nie jest w stanie dokładnie rozróżnić kropelek lipidów. Z podobnego powodu należy stosować odpowiednio dobrane ustawienia akwizycji dla kroku automatycznego obrazowania protokołu. Jeśli uzyskane obrazy są niskiej jakości, LipidUNet będzie miał trudności z prawidłowym maskowaniem obrazów, a zatem kwantyfikacja będzie niedokładna (Rysunek 6A-L). Wreszcie, przetwarzanie końcowe obrazów jest ważnym krokiem, ponieważ LipidUNet ma określone wymagania dotyczące działania oprogramowania.
W porównaniu z przepływami pracy do analizy lipidów, które wykorzystują ręczne progowanie lub techniki, które obejmują automatyczne progowanie w oprogramowaniu takim jak Fidżi, LipidUNet oferuje bezstronną i wiarygodną segmentację obrazów ze zmiennym osadzaniem lipidów, co znajduje odzwierciedlenie w niewielkim poziomie błędów w identyfikacji cząstek lipidów (ryc. 7). Oprogramowanie pozwala na wprowadzanie przez użytkownika dodatkowych obrazów treningowych, co pozwala na analizę zestawów obrazów poza tymi, które wykorzystują obiektyw o 40-krotnym powiększeniu, a nawet tymi, które wykorzystują inny marker lipidowy, zgodnie z opisem w protokole. W przyszłości oprogramowanie zostanie przeszkolone w zakresie analizy obrazów 3D, tak aby możliwe było ilościowe określenie objętości złogów lipidowych. Choroby zwyrodnieniowe oczu, które wiążą się z odkładaniem się lipidów jako głównym czynnikiem przyczyniającym się do patologii, są powszechne i przewiduje się, że liczba przypadków wzrośnie wraz z powiększaniem się populacji osób starszych13. Dokładne modele chorób i skuteczne narzędzia analityczne, jak opisaliśmy w niniejszym protokole, pozwolą na opracowanie nowatorskich interwencji terapeutycznych.
Oświadczenia
Brak ujawniania informacji.
Podziękowania
Dziękujemy rdzeniowi histologicznemu National Eye Institute (NEI) za użycie systemu konfokalnego Zeiss. Prace te zostały wsparte ze środków IPB (nr grantu ZIA EY000533-04).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,22 &mikro; m System filtrów Steriflip | EMD Millipore | SCGP00525 | |
| 1x Dulbecco's Phosphate Buffered Saline | Gibco | 14190-144 | |
| 3,3',5-Triiodo-L-tyronina | Sigma | T5516 | |
| Albumina bydlęca, frakcja V | MP Biomedical | 160069 | |
| Alexa Fluor 555 królik anty-kozi IgG (H+L) | Invitrogen | A21431 | APOE przeciwciało drugorzędowe |
| APOE przeciwciało pierwszorzędowe | Millipore Sigma | AB947 | |
| BODIPY 493/503 | Invitrogen | D3922 | Chronić przed światłem |
| Uzupełnij kompetentną ludzką surowicę | Millipore Sigma | S1-LITR | |
| CTS N2 Suplement | Life Technologies | A13707-01 | |
| Hyklon płodu bydlęcego | SH30071.03 | ||
| Fluoromount-G | SouthernBiotech | 0100-01 | Nośniki do montażu szkiełek |
| Szkiełka nakrywkowe #1 1/2 22 mm x 22 mm | Mikroskopia elektronowa Sciences | 72204-01 | |
| Szkiełko mikroskopowe 25 mm x 75 mm - grubość 1,2 mm | Mikroskopia elektronowa Sciences | 71870-01 | |
| Hydrokortyzon | Sigma | H0396 | |
| MEM | Alpha Life Technologies | 12571-063 | |
| MEM endogenne aminokwasy | Life Technologies | 11140 | |
| Red | Sigma | 72485-100MG | Ochrona przed światłem |
| Paraformaldehyd 16% roztwór, | mikroskopia elektronowa | 15710 | |
| Penicylina-Paciorkowiec | Technologies | 15140-148 | |
| Sól fizjologiczna buforowana fosforanami 10x | Gibco | 70011-044 | |
| Zewnętrzne segmenty pręta (OS) | InVision Bioresources | 98740 | |
| Wodorowęglan sodu | Sigma Aldrich | S5761 | |
| Pirogronian sodu | Life Technologies | 11360-070 | |
| Sacharoza | Sigma Aldrich | S1888 | |
| SYBR Green Master Mix | Bio-Rad | 1725274 | |
| Taurine | Sigma | T0625 | |
| Triton X-100 | Sigma | 9002-93-1 | |
| Tween 20 Ultrapure | Affymetrix | 9005-64-5 | |
| Vitronectin | Life Technologies | A14701SA | |
| Y-27632 dichlorowodorek | R& Systemy D | 1254 |
Bibliografia
- Kanow, M. A., et al. Biochemical adaptations of the retina and retinal pigment epithelium support a metabolic ecosystem in the vertebrate eye. eLife. 6, e28899(2017).
- Adijanto, J., et al. The retinal pigment epithelium utilizes fatty acids for ketogenesis. The Journal of Biological Chemistry. 289 (30), 20570-20582 (2014).
- Farnoodian, M., et al. Cell-autonomous lipid-handling defects in Stargardt iPSC-derived retinal pigment epithelium cells. Stem Cell Reports. 17 (11), 2438-2450 (2022).
- Curcio, C. A. Soft drusen in age-related macular degeneration: Biology and targeting via the oil spill strategies. Investigative Ophthalmology & Visual Science. 59 (4), AMD160-AMD181 (2018).
- Cankova, Z., Huang, J. D., Kruth, H. S., Johnson, M. Passage of low-density lipoproteins through Bruch's membrane and choroid. Experimental Eye Research. 93 (6), 947-955 (2011).
- Curcio, C. A., et al. Esterified and unesterified cholesterol in drusen and basal deposits of eyes with age-related maculopathy. Experimental Eye Research. 81 (6), 731-741 (2005).
- Miyagishima, K. J., et al. AMPK modulation ameliorates dominant disease phenotypes of CTRP5 variant in retinal degeneration. Communications Biology. 4 (1), 1360(2021).
- Sharma, R., et al. Epithelial phenotype restoring drugs suppress macular degeneration phenotypes in an iPSC model. Nature Communications. 12 (1), 7293(2021).
- Farnoodian, M., et al. Cell-autonomous lipid-handling defects in Stargardt iPSC-derived retinal pigment epithelium cells. Stem Cell Reports. 17 (11), 2438-2450 (2022).
- Hallam, D., et al. An induced pluripotent stem cell patient specific model of complement factor H (Y402H) polymorphism displays characteristic features of age-related macular degeneration and indicates a beneficial role for UV light exposure. Stem Cells (Dayton, Ohio). 35 (11), 2305-2320 (2017).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protocols. 3 (3), 101582(2022).
- Issa, P. C., Barnard, A. R., Herrmann, P., Washington, I., MacLaren, R. E. Rescue of the Stargardt phenotype in Abca4 knockout mice through inhibition of vitamin A dimerization. Proceedings of the National Academy of Sciences of the United States of America. 112 (27), 8415-8420 (2015).
- GBD 2019 Blindness and Vision Impairment Collaborators. Blindness and Vision Impairment Collaborators. Causes of blindness and vision impairment in 2020 and trends over 30 years, and prevalence of avoidable blindness in relation to VISION 2020: the Right to Sight: an analysis for the Global Burden of Disease Study. Lancet Global Health. 9 (2), e144-e160 (2021).
Przedruki i uprawnienia
