Leishmania Translational Extract (LTE) to eukariotyczny system ekspresji białek bez komórek, pochodzący od jednokomórkowego pasożyta, Leishmania tarentolae. Ten zoptymalizowany protokół sprawia, że produkcja LTE jest prosta i opłacalna. Nadaje się do różnych zastosowań skoncentrowanych na wielorównoległej ekspresji i badaniu złożonych białek eukariotycznych i ich interakcji.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Produkcja i optymalizacja LTE, bezkomórkowego systemu ekspresji białek pochodzących z Leishmania tarentolae do produkcji białek rekombinowanych
W tym artykule
Podsumowanie
Streszczenie
Ten protokół opisuje produkcję i optymalizację eukariotycznego Systemu Ekspresji Białek Wolnych od Komórek (CFPS) pochodzącego z jednokomórkowego wiciowca Leishmania tarentolae, określanego jako Leishmania Translational Extract lub LTE. Chociaż organizm ten pierwotnie wyewoluował jako pasożyt gekonów, można go łatwo i niedrogo hodować w kolbach lub bioreaktorach. W przeciwieństwie do Leishmania major nie jest patogenny dla ludzi i nie wymaga specjalnych środków ostrożności laboratoryjnej. Kolejną zaletą stosowania Leishmania w CFPS jest to, że dodanie pojedynczego oligonukleotydu antysensownego do CFPS, ukierunkowanego na konserwatywną sekwencję lidera splicingu na końcu 5' wszystkich RNA kodujących białka, może hamować endogenną ekspresję białek. Zapewniamy procedury rozbijania komórek i przetwarzania lizatów, które zostały uproszczone i ulepszone w porównaniu z poprzednimi wersjami. Procedury te rozpoczynają się od prostych kultur kolbowych. Ponadto wyjaśniamy, jak wprowadzać informacje genetyczne za pomocą wektorów zawierających niezależne od gatunku miejsca inicjacji translacji (SITS) oraz jak przeprowadzić prostą optymalizację partii i kontrolę jakości, aby zapewnić stałą jakość ekspresji białek.
Wprowadzenie
W latach sześćdziesiątych XX wieku bezkomórkowe systemy ekspresji białek odegrały kluczową rolę w odkryciu kodu genetycznego1. Jednak prokariotyczne bezkomórkowe systemy ekspresji białek, oparte głównie na E. coli, dominują obecnie zarówno w zastosowaniach laboratoryjnych, jak i komercyjnych. Podczas gdy systemy oparte na E. coli oferują korzyści, takie jak opłacalność, skalowalność i wysoka wydajność ekspresji, napotykają wyzwania podczas produkcji białek wielodomenowych w ich aktywnych formach i ułatwiania składania kompleksów białkowych2,3. W dzisiejszych czasach powszechnie stosowane formy eukariotycznej syntezy białek bezkomórkowych (CFPS) obejmują ekstrakt z kiełków pszenicy (WGE), lizat retikulocytów królika (RRL) i lizat komórek owadów (ICL)4,5,6. Niniejsza praca przedstawia alternatywny, bezkomórkowy system eukariotyczny, który jest zarówno prosty, jak i skalowalny, oparty na jednokomórkowym pasożytze wiciowców Leishmania tarentolae.
Leishmania tarentolae może być łatwo hodowany w kolbach przy użyciu opłacalnych pożywek, a także może być skalowany w bioreaktorach, aby osiągnąć większą gęstość komórek. Obecność endogennych mRNA w lizacie komórkowym, które w przeciwnym razie mogłyby konkurować z wprowadzonymi wiadomościami, może być neutralizowana za pomocą oligonukleotydów antysensownych ukierunkowanych na konserwatywną sekwencję lidera splicingu mRNA Leishmania7. W przeciwieństwie do swojego bliskiego krewnego Leishmania major, który powoduje choroby u ludzi, L. tarentolae infekuje gekona mauretańskiego (Tarentolae mauritanica), dzięki czemu nadaje się do hodowli w warunkach laboratoryjnych PC2 bez konieczności stosowania specjalnych środków ostrożności. Wcześniej był używany jako organizm transgeniczny do ekspresji białek in vivo8.
Aby ułatwić tworzenie matryc w systemach bezkomórkowych, zaprojektowano uniwersalne sekwencje oparte na polimerowych strukturach RNA, które zwiększają inicjację translacyjną9. Te niezależne od gatunku sekwencje translacyjne (SITS) mają zastosowanie zarówno do systemów prokariotycznych, jak i eukariotycznych bezkomórkowych i są odpowiednie do wprowadzania informacji genetycznej do LTE. Chociaż protokół ten nie zapewnia szczegółowego wyjaśnienia budowy wektorów do ekspresji białek bezkomórkowych LTE, optymalizacja i kontrola jakości wymagają odpowiednich wektorów zawierających fuzje fluoroforowe pożądanych białek będących przedmiotem zainteresowania poniżej miejsca SITS. W tym celu odpowiednie wektory LTE zostały zdeponowane w repozytorium genów Addgene, takie jak wektor pCellFree_G03, który koduje N-końcową fuzję eGFP do pożądanego białka będącego przedmiotem zainteresowania przy użyciu miejsc klonowania Gateway.
LTE udowodniło swoją wartość w szerokim zakresie zastosowań wymagających ekspresji białek, w tym w analizie samoorganizacji białek10,16, produkcja ludzkich integralnych białek błonowych17, badania nad kandydatami na leki przeciwwirusowe18, rozwój biotechnologicznie użytecznych enzymów19, prototypowanie biosensorów białkowych20,21, oraz badanie leków biologicznych od tęgoryjców22. LTE odegrało również zasadniczą rolę w mapowaniu sieci interakcji białko-białko w dziedzinie wirusologii i struktur komórkowych21,32. LTE zostało przetestowane pod kątem działania podobnego do innych systemów eukariotycznych bezkomórkowych pod względem ekspresji białek o pełnej długości, monorozproszonych i niezagregowanych33, a wszystko to przy jednoczesnym oferowaniu bardziej opłacalnej i skalowalnej produkcji.
Ten protokół dostarcza technik hodowli i zakłócania organizmu gospodarza, przygotowania lizatu i uzupełniania roztworu żywieniowego (FS) do sprzężonej ekspresji białek transkrypcyjnych/translacyjnych. Dodatkowo zawiera protokół do optymalizacji partii produkcyjnych. W początkowej wersji systemu bezkomórkowego Leishmania zaobserwowano niepożądane różnice między partiami w poziomach ekspresji, frakcji białek o pełnej długości i obecności agregatów białkowych, co prowadziło do utylizacji batches34. Kolejne ulepszenia protokołu zostały wprowadzone w celu rozwiązania tego problemu25. Obecny protokół opiera się na tych ulepszeniach, umożliwiając optymalizację poszczególnych partii pod kątem szczytowej ekspresji i wielkości białka. Osiąga to poprzez ścisłą kontrolę obciążenia ogniw zakłócających (mierzone jako gęstość optyczna przy 600 nm; OD600nm) i normalizując otrzymaną produkcję lizatu za pomocą absorbancji przy 280 nm (Abs280nm). Ponadto zawiera metodę częściowego uzupełniania lizatu w rNTP i magnez podczas produkcji, z późniejszą optymalizacją tych składników roztworu paszowego podczas wyrażeń testowych. Chociaż ta optymalizacja jest przedstawiona jako opcja w protokole, jest zdecydowanie zalecana przez autorów.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Niniejszy protokół zawiera szczegółowe przepisy na pożywki oraz kroki obejmujące hodowlę, wirowanie, pomiar fluorescencji GFP za pomocą wielomodułowego czytnika płytek, pomiar gęstości optycznej kultury OD600nm oraz ocenę Abs280nm lizatu. Obejmuje on również przygotowanie i obrazowanie żeli białkowych SDS-PAGE. Materiały wymagane lub sugerowane dla tego protokołu są wymienione w arkuszu Materials. Należy pamiętać, że typowe zasoby laboratoryjne, takie jak składniki pożywek, wirówki, probówki, spektrofotometry i zestawy do elektroforezy żelowej, mogą być prawdopodobnie stosowane zamiennie, chyba że wskazano inaczej. Rycina 1 przedstawia podsumowanie procesu produkcji LTE.
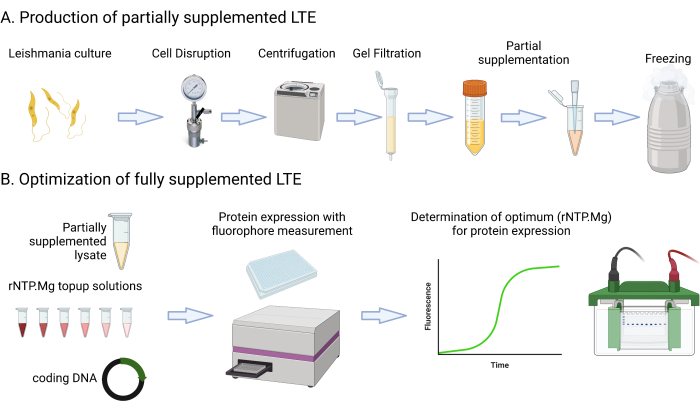
Rysunek 1: Przegląd protokołu wytwarzania LTE. Ten schemat przedstawia zwięzłe podsumowanie protokołu wytwarzania LTE. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
1. Hodowla kultur Leishmania tarentolae
- Przygotuj co najmniej 3 l pożywki wzrostowej TBGG (baktotrypton 12 g/l, ekstrakt drożdżowy 24 g/l, glicerol 8 ml/l, glukoza 1 g/l, KH2PO4 2,3 g/L, K2HPO (hematoksylina i eozyna)4 2,5 g/L, patrz Tabela materiałów). Sterylizować pożywki za pomocą 0.22 µm filtrować pod próżnią lub w podobnym układzie.
- Przechowywać pożywkę w temperaturze pokojowej (RT), dodając końcowe składniki (heminę, antybiotyki) bezpośrednio przed zaszczepieniem L. tarentolaeDodaje się heminę (0,25% v/v w 50% trietanoloaminie) w stężeniu 0,2% v/v, penicylinę (10 000 jednostek/ml) oraz streptomycynę (10,000 µg/mL) zmieszać w stężeniu 0,5% v/v.
UWAGA: Punktem wyjścia niniejszego protokołu jest utrzymywana hodowla typu dzikiego w objętości 2 x 10 ml *L. tarentolae*Kultury podtrzymujące hoduje się w 27 °C w standardowych kolbach do hodowli tkankowej o pojemności 50 ml przy niskiej prędkości wytrząsania (75 obr./min). Takie 10 ml kultury można utrzymywać w nieskończoność, wykonując rozcieńczenia w stosunku ok. 1/20 w sterylnym medium (TBGG + hemina, penicylina, streptomycyna) co 2–3 dni. Zaleca się stosowanie standardowej komory z laminarnym przepływem powietrza w laboratorium klasy PC2; jednakże zanieczyszczenia bakteryjne są zazwyczaj zapobiegane dzięki dodatkowi antybiotyków, natomiast zanieczyszczenia grzybicze są zazwyczaj wypierane przez *L. tarentolae*. - W ciągu dwóch dni namnażać *L. tarentolae* przenieść kultury podtrzymujące do 200 ml (dzień 1), a następnie do 2 l (dzień 2) poprzez Rozcieńczenia 1:10 z każdego dnia zwiększającą objętością pożywki TBGG + heminy/antybiotyków. Oba rozcieńczenia należy przeprowadzić w wysterylizowanych w autoklawie szklanych kolbach z przegrodami o pojemności 5 L (wypełnionych maksymalnie do 1 L). Drugie rozcieńczenie musi odbyć się po południu między godziną 15:00 a 18:00, aby możliwe było rozpoczęcie produkcji lizatu następnego dnia między godziną 8:00 a 11:00.
UWAGA: Niniejszy protokół wykorzystuje minimalną objętość początkową do produkcji LTE (2 x 1 l kultur). Możliwe jest również zwiększenie objętości hodowli do 10 l w celu produkcji LTE poprzez wprowadzenie dodatkowego etapu namnażania (np. dzień 1: 100 ml; dzień 2: 1 l; dzień 3: 10 l). Choć w tym protokole zastosowano kolby z przegrodami (patrz Tabela materiałów) aby hodować *L. tarentolae*opcjonalnie można zastosować konwencjonalne bioreaktory przeznaczone do hodowli bakterii z mieszadłami typu Rushtona, pod warunkiem zachowania prędkości mieszania poniżej 100 obr./min. Lepsze napowietrzanie i kontrola pH w bioreaktorach zazwyczaj wydłużają fazę logarytmicznego wzrostu *L. tarentolae* kultury, co pozwala na uzyskanie wyższej gęstości optycznej (OD) podczas zbioru600 nm z 10 do wykorzystania w kroku 1.4. - Zapisz wartość OD600 nm hodowli w trzech powtórzeniach poprzez roztwór w rozcieńczeniu 1:10 w buforze TBGG bezpośrednio w kuwecie spektrofotometrycznej. Odpowiednim zakresem początkowym do sporządzania lizatu jest OD600 nm = 4.0-8.0.
- Wydłużyć czas inkubacji, jeśli OD600 nm < 4.0. Kultura o gęstości optycznej (OD)600 nm > Wartość 8 jest dopuszczalna i pozwoli na uzyskanie większej objętości lizatu do ekspresji bezkomórkowej, jednak o niższej jakości ze względu na rozpoczęcie późnej fazy wzrostu logarytmicznego. Kolby z hodowlą należy umieścić w lodzie i odstawić do kolejnych etapów.
UWAGA: Dokładny pomiar gęstości optycznej (OD) końcowej hodowli600 nm jest kluczowy, ponieważ służy do obliczenia końcowej objętości skoncentrowanych komórek przed ich rozbiciem. Obliczenie to zastępuje metodę ważenia osadu, stosowaną w poprzednich wersjach produkcji LTE w celu kalibracji stężenia komórek przed rozbiciem.34w celu uproszczenia protokołu. Należy pamiętać o rozcieńczeniu w pożywce TBGG w celu pomiaru OD600 nm pomiaru, ponieważ w przeciwnym razie szok osmotyczny zmienia kształt komórek, co prowadzi do błędów pomiarowych. Wymieszać za pomocą pipety rozcieńczenie 1:10 do pomiaru OD600 nm pomiar (bezpośrednio w kuwecie) na kilka sekund przed odczytem spektrofotometrycznym, jako L. tarentolae komórki szybko opadają, tworząc charakterystyczny mętny osad. Jeśli końcowa objętość hodowli ekspresyjnej jest uznana za przybliżoną, zaleca się również ważenie kolb podczas zbioru (z uwzględnieniem odpowiedniej masy pustej kolby), aby uzyskać dokładniejszą szacunkową objętość (przy założeniu 1 g = 1 ml). Maksymalna gęstość optyczna (OD)600 nm możliwe z *L. tarentolae* przyrost w kolbach z przegrodami wynosi 15–20, choć jest to niewłaściwe dla produkcji lizatu ze względu na osiągnięcie fazy stacjonarnej.
2. Zagęszczanie kultur L. tarentolae
- Komórki Leishmania muszą zostać przemyte i skoncentrowane około 60-krotnie przed rozbiciem. Oblicz objętość docelową dla koncentracji komórek w oparciu o OD600nm = 300 dla końcowego koncentratu. Równanie to: V = objętość zbioru (mL) x (OD600nm zbioru/300). Na przykład, przy użyciu hodowli 2 L z OD600 zbioru = 5, objętość docelowa wynosi 33 mL.
UWAGA: Docelowa wartość OD600nm wynosząca 300 może zostać zmodyfikowana; w poprzednich produkcjach LTE stosowano wartości w zakresie 150-350. Wyższe stężenia komórek poddawanych rozbiciu zazwyczaj prowadzą do końcowych bezkomórkowych reakcji ekspresji o wyższych wydajnościach białek, ale z większą tendencją do agregacji białek wrażliwych. OD600nm = 300 stanowi odpowiednią domyślną wartość docelową dla produkcji LTE. - Przenieś zebrane hodowle do odpowiednich butelek do wirowania i wiruj przy 2500 x g przez 10 min w temperaturze 4 °C. Ostrożnie zlej nadsącz do odpadów z hodowli.
UWAGA: Ważne jest zminimalizowanie utraty komórek do odrzucanego nadsączu, ponieważ wpływa to na obliczenie obciążenia podczas rozbicia. W poprzednich protokołach produkcji LTE stężenie komórek L. tarentolae do rozbicia kalibrowano poprzez wirowanie koncentratu komórkowego w probówce do mikrocentryfugi i pomiar wagi osadu w stosunku do wagi całkowitej34. Ten uproszczony protokół wykorzystuje zamiast tego teoretyczną wartość docelową OD600nm dla koncentratu, opartą na zmierzonym OD600nm zbioru, i zakłada niską utratę komórek podczas koncentracji i płukania komórek. - Przemyj osad komórkowy w buforze SEB (45 mM HEPES-KOH pH 7.6, 250 mM sacharozy, 100 mM KOAc, 3 mM Mg(OAc)2, przechowywanym na lodzie) trzykrotnie, za każdym razem wirując przy 2500 x g przez 10 min w temperaturze 4 °C. Podczas pierwszego płukania resuspenduj każde 1 L osadzonej hodowli w 100 mL buforu SEB, a następnie połącz je w jednej kolbie do wirowania. Podczas drugiego płukania również użyj 100 mL SEB na każde 1 L oryginalnej hodowli.
UWAGA: Podczas końcowej resuspensji osadu dodaj bufor SEB do 50% końcowej docelowej objętości resuspensji (krok 2.1). Pozwala to na ostrożne dopełnienie połączonego koncentratu dokładnie do końcowej objętości docelowej w kroku 2.4. Każda resuspensja musi być przeprowadzona jak najdelikatniej, aby uniknąć przedwczesnej lizy L. tarentolae, na przykład poprzez delikatne mieszanie dodanego SEB wokół odlanego osadu lub pipetowanie SEB na osad przylegający do ścianki probówki wirówki. W ostatnim kroku wygodniej może być przenieść nadsącze do mniejszych probówek wirówki. - Wlej zresuspendowany koncentrat do odpowiedniego, umytego szklanego cylindra miarowego, następnie dopełnij objętość do wartości docelowej (krok 2.1) używając dodatkowego zimnego SEB i delikatnie wymieszaj.
3. Lizowanie koncentratu L. tarentolae
- Przenieś koncentrat komórkowy do urządzenia do kawitacji azotowej (patrz Tabela materiałów) schłodzonego wcześniej do 4 °C, zwiększ ciśnienie do 70 bars azotu i inkubuj przez 45 min na lodzie.
UWAGA: Choć urządzenia do kawitacji azotowej nie są powszechnym wyposażeniem laboratoryjnym, są one zalecane do produkcji LTE. Próbowano alternatywnych metod, takich jak zamrażanie i rozmrażanie komórek oraz rozbijacze typu prasa French (French-press), jednak aktywność ekspresji białek wynosiła <50% w porównaniu z metodą kawitacji azotowej. Urządzenie do kawitacji azotowej musi być dokładnie oczyszczone przed użyciem oraz pomiędzy poszczególnymi cyklami, podobnie jak wszystkie ponownie wykorzystywane naczynia, które od tego etapu stykają się z lizatem komórkowym (np. kolba odbiorcza). Odpowiedni schemat czyszczenia obejmuje mycie detergentami laboratoryjnymi, a następnie dokładne płukanie wodą dejonizowaną. - Otwórz zawór upustowy w urządzeniu do kawitacji azotowej i wypuść powstały lizat do odpowiednio wytrzymałego pojemnika, np. próżniowej kolby odbiorczej na lodzie. Przechyl kolbę odbiorczą, aby cały powstały lizat osiadł i mógł zostać przeniesiony pipetą do nowej probówki wirówkowej lub podobnego naczynia.
OSTRZEŻENIE: Urządzenia do kawitacji azotowej opierają się na gwałtownym przejściu koncentratu komórkowego z ciśnienia 70 bars azotu do ciśnienia otoczenia, co osiąga się poprzez silny przepływ najpierw cieczy, a następnie azotu przez zawór wylotowy urządzenia. Odpowietrzanie musi być przeprowadzane z użyciem odpowiednich środków ochrony osobistej (PPE) w dygestorium chemicznym. Istnieje ryzyko stłuczenia naczynia docelowego i utraty lizatu, dlatego zamiast zwykłej kolby stosujemy wytrzymałą kolbę próżniową. Jeśli zaworem wylotowym urządzenia jest rurka, należy unikać umieszczania jej bezpośrednio wewnątrz odbiornika, aby zapobiec nadmiernemu wzrostowi ciśnienia w punkcie odpowietrzania.
4. Centryfugowanie lizatu komórkowego
- Przenieś lizat do odpowiednich probówek wirówkowych odpornych na siłę g i wiruj przy 10,000 x g przez 15 min w temperaturze 4 °C. Przenieś nadsącz do nowych, analogicznych probówek wirówkowych.
- Wiruj lizat przy 30,000 x g przez 15 min w temperaturze 4 °C, a następnie przenieś końcowy nadsącz do nowej probówki wirówkowej lub podobnego naczynia umieszczonego w lodzie. Oszacuj całkowitą objętość.
5. Filtracja żelowa lizatu komórkowego
UWAGA: Filtracja żelowa jest stosowana w celu usunięcia sacharozy zawartej w buforze SEB. Choć sacharoza wspomaga stabilizację aparatury komórkowej podczas rozrywania komórek, jej obecność w reakcjach ekspresji białek obniża wydajność.
- Przygotować odpowiednią liczbę kolumn do filtracji żelowej PD-10 zasilanych grawitacyjnie (patrz Tabela materiałów) w statywie umożliwiającym skapywanie do kuwety zbiorczej lub podobnego pojemnika pod spodem, zapewniając możliwość przefiltrowania całej objętości lizatu w ilości 2,5 mL na kolumnę. Wcześniej przeprowadzić równoważenie kolumn, przepuszczając przez nie 10 mL buforu EB w temperaturze 4 °C (45 mM HEPES-KOH pH 7.6, 100 mM KOAc, 3 mM Mg(OAc)2).
UWAGA: Wszystkie kolejne kroki najlepiej przeprowadzać w pomieszczeniu chłodniczym w temperaturze 4 °C. Można jednak również przechowywać wszystkie lizaty i odczynniki w kuwecie z lodem na blacie laboratoryjnym. Jednym wyjątkiem jest etap filtracji żelowej, podczas którego autorzy umieszczają statyw z kolumnami w lodówce w temperaturze 4 °C podczas wymiany buforu. W oryginalnych wersjach tego protokołu nowe kolumny do filtracji żelowej były „blokowane” poprzez wstępne buforowanie lizatu i odrzucenie pierwszej frakcji eluatu. Choć nie uważa się tego za konieczne, kolumny należy przepłukać buforem EB i przechowywać w temperaturze 4 °C pomiędzy partiami lizatu. Pierwsza frakcja eluatu może wykazywać niższą aktywność ekspresji białka niż kolejne frakcje ze względu na pewną retencję składników lizatu na nowej kolumnie. - Dodać 2,5 mL lizatu do każdej kolumny i odczekać, aż przesączy się on do wnętrza kolumny. Dodać dodatkowe 0,5 mL buforu EB, aby osadzić lizat w kolumnie, odrzucając eluat.
- Eluować przefiltrowany żelowo lizat, dodając kolejne 2,5 mL buforu EB do każdej kolumny, zbierając eluat do nowej, czystej kuwety lub innego naczynia umieszczonego pod kolumnami.
6. Suplementacja lizatu komórkowego
- Użyj spektrofotometru nanodrop (patrz Tabela Materiałów), aby zmierzyć Abs280nm lizatu po filtracji żelowej. Jeśli wartość przekracza 60, rozcieńcz go dodatkowym buforem EB w temperaturze 4 °C, aby osiągnąć Abs280nm = 60.
UWAGA: Choć kontrolowanie gęstości komórek wprowadzanych do procesu rozrywania za pomocą OD600nm pozwala w przybliżeniu określić moc uzyskanego lizatu, normalizacja Abs280nm po rozrywaniu i przetwarzaniu lizatu dodatkowo poprawia spójność partii pod względem wydajności lizatu. Wartość Abs280nm lizatu można korygować w górę lub w dół, co wpływa na wydajność ekspresji białek oraz agregację (patrz sekcja Dyskusja). Jeśli nieuzupełniony lizat wykazuje Abs280nm < 60, konieczne może być użycie większej biomasy Leishmania w kroku rozrywania, tj. zwiększenie ładunku rozrywacza komórkowego do OD600nm > 300 w kroku 2.1. - Dodaj 5x Feeding Solution (5x FS, Tabela 1) do lizatu w stosunku 2:5 i wymieszaj dokładnie za pomocą wibratora (vortex). Rozdziel do odpowiednich pojemników (np. probówek do mikrowirówek 1,5 mL) i zamroź szokowo w ciekłym azocie. Jeśli wykonujesz opcjonalne kroki 7.1-7.3 dotyczące optymalizacji ekspresji LTE opisane poniżej, zamiast domyślnego 5x FS użyj zredukowanego rNTP.Mg 5x FS z Tabeli 1. Przygotuj 5 aliquotów po 100 µL do zamrożenia w celu wykorzystania w eksperymentach optymalizacyjnych.
UWAGA: Zamrażanie z domyślnym 5x FS w stosunku 2:5 tworzy uzupełnione LTE gotowe do ekspresji, stosowane w ilości 7 µL/10 µL ekspresji (w związku z czym 5x FS staje się 1x FS w końcowej reakcji). Autorzy zalecają jednak wykonanie dalszych kroków opcjonalnych, w których w 5x FS dostarczone jest 0,6x domyślnej ilości rNTP i magnezu. Następuje po tym krok optymalizacji, w którym dodawany jest ekwimolarny mieszanka obu składników (określana jako rNTP.Mg), aby uzupełnić reakcje testowe do zoptymalizowanej wartości. Częściowy 5x FS zawiera również oligonukleotyd, który wyłącza endogenną ekspresję mRNA (patrz sekcja Wstęp). Sekwencja oligonukleotydu to CAATAAAGTACAGAAACTGATACTTATATAGCGTT.
7. Kontrola jakości i optymalizacja końcowego uzupełnionego LTE
UWAGA: Minimalne kroki niezbędne do określenia odpowiedniej ilości „uzupełniającego” dodatku rNTP.Mg do lizatu zredukowanego pod względem rNTP i suplementowanego magnezem polegają na ekspresji eGFP lub podobnego fluoroforu (np. sfGFP) bez partnera fuzyjnego. Do reakcji dodaje się zwiększające się stężenia rNTP.Mg, aby wyznaczyć punkt, w którym poziom ekspresji (mierzony jako RFU eGFP poprzez (czytnik płytek wielomodułowy) zostaje zoptymalizowany. Przedwczesna terminacja eGFP, która nie wykazuje fluorescencji, staje się widoczna poprzez spadek wartości RFU dla eGFP przy zbyt wysokich stężeniach rNTP.Mg. Jednakże błędy LTE prowadzące do powstawania krótkich produktów występują częściej w przypadku większych ekspresowanych białek (>50 kDa). Zatem możliwe jest przeprowadzenie tej optymalizacji przy użyciu większej matrycy niż eGFP, szczególnie jeśli jest ona dostępna w odpowiednim wektorze ekspresyjnym, zapewniając fuzję z fluoroforem, której wytworzenie metodą LTE jest pożądane dla konkretnej aplikacji lub badania (patrz sekcja Reprezentatywne Wyniki).
- Rozmrozić alikwot o objętości 100 µL i przygotować sześć reakcji ekspresyjnych o objętości 10 µL każda, składających się z 7 µL częściowo uzupełnionego lizatu z kroku 6.2, 1 µL roztworu uzupełniającego zgodnie z Table 2 oraz 2 µL wody ultrapurej zawierającej odpowiednią ilość matrycy kontrolnej DNA, aby uzyskać końcowe stężenie 50 ng/µL w reakcji.
- Inkubować reakcje przez 2 h w temperaturze 25 °C i monitorować wzrost fluorescencji GFP za pomocą wielofunkcyjnego czytnika płytek.
UWAGA: Odpowiednie wartości konfiguracji dla GFP to wzbudzenie przy 485 nm (szerokość pasma 5 nm), emisja przy 516 nm (szerokość pasma 5 nm), z interwałem odczytu 1 min przez 2 h. - Uszeregować końcowe wartości ekspresji, aby wyznaczyć stężenie rNTP.Mg odpowiadające najwyższej wartości RFU dla eGFP. Jeśli dostępne są dane kinetyczne, nadmiar rNTP.Mg będzie również wskazywany przez dwufazowy wzrost RFU eGFP podczas 2-godzinnego okresu ekspresji (patrz sekcja Representative Results).
- Po wyznaczeniu zoptymalizowanego stężenia uzupełniającego rNTP.Mg, dodać je do wszystkich dalszych ekspresji białek, korzystając z partii LTE, która została częściowo uzupełniona w poprzednich krokach.
UWAGA: Jeśli alikwotowanie w kroku 6.2 zostanie wykonane starannie z zachowaniem stałych objętości, uzupełnienie można dodać retrospektywnie do każdego alikwotu bez rozmrażania, np. umieszczając alikwoty na suchym lodzie. Alikwoty te są teraz w pełni uzupełnione, ponieważ prawidłowa ilość rNTP.Mg zostanie wymieszana w każdym z nich podczas rozmrażania i mieszania przed użyciem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Celem bezkomórkowej ekspresji białek jest otrzymanie pełnych białek w złożonej, aktywnej formie, odpowiedniej do szerokiego zakresu zastosowań. LTE (Leishmania tarentolae (ekstrakt) był wcześniej porównywany z innymi prokariotycznymi i eukariotycznymi systemami ekspresji bezkomórkowej, wykazując wysoką zdolność do unikania trunkacji i agregacji przy optymalnym działaniu, szczególnie w porównaniu z E. colibezkomórkowa ekspresja oparta na33Jednak wcześniej wiązało się to ze znaczny...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokoły tworzenia LTE zostały opublikowane w ciągu ostatniej dekady7 i były okresowo aktualizowane25,34. Jednak nowicjusze w tej technice często napotykają stromą krzywą uczenia się, co skutkuje opóźnieniami w osiąganiu wysokiej jakości i wysokowydajnej ekspresji białek. Podobne wyzwania zostały zgłoszone przez inne grupy badawcze pracujące nad LTE35, w szczególności w odniesieniu do znacznych różnic między partia...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nie występują żadne konkurencyjne interesy finansowe.
Podziękowania
Autorzy pragną podziękować wielu członkom laboratorium Aleksandrowa, którzy przyczynili się do rozwoju systemów LTE w ciągu ostatnich 10 lat, w szczególności Sergeyowi Mureevowi, który był pionierem systemu i opracował miejsce wejścia rybosomów SITS. Rysunek 1 został stworzony przez Biorender.com i powielany na licencji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PD-10 SuperDex 25 kolumn | Cytiva | 17085101 | Żelowe kolumny filtracyjne |
| Kawitacja azotu Zaburzacz komórek | Parr Industries | 4635 lub 4639 | Cell Disrupter |
| Hemin pochodzenia bydlęcego Hemin | Sigma-Aldrich | H5533 | Dodatek do hodowli |
| Penicylina/Streptomycyna 10000U/ml | Thermo-Fisher | 15140122 | Mieszanka |
| antybiotykówOptiplate 384 | Perkin-Elmer | 6007290 | Płytka wielodołkowa do ekspresji 10ul |
| Synteza | oligonukleotydów | Oligo z sekwencją CAATAAAGTACAGAAACTGATAC TTATATAGCGTT | |
| Fosfokinaza kreatynowa | Sigma-Aldrich | 9001-15-4 | Enzym |
| Tecan Spark | Tecan | lub podobny Wielomodowy czytnik płytek | |
| Chemidoc MP Imager | Biorad | lub podobny żel SDS-PAGE Imager | |
| 4-12% Bis-Tris Gels | Invitrogen | NW04125 | SDS-PAGE gels |
| Biofotometr | Eppendorf | lub podobny Spektrofotometr kuwetowy | |
| Nanodrop One | Thermofisher | Spektrofotometr Nanodrop | |
| Wirówka Avanti JXN-26 Beckman | Coulter | lub podobna wirówka, z wirnikami/probówkami o wartości 10K i 50K g | |
| Mikrowirówka 5424R | Eppendorf | lub podobna mikrowirówka, z probówkami | |
| do mikrowirówek o pojemności 1,5 mlInkubator kolb Inova S44i | Eppendorf | lub podobny wytrząsarka do inkubatora kolb odpowiednia do kolb 5L | |
| Szklane kolby | Szklane kolby z przegrodami do wzrostu kultur | ||
| Baktotrypton | BD | 211705 | Pożywka wzrostowa |
| Ekstrakt drożdżowy | Merck | VM930053 | Pożywka wzrostowa |
| Glicerol | Dowolna klasa analityczna | ||
| Glukoza | Dowolna klasa analityczna | ||
| KH2PO4 | Dowolna klasa analityczna | ||
| K2HPO4 | Dowolna klasa analityczna | ||
| UltraPure | water Invitrogen | 10977-015 | Lub wyjście z dowolnego dystrybutora wody typu MilliQ |
Bibliografia
- Nirenberg, M. W., Matthaei, J. H. The dependence of cell-free protein synthesis in E.coli upon naturally occurring or synthetic polyribonucleotides. Proc Natl Acad Sci USA. 47 (10), 1588-1602 (1961).
- Caschera, F., Noireaux, V. Synthesis of 2.3 mg/ml of protein with an all Escherichia coli cell-free transcription-translation system. Biochimie. 99, 162-168 (2014).
- Kelwick, R., Webb, A. J., MacDonald, J. T., Freemont, P. S. Development of a Bacillus subtilis cell-free transcription-translation system for prototyping regulatory elements. Metab Eng. 38, 370-381 (2016).
- Ezure, T., et al. Cell-free protein synthesis system prepared from insect cells by freeze-thawing. Biotechnol Prog. 22 (6), 1570-1577 (2006).
- Harbers, M. Wheat germ systems for cell-free protein expression. FEBS Letters. 588 (17), 2762-2773 (2014).
- Kobs, G. Selecting the cell-free protein expression system that meets your experimental goals. Promega Corporation. 21, 6-9 (2008).
- Kovtun, O., et al. Leishmania cell-free protein expression system. Methods. 55 (1), 58-64 (2011).
- Basile, G., Peticca, M. Recombinant protein expression in Leishmania tarentolae. Mol Biotechnol. 43 (3), 273-278 (2009).
- Mureev, S., Kovtun, O., Nguyen, U. T., Alexandrov, K. Species-independent translational leaders facilitate cell-free expression. Nat Biotechnol. 27 (8), 747-752 (2009).
- Gambin, Y., et al. Single-molecule fluorescence reveals the oligomerization and folding steps driving the prion-like behavior of ASC. J Mol Biol. 430 (4), 491-508 (2018).
- Sierecki, E., et al. Rapid mapping of interactions between human SNX-BAR proteins measured in vitro by AlphaScreen and single-molecule spectroscopy. Mol Cell Proteomics. 13 (9), 2233-2245 (2014).
- Sierecki, E., et al. Nanomolar oligomerization and selective co-aggregation of alpha-synuclein pathogenic mutants revealed by single-molecule fluorescence. Sci Rep. 6, 37630(2016).
- Leitao, A., Bhumkar, A., Hunter, D. J. B., Gambin, Y., Sierecki, E. Unveiling a selective mechanism for the inhibition of alpha-synuclein aggregation by beta-synuclein. Int J Mol Sci. 19 (2), 334(2018).
- Gambin, Y., et al. Single-molecule analysis reveals self assembly and nanoscale segregation of two distinct cavin subcomplexes on caveolae. Elife. 3, e01434(2013).
- Ve, T., et al. Structural basis of TIR-domain-assembly formation in MAL- and MyD88-dependent TLR4 signaling. Nat Struct Mol Biol. 24 (9), 743-751 (2017).
- Guo, Z., et al. Subunit organisation of in vitro reconstituted HOPS and CORVET multisubunit membrane tethering complexes. PLoS One. 8 (12), e81534(2013).
- Ruehrer, S., Michel, H. Exploiting Leishmania tarentolae cell-free extracts for the synthesis of human solute carriers. Mol Membr Biol. 30 (4), 288-302 (2013).
- Varasteh Moradi, S., et al. Mapping Interactions among cell-free expressed Zika virus proteins. J Proteome Res. 19 (4), 1522-1532 (2020).
- Gagoski, D., et al. Cell-free pipeline for discovery of thermotolerant xylanases and endo-1,4-beta-glucanases. J Biotechnol. 259, 191-198 (2017).
- Ergun Ayva, C., et al. Exploring performance parameters of artificial allosteric protein switches. J Mol Biol. 434 (17), 167678(2022).
- Lau, D., et al. Fluorescence biosensor for real-time interaction dynamics of host proteins with HIV-1 capsid tubes. ACS Appl Mater Interfaces. 11 (38), 34586-34594 (2019).
- Ryan, S. M., et al. Novel antiinflammatory biologics shaped by parasite-host coevolution. Proc Natl Acad Sci USA. 119 (36), e2202795119(2022).
- McMahon, K. A., et al. Identification of intracellular cavin target proteins reveals cavin-PP1alpha interactions regulate apoptosis. Nat Commun. 10 (1), 3279(2019).
- Sierecki, E., et al. A cell-free approach to accelerate the study of protein-protein interactions in vitro. Interface Focus. 3 (5), 20230018(2013).
- Johnston, W. A., Moradi, S. V., Alexandrov, K. Adaption of the Leishmania cell-free expression system to high-throughput analysis of protein interactions. Methods Mol Biol. 2025, 403-421 (2019).
- Jung, W., et al. Cell-free formation and interactome analysis of caveolae. J Cell Biol. 217 (6), 2141-2165 (2018).
- Fontaine, F. R., et al. Functional domain analysis of SOX18 transcription factor using a single-chain variable fragment-based approach. MAbs. 10 (4), 596-606 (2018).
- Overman, J., et al. Pharmacological targeting of the transcription factor SOX18 delays breast cancer in mice. Elife. 6, e21221(2017).
- Kubala, M. H., et al. Mammalian farnesyltransferase alpha subunit regulates vacuolar protein sorting-associated protein 4A (Vps4A)--dependent intracellular trafficking through recycling endosomes. Biochem Biophys Res Commun. 468 (4), 580-586 (2015).
- Han, S. P., et al. Cortactin scaffolds Arp2/3 and WAVE2 at the epithelial zonula adherens. J Biol Chem. 289 (11), 7764-7775 (2014).
- Das Gupta, K., et al. Class IIa histone deacetylases drive toll-like receptor-inducible glycolysis and macrophage inflammatory responses via pyruvate kinase M2. Cell Rep. 30 (8), 2712-2728.e8 (2020).
- Leitão, A. D. G., et al. Selectivity of protein interactions along the aggregation pathway of α-synuclein. BioRxiv. , (2021).
- Gagoski, D., et al. Performance benchmarking of four cell-free protein expression systems. Biotechnol Bioeng. 113 (2), 292-300 (2016).
- Johnston, W. A., Alexandrov, K. Production of eukaryotic cell-free lysate from Leishmania tarentolae. Methods Mol Biol. 1118, 1-15 (2014).
- Hunter, D. J. B., Bhumkar, A., Giles, N., Sierecki, E., Gambin, Y. Unexpected instabilities explain batch-to-batch variability in cell-free protein expression systems. Biotechnol Bioeng. 115 (8), 1904-1914 (2018).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
