Metoda nakłuwania termoplazmonicznego łączy mikroskopię konfokalną, pęsetę optyczną i nanocząstki złota do badania reakcji białek podczas naprawy błony plazmatycznej w komórkach i gigantycznych pęcherzykach jednopłytkowych. Technika ta umożliwia szybkie i miejscowe nakłucie błony, co pozwala na identyfikację kluczowych białek i ich ról funkcjonalnych w skomplikowanej maszynerii naprawy błony plazmatycznej.
Artykuł metodologiczny
Termoplazmoniczne podejście do badania naprawy błon plazmatycznych w żywych komórkach i błonach modelowych
W tym artykule
Podsumowanie
Streszczenie
Błona komórkowa jest kluczowa dla przetrwania komórki, a zapewnienie jej integralności jest niezbędne, ponieważ komórka doświadcza urazów przez cały cykl życia. Aby zapobiec uszkodzeniom błony, komórki rozwinęły skuteczne mechanizmy naprawy błony plazmatycznej. Te mechanizmy naprawcze można badać, łącząc mikroskopię konfokalną i termoplazmonikę w nanoskali w celu zidentyfikowania i zbadania roli kluczowych białek, takich jak aneksyny, zaangażowanych w naprawę powierzchni w żywych komórkach i systemach modelowych błon.
Metoda nakłuwania wykorzystuje laser do wywołania wysoce miejscowego ogrzewania po napromieniowaniu nanocząsteczkami. Zastosowanie światła bliskiej podczerwieni minimalizuje fototoksyczność w próbce biologicznej, podczas gdy większość absorpcji zachodzi w rezonansowej nanocząstce plazmonicznej w bliskiej podczerwieni. Ta metoda termoplazmoniczna została wykorzystana w potencjalnych badaniach fototermicznych i biofizycznych w celu lepszego zrozumienia mechanizmów wewnątrzkomórkowych i odpowiedzi komórkowych poprzez badania fuzji pęcherzyków i komórek. Podejście to okazało się komplementarne z istniejącymi metodami rozrywania błony, takimi jak urazy wywołane mechanicznie, chemicznie lub optycznie, i zapewnia wysoki poziom kontroli poprzez zadawanie skrajnie zlokalizowanych urazów. Zakres uszkodzenia jest ograniczony do okolic sferycznej nanocząstki i nie dochodzi do szkodliwych uszkodzeń wzdłuż ścieżki wiązki, w przeciwieństwie do laserów impulsowych wykorzystujących różne długości fal. Pomimo pewnych ograniczeń, takich jak tworzenie się nanopęcherzyków, metoda termoplazmoniczna oferuje unikalne narzędzie do badania odpowiedzi komórkowych w naprawie błony plazmatycznej w prawie natywnym środowisku bez uszczerbku dla żywotności komórek.
Po zintegrowaniu z mikroskopią konfokalną, metoda nakłuwania może dostarczyć mechanistycznego zrozumienia dynamiki błony w modelowych systemach błonowych, jak również ilościowych informacji na temat reakcji białek na uszkodzenie błony, w tym rekrutacji białek i ich funkcji biofizycznej. Ogólnie rzecz biorąc, zastosowanie tej metody do zredukowanych systemów modelowych może poszerzyć naszą wiedzę na temat skomplikowanej maszynerii naprawy błony plazmatycznej w żywych komórkach.
Wprowadzenie
Błona komórkowa, pełniąc funkcję zarówno bariery fizycznej, jak i platformy sygnałowej, ma kluczowe znaczenie dla przeżycia komórki1. W trakcie całego cyklu komórkowego błona plazmatyczna (PM) ulega uszkodzeniom, takim jak urazy wywołane stresem mechanicznym2,3,4,5 oraz chemicznym6. Aby zachować integralność błony i zapewnić przeżycie komórki, wyewoluowały ona skuteczne mechanizmy naprawy błony plazmatycznej (PMR). Mechanizmy te opierają się na różnych strategiach, takich jak reorganizacja cytoszkieletu, fuzja błon oraz strategie wymiany błony7,8,9,10,11, z których wszystkie zależą od rekrutacji specyficznych białek. W szczególności członkowie rodziny białek aneksyn zostali zidentyfikowani jako kluczowe białka związane z procesami PMR1,9,12,13,14,15,16. Po uszkodzeniu PM w komórce następuje napływ jonów wapnia (Ca2+), co stanowi bezpośrednie zagrożenie dla przeżycia komórki17. W odpowiedzi na napływ Ca2+ białka aneksyny, zlokalizowane głównie w cytozolu, wiążą się z wewnętrzną warstwą uszkodzonej błony plazmatycznej w ramach strategii PMR18. Aneksyna A2 (ANXA2) była jednym z pierwszych członków rodziny aneksyn powiązanych z PMR w dystrofii mięśniowej z niedoborem dysferliny; zasugerowano, że pośredniczy ona w naprawie poprzez fuzję pęcherzyków wewnątrzkomórkowych z PM w pobliżu miejsca urazu5,19,20,21. Następnie aneksynom przypisano szereg funkcji22, a ich rola w PMR zyskała zwiększoną uwagę w ciągu ostatnich 20 lat. Jednak dokładna rola aneksyn w procesie PMR nie jest jeszcze w pełni zrozumiana15,18,21,22.
Niniejszy artykuł proponuje metodę badania oddziaływań białko-błona oraz dynamiki błon w sposób kontrolowany i wysoce zlokalizowany, wykorzystując kombinację mikroskopii konfokalnej, pęsety optycznej i nanocząsteczek złota (AuNPs). Metoda ta umożliwia ilościowe badanie oddziaływań białek, lipidów i małych cząsteczek w odpowiedzi na uszkodzenie błony i napływ jonów Ca2+. Pomimo złożoności i wielości komponentów biorących udział w procesie naprawy błony, do uzyskania głębszego zrozumienia mechanizmów dynamiki błon oraz odpowiedzi białek z rodziny aneksyn na przerwanie ciągłości błony16 wykorzystano uproszczone systemy błonowe naśladujące błonę plazmatyczną. Jako modelowy system błonowy o określonym składzie lipidowym wybrano gigantyczne jednowarstwowe pęcherzyki lipidowe (GUVs). GUVs generowano metodą hydratacji wspomaganej żelem, a konkretnie hydratacją w żelu z alkoholu poliwinylowego, zgodnie z opisem Weinbergera i wsp.23, co pozwoliło na efektywną enkapsulację aneksyn wewnątrz GUVs.
Wykorzystanie naświetlania laserem w bliskiej podczerwieni (NIR) na nanocząstkach metalicznych (NP) indukuje znaczne nagrzewanie NP, co czyni tę metodę skutecznym sposobem tworzenia lokalnego źródła ciepła wykorzystywanego w zastosowaniach biomedycznych24. Metoda ta była początkowo stosowana do bezpośredniego pomiaru temperatury w otoczeniu pojedynczej AuNP w biomimetycznych testach 2D i 3D. W testach tych25,26 nanocząstki plazmoniczne naświetlano na podpartym dwuwarstwowym układzie lipidowym lub uwięziono optycznie w pobliżu GUV, które pod wpływem lokalnego nagrzewania przechodziły lokalne przejście fazowe termiczne, co umożliwiło kwantyfikację i kontrolę dokładnego profilu temperatury wokół cząstki. Ten referencyjny profil temperatury był wykorzystywany podczas badania lub manipulowania preparatami biologicznymi. Dalszy rozwój tej metody umożliwił indukowanie nanoscopyjnych porów w membranach27, co pozwoliło na fuzję pęcherzyków i komórek28,29. W innych badaniach analizowano zachowanie peryferyjnych białek błonowych w GUV29 oraz białek transbłonowych30 poprzez tworzenie nowatorskich pęcherzyków hybrydowych, natomiast badano również komórkową dostawę leków w celu kontroli i analizy odpowiedzi komórkowych lub ekspresji genów28,29,31,32,33. Niedawno metoda ta została wykorzystana do badania odpowiedzi białek na uszkodzenia błon32,34,35.
Istnieje wiele metod uszkadzania błony plazmatycznej w celu badania odpowiedzi komórkowych i naprawy błony. Obejmują one nakłuwanie mikroigłami, wstrząsanie mikrokulkami oraz skrobanie komórek, z których każda może mechanicznie przerwać ciągłość błony komórkowej14,36,37. Uszkodzenia indukowane chemicznie można osiągnąć poprzez dodanie detergentów5,38 lub toksyn bakteryjnych39,40, które destabilizują dwuwarstwę lipidową i tworzą pory w błonie plazmatycznej. Ponadto do badania składników PMR, takich jak białka anneksyny5,14,21,41, wykorzystywano obrażenia indukowane optycznie za pomocą laserów ciągłych i impulsowych w połączeniu z nanocząsteczkami plazmonicznymi42,43,44,45. Pomimo wydajności wysokomocnych laserów impulsowych, mogą one powodować znaczne obrażenia i uszkodzenia wnętrza komórki wzdłuż drogi wiązki. Co więcej, szczegółowe zmiany zachodzące w materii biologicznej pod wpływem naświetlania laserem impulsowym oraz kwestia tego, czy tworzy on wyraźnie zdefiniowany por, wymagają dalszych badań. W niniejszym artykule przedstawiono alternatywną metodę wykorzystującą termoplazmonikę do kontrolowanego indukowania nanoscopicznych otworów w PM34,35 bez powodowania znacznych uszkodzeń struktur wewnętrznych. Osiąga się to poprzez poddawanie plazmonicznych NPs silnie skupionej wiązce lasera NIR, co skutkuje niezwykle zlokalizowanym wzrostem temperatury, która może łatwo przekroczyć 200 °C, prowadząc do niewielkich nanoscopicznych eksplozji25,46,47. Proces ten można kontrolować poprzez regulację intensywności lasera, a także rozmiaru, kształtu i składu NPs48. Stosując tę technikę, badacze mogą zgłębić rolę białek w naprawie PM w żywych komórkach, co może pomóc w udzieleniu odpowiedzi na niektóre nierozwiązane pytania dotyczące zaangażowania białek anneksyny w naprawę błony bez naruszania żywotności komórek.
Optyczne pułapkowanie nanocząstek plazmonicznych zostało dobrze opisane w poprzednich badaniach25,49,50,51,52; jednak dodatkowe informacje dotyczące właściwości termoplazmonicznych nanocząstek53,54,55 można znaleźć w materiałach uzupełniających (Supplementary File 1). Metoda termoplazmoniczna może być wykorzystana do tworzenia nanoscopyjnych otworów w PM w celu badania odpowiedzi komórkowej i mechanizmów naprawczych. Dokładniej, nakłucie można osiągnąć poprzez optyczne ogrzewanie AuNPs w bliskim sąsiedztwie błony, jak pokazano na Rysunkach 1A i B. To zlokalizowane nakłucie umożliwia napływ Ca2+, co zostało zweryfikowane za pomocą czujnika wapnia, aktywując tym samym mechanizmy PMR. W eksperymentach na żywych komórkach AuNPs o średnicy 200 nm zostały unieruchomione na powierzchni pod komórką, aby monitorować rolę ANXA2 w PMR za pomocą mikroskopii konfokalnej. Laser NIR (Rysunek 1A,B) o długości fali 1064 nm naświetla AuNP, wykorzystując jego właściwości plazmoniczne (Rysunek 1C), co skutkuje znacznym lokalnym nagrzaniem (Rysunek 1D) w biologicznym oknie przejrzystości49, powodując jednocześnie minimalne uszkodzenia samej komórki. Obszar wysokiej temperatury otaczający AuNP szybko maleje o 30-40% w odległości odpowiadającej promieniowi NP, jak przedstawiono na Rysunku 1E, co pozwala na uzyskanie niezwykle ograniczonego uszkodzenia we wszystkich trzech wymiarach.
Plik uzupełniający 1. Kliknij tutaj, aby pobrać ten plik.
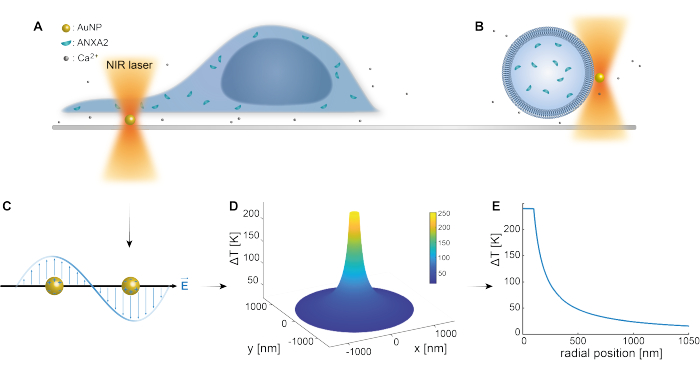
Rysunek 1: Schematyczny zarys metody eksperymentalnej. (A) Komórki z transfekcją ANXA znajdują się nad unieruchomionymi na powierzchni nanocząsteczkami złota (AuNPs), lub (B) gigantyczne pęcherzyki jednowarstwowe (GUVs) z enkapsulowanym ANXA są zawieszone w medium zawierającym AuNPs. (C) Pojedyncza nanocząsteczka AuNP jest naświetlana przez pułapkę optyczną NIR, gdzie oddziaływanie między nadchodzącym polem elektromagnetycznym a elektronami przewodnictwa prowadzi do kolektywnych oscylacji elektronów wewnątrz nanocząsteczki. (D) Proces ten skutkuje silnie ograniczonym, lecz znacznym wzrostem temperatury. Aby oszacować temperaturę na powierzchni nanocząsteczki, zastosowano teorię Mie, a następnie obliczono (E>) profil temperatury dla AuNP o średnicy 200 nm i natężeniu lasera I = 6.36 x 10⁸ W/cm2. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Aby zminimalizować efekt termiczny na błonie komórkowej, AuNPs są naświetlane tylko przez około 1 sekundę. Powoduje to przejściowy i lokalny wzrost temperatury, co ogranicza uszkodzenia białek, które zazwyczaj wymagają więcej czasu na rozfałdowanie. Po przebiciu błony, białka aneksyny są rekrutowane w ułamku sekundy, a w ciągu kilku sekund wokół miejsca uszkodzenia tworzy się pierścieniowata struktura aneksyn (Rysunek 2). Podejście to zastosowano również w celu zbadania udziału ANXA5 zarówno w żywych komórkach, jak i w błonach modelowych16, aby wyjaśnić pełny schemat procesów naprawczych. Choć głównym punktem zainteresowania była korelacja rekrutacji różnych białek aneksyn, aspekty biofizyczne mechanizmu naprawy nie zostały jeszcze w pełni wyjaśnione.
Do pełnego wdrożenia proponowanej metody wymagane są trzy kluczowe komponenty: mikroskopia konfokalna, pęseta optyczna oraz nanocząstki metaliczne. Pęseta optyczna służy do wychwytywania AuNPs, a jej konstrukcja może zostać zrealizowana zgodnie z procedurą opisaną przez Neumana i wsp.49. Jednak w przypadku, gdy budowa pęsety optycznej okaże się zbyt trudna, do naświetlania AuNPs unieruchomionych pod komórkami można zastosować silnie skupiony laser NIR. Choć w niniejszym protokole wybrano sferyczne AuNPs, do uzyskania silnie zlokalizowanego gradientu temperatury w obszarze NIR można wykorzystać również różne cząstki plazmoniczne o regulowanym widmie absorpcyjnym48.
Obrazowanie fluorescencyjne jest niezbędne do obserwacji roli białek znakowanych fluorescencyjnie, w związku z czym mikroskopia całkowitego wewnętrznego odbicia (TIRF)56 mogłaby być rozważana jako alternatywa dla obrazowania konfokalnego. Jednak technika ta pozwala jedynie na obrazowanie powierzchni i nie byłaby kompatybilna z eksperymentami z pęcherzykami błon modelowych. W konsekwencji zarówno pęseta optyczna, jak i mikroskop konfokalny są niezbędne do precyzyjnej lokalizacji nanocząsteczki oraz szczegółowego badania obszaru lokalnego wokół uszkodzenia komórki. Aby efektywnie napromieniować nanocząsteczkę za pomocą ograniczonej dyfrakcyjnie plamki lasera, konieczna jest wizualizacja tej nanocząsteczki. Można to osiągnąć optymalnie za pomocą mikroskopii refleksyjnej, która jest standardową funkcją obrazowania w mikroskopach konfokalnych Leica. Jeśli jednak obrazowanie w odbiciu lub rozproszeniu nie jest dostępne, można rozważyć metody alternatywne, takie jak mniej wydajne znakowanie AuNP fluorescencyjnie.
Podsumowując, przedstawiona w niniejszym badaniu wysoce kontrolowana i zlokalizowana metoda termoplazmoniczna ma potencjał, aby służyć jako doskonała platforma do badania komponentów molekularnych zaangażowanych w odpowiedzi komórkowe oraz mechanizmy naprawy błony plazmatycznej (PM) w żywych komórkach. Poza badaniem odpowiedzi białek na uszkodzenie PM, podejście to może być również wykorzystane do lokalnego perforowania pęcherzyków, co umożliwia badanie odpowiedzi białek zarówno w dynamice białko-białko, jak i białko-błona. Co więcej, metoda ta pozwala na ilościową analizę oddziaływań między białkami, lipidami i małymi cząsteczkami w momencie przerwania ciągłości błon. Łącznie postępy te mają potencjał, aby rzucić światło na niektóre nierozwiązane kwestie dotyczące zawiłego i złożonego mechanizmu naprawy błony plazmatycznej.
Protokół
1. Przygotowanie do przebicia błony komórkowej
- Wysiewanie komórek (Dzień 1)
- Hodować ludzkie komórki embrionalne nerki (HEK293T) w pożywce hodowlanej w temperaturze 37 °C w inkubatorze z nawilżaczem i 5% CO2 do momentu osiągnięcia 70% konfluencji.
- Odczepić komórki od powierzchni przy użyciu 500 µL trypsyny, odliczyć 200 000 komórek HEK293T i wysiać je do naczynia hodowlanego w całkowitej objętości 3 mL pożywki hodowlanej. Inkubować komórki w temperaturze 37 °C w inkubatorze z nawilżaczem i 5% CO2 przez 24 h.
UWAGA: Aby zapobiec skupianiu się komórek w centrum naczynia, należy rozłożyć je równomiernie i unikać potrząsania naczyniem, ponieważ może to obniżyć wydajność transfekcji.
- Transfekcja komórek (Dzień 2)
UWAGA: Transfekowane komórki można wykorzystać do 48 h po transfekcji.- Przed użyciem pipetować plasmid oraz odczynnik do transfekcji przez 5 s.
- W sterylną probówkę o pojemności 2 mL wprowadzić w następującej kolejności: 500 μL pożywki z obniżoną zawartością surowicy, 5 μL odczynnika do transfekcji (4-krotność ilości plasmidu) oraz 1,25 μL plasmidu (1 μg/μL).
UWAGA: Aby zbadać napływ wapnia po pęknięciu błony, należy postępować zgodnie z tą samą procedurą, używając związanej z błoną sondy z czujnikiem wapnia GCaMP6-CAAX (1 μg/μL). - Delikatnie, ale dokładnie wymieszać mieszaninę do transfekcji za pomocą pipety i inkubować w temperaturze pokojowej (RT) przez 30 min przed dodaniem jej kroplami do komórek.
- Przed dodaniem mieszaniny do transfekcji usunąć pożywkę z naczynia hodowlanego, delikatnie przemyć komórki 2 mL roztworu soli fizjologicznej w buforze fosforanowym (PBS) i dodać do naczynia 2000 μL pożywki z obniżoną zawartością surowicy.
- Inkubować komórki wraz z mieszaniną do transfekcji w temperaturze 37 °C w inkubatorze z nawilżaczem i 5% CO2 przez 2 h i 45 min, a następnie wymienić pożywkę na 3 mL pożywki hodowlanej.
- Przygotowanie roztworu nanocząsteczek złota (AuNP) (Dzień 2)
- Mieszać roztwór stokowy AuNP o rozmiarze 200 nm na wstrząsarze Vortex przez 10 s na poziomie 10 (szczegóły dotyczące aparatury znajdują się w Tabeli Materiałów), poddać sonikacji przez 5 min (maksymalna amplituda) i ponownie mieszać na Vortexie przez 10 s.
- Wymieszać 150 μL AuNP z 850 μL wody destylowanej do uzyskania całkowitej objętości 1 mL.
UWAGA: Rozcieńczony roztwór AuNP można przechowywać w lodówce i używać ponownie przez maksymalnie 1 miesiąc.
- Przygotowanie naczynia eksperymentalnego (Dzień 2)
- Pokryć naczynie z mikrootworami 150 μL roztworu do przyкрепania komórek o stężeniu 0,01%-0,1% i inkubować przez 15 min w RT.
- Przemyć powierzchnię szklaną dwukrotnie 500 μL wody destylowanej i pozostawić do wyschnięcia na powietrzu przez ok. 10 min.
- Dodać kroplami 80 μL roztworu AuNP na suchą powierzchnię.
UWAGA: Przed dodaniem rozcieńczonego roztworu AuNP na pokrytą powierzchnię szklaną należy go wymieszać na Vortexie (10 s), poddać sonikacji (5 min) i ponownie wymieszać na Vortexie (10 s), aby zminimalizować tworzenie się agregatów AuNP. - Odczekać ok. 10 min przed wprowadzeniem 1,5 mL pożywki hodowlanej. Inkubować naczynie w temperaturze 37 °C przez noc.
- Przygotowanie komory eksperymentalnej (Dzień 3)
UWAGA: Komorę eksperymentalną można przygotować w dniu 3. lub 4.; należy jednak upewnić się, że poniższe czynności zostaną wykonane w tym samym dniu co eksperyment.- Usunąć pożywkę z komórek w naczyniu hodowlanym i przemyć komórki 2 mL roztworu soli fizjologicznej w buforze fosforanowym.
UWAGA: Ten krok jest niezbędny do usunięcia pozostałości pożywki i zanieczyszczeń, które mogłyby zakłócać kolejne etapy. - Dodać do otworu 500 μL enzymatycznego roztworu do odczepiania komórek i inkubować przez 1-3 min, aż komórki odłączą się od naczynia hodowlanego.
- Dodać 1,5 mL świeżej pożywki hodowlanej i wymieszać zawiesinę komórkową za pomocą pipety w celu uzyskania homogenicznego roztworu i zminimalizowania prawdopodobieństwa wystąpienia skupisk komórek.
- Ostrożnie usunąć pożywkę z AuNP z eksperymentalnego mikrootworu.
- Dodać zawiesinę komórkową (2 mL) do mikrootworu i inkubować przez co najmniej 5 h przed przeprowadzeniem eksperymentu.
UWAGA: Aby uzyskać optymalne warunki eksperymentalne, należy unikać potrząsania komorą, ponieważ może to spowodować skupienie się komórek w jej środku.
- Usunąć pożywkę z komórek w naczyniu hodowlanym i przemyć komórki 2 mL roztworu soli fizjologicznej w buforze fosforanowym.
2. Eksperyment przebijania błony komórkowej
- Ustawienia optyczne eksperymentu
- Przeprowadzić eksperymenty przy użyciu konfokalnego mikroskopu skanującego zintegrowanego z laserem pułapkującym o długości fali 1064 nm57.
- Wyonać pułapkowanie optyczne w płaszczyźnie ogniskowej, wykorzystując obiektyw imersyjny wodny 63x o aperturze numerycznej (NA) 1,2.
- Przyjąć, że ognisko ma rozmiar krążka Airy'ego, a promień wiązki ogniskowej lasera naświetlającego wynosi ~540 nm.
- Przeliczyć moc lasera (P) na odpowiadającą jej natężenie laserowe (I), obliczając moc lasera na jednostkę powierzchni (W/cm2).
- Wykorzystać akustyczno-optyczny dzielnik wiązki (AOBS) w celu wizualizacji wielu sygnałów fluorescencyjnych wykrywanych za pomocą fotopowielaczy oraz jednoczesnej detekcji metalicznych NP za pomocą ich sygnału rozproszeniowego.
UWAGA: Nie wszystkie systemy konfokalne są wyposażone w AOBS, który umożliwia obrazowanie refleksyjne metalicznych NP. W takim przypadku należy zastosować inne formy detekcji lub spróbować sekwencyjnego skanowania laserem NIR w obszarze pod komórką. - Podczas sesji eksperymentalnych zamontować na mikroskopie otwartą komorę z szklanym dnem zawierającą komórki, fluorescencyjne sondy molekularne oraz nanocząstki złota.
- Przesuwać pułapkę względem komórek poprzez translację próbki zamontowanej na stopie piezoelektrycznej, co umożliwia lateralne ruchy z nanometryczną precyzją16.
UWAGA: Pułapka optyczna pozostaje nieruchoma.
- Ustawienia eksperymentalne dla perforacji błony komórkowej
- Umieścić komórki HEK293T, transfekowane plazmidami anneksyny sprzężonymi z białkiem fluorescencyjnym, nad odizolowanymi AuNP unieruchomionymi na powierzchni szkła (Rysunek 1A).
- Użyć lasera argonowego 488 nm do wizualizacji sygnału fluorescencji GFP oraz lasera HeNe 633 nm do obserwacji refleksu AuNP w konfokalnym mikroskopie skanującym.
- Wykorzystać pęsetę optyczną, pracującą z laserem NIR 1064 nm, do naświetlania pojedynczej AuNP przez ~1 s, co indukuje znaczny lokalny wzrost temperatury prowadzący do przerwania ciągłości błony plazmatycznej.
- Zastosować naświetlanie o mocy od 200-295 mW skupione na cząstce, co spowoduje istotny wzrost temperatury.
UWAGA: W obrębie optyki następuje znaczna strata mocy; moc lasera w punkcie ogniskowym osiąga około 20% podanej wartości w miliwatach, w zależności od konkretnej konfiguracji. Specyficzne natężenie (mierzone w W/cm2) zależy od dokładnego ustawienia systemu, a konkretnie od rozmiaru ogniska. Dodatkowo przewodność cieplna szkła jest wyższa niż komórek i wody, co w konsekwencji nieznacznie redukuje ilość ciepła przekazywanego do błony plazmatycznej48,58. - Osiągnąć skuteczne i zlokalizowane uszkodzenie PM oraz następującą po nim białkową odpowiedź naprawczą poprzez odpowiednią kalibrację lokalizacji plamki ogniskowej lasera NIR. Osiąga się to poprzez przechwycenie pojedynczej AuNP zawieszonej w tym samym medium obrazującym i upewnienie się, że wybrana AuNP znajduje się w ogniskowej przed naświetlaniem.
UWAGA: Nanocząstka jest uznawana za będącą w ogniskowej, gdy jej sygnał rozproszeniowy wydaje się najostrzejszy, tj. wykazuje wyraźne krawędzie i brak halo wokół cząstki podczas obserwacji w mikroskopii konfokalnej (Rysunek 2C (ii)).
- Warunki gęstości komórek i AuNP
- Wybierać pojedyncze komórki zamiast skupisk komórkowych, aby zapobiec nakładaniu się błon plazmatycznych.
UWAGA: Komórki powinny być przytwierdzone do powierzchni i wykazywać spłaszczoną morfologię (Rysunek uzupełniający 1), co pozwala na perforację peryferii komórki przy jednoczesnym zapobieganiu uszkodzeniu błony jądrowej (Rysunek uzupełniający 2). - Inkubować komórki zgodnie z protokołem lub do czasu, aż osiądą i spłaszczą się, aby zapobiec wewnątrzkomórkowemu pobieraniu AuNP. Unikać nadmiernego czasu inkubacji i zmniejszyć prawdopodobieństwo endocytozy AuNP, stosując AuNP pegylowane.
- Upewnić się, że unieruchomione AuNP występują jako pojedyncze cząstki, odpowiednio oddalone od siebie, aby zapobiec agregacji. Agregaty mogą prowadzić do znacznego wzrostu gradientu termicznego, skutkując podwyższonymi temperaturami, które mogą zniszczyć znaczną część komórki.
- Wymieniać próbkę co 1-2 h w celu utrzymania żywotności komórek.
UWAGA: Przedłużona ekspozycja może prowadzić do pogorszenia stanu zdrowia komórek, upośledzając ich zdolność do prawidłowej odpowiedzi na uszkodzenie w zakresie naprawy błony. Spadek żywotności komórek objawia się zazwyczaj zmianą ich kształtu – stają się one bardziej sferyczne i sztywniejsze, co ostatecznie prowadzi do śmierci komórki.
- Wybierać pojedyncze komórki zamiast skupisk komórkowych, aby zapobiec nakładaniu się błon plazmatycznych.
Informacje uzupełniające. Proszę kliknąć tutaj, aby pobrać ten plik.
3. Przygotowanie gigantycznych pęcherzyków jednowarstwowych (GUV)
- Przygotowanie mieszaniny lipidowej
- Przygotuj skład lipidowy GUV, łącząc lipidy 1,2-dioleoju-sn-glicero-3-fosfocholinę (DOPC) oraz 1,2-dioleoju-sn-glicero-3-fosfo-L-serynę (DOPS) w stosunku molarnym 4:1 (patrz Tabela 1). Rozdziel roztwór zapasu lipidów do szklanych fiolek o pojemności 1,5 ml zgodnie z potrzebami eksperymentalnymi i przechowuj w temperaturze -20 °C.
UWAGA: Aby zapewnić długotrwałe przechowywanie lipidów oraz zapobiec utlenianiu lipidów nienasyconych, należy zastąpić powietrze argonem w probówkach z alikwotami. - Przed zmieszaniem lipidów należy dokładnie oczyścić 50 μL oraz a 500 μL szklaną lub metalową strzykawkę z chloroformem pięciokrotnie, aby upewnić się, że są one wolne od zanieczyszczeń w przypadku lipidów rozpuszczonych w chloroformie.
OSTRZEŻENIE: Ze względu na toksyczność chloroformu należy z nim pracować w dygestorium.- Przenieś obliczoną objętość chloroformu do czystej fiolki z ciemnego szkła, a następnie dodaj określoną ilość każdego lipidu (patrz Tabela 1).
UWAGA: Aby uniknąć kontaminacji krzyżowej między zapasami lipidów, należy upewnić się, że strzykawki zostały oczyszczone chloroformem. - Na koniec dodać barwnik błonowy i dokładnie wymieszać lipidy za pomocą pipety. Przygotowaną mieszaninę lipidową przechowywać w temperaturze -20 °C do dalszego wykorzystania; mieszanina pozostaje żywotna przez 2–3 tygodnie bez istotnych uszkodzeń lipidów.
UWAGA: Mieszanie należy przeprowadzić za pomocą strzykawki metalowej lub szklanej. Lipidy poza zamrażarką należy zawsze przechowywać na lodzie.
- Przenieś obliczoną objętość chloroformu do czystej fiolki z ciemnego szkła, a następnie dodaj określoną ilość każdego lipidu (patrz Tabela 1).
- Przygotuj skład lipidowy GUV, łącząc lipidy 1,2-dioleoju-sn-glicero-3-fosfocholinę (DOPC) oraz 1,2-dioleoju-sn-glicero-3-fosfo-L-serynę (DOPS) w stosunku molarnym 4:1 (patrz Tabela 1). Rozdziel roztwór zapasu lipidów do szklanych fiolek o pojemności 1,5 ml zgodnie z potrzebami eksperymentalnymi i przechowuj w temperaturze -20 °C.
- Przygotowanie żelu z alkoholu poliwinylowego (PVA)
- Przygotować GUV za pomocą metody hydratacji wspomaganej żelem opisanej przez Weinbergera i współpracowników.23 z niewielkimi modyfikacjami.
- Przygotuj żel PVA, rozpuszczając 5 g PVA w 100 ml buforu zawierającego 50 mM sacharozy, 25 mM NaCl i 25 mM Trisu (pH 7,4).
- Podgrzać roztwór PVA do 85 °C i mieszać do uzyskania przejrzystości. Pozostawić do ostygnięcia do temperatury pokojowej i przechowywać w lodówce do czasu dalszego użycia.
UWAGA: PVA nie rozpuścił się prawidłowo w buforze, dlatego należy podgrzać do 85 °C jest niezbędne.
- Przygotować GUV za pomocą metody hydratacji wspomaganej żelem opisanej przez Weinbergera i współpracowników.23 z niewielkimi modyfikacjami.
- Przygotowanie szkiełek przedmiotowych
- Oczyść szkiełka przedmiotowe etanolem i pozostaw je do wyschnięcia. Następnie poddaj szkiełka działaniu plazmy powietrznej w celu usunięcia pozostałych zanieczyszczeń z powierzchni szkła.
- Przygotowanie szkiełek przedmiotowych powlekanych PVA
- Podgrzać żel PVA (5%) do 60 °C przez 30 min w celu zwiększenia jego płynności. Nanieś 90 μL ciepłego PVA na szkiełko przedmiotowe, rozprowadzić równomiernie i pozostawić do wyschnięcia w szafce grzewczej w temperaturze 50 °C przez 50 min.
- Po przygotowaniu szkiełka PVA, należy dodać 30 μL przygotowanej mieszaniny lipidów za pomocą szklanej lub metalowej strzykawki i rozprowadzić ją w cienką warstwę, wykorzystując krawędź igły.
- Osusz mieszaninę lipidów, odparowując chloroform pod łagodnym strumieniem azotu. Następnie osusz szkiełka przedmiotowe w próżni przez 1,5–2 h.
- Wytwarzanie GUV w komorze
- Zmontować komorę wykonaną wewnętrznie, o konstrukcji zbliżonej do opisanej w poprzedniej publikacji59przy użyciu przygotowanego szkiełka przedmiotowego.
- W oddzielnej probówce o pojemności 2 ml rozcieńczyć badane białko rekombinowane (w tym przypadku ANXA5 lub ANXA4) do stężenia końcowego 500 nM przy użyciu buforu wzrostowego (GB) składającego się z 80 mM sacharozy, 70 mM NaCl i 25 mM Tris-HCl (pH 7,4).
- Dodaj 400 μL rozcieńczonego roztworu białka rekombinowanego do komory. Inkubować komorę w temperaturze pokojowej przez 1 h, aby umożliwić wzrost GUV z osadzonej warstwy lipidowej. W качестве kontroli negatywnej należy użyć tego samego buforu, z wyłączeniem białka.
UWAGA: Owinięcie komory folią poliolefinową w celu zapobiegania odparowywaniu buforu. - Zebrać GUV poprzez przeniesienie 400 μL zawartości komory do probówki o pojemności 2 ml.
- Usuń białka nieinkapsulowane znajdujące się na zewnątrz GUV, dodając 1 ml buforu obserwacyjnego (OB) zawierającego 55 mM glukozy, 70 mM NaCl oraz 50 mM Tris-HCl (pH 7,4) do zebranego roztworu. Następnie odwiruj roztwór przy 600 x g przez 10 min w temperaturze 13 °C.
- Po wirowaniu zastąp 1 ml supernatantu równą objętością buforu obserwacyjnego. Rozprosz GUV poprzez delikatne pipetowanie i przechowuj je w lodówce do czasu ich wykorzystania w eksperymentach z GUV.
4. Eksperyment przebijania GUV
- Przygotowanie komory
- Do eksperymentu należy użyć naczynia z szklanym dnem o średnicy 35 mm. Aby zapobiec przywieraniu GUV do powierzchni i ich pękaniu, należy pokryć powierzchnię β-kazeiną (5 mg/mL) przez 15-30 min.
- W celu przygotowania roztworu β-kazeiny rozpuścić 0,1 g białka w 20 mL buforu zawierającego 20 mM Tris (pH 7,5) i 100 mM NaCl. Przesączyć roztwór białka, podzielić go na mniejsze porcje w probówkach i zamrozić do późniejszego użycia.
- Przemyć komorę dwukrotnie buforem obserwacyjnym, aby usunąć z powierzchni nadmiar wolnej β-kazeiny, i pozostawić do wyschnięcia w RT.
- W oddzielnej probówce o objętości 2 mL zmieszać zebrane GUV z OB. Do mieszaniny dodać CaCl2 do uzyskania pożądanego stężenia końcowego (w tym przypadku 200 μM).
- Do mieszaniny wprowadzić złote nanoskorupy (AuNSs) o rozmiarze 150 nm w stosunku 1:100. Końcowa mieszanina składa się z 250 μL GUV, 225 μL OB, 20 μL CaCl2 (5 mM) oraz 5 μL określonych AuNSs.
- Do eksperymentu należy użyć naczynia z szklanym dnem o średnicy 35 mm. Aby zapobiec przywieraniu GUV do powierzchni i ich pękaniu, należy pokryć powierzchnię β-kazeiną (5 mg/mL) przez 15-30 min.
- Ustawienie eksperymentalne
- Przenieść mieszaninę do komory i zamocować ją na stoliku mikroskopu. W zależności od wielkości komory dodać całą mieszaninę lub jej część.
UWAGA: Czas jest krytyczny, ponieważ jony wapnia mogą przenikać przez błonę i pośredniczyć w wiązaniu anneksyn do wewnętrznej warstwy błony. - Zastosować ten sam układ optyczny, który był używany w eksperymentach z przebijaniem komórek.
- Użyć pęsety optycznej do uwięzienia pojedynczego AuNS w bezpośrednim sąsiedztwie lub na powierzchni GUV, stosując moc lasera o wartości ~ 125 mW.
- Następnie zwiększyć moc lasera do ~ 300 mW. Powoduje to silnie zlokalizowany wzrost temperatury, który niszczy i przebija błonę w miejscu docelowym.
UWAGA: W eksperymentach z GUV preferowane są AuNSs ze względu na ich zdolność do generowania wyższego przejściowego wzrostu temperatury przy jednoczesnym zachowaniu mniejszego rozmiaru w porównaniu z litymi AuNPs.
- Przenieść mieszaninę do komory i zamocować ją na stoliku mikroskopu. W zależności od wielkości komory dodać całą mieszaninę lub jej część.
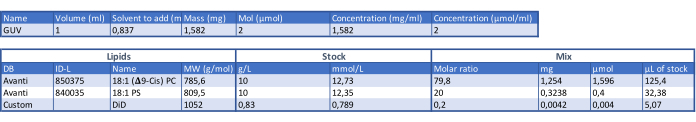
Tabela 1: Tabela do wyznaczania składu GUV. Kliknij tutaj, aby pobrać tę tabelę.
5. Pomiary i analiza danych odpowiedzi ANXA w eksperymentach z nakłuciem komórek
- Użyj programu MATLAB do analizy obrazów oraz obliczenia i wykreślenia profilu temperatury AuNP (Rysunek 1D, E) w oparciu o równania Mie60,61.
- Dodatkowo przetwórz wszystkie obrazy konfokalne przy użyciu dystrybucji FIJI ImageJ62,63.
- Obliczanie promienia pierścienia ANXA
- Przed analizą uszkodzenia błony wytnij z surowych danych obszar zainteresowania zawierający miejsce nakłucia.
- Zastosuj wewnętrzny workflow MATLAB do przetwarzania każdego obrazu poprzez ręczne zaznaczenie środka pierścienia ANXA oraz jego zewnętrznej obwódki.
- Użyj tych oznaczeń do ustawienia granic przetwarzania dla obszaru zainteresowania.
UWAGA: Obszar ten jest następnie przetwarzany promieniście w określonych granicach, a intensywność fluorescencji w konkretnej odległości od środka stanowi średnią z pełnego okręgu o tej samej odległości od centrum. Wartość ta jest zapisywana dla każdego kroku promienia. - Użyj workflow do dopasowania uśrednionych intensywności w całym zakresie skanowania do jednowymiarowej krzywej Gaussa w celu zidentyfikowania maksimów (Rp) oraz pełnej szerokości połówki maksimum (FWHM) odpowiadających odpowiednio Rext i Rint, jak pokazano na Rysunku 3A.
- Użyj tych oznaczeń do ustawienia granic przetwarzania dla obszaru zainteresowania.
- Na koniec wyznacz promień pierścienia ANXA jako odległość od środka pierścienia do Rext na podstawie wykresu wygenerowanego przez workflow MATLAB.
- Trójwymiarowe obliczanie promienia pierścienia ANXA
- Śledź zmianę promienia pierścienia ANXA w kierunku z, korzystając z tego samego workflow analizy MATLAB co w kroku 5.1. Zastosuj workflow do kilku konfokalnych przekrojów z w obrębie rany błony, jak zilustrowano na Rysunku 3C, E.
- Oblicz nachylenie dla każdej rany na podstawie zmiany promieni w przekrojach z, jak pokazano na Rysunku 3F.
- Ewolucja czasowa promienia pierścienia ANXA
- Podobnie śledź ewolucję pierścienia ANXA po termoplazmonicznym nakłuciu błony, korzystając z workflow analizy MATLAB z kroku 5.1. Analizuj kolejne punkty czasowe, aby monitorować zmiany w czasie, jak zademonstrowano na Rysunku 3D, G, H.
Wyniki
W niniejszym badaniu metoda termoplazmoniczna została wykorzystana do zbadania odpowiedzi białka anneksyny na przerwanie błony plazmatycznej; jednakże za pomocą tego testu można zbadać każde białko, które może zostać zrekrutowane w wyniku uszkodzenia błony, pod warunkiem, że odpowiednie białko zostanie znakowane fluorescencyjnie. Rekrutacja i funkcja białek są monitorowane za pomocą obrazowania konfokalnego zarówno w ludzkich komórkach embrionalnej nerki (HEK293T), jak i w gigantycznych pęcherzykach jednowarstwowych (GUVs). Szczegółowo, Rysunek 2 przedstawia warunki eksperymentalne, w których skupiona wiązka lasera NIR o długości fali 1064 nm jest używana do naświetlania pojedynczej AuNP (Rysunek 2A), co skutkuje uszkodzeniem błony i napływem Ca2+ do komórki, aktywując mechanizm PMR. Następnie anneksyny są szybko rekrutowane do miejsca uszkodzenia, gdzie wiążą się z ujemnie naładowanymi fosfolipidami na obwodzie rany, tworząc w ciągu kilku sekund strukturę pierścieniowatą (Rysunek 2B, i-iv). Eksperymenty na modelowych błonach z użyciem GUVs wykazały, że perforacje błony zostały szybko zamknięte w przypadku braku ANXA, jak pokazano na Rysunku 2C. Jednak w obecności ANXA po perforacji błony zaobserwowano szybką akumulację ANXA w miejscu uszkodzenia (Rysunek 2D). Co istotne, ANXA kontynuowała rolowanie odsłoniętych krawędzi, co ostatecznie doprowadziło do pęknięcia GUV. Przypuszcza się, że ten mechanizm rolowania wynika ze zdolności ANXA do indukowania krzywizny i zginania błon lipidowych20.
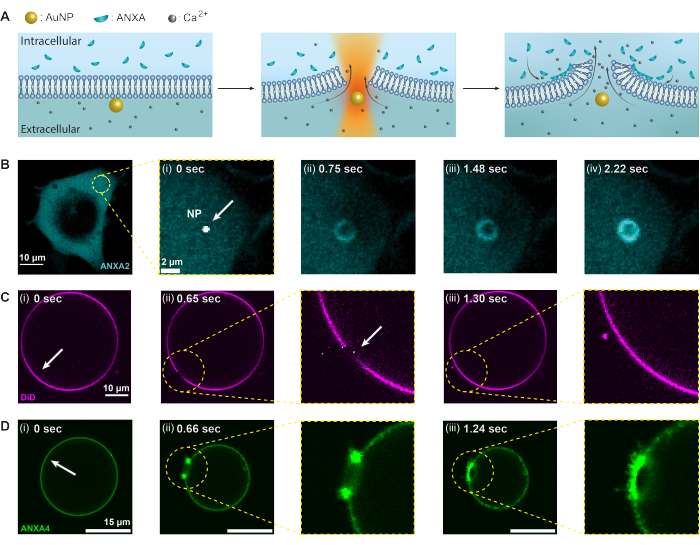
Rycina 2: Odpowiedź anneksyn (ANXAs) na indukowane termoplazmonicznie przerwanie błony. Początkowo (A) błona plazmatyczna działa jako bariera pomiędzy środowiskiem pozakomórkowym o wysokim stężeniu jonów Ca2+ a środowiskiem wewnątrzkomórkowym z enkapsulowanymi ANXAs. Po naświetlaniu laserem bliskiej podczerwieni (NIR), AuNP generuje znaczną ilość ciepła, co powoduje przerwanie błony i dopływ jonów Ca2+. W konsekwencji aktywowany zostaje mechanizm naprawy błony plazmatycznej (PMR), który obejmuje rekrutację ANXAs do miejsca uszkodzenia, gdzie wiążą się one z ujemnie naładowanymi fosfolipidami. (B-D) Obrazy z mikroskopii konfokalnej komórki zawierającej ANXA2 oraz GUV zawierającej ANXA4 obrazują ten proces. (i) Przed naświetlaniem obrazy przedstawiają nienaruszoną komórkę lub GUV, a miejsca naświetlania zaznaczono białymi strzałkami. (ii) Po naświetleniu nanocząstek (B) ANXAs są szybko rekrutowane do miejsca uszkodzenia, tworząc strukturę pierścieniowatą wokół rany w błonie (B [ii-iv]). Panel (C) przedstawia GUV z barwioną błoną, ale bez ANXA, która po przebiciu szybko się zamyka, bez widocznego przebudowania błony. Z kolei panel (D) pokazuje GUV zawierającą rekombinowaną ANXA4, która jest już związana z błoną przed (i) naświetlaniem z powodu wycieku Ca2+ przez błonę. (ii) Po przebiciu ANXA4 wiąże się z wolnymi krawędziami, co powoduje zapadnięcie się GUV w miarę jak błona zwija się od krawędzi. Paski skali wynoszą 10 μm dla rysunku (B), 2 μm dla B (i), 10 μm dla (C) i 15 μm dla (D). Rycina ta została powielona z pracy Moreno-Pescador et. al16 za zgodą Royal Society of Chemistry. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Analiza kompletnych struktur pierścieniowatych ANXA (Rycina 2B oraz Rycina uzupełniająca 1) dostarcza cennych informacji na temat rozmiaru i morfologii rany. Promień struktury pierścieniowatej ANXA można określać w czasie i przestrzeni, zgodnie z opisem w sekcji 5. Moreno i wsp.16 przeanalizowali ponad 135 uszkodzeń błony plazmatycznej w żywych komórkach, gdzie analiza struktur pierścieniowatych ANXA5 została przedstawiona na Rycini 3. Promień wyznaczano poprzez pomiar odległości od środka pierścienia do zewnętrznego promienia krzywej na podstawie pełnej szerokości połowicznym maksimum (FWHM) zredukowanego profilu intensywności (Rycina 3A). Wyniki wykazały heterogeniczny rozkład rozmiarów pierścieni ANXA5 (Rycina 3B), które pozostawały stałe w czasie (Rycina 3D,G,H) i przestrzeni (Rycina 3C,E,F). Wyniki te sugerują akumulację ANXA5 wokół miejsc uszkodzeń, co wskazuje na alternatywną dla hipotetycznego lejkowatego pączkowania do wewnątrz uszkodzonej błony5 strategię PMR zależną od ANXA5 w żywych komórkach.
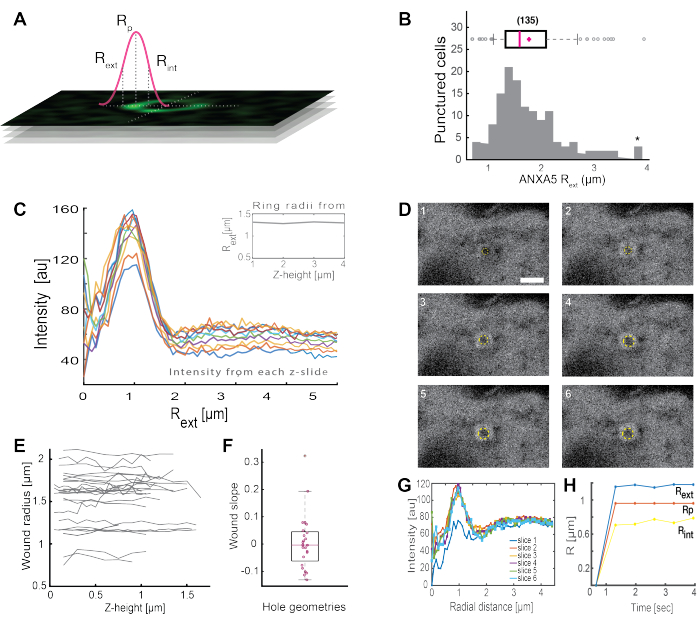
Rycina 3Analiza struktur pierścieniowych ANXA5 wokół miejsca uszkodzenia w żywych komórkach. (ASchematyczny rysunek przedstawia podejście analityczne, oparte na pełnej szerokości połówce maksymalnej profilu intensywności linii ANXA.BHistogram przedstawia promienie 135 zmierzonych pierścieni ANXA5.C) Profile intensywności fluorescencji wzdłuż linii przecinających pierścień ANXA5-GFP dla każdego przekroju z serii z-stack. (DObrazy konfokalne przedstawiają ewolucję czasową rany, w której ANXA5-GFP gromadzi się na obwodzie rany bezpośrednio po urazie, po czym następuje stabilizacja rany. Klatki czasowe oznaczone numerami 1–6 zostały zarejestrowane w odstępach 0,66 s między klatkami. Pasek skali wynosi 2 μm. (EPromienie ran określono jako funkcję głębokości rany w oparciu o metodę przedstawioną w panelu A.FNachylenie rany analizowano jako promienie pierścieni ANXA5 w funkcji wysokości z na podstawie danych wyekstrahowanych z panelu E.GProfile linii intensywności fluorescencji zmierzono w poprzek pierścienia ANXA5-GFP z panelu D, gdzie każdy przedział czasowy 1-6 oznaczono jako przekrój 1-6. Na koniec (H) ewolucja czasowa promieni pierścieni ANXA5-GFP jest przedstawiona jako funkcja czasu obliczona na podstawie danych z panelu G. Rysunek ten został powielony z pracy Moreno-Pescador et al.16 za zgodą Royal Society of Chemistry. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
W porównaniu do struktur pierścieniowatych powstających po samym uszkodzeniu błony komórkowej (Supplementary Figure 1), urazy w bliskim sąsiedztwie jądra (Supplementary Figure 2A) mogą wpływać na ewolucję i geometrię rany. Sporadycznie widoczna była tylko część pierścieni ANXA (Supplementary Figure 2B,C), co można analizować za pomocą wewnętrznego procesu analizy w programie MATLAB (patrz sekcja 5), choć może to prowadzić do utraty dodatkowych danych. Zazwyczaj formacje pierścieni ANXA obserwowane w komórkach nieprzywierających (Supplementary Figure 2C) znajdują się blisko jądra oraz peryferii komórki. W konsekwencji można zaobserwować bardziej wydłużoną strukturę pierścienia, co jest nieoptymalne dla prezentowanej analizy danych. Dodatkowo komórki nieprzywierające wydawały się bardziej podatne na śmierć komórkową po uszkodzeniu błony komórkowej. Ponadto, rozważając urazy wynikające z napromieniowania agregatów AuNP, należy zauważyć, że mogą być one poważniejsze i trudniejsze do kontrolowania. Wynika to ze znacznego wzrostu nagrzewania plazmonicznego, które może uszkodzić dużą część komórki. W rezultacie takie urazy nie zostały włączone do analizy pierścieni ANXA5.
Ponadto wstępne wyniki wskazują, że przerwanie błony plazmatycznej przy użyciu termoplazmoniki prowadzi do podwyższenia wewnątrzkomórkowego poziomu Ca2+. Zaobserwowano to nawet przy niskim natężeniu naświetlania pojedynczych AuNP, co sugeruje permeabilizację błony plazmatycznej35, jak pokazano na Rysunku 4. Napływ Ca2+ zaobserwowano w komórkach wykazujących ekspresję związanej z błoną sondy wapniowej GCaMP6s-CAAX, która ulega zmianie konformacyjnej po napływie Ca2+, co pozwala na zaobserwowanie wzrostu jej intensywności64. Intensywność wapnia była ilościowo określana dla całego obszaru komórki w czasie. Aby wyeliminować szum tła, poziom Ca2+ w tle odliczono przed przerwaniem błony oraz po jej naprawie. Maksymalną intensywność określono poprzez normalizację średniej intensywności Ca2+ wewnątrz komórki, co doprowadziło do uzyskania krzywej intensywności wykazującej gwałtowny początkowy wzrost intensywności Ca2+, a następnie wolniejszy spadek, jak przedstawiono na Rysunku 4B.
Komórka osiągnęła maksymalną intensywność wapnia w czasie ~ 6,6 s, co jest zgodne z ustaleniami Klenow i wsp.64, którzy zasugerowali, że czas wystąpienia szczytu intensywności wapnia (t = tc) odpowiada czasowi wymaganemu do zamknięcia rany. Niemniej jednak, choć wymagane są dalsze badania w celu ustalenia mechanizmu naprawy błony i gojenia ran, wstępne wyniki wykazały, że ten proces Ca2+ obserwowano wyłącznie w komórce uszkodzonej, a nie w nieuszkodzonej komórce wykorzystanej jako kontrola pozytywna. Potwierdza to, że w komórce wystąpił napływ Ca2+ po termoplazmonicznej destabilizacji błony, przy czym nadmiar wapnia wewnątrzkomórkowego jest aktywnie wypompowywany po pomyślnej PMR, ponieważ poziom wapnia wewnątrzkomórkowego nie konkuruje już z napływem Ca2+, co w konsekwencji prowadzi do przywrócenia homeostazy komórkowej64.
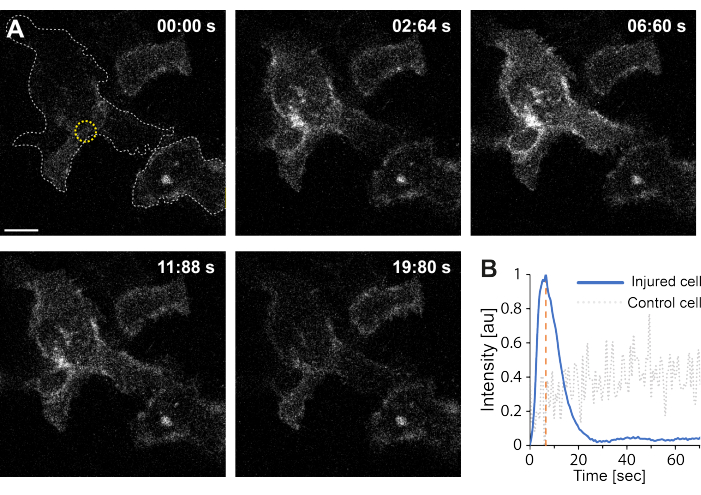
Rysunek 4: Napływ wapnia podczas przerwania błony plazmatycznej komórki HEK293T za pomocą termoplazmoniki. Seria obrazów konfokalnych przedstawia dwie komórki (komórkę badaną oraz nieuszkodzoną komórkę użytą jako kontrolę pozytywną) wykazujące ekspresję związanej z błoną sondy wapniowej GCaMP6s-CAAX. Pasek skali wynosi 10 μm. (A) Przed naświetlaniem, w czasie 00:00 s, obrys dwóch komórek jest zaznaczony szarym punktowym linią, a miejsce naświetlania jest oznaczone żółtym okręgiem. Po naświetlaniu laserem obserwuje się gwałtowny napływ Ca2+, który osiąga maksymalną intensywność w ok. 6,6 s, co zaznaczono pomarańczową przerywaną linią; przyjmuje się, że punkt ten odpowiada czasowi zamknięcia rany64. (B) Profil intensywności wapnia uzyskany z sondy GCaMP6s-CAAX w komórce uszkodzonej (linia niebieska) porównano z intensywnością Ca2+ w sąsiedniej nieuszkodzonej komórce (szara punktowa linia), co wykazało wyraźny napływ Ca2+ wyłącznie po przerwie błony plazmatycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
W badaniu podkreślono, że podejście termoplazmoniczne jest obiecującą techniką badania odpowiedzi białek w żywych komórkach i błonach modelowych po przerwaniu błony. Metoda ta dostarcza nie tylko obszernych informacji na temat rekrutacji białek, ale także na temat biofizycznej funkcji białek biorących udział w dynamice białko-błona. W związku z tym ułatwia identyfikację składników molekularnych odpowiedzialnych za naprawę powierzchni i pogłębia zrozumienie złożonej, ale istotnej maszynerii naprawy błon plazmatycznych. Chociaż istnieją różne metody indukowania przerwania błony, takie jak techniki mechaniczne, chemiczne i optyczne, metody te mają ograniczenia, takie jak brak specyficzności dla komórek, generowanie wielu uszkodzeń błony komórkowej lub powodowanie znacznych uszkodzeń błony komórkowej i ablacja wewnętrznego materiału komórkowego wzdłuż ścieżki lasera podczas korzystania z laserów impulsowych o dużej mocy. Podczas gdy integracja mikroskopii konfokalnej i pęsety optycznej dostarcza najbardziej wszechstronnych informacji, można również zastosować alternatywne metody obrazowania. Na przykład, ponieważ obrazowanie plazmonicznej nanocząstki uzyskuje się za pomocą mikroskopii refleksyjnej, wbudowanego trybu obrazowania w mikroskopach konfokalnych Leica, dodatkowe techniki obrazowania, takie jak mikroskopia ciemnego pola65,66, inne metody rozpraszania, takie jak iSCAT67,68 lub fluorescencyjne znakowanie nanocząstki, mogą być stosowane do wizualizacji AuNP, chociaż może to ograniczyć możliwość zastosowania metody.
Prezentowana metoda jest dodatkowo zdolna do indukowania nanoskopowych otworów w błonach modelowych, umożliwiając badanie efektów synergii między różnymi aneksynami. Osiąga się to poprzez enkapsulację różnie znakowanych rekombinowanych aneksyn, np. odpowiednio RFP i GFP, a następnie nakłucie termoplazmoniczne. Ten system modelowy zapewnia wgląd w to, w jaki sposób aneksyny oddziałują z membranami w pobliżu wolnych krawędzi, jak pokazano na rysunku 2D. Jednak w przeciwieństwie do komórek, wyrządzone GUV nadal się rozszerzają, a następnie następuje destabilizacja pęcherzyka. Obrazowanie ewolucji otworu za pomocą mikroskopii konfokalnej może być trudne ze względu na szybkie rozszerzanie się średnicy otworu, ale można to osiągnąć, rejestrując kilka stosów z w czasie. Alternatywną metodą byłoby użycie wirującego dysku konfokalnego w celu szybszego obrazowania. Co więcej, podejście termoplazmoniczne zazwyczaj daje ograniczoną liczbę optymalnych wyników na godzinę w przypadku zastosowania do pojedynczych komórek lub eksperymentów GUV, zwykle od dwóch do trzech, w temperaturach próbki od 20 °C do 30 °C. Aby uzyskać najdokładniejszą obserwację dynamiki białko-błona, zaleca się przechowywanie komórek w buforze zawierającym HEPES i wymianę próbki co godzinę. Alternatywnie, okno doświadczalne można rozszerzyć, przeprowadzając doświadczenia w komorze inkubacyjnej komórki, tj. w stałej temperaturze 37 °C z 5%CO2. Co więcej, połączenie tego podejścia z innymi technikami obrazowania, takimi jak stochastyczna mikroskopia rekonstrukcji optycznej (STORM), może zapewnić głębsze zrozumienie funkcji biofizycznych i interakcji kluczowych białek zaangażowanych w naprawę błony na poziomie pojedynczej cząsteczki. Może to dostarczyć szczegółowych informacji na temat miejsca urazu, w tym geometrii rany i lokalizacji białek aneksyny, a także zidentyfikować inne kluczowe czynniki zaangażowane w naprawę powierzchni błony.
Aby osiągnąć maksymalną skuteczność i precyzję w wywoływaniu uszkodzenia błony, konieczne jest sprawdzenie położenia ogniska laserowego przed każdym eksperymentem i upewnienie się, że położenie osiowe ogniska lasera pokrywa się z ogniskiem konfokalnym. To wyrównanie optymalizuje intensywność podczas obrazowania AuNP, co prowadzi do maksymalnego wzrostu temperatury lokalnej i w konsekwencji uszkodzenia błony przy niższej mocy lasera. Proces ten jest wykonywany ręcznie, a zatem podatny na zmienność skuteczności pękania błony, ponieważ ognisko jest ręcznie przesuwane na pozycję, która pokrywa się z położeniem cząstki. W mikroskopach, które nie mają trybu odbicia, jak w niektórych systemach komercyjnych, kolokacja ogniska lasera i cząstki może być wyzwaniem. W takich przypadkach można zastosować alternatywne tryby obrazowania (np. jasne pole) i wykonać powolne skanowanie rastrowe wokół oczekiwanej pozycji cząstek. Należy zauważyć, że niska moc lasera może wywołać tylko przepuszczalność membrany, podczas gdy wysoka moc lasera może generować temperatury wokół NP, które przekraczają temperaturę wrzenia wody, nawet jeśli powierzchnia szkła ma efekt chłodzenia. Szacuje się, że tworzenie się nanopęcherzyków otaczających nanocząsteczki zachodzi między 200 °C a 300 °C 25,48, gdzie wybuchowe ciepło może powodować przemieszczenie cząstek z ogniska lasera lub fragmentację cząstek. Dodatkowo tworzenie się nanopęcherzyków lub mikropęcherzyków podczas ogrzewania stanowi wyzwanie dla tej metody. Ponieważ interfejsy powietrzne odwilżają błony i mogą powodować destabilizację białek, co jest niepożądane, konieczne jest ograniczenie ogrzewania podczas badania naprawy membrany. Warto zauważyć, że złote nanopowłoki nie tolerują wysokich temperatur i ulegają degradacji w tych warunkach, jak wykazano za pomocą mikroskopii o wysokiej rozdzielczości58.
W tym artykule przedstawiono szczegółowy protokół stosowania termoplazmoniki do wykonywania wysoce zlokalizowanych nakłuć w błonach, który ma zastosowanie zarówno do komórek, jak i błon modelowych. Aby jeszcze bardziej zmniejszyć zakres ogrzewania, można wykorzystać mniejsze nanocząstki rezonansujące ze światłem NIR, umożliwiające wewnątrzkomórkowe nakłucia w endosomach, retikulum endoplazmatycznym i otoczce jądrowej. Takie nanocząstki, w tym pręciki i nanomatrioszki48, mogą być wykorzystywane do badania naprawy otoczki jądrowej poprzez celowanie w endocytozowane nanocząstki złota, które są łatwo wychwytywane na powierzchni komórki i transportowane w kierunku jądra69. Ogólnie rzecz biorąc, technika ta umożliwia identyfikację i badanie kluczowych składników molekularnych zaangażowanych w PMR, wyjaśniając ich biofizyczną funkcję i rolę, przy jednoczesnym zachowaniu żywotności komórek.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Pragniemy podziękować Jesperowi Nylandstedowi za dostarczenie nam rekombinowanych białek aneksyny i plazmidów kodujących aneksyny. Prace te były wspierane finansowo przez Duńską Radę ds. Niezależnych Badań Nauk Przyrodniczych (DFF-4181-00196), Interdyscyplinarny Program Synergii 2018 Fundacji Novo Nordisk (NNF18OC0034936), Komitet Naukowy Duńskiego Towarzystwa Onkologicznego (R90-A5847-14-S2), Fundację Lundbeck (R218-2016-534) oraz Centrum Doskonałości Fundacji Lundbeck (Biomembrany w Nanomedycynie).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Laser pułapkowy 1064 nm | Spectra Physics | N/A | Spectra Physics J201-BL-106C, Nd: YVO4 NIR laser |
| 160 nm Złote nanopowłoki | NanoComposix | NCXGSIR150 | |
| 200 nm Nanocząstki złota | BBI Solutions | EM. GC200/7 | |
| 35 mm szklana powierzchnia MatTex microwell | MATTEK | P35G-1.5-14-C | |
| Fiolki ze szkła bursztynowego | Supelco Sigma Aldrich | 243438 | |
| Annexin A2 plazmidy | N/A | /A | Otrzymane od naszego współpracownika w Duńskim Centrum Badań nad Rakiem |
| Aneksyna A4 rekombinowane białko | Nie dotyczy | N-końcowego GFP oznaczonego ANXA4 otrzymanego od naszego współpracownika w Duńskim Centrum Badań nad Rakiem | |
| Rekombinowane białko Aneksyna A5 | Nie | N-terminala GFP oznaczonego ANXA5 otrzymanego od naszego współpracownika w Duńskim Centrum Badań nad Rakiem | |
| beta-kazeiny | Sigma Life Science | C6905-1G | |
| CaCl2 | Suprlco (sigma Aldrich) | 10035-04-8 | |
| Wirówka 5702 | Eppendorf | 5702 | |
| Chloroform | VWR Chemicals | 67-66-3 | |
| Naczynie hodowlane (Nunclon Delta Surface) | Thermo scientific | 150460 | |
| Znakowanie komórek DID Roztwór | Invitrogen | 7757 | |
| Woda destylowana | Gibco | 15230-089 | |
| DOPC | Avanti Polar Lipids | 850375C | rozpuszczona w chloroformie |
| DOPS | Avanti Polar Lipids | 840035C | Rozpuszczony w chloroformie |
| Dulbecco's Modified Eage's Medium | Thermo Fisher Scientific | 11995065 | |
| FIJI ImageJ dystrybucja ImageJ2 | N/A | ||
| GCaMP6s-CAAX | N/A | Otrzymane od naszego współpracownika w Duńskim Centrum Badań nad Rakiem | |
| Gibco Płodowa surowica bydlęca | Fisher Naukowe | 11573397 | 10% pożywki hodowlanej |
| Glukoza | PROLABO | 24 374.297 | |
| Strzykawki Hamilton | Company | N/A | 50 i 500 mikrolitrów |
| Harrick Plasma Cleaner PDG-002 | Harrick Plasma | N/A | |
| HEK293T cells | N/A | Otrzymane od naszego współpracownika w Duńskim Centrum | |
| Badań nad RakiemLeica Akustyczno-Optyczny Rozdzielacz Wiązki (AOBS) | Leica | N/A | |
| Obiektyw do zanurzenia w wodzie Leica PL APO 63x, NA = 1.2 | Leica | N/A | |
| Skaningowy mikroskop konfokalny Leica SP5 | Leica | N/A | |
| Lipofectamine | Fisher Scientific | 15338030 | |
| MatLab | The Mathworks, Inc., Natick, Massachusetts, Stany Zjednoczone | Nie | |
| NaCl | VWR Chemicals | 7647-14-5 | |
| Opti-MEM Podłoże o obniżonej surowicy | Thermo Fisher Scientific | 11058021 | |
| Parafilm | Bemis | PM-992 | |
| Penicylina-Streptomycyna | Thermo Fisher Scientific | 15140122 | 1% pożywki Sól fizjologiczna |
| buforowana fosforanami (PBS) | Thermo Fisher Scientific | 10010023 | |
| Stopień piezoelektryczny (PI 731.20) | Physik Instrumente (Niemcy) | N/A | |
| Poly-L-Lysine | Sigma-Aldrich | P8920-100ML | 0,01-0,1% do powlekania |
| Alkohol poliwinylowy | Sigma-Aldrich | 363065-25G | |
| szkiełko okrągłe 25 mm i Oslash; | VWR | 631-1584 | |
| Sonicator Brandson 2800 | Brandson | N/A | |
| sacharoza | Sigma Life Science | 57-50-1 | |
| Kolba do hodowli tkankowych T25 | Falcon | 353108 | Niebieska wentylowana nasadka |
| Tris-HCl | Invitrogen | 15567-027 | |
| TrypLE | Thermo Fisher Scientific | A1285901 | |
| Trypsyna-EDTA | Fisher Scientific | 11590626 | |
| VWR Mieszarka mini vortex 230V EU | VWR& | nbsp; 12620-84 | ECN: 444-2790, SN: 150713022 |
Bibliografia
- Bendix, P. M., et al. Interdisciplinary synergy to reveal mechanisms of annexin-mediated plasma membrane shaping and repair. Cells. 9 (4), 1029(2020).
- Gajic, O., Lee, J., Doerr, C. H., Berrios, J. C., Myers, J. L., Hubmayr, R. D. Ventilator-induced Cell Wounding and Repair in the Intact Lung. American Journal of Respiratory and Critical Care Medicine. 167, 1057-1063 (2003).
- McNeil, P. L., Khakee, R. Disruptions of muscle fiber plasma membranes. Role in exercise-induced damage. The American Journal of Pathology. 140 (5), 1097-1109 (1992).
- Yu, Q. C., McNeil, P. L. Transient disruptions of aortic endothelial cell plasma membranes. The American Journal of Pathology. 141 (6), 1349-1360 (1992).
- Boye, T. L., et al. Annexin A4 and A6 induce membrane curvature and constriction during cell membrane repair. Nature Communications. 8, 1623(2017).
- Bischofberger, M., Gonzalez, M. R., van der Goot, F. G. Membrane injury by pore-forming proteins. Current Opinion in Cell Biology. 21, 589-595 (2009).
- Tang, S. K. Y., Marshall, W. F. Self-repairing cells. Science (New York, N.Y.). 356, 1022-1025 (2017).
- Abreu-Blanco, M. T., Verboon, J. M., Parkhurst, S. M. Single cell wound repair: Dealing with life's little traumas. Bioarchitecture. 1, 114-121 (2011).
- Sønder, S. L., et al. Annexin A7 is required for ESCRT III-mediated plasma membrane repair. Scientific Reports. 9, 6726(2019).
- Andrews, N. W., Almeida, P. E., Corrotte, M. Damage control: cellular mechanisms of plasma membrane repair. Trends in Cell Biology. 24 (12), 734-742 (2014).
- Idone, V., Tam, C., Goss, J. W., Toomre, D., Pypaert, M., Andrews, N. W. Repair of injured plasma membrane by rapid Ca2+-dependent endocytosis. The Journal of Cell Biology. 180 (5), 905-914 (2008).
- Lauritzen, S. P., Boye, T. L., Nylandsted, J. Annexins are instrumental for efficient plasma membrane repair in cancer cells. Seminars in Cell & Developmental Biology. 45, 32-38 (2015).
- Häger, S. C., Nylandsted, J. Annexins: players of single cell wound healing and regeneration. Communicative & Integrative Biology. 12 (1), 162-165 (2019).
- Jaiswal, J. K., et al. S100A11 is required for efficient plasma membrane repair and survival of invasive cancer cells. Nature Communications. 5, 3795(2014).
- Draeger, A., Monastyrskaya, K., Babiychuk, E. B. Plasma membrane repair and cellular damage control: The annexin survival kit. Biochemical Pharmacology. 81 (6), 703-712 (2011).
- Moreno-Pescador, G. S., et al. Thermoplasmonic nano-rupture of cells reveals annexin V function in plasma membrane repair. Nanoscale. 14 (21), 7778-7787 (2022).
- Zhivotovsky, B., Orrenius, S. Calcium and cell death mechanisms: A perspective from the cell death community. Cell Calcium. 50 (3), 211-221 (2011).
- Gerke, V., Moss, S. E. Annexins: From structure to function. Physiological Reviews. 82 (2), 331-371 (2002).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends in Cell Biology. 18 (11), 552-559 (2008).
- Boye, T. L., et al. Annexins induce curvature on free-edge membranes displaying distinct morphologies. Scientific Reports. 8, 10309(2018).
- Bouter, A., et al. Annexin-A5 assembled into two-dimensional arrays promotes cell membrane repair. Nature Communications. 2, 270(2011).
- Boye, T. L., Nylandsted, J. Annexins in plasma membrane repair. Biological Chemistry. 397 (10), 961-969 (2016).
- Weinberger, A., et al. Gel-assisted formation of giant unilamellar vesicles. Biophysical Journal. 105 (1), 154-164 (2013).
- Numata, T., Tatsuta, H., Morita, Y., Otani, Y., Umeda, N. Localized thermal processing with a laser-trapped and heated metal nanoparticle. IEEJ Transactions on Electrical and Electronic Engineering. 2, 398-401 (2007).
- Bendix, P. M., Reihani, S. N. S., Oddershede, L. B. Direct measurements of heating by electromagnetically trapped gold nanoparticles on supported lipid bilayers. ACS Nano. 4 (4), 2256-2262 (2010).
- Kyrsting, A., Bendix, P. M., Stamou, D. G., Oddershede, L. B. Heat profiling of three-dimensionally optically trapped gold nanoparticles using vesicle cargo release. Nano Letters. 11 (2), 888-892 (2011).
- Andersen, T., Kyrsting, A., Bendix, P. M. Local and transient permeation events are associated with local melting of giant liposomes. Soft Matter. 10 (24), 4268-4274 (2014).
- Bahadori, A., Oddershede, L. B., Bendix, P. M. Hot-nanoparticle-mediated fusion of selected cells. Nano Research. 10, 2034-2045 (2017).
- Rørvig-Lund, A., Bahadori, A., Semsey, S., Bendix, P. M., Oddershede, L. B. Vesicle fusion triggered by optically heated gold nanoparticles. Nano Letters. 15 (6), 4183-4188 (2015).
- Moreno-Pescador, G., Arastoo, M. R., Ruhoff, V. T., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic vesicle fusion reveals membrane phase segregation of influenza spike proteins. Nano Letters. 23 (8), 3377-3384 (2023).
- Bahadori, A., Lund, A. R., Semsey, S., Oddershede, L. B., Bendix, P. M. Controlled cellular fusion using optically trapped plasmonic nano-heaters. SPIE Proceedings. SPIE 9922, Optical Trapping and Optical Micromanipulation XIII. 992211, (2016).
- Bahadori, A., Moreno-Pescador, G., Oddershede, L. B., Bendix, P. M. Remotely controlled fusion of selected vesicles and living cells: a key issue review. Reports on Progress in Physics. 81 (3), 32602(2018).
- Moreno-Pescador, G., Arastoo, M. R., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic induced vesicle fusion for investigating membrane protein phase affinity. bioRxiv. , (2022).
- Pescador, G. S. M., et al. Investigating plasma-membrane repair employing thermoplasmonics. Biophysical Journal. 120 (3), 45A(2021).
- Moreno-Pescador, G. S., Qoqaj, I., Thusgaard Ruhoff, V., Iversen, J., Nylandsted, J., Bendix, P. M. Effect of local thermoplasmonic heating on biological membranes. SPIE 11083, Optical Trapping and Optical Micromanipulation XVI. 110830M, (2019).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Current Biology. 9 (11), 579-587 (1999).
- Weisleder, N., et al. Recombinant MG53 protein modulates therapeutic cell membrane repair in treatment of muscular dystrophy. Science Translational Medicine. 4 (139), 139ra85(2012).
- Sudji, I. R., Subburaj, Y., Frenkel, N., García-Sáez, A. J., Wink, M. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 20 (11), 20146-20160 (2015).
- Babiychuk, E. B., Monastyrskaya, K., Potez, S., Draeger, A. Intracellular Ca2+ operates a switch between repair and lysis of streptolysin O-perforated cells. Cell Death & Differentiation. 16, 1126-1134 (2009).
- Nygård Skalman, L., Holst, M. R., Larsson, E., Lundmark, R. Plasma membrane damage caused by listeriolysin O is not repaired through endocytosis of the membrane pore. Biology Open. 7 (10), bio035287(2018).
- Swaggart, K. A., et al. Annexin A6 modifies muscular dystrophy by mediating sarcolemmal repair. Proceedings of the National Academy of Sciences of the United States of America. 111, 6004-6009 (2014).
- Yeheskely-Hayon, D., Minai, L., Golan, L., Dann, E. J., Yelin, D. Optically induced cell fusion using bispecific nanoparticles. Small. 9 (22), 3771-3777 (2013).
- Minai, L., Yeheskely-Hayon, D., Golan, L., Bisker, G., Dann, E. J., Yelin, D. Optical nanomanipulations of malignant cells: Controlled cell damage and fusion. Small. 8 (11), 1732-1739 (2012).
- Lukianova-Hleb, E., et al. Plasmonic nanobubbles as transient vapor nanobubbles generated around plasmonic nanoparticles. ACS Nano. 4 (4), 2109-2123 (2010).
- Vogel, A., Noack, J., Hüttman, G., Paltauf, G. Mechanisms of femtosecond laser nanosurgery of cells and tissues. Applied Physics B. 81, 1015-1047 (2005).
- Baffou, G., Polleux, J., Rigneault, H., Monneret, S. Super-heating and micro-bubble generation around plasmonic nanoparticles under cw illumination. Journal of Physical Chemistry C. 118 (9), 4890-4898 (2014).
- Sasikumar, K., Liang, Z., Cahill, D. G., Keblinski, P. Curvature induced phase stability of an intensely heated liquid. Journal of Chemical Physics. 140 (23), 234506(2014).
- Jauffred, L., Samadi, A., Klingberg, H., Bendix, P. M., Oddershede, L. B. Plasmonic heating of nanostructures. Chemical Reviews. 119 (13), 8087-8130 (2019).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nature Methods. 5 (6), 491-505 (2008).
- Bendix, P. M., Jauffred, L., Norregaard, K., Oddershede, L. B. Optical trapping of nanoparticles and quantum dots. IEEE Journal of Selected Topics in Quantum Electronics. 20, 15-26 (2014).
- Samadi, A., Bendix, P. M., Oddershede, L. B. Optical manipulation of individual strongly absorbing platinum nanoparticles. Nanoscale. 46, 18449-18455 (2017).
- Jørgensen, J. T., Norregaard, K., Tian, P., Bendix, P. M., Kjaer, A., Oddershede, L. B. Single particle and PET-based platform for identifying optimal plasmonic nano-heaters for photothermal cancer therapy. Scientific Reports. 6, 30076(2016).
- Goldenberg, H., Tranter, C. J. Heat flow in an infinite medium heated by a sphere. British Journal of Applied Physics. 3 (9), 296-298 (1952).
- Eustis, S., El-Sayed, M. A. Why gold nanoparticles are more precious than pretty gold: Noble metal surface plasmon resonance and its enhancement of the radiative and nonradiative properties of nanocrystals of different shapes. Chemical Society Reviews. 35, 209-217 (2006).
- Landau, L. D., Lifshitz, E. M. Fluid Mechanics: Landau and Lifshitz: Course of Theoretical Physics. 6, Elsevier. (2013).
- Niederauer, C., Seynen, M., Zomerdijk, J., Kamp, M., Ganzinger, K. A. The K2: Open-source simultaneous triple-color TIRF microscope for live-cell and single-molecule imaging. HardwareX. 13, e00404(2023).
- Richardson, A. C., Reihani, N., Oddershede, L. B. Combining confocal microscopy with precise force-scope optical tweezers. SPIE Proceedings:SPIE 6326, Optical Trapping and Optical Micromanipulation III. 632628, (2006).
- Samadi, A., Klingberg, H., Jauffred, L., Kjær, A., Bendix, P. M., Oddershede, L. B. Platinum nanoparticles: a non-toxic, effective and thermally stable alternative plasmonic material for cancer therapy and bioengineering. Nanoscale. 10 (19), 9097-9107 (2018).
- ThermoFisher Scientific Attofluor Cell Chamber for microscopy. , https://www.thermofisher.com/order/catalog/product/A7816 (2023).
- Kreibig, U., Vollmer, M. Theoretical considerations. In: Optical Properties of Metal Clusters. 25, Springer, Berlin, Heidelberg. (1995).
- Mie, G. Beiträge zur Optik trüber Medien, speziell kolloidaler Metallösungen. Annalen der Physik. 330 (3), 377-445 (1908).
- Rueden, C. T., et al. ImageJ2: ImageJ for the next generation of scientific image data. BMC Bioinformatics. 18 (1), 529(2017).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- Klenow, M. B., Heitmann, A. S. B., Nylandsted, J., Simonsen, A. C. Timescale of hole closure during plasma membrane repair estimated by calcium imaging and numerical modeling. Scientific Reports. 11, 4226(2021).
- Li, T., Wu, X., Liu, F., Li, N. Analytical methods based on the light-scattering of plasmonic nanoparticles at the single particle level with dark-field microscopy imaging. Analyst. 142 (2), 248-256 (2017).
- Gibbs-Flournoy, E. A., Bromberg, P. A., Hofer, T. P. J., Samet, J. M., Zucker, R. M. Darkfield-Confocal Microscopy detection of nanoscale particle internalization by human lung cells. Particle and Fibre Toxicology. 8 (1), 2(2011).
- Taylor, R. W., Sandoghdar, V. Interferometric scattering microscopy: Seeing single nanoparticles and molecules via Rayleigh scattering. Nano Letters. 19 (8), 4827-4835 (2019).
- Wu, Y., Ali, M. R. K., Chen, K., Fang, N., El-Sayed, M. A. Gold nanoparticles in biological optical imaging. Nano Today. 24, 120-140 (2019).
- Klingberg, H., Oddershede, L. B., Loeschner, K., Larsen, E. H., Loft, S., Møller, P. Uptake of gold nanoparticles in primary human endothelial cells. Toxicology Research. 4 (3), 566-666 (2015).
Przedruki i uprawnienia
