Ten protokół opisuje test behawioralny do rejestrowania zachowań związanych z wyszukiwaniem wywołanym cukrem za pomocą Drosophila melanogaster. Test może być wykorzystany do badania zachowań związanych z karmieniem i żerowaniem, a także leżących u ich podstaw mechanizmów neuronalnych.
Artykuł metodologiczny
Śledzenie lokalnych zachowań związanych z poszukiwaniami wywołanymi cukrem u Drosophila
W tym artykule
Podsumowanie
Streszczenie
Zachowania związane z żerowaniem są niezbędne dla przetrwania organizmów, ponieważ umożliwiają im lokalizowanie i zdobywanie niezbędnych zasobów żywności. U Drosophila głód wyzwala wyraźne zachowanie poszukiwawcze po spożyciu niewielkich ilości roztworu cukru. Niniejszy raport przedstawia prostą konfigurację eksperymentalną do badania zachowań związanych z wyszukiwaniem wywołanym cukrem w celu odkrycia mechanizmów leżących u ich podstaw. Niewielkie ilości stężonego roztworu cukru wywołują u much długotrwałe zachowania poszukiwawcze. Ustalono udział integracji ścieżki w tym zachowaniu, ponieważ muchy wykorzystują swoją trajektorię, aby powrócić do lokalizacji cukru. Najnowsze odkrycia dostarczają dowodów na czasową modulację w inicjacji i intensywności zachowań poszukiwawczych po spożyciu cukru. Użyliśmy również tej konfiguracji do sztucznej aktywacji specyficznych neuronów receptorów smaku w gardle, które wywołują zachowania poszukiwawcze. Zestaw narzędzi neurogenetycznych Drosophila oferuje różnorodny wachlarz narzędzi i technik, które można połączyć z paradygmatem zachowań poszukiwawczych wywołanych cukrem w celu zbadania neuronalnych i genetycznych mechanizmów leżących u podstaw żerowania. Zrozumienie neuronalnych podstaw zachowań poszukiwawczych spowodowanych głodem u much przyczynia się do rozwoju neurobiologii jako całości, oferując wgląd w mechanizmy regulacyjne, które rządzą zachowaniami żywieniowymi nie tylko u innych organizmów, ale także u ludzi.
Wprowadzenie
Poszukiwanie pożywienia i żerowanie to podstawowa strategia przetrwania stosowana przez organizmy w różnych taksonach. U owadów zidentyfikowano dwa rodzaje zachowań związanych z żerowaniem: poszukiwanie pożywienia wywołane głodem i lokalne wyszukiwanie po posiłku1. Kiedy są głodne, owady polegają na sygnałach sensorycznych, aby zlokalizować źródła pożywienia. Po napotkaniu i zjedzeniu małego grządki z jedzeniem, inicjują lokalne zachowanie poszukiwawcze charakteryzujące się zawiłymi ścieżkami i krążeniem wokół miejsca jedzenia.
Zachowania związane z wyszukiwaniem wywołane cukrem, szczególna forma wyszukiwania lokalnego, została po raz pierwszy zbadana ponad 60 lat temu przez amerykańskiego biologa Vincenta Dethiera w klasie plujki2. Po zagłodzeniu muchom podaje się niewielką ilość cukru, tak aby ich nie nasycił, rozpoczynają lokalne poszukiwania. Typowe zachowanie poszukiwawcze charakteryzuje się bardzo krętym chodzeniem z niską motoryką i dużą szybkością obracania się oraz wracaniem do miejsca, w którym spadł cukier. Kolejne badania dotyczyły tego zachowania u muszek domowych i muszek owocowych3,4. Inicjacja, intensywność i czas trwania poszukiwań są regulowane przez wewnętrzny stan zwierzęcia (np. deprywacja i motywacja), a także czynniki zewnętrzne, takie jak dostępność i jakość zasobów1,5,6.
Postęp w technologiach śledzenia dostarczył badaczom cennych narzędzi do rejestrowania i analizowania zachowań na kontrolowanych arenach. W tym miejscu przedstawiamy paradygmat behawioralny do śledzenia swobodnie chodzących much po spożyciu cukru. Ta prosta konfiguracja umożliwia badanie zachowań poszukiwawczych wywołanych cukrem u Drosophila poprzez uchwycenie i analizę ruchu muchy w odpowiedzi na skoncentrowany roztwór cukru dostarczony na arenie. Wykorzystując zaawansowaną technologię śledzenia i techniki analizy danych, udało się określić ilościowo wzorce lokomotoryczne, eksplorację przestrzenną i dynamikę reakcji na bodźce cukrowe.
Korzystając z tego testu, eksperymentalnie wykazano, że wyszukiwanie wywołane cukrem obejmuje wykorzystanie integracji ścieżki i może być przestrzennie i czasowo oddzielone od spożycia cukru7,8. Ponadto wykazano, że zachowanie to może być wywołane przez aktywację neuronów smaku gardła9. Ostatnie wyniki pokazują, że bodziec cukrowy nie jest wrodzonym mechanizmem uwalniania, ale także modulacyjnym i kontroluje inicjację zachowania w czasie8. Korzystając z tego paradygmatu, badaliśmy również to zachowanie u pszczół miodnych (Apis mellifera)7,8.
Ostateczny cel tych badań polega na odkryciu obwodów neuronowych i nowych komponentów genetycznych odpowiedzialnych za regulację zachowań związanych z wyszukiwaniem za pomocą ukierunkowanych manipulacji genetycznych i technik neuroobrazowania. Zachowania związane z poszukiwaniem pożywienia okazały się wysoce skutecznymi paradygmatami eksperymentalnymi do badania nawigacji i pamięci przestrzennej u owadów. Zachowania te stanowią wyjątkową okazję do zbadania percepcji sensorycznej, procesów decyzyjnych i koordynacji ruchowej zaangażowanych w poszukiwanie nagradzających źródeł pożywienia u much. Ponadto wyniki tych badań mają szersze implikacje dla zrozumienia zachowań żywieniowych u innych organizmów, w tym ludzi, ponieważ wiele podstawowych mechanizmów genetycznych i neuronalnych jest ewolucyjnie zachowanych. Rozregulowanie zachowań żywieniowych wiąże się z różnymi zaburzeniami neurologicznymi i metabolicznymi10. W związku z tym mechanizmy neuronalne i genetyczne leżące u podstaw zachowań poszukiwawczych u much mogą oferować nowe możliwości zrozumienia i potencjalnego rozwiązania tych złożonych wyzwań związanych ze zdrowiem ludzkim.
Protokół
Dorosłe samce much dzikiego szczepu Drosophila melanogaster Canton-S (CS) zostały użyte do niniejszego badania.
1. Przygotowanie eksperymentalne
- Hodowla much
- Zebrać dorosłe samce much, które pojawiają się w ciągu 12 godzin i utrzymywać je na standardowej pożywce dla much (przygotowanej na miejscu) przez 48 godzin w temperaturze 25 °C przy wilgotności względnej 75% w 12-godzinnym cyklu jasnym/ciemnym.
UWAGA: Zastosowany skład pożywki Drosophila składał się (na 1 l pożywki) z mąki kukurydzianej (80 g), D-glukozy (20 g), cukru (40 g), agaru (8 g), drożdży w proszku (15 g), kwasu propionowego (4 ml), 4-hydroksybenzoesanu metylu (1,25 g w 3 ml etanolu) i kwasu ortofosforowego (600 μl) (patrz tabela materiałów). Początkowy okres żerowania zapewnia muchom dostęp do wystarczającej ilości pożywienia i składników odżywczych przed fazą głodu. Podczas gdy zarówno samce, jak i samice much wywołują zachowania poszukiwawcze, czas głodu jest bardziej spójny wśród samców much. Dodatkowo samice much zmieniają swoje preferencje żywieniowe po kryciu11.
- Zebrać dorosłe samce much, które pojawiają się w ciągu 12 godzin i utrzymywać je na standardowej pożywce dla much (przygotowanej na miejscu) przez 48 godzin w temperaturze 25 °C przy wilgotności względnej 75% w 12-godzinnym cyklu jasnym/ciemnym.
- Procedura głodowa
- Po okresie karmienia pozbawić muchy pożywienia, ale z dostępem do wody.
UWAGA: Aby ustandaryzować stan głodu w różnych próbach i szczepach, sugeruje się określenie czasu przeżycia 90% populacji w warunkach głodu żywności. Na podstawie tego wyniku, muchy CS były głodzone przez 28 godzin (Rysunek 1A), ponieważ rytm okołodobowy i inne czynniki mogą wpływać na zachowanie wyszukiwania12. Zmierzono również okołodobowe zmiany w poszukiwaniu much o różnych porach dnia (Rysunek 1B). Zauważyliśmy zmniejszoną względną aktywność poszukiwawczą w nocy w porównaniu z fazą światła u much. - Oblicz tolerancję głodu pokarmowego, pozbawiając dwudniowe muchy pożywienia. Umieść 15-20 much w fiolce z nasączoną bibułą na dnie. Służy to jako podłoże i zapewnia muchom dostęp do wody przez cały okres głodu.
- Policz liczbę much w okresie głodu pokarmowego w regularnych odstępach czasu co 1 godzinę. Czas, w którym przeżyło 90% wygłodzonych much, został wykorzystany jako okres głodu (Rysunek 1A). Należy użyć wielu powtórzeń (3-4 dla każdego szczepu), aby zminimalizować wpływ poszczególnych zmian i zapewnić bardziej wiarygodną ocenę tolerancji głodu.
UWAGA: Tolerancja na głód pokarmowy każdego szczepu została określona w celu ustalenia standaryzowanego stanu głodu wśród różnych szczepów i eksperymentów. Licząc muchy, które przeżyły w tych odstępach czasu, można monitorować wskaźnik przeżywalności w czasie i określić, jak długo każdy szczep może tolerować brak pożywienia, zanim umrze z głodu.
- Po okresie karmienia pozbawić muchy pożywienia, ale z dostępem do wody.
- Procedura rejestrowania zachowania
- Przenieś pojedyncze wygłodzone muchy w małych rurkach (Rysunek 2A). Rób to w partiach po 5-6 much, aby zminimalizować czas izolacji. Testując pojedyncze muchy, izolując każdą muchę, wszelkie zaobserwowane zmiany lub działania można przypisać konkretnej obserwowanej muchy, a nie wpływom interakcji z innymi muchami.
- Użyj szalek Petriego o średnicy 90 mm jako areny do testów behawioralnych (można użyć większych szalek Petriego). Nie stwierdzono różnicy w zachowaniu na szalkach Petriego o większej średnicy). Oświetl arenę od dołu za pomocą panelu z natynkowych diod LED o chłodnym białym kolorze (Rysunek 2B,C). Aby utrzymać jednolite środowisko wizualne i zminimalizować zewnętrzne rozproszenie uwagi, należy otoczyć arenę doświadczalną białą rurą z polichlorku winylu (wysokość 51,5 mm, średnica wewnętrzna 114 mm).
UWAGA: Ta rura działa jak bariera, zapobiegając wpływowi jakichkolwiek bodźców wizualnych spoza areny na zachowanie muchy. Zmniejszając zewnętrzne rozproszenia, można skupić się wyłącznie na interakcji muchy ze źródłem pożywienia, zachowując spójność przez cały eksperyment. - Użyj natężenia światła 320 luksów na środku areny.
- Umieść 0,2 μl roztworu cukru na środku areny. W zgłoszonych eksperymentach użyto 500 mM roztworu sacharozy, ale może się to zmieniać. Wprowadź muchę na arenę za pomocą mikroprobówki wirówkowej o pojemności 2 ml (średnica wewnętrzna 8,7 mm, długość zmniejszona do 5 mm poprzez wypełnienie bawełną na dnie; Rysunek 2A) trzyma pojedynczą muchę odwróconą nad kroplą cukru.
- Gdy mucha zacznie połykać kropelkę, wyjmij pojemnik na muchy, dając muchy nieograniczony dostęp do źródła pożywienia.
- Sfilmuj pozycję 2D areny za pomocą kamery nad głową.
UWAGA: Flea3 (Point Grey, obiektyw 1214 mm, patrz tabela materiałów) został użyty w niniejszym badaniu i zarejestrowany z prędkością 40 klatek na sekundę (fps). Można jednak użyć dowolnej kamery, która zapewnia dobry kontrast z tłem. Można nagrywać z prędkością 30-60 kl./s, w zależności od charakteru eksperymentu. Nagrywaj w formacie .avi, ponieważ jest on kompatybilny z oprogramowaniem śledzącym. - Nagrywaj próbę do momentu, gdy mucha uciekła z areny. Muchy chodziły swobodnie, a na arenie nie było pokrywy.
- Pozwalając muszce zdecydować, kiedy przestać szukać, odlecieć lub przejść na obrzeża areny, obserwuj naturalne zachowanie muchy i strategię poszukiwania pożywienia. Przetrzyj szalki Petriego 70% etanolem między próbami i całkowicie je wysusz lub użyj nowej szalki Petriego.
UWAGA: Ważne jest, aby przeprowadzać wszystkie eksperymenty między 2 godziną a 6 godzinami po włączeniu świateł, gdy muchy wykazują niezmiennie wysoki poziom aktywności. Ten przedział czasowy zapewnia, że muchy są w stanie aktywnym, maksymalizując szanse na zaobserwowanie ich naturalnego zachowania związanego z poszukiwaniem pożywienia i zmniejszając wpływ innych czynników, które mogą wpływać na ich zachowanie, takich jak rytmy okołodobowe. Konfiguracja behawioralna została umieszczona w pomieszczeniu o kontrolowanej temperaturze i wilgotności. Arena została umieszczona na stole bez wibracji. Ta eksperymentalna konfiguracja polegała na izolowaniu i testowaniu poszczególnych muszek pod kątem ich reakcji na cukier. Wygłodzonym muchom podano kroplę cukru, a ich zachowanie zostało nagrane na wideo (Rysunek 2B,C, Wideo 1). Eksperymenty przeprowadzono w określonym przedziale czasowym, w którym muszki wykazywały stały wysoki poziom aktywności.
- Przeanalizuj trajektorie zgodnie z krokiem 2, aby określić zachowanie wyszukiwania.
2. Analiza trajektorii dla wyszukiwania lokalnego
- Przeanalizuj nagrane filmy za pomocą oprogramowania Ctrax11 (patrz Tabela materiałów).
UWAGA: Oprogramowanie śledzi i konwertuje pozycję muchy na filmie na współrzędne x, y, umożliwiając precyzyjne śledzenie i analizę jej ruchów. Zapoznaj się z plikiem uzupełniającym 1, aby uzyskać szczegółowe informacje na temat korzystania z Ctrax. - Podziel trajektorie na dwie fazy: początkową fazę karmienia i fazę poszukiwania. Określ koniec żerowania i początek chodu jako muchy poruszające się z prędkością >4 mm s-1 w trzech kolejnych klatkach.
UWAGA: Po zakończeniu żerowania pozostała część trajektorii została wykorzystana jako odpowiedź poszukiwawcza much. W tym badaniu wykorzystano VirtualDub (patrz >tabela materiałów) w celu usunięcia fazy karmienia z filmów przed śledzeniem. - Określ ilościowo wyszukiwanie za pomocą następujących parametrów:
- Długość ścieżki: Ten parametr reprezentuje odległość przebytą przez muchę od punktu początkowego podczas poszukiwania pożywienia (w mm).
- Czas postoju: Czas spędzony przez muchy podczas chodzenia podczas poszukiwań (w s). Wskazuje czas trwania poszukiwań i wytrwałość muchy w poszukiwaniu pożywienia.
- Meandr: Oblicz to jako stosunek, dzieląc linię prostą (odległość między pierwszym a ostatnim punktem ścieżki) ścieżki przez całkowitą długość ścieżki i odejmując od 1. Wysokie wartości meandra wskazują na większą krętość trajektorii.
- Liczba zwrotów: Użyj opracowanego algorytmu, aby zidentyfikować i policzyć liczbę zwrotów za pomocą dwóch koncentrycznych okręgów.
UWAGA: Wewnętrzny okrąg wskazujący początek poszukiwań, Rin (2,5 mm) i zewnętrzny okrąg wskazujący minimalną odległość Rout (4 mm), na jaką mucha musiała oddalić się od punktu początkowego. Powrót był definiowany jako wyjście z zewnętrznego okręgu (Rout), a następnie powrót do wewnętrznego kręgu (Rin). - Wskaźnik aktywności: Wyrażony w procentach, oblicz wskaźnik aktywności, określając czas podczas poszukiwania pożywienia, kiedy prędkość chodzenia muchy przekracza 2 mm/s. Ten parametr odzwierciedla poziom aktywności muchy i jej zaangażowanie w poszukiwanie pożywienia. Odróżnia aktywnych zbieraczy od mniej aktywnych osobników.
UWAGA: W niniejszym badaniu wykorzystano MATLAB i Python do dalszej analizy trajektorii. Dostęp do skryptów można uzyskać tutaj: https://github.com/eagermeagre/sugar_elicited_search. Procedura analizy polega na wykorzystaniu oprogramowania Ctrax do śledzenia ruchów muchy i określania parametrów, takich jak czas poszukiwania pokarmu, całkowita długość ścieżki, czas wyszukiwania, meandr, liczba powrotów i wskaźnik aktywności. Parametry te dostarczają cennych informacji na temat zachowania muszki i wydajności żerowania podczas zarejestrowanych eksperymentów w poszukiwaniu pożywienia.
Wyniki
Muchy musiały być głodzone przez okres określony na podstawie tolerancji na głodzenie, a odpowiedź na cukier była testowana indywidualnie (Rysunek 1A oraz Rysunek 2A). Zachowanie rejestrowano w pomieszczeniu z kontrolowaną temperaturą i wilgotnością. W opisanych eksperymentach wykorzystano 0,2 µL 500 mM roztworu sacharozy. Kroplę cukru umieszczono w centrum areny, a następnie wprowadzono do niej muchy (Rysunek 2B). Zachowanie rejestrowano do momentu ucieczki much z areny. Filmy poddano analizie w celu wyznaczenia współrzędnych x,y oraz trajektorii ruchu much. Do ilościowego określenia odpowiedzi behawioralnej wykorzystano kilka parametrów: długość ścieżki, czas przebywania, meandrowanie, liczbę powrotów oraz wskaźnik aktywności.
Podanie cukru głodnym muchom prowadzi do lokalnego poszukiwania charakteryzującego się krętą ścieżką i pętlami (Rysunek 3A,C). Jako kontrolę negatywną zarejestrowano głodne muchy, którym nie podano cukru8. Muchy te po wprowadzeniu do pustej areny nie rozpoczęły poszukiwań i opuściły arenę (Rysunek 3B,D). Grupę tę określono jako muchy niekarmione. Parametry poszukiwania: długość ścieżki, czas przebywania, stopień krętości i liczba powrotów były znacznie niższe u much niekarmionych w porównaniu do much, którym podano kroplę cukru (Rysunek 4A-D).
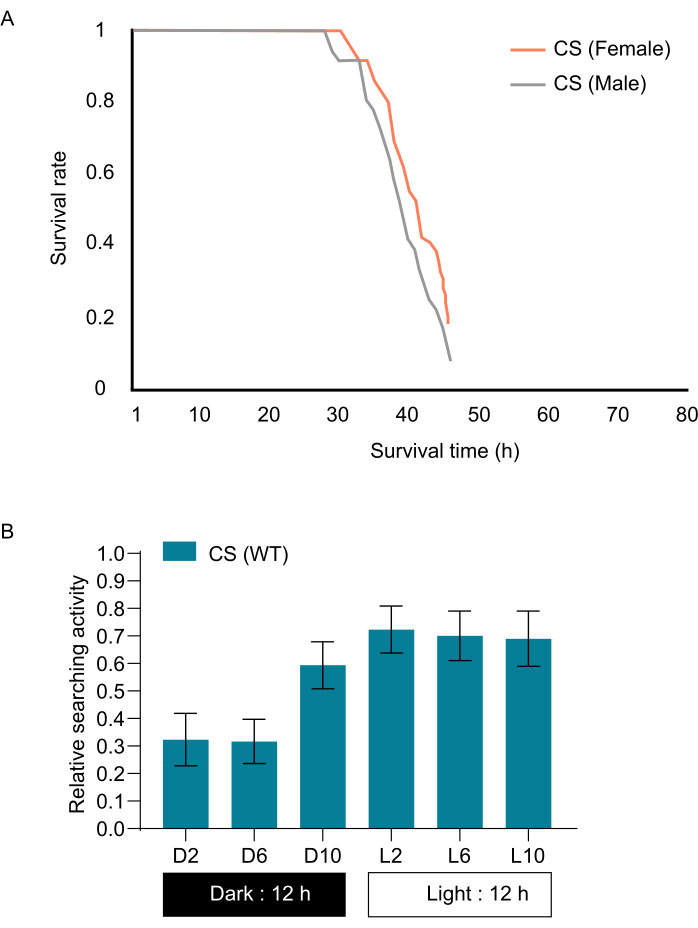
Rycina 1: Krzywe głodzenia szczepu typu dzikiego CS. (A) Krzywa głodzenia przedstawiająca wskaźnik przeżywalności dla samców i samic much typu dzikiego CS. (B) Zmiany okołodobowe aktywności poszukiwawczej much w różnych porach dnia. Słupki błędów reprezentują S.E.M. (n = 10). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
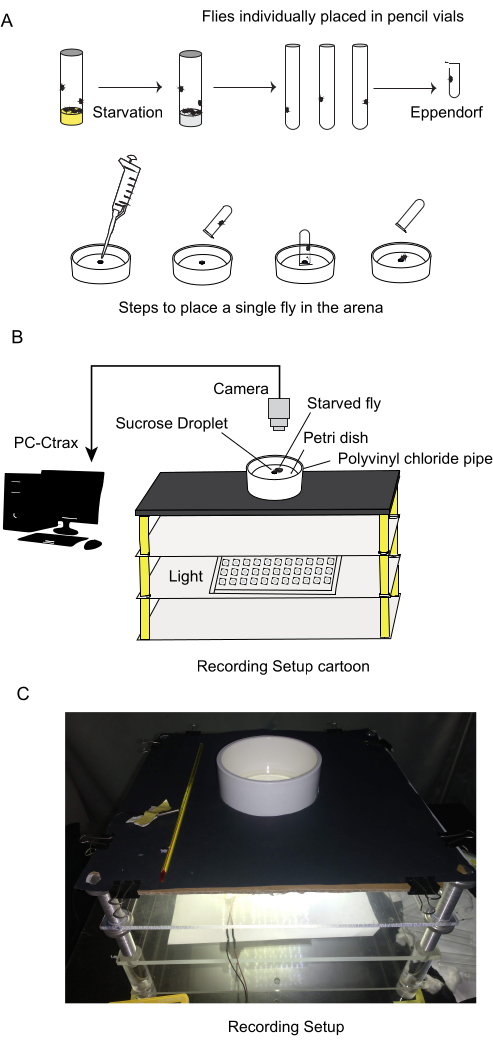
Rycina 2: Układ eksperymentalny, obejmujący obliczanie tolerancji na głodzenie, procedury rejestracji zachowań oraz analizę trajektorii. (A) Tolerancję na głodzenie określono w celu ustanowienia ustandaryzowanego stanu głodu. Do rejestracji zachowań pojedyncze muchy izolowano w małych probówkach przed eksperymentem. Arena behawioralna, w postaci szalki Petriego o średnicy 90 mm, była równomiernie oświetlona od dołu. W centrum umieszczono kroplę roztworu cukru, zapewniając muchom nieograniczony dostęp do źródła pokarmu. (B>) Zachowanie rejestrowano do momentu ucieczki much z areny. W analizie wideo wykorzystano oprogramowanie Ctrax do śledzenia oraz MATLAB/Python do analizy trajektorii. (C>) Zdjęcie układu eksperymentalnego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
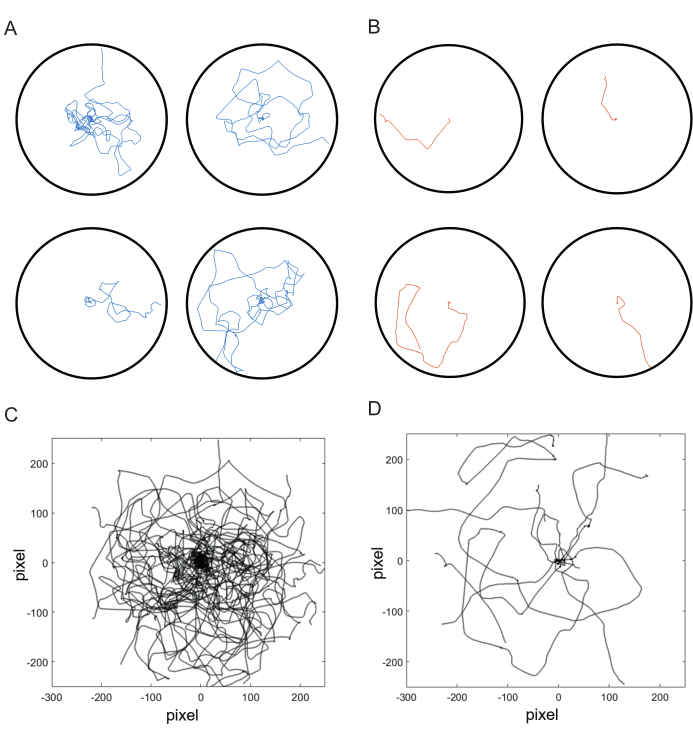
Rycina 3: Konieczność przyjęcia cukru do zainicjowania poszukiwania lokalnego. (A) Indywidualne trajektorie much karmionych 0,2 µL roztworu cukru o stężeniu 500 mM. (B) Indywidualne trajektorie much, którym nie podano cukru. (C) Nałożone na siebie trajektorie poszukiwania much z grupy kontrolnej (n = 11). (D) Nałożone na siebie ścieżki much (n = 11), którym nie podano cukru. Wszystkie trajektorie zostały znormalizowane do punktu rozpoczęcia chodu. Rycina została zaadaptowana z pracy Shakeela i Brockmanna8. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
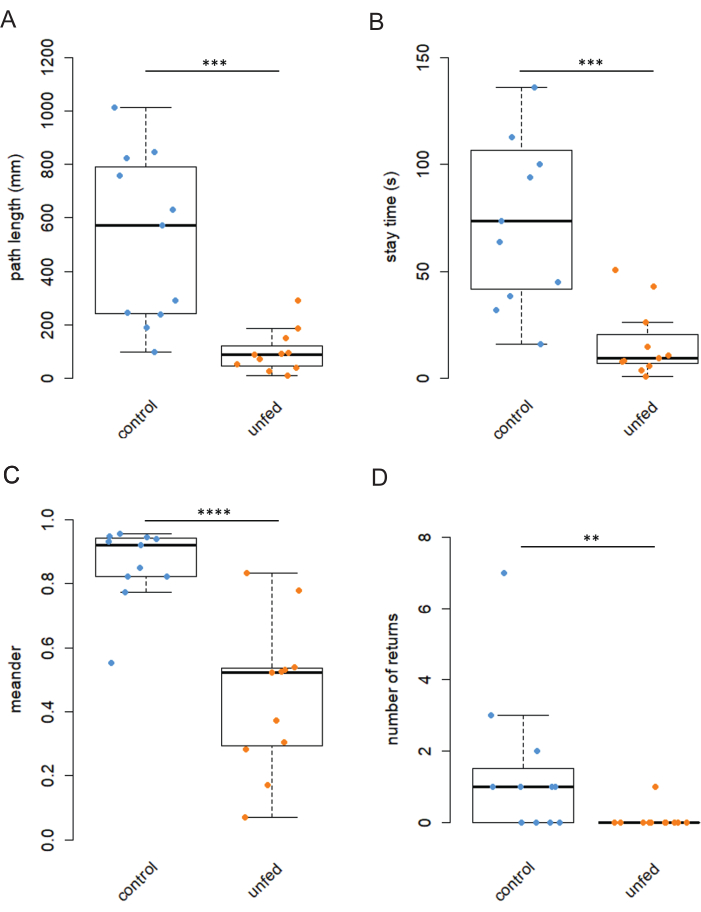
Rycina 4: Redukcja parametrów behawioralnych u niekarmionych much. (A-D) Długość ścieżki, czas przebywania, meandrowanie oraz liczba powrotów były mniejsze u głodnych much, które nie otrzymały nagrody w postaci cukru, w porównaniu do much kontrolnych stymulowanych cukrem. **p < 0.001, ***p < 0.0001, ****p < 0.00001, test sum rang Wilcoxona. Rycina została opracowana na podstawie pracy Shakeela i Brockmanna8. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wideo 1: Zachowanie poszukiwawcze muchy z trajektorią ścieżki w czasie rzeczywistym. Kliknij tutaj, aby pobrać to wideo.
Plik uzupełniający 1: Instrukcje krok po kroku dotyczące śledzenia pliku wideo za pomocą oprogramowania CTRAX. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Obecne badanie wprowadza prosty paradygmat do badania zachowań związanych z wyszukiwaniem cukrów u Drosophila, po raz pierwszy opisanych przez Dethier2. To wrodzone zachowanie pozwala muchom zaangażować się w lokalne poszukiwanie dodatkowych zasobów pokarmowych po napotkaniu nagrody w postaci jedzenia. Najważniejszym aspektem protokołu eksperymentalnego jest odpowiednie motywowanie muszek. Po pierwsze, muchy muszą być w stanie głodu, ponieważ zostały pozbawione pożywienia, a jednocześnie mają dostęp do wody, aby zapewnić spożycie cukru. Aby uzyskać jednolity stan głodu we wszystkich próbach eksperymentalnych, jako okres głodu wykorzystano okres, w którym przeżywa 90% populacji. Co najważniejsze, wywołanie odpowiedzi poszukiwawczej po karmieniu wymaga dostarczenia bodźca pokarmowego, który jest wystarczającej jakości, ale nie wystarczający, aby w pełni nasycić muchy. Dlatego standaryzacja stężenia i ilości cukru oraz czasu głodu może być czasochłonna, ale jest niezbędna do solidnego i niezawodnego zachowania.
W tym badaniu jako bodziec dla wygłodzonych much zastosowano roztwór sacharozy o sile 500 mM i 0,2 μl. Spożycie cukru wywołuje charakterystyczne lokalne zachowanie związane z wyszukiwaniem, charakteryzujące się zwiększonym zachowaniem podczas obracania się i częstymi powrotami do miejsca, w którym spadł cukier (Wideo 1). I odwrotnie, głodne muchy, które nie otrzymują cukru, nie wykazują odpowiedzi poszukiwawczej. Warto zauważyć, że wszystkie parametry związane z zachowaniem, w tym długość ścieżki, czas pobytu, meandr i liczba powrotów, były znacznie niższe u niekarmionych much. Wcześniej wykazaliśmy, że samo spożycie wody nie wywołuje odpowiedziposzukiwawczej 9.
Ta konfiguracja oferuje ekonomiczne i łatwe w utrzymaniu podejście do badania tego wrodzonego zachowania. Podczas gdy w tym badaniu użyto podświetlanej areny, można również zastosować oświetlenie górne, o ile istnieje wystarczający kontrast między muchą a tłem. Zastosowane oprogramowanie śledzące opiera się na wykrywaniu ruchu much na tle statycznym13. Ustawienia kamery i rozdzielczości można dostosować w zależności od konkretnej skali badanego zachowania. Co ważne, metodologia ta umożliwia badanie różnych elementów zachowań związanych z żerowaniem, w tym m.in. uwagi sensorycznej podczas żerowania, angażowania się w pokarm i karmienia, lokomotorycznej kontroli wyszukiwania oraz procesów decyzyjnych związanych z eksploatacją i eksploracją. Co więcej, paradygmat ten ułatwia badanie wyszukiwania lokalnego, zachowania, które jest powszechnie obserwowane u różnych taksonów w różnych kontekstach ekologicznych6. Badanie tego zachowania u Drosophila otwiera drogę do badań naukowych mających na celu zrozumienie ścieżek neuronowych zaangażowanych w żerowanie. Badaliśmy lokalne poszukiwania pszczół miodnych i wykazaliśmy, że zachowanie jest podobne do much 7,8.
Ostatnie badania wykazały, że lokalne zachowania związane z wyszukiwaniem mogą być wywołane przez optogenetyczną aktywację różnych cukrowych neuronów czuciowych u muszek 14,15,16. Nie jest jednak jasne, w jakim stopniu lokalne wyszukiwania zaobserwowane w tych badaniach dokładnie reprezentują naturalne zachowanie much w odpowiedzi na rzeczywiste spożycie cukru. Zachowania żywieniowe są ściśle regulowane u much, a odkrycia te wskazują, że aktywacja gardłowych receptorów cukrowych inicjuje zachowania poszukiwawcze. Zmysły smakowe stępu są odpowiedzialne za wykrywanie cukru i wywoływanie odruchu prostowania trąbki, podczas gdy neurony smaku gardła decydują o tym, czy karmienie powinno być kontynuowane17,18. Po spożyciu roztwór cukru przemieszcza się przez przełyk do przedsionka i dostaje się do uprawy, a jego ekspansja jest monitorowana przez nerw nawrotowy19. Dodatkowo warto zauważyć, że niektóre z wyżej wymienionych badań polegały na zaprzęganiu lub krępowaniu much, podczas gdy ta metoda pozwala zwierzętom na swobodne chodzenie przez cały czas trwania eksperymentu. Muchy w naszych eksperymentach były wystarczająco zmotywowane, aby pozostać i szukać na arenie bez nakładania pokrywy.
Zrozumienie skomplikowanych zależności między szlakami neuronalnymi, czynnikami genetycznymi i sygnałami środowiskowymi, które rządzą zachowaniami poszukiwawczymi u much, może rzucić światło na podstawowe zasady przetwarzania informacji, uczenia się i tworzenia pamięci. Co więcej, rozregulowanie zachowań związanych z żerowaniem jest związane z różnymi zaburzeniami u ludzi, w tym zaburzeniami odżywiania i otyłością. Szeroki wachlarz narzędzi neurogenetycznych dostępnych u Drosophila stanowi cenne źródło do badania zachowań poszukiwawczych wywołanych cukrem i odkrywania neuronalnych i genetycznych mechanizmów leżących u podstaw żerowania. W połączeniu z manipulacją optogenetyczną i obrazowaniem funkcjonalnym, paradygmat ten prezentuje potężne i obiecujące podejście 20,21,22. Jednak modyfikacja konfiguracji do manipulacji aktywnością neuronów w czasie rzeczywistym za pomocą optogenetyki może być wyzwaniem. Aby monitorować aktywność neuronalną w mózgu, podczas gdy mucha wykonuje zachowanie poszukiwawcze, potrzebna będzie inna konfiguracja, taka jak mucha na uwięzi na piłce bieżnika. Wiele aspektów zachowań związanych z żerowaniem, takich jak regulacja karmienia i procesy decyzyjne, jest wysoce konserwatywnych u różnych gatunków. W związku z tym spostrzeżenia uzyskane z badania mechanizmów neuronalnych żerowania u much mogą dostarczyć cennych informacji na temat podobnych procesów zachodzących w innych organizmach, w tym u ludzi.
Oświadczenia
Autor (autorzy) deklarują, że nie ma potencjalnych konfliktów interesów w odniesieniu do badań, autorstwa i/lub publikacji tego artykułu.
Podziękowania
Dziękujemy Ravikumarowi Boyapatiemu za pomoc w przygotowaniu areny. Praca ta jest finansowana przez Wellcome trust DBT Intermediate India Alliance grant (numer grantu IA/I/15/2/502074) dla P.K. M.S. została sfinansowana przez stypendium Indyjskiej Rady Badań Medycznych (ICMR). Projekt A.B. został sfinansowany przez fundusze instytucjonalne NCBS-TIFR (nr 12P4167) oraz Departament Energii Atomowej rządu Indii (nr 12-R& D-TFR-5.04-0800 oraz 12-R& D-TFR-5.04-0900).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2 ml probówka Eppendorf | Sigma Aldrich | BR780546 | Służy do wprowadzania muchy do kropli cukru |
| Agar | SRL | 9002-18-0 | |
| Soczewka Azure | https://www.rmaelectronics.com/azure-photonics-azure-1214mm/ | ||
| Camera | Logicool, Japonia | ||
| Mąka kukurydziana | dostępna | ||
| lokalnieOprogramowanie Ctrax | https://ctrax.sourceforge.net/ | ||
| D-glucose | SRL | 50-99-7 | |
| Flea3 | Sony | https://www.flir.com/products/flea3-usb3/?vertical=machine+vision&segment=iis | |
| szklana rurka | Borosil | Służy do indywidualnego trzymania much | |
| Kimwipe | Kimberly-Clark | 34155 | Służy do zapewnienia dostępu do wody muchom podczas głodu żywności |
| Panel | wykonany na zamówienie w warsztacie | ||
| Światłomierz | TENMARS | TM-203 | |
| 4-hydroksybenzoesan metylu | Fisher Scientific | 99-76-3 | |
| Kwas ortofosfotyczny | SRL | 7664-38-2 | |
| szalka Petriego (90 mm) | Tarsons | 460090 | |
| Kwas propionowy | SRL | 79-09-4 | |
| Sacharoza | Qualigens | Q28105 | |
| Cukier | lokalnie dostępny | ||
| VirtualDub | https://www.virtualdub.org/ | ||
| Biała rura z polichlorku winylu (średnica wewnętrzna 67 mm i wysokość 100 mm) | wykonana na zamówienie w warsztacie | ||
| Drożdże w proszku | SRL | REF-34266 |
Bibliografia
- Jander, R. Ecological aspects of spatial orientation. Annu Rev Ecol Evol Syst. 6 (1), 171-188 (1975).
- Dethier, V. G. Communication by insects: Physiology of dancing. Science. 125 (3243), 331-336 (1957).
- White, J., Tobin, T. R., Bell, W. J. Local search in the housefly Musca domestica after feeding on sucrose. J. Insect Physiol. 30 (6), 477-487 (1984).
- Bell, W. J., Cathy, T., Roggero, R. J., Kipp, L. R., Tobin, T. R. Sucrose stimulated searching behaviour of Drosophila melanogaster in a uniform habitat: modulation by period of deprivation. Animal Behav. 33, 436-448 (1985).
- Dethier, V. G. Microscopic Brains. Science. 143 (3611), 1138-1145 (1964).
- Bell, W. J. Searching behavior patterns in insects. Annu Rev Entomol. 35 (1), 447-467 (1990).
- Brockmann, A., et al. Sugar intake elicits intelligent searching behavior in flies and honey bees. Front Behav Neurosci. 12, 280(2018).
- Shakeel, M., Brockmann, A. Temporal effects of sugar intake on fly local search and honey bee dance behaviour. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. , (2023).
- Murata, S., Brockmann, A., Tanimura, T. Pharyngeal stimulation with sugar triggers local searching behavior in Drosophila. J Exp Biol. 220 (Pt 8), 3231-3237 (2017).
- Nishijo, H., Ono, T. Neural mechanisms of feeding behavior and its disorders new insights into metabolic syndrome. IntechOpen. , (2021).
- Carvalho, G. B., Kapahi, P., Anderson, D. J., Benzer, S. Allocrine modulation of feeding behavior by the sex peptide of Drosophila. Curr Biol. 16 (7), 692-696 (2006).
- Xu, K., Zheng, X., Sehgal, A. Regulation of feeding and metabolism by neuronal and peripheral clocks in Drosophila. Cell Metab. 8 (4), 289-300 (2008).
- Branson, K., Robie, A. A., Bender, J., Perona, P., Dickinson, M. H. High-throughput ethomics in large groups of Drosophila. Nat Methods. 6 (6), 451-457 (2009).
- Corfas, R. A., Sharma, T., Dickinson, M. H. Diverse food-sensing neurons trigger idiothetic local search in Drosophila. Curr Biol. 29 (10), 1660-1668.e4 (2019).
- Behbahani, A. H., Palmer, E. H., Corfas, R. A., Dickinson, M. H. Drosophila re-zero their path integrator at the center of a fictive food patch. Curr Biol. 31 (20), 4534-4546.e5 (2021).
- Titova, A. V., et al. Displacement experiments provide evidence for path integration in Drosophila. J Exp Biol. 226 (12), jeb245289(2023).
- Stocker, R. F. The organization of the chemosensory system in Drosophila melanogaster: a review. Cell Tissue Res. 275 (1), 3-26 (1994).
- LeDue, E. E., Chen, Y. C., Jung, A. Y., Dahanukar, A., Gordon, M. D. Pharyngeal sense organs drive robust sugar consumption in Drosophila. Nat Commun. 6, 6667(2015).
- Gelperin, A. Abdominal sensory neurons providing negative feedback to the feeding behavior of the blowfly. Zeitschrift für vergleichende Physiologie. 72 (1), 17-31 (1971).
- Simpson, J. H., Looger, L. L. Functional imaging and optogenetics in Drosophila. Genetics. 208 (4), 1291-1309 (2018).
- DeAngelis, B. D., Zavatone-Veth, J. A., Gonzalez-Suarez, A. D., Clark, D. A. Spatiotemporally precise optogenetic activation of sensory neurons in freely walking Drosophila. Elife. 9, e54183(2020).
- Grover, D., Katsuki, T., Li, J., Dawkins, T. J., Greenspan, R. J. Imaging brain activity during complex social behaviors in Drosophila with Flyception2. Nat Commun. 11 (1), 623(2020).
Przedruki i uprawnienia
