Tutaj opisujemy metodę szybkiej homogenizacji wspomaganą separacją magnetyczną do produkcji na dużą skalę nanopęcherzyków pochodzących z endosomów jako nowy typ egzosomów naśladujących (EM), które mają to samo pochodzenie biologiczne i podobną strukturę, morfologię i skład białkowy natywnych pęcherzyków zewnątrzkomórkowych (EV).
Artykuł metodologiczny
Metoda szybkiej homogenizacji wspomagana separacją magnetyczną do produkcji pęcherzyków pochodzących z endosomów na dużą skalę
W tym artykule
Podsumowanie
Streszczenie
Pęcherzyki zewnątrzkomórkowe (EV) przyciągnęły znaczną uwagę w badaniach fizjologicznych i patologicznych, diagnozowaniu chorób i leczeniu; jednak ich kliniczne zastosowanie zostało ograniczone przez brak metod produkcji na dużą skalę. W związku z tym protokół ten zapewnia metodę szybkiej homogenizacji wspomaganą separacją magnetyczną do produkcji na dużą skalę nanopęcherzyków pochodzących z endosomów jako nowego rodzaju egzosomów naśladujących (EM) pochodzących z endosomów, które mają około 100-krotnie wyższą wydajność niż konwencjonalna metoda ultrawirowania. W tej metodzie nanocząstki magnetyczne (MNP) zostały zinternalizowane przez komórki rodzicielskie poprzez endocytozę, a następnie zostały zgromadzone w ich endosomach. Następnie endosomy obciążone MNP zebrano i oczyszczono przez leczenie hipotoniczne i separację magnetyczną. Szybki homogenizator wykorzystano do rozbicia endosomów obciążonych MNP na monodyspersyjne nanopęcherzyki. Powstałe pęcherzyki pochodzące z endosomów mają to samo pochodzenie biologiczne i strukturę, charakteryzującą się analizą śledzenia nanocząstek, transmisyjnym mikroskopem elektronowym i western blotting. Ich morfologia i skład białkowy są podobne do natywnych EV, co wskazuje, że EMs mogą potencjalnie służyć jako tani i wysokowydajny substytut natywnych EV do translacji klinicznej.
Wprowadzenie
Pęcherzyki zewnątrzkomórkowe (EVs) to małe pęcherzyki wydzielane przez prawie wszystkie komórki o zakresie wielkości 30-150 nm, zawierające obfite substancje bioaktywne. W zależności od komórki, z której pochodzą, EV wykazują wysoką heterogeniczność, posiadając wiele składników specyficznych dla komórek macierzystych1. EV są uwalniane do płynów ustrojowych i transportowane do odległych miejsc, gdzie są pobierane przez komórki docelowe do działania2, które mogą być wykorzystane do dostarczania szerokiej gamy bioaktywnych cząsteczek i leków do naprawy tkanek, diagnozowania i leczenia nowotworów oraz modulacji immunologicznej3,4. Jednak inne nanocząstki biologiczne (np. lipoproteiny) i nanopęcherzyki (np. EV pochodzące ze szlaków nieendosomalnych) o podobnych właściwościach biofizycznych w płynach ustrojowych nieuchronnie wpływają na izolację i oczyszczanie EV. Do tej pory ultrawirowanie pozostaje złotym standardem izolacji EV, a inne metody izolacji, w tym wirowanie w gradionym gradifikacji gęstości sacharozy, ultrafiltracja, wytrącanie glikolu polietylenowego, chromatografia i izolacja kulek immunomagnetycznych, zostały opracowane5. Obecnym wąskim gardłem ograniczającym translację kliniczną i komercjalizację terapii EV jest poważny brak technik izolacji, które pozwalają na wysoce skalowalną i odtwarzalną izolację EVs6,7,8. Tradycyjne techniki izolacji EV (np. ultrawirowanie i chromatografia wykluczania wielkości) charakteryzują się niską wydajnością (1 x 10⁷-1 x 10⁸/1 x 106 komórek), długim cyklem produkcyjnym (24-48 godzin), słabą odtwarzalnością jakości produktu oraz wymagają drogiego i energochłonnego sprzętu produkcyjnego, który nie jest w stanie zaspokoić obecnego zapotrzebowania klinicznego na EVs6.
Egzosomy naśladujące (EMs), syntetyczne substytuty natywnych EV, przyciągnęły dużą uwagę ze względu na ich bardzo podobną strukturę, funkcję i skalowalność w produkcji. Głównym źródłem EM jest bezpośrednia ekstruzja całych komórek rodzicielskich z ciągłym cięciem9,10, wykazując silne funkcje biologiczne jako natywne EVs11,12. Na przykład EM pochodzące z ludzkich mezenchymalnych komórek macierzystych pępowiny (hUCMSC) wywierają podobne efekty gojenia się ran jak natywne EV i są bogatsze w skład białka13. Chociaż EMs pochodzące z całych komórek mają biologiczną złożoność EV, ich główną wadą jest niejednorodność produktów, ponieważ są one nieuchronnie zanieczyszczone przez różne organelle komórkowe i szczątki komórkowe. Analiza lokalizacji białek wykazała ponadto, że EM pochodzące z ekstruzji całych komórek zawierają wiele niespecyficznych dla EVs białek z mitochondriów i retikulum endoplazmatycznego13. Co więcej, większość metod produkcji EMs nadal wymaga ultrawirowania, co jest bardzo czasochłonnym i energochłonnym procesem14. Biorąc pod uwagę fakt, że egzosomy pochodzą wyłącznie z endosomów komórkowych, postawiliśmy hipotezę, że bioinżynieryjne nanopęcherzyki pochodzące z endosomów mogą lepiej podsumować biologiczną homologię między egzosomami a EM w porównaniu z dobrze znanymi EM pochodzącymi z błony komórkowej wytwarzanymi metodą ekstruzji całych komórek14. Niemniej jednak wytwarzanie nanopęcherzyków pochodzących z endosomów jest trudne ze względu na brak realnych podejść.
Badania kliniczne zostały przeprowadzone przy użyciu EVs jako substytutu terapii bezkomórkowej i nanoskalowego systemu dostarczania leków do leczenia różnych chorób. Na przykład EV pochodzące z mezenchymalnych komórek macierzystych szpiku kostnego były stosowane w leczeniu ciężkiego zapalenia płuc wywołanego przez COVID-19 i przyniosły obiecujące wyniki. Ostatnio genetycznie zmodyfikowane EV przenoszące białka CD24 wykazały również silne korzyści terapeutyczne w leczeniu pacjentów z COVID-1915,16. Jednak kliniczne wymagania terapii EV nadal nie mogą być spełnione tradycyjnymi metodami izolacji ze względu na niską wydajność i koszty. Badanie to donosi o produkcji na dużą skalę nanopęcherzyków pochodzących z endosomów za pomocą szybkiej homogenizacji wspomaganej separacją magnetyczną. Wykorzystuje szlak endocytozy MNP do izolowania endosomów obciążonych MNP poprzez separację magnetyczną, a następnie homogenizację z dużą prędkością w celu sformułowania endosomów w monodyspersyjne nanopęcherzyki. Ponieważ rodzaje endosomów zbieranych za pomocą tego protokołu są różnorodne, nadal potrzebne są dalsze dogłębne badania w celu ustalenia dobrych praktyk produkcyjnych (GMP) w branży. To nowatorskie podejście do przygotowania EM jest bardziej efektywne czasowo (5 minut szybkiej homogenizacji) w celu uzyskania nanopęcherzyków homologicznych do natywnych EV. Wytwarza wykładniczo więcej pęcherzyków z tej samej ilości komórek niż ultrawirowanie, które można ogólnie zastosować do różnych typów komórek.
Protokół
UWAGA: Schemat metody jest pokazany w Rysunek 1.
1. Przygotowanie i izolacja EM
- Internalizacja komórkowa MNP
- Hodowla komórkowa
- Zawiesić 1 × 10⁶ mezenchymalnych komórek macierzystych szpiku kostnego szczura (BMSC), komórek 293T lub komórek nabłonka nabłonka jajnika myszy (ID8) w kompletnym pożywce DMEM z 10% płodową surowicą bydlęcą (FBS) i 5% roztworem penicyliny-streptomycyny (P / S) w 2 ml na płytkę sześciodołkową (patrz Tabela materiałów).
- Hodować komórki przez noc w temperaturze 37 °C i 5% CO2,
UWAGA: Liczba komórek po przyleganiu wynosiła około 1 × 10⁶.
- Endocytoza MNP
- Zmniejszyć objętość podłoża w każdej sześciodołkowej płytce do 1 ml. Współhodowlę komórek z nanocząstkami (IONP) tlenku żelaza modyfikowanymi polilizyną o długości 10 nm (zob. tabela materiałów) w stężeniu 100 μg/1 × 106 komórek i inkubacja w temperaturze 37 °C w atmosferze zawierającej 5% CO2 przez 12 godzin, aby umożliwić komórkom pełną endocytozę jonów IONP.
- Hodowla komórkowa
- Izolacja i homogenizacja endosomów
- Leczenie hipotoniczne komórek
- Trawić komórki, które mają w pełni zinternalizowane IONPs, za pomocą 0,5 ml / studzienkę trypsyny przez 3 minuty i zakończyć trawienie, dodając 1 ml / studzienkę kompletnej pożywki.
- Wirować przy 1000 x g przez 5 minut i odrzucić supernatant. Ponownie zawiesić komórki w buforze fosforanowym soli fizjologicznej (PBS) i odwirować, kilkakrotnie dwukrotnie, aby wypłukać pozostałą pożywkę i niewchłonięte IONP.
- Na koniec zawiesić osad w 8 ml we wstępnie przygotowanym roztworze hipotonicznym (71,4 mM chlorku potasu, 1,3 mM cytrynianu sodu, pH 7,2-7,4) przez 15 minut (patrz Tabela Materiałów).
- Uwalnianie organelli przez homogenizację przy niskiej prędkości
- Przenieść zawiesinę komórkową w roztworze hipotonicznym do szklanej probówki i uwolnić organelle za pomocą szklanego homogenizatora (patrz tabela materiałów) przez 20 wstrząsów przy 1000 obr./min.
- Separacja magnetyczna w celu uzyskania endosomów
- Przenieś 1 ml homogenizowanego roztworu komórkowego do probówki mikrowirówkowej o pojemności 1,5 ml i umieść w separatorze magnetycznym na 1 godzinę, aby całkowicie oddzielić endosomy obciążone IONP od innych organelli (takich jak jądro i mitochondria) oraz szczątków komórkowych.
- Zbierz brązowe granulki na powierzchni styku probówek do mikrowirówek obok ramy magnetycznej (patrz Tabela materiałów), tj. endosomy załadowane IONP. Wylej płyn do probówek do mikrowirówek i dodaj 3 ml PBS w celu ponownego zawieszenia endosomów.
- Leczenie hipotoniczne komórek
- Homogenizacja z dużą prędkością
- Przenieść roztwór zawierający endosomy do probówki wirówkowej o pojemności 15 ml o objętości cieczy między 3-10 ml.
- Wysunąć sondę 10 mm homogenizatora szybkoobrotowego (patrz Tabela materiałów) do dna probówki wirówki, nie dotykając dna. Dostosuj przycisk Prędkość pod ekranem, ustaw prędkość na 140 x g i wyreguluj przycisk Czas, aby ustawić czas 5 minut, a następnie naciśnij przycisk OK.
- Naciśnij przycisk Start, aby przeprowadzić homogenizację po umieszczeniu pojemnika na lód pod próbką.
- Sortowanie magnetyczne dla EM
- Roztwór zawierający nanopęcherzyki otrzymany w wyniku szybkiej homogenizacji przenieść do probówki mikrowirówkowej o pojemności 1,5 ml i umieścić w separatorze magnetycznym na 1 godzinę.
- Zbierz płyn zawierający wymagane EM. Uważaj, aby nie dotknąć powierzchni rurek obok ramy magnetycznej, która adsorbowała wolne IONP i EMs obciążone IONP.
2. Charakterystyka EM (Rysunek 2 i Rysunek 3)
- Analiza dynamicznego rozpraszania światła (DLS)
- Wstrzyknąć 1 ml próbki EM (20 μg/ml) wzdłuż ścianki do kuwety i umieścić ją w gnieździe na próbkę instrumentu w instrumencie DLS (patrz Tabela materiałów).
- Otwórz oprogramowanie DLS, wybierz Test wielkości cząstek i rozpocznij testowanie.
- Zmierz stężenie białka za pomocą zestawu do oznaczania białek BCA (patrz tabela materiałów).
- Analiza śledzenia nanocząstek (NTA)
- Rozcieńczyć EM PBS do roztworu o stężeniu 1 × 10⁷-1 × 10⁸ cząstek/ml i wstrzyknąć je do komory przyrządu NTA (patrz tabela materiałów) za pomocą strzykawki o pojemności 1 ml przy natężeniu przepływu 500-1000 μl/min.
- Otwórz 488 kanałów laserowych i upewnij się, że liczba EMs w interfejsie oprogramowania mieści się w zakresie 100-300 i jest w ruchu Browna.
- Zgodnie z protokołem producenta wybierz odpowiedni SOP (EV-488), aby upewnić się, że czułość przyrządu jest odpowiednia do wykrywania EM.
- Transmisyjna mikroskopia elektronowa (TEM)
- Ustalić EM (1 mg/ml) o równej objętości 5% aldehydu glutarowego przez 30 minut i określić ilościowo stężenie EM jako 1 mg/ml za pomocą zestawu do oznaczania białek BCA.
- Umieść 10 μl kropli EMs po stronie węglowej siatki miedzianej i po 10 minutach usuń nadmiar płynu z boku bibułą filtracyjną. Dodać 10 μl PBS i natychmiast osuszyć bibułą filtracyjną. Powtórz dwukrotnie, aby usunąć nadmiar aldehydu glutarowego.
- Wrzuć 5 μl środka kontrastowego z octanu uranylu i barwij ujemnie przez 1 minutę, a następnie usuń nadmiar środka kontrastowego. Umyj trzykrotnie wodą dejonizowaną i wysusz w temperaturze pokojowej (RT).
- Rejestruj obraz za pomocą TEM przy napięciu przyspieszenia 100 kV.
- Western blotting (zachodnia plama)
- Do próbek dodać 100 μl buforu do lizy komórek i 5 μl koktajlu 50x inhibitorów proteazy (patrz tabela materiałów). Delikatnie wymieszaj pistoletem do pipet i umieść na lodzie na 30 minut.
- Odwirować roztwór o sile 1000 x g przez 10 minut w temperaturze 4 °C, określić ilościowo stężenie białka w supernatantze za pomocą zestawu do oznaczania białka BCA i zebrać go.
- Wymieszać 100 μl supernatantu z 25 μl 5x buforu ładującego białko i podgrzewać w temperaturze 95 °C przez 10 min.
- Przygotuj żele zgodnie z instrukcją wstępnie uformowanych żeli. Załadować 15 μg białka do studzienki i przeprowadzić elektroforezę żelową pod napięciem 80 V. Poczekaj, aż próbka przepłynie do żelu rozdzielającego, zmień na 100 V, a następnie przenieś białko do membrany nitrocelulozowej przy napięciu 100 V, 60 minut w kąpieli lodowej.
- Wykryć markery niespecyficzne dla EV (Calnexin) i biomarkery EV (Aneksyna i CD63) za pomocą western blot (patrz Tabela materiałów).
UWAGA: Przeciwciała rozcieńcza się zgodnie z zaleceniami producenta.
3. Wykrywanie funkcji EM in vitro
- Etykietowanie EM
- Zmieszać 1 μl PKH26 z 250 μl rozcieńczalnika C (1:250), aby uzyskać 2x roztwór barwiący (4 × 10⁻⁶ M) (patrz Tabela Materiałów).
- Wymieszaj 250 μl EMs (1 mg/mL) z 250 μL 2x roztworu barwiącego i szybko przedmuchaj za pomocą pistoletu do pipetowania.
- Inkubować w temperaturze pokojowej przez 2-5 minut, delikatnie odwracając probówkę wirówkową.
- Dodać równą objętość surowicy lub 1% białka surowicy bydlęcej i inkubować przez 1 minutę, aby zakończyć trawienie.
- Usunąć nadmiar PKH26 przez ultrafiltrację za pomocą 1000 KD rurek ultrafiltracyjnych o stężeniu 3000 x g przez 30 minut i powtórzyć trzykrotnie, dodając PBS. Zawiesić pozostałą ciecz do 500 μl za pomocą PBS i przefiltrować przez filtr 0,22 μm.
- Test wychwytu komórek
- Inokulacja komórek: Wysiew 1 × 10⁶ komórek w 35-milimetrowych naczyniach konfokalnych z 1 ml DMEM zawierającego 10% FBS i 5% P/S i inkubować w temperaturze 37 °C i 5% CO2 przez noc.
- Przefiltruj EM za pomocą sterylnych filtrów strzykawkowych 0,22 μm, aby usunąć potencjalne zanieczyszczenia.
- Traktuj komórki EMs znakowanymi PKH26 (109 cząstek/ml) przez 8 godzin.
- Przemyć trzykrotnie PBS, dodać DAPI (10 ng/ml) i inkubować przez 10 minut w temperaturze pokojowej.
- Pozyskać obrazy fluorescencyjne w konfokalnej skaningowej mikroskopii fluorescencyjnej z wykorzystaniem kanałów laserowych 405 nm i 561 nm (patrz tabela materiałów).
Wyniki
Schemat przygotowania EM za pomocą homogenizacji wysokoprędkościowej wspomaganej separacją magnetyczną przedstawiono na Rysunku 1. Komórki internalizują 10 nm IONP zmodyfikowane polilizyną, które gromadzą się specyficznie w endosomach poprzez endocytozę (Rysunek 3A). Po potraktowaniu buforem hipotonicznym i homogenizacji, endosomy obciążone IONP są uwalniane z komórek, a następnie zbierane za pomocą separacji magnetycznej. Wyizolowane endosomy są dalej przekształcane w monodyspersyjne nanopęcherzyki, znane również jako EM, poprzez homogenizację wysokoprędkościową. Zbadano wiele kluczowych parametrów (np. prędkość i czas homogenizacji), aby zidentyfikować optymalne warunki przygotowania EM (Rysunek 2). Ostatecznie, biorąc pod uwagę wielkość cząstek i wydajność otrzymanych EM, za warunek optymalny uznano prędkość homogenizacji 140 × g przez 5 min. Wolne IONP oraz EM obciążone IONP są ostatecznie usuwane z końcowego roztworu produktu poprzez drugą rundę separacji magnetycznej w celu uzyskania EM wolnych od IONP. Metoda ta pozwala na otrzymanie wysoce jednorodnych i monodyspersyjnych nanopęcherzyków z endosomów komórek wyjściowych, które mają to samo pochodzenie biologiczne co natywne EV.
Aby porównać EV uzyskane metodą ultrawirowania z EM wygenerowanymi za pomocą opisanej metody, przygotowano BMSC oraz 293T w celu izolacji EV i EM. Średnicę i morfologię EM przeanalizowano za pomocą NTA i TEM. Morfologia BMSC-EM charakteryzuje się typową strukturą pęcherzykową w kształcie miseczki i jest ograniczona dwuwarstwą lipidową (Rycyna 3A). Analiza NTA wykazała, że zarówno BMSC-EM, jak i 293T-EM mają podobną średnicę hydrodynamiczną do natywnych EV (BMSC-EV i 293T-EV) (Rycina 3B). Wydajność otrzymywania BMSC-EM za pomocą homogenizacji wysokiej prędkości wynosiła 8,16 × 10⁸-1,42 × 10⁹/1 × 106 komórek, podczas gdy wydajność natywnych EV przygotowanych metodą ultrawirowania wynosiła jedynie 7,2 × 10⁷-1,12 × 10⁸/1 × 106 komórek. Podobnie, wydajność 293T-EM przy homogenizacji wysokiej prędkości wynosiła 3,71 × 10⁸-7,58 × 10⁸/1 × 106 komórek, co jest wartością do około 100 razy wyższą niż w przypadku natywnych 293T-EV przygotowanych konwencjonalną metodą ultrawirowania (≈5,5 × 10⁶/1 × 106 komórek) (Rycina 4A).
Ponadto wyniki western blottingu wykazały, że BMSC-EMs zawierają te same biomarkery białkowe co EVs (CD63 i Annexin). Zarówno EMs, jak i EVs są negatywne pod kątem ekspresji Calnexiny, co sugeruje, że EMs otrzymane tą metodą były niemal całkowicie wolne od zanieczyszczeń błoną plazmatyczną (Rycina 3C). Nie stwierdzono istotnej różnicy w stężeniu białka między EM a EV; BMSC-EMs i BMSC-EVs wykazały podobne całkowite stężenia białka, wynoszące odpowiednio 11,15 µg/1 × 109 cząsteczek oraz 14,71 µg/1 × 109 cząsteczek w teście białkowym BCA. Co więcej, 293T-EMs i 293T-EVs wykazały całkowite stężenia białka wynoszące odpowiednio około 31,8 µg/1 × 109 cząsteczek oraz 9,95 µg/1 × 109 cząsteczek (Rycina 4B). Wyniki te wskazują, że EMs mają skład białkowy podobny do natywnych EVs. Aby zbadać, czy EMs mogą być endocytowane, EMs i EVs znakowane PKH26 współinkubowano z BMSC i ID8 w stężeniu 1 × 10⁹ cząsteczek/mL przez 8 h, a następnie komórki obserwowano pod konfokalnym mikroskopem fluorescencyjnym, aby potwierdzić, że EMs, podobnie jak EVs, mogą być łatwo pobierane przez komórki w celu wywołania działania (Rycina 5).

Rycina 1: Schemat metody homogenizacji wysokoprędkościowej wspomaganej magnetycznie. Krok 1: Komórki internalizują IONP do endosomów poprzez endocytozę. Krok 2: Zbieranie organelli, w tym endosomów obciążonych IONP, po traktowaniu roztworem hipotonicznym i homogenizacji. Krok 3: Oczyszczanie endosomów obciążonych IONP za pomocą separacji magnetycznej. Krok 4: Endosomy są homogenizowane i rekonstruowane w monodyspersyjne nanopęcherzyki. Krok 5: Usuwanie wolnych IONP oraz EM obciążonych IONP za pomocą separacji magnetycznej w celu zebrania EM wolnych od IONP. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Optymalizacja warunków przygotowania EM. (A) Analiza średnicy i PDI BMSC-EM w zależności od zmian prędkości homogenizacji przy czasie ustawionym na 5 min za pomocą DLS. (B) Analiza średnicy i PDI BMSC-EM w zależności od zmian czasu homogenizacji przy prędkości homogenizacji ustawionej na 140 x g za pomocą DLS. (C) Analiza średnicy i PDI BMSC-EM w różnych punktach czasowych przechowywania za pomocą DLS. (D) Analiza średnicy i stężenia BMSC-EM w zależności od zmian prędkości homogenizacji przy czasie ustawionym na 5 min za pomocą NTA. (E) Analiza średnicy i stężenia BMSC-EM w zależności od zmiany czasu homogenizacji przy prędkości homogenizacji ustawionej na 140 x g za pomocą NTA. (F) Analiza średnicy i wydajności BMSC-EM w zależności od koinkubacji komórek BMSC z IONP o różnych stężeniach za pomocą NTA. ****p < 0.0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
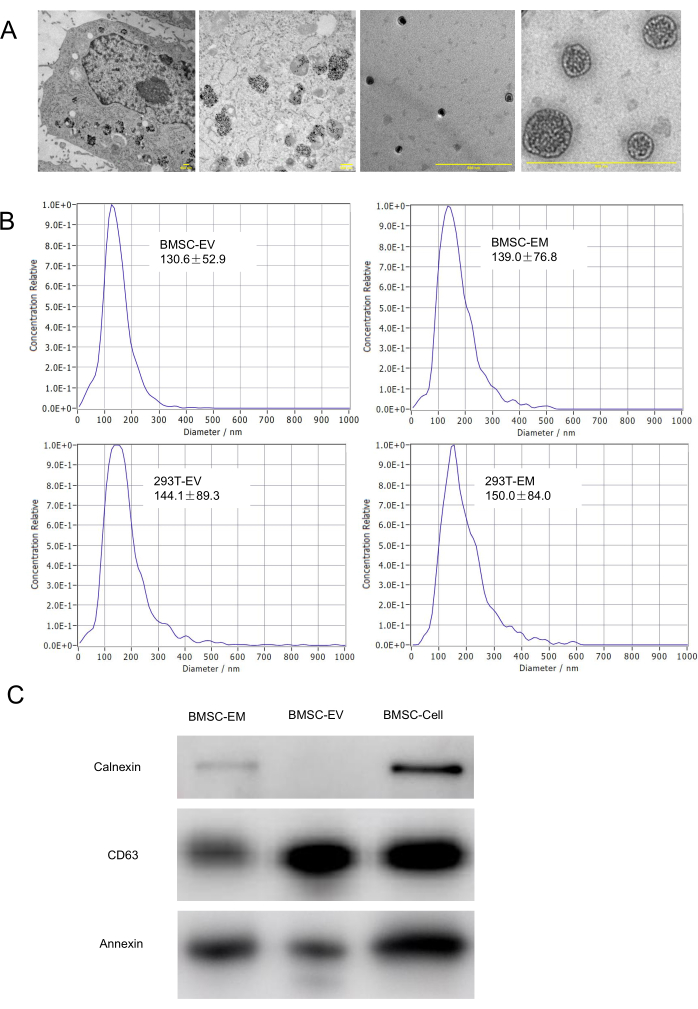
Rycina 3: Charakterystyka EMs. (A) Charakterystyka morfologii komórek macierzystych z endocytowanymi IONPs, endosomami i EMs wykonana za pomocą TEM. Paski skali odpowiadają 500 nm. (B) Średnice hydrodynamiczne BMSC-EM, BMSC-EV, 293T-EM oraz 293T-EV określone za pomocą NTA. (C) Wyniki analizy Western blot dla BMSC-EMs, BMSC-EVs oraz lizatów komórek BMSC. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
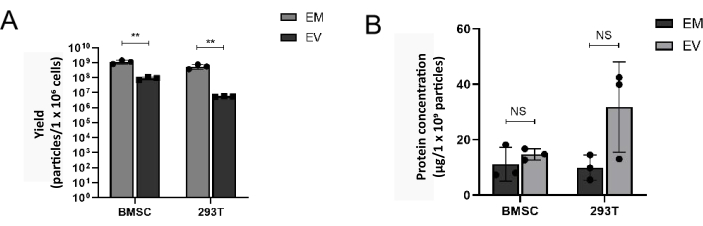
Rycina 4: Wydajność EM jest wyższa niż EV. (A) Wydajność EM i EV przygotowanych z BMSC i 293T została przeanalizowana metodą NTA. (B) Wydajność białka EM i EV przygotowanych z BMSC i 293T. **p < 0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
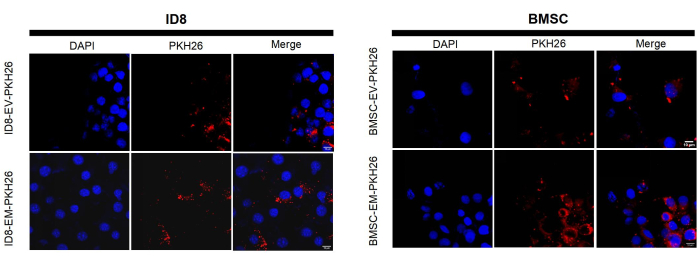
Rysunek 5: Reprezentatywne obrazy z mikroskopu fluorescencyjnego przedstawiające EVs i EMs znakowane PKH26 zinternalizowane przez BMSC i ID8. Paski skali reprezentują 10 µm. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Jako substytut terapii bezkomórkowej i nanoskalowego systemu dostarczania leków, pojazdy elektryczne nie spełniły jeszcze oczekiwań klinicznych, a główną przeszkodą jest brak skalowalnych i powtarzalnych metod produkcji i oczyszczania6. W związku z tym opracowano różne typy EM, które są analogami EV o podobnej złożoności biologicznej14. Do tej pory najczęściej stosowanym przykładem EM są nanopęcherzyki pochodzące z błony komórkowej. Przygotowanie takich nanopęcherzyków jest stosunkowo łatwe i proste dzięki bezpośredniemu wytłaczaniu całych komórek rodzicielskich17. Jednak nanopęcherzyki pochodzące z błony komórkowej nie mogą podsumować natywnych EV ze względu na dwie wady: po pierwsze, biologiczne pochodzenie tych nanopęcherzyków pochodzi z błony komórkowej, która zawiera inny skład lipidów i białek w porównaniu z natywnymi EV; Po drugie, zanieczyszczenia, w tym białka, kwasy nukleinowe i lipidy z organelli innych niż EV i szczątki komórkowe, powodujące nieuniknioną niejednorodność EM. W tej metodzie inkubowaliśmy komórki z IONP i zbieraliśmy endosomy obciążone IONP poprzez separację magnetyczną, a następnie wygenerowaliśmy monodyspersyjne nanopęcherzyki poprzez szybką homogenizację, ostatecznie uzyskując EM-y wolne od IONP przez drugą rundę separacji magnetycznej. Ponadto zoptymalizowaliśmy warunki przygotowania EM, badając wpływ różnych parametrów, takich jak szybkość i czas homogenizacji, na wielkość EM i wydajność. Protokół ten wykorzystuje interesujące zjawisko biologiczne: MNP (np. IONPy 10 nm) mogą być skutecznie internalizowane przez prawie wszystkie komórki poprzez endocytozę i gromadzone wyłącznie w endosomach, a nie w innych organellach. Ten unikalny proces biologiczny umożliwił izolację endosomów obciążonych MNP bez zanieczyszczeń innych niż EV poprzez separację magnetyczną. W zamian za to nanopęcherzyki przygotowane przez te oczyszczone endosomy komórkowe mogą wierniej odtworzyć biologiczną złożoność natywnych EV.
Co więcej, złotym standardem metody izolacji EV jest ultrawirowanie, które kosztuje masywne podłoża do hodowli komórkowych i długi czas przetwarzania wynoszący ponad 5 godzin i wytwarza tylko 1 × 10⁷-1 × 10⁸ cząstek z 1 x 10⁶ komórek6. Tradycyjne metody wytłaczania całych komórek rodzicielskich obejmują wiele etapów, w tym wytłaczanie membranowe pod ultrawysokim ciśnieniem i ultrawirowanie, które dają stosunkowo wyższą wydajność, ale wymagają drogiego sprzętu17. Jednak wydajność produkcji EM, wydajność, koszty i siła robocza ulegają znacznej poprawie dzięki zastosowaniu naszego protokołu. Homogenizator szybkoobrotowy jest powszechnym i tanim sprzętem zapewniającym krótki czas przetwarzania wynoszący 5 minut w tym protokole, a ta metoda może wyprodukować do 100 razy więcej EMs z 1 × 10⁶ komórek w porównaniu z natywnymi EV. Jednak metoda ta ma pewne ograniczenia, takie jak utrata białek endosomalnych podczas szybkiej homogenizacji i wykazano, że MNP endocytozowane przez komórki mogą być przenoszone do lizosomów, co stanowiłoby potencjalne zanieczyszczenie18.
W perspektywie, EM mogą być zaprojektowane tak, aby odgrywały ważne funkcje biologiczne, tak jak ich rodzime odpowiedniki, co może służyć jako nowy i obiecujący rodzaj biologicznych środków terapeutycznych. Substancje bioaktywne (np. białka i kwasy nukleinowe) mogą być integrowane z EM poprzez selekcję określonych komórek rodzicielskich (np. komórek macierzystych19) lub modyfikację genetyczną (np. białka fuzyjne20). Na przykład nanopęcherzyki pochodzące z komórek poprzez wytłaczanie żywych embrionalnych komórek macierzystych mają pozytywny wpływ na proces regeneracji lub gojenia się ran19. Modyfikacja genetyczna jest alternatywnym podejściem do generowania EM o określonych funkcjach biologicznych. Na przykład, gdy komórki zostały transfekowane wektorami nanociał receptora anty-epidermalnego czynnika wzrostu (EGFR) połączonych z peptydami sygnałowymi kotwicy glikozylofosfatydyloinozytolu (GPI), nanociała EGFR można zakotwiczyć na powierzchni EV w celu celowania w komórki nowotworowe wykazujące ekspresję EGFR20. Systemy EM sprawdziły się dobrze jako substytut terapii bezkomórkowej i nanoskalowego systemu dostarczania leków w wielu badaniach przedklinicznych14, ale brakuje kompleksowego mechanistycznego zrozumienia EM lub terapii opartej na EV, co budzi obawy o heterogeniczność i odtwarzalność EV i EM w badaniach klinicznych. Podsumowując, biologiczne funkcje EM i ich implikacje kliniczne wymagają dalszych badań.
Oświadczenia
D.W. i P.G. są współtwórcami wniosku patentowego złożonego przez Instytut Medycyny Podstawowej i Raka (IBMC) Chińskiej Akademii Nauk. Drugi autor deklaruje, że nie występuje konflikt interesów.
Podziękowania
Autorzy potwierdzają użycie instrumentów w Shared Instrumentation Core Facility w Instytucie Podstawowej Medycyny i Raka (IBMC), Chińskiej Akademii Nauk. Badanie to było wspierane przez Narodową Fundację Nauk Przyrodniczych Chin (NSFC; 82172598), Fundację Nauk Przyrodniczych prowincji Zhejiang w Chinach (LZ22H310001), Projekt Szkolenia Talentów Zdrowotnych 551 Komisji Zdrowia Prowincji Zhejiang w Chinach, Projekt Badawczy Rozwoju Rolnictwa i Rozwoju Społecznego Miejskiego Biura Nauki i Technologii w Hangzhou (2022ZDSJ0474) oraz Interdyscyplinarny Grant Badawczy Qiantang.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Przeciwciało aneksyny | ABklonalne | A11235 | BCA Western blotting |
| Beyotime | P0012 | Test stężenia białka | |
| Calnexin | GeneTex | HL1598 | Western blotting |
| Przeciwciało CD63 | ABclonal | A19023 | Western blotting |
| Bufor do lizy komórek dla Western i IP | Beyotime | P0013 | Western Wirówka do blottingu |
| Beckman | Allegra X-30R | Wirówka komórkowa | |
| Inkubator CO2 | Hodowla Thermo | Cell | |
| Konfokalna mikroskopia fluorescencyjna ze skaningiem laserowym | NIKON | A1 HD25 | Zdjęcie obrazu fluorescencji |
| DMEM basic (1x) | GIBCO | C11995500BT | Hodowla komórkowa |
| Dynamiczne rozpraszanie światła (DLS) | Malvern | Zetasizer Nano ZS ZEN3600 | Analiza średnicy |
| Elektryczny homogenizator szkła | SCIENTZ (Ningbo, Chiny) | DY89-II | Homogenizacja wolnoobrotowa |
| FBS zubożony w egzosomy | Bioscience | EXO-FBS-50A-1 | Hodowla komórkowa |
| Homogenizator szybkoobrotowy | SCIENTZ (Ningbo, Chiny) | XHF-DY | Homogenizacja o dużej prędkości |
| Ruszt magnetyczny | Tuohe Electromechanical Technology (Szanghaj, Chiny) | NA | Separacja magnetyczna |
| PKH26 Zestaw łączników komórek czerwonej fluorescencji do ogólnego etykietowania błon komórkowych | Sigma-Aldrich | PKH26GL-1KT | Zestaw zawiera łącznik komórek PKH26 w etanolu i rozcieńczalnik C |
| Nanocząstki tlenku żelaza modyfikowane polilizyną (JONP) | Zhongke Leiming Technology (Pekin, Chiny) | Mag1100-10 | Hodowla komórkowa |
| Potas chlorek | Aladyn | 7447-40-7 | Leczenie hipotoniczne komórek |
| Koktajl inhibitorów proteazy | Beyotime | P1030 | Inhibitor proteinazy |
| Cytrynian sodu | Aladdin | 7447-40-7 | Leczenie hipotoniczne komórek |
| Transmisyjna mikroskopia elektronowa (TEM) | JEOL | JEM-2100plus | Obraz morfologii |
| Ultrawirówka | Beckman | Optima XPN-100 | Wirówka egzosomowa |
| ZetaZobacz analizatory nanocząstek śledzenie | cząstek Metrix | PMX120 | Analiza śledzenia nanocząstek |
Bibliografia
- Kalluri, R., LeBleu, V. S. The biology, function, and biomedical applications of exosomes. Science. 367 (6478), eaau6977(2020).
- Hyenne, V., et al. RAL-1 controls multivesicular body biogenesis and exosome secretion. J Cell Biol. 211 (1), 27-37 (2015).
- Farooqi, A. A., et al. Exosome biogenesis, bioactivities and functions as new delivery systems of natural compounds. Biotechnol Adv. 36 (1), 328-334 (2018).
- Gatti, S., et al. Microvesicles derived from human adult mesenchymal stem cells protect against ischaemia-reperfusion-induced acute and chronic kidney injury. Nephrol Dial Transplant. 26 (5), 1474-1483 (2011).
- Zhang, Y., et al. Exosome: A review of its classification, isolation techniques, storage, diagnostic and targeted therapy applications. Int J Nanomedicine. 15, 6917-6934 (2020).
- Yang, D., et al. Progress, opportunity, and perspective on exosome isolation - efforts for efficient exosome-based theranostics. Theranostics. 10 (8), 3684-3707 (2020).
- Castilletti, C., et al. Coordinate induction of IFN-alpha and -gamma by SARS-CoV also in the absence of virus replication. Virology. 341 (1), 163-169 (2005).
- Guo, P., Huang, J., Moses, M. A. Cancer nanomedicines in an evolving oncology landscape. Trends Pharmacol Sci. 41 (10), 730-742 (2020).
- Jo, W., et al. Large-scale generation of cell-derived nanovesicles. Nanoscale. 6 (20), 12056-12064 (2014).
- Yoon, J., et al. Generation of nanovesicles with sliced cellular membrane fragments for exogenous material delivery. Biomaterials. 59, 12-20 (2015).
- Li, M., et al. Exosome mimetics derived from bone marrow mesenchymal stem cells ablate neuroblastoma tumor in vitro and in vivo. Biomater Adv. 142, 213161(2022).
- Wang, J., et al. Exosome mimetics derived from bone marrow mesenchymal stem cells deliver doxorubicin to osteosarcoma in vitro and in vivo. Drug Deliv. 29 (1), 3291-3303 (2022).
- Zhang, Z., et al. Comprehensive proteomic analysis of exosome mimetic vesicles and exosomes derived from human umbilical cord mesenchymal stem cells. Stem Cell Res Ther. 13 (1), 312(2022).
- Li, Y. J., et al. Artificial exosomes for translational nanomedicine. J Nanobiotechnology. 19 (1), 242(2021).
- Yang, W., et al. Clinical characteristics of 310 SARS-CoV-2 Omicron variant patients and comparison with Delta and Beta variant patients in China. Virol Sin. 37 (5), 12(2022).
- Shapira, S., et al. A novel platform for attenuating immune hyperactivity using EXO-CD24 in COVID-19 and beyond. EMBO Mol Med. 14 (9), 15997(2022).
- Jang, S. C., et al. Bioinspired exosome-mimetic nanovesicles for targeted delivery of chemotherapeutics to malignant tumors. ACS Nano. 7 (9), 7698-7710 (2013).
- Le, T. S., et al. Quick and mild isolation of intact lysosomes using magnetic-plasmonic hybrid nanoparticles. ACS Nano. 16 (1), 885-896 (2022).
- Jeong, D., et al. Nanovesicles engineered from ES cells for enhanced cell proliferation. Biomaterials. 35 (34), 9302-9310 (2014).
- Kooijmans, S. A., et al. Display of GPI-anchored anti-EGFR nanobodies on extracellular vesicles promotes tumour cell targeting. J Extracell Vesicles. 5, 31053(2016).
Przedruki i uprawnienia
