Tutaj prezentujemy protokół opisujący farmakologię sieciową i techniki dokowania molekularnego, aby zbadać mechanizm działania Jiawei Shengjiang San (JWSJS) w leczeniu nefropatii cukrzycowej.
Artykuł metodologiczny
Antagonistyczny wpływ Jiawei Shengjiang San na szczurzy model nefropatii cukrzycowej: związany ze szlakiem sygnałowym EGFR/MAPK3/1
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Naszym celem było zagłębienie się w mechanizmy leżące u podstaw działania Jiawei Shengjiang Sana (JWSJS) w leczeniu nefropatii cukrzycowej i wdrażaniu farmakologii sieciowej. Wykorzystując farmakologię sieciową i techniki dokowania molekularnego, przewidzieliśmy aktywne składniki i cele JWSJS oraz zbudowaliśmy skrupulatną sieć "lek-komponent-cel". Analizy wzbogacania ontologii genów (GO) i encyklopedii genów i genomów z Kioto (KEGG) wykorzystano do rozpoznania ścieżek terapeutycznych i celów JWSJS. Autodock Vina 1.2.0 został wdrożony do molekularnej weryfikacji dokowania i przeprowadzono symulację dynamiki molekularnej 100 ns w celu potwierdzenia wyników dokowania, a następnie weryfikację na zwierzętach in vivo. Wyniki ujawniły, że JWSJS ma wspólne 227 przecinających się celów z nefropatią cukrzycową, konstruując topologię sieci interakcji białko-białko. Analiza wzbogacenia KEGG wykazała, że JWSJS łagodzi nefropatię cukrzycową poprzez modulację lipidów i miażdżycy, szlaku sygnałowego PI3K-Akt, apoptozy i szlaku sygnałowego HIF-1, z aktywowaną mitogenem kinazą białkową 1 (MAPK1), MAPK3, receptorem naskórkowego czynnika wzrostu (EGFR) i kinazą białkową seryny/treoniny 1 (AKT1) zidentyfikowanymi jako zbiorowe cele wielu szlaków. Dokowanie molekularne wykazało, że podstawowe składniki JWSJS (kwercetyna, kwas oleopalmitynowy i luteolina) mogą stabilizować konformację z trzema kluczowymi celami (MAPK1, MAPK3 i EGFR) poprzez wiązania wodorowe. Badania in vivo wykazały znaczny wzrost masy ciała i zmniejszenie stężenia glikowanego białka surowicy (GSP), cholesterolu lipoprotein o niskiej gęstości (LDL-C), trifosforanu urydyny (UTP) i poziomu glukozy we krwi na czczo (FBG) z powodu JWSJS. Mikroskopia elektronowa w połączeniu z hematoksyliną i eozyną (HE) oraz barwieniem kwasem okresowym Schiffa (PAS) podkreśliła potencjał każdej grupy leczonej w łagodzeniu uszkodzenia nerek w różnym stopniu, wykazując różne spadki p-EGFR, p-MAPK3/1 i BAX oraz przyrosty ekspresji BCL-2 w tkankach nerkowych leczonych szczurów. Podsumowując, spostrzeżenia te sugerują, że skuteczność ochronna JWSJS w nefropatii cukrzycowej może być związana z tłumieniem aktywacji szlaku sygnałowego EGFR / MAPK3 / 1 i łagodzeniem apoptozy komórek nerkowych.
Wprowadzenie
Cukrzyca (DM) jest przewlekłą chorobą, która wpływa na wiele układów i może powodować różne powikłania z powodu ciągłej hiperglikemii, takie jak nefropatia cukrzycowa (DN), retinopatia i neuropatia1. DN jest poważnym powikłaniem cukrzycy, odpowiadającym za około 30%-50% schyłkowej niewydolności nerek (ESRD)2. Jego objawem klinicznym jest mikroalbuminuria, która może przekształcić się w ESRD charakteryzującą się zwiększoną objętością kłębuszków nerkowych, przerostem zrębu mezangialnego i pogrubioną błoną podstawną kłębuszków nerkowych3. Patogeneza DN jest złożona i nie została w pełni wyjaśniona. Metody kliniczne, takie jak obniżenie poziomu glukozy we krwi, regulacja ciśnienia krwi i zmniejszenie białkomoczu, są najczęściej stosowane w celu opóźnienia jego postępu, ale efekt jest ogólny.
Obecnie nie znaleziono żadnego konkretnego leku na DN4. Jednak od wieków chińskie leki ziołowe były szeroko stosowane w leczeniu cukrzycy i jej powikłań5 i poprawiały objawy kliniczne pacjentów i opóźniały postęp choroby. Ze względu na zalety efektów wieloskładnikowych, wielokierunkowych i wielościeżkowych, oczekuje się, że chińskie leki ziołowe będą innowacyjnym źródłem leków w leczeniu DN6.
"Shengjiang san" pochodzi od "Wanbing Huichun" autorstwa lekarza z dynastii Ming, Gong Tingxiana. Książka "Neifu Xianfang" opisuje użycie Bombyx Batryticatus, Cicadae Periostracum, Curcumaelongae Rhizoma i Radix Rhei et Rhizome. Na tej podstawie, po dodaniu Hedysarum Multijugum Maxim, Epimrdii Herba i Smilacis Glabrae Rhixoma, wywiera funkcję shengjiang san zwiększając jasność, zmniejszając zmętnienie, uwalniając zastałe "ciepło" i harmonizując "qi" i klasę krew7,8. Zwiększa również efekt wzmocnienia śledziony i ujędrnienia nerek. Jego skuteczność jest zgodna z patogenezą "qi" DN do wznoszenia się i opadania w kolejności z powodu niedoboru "energii życiowej", nadmiernej suchości i "ciepła" oraz stagnacji "ciepła" spowodowanej przez potrójny energetyzator7,8.
Poprzednie badania kliniczne wykazały, że chińskie leki ziołowe były stosowane w leczeniu DM i jego powikłań, a jiawei shengjiang san (JWSJS) wykazano, że regulują poziom glukozy i lipidów we krwi, zmniejszają białkomocz i znacznie poprawiają skuteczność kliniczną pacjentów z wczesnym DN7. Zdolność JWSJS do obniżania poziomu białka w moczu i glukozy we krwi u szczurów DN została potwierdzona w poprzednich badaniach. Prawdopodobnie dzieje się to poprzez hamowanie szlaków sygnałowych TXNIP/NLRP3 i RIP1/RIP3/MLKL, zmniejszanie pyroptozy podocytów i zapobieganie nekrotycznej apoptozie w tkankach nerkowych szczurów DN, osiągając w ten sposób ochronę nerek9. JWSJS może zwiększać ekspresję białka nefryny i podocyny oraz zmniejszać uszkodzenie podocytów u szczurów DN, co sugeruje, że JWSJS ma hamujący wpływ na uszkodzenie podocytów. JWSJS ma pewne działanie anty-DN z dobrymi profilami bezpieczeństwa, ale niewiele jest badań na ten temat, a praca ta koncentruje się głównie na piroptozie i martwiczej apoptozie. Literatura nie jest wystarczająco obszerna ani usystematyzowana10. Nasze wcześniejsze odkrycia potwierdziły, że JWSJS może zmniejszać białkomocz i łagodzić uszkodzenia nerek u szczurów DN7. Istnieje jednak tylko kilka badań dotyczących mechanizmu JWSJS w leczeniu DN i brakuje im głębi i usystematyzowania. W związku z tym badanie to ma na celu analizę substancji molekularnych i mechanizmów działania JWSJS w leczeniu DN przy użyciu farmakologii sieciowej i zapewnienie solidnych podstaw dla przyszłych badań.
Farmakologia sieciowa to nowa metoda badania mechanizmu działania leków, w tym chemiinformatyka, biologia sieciowa, bioinformatyka i farmakologia11,12. Projekt badań farmakologicznych sieci jest dość podobny do holistycznej koncepcji tradycyjnej medycyny chińskiej13,14 i jest to ważna metoda badania mechanizmu chińskich leków ziołowych. Dokowanie molekularne może badać interakcje między cząsteczkami i przewidywać ich wzorce wiązania i powinowactwo. Dokowanie molekularne stało się kluczową techniką w dziedzinie komputerowo wspomaganych badań nad lekami15. W związku z tym w badaniu tym stworzono sieć interakcji JWSJS-DN-cel za pomocą farmakologii sieciowej i metod dokowania molekularnego, która oferuje wiarygodną i teoretyczną podstawę do dalszego badania leczenia DN za pomocą JWSJS.
Protokół
Wszystkie zwierzęta były utrzymywane i używane zgodnie z Przewodnikiem Narodowej Rady ds. Badań Naukowych Stanów Zjednoczonych dotyczącym opieki i użytkowania zwierząt laboratoryjnych, wydanie 8, i zostały zgłoszone zgodnie z zaleceniami w wytycznych ARRIVE16,17. Badanie zostało przeprowadzone zgodnie z Przewodnikiem Chińskiej Narodowej Rady ds. Badań Naukowych dotyczącym opieki i wykorzystywania zwierząt laboratoryjnych i zostało zatwierdzone przez Komisję Etyki Zwierząt Uniwersytetu Medycyny Chińskiej w Hebei (DWLL2019030).
1. Składniki aktywne JWSJS i kolekcja docelowa
- Wprowadź kompozycję leczniczą JWSJS (Hedysarum Multijugum Maxim, Epimrdii Herba, Smilacis Glabrae Rhixoma, Radix Rhei et Rhizome i Curcumaelongae Rhizoma) do bazy danych tradycyjnej medycyny chińskiej i platformy analizy farmakologicznej (TCMSP) 18, aby pobrać wszystkie składniki chemiczne. Zgodnie z doustnym badaniem wchłaniania, dystrybucji, metabolizmu i wydalania (ADME) biodostępność (OB) ≥ 30% i właściwości podobne do leku (DL) ≥ 0,18 składniki chemiczne19,20.
- Użyj bazy danych TCMSP (https://old.tcmsp-e.com/ tcmsp.php, wersja 2.3), aby pobrać odpowiednie cele składników chemicznych.
- Uzyskaj aktywne składniki Bombyx Batryticatus i Cicadae Periostracum, przeszukując bazy danych Tradycyjnej Medycyny Chińskiej i Składu Chemicznego21.
- Aby uzyskać wiarygodność eksperymentalną, wybierz związki z numerami CAS (Chemical Abstracts Service) do tego badania. Następnie pobierz diagramy struktury 2D (format .sdf) składników aktywnych z PubChem (https://pubchem.ncbi.nlm.nih.gov/, zaktualizowano w 2021 r.)22.
- Użyj SwissADME (www.swissadme.ch, zaktualizowanego w 2021 r.)23, aby przebadać składniki o wysokim wchłanianiu przez przewód pokarmowy (GI) jako podobieństwo leków (Lipinski, Ghose, Veber, Egan, Muegge), których ≥ 2 pozycje to "Tak". Doprowadziło to do powstania aktywnych składników Bombyx Batryticatus i Cicadae Periostracum.
- Zaimportuj je do bazy danych TCMSP w celu przewidywania docelowego białka (https://old.tcmsp-e.com/tcmsp.php, wersja 2.3)18.
- Ustandaryzuj cele w bazie danych UniProt (https://www.uniprot.org, zaktualizowanej w 2021 r.) ze statusem ustawionym jako Przejrzany i gatunkiem ustawionym jako Human24.
2. Odpowiadająca DN kolekcja docelowa
- Szukaj nefropatii cukrzycowej za pomocą GeneCards (https://www.genecards.org/, wersja 5.1)25, OMIM (https://omim.org/, zaktualizowano w 2021 r.)26, TTD (http://db.idrblab.net/ttd/, zaktualizowano w 2021 r.)27, PharmGKB (https://www.pharmgkb.org/, zaktualizowano w 2021 r.)28,oraz bazy danych DrugBank (https://www.drugbank.ca/, zaktualizowano w 2021 r.)29. Uzyskaj cele DN po połączeniu i deduplikacji.
- Przegląd wspólnych celów JWSJS i DN oraz budowa sieci
- Przesiewaj typowe cele JWSJS i DN za pomocą oprogramowania R 4.2.0 i rysuj diagramy Venna. Zaimportuj aktywne składniki i potencjalne cele JWSJS do Cytoscape 3.8.0 software30, aby zbudować diagram sieci Lek-Składnik-Cel, który wizualizuje związek między lekami, składnikami, celami i chorobami.
- Niech rozmiar węzła odzwierciedla rozmiar wartości stopnia, gdzie wyższa wartość stopnia oznacza, że węzeł jest ważniejszy w sieci.
- Budowa sieci interakcji białko-białko PPI i badania przesiewowe głównych celów
- Przeanalizuj przecinające się geny za pomocą platformy internetowej STRING (Version:11.5), aby skonstruować sieć interakcji białko-białko (PPI)31. Skonstruuj sieć przy użyciu trybu analizy wielu białek, ustaw gatunek na Homo sapiens i ustaw minimalny wymagany wynik interakcji na >0,930.
- Użyj Cytoscape 3.8.0, aby przeanalizować topologicznie sieć, obliczyć centralność między węzłami (BC), centralność bliskości (CC), centralność stopnia (DC), centralność wektora własnego (EC), metodę lokalnej średniej opartej na łączności (LAC) i wartości centralności sieci (NC) dla każdego węzła, a następnie odfiltruj sześć węzłów ze wszystkimi wartościami większymi niż median32. Powtórz ten proces kilka razy, aby zidentyfikować główne cele JWSJS w terapii DN.
- Analizy funkcjonalne GO i analiza wzbogacania szlaków KEGG
- Wykonaj analizy wzbogacenia GO i KEGG w celu zidentyfikowania procesów biologicznych, funkcji molekularnych, składników komórkowych i szlaków związanych ze wspólnymi celami JWSJS i DN.
- Użyj metody org. Hs.eg.db pakietu, aby uzyskać identyfikatory obiektów docelowych skrzyżowania, a następnie użyj clusterProfiler, org. Pakiety Hs.eg.db, enrichplot i ggplot2 do analiz wzbogacania33.
- Ekran przesiewowy do funkcjonalnej analizy wzbogacenia GO na 10 największych trafieniach biologicznych z skorygowaną wartością P < 0,05 i wybierz 30 najlepszych ścieżek o najwyższym wzbogaceniu dla analizy KEGG.
3. Dokowanie molekularne
- Użyj oprogramowania AutoDock Vina, aby przeprowadzić dokowanie molekularne między podstawowymi komponentami JWSJS a głównymi celami terapii DN34.
- Wyszukaj w bazie danych PubChem, aby uzyskać plik sdf ze strukturą 2D podstawowych komponentów JWSJS. Użyj oprogramowania ChemBio 3D Ultra14.0, aby wygenerować i zoptymalizować jego strukturę 3D, zapisz go w formacie mol2 i użyj jako pliku liganda.
- Znajdź i pobierz format pdb struktury 3D głównych celów z bazy danych Banku Danych Białkowych (PDB) Collaboratory for Structural Bioinformatics (RCSB). Użyj oprogramowania Pymol 2.4.0, aby usunąć cząsteczki wody i ligandy ze struktury białka, zapisz je w formacie pdb i użyj jako pliku receptora.
- Zaimportuj plik pdb receptora do oprogramowania AutoDockTools 1.5.7 w celu uwodornienia, przekształć zarówno białko receptorowe, jak i ligand małocząsteczkowy na format pdbqt, ustaw aktywną kieszeń dla białka receptorowego ze współczynnikiem odstępów ustawionym na 1.
- Użyj Autodock vina 1.2.0 do dokowania molekularnego i oblicz energię wiązania; jeśli powinowactwo < 0, weź pod uwagę, że cząsteczka spontanicznie wiąże się z białkiem, większa wartość bezwzględna Powinowactwa wskazuje na bardziej stabilne wiązanie między nimi. Na koniec zwizualizuj wyniki dokowania za pomocą oprogramowania Pymol 2.3.0 i LigPlot 2.2.5.
4. Symulacja dynamiki molekularnej
- Aby przeprowadzić symulacje MD za pomocą oprogramowania Desmond, wykonaj następujące kroki:
- Wykorzystaj akademicką wersję oprogramowania Desmond 2019-1 do oceny stabilności i elastyczności interakcji białko-ligand.
- Przeprowadzenie badań dynamiki molekularnej (MD) na trzech najbardziej obiecujących kompleksach ligandów pochodzących z badań dokowania. Przeprowadzanie symulacji w środowisku wodnym SPC z 0,15 M NaCl, odtwarzając fizjologiczne warunki jonowe. Pole symulacji jest zaprojektowane w taki sposób, aby zapewnić, że substancja rozpuszczona pozostaje w odległości co najmniej 10 A od swoich granic. Przeciwjony są wprowadzane w celu zneutralizowania ładunku elektrycznego systemu. Dodatkowo stosowane są okresowe warunki brzegowe, regulowane parametrami pola siłowego OPLS 2005.
- Zainicjuj fazę minimalizacji energii przez 100 ps, używając domyślnych parametrów Desmonda.
- Zapewnić stabilizację temperatury i ciśnienia na poziomie 26,85 °C (300 K) i 1,01325 bar za pomocą łańcucha Nosé-Hoovera i metodologii Martyny-Tobiasa-Kleina we wszystkich produkcyjnych systemach MD. Symulacja dynamiki molekularnej jest wykonywana z krokiem czasowym 2 fs przez łączny czas trwania 100 ns, rejestrując współrzędne atomowe co 100 ps.
- Otwórz moduł diagramu interakcji symulacji (SID). Załaduj pliki danych wyników symulacji do modułu.
- Wybierz żądany typ analizy z opcji dostępnych w module (np. odchylenie średniokwadratowe [RMSD], fluktuacja średniej kwadratowej [RMSF], analiza wiązań wodorowych itp.). Określ wszelkie dodatkowe parametry wymagane dla wybranego typu analizy.
- Uruchom analizę, klikając przycisk Analizuj lub Start.
- Po zakończeniu analizy wyświetl i zinterpretuj wyniki w interfejsie modułu SID. W razie potrzeby eksportuj wyniki do dalszego wykorzystania lub prezentacji.
5. Walidacja eksperymentu na zwierzętach
- Zwierzęta i projektowanie eksperymentalne
UWAGA: W badaniu tym wzięło udział 75 samców szczurów Sprague-Dawley, które uzyskano z zakładu produkcji zwierzęcej klasy SPF i miały 8 tygodni o masie ciała 150 g ± 20 g (numer certyfikatu produkcji zwierzęcej SCXK [Hebei] 2018-004).- Umieść szczury w laboratorium dla zwierząt na poziomie SPF i losowo podziel je na grupy normalne i modelowe po 1 tygodniu karmienia adaptacyjnego. Zapewnij normalnej grupie normalną dietę, a grupie modelowej dietę wysokocukrową i wysokotłuszczową. Po 4 tygodniach pościć szczury, ale nie pozbawiać ich wody przez 12 godzin.
- Wstrzyknąć grupie modelowej dootrzewnowe wstrzyknięcie streptozotocyny (STZ; 35 mg·kg-1). Po 72 godzinach należy zbadać poziom cukru we krwi poprzez pobranie próbki krwi z żyły ogonowej. Jeśli poziom glukozy we krwi na czczo wynosi ≥16,7 mmol·L-1, potwierdź, że jest to udany model cukrzycy.
- Potwierdź udany model DN, obserwując zmiany histopatologiczne w nerce szczura.
- Losowo podziel pomyślnie powtórzone modele na grupę modelową, która otrzymała JWSJS w dawce 4,37 g/kg, 8,73 g/kg i 17,46 g/kg (co odpowiada 3,2, 6,3 i 12,6 razy klinicznie równoważnej dawce), a także grupę irbesartanu (0,014 g/kg). Każda grupa składała się z 10 szczurów. Wszystkie leki należy podawać przez zgłębnik doustny raz dziennie. Utrzymuj ten schemat dawkowania konsekwentnie przez 4 tygodnie.
- Znieczulić szczury za pomocą dootrzewnowego wstrzyknięcia 1% pentobarbitalu sodu (50 mg / kg) i potwierdzić prawidłowe znieczulenie poprzez utratę odruchu wycofania pedału. Pobrać próbki krwi z aorty brzusznej przed eutanazją.
- Pobrać nerki po eutanazji szczurów za pomocą dootrzewnowego wstrzyknięcia pentobarbitalu sodu w dawce 150 mg/kg.
UWAGA: Zwierzęta zostały poddane eutanazji w sposób humanitarny, zgodnie z najbardziej aktualnymi wytycznymi (https://www.avma.org/resources-tools/avma-policies/avma-guidelines-euthanasia-animals) Amerykańskiego Stowarzyszenia Lekarzy Weterynarii (AVMA) dotyczącymi eutanazji.
- Analizy histologiczne nerek
UWAGA: Tkanki nerkowe utrwalono w 4% paraformaldehydzie i odwodniono w etanolu po 48 godzinach; Skrawki zatopiono w parafinie. Skrawki pocięto na cienkie (4 μm) plastry w celu barwienia hematoksyliną i eozyną (HE) oraz kwasem okresowym Schiffa (PAS), a zmiany morfologiczne histologii nerek obserwowano pod mikroskopem świetlnym.- Barwienie HE:
- Odparafinowanie i nawilżanie: Potraktuj skrawki tkanek ksylenem I i II (po 10 minut), alkoholem bezwodnym I i II (po 3 minuty). Następnie zanurz skrawki tkanki w 95%, 90%, 80% i 70% etanolu (po 2 minuty), a następnie przepłucz wodą destylowaną przez 5 minut.
- Umieść skrawki tkanki w barwieniu hematoksylinowym na 5 minut, a następnie różnicuj skrawki alkoholem solnym przez 5 sekund.
- Umieść sekcję w roztworze barwiącym eozynę na 3 minuty.
- Odwodnienie, oczyszczenie i montaż: Odwodnić sekcje w różnym czasie w różnych etanolach (70%, 80%, 90%, 95% i etanole absolutne), a następnie oczyścić je w ksylenie I i II, a następnie połączyć gumą neutralną.
- Barwienie PAS:
- Postępuj zgodnie z krokami odparafinowania opisanymi w kroku 5.2.1 i potraktuj sekcję roztworem do barwienia kwasem okresowym przez ~8 minut.
- Opłucz skrawki w wodzie destylowanej przez 2 minuty, a następnie zabarwij je odczynnikiem Schiffa przez 15 minut w ciemności.
- Umyj skrawki w wodzie z kranu przez 10 minut po potraktowaniu ich odczynnikiem Schiffa.
- Przeciwbarwić skrawki za pomocą hematoksyliny przez 1 minutę, a następnie różnicować je alkoholem HCl przez 30 s. Ponownie umyj skrawki w wodzie z kranu przez 5 minut, aby zabarwić jądro na niebiesko.
- Mikroskopia elektronowa:
- Utrwal próbki w 2,5% aldehydzie glutarowym przez 3 godziny, a następnie płucz je w PBS przez 3 godziny. Następnie próbki należy poddać działaniu 1% kwasu osmowego przez 3 godziny, a następnie ponownie płukać w PBS przez 3 godziny.
- Odwadnianie odbywa się poprzez stopniowaną serię kąpieli alkoholowych zakończonych acetonem (każdy etap trwa łącznie około 2 godzin).
- Próbki infiltrować mieszaniną epoksydowego propanu i żywicy epoksydowej (1:1) w temperaturze pokojowej (RT) przez 2 godziny, a następnie czystą żywicą epoksydową w temperaturze 37 °C przez dodatkowe 2 godziny.
- Następnie próbki należy utwardzić i utwardzić w coraz wyższych temperaturach przez okres 36 godzin przed podziałem na sekcje. Proces ten zapewnia, że tkanka jest dokładnie infiltrowana żywicą, która jest następnie utwardzana, aby umożliwić cienkie plasterki do mikroskopii elektronowej.
- Podwójnie zabarwić 3% octanem uranylu i kwasem ołowiowym, a następnie obserwować i fotografować próbki za pomocą mikroskopii elektronowej w ciągu 15 minut
UWAGA: Ustawienia transmisyjnej mikroskopii elektronowej (TEM) są następujące: powiększenie 7000x w trybie wysokiego kontrastu (Zoom-1 HC-1), z napięciem przyspieszającym 80,0 kV w systemie TEM.
- Barwienie HE:
- Immunohistochemia
- Odparafinowanie: Umieść skrawki tkanki w ksylenie I i II na 10 minut każdy.
- Ponowne nawodnienie: Ponownie nawodnić odparafinowane skrawki tkanki, umieszczając je kolejno w absolutnym etanolu I i II na 3 minuty każde, a następnie 95%, 90%, 80% i 70% etanolu przez 2 minuty każda.
- Pobieranie antygenu: Zanurzyć skrawki tkanki w 0,1 M roztworze buforowym cytrynianu i kwasu cytrynowego pod wysokim ciśnieniem na około 5 minut, a następnie schłodzić do temperatury pokojowej.
- Blokowanie: Aby zapobiec niespecyficznemu wiązaniu przeciwciał, należy zablokować poprzez inkubację skrawków tkanek z 5% normalną surowicą kozią w temperaturze około 37 °C przez 30 minut.
- Inkubacja przeciwciał pierwszorzędowych: Dodać przeciwciała pierwszorzędowe p-EGFR (rozcieńczone w stosunku 1:200) i p-MAPK3/1 (rozcieńczone w stosunku 1:200) do wycinków tkanki i inkubować przez noc w temperaturze 4 °C w wilgotnej komorze.
- Inkubacja przeciwciał wtórnych: Przemyć skrawki trzykrotnie PBS, następnie dodać przeciwciała drugorzędowe znakowane biotyną (rozcieńczone w PBS zgodnie z instrukcjami producenta) na skrawki i inkubować w temperaturze 37 °C przez 30 minut.
- Nanieść roztwór roboczy streptawidyny sprzężony z peroksydazą chrzanową na skrawki tkanki w temperaturze 37 °C, a następnie trzykrotnie przemyć roztworem soli fizjologicznej buforowanym fosforanem (PBS).
- W celu opracowania DAB należy inkubować sekcje z roztworem rozwijającym DAB (3 minuty w ciemności w temperaturze pokojowej), a następnie przepłukać wodą destylowaną. DAB działa jako substrat chromogenowy dla enzymu peroksydazy chrzanowej (HRP), który po utlenieniu brązowieje.
- Użyj hematoksyliny do barwienia przeciwstawnego przez około 2 minuty, rozdziel skrawki 1% alkoholem solnym przez 5 s, a następnie umyj pod bieżącą wodą, aby zmieniły kolor na niebieski.
- Odwodnić poprzez kolejno umieszczanie skrawków w szeregu etanolu o stężeniu od niskiego do wysokiego stężenia, klarownego w ksylenie I i II, a następnie zamontować skrawki za pomocą neutralnej gumy.
UWAGA: Ta procedura trwa około 18-24 godzin, wliczając w to nocną inkubację przeciwciał pierwotnych. - Losowo wybierz trzy pola wizualne (200x) dla każdej sekcji i przeanalizuj wyniki barwienia przekrojów za pomocą oprogramowania do analizy obrazu. Oprogramowanie Image Pro Plus 6.0 zostało użyte zgodnie z poniższymi krokami.
- Najpierw zaimportuj obraz sekcji do oprogramowania.
- Korekcja gęstości: Aby zapewnić dokładne wyniki, należy wykonać korektę gęstości.
- Przejdź do opcji Pomiar > Kalibracja > intensywności > nowe standardowe opcje > gęstości nowej > > obrazu. Następnie kliknij pusty obszar obrazu, aby zapisać wartość tła i potwierdź ją, klikając OK.
- Ustawianie parametrów pomiaru: Skonfiguruj parametry pomiaru, aby obliczyć powierzchnię i zintegrowaną gęstość optyczną (IOD).
- Kliknij Zmierz > liczbę/rozmiar> Zmierz > wybierz Pomiary. Wybierz Obszar (100) i IOD, a następnie kliknij przycisk OK.
- Przejdź do Opcji, zaznacz Ciemne tło na próbce, 4-Connect Pre-Filter i kliknij OK.
- Wybór koloru: Aby dokładnie określić pozytywność, wybierz kolory, aby wykryć obszary poplamione i obszary niebarwione.
- Kliknij Wybierz kolory > histogram oparty > HSI. Dostosuj wartość H zgodnie z obrazem, zachowując S bez zmian, a I w zakresie od zera do wartości tła. Następnie potwierdź, klikając Zamknij.
- Gromadzenie danych i obliczanie: Wykonaj zbieranie danych i obliczenia, klikając pozycję Zmierz > Kolektor danych > Układ, gdzie wybrano Nazwę, Obszar (Suma) i IOD (Suma). Następnie kliknij Policz > Zbierz teraz > Lista danych, aby wyeksportować dane do dalszej analizy lub przechowywania.
UWAGA: W ten sposób uzyskano półilościowy pomiar ekspresji białka w każdej sekcji pod względem IOD/Area, który wskazuje, ile białka jest obecne w stosunku do całkowitego analizowanego obszaru.
- Western blotting (zachodnia plama)
- Zdobądź tkankę nerkową i pokrój ją na kawałki. Umieść te kawałki w probówce wirówkowej o pojemności 1,5 ml, dodaj wstępnie schłodzony roztwór do lizy białek (50 mM Tris [pH 7,4], 150 mM NaCl, 1% Triton X-100, 1% deoksycholan sodu, 0,1% dodecylosiarczan sodu [SDS]) i homogenizuj.
- Pozostawić na lodzie na 30 minut, a następnie odwirować w temperaturze 13400 x g przez 20 minut w temperaturze 4 °C. Otrzymaną próbkę przechowywać w zamrażarce o temperaturze -80 °C.
- Użyj metody Bradforda, aby określić ilościowo białka.
- Przygotować roztwór roboczy Coomassie Brilliant Blue, mieszając odczynnik i wodę destylowaną w stosunku 1:4.
- Ustal trzy grupy - ślepą, standardową grupę białkową i grupę białka próbki. Dodaj 3 ml roztworu roboczego Coomassie Brilliant Blue do każdej grupy wraz z solą fizjologiczną dla grupy ślepej, białkiem wzorcowym dla grupy wzorcowej i wyekstrahowanym białkiem supernatantowym dla grupy próbki.
- Po odstawieniu mieszanin na 5 minut zmierzyć ich wartości absorbancji za pomocą spektrofotometru ultrafioletowego.
- Obliczyć stężenie próbki za pomocą tego wzoru: Stężenie białka (mg / ml) = (wartość absorbancji próbki/standardowa wartość absorbancji probówki) x standardowe stężenie białka x 5.
- Dodać równą objętość 6-krotnego buforu ładującego do każdej próbki białka. Gotować w temperaturze 100 °C przez 5 minut, a następnie porcjować i przechowywać w zamrażarce w temperaturze -20°C do czasu dalszego użycia.
- Wykonaj standardową elektroforezę, osuszanie i blokowanie.
- Wykonaj standardową elektroforezę w żelu poliakryloamidowym SDS (PAGE) przy użyciu żelu o rozdzielczości 12%. Zastosuj stałe napięcie 100 V dla żelu do układania w stosy i 120 V dla żelu rozdzielczego, aż przód barwnika dotrze do dna żelu.
- Przenieść białka na membrany z polifluorku winylidenu (PVDF) pod napięciem 100 V przez 2 godziny w chłodni w temperaturze 4 °C przy użyciu mokrego systemu przenoszenia.
- Po transferze białka zablokuj błony z 5% mlekiem beztłuszczowym w TBST przez 1 godzinę w temperaturze pokojowej.
- Rozcieńczyć przeciwciała pierwszorzędowe EGFR (1:2,000), p-EGFR (1:2,000), MAPK3/1 (1:2,000), p-MAPK3/1 (1:2,000), Bcl-2 (1:2,000), BAX (1:2,000) i CAPDH (1:5,000) w TBST z 5% BSA. Dodać rozcieńczone przeciwciała pierwszorzędowe i inkubować błony przez noc w temperaturze 4 °C, delikatnie mieszając.
- Po trzykrotnym przemyciu membrany TBST dodać rozcieńczone przeciwciała drugorzędowe (1:5 000), a następnie inkubować przez 1 godzinę. Po opracowaniu koloru przeprowadzić analizę ilościową pasm docelowych za pomocą oprogramowania ImageJ.
- Analiza qPCR
- Grupowanie: Przypisz próbki do grup - Kontrola, DN, Irbesartan, JWSJS-L, JWSJS-M, JWSJS-H.
- Ekstrakcja RNA: Wykonaj homogenizację tkanek i ekstrakcję RNA, a następnie dodanie chloroformu, odwirowanie i wytrącanie RNA zgodnie z instrukcjami producenta.
- Wytrącanie i mycie RNA: Wytrącić RNA izopropanolem i przemyć etanolem.
- Solubilizacja RNA: Wysuszyć osad RNA i rozpuścić go w wodzie uzdatnionej przez DEPC.
- Synteza cDNA: Wykonaj odwrotną transkrypcję przy użyciu określonych mieszanin reakcyjnych zgodnie z instrukcjami producenta.
- Amplifikacja qPCR: Użyj specjalnych starterów do GAPDH, MAPK3, MAPK1 i EGFR do qPCR i wykonaj amplifikację zgodnie z instrukcjami producenta.
Sekwencje starterów były następujące:
GAPDH: F-5'-GCAAGTTCAACGGCACAG-3', R-5'-CTCGCTCCTGGAAGATGG-3';
MAPK3: F-5'-AGATCTGTGATTTTGGCCT-3', R-5'-TCAATGGATTTGGTGTAGC-3';
MAPK1: F-5'-CCTCAAGCCTTCCAACCTC-3', R-5'-GCCCACAGACCAAATATCA-3';
EGFR: F-5'-GGGGATGTGATTATTTCTG-3, R-5'-ATTTTGGTCTTTTGATTGG-3'.
6. Metody statystyczne
- Przeprowadzić analizę za pomocą odpowiedniego oprogramowania (np. SPSS) i przedstawić zmierzone dane jako średnią ± odchylenie standardowe. Jeśli dane spełniały kryteria rozkładu normalnego i jednorodności wariancji, porównaj grupy za pomocą jednoczynnikowej ANOVA i przeprowadź wielokrotne porównania metodą Bonferroniego.
- Testu T2 należy używać do wielokrotnych porównań, jeśli wariancja nie jest jednorodna. Uznajmy, że P < 0,05 jest statystycznie istotne.
Wyniki
Zgodnie z protokołem, po przeprowadzeniu analizy, przesiewania i usuwaniu duplikatów według ustalonych standardów OB i DL, ostatecznie uzyskano 90 składników aktywnych JWSJS. Obejmowały one 20 rodzajów składników Hedysarum Multijugum Maxim, 23 rodzaje Epimrdii Herba, 15 rodzajów Smilacis Glabrae Rhixoma, 16 rodzajów Radix Rhei et Rhizome, cztery rodzaje Curcumaelongae Rhizoma, 15 rodzajów Cicadae Periostracum oraz sześć rodzajów składników Bombyx Batryticatus. Ze względu na dużą liczbę składników aktywnych w JWSJS, wymieniono tylko 20 z nich (patrz Tabela 1). Po usunięciu duplikatów ostatecznie uzyskano 396 celów odpowiadających składnikom aktywnym JWSJS.
Po wyszukiwaniu genów związanych z chorobą, po scaleniu i usunięciu duplikatów, ostatecznie uzyskano 3035 genów docelowych związanych z DN. Odpowiadające im cele DN porównano i przeanalizowano z celami aktywnych składników leków. Wyznaczono część wspólną, co pozwoliło zidentyfikować 227 wspólnych celów JWSJS i DN. Następnie sporządzono wykres Venna (patrz Rysunek 1A). Sieć „lek-składnik-cel” zbudowano przy użyciu oprogramowania Cytoscape 3.8.0 (patrz Rysunek 1B), a następnie przeprowadzono analizę topologiczną. Każdy węzeł uszeregowano od najwyższej do najniższej wartości stopnia. Pięć najważniejszych składników leku to kwercetyna, kwas palmitolowy, luteolina, kaempferol i naringenina, natomiast pięć najważniejszych celów to PTGS2, PTGS1, NCoA2, AR i ESR1.
Następnie opracowano sieć PPI dla celów wspólnych dla JWSJS i DN (196 węzłów i 1714 krawędzi ze średnią wartością stopnia 17,4). Ponadto, po trzech etapach selekcji uzyskano siedem kluczowych celów, które mogą być głównymi punktami uchwytu JWSJS w leczeniu DN: MAPK14, TP53, MAPK3, MYC, HIF1A, ESR1 oraz MAPK1 (patrz Rycina 1C).
Następnie przeprowadzono analizę wzbogacenia GO, aby wysnuć przypuszczenia na temat biologicznych właściwości celu JWSJS w leczeniu DN. Wśród kategorii BP, CC i MF dziesięć najlepiej wzbogaconych wpisów przedstawiono na Rysunku 1D. Wyniki wskazują, że JWSJS może regulować proliferację, różnicowanie i apoptozę komórek poprzez wiązanie się z czynnikami transkrypcyjnymi i kinazami białkowymi w tratwach lipidowych i mikrodomenach błonowych, co prowadzi do efektu terapeutycznego w przypadku DN. W celu zbadania potencjalnych ścieżek działania JWSJS w DN przeprowadzono analizę wzbogacenia ścieżek KEGG dla zaangażowanych celów. Trzydzieści najlepiej wzbogaconych ścieżek przedstawiono na Rysunku 1E. Wyniki pokazują, że leczenie DN za pomocą JWSJS może oddziaływać na 181 ścieżek sygnalizacyjnych, obejmujących głównie gospodarkę lipidową i miażdżycę, ścieżkę sygnalizacyjną PI3K-Akt, kancerogenezę chemiczną, zapalenie wątroby, raka prostaty, apoptozę, ścieżkę sygnalizacyjną HIF-1 oraz ścieżkę sygnalizacyjną TNF.
Aby dokładniej zbadać cele pierwszych 30 szlaków wzbogaconych w bazie KEGG, wykorzystano oprogramowanie Cytoscape 3.8.0 do stworzenia mapy sieci powiązań szlaków sygnalizacyjnych KEGG dla DN leczonej preparatem JWSJS. Stwierdzono, że MAPK1, MAPK3, EGFR oraz AKT1 są celami wielu współdziałających szlaków (patrz Rysunek 1F), co sugeruje, że białka te mogą odgrywać centralną rolę w pośredniczeniu efektów JWSJS w DN.
Aby dalej zweryfikować potencjalne cele JWSJS w leczeniu DN, przeanalizowano następnie trzy kluczowe cele: MAPK1, MAPK3 i EGFR, które charakteryzowały się wysokimi wartościami stopnia w sieci PPI oraz w sieci szlaków sygnalizacyjnych KEGG. Przeprowadzono dokowanie molekularne tych celów z kwercetyną, kwasem palmitoleinowym i luteoliną – trzema najważniejszymi komponentami rdzeniowymi JWSJS w leczeniu DN. Kryteria doboru identyfikatorów PDB były następujące: (1) pochodzenie z organizmów ludzkich; (2) rozdzielczość konformacyjna ≤ 2.5Å, czyli jak najniższa; (3) sekwencja konformacyjna możliwie najpełniejsza, tzn. kompleks strukturalny musiał zawierać informacje o ligandzie małocząsteczkowym; oraz (4) wartość pH krystalizacji możliwie najbliższa normalnemu zakresowi fizjologicznemu organizmu ludzkiego35. Ostatecznie wybrano identyfikatory PDB dla MAPK1, MAPK3 i EGFR: odpowiednio 4QTA, 4QTB oraz 7JXQ.
Aby zweryfikować niezawodność oprogramowania AutoDock w systemie dokowania zastosowanym w niniejszym badaniu36, w pierwszej kolejności przeprowadzono redokowanie trzech białek: MAPK1, Mapk3 oraz EGFR. Konformację ligandu w oryginalnej strukturze krystalicznej trzech białek docelowych nałożono na ligandy po dokowaniu (Rysunek 2A). Następnie obliczono wartości średniokwadratowego odchylenia (RMSD) między konformacją ligandu po dokowaniu a oryginalną strukturą krystaliczną. Wartości RMSD wyniosły odpowiednio 1,129, 1,201 i 1,877 Å, czyli wszystkie ≤ 2Å. Wykazało to, że metoda dokowania jest niezawodna i może zostać wykorzystana do dalszej weryfikacji dokowania molekularnego. Aby porównać i określić potencjał hamujący głównych składników, w roli kontroli wykorzystano oryginalne ligandy białek MAPK1, MAPK3 i EGFR. Analiza dokowania pozwoliła pomyślnie przewidzieć energię wiązania luteoliny, kwasu palmitoleinowego i kwercetyny z trzema głównymi celami. Wszystkie wartości były ujemne i mniejsze niż -637; patrz Tabela 2. Należy zauważyć, że dokowanie molekularne luteoliny i MAPK1 charakteryzuje się największym rozmiarem kawerny i najniższą energią wiązania. Ogólnie wyniki dokowania molekularnego wykazały, że luteolina, kwas palmitoleinowy i kwercetyna wykazują dobrą aktywność wiązania z trzema głównymi celami (Rysunek 2B,C).
Wartość RMSD jest wykorzystywana do ilościowego określenia średnich zmian przemieszczenia wybranej grupy atomów w odniesieniu do układu odniesienia. Z kolei RMSF skutecznie charakteryzuje lokalne zmiany wzdłuż łańcucha białkowego. Wykres RMSD (Rysunek 2D) pokazuje, że wartości RMSD dla kompleksów luteolina-MAPK1 oraz kwercetyna-MAPK3 ustabilizowały się w ciągu 5 ns. Kompleks luteolina-EGFR wykazał fluktuujący RMSD w zakresie 0-35 ns; wartość ta ustabilizowała się przy 35 ns aż do końca 100 ns symulacji MD. Wszystkie kompleksy weszły w stabilne interakcje pod koniec 100 ns symulacji MD. Wartość RMSF została oceniona na podstawie trajektorii symulacji MD: minimalne fluktuacje atomów w centrum aktywnym i głównym łańcuchu sugerowały minimalne zmiany konformacyjne, co wskazuje, że wspomniany związek wiodący jest pewnie zakotwiczony wewnątrz wnęki kieszeni wiążącej białka docelowego. Wyniki RMSF wykazały ograniczone fluktuacje w strukturach kompleksów.
Na koniec weryfikujemy powyższe wyniki in vivo. Zaobserwowaliśmy najpierw, że masa ciał szczurów w grupie modelowej uległa znacznemu zmniejszeniu, natomiast poziomy GSP, LDL-C, UTP i FBG znacząco wzrosły (P < 0,05). Masa ciała szczurów w grupie otrzymującej irbesartan oraz w każdej z grup JWSJS wzrosła znacząco w porównaniu z grupą modelową. Poziomy GSP, LDL-C, UTP i FBG obniżyły się w różnym stopniu (P < 0,05; patrz Tabela 3).
Następnie barwienie HE wykazało, że kłębuszki w grupie kontrolnej miały prawidłową wielkość. Charakteryzowały się regularną i wyraźną strukturą, gładką błoną podstawną oraz uporządkowanymi kanalikami nerkowymi, bez infiltracji komórek zapalnych. W grupie modelowej kłębuszki były hipertroficzne, błona podstawna pogrubiała, a macierz kłębuszkowa zwiększona. W śródmiąższu stwierdzono infiltrację komórek zapalnych. Objawy patologiczne w każdej z grup poddanych podaniu preparatów były w różnym stopniu złagodzone w porównaniu z grupą modelową (patrz Rycina 3A).
Barwienie PAS wykazało, że w grupie modelowej wystąpił zwiększony rozmiar kłębuszków, pogrubienie błony podstawnej oraz zwiększenie macierzy kłębuszkowej w porównaniu z grupą kontrolną. Manifestacje patologiczne te zostały istotnie złagodzone w każdej z grup otrzymujących lek (patrz Rysunek 3B). W badaniu z wykorzystaniem transmisyjnej mikroskopii elektronowej stwierdzono, że błona podstawna kłębuszków w grupie modelowej była pogrubiona w stosunku do grupy kontrolnej. Odnotowano rozrost macierzy kłębuszkowej oraz rozległe zlanie się wypustek stopowych podocytów. Obraz mikroskopowy u szczurów w każdej z grup otrzymujących lek uległ poprawie w różnym stopniu w porównaniu z grupą modelową (patrz Rysunek 3C).
Na koniec zbadano ekspresję całkowitego EGFR, p-EGFR, MAPK3/1 oraz p-MAPK3/1, aby sprawdzić, czy uległy one zmianie u szczurów z DN leczonych JWSJS. W grupach modelowych nie stwierdzono istotnych zmian w ekspresji całkowitego EGFR i MAPK3/1 w porównaniu z grupą normalną. Ekspresja p-EGFR, p-MAPK3/1 oraz BAX uległa istotnemu zwiększeniu, natomiast ekspresja BCL-2 uległa istotnemu zmniejszeniu. W porównaniu z grupą modelową, w tkankach nerek szczurów w każdej grupie dawkowania odnotowano istotną redukcję ekspresji p-EGFR, p-MAPK3/1 i BAX oraz istotny wzrost ekspresji BCL-2 w różnym stopniu (Rycina 3D,E). Wynik ten został potwierdzony metodą immunohistochemii (Rycina 3F,G). Badanie to wykazało, że JWSJS może chronić nerki szczurów z DN poprzez regulację ekspresji białek p-EGFR, p-MAPK3/1, BAX i BCL-2 oraz redukcję apoptozy komórek. Ponadto wykorzystano qPCR do oceny poziomów ekspresji mRNA MAPK3, MAPK1 i EGFR w różnych grupach. Wyniki ujawniły, że względna ekspresja w grupie DN była istotnie wyższa w porównaniu z grupą kontrolną, a także grupami Irbesartan, JWSJS-L, JWSJS-M i JWSJS-H. Wynik ten dodatkowo potwierdza wstępne rezultaty (Rycina 3H).
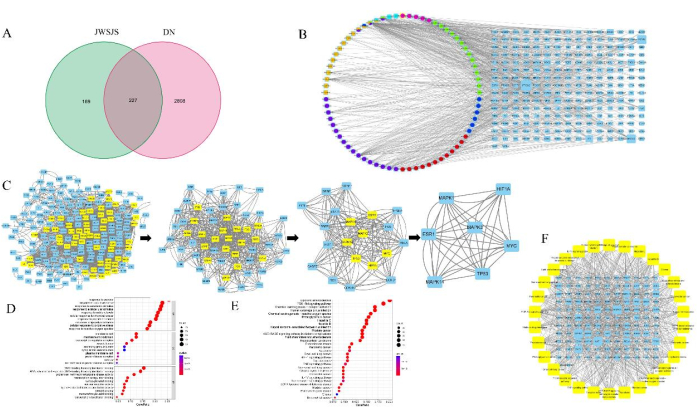
Rycina 1: Farmakologia sieciowa wyjaśniła potencjalne cele i szlaki sygnalizacyjne JWSJS w nefropatii cukrzycowej. (A) Diagram Venna przecinających się celów JWSJS i nefropatii cukrzycowej. Kolor zielony reprezentuje liczbę celów terapeutycznych składników JWSJS, a kolor fioletowy reprezentuje liczbę istotnych celów DN. Część wspólna reprezentuje liczbę przecinających się celów (tj. liczbę celów JWSJS w DN). (B) Schemat sieci „lek-składnik-cel” JWSJS w leczeniu DN. Jasnoniebieski kolor reprezentuje istotne cele JWSJS w leczeniu DN. Kolor fuksjowy reprezentuje aktywny składnik Bombyx Batryticatus. Kolor zielony reprezentuje aktywne składniki Hedysarum Multijugum Maxim. Ciemnoniebieski kolor reprezentuje aktywne składniki Radix Rhei et Rhizome. Kolor czerwony reprezentuje aktywne składniki Cicadae Periostracum. Kolor fioletowy reprezentuje aktywne składniki Epimrdii Herba. Kolor żółty reprezentuje aktywne składniki Smilacis Glabrae Rhixoma. Błękitny kolor reprezentuje aktywne składniki Curcumaelongae Rhizoma. (C) Sieć PPI przecinających się celów JWSJS i DN. (D) 10 najistotniejszych genów zidentyfikowanych za pomocą analizy ontologii genów będących celami terapeutycznymi zaangażowanych w leczenie DN za pomocą JWSJS. (E) 30 najistotniejszych genów zidentyfikowanych za pomocą analizy szlaków genów będących celami terapeutycznymi zaangażowanych w leczenie DN za pomocą JWSJS. (F) Sieć powiązań szlaków sygnalizacyjnych KEGG w leczeniu DN za pomocą JWSJS. Żółte ikony reprezentują szlaki sygnalizacyjne. Niebieskie ikony reprezentują cele działania. Większy węzeł oznacza, że jest z nim połączonych więcej szlaków. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
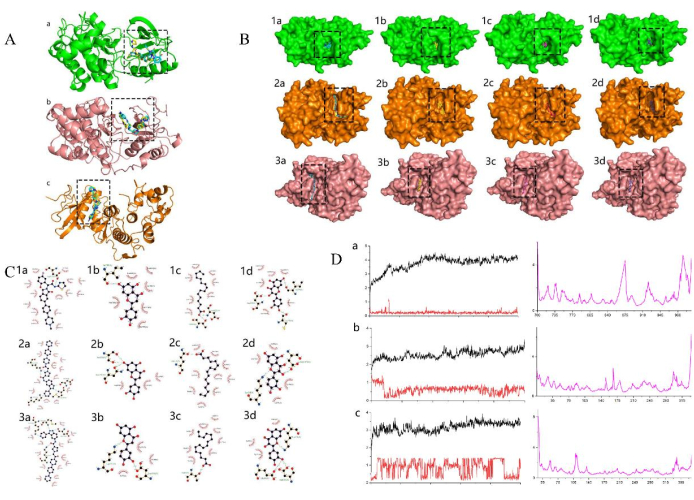
Rycina 2: Wizualizacja dokowania molekularnego i trajektorii dynamiki molekularnej JWSJS w leczeniu nefropatii cukrzycowej. (A) Porównanie konformacji liganda w oryginalnej strukturze krystalicznej trzech kompleksów białek docelowych 7JXQ (a), 4QTA (b) i 4QTB (c) z konformacjami liganda po dokowaniu. Kolory zielony, pomarańczowy i różowy oznaczają odpowiednio białka docelowe EGFR, MAPK1 i MAPK3. Kolor złoty oznacza oryginalną cząsteczkę liganda, a niebieski cząsteczkę liganda po dokowaniu. (B) Wizualizacja 3D dokowania molekularnego JWSJS w leczeniu nefropatii cukrzycowej. Kolory zielony, pomarańczowy i różowy oznaczają odpowiednio białka docelowe 7JXQ, 4QTA i 4QTB. Oznaczenia 1a-3a przedstawiają schematy oddziaływań 7JXQ, 4QTA i 4QTB z oryginalnym inhibitorem (niebieski). Oznaczenia 1b-3b przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z luteoliną (żółty). Oznaczenia 1c-3c przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z kwasem palmitoleinowym (fuksja). Oznaczenia 1d-3d przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z kwercetyną (fioletowy). (C) Wizualizacja 2D dokowania molekularnego JWSJS w leczeniu nefropatii cukrzycowej. Oznaczenia 1a-3a przedstawiają schematy oddziaływań 7JXQ, 4QTA i 4QTB z oryginalnym inhibitorem. Oznaczenia 1b-3b przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z luteoliną. Oznaczenia 1c-3c przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z kwasem palmitoleinowym. Oznaczenia 1d-3d przedstawiają schematy oddziaływań 7JXQ, 4QTA, 4QTB z kwercetyną. (D) Analiza RMSD i RMSF trajektorii dynamiki molekularnej kompleksów (a) luteoliny i białka docelowego 7JXQ, (b) luteoliny i białka docelowego 4QTA oraz (c) kwercetyny i białka docelowego 4QTB. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
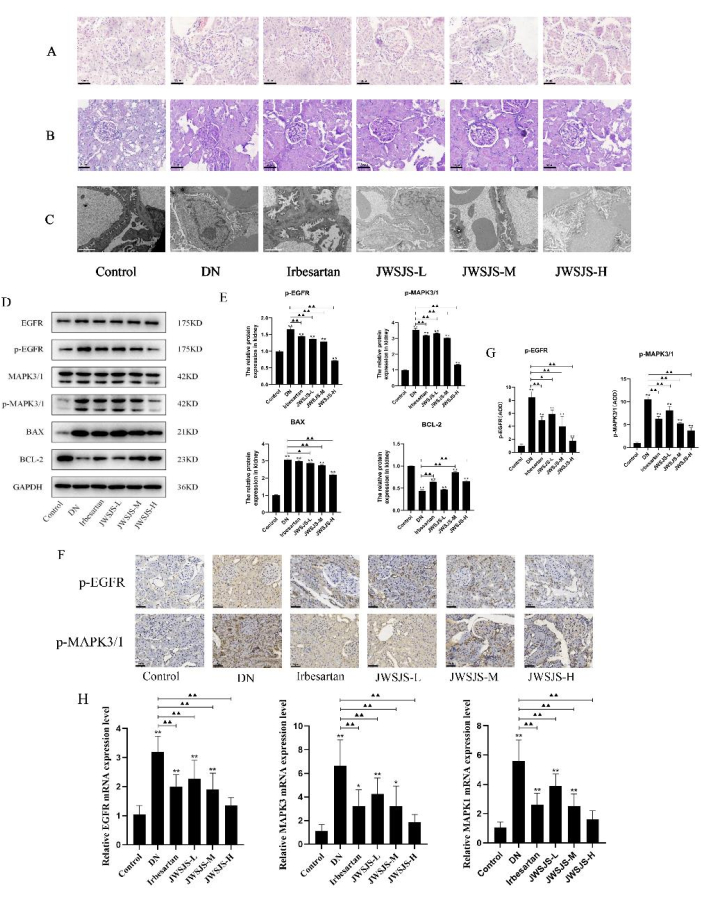
Rycina 3: JWSJS łagodzi uszkodzenia nerek i hamuje aktywację szlaku sygnalizacyjnego EGFR/MAPK3/1 w eksperymentach in vivo. (A) Barwienie HE oraz (B) barwienie kwasem okresowym i Schiffem (PAS) tkanek nerek szczurów w różnych grupach (Powiększenie 200x; n = 10). (C) Transmisyjna mikroskopia elektronowa tkanek nerek w różnych grupach szczurów (Powiększenie 5000x; n = 3). (D) Poziomy EGFR, p-EGFR, MAPK3/1, p-MAPK3/1, BAX i BCL-2 w tkance nerek szczurów z cukrzycą określone metodą Western blotting (n = 3). (E) Analiza statystyczna ekspresji p-EGFR, p-MAPK3/1, BAX i BCL-2. (F) Analiza immunohistochemiczna ekspresji p-EGFR i p-MAPK3/1 w sześciu grupach (n = 6). (G) Analiza statystyczna ekspresji p-EGFR i p-MAPK3/1. (H) Analiza qPCR ekspresji mRNA dla MAPK3, MAPK1 i EGFR w sześciu grupach. *P < 0.05 względem grupy kontrolnej. **P < 0.01 względem grupy kontrolnej. ▲P < 0.05 względem DN. ▲▲P < 0.01 względem DN. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Tabela 1: Informacje o niektórych składnikach aktywnych JWSJS. Zawiera ona szczegółowe informacje o każdym składniku oraz ich charakterystykę lub właściwości. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Tabela wyników dokowania głównych celów i głównych składników aktywnych JWSJS.Tabela przedstawia wyniki badań dokowania głównych celów i głównych komponentów aktywnych JWSJS. Tabela ta pokazuje, w jaki sposób składniki te oddziałują z ich odpowiednimi celami, co może dostarczyć informacji na temat mechanizmu działania JWSJS. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 3: Wpływ JWSJS na masę ciała i wskaźniki biochemiczne u szczurów z nefropatią cukrzycową (wyrażone jako średnia ± odchylenie standardowe, n = 10). W porównaniu z grupą kontrolną: * P < 0.05. W porównaniu z grupą modelową: # P < 0.05. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
W naszym badaniu wykorzystaliśmy połączenie farmakologii sieciowej, dokowania molekularnego i modeli zwierzęcych in vivo . Kluczowym krokiem było utworzenie sieci "lek-komponent-cel", która miała kluczowe znaczenie dla zidentyfikowania potencjalnych mechanizmów JWSJS w leczeniu DN, ze szczególnym uwzględnieniem jego interakcji ze szlakiem sygnałowym EGFR/MAPK3/1.
Podczas tego badania dokonaliśmy kilku modyfikacji, szczególnie w procesie dokowania molekularnego, aby zwiększyć dokładność naszych przewidywań. Rozwiązywanie problemów koncentrowało się głównie na optymalizacji warunków dla modelu zwierzęcego in vivo , aby zapewnić jego znaczenie dla ludzkiej DN. Identyfikując kluczowe aktywne składniki i cele JWSJS, badanie to stanowi teoretyczną podstawę do dalszych badań i rozwoju JWSJS jako potencjalnego kandydata na lek w leczeniu DN.
W badaniu zbadano potencjalny mechanizm działania JWSJS w zmniejszaniu apoptozy nerkowej w DN. Wyniki dokowania molekularnego wykazały, że kwercetyna, kwas oleopalmitynowy i luteolina mają regularne działanie wiążące z kluczowymi celami, w tym MAPK1, MAPK3 i EGFR. Wybraliśmy te cele do dalszych badań ze względu na ich wspólne działanie w wielu szlakach. U szczurów DN leczenie JWSJS spowodowało znaczne zmniejszenie poziomów FBG i GSP, poprawę UTP i LDL-C, przyrost masy ciała i poprawę mikroskopijnych objawów tkanki nerkowej, co wskazuje na potencjalną skuteczność JWSJS w leczeniu DN.
Apoptoza jest krytycznym sposobem śmierci komórki, a rozregulowanie może zwiększać ryzyko różnych chorób38. Wcześniejsze badania wykazały, że szczury DN miały zwiększoną ekspresję białek związanych z apoptozą BAX i kaspazy-3 oraz znaczny wzrost liczby komórek apoptotycznych w tkance nerkowej39,40. Wyniki wykazały, że leczenie JWSJS odwróciło te zmiany, co sugeruje, że może osłabić apoptozę podocytów w warunkach cukrzycowych.
Dalsze badania nad potencjalnym mechanizmem działania JWSJS wykazały, że ma on wielocelowy i wielościeżkowy wpływ na DN. Skupiliśmy się na badaniu MAPK1, MAPK3 i EGFR, ponieważ miały one największą liczbę ścieżek wzbogacania. Szlak ERK, który bierze udział w różnych procesach fizjologicznych i patologicznych, takich jak wzrost komórek, proliferacja, różnicowanie, apoptoza i nieprawidłowe wydzielanie steroidów, jest niezbędnym szlakiem w szlaku transdukcji sygnału MAPK 13,41,42,43. Wywnioskowano, że JWSJS uratował apoptozę podocytów poprzez hamowanie szlaku sygnałowego EGFR/MAPK3/1.
Odkryliśmy również, że JWSJS może regulować ekspresję p-EGFR i p-MAPK3/1, co skutkuje znacznie podwyższonym poziomem Bcl-2, ale zauważalną regulacją w dół Bax. To z kolei prowadziło do zmniejszenia apoptozy komórek nerkowych. Podobne wyniki uzyskano w poprzednich badaniach. Na przykład Chen poinformował, że delecja EGFR w podocytach osłabiła nefropatię cukrzycową44. Niektórzy badacze odkryli, że szlak EGFR/ERK sprzyja proliferacji i różnicowaniu komórek nabłonka jelitowego świń9. Hamowanie EGFR może obniżać ekspresję TGF-β i BAX, poprawiając w ten sposób zwłóknienie nerek i apoptozę45. Odkrycia te sugerują, że JWSJS jest receptą tradycyjnej medycyny chińskiej, która odgrywa znaczącą rolę w terapii uzupełniającej DN poprzez hamowanie szlaku sygnałowego EGFR / MAPK3 / 1. Potrzebne są jednak dalsze badania, aby w pełni zrozumieć potencjalny mechanizm działania JWSJS w leczeniu DN.
Badanie to miało kilka ograniczeń. Po pierwsze, poleganie na modelach zwierzęcych może nie w pełni odtworzyć ludzką reakcję na JWSJS. Ponadto przewidywania farmakologiczne sieci, choć wnikliwe, wymagają dalszej walidacji za pomocą danych eksperymentalnych. Konieczne są dalsze badania kliniczne na ludziach w celu potwierdzenia wyników. Po drugie, chociaż farmakologia sieciowa jest użytecznym narzędziem do analizy zależności między lekiem a chorobą, wyniki należy interpretować z ostrożnością, ponieważ opierają się one na przewidywaniach, a nie na danych eksperymentalnych. Po trzecie, mechanizm działania JWSJS w leczeniu DN pozostaje niejasny, a badanie koncentrowało się jedynie na potencjalnych celach MAPK1, MAPK3 i EGFR.
Metody zastosowane w tym badaniu mogą być stosowane do innych preparatów tradycyjnej medycyny chińskiej, potencjalnie prowadząc do odkrycia nowych opcji terapeutycznych dla DN i innych złożonych chorób. Co więcej, podejście to stanowi podstawę do integracji tradycyjnej i nowoczesnej medycyny w przyszłych badaniach farmakologicznych. Potrzebne są dalsze badania, aby w pełni wyjaśnić mechanizmy molekularne leżące u podstaw efektów terapeutycznych JWSJS. Wreszcie, w badaniu nie badano potencjalnych skutków ubocznych ani toksyczności JWSJS, które są ważnymi czynnikami przy opracowywaniu każdego nowego leku. Potrzebne są dalsze badania, aby ocenić bezpieczeństwo JWSJS i zapewnić jego zastosowanie kliniczne.
Podsumowując, badanie to przede wszystkim bada potencjał terapeutyczny Jiawei Shengjiang San w nefropatii cukrzycowej, wykorzystując farmakologię sieciową, dokowanie molekularne i walidację in vivo na zwierzętach. Kładzie nacisk na aspekty proceduralne, koncentrując się na metodologii zastosowanej do zrozumienia interakcji między JWSJS a szlakiem sygnałowym EGFR/MAPK3/1 oraz tego, jak te interakcje potencjalnie zmniejszają apoptozę komórek nerkowych w DN.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez ogólny projekt Fundacji Nauk Przyrodniczych prowincji Hebei, Chiny (nr H2019423037).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2 razy; SYBR Green qPCR Master Mix | Servicebio, Wuhan, Chiny | G3320-05 | |
| 24-godzinna kwantyfikacja białka moczu (UTP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| 3,3'-diaminobenzydyna | Shanghai Huzheng Biotech, Chiny | 91-95-2 | |
| Automatyczny przyrząd do analizy biochemicznej | Hitachi, Japonia | 7170A | |
| Bezwodny etanol | Biosharp, Tianjin, Chiny | N/A | |
| BAX Przeciwciała pierwotne | Powinowactwo, USA | AF0120 | |
| Szczur BCL-2 Przeciwciała pierwszorzędowe | Powinowactwo, USA | AF6139 | |
| Szczur BX53 | mikroskop Olympus, Japonia | BX53 | |
| Substytut chloroformu | ECOTOP, Guangzhou, Chiny | ES-8522 | |
| Oprogramowanie Desmond | Nowy Jork, NY, USA | Wydanie 2019-1 | |
| Cyfrowa łaźnia wodna o stałej temperaturze | Instrument Changzhou Jintan Liangyou, Chiny | DK-8D | |
| EGFR Przeciwciała pierwotne | Affinity, USA | AF6043 | Rat |
| Embed-812 RESIN | Shell Chemical, USA | 14900 | |
| Stężenie glukozy we krwi na czczo (FBG) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| Analizator etykiet enzymów o pełnej długości fali typu FC | Multiskan; Thermo, Stany Zjednoczone | Nie dotyczy | |
| GAPDH Przeciwciała pierwszorzędowe | Powinowactwo, USA | AF7021 | |
| Szczurze glikowane białko surowicy (GSP) | Instytut Inżynierii Biologicznej Nanjing Jiancheng | Nie dotyczy | |
| Transmisyjnego mikroskopu elektronowego | Hitachi, Japonia | H-7650 | |
| Roztwór do barwienia hematykaliny/eozyny (HE) | Servicebio, Stany Zjednoczone | G1003 | |
| Image-Pro Plus | MEDIA CYBERNETYKA, USA | N/A | |
| Przyrząd do amplifikacji PCR w czasie rzeczywistym Applied | Biosystems, USA | iQ5 | |
| Irbesartan tabletki | Hangzhou Sanofi Pharmaceuticals | N/A | |
| Isopropanol | Biosharp, Tianjin, Chiny | N/A | |
| Granulki JWSJS | Guangdong Yifang Pharmaceutical | N/A | |
| Kodak Image Station System obrazowania 2000 MM | Kodak, USA | IS2000 | |
| Cholesterol o niskiej gęstości (LDL-C) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| MAPK3/1Przeciwciała pierwszorzędowe | Affinity, USA | AF0155 | |
| Wirówka medyczna dla szczurów | Rozwój przyrządów laboratoryjnych Hunan Xiangyi, Chiny | TGL-16K | |
| Mini system transferu trans-blot | Bio-Rad, USA | N/A | |
| Mini-PROTEAN system elektroforezy | Bio-Rad, USA | N/A | |
| Spektrofotometr NanoVue Plus | Healthcare Bio-Sciences AB, Szwecja | 111765 | |
| p-EGFR Przeciwciała pierwotne | Powinowactwo, USA | AF3044 | |
| Szczur Roztwór do barwienia kwasem okresowym Schiffa (PAS) | Servicebio, USA | G1008 | |
| p-MAPK3/1 Przeciwciała pierwszorzędowe | Powinowactwo, USA | AF1015 | |
| Szczur Przeciwciała drugorzędowe | Santa Cruz, Stany Zjednoczone | sc-2357 | |
| Streptozotocyna | Sigma, USA | S0130 | |
| Zestaw do syntezy pierwszej nici cDNA | SureScript GeneCopeia, USA | QP056T | |
| TriQuick Odczynnik | Solarbio, Pekin, Chiny | R1100 | |
| Ultra-czysty stół warsztatowy | Sprzęt do oczyszczania Suzhou, Chiny | SW-CJ-1F |
Bibliografia
- Viigimaa, M., Sachinidis, A., Toumpourleka, M., Koutsampasopoulos, K., Alliksoo, S., Titma, T. Macrovascular complications of Type 2 diabetes mellitus. Curr Vasc Pharmacol. 18 (2), 110-116 (2020).
- Umanath, K., Lewis, J. B. Update on diabetic nephropathy: Core Curriculum 2018. Am J Kidney Dis. 71 (6), 884-895 (2018).
- Han, W., et al. Huangkui capsule alleviates renal tubular epithelial-mesenchymal transition in diabetic nephropathy via inhibiting NLRP3 inflammasome activation and TLR4/NF-kappaB signaling. Phytomedicine. 57, 203-214 (2019).
- Giralt-Lopez, A., et al. Revisiting experimental models of diabetic nephropathy. Int J Mol Sci. 21 (10), 3587(2020).
- Lu, Z., Zhong, Y., Liu, W., Xiang, L., Deng, Y. the efficacy and mechanism of Chinese herbal medicine on diabetic kidney disease. J Diabetes Res. 2019, 2697672(2019).
- Niu, H., et al. The therapeutic mechanism of PuRenDan for the treatment of diabetic nephropathy: Network pharmacology and experimental verification. J Ethnopharmacol. 293, 115283(2022).
- Gao, F., Wang, Z., Yang, B., Tan, J. Mechanism of Jiawei Shengjiang San in the treatment of membranous nephropathy based on network pharmacology. Pharmacology and Clinics of Chinese Materia Medica. 37 (5), 132-138 (2021).
- Li, W., Xie, M. Analysis of composing and application rule in the evolution of Shengjiang San. Journal of Beijing University of Traditional Chinese Medicine. 44 (10), 894-898 (2021).
- Zhang, Y., et al. Mechanism of Jiawei Shengjiang powder in inhibiting renal inflammation and fibrosis in diabetic rats based on TLR4/NF-kappaB and Raf/MEK pathways. Pharmacology and Clinics of Chinese Materia Medica. 38 (5), 20-27 (2022).
- Zhao, L., et al. Pharmacodynamic mechanism of Yishen Tongluo Formula in treatment of diabetic kidney disease based on network pharmacology and verification of key regulation pathway. Journal of Beijing University of Traditional Chinese Medicine. 45 (8), 824-834 (2022).
- Zhang, J., Liang, R., Wang, L., Yang, B. Effects and mechanisms of Danshen-Shanzha herb-pair for atherosclerosis treatment using network pharmacology and experimental pharmacology. J Ethnopharmacol. 229, 104-114 (2019).
- Chen, L., et al. Network pharmacology-based strategy for predicting active ingredients and potential targets of Yangxinshi tablet for treating heart failure. J Ethnopharmacol. 219, 359-368 (2018).
- Zhu, M., Qin, Y. C., Gao, C. Q., Yan, H. C., Wang, X. Q. l-Glutamate drives porcine intestinal epithelial renewal by increasing stem cell activity via upregulation of the EGFR-ERK-mTORC1 pathway. Food Funct. 11 (3), 2714-2724 (2020).
- Ding, Z., et al. Systems pharmacology reveals the mechanism of activity of Ge-Gen-Qin-Lian decoction against LPS-induced acute lung injury: A novel strategy for exploring active components and effective mechanism of TCM formulae. Pharmacol Res. 156, 104759(2020).
- Pinzi, L., Rastelli, G. Molecular docking: Shifting paradigms in drug discovery. Int J Mol Sci. 20 (18), 4331(2019).
- Kilkenny, C., Browne, W. J., Cuthill, I. C., Emerson, M., Altman, D. G. Improving bioscience research reporting: the ARRIVE guidelines for reporting animal research. PLoS Biol. 8 (6), e1000412(2010).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guides for the Care and Use of Laboratory Animals. , National Academies Press (US). Washington (DC. (2011).
- Ru, J., et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 6, 13(2014).
- Xu, X., et al. A novel chemometric method for the prediction of human oral bioavailability. Int J Mol Sci. 13 (6), 6964-6982 (2012).
- Tao, W., et al. Network pharmacology-based prediction of the active ingredients and potential targets of Chinese herbal Radix Curcumae formula for application to cardiovascular disease. J Ethnopharmacol. 145 (1), 1-10 (2013).
- Traditional Chinese Medicine and Chemical Composition databases in Chemistry Database[DB/OL]. , Available from: http://www.organchem.csdb.cn (2021).
- Halladay, C. W., Trikalinos, T. A., Schmid, I. T., Schmid, C. H., Dahabreh, I. J. Using data sources beyond PubMed has a modest impact on the results of systematic reviews of therapeutic interventions. J Clin Epidemiol. 68 (9), 1076-1084 (2015).
- Daina, A., Michielin, O., Zoete, V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness and medicinal chemistry friendliness of small molecules. Sci Rep. 7, 42717(2017).
- UniProt, C. Reorganizing the protein space at the Universal Protein Resource (UniProt). Nucleic Acids Res. 40 (D1), D71-D75 (2012).
- Stelzer, G., et al. The GeneCards Suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1-33 (2016).
- Amberger, J. S., Hamosh, A. Searching Online Mendelian Inheritance in Man (OMIM): A knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 58, 1-12 (2017).
- Zhou, Y., et al. Therapeutic target database update 2022: facilitating drug discovery with enriched comparative data of targeted agents. Nucleic Acids Res. 50 (D1), D1398-D1407 (2022).
- Whirl-Carrillo, M., et al. Pharmacogenomics knowledge for personalized medicine. Clin Pharmacol Ther. 92 (4), 414-417 (2012).
- Law, V., et al. DrugBank 4.0: shedding new light on drug metabolism. Nucleic Acids Res. 42 (D1), D1091-D1097 (2014).
- Shannon, P., et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Xu, J., et al. Pharmacological mechanisms underlying the neuroprotective effects of Alpinia oxyphylla Miq. on Alzheimer's disease. Int J Mol Sci. 21 (6), 2071(2020).
- Tang, Y., Li, M., Wang, J., Pan, Y., Wu, F. X. CytoNCA: a cytoscape plugin for centrality analysis and evaluation of protein interaction networks. Biosystems. 127, 67-72 (2015).
- Yu, G., Wang, L. G., Han, Y., He, Q. Y. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 16 (5), 284-287 (2012).
- Trott, O., Olson, A. J. AutoDock Vina: improving the speed and accuracy of docking with a new scoring function, efficient optimization, and multithreading. J Comput Chem. 31 (2), 455-461 (2010).
- Yang, X., et al. Rational selection of the 3D structure of biomacromolecules for molecular docking studies on the mechanism of endocrine disruptor action. Chem Res Toxicol. 29 (9), 1565-1570 (2016).
- Diller, D. J., Merz, K. M. throughput docking for library design and library prioritization. Proteins. 43 (2), 113-124 (2001).
- Hsin, K. Y., Ghosh, S., Kitano, H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology. PLoS One. 8 (12), e83922(2013).
- Godse, N. R., et al. TMEM16A/ANO1 inhibits apoptosis via downregulation of Bim expression. Clin Cancer Res. 23 (23), 7324-7332 (2017).
- Ilhan, I., et al. Irbesartan decreased mitochondrial stress-related apoptosis in cisplatin-induced acute kidney injury via regulating BCL-2/BAX signaling. Mol Biol Rep. 49 (7), 6125-6133 (2022).
- Lee, M., et al. Protective effect of hydroxysafflor yellow a on nephropathy by attenuating oxidative stress and inhibiting apoptosis in induced Type 2 diabetes in rat. Oxid Med Cell Longev. 2020, 7805393(2020).
- Schlessinger, J. Ligand-induced, receptor-mediated dimerization and activation of EGF receptor. Cell. 110 (6), 669-672 (2002).
- Gu, X., Chu, L., Kang, Y. Angiogenic factor-based signature predicts prognosis and immunotherapy response in non-small-cell lung cancer. Front Genet. 13, 894024(2022).
- Chu, L., et al. Age-related changes in endogenous glucocorticoids, gonadal steroids, endocannabinoids and their ratios in plasma and hair from the male C57BL/6 mice. Gen Comp Endocrinol. 301, 113651(2021).
- Chen, J., Chen, J. K., Harris, R. C. EGF receptor deletion in podocytes attenuates diabetic nephropathy. J Am Soc Nephrol. 26 (5), 1115-1125 (2015).
- Skibba, M., et al. New EGFR inhibitor, 453, prevents renal fibrosis in angiotensin II-stimulated mice. Eur J Pharmacol. 789, 421-430 (2016).
Przedruki i uprawnienia
