Tutaj prezentujemy protokoły, które umożliwiają izolację komórek zrębu z mysich kości, szpiku kostnego, grasicy i ludzkiej tkanki grasicy, kompatybilne z monokomórkową multiomiką.
Artykuł metodologiczny
Izolacja komórek zrębu z narządów krwiotwórczych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Sekwencjonowanie pojedynczych komórek umożliwiło mapowanie heterogenicznych populacji komórek w zrębie narządów krwiotwórczych. Metodologie te zapewniają soczewkę, przez którą można badać wcześniej nierozwiązaną heterogeniczność w stanie ustalonym, a także zmiany w reprezentacji typów komórek wywołane naprężeniami zewnętrznymi lub podczas starzenia. W tym miejscu przedstawiamy stopniowe protokoły izolacji wysokiej jakości populacji komórek zrębu z grasicy mysiej i ludzkiej, a także mysich kości i szpiku kostnego. Komórki wyizolowane za pomocą tych protokołów nadają się do generowania wysokiej jakości jednokomórkowych zestawów danych multiomicznych. Omówiono tutaj wpływ trawienia próbek, zubożenia linii krwiotwórczej, analizy/sortowania FACS oraz wpływ tych czynników na zgodność z sekwencjonowaniem pojedynczych komórek. Wraz z przykładami profili FACS wskazujących na udaną i nieefektywną dysocjację oraz wydajność komórek zrębu w dalszej części procesu w analizie po sekwencjonowaniu, przedstawiono rozpoznawalne wskazówki dla użytkowników. Uwzględnienie specyficznych wymagań komórek zrębu ma kluczowe znaczenie dla uzyskania wysokiej jakości i powtarzalnych wyników, które mogą przyczynić się do poszerzenia wiedzy w tej dziedzinie.
Wprowadzenie
U zdrowego dorosłego produkcja de novo komórek krwi występuje w szpiku kostnym i grasicy. Komórki zrębu w tych miejscach są niezbędne do utrzymania hematopoezy, ale zrąb stanowi mniej niż 1% tkanki1,2,3,4. Uzyskanie czystych izolatów hematopoezy podtrzymującej zrąb stanowi zatem poważne wyzwanie, szczególnie w przypadku multiomiki jednokomórkowej, która wymaga celowego przetwarzania w celu uzyskania próbek o wysokiej jakości. Składniki różnych koktajli trawiennych mogą zakłócać niektóre etapy analizy multiomicznej5,6. Przedstawione tutaj protokoły szczegółowo opisują izolację szerokiej gamy komórek zrębu ze szpiku kostnego i tkanek grasicy.
Zaburzenia składników zrębu zarówno w szpiku kostnym, jak i grasicy powodują głębokie zakłócenia w rozwoju komórek krwi i mogą prowadzić do nowotworów złośliwych7,8,9. Hematopoeza podtrzymująca zrąb ulega uszkodzeniu w wyniku kondycjonowania cytotoksycznego i przeszczepu szpiku kostnego, co skutkuje zmniejszonym wydzielaniem cytokin i czynników wzrostu, które podtrzymują hematopoetyczne komórki macierzyste i progenitorowe (HSPC)2,10,11. Ponadto starzenie się wpływa na szpik kostny i komórki zrębu grasicy, prawdopodobnie przyczyniając się do starzenia się fenotypów krwiotwórczych. Grasica jest pierwszym narządem, który ulega rozległej inwolucji związanej z wiekiem. Tkanka tłuszczowa i zwłóknieniowa zaczynają zastępować zrąb podporowy limfocytów T już na początku okresu dojrzewania12,13. W szpiku kostnym zawartość adipocytów wzrasta wraz z wiekiem, a nisze naczyniowe i śródkostne ulegają znacznej przebudowie14,15,16.
Aby umożliwić badanie zrębu wspierającego hematopoezę w wielu stanach stresu oraz w przypadku grasicy zarówno tkanki ludzkiej, jak i mysjej, zoptymalizowaliśmy wcześniej opublikowane protokoły trawienia1,2,8,17,18. Protokoły te zapewniają wydajną i powtarzalną izolację komórek i są kompatybilne z sekwencjonowaniem RNA pojedynczej komórki (scRNAseq) i innymi rodzajami multiomiki.
Protokół
Wszystkie prace z tkankami ludzkimi zostały przeprowadzone po zatwierdzeniu przez Massachusetts General Hospital Internal Review Board (IRB). Wszystkie procedury na zwierzętach zostały przeprowadzone zgodnie z wytycznymi Massachusetts General Hospital Institutional Animal Care and Use Committee (IACUC). Do niniejszego badania wykorzystano myszy C57Bl/6 w wieku 8-10 tygodni, zarówno samce, jak i samice. Zwierzęta zostały pozyskane ze źródła komercyjnego (patrz tabela materiałów).
1. Przygotowanie tkanki grasicy mysiej
- Przygotuj następujące i roztwory.
- Pożywka 199 (M199) z 2% (v/v) płodową surowicą bydlęcą (FBS) (patrz tabela materiałów).
- Mysi koktajl dysocjacyjny: 0,5 WU/ml Liberase TM i 6,3 U/ml DNazy I w M199 + 2% FBS (patrz tabela materiałów).
- M199 z 2% (w/v) albuminą surowicy bydlęcej (BSA).
UWAGA: Pożywkę zawierającą FBS można przełączyć na BSA w celu poprawy jakości RNA.
- Wykonaj sekcję grasicy mysiej
- Poddaj mysz eutanazji przez uduszenie CO2 (zgodnie z instytucjonalnie zatwierdzonymi protokołami) i umieść ją na grzbiecie. Zwilż futro na klatce piersiowej, rozpylając 70% etanolu i przystąp do otwierania jamy klatki piersiowej.
- Ostrożnie wypreparuj grasicę, wykonując najpierw poprzeczne nacięcie tuż pod klatką piersiową nożyczkami chirurgicznymi. Wytnij żebra po obu stronach myszy aż do obojczyka. Następnie przetnij przeponę, aby można było zwolnić ścianę klatki piersiowej. Podnieś żebra za pomocą kleszczy, aby odsłonić klatkę piersiową.
- Grasica jest białym, dwuklapowym narządem, znajdującym się w górnej części jamy, tuż nad sercem. Przytrzymaj grasicę kleszczami i delikatnie przetnij tkankę łączną, która utrzymuje grasicę na miejscu. Umieść wypreparowaną tkankę grasicy w studzience 6-dołkowej płytki z M199 + 2% FBS na lodzie.
UWAGA: Podczas pracy z myszami starymi lub napromieniowanymi lub zmutowanymi szczepami z wadami grasicy, grasica może być tak mała, że do wiarygodnego wycięcia narządu wymagany jest mikroskop preparacyjny.
- Grasica jest białym, dwuklapowym narządem, znajdującym się w górnej części jamy, tuż nad sercem. Przytrzymaj grasicę kleszczami i delikatnie przetnij tkankę łączną, która utrzymuje grasicę na miejscu. Umieść wypreparowaną tkankę grasicy w studzience 6-dołkowej płytki z M199 + 2% FBS na lodzie.
- Za pomocą mikroskopu preparacyjnego usuń tkankę pozagrasiczą za pomocą kleszczy i nożyczek z mikrosprężynami.
- Przeprowadzić dysocjację enzymatyczną mysiej tkanki grasicy (30 min w odstępach co 10 min)
- Umieść oczyszczoną grasicę w nasadce probówki o pojemności 15 ml i drobno zmielić tkankę sterylnymi nożyczkami chirurgicznymi.
UWAGA: Rozdrobnienie tkanki w nasadce probówki, która ma być używana do trawienia, minimalizuje utratę tkanki w wyniku przenoszenia z jednego pojemnika do drugiego. Jest to bardzo ważne podczas pracy z myszami starymi lub kondycjonowanymi promieniowaniem lub zmutowanymi szczepami z wadami grasicy. Mały rozmiar grasicy w tych warunkach wymusza konieczność zmniejszenia strat materiału tam, gdzie to możliwe. - Dodaj 2 ml mysiego koktajlu dysocjacyjnego do probówki o pojemności 15 ml, przymocuj nakrętkę zawierającą kawałki grasicy i odwróć 5 razy, aby upewnić się, że tkanka zostanie ponownie zawieszona w koktajlu dysocjacyjnym.
- Aby zapobiec wyciekom, owiń nakrętkę rurki folią parafinową. Następnie umieścić probówkę poziomo w łaźni wodnej o temperaturze 37 °C z wstrząsem 250 obr./min. Inkubować przez 10 min.
UWAGA: Powodzenie protokołu trawienia zależy od inkubacji przeprowadzanej w temperaturze 37 °C i z mieszaniem. Opisany protokół został zoptymalizowany przy użyciu kąpieli wodnej z wytrząsaniem. Jeśli nie jest to możliwe, inne podejścia, które umożliwiają mieszanie w gorącym otoczeniu, mogą działać, ale zalecamy, aby protokół został najpierw zoptymalizowany pod kątem tych ustawień. - Umieść probówkę o pojemności 15 ml w stojaku i pozwól kawałkom chusteczki osiąść. Ostrożnie usunąć sklarowany osad i przepuścić go przez sitko o wielkości 70 μm do lodowatej probówki o pojemności 50 ml.
- Powtórz kroki 2-4 dwa razy, w sumie 3 rundy trawienia. Tkanka powinna być mniej więcej całkowicie zdysocjowana pod koniec ostatniej inkubacji.
- Do zebranej zawiesiny komórkowej dodać 20 ml M199 + 2% FBS. Wirować przy 500 x g przez 5 minut w temperaturze 4 °C.
- Usunąć supernatant i ponownie zawiesić w odpowiedniej objętości M199 + 2% FBS. Następnie przejdź do zliczania komórek.
UWAGA: Objętość M199 + 2% FBS do ponownego zawieszenia zależy od stanu grasicy. W przypadku myszy w wieku 6-10 tygodni zalecamy ponowne zawieszenie tkanki w 3-4 ml M199 + 2% FBS. Jednak w przypadku eksperymentów z użyciem starych lub uwarunkowanych promieniowaniem tkanek lub zmutowanych szczepów z wadami grasicy, mały rozmiar grasicy będzie wymagał mniejszych objętości w zakresie od 0,1 do 1 ml. - Policz komórki, rozcieńczając zawiesinę komórek w stosunku 1:2 w 0,4% (m/v) roztworze błękitu trypanowego. Załaduj komórki do hemocytometru i policz pod mikroskopem jasnego pola. Policz niebarwione komórki, aby określić liczbę żywych komórek na mililitr i liczbę komórek zabarwionych na niebiesko, aby ocenić żywotność próbki.
- Umieść oczyszczoną grasicę w nasadce probówki o pojemności 15 ml i drobno zmielić tkankę sterylnymi nożyczkami chirurgicznymi.
- Wykonaj aktywowane fluorescencją sortowanie komórek mysiego zrębu grasicy
- Wirować komórki w temperaturze 500 x g przez 5 minut w temperaturze 4 °C. Ponownie zawiesić komórki w stężeniu 5 x 10 7 komórek/ml w M199 + 2% FBS uzupełnionym inhibitorem RNazy Protector 25 U/ml (patrz tabela materiałów).
- Dodać mysi blok Fc (patrz tabela materiałów) o stężeniu 2 μg/ml i inkubować przez 10 minut w temperaturze 4 °C.
- Wybarwić komórki następującymi przeciwciałami: CD45-PE/Cy7 (4 μg/ml), Ter119-PE (4 μg/ml), CD31-BUV737 (2 μg/ml) i EpCam-BV711 (2 μg/ml) (patrz tabela materiałów) przez 30 min w temperaturze 4 °C.
- Przemyć próbki w M199 + 2% powierzchni ciała i odwirowywać w temperaturze 500 x g przez 5 minut w temperaturze 4 °C.
- Usunąć supernatant i ponownie zawiesić komórki w M199 + 2% BSA zawierającym barwnik żywotności, taki jak DAPI (0,5 μg/ml) lub 7-AAD (1 μg/ml) (patrz tabela materiałów). Przejdź do izolacji FACS komórek zrębu grasicy zgodnie z ustalonymi protokołami19.
2. Przygotowanie ludzkiej tkanki grasicy
.- Przygotuj następujące i roztwory.
- Średni 199 (M199) z 2% (v/v) FBS.
- M199 z 1,5% (w/v) BSA.
- Ludzki koktajl dysocjacyjny: 1 mg / ml Kolagenaza IV i 2 mg / ml Dyspaza i 6,3 U / ml DNazy I w M199 + 1,5% BSA (patrz tabela materiałów).
UWAGA: Ostatnim etapem trawienia w przygotowaniu ludzkiej tkanki grasicy jest trypsyna. Dlatego ważne jest, aby wszystkie etapy do tego momentu były przeprowadzane w buforze zawierającym BSA, ponieważ FBS będzie hamować aktywność trypsyny.
- Wykonaj izolację tkanki grasicy człowieka
- Umieść ludzką grasicę (pobraną zgodnie z wcześniej opublikowaną metodą19) w odpowiedniej objętości M199 + 1,5% BSA i przechowuj ją na lodzie do czasu rozpoczęcia przetwarzania.
- Podczas pracy z ludzką tkanką grasiczą należy obchodzić się z nią tak, jakby była potencjalnie zakaźna, wykonując pracę w kapturze do hodowli tkanek i stosując standardowe środki ostrożności zgodnie z wytycznymi CDC20.
- Umieść chusteczkę na 10-centymetrowej szalce Petriego z 10 ml lodowatego M199 + 1,5% BSA. Za pomocą sterylnych kleszczy i nożyczek ostrożnie usuń pozagrasicze tłuszcze lub tkanki, które zostały uszkodzone podczas ekstrakcji narządu.
- Za pomocą nożyczek chirurgicznych i kleszczy pokrój grasicę w kostkę o długości 1 cm3 i użyj tłoka strzykawki o pojemności 10 ml, aby delikatnie docisnąć kawałki. Spowoduje to uwolnienie części rozwijających się tymocytów, zmniejszając w ten sposób objętość tkanki do strawienia.
UWAGA: Uwolnioną frakcję krwiotwórczą należy zachować w przypadku konieczności przeprowadzenia kolejnej analizy etapów rozwoju tymocytów. Nie należy jednak łączyć tej frakcji z frakcją komórek zrębu powstającą podczas trawienia enzymatycznego. Zaobserwowano, że połączenie tych dwóch frakcji znacznie zwiększa ryzyko tworzenia się zatorów w zawiesinie komórek, co ostatecznie zmniejsza wydajność komórek zrębu. Niewiele komórek zrębu jest traconych podczas delikatnego kruszenia tkanki.
- Przeprowadzić dysocjację enzymatyczną ludzkiej tkanki grasicy (90 min w odstępach co 30 min)
- Przenieść około 5 mg lekko rozdrobnionych kawałków tkanki grasiczej do nakrętki stożkowej probówki o pojemności 50 ml. Następnie drobno przeciąć tkankę za pomocą sterylnych nożyczek chirurgicznych.
- Odpipetować 8 ml ludzkiego koktajlu dysocjacyjnego do probówki o pojemności 50 ml, założyć nakrętkę zawierającą zmieloną ludzką tkankę grasicy, a następnie delikatnie odwrócić probówkę 5 razy, aby upewnić się, że cała tkanka została zmieszana z koktajlem enzymatycznym.
- Zabezpiecz nakrętkę rurki folią parafinową, aby zapobiec wyciekom. Inkubować probówkę poziomo w wytrząsającej (250 obr./min) łaźni wodnej w temperaturze 37 °C przez 30 min.
- Umieścić probówkę o pojemności 50 ml w stojaku i pozwolić, aby kawałki ludzkiej tkanki grasicy osiadły, a następnie wyjąć supernatant i przelać go przez sitko o pojemności 70 μm do nowej probówki o pojemności 50 ml umieszczonej na lodzie.
- Powtórz kroki 2.3.2-1.3.4, aby uzyskać w sumie dwie rundy trawienia za pomocą ludzkiego koktajlu dysocjacyjnego.
- Po zakończeniu drugiej rundy trawienia dodaj dodatkowe 8 ml ludzkiego koktajlu dysocjacyjnego do pozostałej tkanki. Następnie również odpipetować 2 ml 0,25% trypsyny do probówki dysocjacyjnej tkanek. Inkubować przez dodatkowe 30 minut w temperaturze 37 °C, wytrząsając z prędkością 250 obr./min.
UWAGA: Absolutnie konieczne jest, aby czas trawienia tkanek ludzkich wynosił co najmniej 90 minut, ponieważ krótsze czasy inkubacji prowadzą do drastycznego zmniejszenia wydajności komórek zrębu. - Po zakończeniu ostatniego etapu inkubacji zawiesinę komórek i pozostałe fragmenty tkanek należy połączyć z supernatantem zebranym w poprzednich etapach, przepuszczając przez sitko do komórek o wielkości 70 μm. Dodaj 3 ml FBS do próbki, aby przerwać reakcję trypsyny i umieść na lodzie.
- Przejdź do liczenia komórek zgodnie z opisem w kroku 1.3.
- Wykonaj aktywowane fluorescencją sortowanie komórek ludzkiego zrębu grasicy
- Odkręć zawiesinę komórkową ludzkiej grasicy i ponownie zawieś w stężeniu 5 x 10⁷ komórek/ml w M199 + 2% FBS uzupełnionym inhibitorem RNazy Protector 25 U/mL.
- Inkubować z ludzkim blokiem Fc (5 μg/ml) (patrz tabela materiałów) przez 10 minut w temperaturze 4 °C.
- Wybarwić próbkę przez 30 minut w temperaturze 4 °C CD45-BV711 (2,5 μg/ml), CD235a-BV711 (2,5 μg/ml), Lineage-cocktail-FITC (3,76 μg/ml), CD66b-FITC (próbka 20 μL/100 μL), CD8-APC/Cy7 (próbka 5 μL/100 μL), CD4-BV605 (próbka 5 μL/100 μL), CD31-PE/Dazzle594 (10 μg/ml), i EpCam-BV421 (2,5 μg/ml) (patrz tabela materiałów).
- Przemyć próbki w M199 + 1,5% BSA i wirować w temperaturze 500 x g przez 5 minut w temperaturze 4 °C.
- Usunąć supernatant i ponownie zawiesić komórki w M199 + 1,5% BSA zawierającym barwnik żywotności, taki jak DAPI (0,5 μg/ml) lub 7-AAD (1 μg/ml). Przejdź do izolacji FACS komórek zrębu grasicy zgodnie z ustalonymi protokołami19.
3. Przygotowanie mysiej kości i tkanki szpiku kostnego
UWAGA: Frakcje kości i szpiku kostnego są przygotowywane w dwóch oddzielnych reakcjach trawienia, aby uzyskać maksymalną czystość komórek zrębu i optymalną dysocjację tkanek. Próbki można łączyć po etapach mineralizacji w celu sortowania jako jeden przedział zrębu.
- Przygotuj następujące i roztwory.
- M199 z 2% (v/v) FBS.
- Mysi koktajl dysocjacyjny B&M (kości i szpik): Stemxyme 2 mg/ml, Dypaza 1 mg/ml i 10 U/ml DNazy I (patrz tabela materiałów) w M199 +2% FBS.
UWAGA: Przygotuj świeżą mieszankę dysocjacyjną B&M i trzymaj ją na lodzie do momentu użycia. - M199 z 0,5% (w/v) BSA.
- Sól fizjologiczna buforowana fosforanami (PBS) o powierzchni ciała 0,5% (w/v).
- M199 z 2% (w/v) albuminą surowicy bydlęcej (BSA) i 2 mM EDTA.
UWAGA: Pożywkę zawierającą FBS można przełączyć na BSA w celu poprawy jakości RNA.
- Wykonaj separację szpiku kostnego myszy
- Poddaj mysz eutanazji przez uduszenie CO2 (zgodnie z instytucjonalnie zatwierdzonymi protokołami). Spryskaj 70% etanolem, aby zwilżyć futro.
- Ostrożnie usuń kość udową, piszczelową, miednicę i kość ramienną z każdej strony i umieść je w studzience zawierającej M199 + 2% FBS na lodzie21,22.
- Usuń całą tkankę mięśniową, więzadłową i chrzęstną za pomocą chusteczek do tkanek, aby zminimalizować uszkodzenie kości i zachować warstwę okostnej. Umieść je w nowej studni z M199 + 2% FBS na lodzie.
- Użyj skalpela i przetnij płytki wzrostowe kości długich, aby usunąć nasadę i umieść ją w 10 cm naczyniu z M199 + 2% FBS na lodzie.
- Wypłucz szpik kostny z kości, aż stanie się bladobiały. Za pomocą igły 28 G i strzykawki o pojemności 10 ml wypełnionej 10 ml M199 + 2% FBS przepłukać szpik do 15 ml probówki na lodzie. Umieść zaczerwienioną kość w 10 cm naczyniu z nasadą.
UWAGA: Całkowite przepłukanie szpiku kostnego w celu całkowitego oddzielenia tkanek spowoduje lepsze przygotowanie próbki.
- Przeprowadzić dysocjację enzymatyczną tkanki szpiku kostnego myszy (łącznie 30 minut w odstępach co 10 minut)
- Pozostaw probówkę o pojemności 15 ml stojącą pionowo na lodzie, aż szpik opadnie na dno probówki. Powoli usunąć 10 ml M199 + 2% FBS za pomocą pipetowania.
- Dodaj 4 ml koktajlu dysocjacyjnego B&M do probówki o pojemności 15 ml i umieść go w łaźni wodnej o temperaturze 37 °C (bez wstrząsania) na 10 minut.
- Po 5 minutach odwróć rurkę trzy razy i umieść ją z powrotem w łaźni wodnej.
- Po pierwszych 10 minutach upewnij się, że osad znajduje się na dnie i zbierz supernatant podczas filtrowania przez sitko komórkowe o średnicy 70 μm do lodowatej probówki o pojemności 50 ml. Dodaj 2 ml świeżego koktajlu dysocjacyjnego B&M do pozostałego granulatu BM i umieść go z powrotem w łaźni wodnej.
- Oddzielić pozostałe fragmenty szpiku kostnego przez energiczne pipetowanie za pomocą pipety o pojemności 1 ml. Zbierz całą powstałą zawiesinę komórek w tej samej probówce, co w poprzednich krokach. Dodać 20 ml M199 + 0,5% BSA + 2 mM EDTA do zebranej zawiesiny komórek.
UWAGA: W kroku 3.3.5 bufor dodany po końcowej strawionej próbce zawiera EDTA, aby pomóc w hamowaniu dalszej aktywności enzymatycznej.
- Wykonaj zubożenie komórek krwiotwórczych w mysiej tkance szpiku kostnego.
- Odwirować komórki przy 500 x g przez 5 minut w temperaturze 4 °C. Zawiesić w 500 μl PBS + 0,5% BSA z przeciwciałami biotyny (5 mg/ml) skierowanymi przeciwko CD45, Ter119, CD11b, Gr1, B220 i CD3 (patrz tabela materiałów). Przenieść do probówki z okrągłym dnem z nakrętką.
- Inkubować na wytrząsarce orbitalnej przez 10 minut w temperaturze pokojowej w ciemności.
- Dokładnie wymieszaj kulki magnetyczne i dodaj 25 μl kulek magnetycznych do probówki.
- Inkubować na wytrząsarce orbitalnej przez 5 minut w temperaturze pokojowej w ciemności.
- Umieść probówkę w pasującym magnesie na 2-3 minuty i zbierz supernatant w świeżej probówce.
UWAGA: Po tym kroku szpik kostny może być połączony lub oddzielony od frakcji kostnej. Jeśli zubożenie linii zakończy się sukcesem, powstała zawiesina komórek powinna być pozbawiona krwinek czerwonych.
- Wykonaj enzymatyczną dysocjację mysiej tkanki kostnej.
- Połam kości na mniejsze kawałki w 10-centymetrowym naczyniu za pomocą płaskiej nakrętki probówki o pojemności 50 ml. Przefiltrować supernatant przez sitko o średnicy 70 μm, aby wyizolować fragmenty kości wewnątrz filtra.
UWAGA: Alternatywnie do fragmentacji kości można użyć moździerza i tłuczka. Ta opcja ma jednak tendencję do generowania większej ilości zanieczyszczeń i mniejszej żywotności komórek zrębu, gdy kość jest szlifowana, a nie łamana. Komórki zrębu są nadal przyczepione do kości i w kości, a supernatant zawierający komórki krwiotwórcze należy wyrzucić. - Użyj nożyczek, aby przeciąć fragmenty kości w sitku do komórek. Zwiększy to powierzchnię w celu bardziej efektywnej dysocjacji enzymatycznej. Umyj kość 5 ml M199 + 2% FBS.
- Umieść frakcję kostną w 5 ml mysiej dysocjacji B&M (patrz tabela materiałów) w nowej probówce o pojemności 50 ml.
- Aby zapobiec wyciekom, owiń nakrętkę rurki folią parafinową. Następnie umieścić probówkę poziomo w łaźni wodnej o temperaturze 37 °C z prędkością 120 obr./min, wstrząsając przez 30 minut.
- Po roztrawieniu dodać 25 ml M199 + 0,5% BSA + 2 mM EDTA i przefiltrować supernatant zawierający komórki zrębu przez sitko komórkowe o wielkości 70 μm do lodowatej probówki o pojemności 50 ml.
UWAGA: Sprawdź, czy powstałe fragmenty kości zostały widocznie zmniejszone przez trawienie. W kroku 3.5.5 bufor dodany po końcowej strawionej próbce zawiera EDTA, aby pomóc w hamowaniu dalszej aktywności enzymatycznej.
- Połam kości na mniejsze kawałki w 10-centymetrowym naczyniu za pomocą płaskiej nakrętki probówki o pojemności 50 ml. Przefiltrować supernatant przez sitko o średnicy 70 μm, aby wyizolować fragmenty kości wewnątrz filtra.
- Wykonaj aktywowane fluorescencją sortowanie komórek mysiej kości i zrębu szpiku kostnego.
- Wirować komórki w temperaturze 500 x g przez 5 minut w temperaturze 4 °C.
- Zawiesić w mysim bloku Fc o stężeniu 10 μg/ml w PBS + 0,5% BSA + 2 mM EDTA i inkubować przez 10 minut w temperaturze 4 °C.
- Wybarwić komórki (do 10 milionów komórek/100 μl całkowitej objętości barwienia) następującymi przeciwciałami: CD45-PE/Cy7 (1 μg/ml), Ter119-PE/Cy7 (1 μg/ml), CD31-BV421 (0,66 μg/ml), CD140a-APC (2 μg/ml), Sca1-AF700 (0,66 μg/ml), CD51-PE (2 μg/ml), CD105-PE/dazzle (2 μg/ml) (patrz tabela materiałów).
- Pozostawić Calcein-AM do zrównoważenia do temperatury pokojowej i ponownie zawiesić w 50 μl DMSO. Przygotuj świeże do każdego użycia. Przechowywać w temperaturze pokojowej po ponownym zamieszaniu. Wstępnie rozcieńczyć kalceinę w PBS (0,1 mg/ml) przed dodaniem do próbki (20 μg/ml) już ponownie zawieszonej w koktajlu barwiącym przeciwciała i inkubować przez 20-30 minut w temperaturze 4 °C w ciemności.
- Przemyć próbki w PBS + 0,5% BSA + 2 mM EDTA i odwirować przy 500 x g przez 5 minut w temperaturze 4 °C.
- Usunąć supernatant i ponownie zawiesić komórki w PBS + 0,5% BSA + 2 mM EDTA. Przejdź do izolacji komórek zrębu kości i szpiku kostnego metodą FACS zgodnie z ustalonymi protokołami19.
Wyniki
Niniejsze protokoły pozwalają na uzyskanie powtarzalnych frakcji komórek zrębowych z grasicy i szpiku kostnego, odpowiednich do analizy cytometrycznej przepływowej, a także do wieloomicznych analiz pojedynczych komórek, takich jak sekwencjonowanie scRNA. Tkanka grasicy mysiej ulega znacznej przebudowie w odpowiedzi na stresory, takie jak kondycjonowanie cytotoksyczne poprzedzające transplantację szpiku kostnego lub naturalny proces starzenia. W konsekwencji komórkowość grasicy jest drastycznie zredukowana w obu tych przypadkach (Rycina 1A). Podczas gdy grasica 8-tygodniowej myszy typu dzikiego zawiera około 100 milionów komórek, w przypadku myszy 2-letniej można spodziewać się połowy tej liczby, a w grasicy 4 dni po napromieniowaniu i transplantacji szpiku kostnego liczba ta może być tak niska jak 5,00,000 komórek (Rycina 1A).
Warunkowanie cytotoksyczne będzie preferencyjnie usuwać komórki krwiotwórcze, przez co komponentia zrębową zostanie proporcjonalnie wzbogacona (Rysunek 1B). Jednak ogólnie niska komórkowość sprawi, że izolacja wystarczającej liczby komórek zrębu grasicy będzie wyzwaniem. Może zatem konieczne być łączenie materiału od zwierząt w celu uzyskania liczby komórek kompatybilnej z późniejszymi zastosowaniami multiomicznymi oraz w celu zminimalizowania strat materiału wszędzie tam, gdzie jest to możliwe. Aby przeprowadzić analizy multiomiczne komórek zrębu grasicy, zastosowanie fluorescencyjnego sortowania komórek (FACS) żywych, pojedynczych komórek CD45-Ter119- (Rysunek 1C) zapewni wyizolowanie wystarczającej liczby komórek w większości warunków stresowych.
Aby zachować heterogeniczność komponentu zrębu, zazwyczaj nie przeprowadzamy sortowania na podstawie pojedynczego pozytywnego markera zrębu, lecz wykluczamy komórki hematopoetyczne. W celach analitycznych nadal zaleca się uwzględnienie pozytywnych markerów komórek zrębu, aby upewnić się, że uzyskano prawidłową dysocjację tkanki. Jednakże izolacja metodą FACS jest niedoskonała i jak ustalono za pomocą scRNAseq, 30%-50% posortowanych komórek będzie pochodzenia hematopoetycznego (Rysunek 1D,E). Można to poprawić poprzez magnetyczne usuwanie komórek CD45+ przed FACS; nie jest to jednak zalecane w przypadku zmniejszonej komórkowości grasicy (Rysunek 1A), ponieważ strata materiału wynikająca z dodatkowej obróbki związanej z usuwaniem magnetycznym prowadzi do zbyt niskiej wydajności uzyskania zrębu dla dalszych zastosowań.
W przypadku izolacji zrębu grasicy człowieka najkrytyczniejszym etapem jest trawienie enzymatyczne. Jeśli proces dysocjacji zostanie przeprowadzony zbyt szybko, całkowita wydajność komórek zrębu, a także reprezentacja podtypów tych komórek, ulegną znacznemu zmniejszeniu (Ryc. 2A). Zaleca się również zawsze uwzględniać markery śródbłonka i nabłonka grasicy, aby upewnić się, że trawienie tkanki było optymalne, ponieważ samo wyznaczanie bramkowania ujemnego dla markerów hematopoetycznych nie będzie wystarczające do oceny rzeczywistego uwolnienia komórek zrębu. Przykładowo na Ryc. 2A widać, że odsetek komórek ujemnych dla markerów hematopoetycznych jest wyższy w próbce trawionej przez 30 min w porównaniu z próbką inkubowaną przez 90 min. Jednak, jak widać w kolejnym bramkowaniu, wydajność komórek śródbłonka i nabłonka jest bardzo niska w przypadku krótszego protokołu trawienia (Ryc. 2A).
W celu izolacji ludzkich komórek zrębu grasicy metodą FACS do zastosowań multiomicznych, w celu poprawy wzbogacenia frakcji komórek zrębu, zaleca się barwienie koktajlem przeciwciał przeciwko liniom krwiotwórczym oraz przeciwciałami anty-CD4 i anty-CD8, oprócz pan-hematopoetycznego markera CD45 oraz markera erytroidalnego CD235a (Ryc. 2B). Zatem dla analizy multiomicznej ludzkiego zrębu grasicy należy wyizolować metodą FACS żywe, pojedyncze komórki CD45-CD235a-Lineage-CD4-CD8- (Ryc. 2B). Jak zaobserwowano w przypadku scRNAseq próbek mysich, prowadzi to nadal do zanieczyszczenia w zakresie 30%-50% komórkami krwiotwórczymi, ale wciąż zapewnia dopuszczalną rozdzielczość komponentu zrębu ludzkiej grasicy (Ryc. 2C,D).
W przypadku kości i stromy szpiku kostnego (BM) zastosowano tę samą strategię co dla tkanki grasicy; komórki stromy izoluje się poprzez bramkowanie komórek negatywnych pod kątem markerów hematopoetycznych, a dodatkowe markery komórek stromy służą jako kontrole trawienia (Rycina 3). Dysocjacja tkanki zmineralizowanej, takiej jak kość, prowadzi do znacznego nagromadzenia debris. Dodanie kalceiny jako barwnika żywotności pozwala na wykluczenie większości tych zanieczyszczeń, które w przeciwnym razie sztucznie zawyżają liczbę sortowanych komórek i obniżają częstotliwość populacji w bramce (Rycina 3). Zilustrowano to na wykresach FACS, porównując bramkowanie wszystkich komórek z bramkowaniem wyłącznie populacji Calcein+ (Rycina 3). Podobnie jak w przypadku ludzkich stromalnych komórek grasicy, odsetek komórek negatywnych pod kątem markerów hematopoetycznych nie jest wiarygodnym wskaźnikiem wydajności dysocjacji tkanki kostnej i szpiku kostnego (Rycina 3). Chociaż bramka CD45-Ter119- może zawierać dużą liczbę komórek w próbce, w której etap trawienia nie powiódł się, dalsza analiza typowych markerów komórek stromy kości i szpiku kostnego, takich jak CD31, CD140a i CD51, wyraźnie wykazuje niską wydajność uwalniania stromy (Rycina 3 i Rycina 4).
Do izolacji komórek macierzystych szpiku kostnego i kości myszy metodą FACS sugeruje się zastosowanie strategii bramkowania przedstawionej w Rycina 3gdzie sortujemy wyłącznie komórki CD45-Ter119-Calcein+, monitorując jednocześnie właściwości rozproszenia światła w przód (forward scatter) i w bok (side scatter) oraz ekspresję markerów komórek zrębu w sortowanej populacji, aby zapewnić optymalny przebieg trawienia (Rycina 3A). Połączenie magnetycznego usuwania komórek linii hematopoetycznych z szpiku kostnego przed FACS oraz sortowania zgodnie z przedstawionymi bramkami pozwala na sekwencjonowanie pojedynczych komórek, które są >90% zręb. Przykład takiego przebiegu scRNA-seq (Rycina 5A,B) ilustruje to niskie zanieczyszczenie hematopoetyczne po adnotacji analizowanych komórek na podstawie transkryptomu (przykłady genów markerów hematopoetycznych Rysunek 5C). Stoi to w jaskrawym kontraście do preparatów stropalnych grasicy, w których przed etapem sortowania nie przeprowadzono magnetycznej deplecji komórek ze względu na ograniczoną ilość materiału wyjściowego w tkance grasicy po transplantacji (Rysunek 1F).
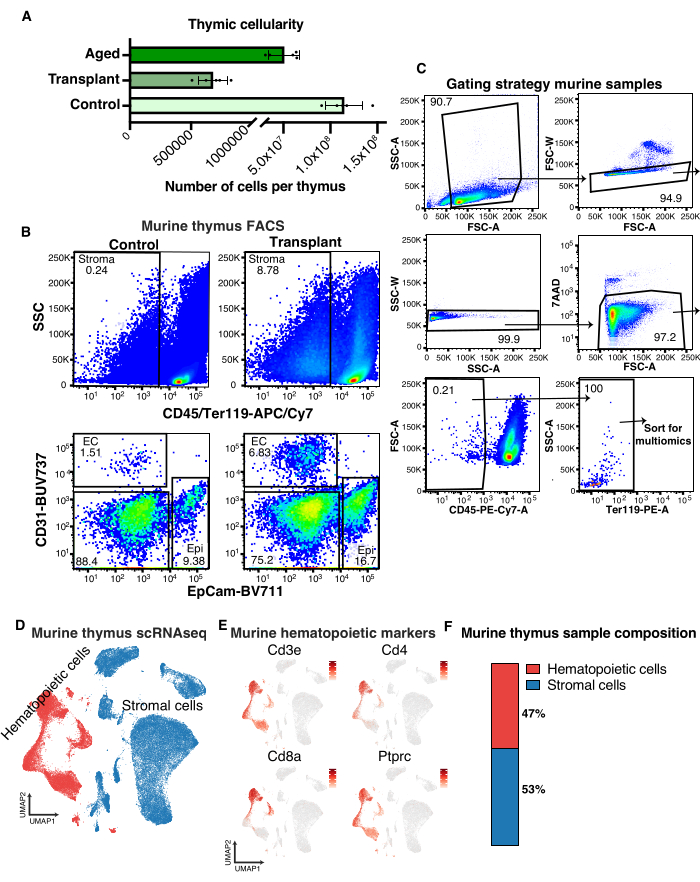
Rysunek 1: Analiza cytometryczna i sekwencjonowanie RNA pojedynczych komórek stromy grasicy mysiej. (A) Ilościowe oznaczenie liczby tymocytów u 8-tygodniowych myszy (Kontrolna), 8-tygodniowych myszy poddanych letalnemu napromieniowaniu i przeszczepowi 4 dni wcześniej (Przeszczep) oraz 2-letnich myszy (Wiekowa). (B) Reprezentatywne wykresy z cytometrii przepływowej wykazujące wzbogacenie podtypów komórek stromalnych 4 dni po letalnym napromieniowaniu i przeszczepie. (C) Strategia bramkowania w cytometrii przepływowej w celu sortowania stromy grasicy mysiej do wieloomicznej analizy pojedynczych komórek. (D) Wykres UMAP grasicy mysiej wskazujący stromę (niebieski) i komórki krwiotwórcze (czerwony). (E) Wykresy UMAP pokazujące mysie geny markerowe linii krwiotwórczej w próbkach grasicy. (F) Ilościowe oznaczenie mysich komórek stromalnych i krwiotwórczych w próbkach scRNAseq grasicy. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
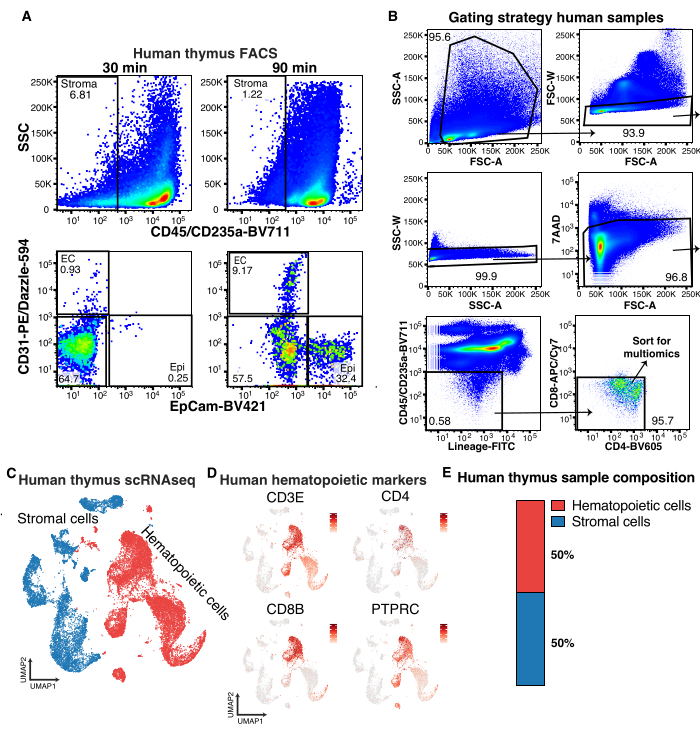
Rysunek 2: Analiza cytometryczna i sekwencjonowanie RNA pojedynczych komórek z obturacyjnego stroma ludzkiej grasicy. (A) Wykresy FACS przedstawiające reprezentatywne wyniki wpływu różnych czasów trawienia na uwalnianie populacji komórek zdomy ludzkiej grasicy. (B) Strategia bramkowania w cytometrii przepływowej w celu sortowania stroma ludzkiej grasicy do wielomicznej analizy pojedynczych komórek. (C) UMAP ludzkiej grasicy wskazujący stroma (kolor niebieski) i komórki krwiotwórcze (kolor czerwony). (D) Wykresy UMAP przedstawiające ludzkie geny markerowe linii krwiotwórczej w próbkach grasicy. (E) Ilościowe oznaczenie ludzkich komórek stromy i komórek krwiotwórczych w próbkach scRNAseq z grasicy. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rycina 3: Markery zrazowe szpiku kostnego myszy oraz Calcein pomagają w ocenie wydajności dysocjacji. (A) Reprezentatywna analiza cytometrii przepływowej CD45-Ter119- komórek zrazowych szpiku kostnego myszy z bramkowaniem na wszystkie komórki oraz komórki Calcein+. Następnie zastosowano bramkowanie CD31-, wykazując wyższą proporcję komórek CD140a+CD51+ przy wyborze komórek Calcein+. (B) Analiza cytometrii przepływowej reprezentatywna dla nieudanej digestii tkanki kostnej z brakiem komórek CD140a+CD51+. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
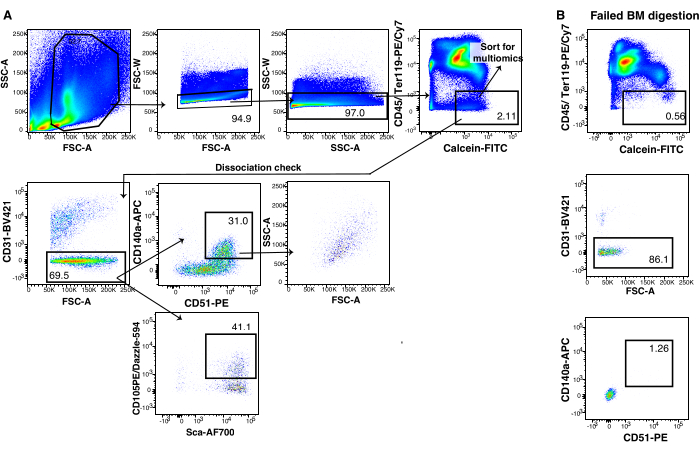
Rycina 4: Strategia bramkowania zrębu szpiku kostnego. (A) Strategia bramkowania w cytometrii przepływowej w celu sortowania zrębu szpiku kostnego myszy do wielkoskalowej analizy multiomicznej pojedynczych komórek. (B) Analiza cytometrii przepływowej reprezentująca nieudaną digestię szpiku kostnego z brakiem komórek CD140a+CD51+. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
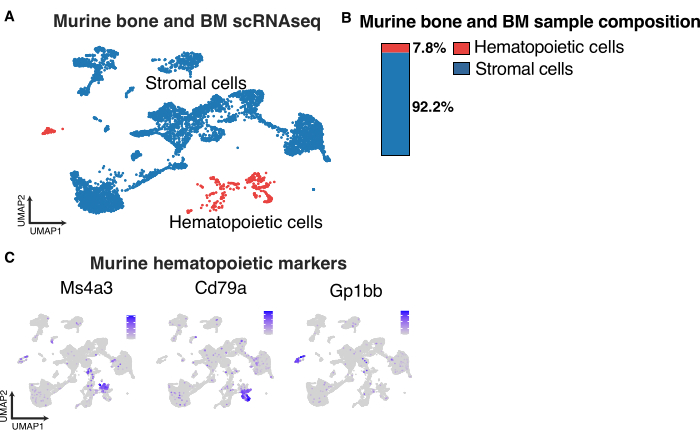
Rysunek 5: Sekwencjonanie RNA pojedynczych komórek szpiku kostnego z analizą składu komórek zrębowych i hematopoetycznych. (A) Wykres UMAP kości i szpiku kostnego myszy wskazujący komórki zrębowe (niebieski) oraz komórki hematopoetyczne (czerwony). (B) Ilościowe oznaczenie komórek zrębowych i hematopoetycznych w próbkach kości i szpiku kostnego myszy. (C) Wykres UMAP genów markerowych linii hematopoetycznej w próbkach szpiku kostnego myszy. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Komórki zrębu w narządach krwiotwórczych mają kluczowe znaczenie dla prawidłowej produkcji krwi, a zaburzenia zrębu układu krwiotwórczego mogą powodować poważne upośledzenie utrzymania układu krwiotwórczego i odpowiedzi na stres 9,23,24. Wgląd w hematopoetyczne komórki zrębu jest niezbędny do zrozumienia chorób hematologicznych 7,9,10,24 i możliwości opracowania terapii do ich zwalczania 25,26. Powtarzalne oddzielenie zrębu układu krwiotwórczego od miąższu jest jednak wyzwaniem, szczególnie w związku z pojawieniem się monoomiki jednokomórkowej, która wymaga wysokiej jakości preparatów próbek przy jednoczesnej maksymalizacji wydajności i różnorodności komórek zrębu. Opisane tutaj protokoły zostały zoptymalizowane tak, aby były kompatybilne z większością dalszych aplikacji multiomicznych, jednocześnie spełniając wyzwania związane z izolacją hematopoetycznych komórek zrębowych 1,2,19.
Pierwszą kwestią, którą należy wziąć pod uwagę przy izolacji hematopoetycznych komórek zrębowych, są warunki dysocjacji. Optymalna dysocjacja ma kluczowe znaczenie dla uwolnienia komórek zrębu z tkanki, aby odzwierciedlić pełną heterogeniczność przedziału zrębu 1,2. Wybór odpowiedniej mieszanki dysocjacyjnej zależy od zakresu eksperymentu i dalszych protokołów. Zalecamy przygotowanie mieszanek dysocjacyjnych tak świeżych, jak to możliwe i trzymanie ich na lodzie do czasu użycia. Niektóre składniki są trudne do rozpuszczenia, takie jak dypaza, i mogą wymagać więcej czasu na wymieszanie pipet. Wirowanie nie jest zalecane, ponieważ może to zakłócić natywną konformację enzymów trawiennych, ostatecznie prowadząc do ich inaktywacji. Co ważne, EDTA hamuje aktywność enzymatyczną i należy go unikać podczas etapów aktywnego trawienia, ale może być stosowany do zatrzymania reakcji, jeśli bufor zawierający enzym nie może zostać szybko usunięty. Oprócz samej mieszaniny enzymów, dwa punkty mają kluczowe znaczenie dla skutecznej dysocjacji tkanki: (1) dokładne rozdrabnianie i cięcie w celu zwiększenia powierzchni oraz (2) wystarczający czas inkubacji z enzymami trawiennymi. Na przykład ludzka tkanka grasicy jest znacznie trudniejsza do dysocjacji niż tkanka mysie, dlatego czas trawienia musi być dłuższy. Jeśli nie zostanie dokonana korekta dla tkanki ludzkiej, wydajność zrębu i różnorodność komórek zostaną zmniejszone (ryc. 2A). Enzymy dysocjacyjne wymagają optymalnej temperatury 37 °C, co nieuchronnie wpływa na ekspresję genów27. Chociaż dysocjacja w niskiej lub niższej temperaturze byłaby pożądana w celu zachowania stanów komórek, obecnie nie ma dostępnych na rynku kombinacji enzymów dysocjacji zimno-aktywnej odpowiednich dla kości i szpiku kostnego. W przypadku każdej tkanki, która wymaga trawienia, niejednorodność i procentowy udział uzyskany z różnych typów komórek będą się niezmiennie zmieniać wraz z czasem trawienia, składem koktajlu enzymatycznego i przetwarzaniem. Po tych początkowych etapach niejednorodność i reprezentacja będą dodatkowo ograniczone przez etapy filtracji, takie jak rozmiary dysz podczas sortowania i wychwytywania trudnych typów komórek (np. adipocytów ze zrębu) oraz średnice kanałów urządzeń płynowych. Dlatego porównując zestawy danych, powinniśmy pamiętać, że te różnice w protokołach mogą mieć wpływ na reprezentację subpopulacji. Logicznie wynika z tego, że musimy zachować czujność, aby utrzymać równe etapy przetwarzania podczas pomiaru wpływu zaburzeń w układach zrębowych.
Podczas gdy koszt sekwencjonowania był i nadal maleje, technologie pojedynczych komórek są często ograniczone liczbą komórek, które można przeanalizować. Aby zoptymalizować pojemność każdego zestawu odczynników, w miarę możliwości stosowano wyczerpanie magnetyczne komórek krwiotwórczych. Pozwala to uniknąć dużej liczby komórek zanieczyszczających, które są znacznie liczniejsze niż zrąb zarówno we frakcjach próbek szpiku kostnego, jak i grasicy. Jeśli jednak materiał wyjściowy jest ograniczony, jak w przypadku tkanki grasicy po przeszczepie, zwiększona, niespecyficzna utrata komórek, którą niezmiennie powodują strategie wyczerpania magnetycznego, może sprawić, że będzie to niewskazane. Ponadto podczas przygotowania i trawienia tkanek rozdrabnianie, cięcie i enzymatyczne uwalnianie składników macierzy zewnątrzkomórkowej generuje dużą ilość zanieczyszczeń. Ten rodzaj zanieczyszczenia, jeśli zostanie pozostawiony w próbce do analizy, może powodować problemy z zatykaniem w dalszym przetwarzaniu, powodować ujemne dołki do sortowania indeksów pojedynczych komórek i znacznie zawyżać procenty bramek nadrzędnych w analizie. Barwienie kalceiną zastosowano do bramowania dodatniego dla komórek/żywych komórek. Calcein występuje w różnych kolorach, dzięki czemu doskonale dostosowuje się do matrycy barwiącej. Podczas pracy z kalceiną należy uważać, aby nie poddawać barwnika powtarzającym się cyklom zamrażania i rozmrażania (tj. zawsze przygotowuj świeży i przechowuj w temperaturze pokojowej po rozpuszczeniu).
Możliwość multipleksowania próbek na podstawie przeciwciał oznaczonych kodem kreskowym za pomocą oligonukleotydówDNA 28 pozwala na zwiększenie użyteczności reakcji sekwencjonowania pojedynczych komórek na platformach takich jak 10x Genomics. Przeciwciała hasztagujące przeznaczone do multipleksowania próbek mają różne cele dla cząsteczek na powierzchni komórki lub błony jądrowej oraz specyficzność zarówno dla myszy, jak i człowieka. Podczas gdy system hasztagowania komórek jest z powodzeniem stosowany w wielu tkankach, eksperymenty łączące mieszanki enzymów trawiennych z późniejszym użyciem hashtagów mogą prowadzić do drastycznego zmniejszenia regeneracji. Staraliśmy się włączyć dodatkowe etapy mycia po dysocjacji i dodaliśmy EDTA, aby zahamować aktywność enzymów trawiennych. Jednak nawet przy tych krokach spodziewaj się niższej identyfikacji hashtagu niż w przypadku komórek krwiotwórczych. Stwierdzono, że w przypadku protokołów trawienia enzymatycznego wskaźniki przechwytywania hashtagów wynosiły od 30% do 70%. Dzieje się tak pomimo faktu, że ten sam klon przeciwciała ze sprzęgiem fluorochromowym znakowany >90% komórek zrębu w tej samej populacji. Każdy projekt eksperymentalny łączący trawienie enzymatyczne tkanki z hasztagowaniem powinien być pilotowany i należy zachować ostrożność w celu zapewnienia hamowania enzymatycznego.
Oświadczenia
D.T.S. jest dyrektorem i udziałowcem Agios Therapeutics i Editas Medicines; założyciel, dyrektor, udziałowiec i członek naukowej rady doradczej Magenta Therapeutics i LifeVault Bio, udziałowiec i założyciel Fate Therapeutics i Garuda Therapeutics, a także dyrektor, założyciel i udziałowiec Clear Creek Bio, konsultant FOG Pharma, Inzen Therapeutics i VCanBio oraz laureat sponsorowanego finansowania badań od Sumitomo Dianippon. D.T.S i K.G są wynalazcami patentów US20220143099A1.
Podziękowania
Otrzymaliśmy wsparcie fachowej pomocy technicznej od urządzenia do cytometrii przepływowej HSCI-CRM w Massachusetts General Hospital oraz Bauer Core Facility na Uniwersytecie Harvarda. T.K i K.G. byli wspierani przez Szwedzką Radę ds. Badań Naukowych, a C.M. przez Niemiecką Fundację Badawczą. Dziękujemy Sergeyowi Isaevowi i I-Hsiu Lee za pomoc w analizie danych sekwencjonowania RNA pojedynczych komórek.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,25% Trypsyna-EDTA | Thermo Fisher Scientific | 25200-072 | |
| 7AAD (7-aminoaktynomycyna D) | BD Biosciences | 559925 | |
| Koktajl przeciw ludzkiej linii 3-FITC | BD Biosciences | 643510 | |
| Albumina surowicy bydlęcej | Millipore Sigma | A9647 | |
| C57Bl/6 myszy | Jackson | 664 | Samce lub samice, 8-12 tygodni |
| Calcein | Fisher Scientific | 65-0853-78 | |
| Kolagenaza IV | Millipore Sigma | C5138 | |
| Sterylne sitka komórkowe Corning, białe, rozmiar oczek: 70 i mikro; m | Fisher Scientific | 08-771-2 | |
| Dispase II | Thermo Fisher Scientific | 17105041 | |
| Dnase I Solution | Thermo Fisher Scientific | 90083 | 2500 U/mL |
| mysia streptawidyna Easysep Zestaw izolacyjny RapidSpheres | StemCell Technologies | 19860 | |
| Płodowa surowica bydlęca | Gibco | A31605-01 | Kwalifikowany One Shot |
| Human Fc Block | BD Biosciences | 564220 | |
| Liberase TM | Millipore Sigma | 5401127001 | klasy badawczej |
| Medium 199 | Gibco | 12350 | |
| Mysz anty-ludzka CD235a-BV77 | BD Biosciences | 740785 | |
| Mysz anty-ludzka CD31-PE/Dazzle594 | Biolegend | 303130 | |
| Mysz anty-ludzka CD45-BV77 | Biolegend | 304050 | |
| Mysz anty-ludzka CD4-BV605 | BD Biosciences | 562658 | |
| Mysz anty-ludzka CD66b-FITC | BD Biosciences | 555724 | |
| Mysz anty-ludzka CD8-APC/Cy7 | BD Biosciences | 557760 | |
| Mysz anty-ludzka EpCam-BV421 | Biolegend | 324220 | |
| Protector Inhibitor RNazy | Millipore Sigma | 3335402001 | |
| Szczur anty-mysz CD105-PE /dazzle594 | Biolegend | 120424 | |
| Szczur anty-mysz CD11b-Biotyna | Biolegend | 101204 | |
| Szczur anty-myszy CD140a-APC | Fisher Scientific | 17-1401-81 | |
| Szczurzy anty-mysz CD16/CD32 (blok myszy BD Fc) | BD Biosciences | 553142 | |
| Szczur anty-mysz CD31-BUV737 | BD Biosciences | 612802 | |
| Szczur anty-myszy CD31-BV421 | Biolegend | 102424 | |
| Szczur anty-mysi CD3-Biotyna | Biolegend | 100244 | |
| Szczur anty-mysz CD45.2-Biotyna | Biolegend | 109804 | |
| Szczur anty-mysz CD45-PE/Cy7 | Biolegend | 103114 | |
| Szczur anty-mysz CD45-PE/Cy7 | Biolegend | 103114 | |
| Szczur anty-mysz CD45-PE/Cy7 | Biolegend | 103114 | |
| Szczurzy anty-mysz CD45R/B220-Biotyna | Biolegend | 103204 | |
| Szczur anty-mysz CD51-PE | Biolegend | 104106 | |
| Szczur anty-mysz EpCam-BV711 | BD Biosciences | 563134 | |
| Szczur anty-mysz Ly-6A/E(Sca-1)-AF700 | Biolegend | 108142 | |
| Szczur anty-mysz Ly-6G/Ly-6C(Gr1)-Biotyna | Biolegend 108404 | ||
| Szczur anty-mysz Ter119-Biotyna | Biolegend | 116204 | |
| Szczur anty-mysz Ter119-PE | Biolegend | 116208 | |
| Szczur anty-mysz Ter119-PE/Cy7 | Biolegend | 116222 | |
| Stemxyme | Worthington Biochemical | LS004107 |
Bibliografia
- Baryawno, N., et al. A cellular taxonomy of the bone marrow stroma in homeostasis and leukemia. Cell. 177 (7), 1915-1932 (2019).
- Severe, N., et al. Stress-induced changes in bone marrow stromal cell populations revealed through single-cell protein expression mapping. Cell Stem Cell. 25 (4), 570-583 (2019).
- Han, J., Zuniga-Pflucker, J. C. A 2020 view of thymus stromal cells in t cell development. J Immunol. 206 (2), 249-256 (2021).
- Park, J. E., et al. A cell atlas of human thymic development defines t cell repertoire formation. Science. 367 (6480), (2020).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus rna-seq workflows. Genome Biol. 21 (1), 130(2020).
- Lischetti, U., et al. Dynamic thresholding and tissue dissociation optimization for cite-seq identifies differential surface protein abundance in metastatic melanoma. Commun Biol. 6 (1), 830(2023).
- Ding, L., Saunders, T. L., Enikolopov, G., Morrison, S. J. Endothelial and perivascular cells maintain haematopoietic stem cells. Nature. 481 (7382), 457-462 (2012).
- Mendez-Ferrer, S., et al. Mesenchymal and haematopoietic stem cells form a unique bone marrow niche. Nature. 466 (7308), 829-834 (2010).
- Raaijmakers, M. H., et al. progenitor dysfunction induces myelodysplasia and secondary leukaemia. Nature. 464 (7290), 852-857 (2010).
- Himburg, H. A., et al. Distinct bone marrow sources of pleiotrophin control hematopoietic stem cell maintenance and regeneration. Cell Stem Cell. 23 (3), 370-381 (2018).
- Zhou, B. O., et al. marrow adipocytes promote the regeneration of stem cells and haematopoiesis by secreting scf. Nat Cell Biol. 19 (8), 891-903 (2017).
- Steinmann, G. G. Changes in the human thymus during aging. Curr Top Pathol. 75, 43-88 (1986).
- Steinmann, G. G., Klaus, B., Muller-Hermelink, H. K. The involution of the ageing human thymic epithelium is independent of puberty. A morphometric study. Scand J Immunol. 22 (5), 563-575 (1985).
- Ambrosi, T. H., et al. Adipocyte accumulation in the bone marrow during obesity and aging impairs stem cell-based hematopoietic and bone regeneration. Cell Stem Cell. 20 (6), 771-784 (2017).
- Ho, Y. H., et al. Remodeling of bone marrow hematopoietic stem cell niches promotes myeloid cell expansion during premature or physiological aging. Cell Stem Cell. 25 (3), 407-418 (2019).
- Kusumbe, A. P., et al. Age-dependent modulation of vascular niches for haematopoietic stem cells. Nature. 532 (7599), 380-384 (2016).
- Seach, N., Wong, K., Hammett, M., Boyd, R. L., Chidgey, A. P. Purified enzymes improve isolation and characterization of the adult thymic epithelium. J Immunol Methods. 385 (1-2), 23-34 (2012).
- Stoeckle, C., et al. Isolation of myeloid dendritic cells and epithelial cells from human thymus. J Vis Exp. (79), e50951(2013).
- Gustafsson, K., Scadden, D. T. Isolation of thymus stromal cells from human and murine tissue. Methods Mol Biol. 2567, 191-201 (2023).
- Centers for disease control prevenetion (cdc) infection control. , Available from: Https://Www.Cdc.Gov/Infectioncontrol/Basics/Standard-Precautions.Html (2023).
- Amend, S. R., Valkenburg, K. C., Pienta, K. J. Murine hind limb long bone dissection and bone marrow isolation. J Vis Exp. (110), e53936(2016).
- Zhu, H., et al. A protocol for isolation and culture of mesenchymal stem cells from mouse compact bone. Nat Protoc. 5 (3), 550-560 (2010).
- Calvi, L. M., et al. Osteoblastic cells regulate the haematopoietic stem cell niche. Nature. 425 (6960), 841-846 (2003).
- Kode, A., et al. Leukaemogenesis induced by an activating beta-catenin mutation in osteoblasts. Nature. 506 (7487), 240-244 (2014).
- Agarwal, P., et al. Mesenchymal niche-specific expression of cxcl12 controls quiescence of treatment-resistant leukemia stem cells. Cell Stem Cell. 24 (5), 769-784 (2019).
- Duarte, D., et al. Inhibition of endosteal vascular niche remodeling rescues hematopoietic stem cell loss in aml. Cell Stem Cell. 22 (1), 64-77 (2018).
- O'flanagan, C. H., et al. Dissociation of solid tumor tissues with cold active protease for single-cell rna-seq minimizes conserved collagenase-associated stress responses. Genome Biol. 20 (1), 210(2019).
- Stoeckius, M., et al. Cell hashing with barcoded antibodies enables multiplexing and doublet detection for single cell genomics. Genome Biol. 19 (1), 224(2018).
Przedruki i uprawnienia
