Ten protokół opisuje test oparty na bret do pomiaru interakcji kinazy CRAF z białkami 14-3-3 w żywych komórkach. Protokół określa etapy przygotowania ogniw, odczytu emisji BRET i analizy danych. Przedstawiono również przykładowy wynik wraz z identyfikacją odpowiednich elementów sterujących i rozwiązywaniem problemów w celu optymalizacji testu.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Test oparty na rezonansie bioluminescencyjnym (BRET) do pomiaru oddziaływań CRAF z białkami 14-3-3 w żywych komórkach
W tym artykule
Podsumowanie
Streszczenie
Wprowadzenie
kinazy RAF (ARAF, BRAF i CRAF) są bezpośrednimi efektorami GTPaz RAS i inicjującymi członkami kaskady kinaz pro-proliferacyjnych/pro-survivalowych RAF-MEK-ERK. Ostatnie badania wykazały, że ekspresja CRAF odgrywa kluczową rolę w nowotworzeniu kilku nowotworów wywołanych przez KRAS, w tym niedrobnokomórkowego raka płuc i gruczolakoraka przewodowego trzustki1,2,3,4,5. Co więcej, mutacje CRAF w linii zarodkowej powodują szczególnie ciężką postać RASopathy, zespół Noonana6,7. Zrozumienie regulacji CRAF ma kluczowe znaczenie dla opracowania skutecznych podejść terapeutycznych, które są ukierunkowane na jego funkcję w komórkach.
Wszystkie kinazy RAF można podzielić na dwie funkcjonalne domeny, C-końcową domenę katalityczną (CAT) i N-końcową domenę regulacyjną (REG), która kontroluje swoją aktywność (Rysunek 1A)8. Domena REG obejmuje domenę wiążącą RAS (RBD), domenę bogatą w cysteinę (CRD) oraz region bogaty w serynę/treoninę (bogaty w S / T). Warto zauważyć, że region bogaty w S / T zawiera miejsce N', które wiąże się z 14-3-3 w sposób zależny od fosforylacji (S259 w CRAF; Rysunek 1A)8. Domena CAT obejmuje domenę kinazy, wraz z drugim miejscem dokowania 14-3-3 o wysokim powinowactwie, określanym jako miejsce C' (S621 w CRAF; Rysunek 1A)8. Różnicowe wiązanie dimerycznych białek 14-3-3 z miejscami N' i C', wraz z CRD, odgrywa kluczową rolę zarówno w aktywacji, jak i hamowaniu RAF9,10,11,12,13. W normalnych warunkach sygnalizacji aktywacja RAF jest inicjowana przez jego rekrutację do błony plazmatycznej przez RAS, co pozwala na tworzenie aktywnych dimerów, z których heterodimer BRAF-CRAF jest dominującą formą aktywną14,15. Testy biochemiczne z BRAF i CRAF, wraz z kriogeniczną mikroskopią elektronową (Cryo-EM) struktury dimerycznego BRAF, wskazują, że dimer 14-3-3 stabilizuje aktywne dimery RAF poprzez jednoczesne wiązanie się z miejscem C' obu protomerów RAF (Rysunek 1B)9,13,16,17. I odwrotnie, badania wykazały, że w warunkach spoczynku RAF przyjmuje cytozolowe, autohamowane potwierdzenie, w którym domena REG wiąże się z domeną CAT i hamuje jej aktywność12,18,19,20. Ten zamknięty stan jest stabilizowany przez dimer 14-3-3 związany z lokacją CRD i N' w domenie REG oraz z lokacją C' w domenie CAT ( Rysunek 1B)10,13,21. W BRAF model ten jest wspierany przez najnowsze struktury Cryo-EM autoinhibitowanych monomerów BRAF oraz przez nasze poprzednie badania biochemiczne10,12,13,21,22. Jednakże, podczas gdy wykazano, że 14-3-3 odgrywa rolę hamującą w regulacji CRAF23, stan autoinhibicji podobny do BRAF może odgrywać mniejszą rolę w regulacji CRAF12; dlatego potrzebne są dalsze badania w celu wyjaśnienia mechanizmów, za pomocą których białka 14-3-3 regulują aktywność CRAF. Regulacja kinaz RAF za pośrednictwem 14-3-3 wymaga mnóstwa zdarzeń fosforylacji i defosforylacji RAF, wiązania się z różnymi białkami regulatorowymi i interakcji z błoną plazmatyczną8. Dlatego tak ważne jest, aby interakcje 14-3-3-RAF były mierzone w fizjologicznie odpowiednich warunkach i w obecności nienaruszonej dwuwarstwy lipidowej.
Aby rozwiązać ten problem, technologia NanoBRET (odtąd określana jako N-BRET; szczegóły zestawu w Tabeli Materiałów) została wykorzystana do opracowania testu opartego na bliskości do pomiaru interakcji CRAF z białkami 14-3-3 w żywych komórkach (Rysunek 1C). Ten system oparty na bret mierzy interakcje dwóch białek będących przedmiotem zainteresowania (POI), z których jedno jest oznaczone donorem nanolucyferazy (Nano), a drugie znacznikiem Halo, w celu znakowania za pomocą ligandu akceptora energii Halo61822,24. Interakcja interesujących białek powoduje transfer energii między donorem a akceptorem, co z kolei generuje sygnał BRET (Rysunek 1C). Niezwykle jasne białko donorowe Nano (emisja (em) 460 nm) i ligand Halo618 (em 618 nm) zapewniają większą separację widmową i czułość w porównaniu z konwencjonalnym BRET, co czyni go idealną platformą do badania słabszych oddziaływań i wykrywania subtelnych zmian w binding24. Rzeczywiście, wcześniej opracowaliśmy test oparty na N-BRET do pomiaru interakcji autohamujących domen RAF REG i CAT, który był niezbędny do scharakteryzowania panelu mutacji RASopathy w BRAF CRD i wykazał krytyczne znaczenie tej domeny dla utrzymania autoinhibicji i zapobiegania konstytutywnej aktywacji BRAF12.
Opisany tutaj test mierzy interakcje CRAF, połączonego z N-końcowym znacznikiem Nano (Nano-CRAF), oraz izoformy zeta 14-3-3 połączonej z C-końcowym znacznikiem Halo (14-3-3ζ-Halo; Rysunek 1C). Pokazujemy, że oddziaływania Nano-CRAF z 14-3-3ζ-Halo generują silny sygnał BRET, który z kolei może zostać zakłócony przez mutacje, które uniemożliwiają wiązanie 14-3-3 z miejscem N' (S259A) i / lub miejscem C' (S621A). Poniższy protokół zawiera szczegółowe kroki dotyczące wykonywania, optymalizowania i rozwiązywania problemów z tym testem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Analizę tę przeprowadza się na komórkach 293FT. Jest to dobrze scharakteryzowana i łatwo transfekowalna linia nabłonkowa pochodząca z ludzkich komórek embrionalnych nerek. Pojedyncza szalka hodowlana o średnicy 10 cm z konfluencją tych komórek zazwyczaj dostarcza wystarczającą liczbę komórek do zasiewu 20 studni w 6-dołkowych płytkach hodowlanych. Kroki 1-3 muszą być wykonane z zachowaniem zasad sterylności w komorze z laminarnym przepływem powietrza.
1. Wysiew komórek (Dzień 1)
UWAGA: Na tym etapie komórki zostają oddzielone od naczynia do hodowli tkanek, policzone i wysiane na 6-dołkowych płytkach do hodowli tkanek w celu przeprowadzenia transfekcji w kroku 2 (Rysunek 2).
- Odssać pożywkę z komórek w szalce 10 cm. Przemyć komórki 5 mL soli fizjologicznej z buforem fosforanowym (PBS), a następnie odessać płyn.
- Dodać 1 mL trypsyny z kwasem etylenodiaminotetracetylowym (EDTA) i inkubować przez 3-5 min w temperaturze 37 °C, aby odkleić komórki od dna szalki.
- Dodać do komórek 9 mL kompletnej pożywki DMEM (Dulbecco's modified eagle medium), aby zneutralizować trypsynę, a następnie wielokrotnie pipetować w górę i w dół w celu uzyskania jednorodnej zawiesiny pojedynczych komórek.
- Bezzwłocznie przenieść 20 µL zawiesiny komórkowej do probówki 1,7 mL i zmieszać z 20 µL barwnika trypan blue. Policzyć komórki, korzystając z automatycznego licznika komórek (Tabela materiałów) lub hemocytometru.
- Rozcieńczyć komórki do stężenia 2 x 10⁵ komórek/mL w kompletnej pożywce DMEM i dodać 2 mL do każdego dołka płytki hodowlanej z 6 dołkami (4 x 10⁵ komórek/dołek). Inkubować komórki w temperaturze 37 °C i 10% CO2 przez noc.
UWAGA: Zaleca się stosowanie komórek 293FT, które przeszły mniej niż 20 pasażów. Wcześniej stwierdziliśmy, że użycie komórek o większej liczbie pasaży może prowadzić do obniżenia wartości stosunku BRET oraz zwiększonej zmienności sygnału między dołkami.
2. Transfekcja komórek (Dzień 2)
UWAGA: W tym przypadku komórki są transfekowane konstruktami ekspresyjnymi pCMV5-NanoLuc-CRAF oraz pCMV5-14-3-3ζ-Halo, wraz z pustym wektorem pCDNA3.1 (Rycina 2).
- Przed transfekcją rozcieńczyć plazmidy N-BRET do stężenia 5 ng/µL oraz pCDNA3.1 do 100 ng/µL, a następnie ponumerować zestaw sterylnych probówek o pojemności 1,7 mL.
- Do każdej probówki dodać 100 µL medium do transfekcji (szczegóły w Tabeli materiałów) wraz z 5 ng pCMV5-NanoLuc-CRAF, 10 ng pCMV5-14-3-3ζ oraz 200 ng PCDNA3.1.
- Dodać 2 µL odczynnika do transfekcji (szczegóły w Tabeli materiałów) i delikatnie wymieszać za pomocą wortexa. Krótko odwirować probówki w mikrocentry fudze, aby upewnić się, że cały płyn zgromadził się na dnie, a następnie inkubować przez 15 min w temperaturze około 25 °C.
- Kompleksy transfekcyjne dodawać kroplami do komórek i inkubować w 37 °C/10% CO2 przez 16-20 h, aby umożliwić ekspresję białek z znacznikami Halo i Nano.
UWAGA: Dodanie pustego wektora (pCDNA3.1) jako nośnika DNA jest niezbędne do osiągnięcia wysokiej wydajności transfekcji konstruktów ekspresyjnych N-BRET. Brak dodania pustego wektora prowadzi do obniżenia poziomu ekspresji białek 14-3-3ζ-Halo i Nano-CRAF, co z kolei skutkuje niskimi i niespójnymi wartościami stosunku BRET, jak omówiono wcześniej22.
3. Przesiewanie komórek (Dzień 3)
UWAGA: Na tym etapie komórki przenosi się do płytki 384-dołkowej i dodaje ligand Halo 618 (+ligand; Tabela materiałów) lub DMSO (+nośnik) w celu odczytu emisji BRET w kroku 4. Pozostałe komórki przenosi się do nowych płytek hodowlanych z 6 dołkami w celu przeprowadzenia analizy western blot w kroku 5 (Rysunek 2).
- Zgromadzić następujące materiały i przygotować obszar roboczy zgodnie z poniższym opisem.
- Używając kąpieli wodnej o temperaturze 37 °C, uprzednio ogrzać trypsynę z EDTA oraz zarówno bezzłożyćowe medium analityczne, jak i medium analityczne uzupełnione o 10% FBS (szczegóły znajdują się w Tabeli materiałów).
- W zależności od liczby próbek do pomiaru, wcześniej opisać trzy zestawy sterylnych probówek 1,7 mL (zestawy 1-3) oraz jeden zestaw sterylnych probówek stożkowych 15 mL. Wyposażyć wirówkę z koszem wahadłowymi w inserty do probówek 15 mL i schłodzić do 4 °C.
- Umieścić w komorze do hodowli tkanek następujące elementy: zbiorniki na odczynniki, płytki hodowlane 384-dołkowe, płytki hodowlane 6-dołkowe, pipetę wielokanałową wraz z końcówkami, szkiełka/komory do liczenia komórek oraz barwnik trypan blue (Tabela materiałów), a także zestawy probówek 1,7 mL (1-3).
- zebrać i policzyć komórki zgodnie z poniższym opisem.
- Odssać medium z płytek 6-dołkowych i dodać 250 µL trypsyny z EDTA do komórek. Inkubować płytki 6-dołkowe w temperaturze 37 °C do momentu, aż komórki zaczną się odrywać (3-5 min).
- Dodać 1 mL medium analitycznego uzupełnionego o 10% FBS do każdego dołka, aby zneutralizować trypsynę, a następnie energicznie pipetować w górę i w dół, aby uzyskać zawiesinę pojedynczych komórek.
- Przenieść 1 mL zawiesiny komórkowej do wcześniej opisanych probówek 15 mL. Dodać kolejny 1 mL medium analitycznego uzupełnionego o 10% FBS do każdej z probówek 15 mL.
- Odwrócić probówki 5 razy w celu wymieszania i natychmiast przenieść 20 µL zawiesiny komórkowej do zestawu probówek 1.
- Wirować w uprzednio schłodzonej wirówce z koszem wahadłowym przez 5 min przy ok. 250 x g. Podczas etapu wirowania zmieszać 20 µL barwnika do komórek trypan blue z komórkami w zestawie probówek 1, a następnie policzyć komórki za pomocą automatycznego licznika komórek lub hemosytometru. Typowa wydajność wynosi 6-8 x 10⁵ komórek/mL.
- Wyjąć probówki 15 mL z wirówki i odessać medium znad osadów komórkowych. Resuspendować osady komórkowe do stężenia 2 x 10⁵ komórek/mL w bezzłożyćowym medium analitycznym i energicznie pipetować, aby uzyskać zawiesinę pojedynczych komórek.
UWAGA: Bezzłożyćowe medium analityczne jest stosowane w celu wyciszenia naturalnych szlaków sygnalizacyjnych komórek.
- Przesiać komórki na płytki 384- i 6-dołkowe zgodnie z poniższym opisem.
- Kilka razy odwrócić probówki 15 mL, aby zapewnić homogeniczną zawiesinę komórkową, a następnie przenieść 500 µL do zestawów probówek 1,7 mL nr 2 i 3.
- Dodać 0,5 µL DMSO (+nośnik) do zestawu 2 oraz 0,5 µL liganda Halo 618 (+ligand) do zestawu probówek 3 i wymieszać za pomocą pipety.
- Przenieść zawiesiny komórkowe z nośnikiem (+nośnik) i ligandem (+ligand) do osobnych dołków zbiorników na odczynniki. Używając pipety wielokanałowej (Tabela materiałów), przenieść 40 µL zawiesiny komórkowej z nośnikiem ze zbiorników do czterech powtórzeń w dołkach 384-dołkowej płytki hodowlanej. Powtórzyć ten krok dla zawiesin komórkowych z ligandem.
- Przenieść pozostałe komórki do nowych płytek hodowlanych 6-dołkowych. Inkubować płytki 384- i 6-dołkowe przez noc w temperaturze 37 °C i 5% CO2.
4. Odczyt emisji BRET (Dzień 4)
UWAGA: Na tym etapie substrat nanolucyferazy (patrz Tabela materiałów (szczegóły) dodaje się do komórek w 384-dołkowej płytce hodowlanej, a następnie odczytuje emisję akceptora N-BRET (618 nm) i donora (460 nm) (Rycina 2). Następnie oblicza się skorygowane stosunki BRET.
- Podgrzej wcześniej pożywkę do testu wolną od surowicy w kąpieli wodnej o temperaturze 37 °C i rozmroź substrat nanolucyferazy w temperaturze 25°C. Rozcieńcz substrat nanolucyferazy w stosunku 1:100 w pożywce do testu wolnej od surowicy i przelej do zbiornika na odczynniki. Przygotuj taką ilość mieszaniny, aby móc dodać 10 µL do każdej studni płytki 384-dołkowej, z dodatkową nadwyżką 10%-15% objętości.
- Za pomocą pipety wielokanałowej (Tabela materiałów) przenieś 10 µL mieszaniny substratu do każdej z tych studni na płytce hodowlanej 384-dołkowej, które zawierają komórki. Delikatnie obracaj płytką przez 1 min, ręcznie lub przy użyciu wytrząsarki orbitalnej.
- Włóż płytkę 384-dołkową do wielomodalnego czytnika płytek i zarejestruj emisje przy 460 nm i 618 nm dla wszystkich studni zawierających komórki.
UWAGA: W przypadku wielomodalnego czytnika płytek użytego w tym kroku (szczegóły w Tabeli materiałów), zastosowano wysokość odczytu 6,5 mm oraz czas pomiaru odczytu 0,1 s; jednak w przypadku korzystania z innych czytników płytek może być wymagana dalsza optymalizacja. - Oblicz surowe wartości stosunku BRET dla +nośnika oraz +liganda w jednostkach milliBRET (mBU) oddzielnie, korzystając z następującego równania:
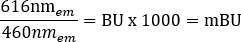
- Oblicz skorygowany stosunek BRET, odejmując stosunek BRET dla +nośnika od stosunku dla +liganda (Tabela uzupełniająca 1).
UWAGA: Przy porównywaniu wyników z wielu eksperymentów skorygowane stosunki BRET mogą być łączone i normalizowane do średniej dla pary N-BRET typu dzikiego (WT), składającej się z Nano-CRAFWT i 14-3-3ζWT-Halo (Tabela uzupełniająca 1).
5. Potwierdzenie poziomów ekspresji białek (dni 4 i 5)
UWAGA: W tym kroku komórki w płytkach 6-dołkowych są lizowane, a poziomy ekspresji białek Nano-CRAF oraz 14-3-3ζ-Halo są oznaczane za pomocą analizy western blot z użyciem przeciwciał specyficznych dla znaczników Halo i Nano. (Rysunek 2).
- Do buforu lizującego NP40 (Tabela materiałów) dodać inhibitory proteaz i fosfataz, przyjmując 200 µL buforu lizującego na próbkę.
- Odssać pożywkę z płytek 6-dołkowych zawierających komórki. Przemyć komórki raz 1 mL zimnego PBS i odessać płyn.
- Do każdego dołka dodać 125 µL buforu lizującego NP40 i inkubować płytki 6-dołkowe w temperaturze 4 °C na platformie kołyszącej przez 15 min w celu lizy komórek.
- Przenieść lizaty do probówek 1,7 mL na lodzie i odwirować przy 20 000 x g przez 10 min w temperaturze 4 °C. Przećwiczone lizaty ponownie umieścić na lodzie i oznaczyć stężenie białka za pomocą dostępnych komercyjnie testów, takich jak metoda Bradforda lub test kwasu bicinchoniminowego (BCA).
- Znormalizować stężenie białka we wszystkich próbkach, przenosząc odpowiednią objętość lizatu i buforu lizującego NP40 do nowych probówek 1,7 mL do uzyskania całkowitej objętości 100 µL.
- Gotować 5x bufor do próbek białek (Tabela materiałów) przez 1 min, a następnie dodać 25 µL do każdej próbki. Gotować próbki przez 5-6 min, a następnie krótko odwirować probówki, aby upewnić się, że cała próbka zebrała się na dnie probówki.
- Nanieść 25 µL próbki do każdego dołka w dwóch dubletach żeli białkowych (Żel 1 i Żel 2), a następnie przenieść białka na membrany nitrocelulozowe lub PVDF stosując standardowe procedury western blotting, zgodnie z wcześniejszym opisem22.
- Blokować membrany w 3% BSA-PBS w temperaturze 25 °C przez 30 min, a następnie inkubować membrany przez noc z przeciwciałem Halo (rozcieńczenie 1:1 000; Żel 1) oraz przeciwciałem przeciw nanolucyferazie lub CRAF (rozcieńczenie 1:500; Żel 2) w soli buforowanej triss-em z dodatkiem 0,2% Tween-20 (TBST; Tabela materiałów).
- Przemyć membrany 1x przez 5 min w 10 mL TBST, a następnie inkubować w temperaturze pokojowej przez 1 h z wtórnym przeciwciałem anty-mysim HRP, rozcieńczonym 1:10 000 w TBST.
- Przemyć membrany 3x na platformie kołyszącej w 10 mL TBST w temperaturze 25 °C po 5 min każdorazowo. Usunąć TBST i wizualizować prążki białkowe za pomocą odczynników ECL oraz procesora filmów rentgenowskich lub innego odpowiedniego systemu obrazowania.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Gdy procedura jest przeprowadzana zgodnie z opisem w niniejszym protokole (Rysunek 2), interakcja Nano-CRAFWT i 14-3-3ζ-Halo powinna przynieść skorygowane stosunki BRET w zakresie 50-60 mBU (Rysunek 3A; Tabela uzupełniająca 1). CRAF zawiera dwa zależne od fosforylacji miejsca dokowania 14-3-3: miejsce N' oraz miejsce C' (Rysunek 1)8. W związku z tym odpowiednie kontrole dla redukcj...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wcześniejsze badania wykazały, że białka 14-3-3 odgrywają kluczową rolę zarówno w aktywacji, jak i hamowaniu kinaz RAF. Zrozumienie, w jaki sposób te zdarzenia wiązania są regulowane i jaki jest wpływ modulowania tych interakcji na sygnalizację RAF i onkogenezę sterowaną przez RAF, może odkryć nowe podatności terapeutyczne, które są ukierunkowane na funkcję CRAF. Jednak cykl aktywacji Raf jest wspierany przez mnóstwo powiązanych białek, modyfikacje potranslacyjne i zmiany w lokalizacji subkomórkowej8
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Nic do ujawnienia.
Podziękowania
Ten projekt został częściowo sfinansowany z funduszy federalnych z National Cancer Institute, National Institutes of Health, pod numerem projektu ZIA BC 010329.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| przeciwciała Mysie | |||
| HaloTag® | Przeciwciało do wykrywania HaloTag oznaczone białkami przez immunoblot | ||
| Mysie przeciwciało monoklonalne NanoLuc® | R& D Systems | MAB10026 | Przeciwciało do wykrywania białek znakowanych nano za pomocą |
| mysiego przeciwciała monoklonalnego immunoblot CRAF (E10) | Santa Crus Biotechnology | sc-7267 | Przeciwciało bezpośrednio wykrywające białka CRAF przez immunoblot |
| ECL anty-mysie przeciwciało drugorzędowe HRP | Amersham | NA931-1ML | Drugorzędowe przeciwciało myszy sprzężone z HRP (od owiec) |
| Reodczynniki | |||
| X-tremeGENE™ 9 | Roche/Sigma | 6365809001 | |
| NanoBRET™ kit | Promega | N1661 | Zestaw NanoBRET zawierający ligand Halo 618 i substrat NanoGlo (nanolucyferaza) |
| DPBS, bez Ca++ i Mg++ | Wysokiej jakości produkty biologiczne | 114-057-101 | |
| Trypsyna-EDTA (0,05%), czerwień fenolowa | Life Technologies | 25300120 | |
| Pożywki do hodowli komórkowych DMEM | Life Technologies | 11995073 | Wysoka glukoza, L-glutamina, czerwień fenolowa, pirogronian bez HEPES, pożywka uzupełniająca z 10% FBS, 2 mM L-glutaminą i 100U penicylina-streptomycyna |
| L-Glutamina (200 mM) | Life Technologies | 25030164 | |
| Penicylina-Streptomycyna (10 000 U/ml) | Technologie życiowe | ||
| Opti-MEM&handel; Zmniejszyłem pożywkę w surowicy | Gibco | 31985062 | Do transfekcji komórek |
| Pożywka Opti-MEM o zmniejszonej surowicy, bez czerwieni fenolowej | Gibco | 11058021 | Do ponownego posiewu komórek w dniu 3. Suplement z 2 mM L-glutaminą i 100U penicyliną-streptomycyną, wraz z 10% FBS (jeśli jest to wskazane). |
| Invitrogen Trypan Blue Stain | Thermo Scientific | T10282 | |
| Bufor do lizy NP40 | N/A | N/A | 20 mM Tris (pH 8,0), 137mM NaCl, 10% glicerol, Alternatywa NP40 (Milipore, Cat# 492016). Przechowywać w temperaturze 4 stopni C. Bezpośrednio przed użyciem dodać następującą proteazę i fosfatazę: 20 &mikro; M leupeptyna, 0,5 mM ortowanidan sodu, 0,15 U/ml, 1 mM PMSF. |
| 5x żelowy bufor do próbek | N/A | N/A | 240 mM Tris (pH 8,0), 9,5% SDS, 30% glicerol, 500mM DTT, 3mM błękit bromofenolowy. Przechowywać w temperaturze -20 stopni C. |
| Linie komórkowe | |||
| 293FT ogniwa (ludzkie) | Thermo Scientific | Czynnik chłodniczy R70007 | |
| wektory DNA | |||
| pCMV5-Nano-CRAF WT i mutant | N/A | N/A | |
| pCMV5-14-3-3ζ-Halo | Nie | ||
| dotyczy < mocny>Sprzęt | |||
| EnVision 2104 Wielomodowy czytnik płytek | PerkinElmer 2104 | 2104-0010 | 600LP NanoBRET & Filtry emitacyjne M460/50 nm NanoBRET, Lustro Luminescence 404, wysokość pomiaru 6,5 mm i czas pomiaru 0,1 s |
| Invitrogen Countess™ II Automatyczny licznik komórek | Thermo Scientific | AMQAX1000 | |
| ThermoFisher E1-ClipTip™ Wielokanałowość Pipettor | Thermo Scientific | 4672070 | |
| Software | |||
| GraphPad Prism (wersja 10.0.3) | GraphPad | www.graphpad.com | |
| Inne | |||
| Wielokanałowe końcówki do pipet ThermoFisher ClipTip | Thermo Scientific | ||
| Zbiornik na odczynnik, 25 ml dzielony, sterylny | Thomas Scientific | 1228K16 | |
| Perkin Elmer 384-dołkowy CulturPlate&handel; | PerkinElmer | 6007680 | Biały, polistyren, poddany obróbce kultur tkankowych |
| Szkiełka komory do liczenia komórek Countess | Thermo Scientific | Zobacz materiał C10228 |
Bibliografia
- Blasco, R. B., et al. c-Raf, but not B-Raf, is essential for development of K-Ras oncogene-driven non-small cell lung carcinoma. Cancer Cell. 19, 652-663 (2011).
- Blasco, M. T., et al. Complete regression of advanced pancreatic ductal adenocarcinomas upon combined inhibition of EGFR and C-RAF. Cancer Cell. 35, 573-587 (2019).
- Karreth, F. A., Frese, K. K., DeNicola, G. M., Baccarini, M., Tuveson, D. A. C-Raf is required for the initiation of lung cancer by K-Ras(G12D). Cancer Discov. 1, 128-136 (2011).
- Lito, P., et al. Disruption of CRAF-mediated MEK activation is required for effective MEK inhibition in KRAS mutant tumors. Cancer Cell. 25, 697-710 (2014).
- Sanclemente, M., et al. c-RAF ablation induces regression of advanced Kras/Trp53 mutant lung adenocarcinomas by a mechanism independent of MAPK signaling. Cancer Cell. 33, 217-228 (2018).
- Razzaque, M. A., et al. Germline gain-of-function mutations in RAF1 cause Noonan syndrome. Nat Genet. 39, 1013-1017 (2007).
- Pandit, B., et al. Gain-of-function RAF1 mutations cause Noonan and LEOPARD syndromes with hypertrophic cardiomyopathy. Nat Genet. 39, 1007-1012 (2007).
- Terrell, E. M., Morrison, D. K. Ras-mediated activation of the Raf family kinases. Cold Spring Harb Perspect Med. 9 (1), 033746(2019).
- Kondo, Y., et al. Cryo-EM structure of a dimeric B-Raf:14-3-3 complex reveals asymmetry in the active sites of B-Raf kinases. Science. 366, 109-115 (2019).
- Park, E., et al. Architecture of autoinhibited and active BRAF-MEK1-14-3-3 complexes. Nature. 575 (7783), 545-550 (2019).
- Tzivion, G., Luo, Z., Avruch, J. A dimeric 14-3-3 protein is an essential cofactor for Raf kinase activity. Nature. 394, 88-92 (1998).
- Spencer-Smith, R., et al. RASopathy mutations provide functional insight into the BRAF cysteine-rich domain and reveal the importance of autoinhibition in BRAF regulation. Mol Cell. 82, 4262-4276 (2022).
- Martinez Fiesco, J. A., Durrant, D. E., Morrison, D. K., Zhang, P. Structural insights into the BRAF monomer-to-dimer transition mediated by RAS binding. Nat Commun. 13, 486(2022).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. The importance of Raf dimerization in cell signaling. Small GTPases. 4, 180-185 (2013).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. Effects of Raf dimerization and its inhibition on normal and disease-associated Raf signaling. Mol Cell. 49, 751-758 (2013).
- Rushworth, L. K., Hindley, A. D., O'Neill, E., Kolch, W. Regulation and role of Raf-1/B-Raf heterodimerization. Mol Cell Biol. 26, 2262-2272 (2006).
- Garnett, M. J., Rana, S., Paterson, H., Barford, D., Marais, R. Wild-type and mutant B-RAF activate C-RAF through distinct mechanisms involving heterodimerization. Mol Cell. 20, 963-969 (2005).
- Tran, N. H., Wu, X., Frost, J. A. B-Raf and Raf-1 are regulated by distinct autoregulatory mechanisms. J Biol Chem. 280, 16244-16253 (2005).
- Chong, H., Guan, K. L. Regulation of Raf through phosphorylation and N terminus-C terminus interaction. J Biol Chem. 278, 36269-36276 (2003).
- Cutler, R. E., Stephens, R. M., Saracino, M. R., Morrison, D. K. Autoregulation of the Raf-1 serine/threonine kinase. Proc Natl Acad Sci U S A. 95, 9214-9219 (1998).
- Park, E., et al. Cryo-EM structure of a RAS/RAF recruitment complex. Nat Commun. 14, 4580(2023).
- Spencer-Smith, R., Morrison, D. K. Protocol for measuring BRAF autoinhibition in live cells using a proximity-based NanoBRET assay. STAR Protoc. 4, 102461(2023).
- Clark, G. J., et al. 14-3-3 zeta negatively regulates raf-1 activity by interactions with the Raf-1 cysteine-rich domain. J Biol Chem. 272, 20990-20993 (1997).
- Machleidt, T., et al. NanoBRET--A novel BRET platform for the analysis of protein-protein interactions. ACS Chem Biol. 10, 1797-1804 (2015).
- Hekman, M., et al. Dynamic changes in C-Raf phosphorylation and 14-3-3 protein binding in response to growth factor stimulation: differential roles of 14-3-3 protein binding sites. J Biol Chem. 279, 14074-14086 (2004).
- Hatzivassiliou, G., et al. RAF inhibitors prime wild-type RAF to activate the MAPK pathway and enhance growth. Nature. 464, 431-435 (2010).
- Bondzi, C., Grant, S., Krystal, G. W. A novel assay for the measurement of Raf-1 kinase activity. Oncogene. 19, 5030-5033 (2000).
- Spencer-Smith, R., et al. Inhibition of RAS function through targeting an allosteric regulatory site. Nat Chem Biol. 13 (1), 62-68 (2016).
- Roy, S., et al. 14-3-3 facilitates Ras-dependent Raf-1 activation in vitro and in vivo. Mol Cell Biol. 18, 3947-3955 (1998).
- Durrant, D. E., et al. Development of a high-throughput NanoBRET screening platform to identify modulators of the RAS/RAF interaction. Mol Cancer Ther. 20, 1743-1754 (2021).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
