Ten protokół opisuje metodę jednoczesnego pomiaru cytozolu, wolnego wapnia [Ca2+]i i średnicy naczynia w kurczących się naczyniach limfatycznych w czasie rzeczywistym, a następnie obliczania bezwzględnych stężeń Ca2+ oraz parametrów kurczliwości/rytmiczności. Protokół ten może być stosowany do badania Ca2+ i dynamiki kurczliwości w różnych warunkach eksperymentalnych.
Artykuł metodologiczny
Ocena w czasie rzeczywistym bezwzględnego, cytozolowego, wolnego Ca2+ i odpowiadającej mu kurczliwości w izolowanych, ciśnieniowych naczyniach limfatycznych
W tym artykule
Podsumowanie
Streszczenie
Układ naczyń limfatycznych, obecnie często określany jako "trzecie krążenie", znajduje się w wielu ważnych układach narządów. Główną funkcją mechaniczną układu limfatycznego jest powrót płynu z przestrzeni zewnątrzkomórkowych z powrotem do centralnych przewodów żylnych. W transporcie limfy pośredniczą spontaniczne rytmiczne skurcze naczyń limfatycznych (LV). Skurcze lewej dawki są w dużej mierze regulowane przez cykliczny wzrost i spadek cytozolowego, wolnego wapnia ([Ca2 + ]i).
Ten artykuł przedstawia metodę jednoczesnego obliczania zmian w bezwzględnych stężeniach [Ca2+]i i kurczliwości/rytmiczności naczyń w czasie rzeczywistym w izolowanych, ciśnieniowych LV. Używając izolowanych LV krezkowych szczurów, badaliśmy zmiany w [Ca2+]i i kurczliwości/rytmiczności w odpowiedzi na dodanie leku. Izolowane LV zostały załadowane wskaźnikiem ratiometrycznym Ca2+-sensoring Fura-2AM, a mikroskopia wideo w połączeniu z oprogramowaniem do wykrywania krawędzi została wykorzystana do uchwycenia [Ca2+]i i pomiary średnicy w sposób ciągły w czasie rzeczywistym.
Sygnał Fura-2AM z każdego LV został skalibrowany do minimalnego i maksymalnego sygnału dla każdego statku i użyty do obliczenia bezwzględnego [Ca2+]i. Pomiary średnicy wykorzystano do obliczenia parametrów kurczliwości (amplituda, średnica końcowa rozkurczowa, średnica końcowa skurczowa, obliczony przepływ) i rytmiczności (częstotliwość, czas skurczu, czas relaksacji) i skorelowano z pomiarami bezwzględnymi [Ca2+]i.
Wprowadzenie
Układ naczyń limfatycznych znajduje się w wielu układach narządów, w tym w mózgu, sercu, płucach, nerkach i krezce1,2,3,4,5,6, i działa poprzez wypychanie płynu (limfy) z przestrzeni śródmiąższowych do centralnych przewodów żylnych w celu utrzymania homeostazy płynów7,8,9,10. Zaczyna się od ślepo zakończonych naczyń włosowatych limfatycznych w łożyskach naczyń włosowatych, które spływają do naczyń limfatycznych (LV). Komórki LV do zbierania składają się z dwóch warstw komórek: warstwy komórek śródbłonka otoczonej warstwą komórek mięśni limfatycznych (LMC)10,11. Transport płynu limfatycznego odbywa się zarówno poprzez siły zewnętrzne (np. tworzenie się nowej limfy, pulsacje tętnicze, wahania ciśnienia w żyłach centralnych), jak i siły wewnętrzne12.
Wewnętrzną siłą transportu limfy jest spontaniczny, rytmiczny skurcz zbierających się LV, na którym skupia się większość badań nad funkcjonowaniem układu limfatycznego. Ta wewnętrzna pompa limfatyczna jest zasadniczo regulowana przez cykliczne wznoszenie się i opadanie cytozolowego, wolnego Ca2 + ([Ca2 + ]i). Spontaniczna depolaryzacja błony plazmatycznej w LMC aktywuje bramkowane napięciem kanały Ca2+ typu "L" (Cav1.x), wywołując napływ Ca2+ i późniejszy rytmiczny skurcz LV8,9,10. Rola ta została zademonstrowana poprzez blokowanie Cav1.x za pomocą specyficznych środków, takich jak nifedypina, która hamowała skurcze LV i powodowała rozszerzenie naczyń krwionośnych13,14. Przejściowy wzrost [Ca2 + ]i lub "skok Ca2 +" w LMC, w którym pośredniczą kanały Cav1.x, może również mobilizować wewnątrzkomórkowe zapasy Ca2+ poprzez aktywację receptorów trifosforanu inozytolu (IP3) i receptorów ryanodine (RyR) na siateczce sarkoplazmatycznej (SR) 15,16,17,18. Obecne dowody sugerują, że receptory IP3 dostarczają więcej Ca2+ wymaganego do normalnych skurczów LV w porównaniu do RyRs15,16,19,20,21; jednak RyR może odgrywać rolę podczas patologii lub w odpowiedzi na interwencję farmaceutyczną17,18. Dodatkowo, aktywacja kanałów K+ aktywowanych przez Ca2+ 22 i kanałów potasowych wrażliwych na ATP (KATP) 23,24 może hiperpolaryzować błonę LMC i hamować spontaniczną aktywność skurczową.
Istnieje wiele innych kanałów jonowych i białek, które mogą regulować dynamikę Ca2+ podczas zbierania LV. Wykorzystanie metod do badania zmian w Ca2+ i kurczliwości naczyń w odpowiedzi na czynniki farmakologiczne w czasie rzeczywistym jest ważne dla zrozumienia tych potencjalnych regulatorów. Wcześniejsza metoda wykorzystująca Fura-2 do pomiaru względnych zmian w LV [Ca2+]i została opisana25. Ponieważ stała dysocjacji dla Fura-2 i Ca2+ jest znana26, możliwe jest obliczenie rzeczywistych stężeń Ca2+, co rozszerza zastosowanie tej metody i zapewnia dodatkowy wgląd w sygnalizację Ca2+, pobudliwość błony i mechanizmy kurczliwości27, a także pozwala na porównania linii wyjściowych między grupami eksperymentalnymi. To ostatnie podejście zostało zastosowane w kardiomiocytach28, a zatem może być dostosowane do LV. W artykule przedstawiono ulepszoną metodę, która łączy te dwa podejścia do pomiaru i obliczania zmian w bezwzględnych [Ca2 +] i, a także kurczliwości/rytmiczności naczyń w sposób ciągły w czasie rzeczywistym w izolowanych, ciśnieniowych LV. Przedstawiamy również reprezentatywne wyniki dla pacjentów z lewej dawki leczonych nifedypiną.
Protokół
Samce szczurów Sprague-Dawley w wieku od 9 do 13 tygodni zakupiono od komercyjnego dostawcy. Po przybyciu wszystkie szczury zakwaterowano i utrzymywano w placówce Division of Lab Animal Medicine (DLAM) na University of Arkansas for Medical Sciences (UAMS), stosując standardową dietę laboratoryjną oraz cykl światła i ciemności 12 h w temperaturze 25 oC. Wszystkie procedury zostały przeprowadzone zgodnie z zatwierdzonym protokołem wykorzystania zwierząt nr 4127, opracowanym przez Institutional Animal Care and Use Committee (IACUC) UAMS.
1. Disekcja i kanulacja naczyń limfatycznych (LV) krezki
UWAGA: Ważne jest przygotowanie komory perfuzyjnej przed izolacją naczyń krezkowych LVs, aby upewnić się, że nie występuje przerwa w przepływie ani wyciek, który mógłby zakłócić przebieg eksperymentu.
- Przygotowanie kąpieli perfuzyjnej
- Zakupić borokrzemowe mikropipety (średnica zewnętrzna 1,2 mm, średnica wewnętrzna 0,68 mm, wyciągnięte do średnicy końcówki zewnętrznej 75-100 µm) od komercyjnego dostawcy. Przyciąć i wypolerować mikropipety (tzw. kaniule) do długości około 1-2 cm w celu zamontowania ich w komorze perfuzyjnej do izolowanych naczyń.
- Połączyć każdą zamontowaną szklaną kaniulę w komorze perfuzyjnej z niezależnymi przetwornikami ciśnienia, umieszczonymi w linii z niezależnymi grawitacyjnymi regulatorami ciśnienia, za pomocą rurek polietylenowych.
UWAGA: Pozwala to na niezależne manipulowanie ciśnieniem dopływu i odpływu w zależności od projektu badania. Rysunek 1 szczegółowo przedstawia tę konfigurację. - Wypełnić wstecznie komorę perfuzyjną (5 mL), szklane mikropipety oraz niezależny grawitacyjny regulator ciśnienia wraz z rurkami polietylenowymi fizjologicznym roztworem soli (PSS; 119 mM NaCl; 24 mM NaHCO3; 1,17 mM NaH2PO4; 4,7 mM KCl; 1,17 mM MgSO4; 5,5 mM C6H12O6 (glukoza); 0,026 mM C10H16N2O8 (EDTA); oraz 1,6 mM CaCl2), usuwając wszelkie pęcherzyki powietrza. Następnie zaklemować ciśnienie tak, aby kaniule nie były pod ciśnieniem.
UWAGA: pH tego roztworu wynosi ~7,5. pH 7,4 w kąpieli perfuzyjnej jest utrzymywane poprzez napowietrzanie CO2 , który oddziałuje na układ buforowy wodorowęglanowy w PSS, jak opisano w punkcie 1.3.7. EDTA jest stosowany w celu chelatowania nadmiaru jonów Ca2+.
- Przygotowanie węzłów
- Zawiązać pod mikroskopem podwójne węzły nadgarstkowe, używając plecionej nici chirurgicznej z jedwabiu (rozmiar 8-0). Kluczowe kroki zilustrowano na Rysunku 2.
- Oddzielić pojedyncze włókno.
- Używając dwóch pęset Dumont #5 z mikrozaokrąglonymi końcówkami, wykonać jedną pęsetą podwójną pętlę wokół końcówki drugiej pęsety.
- Za pomocą pęsety z pętlą chwycić wolny koniec nici i przeciągnąć go przez obie pętle, dbając o to, aby nie zaciągnąć węzła całkowicie i pozostawić niewielki otwór.
- Użyć sprężynowych nożyczek Vanna, aby odciąć nadmiar nici z obu stron. Węzły te zostaną później wykorzystane do zamocowania LV na kaniulach.
UWAGA: Nie należy używać tych samych pęset, których będziemy używać do dysekcji lub kaniulacji, ponieważ istnieje większe ryzyko uszkodzenia końcówek pęset podczas wiązania węzłów.
- Zawiązać pod mikroskopem podwójne węzły nadgarstkowe, używając plecionej nici chirurgicznej z jedwabiu (rozmiar 8-0). Kluczowe kroki zilustrowano na Rysunku 2.
- Izolacja i kaniulacja naczyni lmfatycznych (LV) krezkowych
- Głęboko znieczulić zwierzęta, podając przedawkę 5% izofluranu z O2 (1,5 L/min), a następnie upuścić krew poprzez dekapitację.
- Wyizolować całe krezki do dysekcji LV krezkowych, wykonując najpierw cięcie wzdłuż linii środkowej ściany brzusznej, zewnętrzniając krezkę, a następnie przecinając połączenie tuż poniżej zwieracza odźwiernego i ok. 2-3 cm powyżej kątnicy, a także połączenie z odbytnicą.
- Przemyć wyizolowane całe krezki w 200 mL lodowatego PSS, a następnie przenieść i przymocować szpilkami w wyłożonej silikonem (8-10 mm) szalce Petriego (100 mm) zawierającej lodowaty PSS.
- Wypreparować krezkowe LV drugiego rzędu z otaczającej tkanki tłuszczowej i łącznej, używając stereomikroskopu, precyzyjnych pęset dysekcyjnych Dumont #5 Inox oraz sprężynowych nożyczek Vanna. Aby ułatwić identyfikację końców LV po usunięciu z tkanki, pozostawić mały fragment tłuszczu na końcu proksymalnym LV.
- Przenieść wypreparowane LV do komory perfuzyjnej w celu kaniulacji na szklanych kaniulach.
- Użyć dwóch wstępnie naostrzonych pęset Dumont #5 Inox Fine, proste końcówki (0,05 x 0,01 mm), aby przeprowadzić kaniulację LV, umieszczając koniec dystalny LV na kaniuli P1 (dopływ), a koniec proksymalny naczynia na kaniuli P2 (odpływ), aby naśladować kierunek przepływu limfy.
UWAGA: Kaniule P1 i P2 są identyczne i różnią się jedynie tym, który koniec LV jest do nich podłączony. Ważne jest użycie pęset, których końcówki idealnie do siebie przylegają i nie są uszkodzone, co ułatwia chwytanie cienkiej ściany naczynia.- Nasunąć jeden zawiązany wcześniej węzeł na każdą szklaną kaniulę, aby później zamocować naczynie na kaniulach.
- Wykorzystując mały fragment tłuszczu do zorientowania kierunku LV, najpierw przeprowadzić kaniulację końca dystalnego na P1.
- Zsunąć węzeł w dół kaniuli i zacisnąć, aby zamocować LV. Należy uważać, aby nie zacisnąć zbyt mocno i nie złamać końcówki kaniuli.
- Ustawić ciśnienie w LV na 4-5 mm Hg w komorze perfuzyjnej.
UWAGA: Na potrzeby naszych badań ustawiliśmy ciśnienia P1 i P2 jako równe; jednak w zależności od warunków eksperymentalnych ciśnienie przy każdej kaniuli można dostosować, aby wywołać naprężenie ścinające lub przepływ wsteczny. - Powtórzyć kroki 1.3.6.1-1.3.6.4, aby przeprowadzić kaniulację końca proksymalnego LV na P2.
- Umieścić kamień napowietrzający z mieszaniną 7% dwutlenku węgla (CO2)/93% tlenu (O2) w komorze kąpieli, aby utrzymać fizjologiczne pH.
- Podłączyć komorę do regulatora temperatury i ustawić ją na 37 oC, aby LV mogły się ustabilizować i rozwinąć stabilne, spontaniczne skurcze (około 30 min).
UWAGA: Rysunek 1 szczegółowo przedstawia tę konfigurację.
2. Pomiar stężeń absolutnych [Ca2+]i w LVs
- Barwienie kanulowanych LV Fura-2AM
- Po wystąpieniu skurczów spontanicznych (z kroku 1.3.8), inkubować LV z esterem acetoksymetylowym Fura-2 (Fura-2AM; 2 µM lub 10 µL/5 mL) i kwasem pluronicznym (PA; 0,02% W/V lub 5 µL/5 mL 20% PA) przez 30 min w ciemności.
UWAGA: Po dodaniu Fura-2AM wszystkie pozostałe kroki muszą być wykonywane w ciemności. - Po 30 min wymienić roztwór w komorze perfuzyjnej 3x, opróżniając całkowitą objętość kąpieli za pomocą podciśnienia i zastępując ją PSS bez odczynników o odpowiedniej temperaturze (37 oC).
UWAGA: Należy to zrobić szybko, aby zminimalizować czas, w którym LV znajduje się w powietrzu. Należy używać obu rąk, np. prawej do obsługi podciśnienia, a lewej do uzupełniania nowego PSS bez odczynników. - Po przemyciu inkubować LV przez 15 min w ciemności, aby usunąć nadmiar wskaźnika i umożliwić deestryfikację.
- Po wystąpieniu skurczów spontanicznych (z kroku 1.3.8), inkubować LV z esterem acetoksymetylowym Fura-2 (Fura-2AM; 2 µM lub 10 µL/5 mL) i kwasem pluronicznym (PA; 0,02% W/V lub 5 µL/5 mL 20% PA) przez 30 min w ciemności.
- Rejestracja fluorescencji Ca2+ i średnicy naczynia
- Przenieść komorę na stolik odwróconego mikroskopu fluorescencyjnego wyposażonego w źródło światła LED, obiektyw 20x S Fluor, adapter do kadrowania komórek oraz szybki system kamer wideo CMOS, który umożliwia klatka po klatce rejestrację fluorescencji z częstotliwością 15 Hz.
UWAGA: Schemat tego układu roboczego przedstawiono na Rysunku 3. Sygnał Ca2+ można rejestrować za pomocą kamery CCD z szybkością co najmniej 15 fps. - Podłączyć mikroskop do komputera z oprogramowaniem do obrazowania w celu rejestracji fluorescencji i detekcji krawędzi.
UWAGA: Wspomniane oprogramowanie umożliwia również jednoczesną rejestrację ciśnienia, jednak nie jest to tutaj ujęte. - Włączyć źródło światła LED oraz interfejs systemu fluorescencyjnego.
UWAGA: Instrukcje oprogramowania opisane tutaj dotyczą wspomnianego programu, ale do uzyskania tych danych można użyć innego oprogramowania. - Otworzyć oprogramowanie (IonWizard).
- W karcie File wybrać New.
- W karcie Collect wybrać Experiment.
- Wczytać odpowiedni szablon eksperymentalny i kliknąć OK.
UWAGA: Konieczne będzie przygotowanie szablonu eksperymentalnego z parametrami do pomiaru. Instrukcje dotyczące konfiguracji szablonu znajdują się w instrukcji oprogramowania29. - Dostosować ślady na ekranie tak, aby widoczne były w kolejności malejącej: Vessel Diameter, Numerator (sygnał 340), Denominator (sygnał 380) oraz Ratio.
- Dostosować skalę osi y w razie potrzeby, aby ułatwić wizualizację śladów.
- W sekcji Traces wybrać Edit User Limits. Upewnić się, że opcja Automatic Limits jest odznaczona.
- Wybrać parametr, który należy dostosować, wprowadzić minimalną i maksymalną wartość dla osi, a następnie wybrać OK.
- Aby rozpocząć eksperyment, kliknąć START (na dole ekranu).
- Do jednoczesnego pomiaru średnicy LV użyć oprogramowania do detekcji krawędzi zintegrowanego z systemem obrazowania, które generuje ślady skurczowe LV z częstotliwością 3 Hz. Wykorzystać te pomiary do analizy parametrów skurczowych i rytmiczności opisanych w sekcji 3 i przedstawionych na Rysunku 4.
- Należy odpowiednio dostosować oświetlenie, aby ściana LV była widoczna jako ciemne linie.
- Wybrać obszar zainteresowania (ROI) wolny od tłuszczu i zanieczyszczeń. Po rozpoczęciu eksperymentu nie przesuwać tego ROI.
- Upewnić się, że próg jest ustawiony tak, aby krawędź ściany naczynia była wykrywana przez cały cykl skurczowy.
- W celu pomiarów fluorescencji włączyć fotopowielacz (PMT).
- Wzbudzić Fura-2, wskaźnik ratiometryczny, poprzez naprzemienne stosowanie długości fal 340 i 380 nm w ekspozycjach 50 ms przy użyciu iluminatorów LED, a następnie zarejestrować widma emisyjne przy 510 nm z częstotliwością 15 Hz w całym polu obrazowania.
UWAGA: Ważne jest zachowanie tych samych parametrów optycznych (ustawienia wzbudzenia, filtry emisji, obiektyw i lustra dichroiczne) dla całej serii eksperymentów, aby uzyskać powtarzalne pomiary Ca2+. - Zmierzyć stosunek sygnału do tła, uzyskując najpierw fluorescencję 340 i 380 z LV w środku pola widzenia (sygnał), a następnie, przesuwając pole widzenia za pomocą manipulatorów stolika na krawędź kąpieli bez naczynia (uważając, aby uniknąć krawędzi wyłożonej silikonem i/lub usuwając wszelkie zanieczyszczenia z kąpieli), rejestrując tło.
UWAGA: Ważne jest, aby przed każdym pomiarem Ca2+ powrócić do oryginalnej sekcji naczynia. - Wymienić roztwór w kąpieli na PSS bez odczynników o odpowiedniej temperaturze, aby usunąć nadmiar wskaźnika z kąpieli. Usunięcie nadmiaru Fura-2 może wymagać kilku wymian kąpieli, dlatego powtarzać tę czynność, aż stosunek sygnału do tła wyniesie około 10:1.
- Rejestrować bazowy sygnał fluorescencji Fura-2 i skurcze spontaniczne przez około 30 min, a następnie przeprowadzić kumulacyjną odpowiedź stężeniową na nifedypinę (NIF; 0,1-100 nM), antagonistę Cav1.x zależnego od napięcia. Uzyskać pomiary tła dla każdego stężenia leku.
- Na koniec każdego eksperymentu przemyć LV roztworem PSS bez Ca2+ o odpowiedniej temperaturze, aby uzyskać minimalny sygnał fluorescencji Fura-2 (Rmin) i maksymalną średnicę LV w obecności braku Ca2+. Należy pamiętać o pomiarze tła.
UWAGA: PSS bez Ca2+ ma taki sam skład jak PSS, ale bez CaCl2, a EDTA zostaje zastąpiony przez 1 mM EGTA (C14H24N2O10) (pH ~7,5). - Wymienić roztwór w kąpieli na PSS o odpowiedniej temperaturze zawierający 10 mM Ca2+ i ionomycynę (10 µM IONO), ionofor Ca2+, aby uzyskać maksymalny sygnał fluorescencji Fura-2 (Rmax) i minimalną średnicę LV w warunkach nasycenia Ca2+. Należy pamiętać o pomiarze tła.
- Przenieść komorę na stolik odwróconego mikroskopu fluorescencyjnego wyposażonego w źródło światła LED, obiektyw 20x S Fluor, adapter do kadrowania komórek oraz szybki system kamer wideo CMOS, który umożliwia klatka po klatce rejestrację fluorescencji z częstotliwością 15 Hz.
- Wzór do pomiaru absolutnego [Ca2+]i
- Użyć Rmin i Rmax do kalibracji stosunku długości fal 340 i 380 nm i obliczyć absolutne stężenie wolnego Ca2+ w cytozolu ([Ca2+]i).
- Obliczyć absolutne stężenie wolnego Ca2+ w cytozolu ([Ca2+]i) za pomocą równania (1)26:
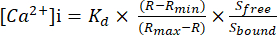 (1)
Gdzie Kd = 225 nM (stała dysocjacji dla Fura-2)26, R = stosunek 340/380, Rmin = stosunek 340/380 w obecności braku Ca2+, Rmax = stosunek 340/380 w warunkach nasycenia Ca2+, Sfree = sygnał 380 w obecności braku Ca2+, Sbound = sygnał 380 w warunkach nasycenia Ca2+
UWAGA: Wszystkie sygnały fluorescencyjne zostały skorygowane o fluorescencję tła. - Rysunek 5 przedstawia przykładowy ślad Ca2+ z wyszczególnieniem rejestrowanych parametrów. Zdefiniować bazowy poziom Ca2+ jako najniższy poziom spoczynkowy Ca2+ przed skokiem Ca2+, a szczytowy poziom Ca2+ jako najwyższy poziom Ca2+ osiągnięty podczas skoku Ca2+. Amplituda to różnica między szczytowym a bazowym poziomem Ca2+. Wszystkie parametry należy eksportować bezpośrednio z oprogramowania do obrazowania, z wyjątkiem częstotliwości skoków Ca2+, którą należy obliczyć offline jako liczbę skoków Ca2+/s. Poniżej znajdują się kluczowe kroki w wspomnianym oprogramowaniu w celu uzyskania tych parametrów.
UWAGA: Całe ślady można wyeksportować do pliku .txt, a wszystkie parametry można analizować lub obliczać w wybranym oprogramowaniu. - Dla Rmin zaznaczyć sekcję śladu Numerator, która odpowiada tłu podczas stosowania PSS bez Ca2+. Otworzy się okno dialogowe z wartościami dla tej części śladu.
- W sekcji Operations wybrać Constants.
- Wybrać Calcium-Numeric background i wprowadzić wartości tła dla Numeratora i Mianownika z poprzedniego kroku. Kliknąć OK.
- Zaznaczyć sekcję śladu Ratio, która odpowiada najniższemu stosunkowi podczas stosowania PSS bez Ca2+. Jest to Rmin. Należy również zanotować wartość Mianownika dla tej sekcji; jest to Sfree.
- Powtórzyć kroki 2.3.4 do 2.3.7 dla Rmax i Sbound dla sekcji śladu odpowiadającej wysokiemu stężeniu wolnego Ca2+ w PSS i najwyższemu stosunkowi.
- W sekcji Operations wybrać Constants.
- Wybrać Calcium-Calcium Calibration i wprowadzić wartości wymienione w Równaniu 1. Kliknąć OK.
- Dostosować jeden ze śladów na ekranie, jak opisano w kroku 2.2.8, aby widoczny był parametr Calcium-Numeric subtracted Calcium.
- Przeprowadzić analizę przejściową monotoniczną (Monotonic Transient Analysis), aby uzyskać pozostałe parametry. Instrukcje na ten temat znajdują się w instrukcji oprogramowania30.
- Alternatywnie, w sekcji Export wybrać Current Trace.
- Wybrać lokalizację eksportu pliku .txt i kliknąć OK.
UWAGA: Należy pamiętać o kliknięciu w konkretny ślad, który ma zostać wyeksportowany. Można wyeksportować cały ślad lub jego wybrane sekcje.
3. Pomiar kurczliwości i rytmiczności LV
- Oprogramowanie do detekcji krawędzi zintegrowane z systemem obrazowania generuje zapisy kurczliwości dla pomiarów średnicy LV, zgodnie z powyższym opisem. Wykorzystaj te pomiary do analizy parametrów kurczliwości i rytmiczności. Rycina 4 przedstawia przykładowy zapis kurczliwości, szczegółowo określający, które parametry kurczliwości należy zarejestrować. Wszystkie parametry wyeksportuj bezpośrednio z oprogramowania do obrazowania, korzystając z funkcji Monotonic Transient Analysis na zapisie średnicy30, z wyjątkiem częstotliwości skurczów, obliczonego przepływu oraz odstępu, które należy obliczyć poza systemem (offline).
UWAGA: Całe zapisy można wyeksportować do pliku .txt, a wszystkie parametry można analizować lub obliczać w wybranym oprogramowaniu, korzystając z poniższych równań. - Pomiary EDD, ESD, amplitudy, częstotliwości i obliczonego przepływu
- Zmierz maksymalną i minimalną średnicę (odpowiednio średnicę końcowozastępcową [EDD] i średnicę kończoskurczową [ESD]), jakie LV mogą osiągnąć podczas rytmicznych i spontanicznych skurczów.
- Oblicz amplitudę skurczów (AMP) jako różnicę między EDD a ESD.
- Oblicz częstotliwość jako liczbę skurczów w okresie pomiarowym (w s).
- Oblicz obliczony przepływ na µm, korzystając z równania (2):
Obliczony przepływ = π/4(EDD2- ESD2)F (2)
Gdzie EDD2 = przekrój poprzeczny naczynia w stanie rozluźnienia, ESD2 = miara przekroju poprzecznego naczynia podczas skurczu, F = częstotliwość skurczów/s
- Rytmiczność: czas skurczu i rozkurczu:
- Innymi miarami rytmiczności LV są czas skurczu i czas rozkurczu.
- Zdefiniuj czas skurczu jako czas potrzebny na osiągnięcie ESD przez LV przy każdym skurczu.
- Zdefiniuj czas rozkurczu jako czas potrzebny na osiągnięcie EDD przez LV przy każdym rozkurczu, co da ogólną wskazówkę dotyczącą rytmiczności skorelowanej z absolutnym stężeniem [Ca2+]i w określonym przedziale czasowym.
- Oblicz czas odstępu (ΔT) z równania (3).
Δt = t2 (ESD2)-t1 (ESD1) (3)
Wyniki
Kurczliwość naczyń limfatycznych (LVs) oraz odpowiadające im zmiany w wolnym Ca2+ cytozolu ([Ca2+]i) oceniano w izolowanych naczyniach limfatycznych krezki szczura po ekspozycji na różne stężenia nifedypiny (NIF; 0.1-100 nM) (Rysunek 6). Parametry, w tym amplituda skoku Ca2+, bazowy poziom Ca2+ oraz szczytowy poziom Ca2+, wykazywały zależny od stężenia spadek wraz z sukcesywnym dodawaniem NIF do komory perfuzyjnej (Rysunek 7A). Jednocześnie parametry kurczliwości, takie jak amplituda skurczu i obliczony przepływ, również wykazały stopniowy spadek (Rysunek 7B). Odnotowano niewielki wzrost średnicy EDD pod wpływem NIF (Rysunek 7B). Częstotliwość skoków Ca2+ oraz częstotliwość skurczów wydają się być odpowiedzią typu wszystko albo nic. Jednak efekt ten wystąpił przy 10 nM w przypadku jednego naczynia LV, podczas gdy we wszystkich naczyniach LV skurcze ustały przy 100 nM. Tym samym połączone dane tworzą wykresy przypominające stopniową odpowiedź zależną od stężenia. Efekt ten jest zgodny z wcześniejszymi publikacjami, w których stosowano NIF w badaniach LVs w innych preparatach (miografia druciana i ciśnieniowa13,14). Wykresy Manhattan pokazują indywidualne odpowiedzi LVs dla miar rytmiczności, w tym odstępu, czasu skurczu i czasu rozkurczu (Rysunek 7C). Ten rodzaj prezentacji danych pozwala badaczowi wyodrębnić te odpowiedzi typu wszystko albo nic lub zmienność rytmów skurczu, co dostarcza dodatkowych informacji o mechanizmach leżących u podstaw tych zjawisk. Ostatecznie spadki amplitudy i częstotliwości skurczów doprowadziły do zmniejszenia obliczonego przepływu przez te izolowane LVs, co służy jako wskaźnik zastępczy dla funkcji in vivo. Ogólnie spadek kurczliwości LVs korelował ze zmniejszeniem [Ca2+]i. Nasze wyniki stanowią bezpośredni dowód na to, że w zakresie do 100 nM NIF skutecznie hamuje skurcze i oscylacje [Ca2+]i w LVs poprzez antagonizowanie kanałów Cav1.x obecnych w komórkach mięśni limfatycznych (LMCs).
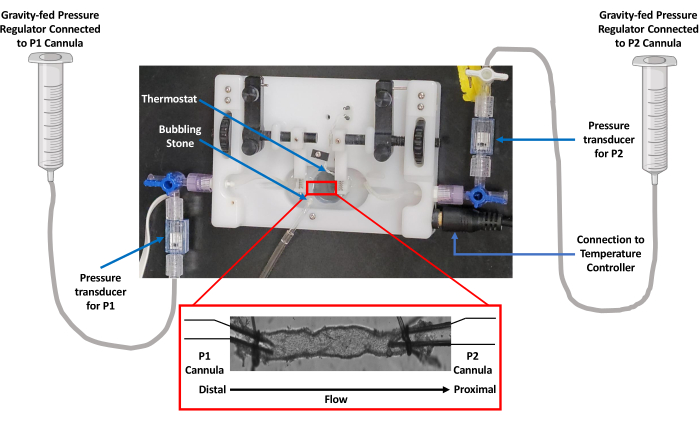
Rysunek 1: Zdjęcie układu izolowanej komory naczyniowej. W badaniach nad perfuzją naczyń wykorzystano izolowaną komorę naczyniową wyposażoną w termoregulator. Do kontroli ciśnienia za pomocą zbiornika z PSS wykorzystano grawitację. Ciśnienie monitorowano za pomocą przetworników podłączonych do kaniul doprowadzających (P1) i odprowadzających (P2). Skrót: PSS = fizjologiczny roztwór soli. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
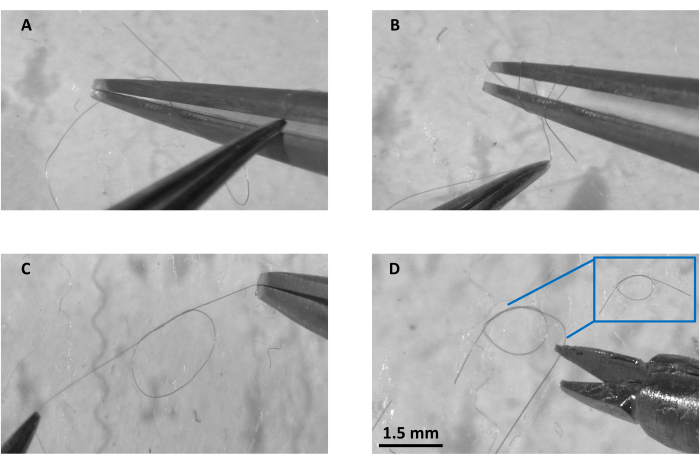
Rycina 2: Schemat przygotowania węzła. (A) Przygotowanie podwójnej pętli pod mikroskopem stereoskopowym przy użyciu pojedynczej nici z 3-warstwowej jedwabnej nici chirurgicznej, (B) chwycenie wolnego końca i przeciągnięcie go przez obie pętle, (C) zaciśnięcie węzła z obu stron, aby zachować niewielki otwór, oraz (D) odcięcie nadmiaru nici z każdej strony; niebieska ramka pokazuje gotowy do użycia pełny podwójny węzeł nadgarstkowy. Pasek skali = 1.5 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
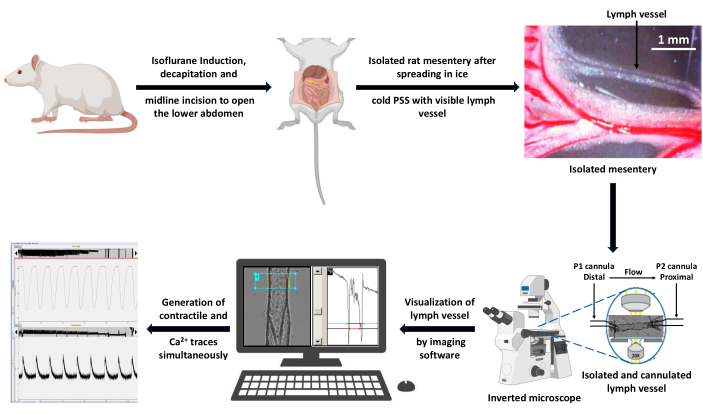
Rysunek 3: Schemat przepływu pracy eksperymentalnej dla pozyskiwania danych. Zdrowego szczura zanieczulono poprzez indukcję 5% izofluranem, a następnie przeprowadzono dekapitację w celu usunięcia krwi z tułowia. Wykonano cięcie w linii pośrodkowej, aby odsłonić i wyizolować krezkę. Wyizolowaną krezkę rozłożono w lodowatym roztworze PSS, a LV oddzielono od tkanki tłuszczowej w celu kanulacji w izolowanej komorze perfuzyjnej naczyń. Kąpiel umieszczono na stoliku mikroskopu odwróconego, korzystając z obiektywu 20x. Naczynie pobudzano naprzemiennie światłem o długości fali 340 i 380 nm, a widma fluorescencyjne emisji rejestrowano za pomocą kamery CCD przy 510 nm. Komputer podłączony do mikroskopu generował zapisy skurczowe i Ca2+ przy użyciu oprogramowania do przechwytywania fluorescencji i detekcji krawędzi obrazu. Pasek skali = 1 mm. Skróty: PSS = fizjologiczny roztwór soli; LV = naczynie limfatyczne; CCD = urządzenie sprzężone ładunkowo. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
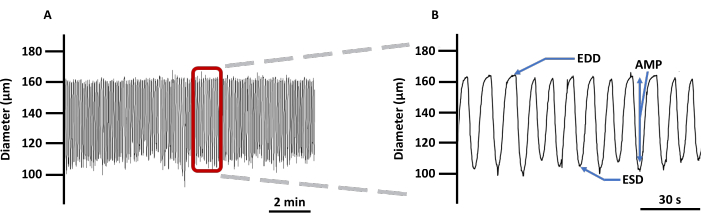
Rycina 4: Reprezentatywny zapis kurczliwości naczyń limfatycznych (LV). (A) Przykładowy zapis zmian średnicy kaniulowanych LV obciążonych wskaźnikiem obrazowania Ca2+ Fura 2 AM w PSS oraz (B) powiększony zapis pokazujący wszystkie parametry związane z kurczliwością naczyń: EDD, ESD, AMP i częstotliwość. Wartości te zostały wykorzystane do obliczenia rytmiczności i przepływu. Skróty: PSS = fizjologiczny roztwór soli; LV = naczynie limfatyczne; EDD = średnica końcowodiastoliczna; ESD = średnica końcowosystoliczna; AMP = amplituda. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
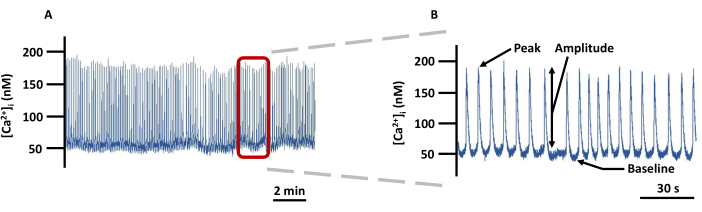
Rycina 5: Reprezentatywny zapis obrazowania Ca2+ w LV. (A) Przykład zapisu zmian bezwzględnego stężenia [Ca2+]i w kaniulowanych LV obciążonych Fura-2 w PSS oraz (B) powiększony zapis przedstawiający wszystkie parametry (Peak, Amplitude oraz Baseline) związane z [Ca2+]i (bez korekcji tła). Skrót: PSS = fizjologiczny roztwór soli. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
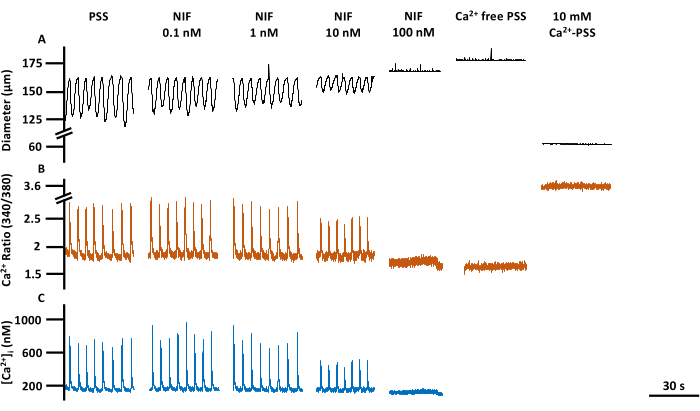
Rycina 6: Przegląd kurczliwości LV i obrazowania Ca2+. Reprezentatywne zapisy odpowiadające (A) średnicy, (B) stosunkowi 340/380 oraz (C) bezwzględnemu stężeniu [Ca2+]i przy linii bazowej PSS, nifedypinie (antagoniście kanałów Cav1.x (Ca2+)) oraz odpowiedzi na stężenie, w tym Rmin i Rmax. Skróty: PSS = fizjologiczny roztwór soli; LV = naczynie limfatyczne; NIF = nifedypina; Rmin = minimalny sygnał fluorescencji Fura-2; Rmax = maksymalny sygnał fluorescencji Fura-2. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
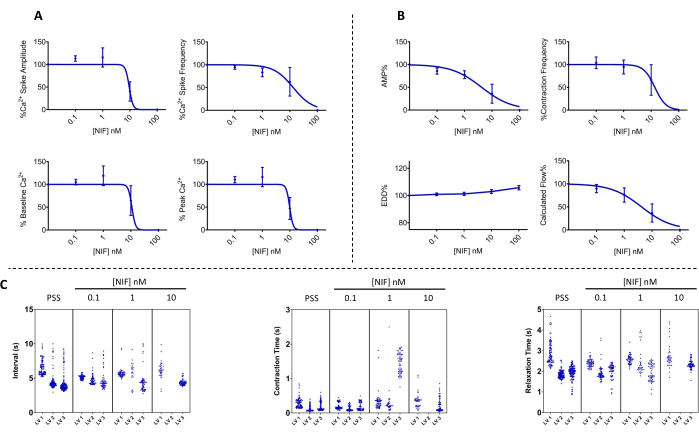
Rysunek 7: Oscylacje Ca2+ i odpowiadająca im kurczliwość zablokowane przez nifedypinę w LV. (A) Parametry Ca2+ (n = 3) oraz (B) kurczliwości (n = 3) ulegały zmniejszeniu w sposób zależny od stężenia po dodaniu nifedypiny, antagonisty napięciowo-zależnych kanałów Cav1.x (Ca2+). (C) Reprezentatywne wykresy Manhattan przedstawiają średni odstęp czasowy (Δt) między skurczami oraz czasy skurczu i rozkurczu. Dane przedstawiono jako średnia ± SEM. Skróty: PSS = fizjologiczny roztwór soli; LV = naczynie limfatyczne; NIF = nifedypina; EDD = średnica koniec-rozkurczowa; AMP = amplituda. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Ze względu na delikatną i drobną naturę LV konieczne jest zachowanie najwyższej ostrożności zarówno podczas procesu preparacji, jak i kaniulacji. Nawet niewielkie uszkodzenie naczynia może prowadzić do rozwoju nieżywotnej lewej komory lub powodować nieprawidłowości w stanach nieustalonych [Ca2+]i . Spójność ustawień wzbudzenia jest równie istotna w całej serii eksperymentalnej, aby zapewnić porównywalność w pomiarach [Ca2+]i między grupą kontrolną a grupą leczoną. Niezachowanie jednolitych ustawień stwarza znaczne ryzyko przeszacowania lub niedoszacowania [Ca2+]i na wszystkich statkach w ramach serii eksperymentalnej. Podobnie, równie ważne jest dokładne identyfikowanie i monitorowanie tego samego regionu naczynia podczas każdego eksperymentu.
Zastosowanie wskaźnika ratiometrycznego Fura-2AM normalizuje zmiany fluorescencji spowodowane nierówną grubością tkanki, rozkładem/wyciekiem fluoroforu lub fotowybielaniem, problemami powszechnymi w przypadku barwników o pojedynczej długości fali. 31 Umożliwia to ciągłe monitorowanie opisane w niniejszym protokole. Ponieważ jednak Fura-2 działa poprzez chelatację Ca2+, możliwe jest przeciążenie LV i zmniejszenie [Ca2+]i dostępnego do skurczu lub odpowiedzi na lek. W takich przypadkach skoki Ca2+ mogą być nadal obserwowane, gdy nie ma rytmicznych skurczów. Różna długość lewej komory również może przyczyniać się do tego zjawiska. Chociaż te pomiary Ca2+ prawdopodobnie mogą być nadal ważne, może być konieczne zmniejszenie stężenia Fura-2AM w replikowanych konfiguracjach, aby z powodzeniem osiągnąć zarówno pomiary Ca2+ , jak i średnicy. Nasze wyniki obejmują tylko LV, dla których zarówno skoki Ca2+ , jak i rytmiczne skurcze były obecne na początku badania.
Pomiar R, min i R, max jest krytycznym etapem obliczania wartości bezwzględnej [Ca2+]i. Ponieważ Rmin powinno być stosunkiem Fura-2 przy braku Ca2+, do PSS wolnego od Ca2+ dodano wysokie stężenie EGTA, aby zapewnić chelatację wszelkich pozostałych Ca2+. Wstępne badania przeprowadzono z EDTA w PSS wolnym od Ca2+, co skutkowało sporadycznymi skurczami naczyń z odpowiadającymi im kolcami Ca2+ . W przypadku Rmax do PSS dodano wysokie stężenie Ca2+ wraz z jonoforem, jonomycyną, aby zmaksymalizować sygnał [Ca2+]i . Roztwór o wysokiej zawartości Ca2+ może się wytrącać, co może wymagać usunięcia EDTA z PSS. Co ważne, te dodatkowe pomiary Rmin i Rmax dają możliwość oceny fizjologicznie istotnych zmian w [Ca2 + ]i, co może dostarczyć informacji na temat mechanizmów pobudliwości i kurczliwości błony27 , a także pozwolić na porównania wyjściowe między grupami eksperymentalnymi w porównaniu z protokołami, które podają tylko stosunek 340/380 dla Fura-2. Nieosiągnięcie odpowiednich wartości R, min i R, max wyklucza możliwość obliczenia wartości bezwzględnych [Ca2+]i.
Ze względu na kurczliwy charakter LV, metoda ta może zapewnić jedynie pomiar globalnych poziomów Ca2 +, a nie lokalnych zdarzeń uwalniania Ca2 +, które można zmierzyć w sparaliżowanych naczyniach32. Jednak metoda ta jest korzystna do korelowania zmian bezwzględnej dynamiki [Ca2 +] i ze kurczliwością w porównaniu z metodami wykorzystującymi sparaliżowane naczynia lub pojedyncze komórki28,32. W tym podejściu zakłada się, że większość mierzonego Ca2+ pochodzi z komórek mięśni limfatycznych. Jednak komórki śródbłonka, które są również obecne w tych izolowanych LV, mogą przyczyniać się do całkowitego obserwowanego sygnału Ca2 + 33. Wkład ten można oszacować na podstawie lewej komory nabłonkowej, która została ogołocona ze śródbłonka34. Skurcze LV mogą również powodować nieznaczne przesuwanie się ściany naczynia do przodu i z ostrości podczas cyklu skurczu. Dlatego ważne jest, aby używać krótkich segmentów naczynia, które można naciągnąć mocno, ale bez rozciągania naczynia.
Poza zastosowaniem w lewej dawce, metoda ta może być wykorzystana do badania izolowanych naczyń z innych łożysk naczyniowych, w tym tętniczek i żył, i jest obiecująca do potencjalnego wykorzystania w neurobiologii i innych gałęziach biologii naczyniowej. Badanie wpływu różnych agonistów lub antagonistów ukierunkowanych na różne szlaki transdukcji sygnału to kolejna droga do zbadania podstawowej dynamiki Ca2 + . Co więcej, technika ta może być również stosowana do badań porównawczych obejmujących próbki kontrolne i poddane działaniu substancji od odpowiednich zwierząt. Co więcej, podejście to można dostosować do wdrożenia na poziomie komórkowym, na przykład w izolowanych komórkach mięśni limfatycznych, co wymaga minimalnych regulacji komory perfuzyjnej i obiektywów mikroskopu. Podsumowując, metoda ta zapewnia fizjologicznie istotny wgląd w globalną dynamikę Ca2+ , ponieważ koreluje z kurczliwością i rytmicznością w LV oraz zapewnia solidną ocenę potencjalnych regulatorów dynamiki Ca2+ w zbieraniu LV.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez National Institutes of Health, w tym National Institute of General Medical Sciences, Centers of Biomedical Research Excellence (COBRE), Center for Studies of Host Response to Cancer Therapy [P20-GM109005], National Cancer Institute [1R37CA282349-01] oraz American Heart Association Predoctoral Fellowship [Numer nagrody: 23PRE1020738; https://doi.org/10.58275/AHA.23PRE1020738.pc.gr.161089]. Wyłączną odpowiedzialność za treść ponoszą autorzy i niekoniecznie reprezentują one oficjalne poglądy NIH lub AHA. Rysunki 1 i 3 zostały stworzone przy użyciu BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Obiektyw fluorescencyjny 20x S | Olympus Corporation of the Americas (Center Valley, PA, Stany Zjednoczone) | UPlanSApo | |
| Mikropipety ze szkła borokrzemianowego | Oprzyrządowanie systemów żywych (Burlington, VT, Stany Zjednoczone) | GCP-75-100 | |
| Chlorek wapnia (CaCl2) | Bioodczynniki Fisher (Waltham, MA, Stany Zjednoczone) | BP510-500 | |
| Dwutlenek węgla (CO2) | nexAir (Memphis, TN, Stany Zjednoczone) | UN3156 | |
| Kleszcze preparacyjne | Fine Science Tools (Foster City, CA, Stany Zjednoczone) | 11254-20 | |
| EDTA (C10H16N2O8) | Odczynniki Fisher (Waltham, MA, Stany Zjednoczone) | BP118-500 | |
| EGTA (C14H24N2O10) | Fisher Bioreagents (Waltham, MA, Stany Zjednoczone) | O2783-100 | |
| Fura-2AM | Invitrogen (Waltham, MA, Stany Zjednoczone) | F1221 | |
| Glukoza (C6H12O6) | Odczynniki Fisher (Waltham, MA, Stany Zjednoczone) | D16-500 | |
| Grawitacyjny regulator ciśnienia | wykonany na zamówienie w laboratorium | ||
| Jednostka grzewcza | Living Systems Instrumentation (Burlington, VT, Stany Zjednoczone) | TC-09S | |
| Oprogramowanie do obrazowania | IonOptix (Westwood, MA, Stany Zjednoczone) | ||
| Odwrócony mikroskop fluorescencyjny | Olympus Corporation of the Americas (Center Valley, PA, Stany Zjednoczone) | IX73 | |
| Ionomycin | Invitrogen (Waltham, MA, Stany Zjednoczone) | I24222 | |
| IonOptix Cell Framing Adaptor | IonOptix (Westwood, MA, Stany Zjednoczone) | 665 DXR | |
| Isoflurane | Piramal Critical Care (Telangana, Indie) | NDC 66794-017-10 | |
| Izolowana komora perfuzyjna naczynia | Oprzyrządowanie Żywych Systemów (Burlington, VT, Stany Zjednoczone) | CH-1 | |
| Kleszcze do przygotowania węzłów | Fine Science Tools (Foster City, CA, Stany Zjednoczone) | 11253-20 | |
| Źródło światła LED | Olympus Corporation of the Americas (Center Valley, PA, Stany Zjednoczone) | TL4 | |
| Siarczan magnezu (MgSO4) | Acros Organics (New Jersey, NJ, Stany Zjednoczone) | 213115000 | |
| System wideo MyoCam-S3 Fast CMOS | IonOptix (Westwood, MA, Stany Zjednoczone) | MCS300 | |
| Nifedipine | Sigma (St. Louis, MO, Stany Zjednoczone) | N7634 | |
| Nici | |||
| Tlen (O2) | nexAir (Memphis, TN, Stany Zjednoczone) | UN1072 | |
| Kwas pluronowy | Sigma (St. Louis, MO, Stany Zjednoczone) | P2443 | |
| Chlorek potasu (KCl) | Bioodczynniki Fisher (Waltham, MA, Stany Zjednoczone | BP366-500 | |
| System monitorowania ciśnienia | Oprzyrządowanie systemów żywych (Burlington, VT, Stany Zjednoczone) | PM-4 | |
| Przetwornik ciśnienia | Oprzyrządowanie systemów żywych (Burlington, VT, Stany Zjednoczone) | PT-F | |
| Wyłożona silikonem szalka Petriego | wykonana na zamówienie w laboratorium | ||
| Wodorowęglan sodu (NaHCO3) | Bioodczynniki Fisher (Waltham, MA, Stany Zjednoczone | BP328-500 | |
| Chlorek sodu (NaCl) | Odczynniki Fishera (Waltham, MA, Stany Zjednoczone | BP358-212 | |
| Fosforan sodu (NaH2PO4) | Bioodczynniki Fisher (Waltham, MA, Stany Zjednoczone | BP329-500 | |
| Szczury Sprague-Dawley | Envigo RMS (Indianapolis, IN, USA) | Samiec | w wieku 9-13 tygodni |
| Mikroskop stereoskopowy | Leica Microsystems (Wetzlar, Niemcy) | Nożyczki sprężynowe S9D | |
| Vannas | Fine Science Tools (Foster City, CA, Stany Zjednoczone) | 15000-03 |
Bibliografia
- Takahashi, T., Shibata, M., Kamiya, A. Mechanism of macromolecule concentration in collecting lymphatics in rat mesentery. Microvasc Res. 54 (3), 193-205 (1997).
- Ishikawa, Y., et al. The human renal lymphatics under normal and pathological conditions. Histopathology. 49 (3), 265-273 (2006).
- Fanous, M. Y. Z., Phillips, A. J., Windsor, J. A. Mesenteric lymph: the bridge to future management of critical illness. JOP. 8 (4), 374-399 (2007).
- El-Chemaly, S., Levine, S. J., Moss, J. Lymphatics in lung disease. Ann N Y Acad Sci. 1131 (1), 195-202 (2008).
- Klotz, L., et al. Cardiac lymphatics are heterogeneous in origin and respond to injury. Nature. 522 (7554), 62-67 (2015).
- Louveau, A., et al. Structural and functional features of central nervous system lymphatic vessels. Nature. 523 (7560), 337-341 (2015).
- Aukland, K., Reed, R. K. Interstitial-lymphatic mechanisms in the control of extracellular fluid volume. Physiol Rev. 73 (1), 1-78 (1993).
- Zawieja, D. C. Contractile physiology of lymphatics. Lymphat Res Biol. 7 (2), 87-96 (2009).
- Nipper, M. E., Dixon, J. B. Engineering the Lymphatic System. Cardiovasc Eng Technol. 2 (4), 296-308 (2011).
- Choi, I., Lee, S., Hong, Y. K. The new era of the lymphatic system: No longer secondary to the blood vascular system. Cold Spring Harb Perspect Med. 2 (4), 006445(2012).
- Ji, R. C. Lymphatic endothelial cells, lymphedematous lymphangiogenesis, and molecular control of edema formation. Lymphat Res Biol. 6 (3-4), 123-137 (2008).
- Scallan, J. P., Zawieja, S. D., Castorena-Gonzalez, J. A., Davis, M. J. Lymphatic pumping: mechanics, mechanisms and malfunction. J Physiol. 594 (20), 5749-5768 (2016).
- Lee, S., Roizes, S., vonder Weid, P. Y. Distinct roles of L- and T-type voltage-dependent Ca2+ channels in regulation of lymphatic vessel contractile activity. J Physiol. 592 (24), 5409-5427 (2014).
- Telinius, N., et al. Human lymphatic vessel contractile activity is inhibited in vitro but not in vivo by the calcium channel blocker nifedipine. J Physiol. 592 (21), 4697-4714 (2014).
- Imtiaz, M. S., Zhao, J., Hosaka, K., vonder Weid, P. Y., Crowe, M., van Helden, D. F. Pacemaking through Ca2+ stores interacting as coupled oscillators via membrane depolarization. Biophys J. 92 (11), 3843-3861 (2007).
- Jo, M., Trujillo, A. N., Yang, Y., Breslin, J. W. Evidence of functional ryanodine receptors in rat mesenteric collecting lymphatic vessels. Am J Physiol Heart Circ Physiol. 317 (3), H561-H574 (2019).
- Stolarz, A. J., et al. Doxorubicin Activates Ryanodine Receptors in Rat Lymphatic Muscle Cells to Attenuate Rhythmic Contractions and Lymph Flow. J Pharmacol Exp Ther. 371 (2), 278-289 (2019).
- Van, S., et al. Dantrolene Prevents the Lymphostasis Caused by Doxorubicin in the Rat Mesenteric Circulation. Front Pharmacol. 12, 727526(2021).
- Atchison, D. J., Johnston, M. G. Role of extra- and intracellular Ca2+ in the lymphatic myogenic response. Am J Physiol Regul Integr Comp Physiol. 272 (1), R326-R333 (1997).
- Atchison, D. J., Rodela, H., Johnston, M. G. Intracellular calcium stores modulation in lymph vessels depends on wall stretch. Can J Physiol Pharmacol. 76 (4), 367-372 (1998).
- Zhao, J., van Helden, D. F. ET-1-associated vasomotion and vasospasm in lymphatic vessels of the guinea-pig mesentery. Br J Pharmacol. 140 (8), 1399-1413 (2003).
- Cotton, K. D., Hollywood, M. A., McHale, N. G., Thornbury, K. D. Outward currents in smooth muscle cells isolated from sheep mesenteric lymphatics. J Physiol. 503 (1), 1-11 (1997).
- Mathias, R., vonder Weid, P. Y. Involvement of the NO-cGMP-KATP channel pathway in the mesenteric lymphatic pump dysfunction observed in the guinea pig model of TNBS-induced ileitis. Am J Physiol Gastrointest Liver Physiol. 304 (6), G623-G634 (2013).
- Garner, B. R., et al. KATP channel openers inhibit lymphatic contractions and lymph flow as a possible mechanism of peripheral edema. J Pharmacol Exp Ther. 376 (1), 40-50 (2021).
- Souza-Smith, F. M., Kurtz, K. M., Breslin, J. W. Measurement of cytosolic Ca2+ in isolated contractile lymphatics. J Vis Exp. (58), e3438(2011).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. J Biol Chem. 260 (6), 3440-3450 (1985).
- Hill-Eubanks, D. C., Werner, M. E., Heppner, T. J., Nelson, M. T. Calcium signaling in smooth muscle. Cold Spring Harb Perspect Biol. 3 (9), 1-20 (2011).
- Harmer, A. R., Abi-Gerges, N., Morton, M. J., Pullen, G. F., Valentin, J. P., Pollard, C. E. Validation of an in vitro contractility assay using canine ventricular myocytes. Toxicol Appl Pharmacol. 260 (2), 162-172 (2012).
- IonOptix LLC. IonWizard 7.2 Acquisition. , IonOptix LLC. Westwood, PA. (2017).
- IonOptix LLC. IonWizard 7.2 Core & Analysis Functions. IonOptix LLC. , IonOptix LLC. Westwood, PA. (2017).
- Roe, M. W., Lemasters, J. J., Herman, B. Assessment of Fura-2 for measurements of cytosolic free calcium. Cell Calcium. 11 (2-3), 63-73 (1990).
- Zawieja, S. D., et al. Ano1 mediates pressure-sensitive contraction frequency changes in mouse lymphatic collecting vessels. J Gen Physiol. 151 (4), 532-554 (2019).
- Behringer, E. J., et al. Calcium and electrical dynamics in lymphatic endothelium. J Physiol. 595 (24), 7347-7368 (2017).
- Ferrusi, I., Zhao, J., van Helden, D., vonder Weid, P. Y. Cyclopiazonic acid decreases spontaneous transient depolarizations in guinea pig mesenteric lymphatic vessels in endothelium-dependent and -independent manners. Am J Physiol Heart Circ Physiol. 286 (6), H2287-H2295 (2004).
Przedruki i uprawnienia
