W tym badaniu prezentujemy metodę in vivo do szacowania liczby i wielkości jednostek motorycznych w celu ilościowego określenia połączenia jednostki motorycznej membrany szczura. Opisano podejście krok po kroku do tych technik.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Ocena miar wyników łączności przepony przeponowej jednostki motorycznej szczura jako ilościowych biomarkerów zwyrodnienia i kompensacji neuronów ruchowych frenii
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Utrata funkcji mięśni wentylacyjnych jest konsekwencją uszkodzenia neuronu ruchowego i neurodegeneracji (np. odpowiednio uszkodzenie rdzenia kręgowego szyjnego i stwardnienie zanikowe boczne). Freniczne neurony ruchowe są ostatnim ogniwem między ośrodkowym układem nerwowym a mięśniami, a ich odpowiednie jednostki motoryczne (grupy włókien mięśniowych unerwionych przez pojedynczy neuron ruchowy) reprezentują najmniejszą jednostkę funkcjonalną układu nerwowo-mięśniowego. Złożony potencjał czynnościowy mięśni (CMAP), potencjał pojedynczej jednostki motorycznej (SMUP) i szacowanie liczby jednostek motorycznych (MUNE) są uznanymi podejściami elektrofizjologicznymi, które umożliwiają podłużną ocenę integralności jednostek motorycznych w modelach zwierzęcych w czasie, ale najczęściej stosowano je do mięśni kończyn. Dlatego celem tego badania jest opisanie podejścia w przedklinicznych badaniach na gryzoniach, które można zastosować podłużnie do ilościowego określenia frenicznego MUNE, wielkości jednostki motorycznej (reprezentowanej jako SMUP) i CMAP, a następnie wykazania użyteczności tych podejść w modelu utraty neuronów ruchowych. Czułe, obiektywne i istotne translacyjnie biomarkery uszkodzeń, degeneracji i regeneracji neuronów w uszkodzeniach i chorobach neuronów ruchowych mogą znacznie pomóc i przyspieszyć odkrycia w badaniach eksperymentalnych do testów klinicznych.
Wprowadzenie
Freniczne neurony ruchowe (MN), rozciągające się od poziomów miotomii C3 do C6, tworzą końcowe ogniwo od ośrodkowego układu nerwowego (OUN) do mięśnia przepony1. Przeponowe jednostki motoryczne (MU) składają się z pojedynczego rdzeniowego MN i jego unerwionych włókien mięśniowych przepony, tworzących najmniejszą jednostkę funkcjonalną układu nerwowo-mięśniowego układu oddechowego. Funkcja wentylacji wymaga odpowiedniego skurczu mięśnia przepony osiągniętego poprzez skoordynowaną aktywację przepony MU pool2,3. Wiele chorób neurologicznych, w tym stwardnienie zanikowe boczne (ALS), prowadzi do poważnych zaburzeń wentylacji, ostatecznie przyczyniając się do przyczyny śmierci4.
Kilka podejść elektrofizjologicznych może być zastosowanych do oceny i monitorowania integralności puli jednostek motorycznych (MU) in vivo. Złożony potencjał czynnościowy mięśni (CMAP) odzwierciedla zsumowaną depolaryzację wszystkich włókien mięśniowych w określonym mięśniu lub grupie mięśni po stymulacji nerwów obwodowych i jest wrażliwy na szereg schorzeń nerwowo-mięśniowych, w tym ALS5,6 i rdzeniowy zanik mięśni (SMA)7,8,9. Ograniczeniem oceny CMAP jest to, że kiełkowanie uboczne może prowadzić do utrzymania amplitudy i powierzchni CMAP nawet w obecności strat MU10. Aby przezwyciężyć to ograniczenie, wprowadzono modyfikacje w technice CMAP w celu oceny zarówno liczby jednostek motorycznych, jak i rozmiaru11. Ponadto badanie in vivo badające funkcjonalną ocenę CMAP przepony za pomocą systemu elektrofizjologicznego zasugerowało, że możliwe jest również wykorzystanie opisanej techniki zapisu CMAP membrany do szacowania liczby jednostek motorycznych12.
Technika przyrostowego szacowania liczby jednostek motorycznych (MUNE) została początkowo wprowadzona na początku lat siedemdziesiątych przez McComas et al. dla mięśnia prostownika palca brevis u ludzi13. Podejście przyrostowe MUNE było modyfikacją tradycyjnej techniki zapisu CMAP, podczas której dostarczano stopniowo zwiększającą się stymulację w celu zarejestrowania ilościowych, submaksymalnych przyrostów typu "wszystko albo nic" jako wskaźników odpowiedzi pojedynczej jednostki motorycznej. Zsumowane i uśrednione przyrosty wykorzystano do obliczenia oszacowania wielkości potencjału pojedynczej jednostki motorycznej (SMUP). Ten obliczony rozmiar został następnie podzielony na amplitudę CMAP, aby oszacować liczbę MU unerwiających badany mięsień11. MUNE wykazuje wysoką czułość w wykrywaniu i monitorowaniu utraty jednostek motorycznych, co pozwala na identyfikację dysfunkcji jednostki motorycznej przed obserwowalnymi zmianami w pomiarach, takich jak amplituda CMAP lub obszar14,15. U pacjentów z ALS MUNE okazał się wyjątkowo czuły, służąc jako ważny biomarker dla początku, progresji i rokowania choroby16,17.
Liczne adaptacje MUNE zostały opracowane i szeroko stosowane do oceny funkcji MUNE w warunkach takich jak neurodegeneracja, uszkodzenie układu nerwowego i naturalny proces starzenia18,19,20,21. Od czasu początkowego opisu, zarówno w badaniach na ludziach, jak i na modelach zwierzęcych, zastosowano różne adaptacje wykorzystujące zarówno reakcje elektrofizjologiczne, jak i pomiary siły przyrostowej (mechanicznej)22. MUNE zapewnia nieinwazyjną ocenę funkcjonalną połączenia neuronów ruchowych z mięśniem. Długotrwałe stosowanie MUNE umożliwia zrozumienie progresji choroby lub indukowanego fenotypu oraz ocenę ochronnych lub regeneracyjnych efektów interwencji terapeutycznych, zarówno w warunkach klinicznych, jak i przedklinicznych. Niezależnie od skuteczności pomiarów odtwarzalności MUNE i klinicznego znaczenia tej techniki dla basenów MU w większości ludzkiego ciała, wysiłki w dużej mierze koncentrowały się na mięśniach kończyn w mięśniach gryzoni10,23,24,25.
Dlatego celem tego badania było opisanie podejścia do uzyskania złożonego potencjału czynnościowego mięśni (CMAP), SMUP i liczby frenicznej jednostki motorycznej (MUNE) jako ocen in vivo, które mogą być używane podłużnie w przedklinicznych badaniach na gryzoniach do ilościowego określenia MUNE, wielkości jednostki motorycznej (reprezentowanej jako SMUP) i CMAP. Ponadto przedstawiamy reprezentatywne dane, które podkreślają utratę liczby MU przepony po doopłucnowym podaniu czynnika zwyrodnieniowego MN, fragmentu toksyny B sprzężonego z saporyną (CTB-SAP).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie procedury zostały zatwierdzone i przeprowadzone zgodnie z wytycznymi ustanowionymi przez Instytucjonalny Komitet ds. Opieki i Korzystania ze Zwierząt (Institutional Animal Care and Use Committee) na Uniwersytecie Missouri. Eksperymenty przeprowadzono na dorosłych samcach szczurów linii Sprague-Dawley w wieku od 1 do 15 tygodni. Szczury te były kwaterowane parami i utrzymywane w 12:12 godzinnym cyklu światło-ciemność, z nieograniczonym dostępem do standardowej komercyjnej karmy granulowanej oraz wody traktowanej HCl.
1. Przygotowanie zwierząt i podanie znieczulenia
- Stosuj odpowiednie środki ochrony osobistej podczas pracy ze szczurami.
- Podaj anestetyk wziewny w stężeniu 3-5% izofluranu, zapewniając prawidłową indukcję. Po odpowiednim znieczuleniu szczura umieść go w pozycji grzbietnej i utrzymuj znieczulenie, podając 1-3% wziewnego izofluranu. Sprawdź głębokość znieczulenia, delikatnie uciskając pęcinę kończyny tylnej pęsetą, aby upewnić się, że nie występuje odruch wycofania.
UWAGA: Monitoruj głębokość znieczulenia w zależności od wielkości i masy ciała szczura i odpowiednio dostosuj stężenie izofluranu. - Utrzymuj temperaturę 37 °C za pomocą termostatycznej płyty grzejnej, aby zapobiec wahaniom temperatury, które mogą wpłynąć na amplitudę i latencję CMAP.
- Nałóż na oczy weterynaryjną maść na bazie wazeliny, aby zapobiec ich wysychaniu. Monitoruj głębokość znieczulenia, obserwując częstotliwość oddychania oraz sprawdzając odruchy wycofania podczas uciskania pęciny pęsetą.
- Usuń maszynką do strzyżenia włosy z dolnej jednej trzeciej klatki piersiowej i szyi w obszarze badanym. Monitoruj oddychanie szczura przez cały czas trwania eksperymentu.
UWAGA: Po rejestracji CMAP i MUNE oraz przerwaniu znieczulenia nie pozostawiaj szczura bez nadzoru do momentu odzyskania przez niego wystarczającej świadomości. Nie przenosić zwierzęcia do klatki domowej aż do pełnego wybudzenia.
2. Rozmieszczenie i konfiguracja elektrod
- Umieść parę jednobiegunowych elektrod igłowych 28 G w celu rejestracji CMAP, SMUP oraz MUNE, zgodnie z przedstawionym na Rysunku 1.
- Aktywną elektrodę igłową (E1) umieść podskórnie w linii środkowej obojczyka poniżej krawędzi ostatniego żebra, a elektrodę referencyjną (E2) podskórnie w kącie między wyrostkiem mieczykowatym a ostatnią chrząstką żebrową mostka.
UWAGA: Elektrody igłowe nie powinny być wbijane do mięśnia przeponowego; zamiast tego należy je umieścić w obszarze podskórnym.
- Aktywną elektrodę igłową (E1) umieść podskórnie w linii środkowej obojczyka poniżej krawędzi ostatniego żebra, a elektrodę referencyjną (E2) podskórnie w kącie między wyrostkiem mieczykowatym a ostatnią chrząstką żebrową mostka.
- Do stymulacji nerwu przeponowego w obrębie pochewki szyjnej użyj pary jednobiegunowych elektrod igłowych 28 G jako katody i anody do stymulacji nerwu; umieść je podskórnie w bocznej części szyi między przednim a środkowym mięśniem scalenusem, w odstępie około 1 cm. Upewnij się, że elektrody stymulujące są rozmieszczone poniżej poziomu czwartego kręgu szyjnego (C4).
UWAGA: Należy unikać zbyt głębokiego wprowadzania elektrod stymulujących, aby zapobiec uszkodzeniu nerwu przeponowego lub innych struktur. Rysunek 1 ilustruje rozmieszczenie elektrod. - Jako elektrodę uziemiającą zastosuj jednorazową elektrodę powierzchniową umieszczoną na ogonie.
3. Pozyskiwanie danych
- CMAP nerwu przeponowego
- Rejestruj odpowiedzi CMAP nerwu przeponowego, stosując jednofazowe katodowe impulsy prostokątne o czasie trwania 0,1 ms i natężeniu od 60 do 10 mA w celu stymulacji nerwu przeponowego.
- Należy zarejestrować odpowiedzi CMAP, stopniowo zwiększając intensywność bodźca, aż do momentu, gdy amplituda odpowiedzi przestanie wykazywać dalszy wzrost. Aby zapewnić stymulację nadmaksymalną, należy zwiększyć intensywność bodźca do około 120% poziomu uzyskanego przy odpowiedzi maksymalnej i zarejestrować dodatkową odpowiedź. Jeśli wielkość CMAP nie zwiększa się już dalej, odpowiedź tę należy uznać za maksymalny CMAP.
UWAGA: W celu zminimalizowania zakłóceń spowodowanych jednoczesną aktywnością mięśniową podczas rejestracji CMAP zaleca się podawanie stymulacji podczas wydechu. - Zmierz i udokumentuj amplitudy szczyt-szczyt CMAP w miliwoltach (mV) (Rycina 2).
UWAGA: Amplitudę CMAP można oceniać od poziomu bazowego do szczytu (base-to-peak) oraz od szczytu do szczytu (peak-to-peak). W klinicznych systemach elektrodiagnostycznych domyślnym ustawieniem jest często pomiar od poziomu bazowego do szczytu, który oblicza się od izoelektrycznej linii bazowej do początkowego ujemnego piku.
- Średnia wielkość pojedynczego potencjału jednostki motorycznej (SMUP) i obliczanie MUNE
- Obliczenie średniej wielkości SMUP z wykorzystaniem techniki stymulacji przyrostowej.
- Aby uzyskać odpowiedzi przyrostowe, należy zastosować stymulację podmaksymalną o czasie trwania 0,1 ms i częstotliwości 1 Hz, stopniowo zwiększając intensywność w krokach co 0,03 mA, aż do uzyskania minimalnej odpowiedzi typu wszystko albo nic. Pierwszą odpowiedź należy zarejestrować przy intensywności bodźca w zakresie od 2 mA do 10 mA.
- Jeśli początkowa odpowiedź nie wystąpi przy intensywności bodźca w zakresie od 2 mA do 10 mA, należy zmienić położenie katody stymulującej, przybliżając ją lub oddalając od nerwu przeponowego w obszarze szyi, aby odpowiednio zmniejszyć lub zwiększyć wymaganą intensywność bodźca.
- Jeśli pierwsza odpowiedź przyrostowa zostanie osiągnięta przy intensywności bodźca w zakresie od 2 mA do 10 mA, należy zapisać pierwszą odpowiedź i zarejestrować kolejne przyrosty przy sukcesywnie wyższych intensywnościach bodźca, korygując je w krokach co 0,03 mA, aby uzyskać łącznie 9 dodatkowych przyrostów spełniających kryteria opisane w punkcie 3.2.2.
UWAGA: Każdy SMUP jest ilościowany poprzez odjęcie każdego przyrostu od przyrostu poprzedniego.
- Podczas pomiaru odpowiedzi przyrostkowych należy upewnić się, że każdy przyrost spełnia następujące kryteria:
- Należy upewnić się, że początkowy ujemny piki odpowiedzi przyrostowych są zsynchronizowane czasowo z ujemnym pikiem maksymalnej odpowiedzi CMAP.
UWAGA: Niewielkie ruchy obserwowane z powodu szumu tła wynikającego z cykli oddechowych są nieodłączne dla natury tego eksperymentu. Niemniej jednak, stała obecność SMUP podczas obserwacji na żywo potwierdza ich tożsamość dla danego CMAP. - Ponieważ przepona jest dynamicznym mięśniem biorącym udział w oddychaniu, każdy cykl oddechowy może powodować przesunięcie linii bazowej. Należy zatem zweryfikować stabilność i brak frakcjonowania w każdej odpowiedzi przyrostowej, potwierdzając spójność trzech powtórnych odpowiedzi.
UWAGA: Aby odróżnić potencjały wywołane o niskiej amplitudzie, w szczególności pierwszy SMUP, od szumu tła wynikającego z aktywności oddechowej, należy zachować czujność i obserwować od 3 do 4 cykli oddechowych. W celu zapewnienia dokładności należy również sprawdzić zgodność położenia pików z pikami CMAP. - Należy upewnić się, że każdy przyrost jest wyraźny i większy od poprzedniego. W związku z tym należy w czasie rzeczywistym wizualnie rozróżniać odpowiedzi przyrostowe, obserwując sposób, w jaki nakładają się one na wcześniej zarejestrowane przyrosty.
UWAGA: W celu zapewnienia spójności przyrostów oraz zgodności z predefiniowanymi kryteriami, dla każdej amplitudy można przeprowadzić wielokrotne powtórzenia bodźca. - Po wizualnej weryfikacji każdego przyrostu zgodnie z wyżej wymienionymi kryteriami, należy potwierdzić, że amplituda przyrostu wynosi co najmniej 25 µVJeśli przyrost jest niższy niż 25 µVodrzuć pomiar i ponownie oceń odpowiedź.
- Po zarejestrowaniu 10 odpowiedzi przyrostowych należy zweryfikować, czy amplituda każdej odpowiedzi przyrostowej nie przekracza jednej trzeciej sumarycznej amplitudy wszystkich 10 przyrostów, która stanowi całkowitą amplitudę odpowiedzi końcowej. Jeśli kryterium to nie zostanie spełnione, należy powtórzyć pomiar 10 odpowiedzi przyrostowych.
UWAGA: Próg jednej trzeciej opiera się na założeniu, że każda odpowiedź inkrementalna reprezentuje aktywację pojedynczej jednostki motorycznej. Jeśli amplituda jakiejkolwiek odpowiedzi inkrementalnej przekracza jedną trzecią łącznej amplitudy wszystkich dziesięciu inkrementów, sugeruje to, że odpowiedź ta może nie wynikać wyłącznie z aktywacji pojedynczej jednostki motorycznej. Może ona być zamiast tego wynikiem rekrutacji dodatkowych jednostek motorycznych lub obecności nieswoistej aktywności, takiej jak szum elektryczny lub artefakty.22,26. - Aby oszacować średnią amplitudę SMUP, należy obliczyć średnią z wartości 10 przyrostów. Inną metodą pomiaru średniej amplitudy SMUP jest podzielenie całkowitej amplitudy końcowej odpowiedzi przyrostowej przez całkowitą liczbę przyrostów.11.
- Należy upewnić się, że początkowy ujemny piki odpowiedzi przyrostowych są zsynchronizowane czasowo z ujemnym pikiem maksymalnej odpowiedzi CMAP.
- Oblicz MUNE, dzieląc maksymalną amplitudę CMAP (od szczytu do szczytu) przez średnią amplitudę SMUP (od szczytu do szczytu). W niektórych systemach elektrofizjologicznych SMUP są rejestrowane w mikrowoltach (µV), natomiast CMAP zazwyczaj wyraża się w miliwoltach (mV). W razie potrzeby należy przeliczyć pomiary CMAP i SMUP na te same jednostki przed obliczeniem MUNE.
UWAGA: Amplituda CMAP od szczytu do szczytu, średnia amplituda SMUP oraz MUNE są zazwyczaj obliczane automatycznie przez kliniczne systemy do elektromiografii):
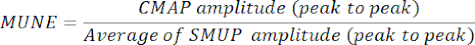
CMAP = złożony potencjał czynnościowy mięśnia
SMUP = potencjał pojedynczej jednostki motorycznej
MUNE = szacowanie liczby jednostek motorycznych
- Obliczenie średniej wielkości SMUP z wykorzystaniem techniki stymulacji przyrostowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Techniki CMAP, SMUP i MUNE opisane w niniejszym raporcie umożliwiają rejestrację funkcji nerwowo-mięśniowej mięśnia przepony przy zastosowaniu małoinwazyjnego rozmieszczenia elektrod (Rysunek 1). Parametry amplitudy i pola mogą być wykorzystane do charakterystyki wielkości nadmaksymalnego CMAP, zapewniając ogólną miarę wydajności grupy mięśniowej (Rysunek 2). Jednakże w naszych obecnych metodach opieramy się na amplitudzie w celu ilościowego określenia wielkości...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W chorobach zwyrodnieniowych MN, takich jak ALS, kluczowa jest ocena MU zaangażowanych w wentylację28. Pomimo występowania zwyrodnienia MN układu oddechowego u pacjentów z ALS, specyficzny początek i progresja zgonu MN pozostają nie w pełni poznane 29,30,31. Uznając znaczenie tego aspektu, zastosowano różne modele, zarówno genetyczne (np. SOD1 2,32
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
WDA otrzymało finansowanie badań od NMD Pharma, Avidity Biosciences oraz opłaty konsultingowe od NMD Pharma, Avidity Biosciences, Dyne Therapeutics, Novartis, Design Therapeutics, Catalyst Pharmaceuticals i Novartis.
Podziękowania
Ta praca została sfinansowana z grantu Programu Badań nad Urazami Rdzenia Kręgowego z Missouri Spinal Cord Injury/Disease Research Program (NLN i WDA).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Szklana strzykawka 2 ml | Kent Scientific Corporation | SOMNO-2ML | |
| 50 mL, strzykawka model 705 RN | Hamilton Company | 7637-01 | Służy do przeprowadzania iniekcji doopłucnowych |
| 5008 - Formulab Diet | LabDiet | 0001325 | |
| Igły do autoklawu 26 G (26S RN 9,52 mm 40&) | Hamilton Company | 7804-04 | Wykorzystywany do przeprowadzania iniekcji doopłucnowych |
| Podjednostka B toksyny (CTB) | MilliporeSigma | C9903 | Wykorzystywany do wstrzykiwań doopłucnowych w celu znakowania ocalałych neuronów ruchowych |
| Podjednostka B toksyny sprzężona z saporyną (CTB-SAP) | Zaawansowane systemy celowania | IT-14 | Wykorzystywany do wstrzykiwania doopłucnowego w celu spowodowania śmierci neuronu ruchowego |
| Odłączany | Technomed | 202845-0000 | do podłączenia elektrody rejestratora do elektrodiagnostycznej |
| Jednorazowa elektroda tarczowa 2" x 2" z przewodami Elektroda | uziemiająca | Cadwell | 302290-000 |
| jednorazowe igły monopolarne 28 G | Technomed | 202270-000 | elektrody stymulujące katodę i anodę - elektrody rejestrujące |
| igłowy EMG (skrzynka przełączników Amp/stim) | Cadwell | 190266-200 | do podłączenia elektrod monopolarnych do stymulatora elektrodiagnostycznego |
| Helping Hands zacisk krokodylkowy z żelazną podstawą | Radio Shack | 64-079 | Utrzymanie umieszczenia elektrody rejestrującej |
| Izofluran (butelka 250 ml) | Piramal Healthcare | ||
| Covidien | 81412012 | wykorzystywany do nakładania żelu elektrodowego | |
| System monitorowania fizjologicznego PhysioSuite z homeotermicznym ociepleniem RightTemp | Kent Scientific Corporation | PS-RT | Zawiera podkładkę ocieplającą na podczerwień, sondę doodbytniczą i sondę temperatury podkładki |
| Profesjonalny trymer Pet Zestaw do pielęgnacji | Oster | 078577-010-003 | maszynki do strzyżenia do depilacji |
| Saporin (SAP) | Zaawansowane systemy celowania | PR-01 | Służy do wstrzykiwań doopłucnowych (środek kontrolny po wstrzyknięciu samodzielnie) |
| System EMG Sierra Summit | Cadwell Industries, Inc., Kennewick, WA | Przenośny system elektrodiagnostyczny | |
| SomnoSuite Cyfrowy system anestezjologiczny o niskim przepływie | Kent Scientific Korporacja | SOMNO | Zawiera adapter do butelki z zabezpieczeniem przed rozlaniem i parą; Rurka adaptera Y; filtr oczyszczający węgiel drzewny |
| Sprague-Dawley szczur | kolonia Envigo 208a, Indianapolis, IN | ||
| Weterynaryjna maść okulistyczna na bazie ropy naftowej | Puralube | 26870 | stosowany podczas znieczulenia w celu uniknięcia uszkodzenia rogówki |
Bibliografia
- Mantilla, C. B., Zhan, W. -Z., Sieck, G. C. Retrograde labeling of phrenic motoneurons by intrapleural injection. J Neurosci Methods. 182 (2), 244-249 (2009).
- Nichols, N. L., Satriotomo, I., Harrigan, D. J., Mitchell, G. S. Acute intermittent hypoxia induced phrenic long-term facilitation despite increased sod1 expression in a rat model of als. Exp Neurol. 273, 138-150 (2015).
- Nichols, N. L., Craig, T. A., Tanner, M. A. Phrenic long-term facilitation following intrapleural ctb-sap-induced respiratory motor neuron death. Respir Physiol Neurobiol. 256, 43-49 (2018).
- Kiernan, M. C., et al. Amyotrophic lateral sclerosis. Lancet. 377 (9769), 942-955 (2011).
- Boërio, D., Kalmar, B., Greensmith, L., Bostock, H. Excitability properties of mouse motor axons in the mutant sod1g93a model of amyotrophic lateral sclerosis. Muscle Nerve. 41 (6), 774-784 (2010).
- Shibuya, K., et al. Motor cortical function determines prognosis in sporadic als. Neurology. 87 (5), 513-520 (2016).
- Lewelt, A., et al. Compound muscle action potential and motor function in children with spinal muscular atrophy. Muscle Nerve. 42 (5), 703-708 (2010).
- Mcgovern, V. L., et al. Smn expression is required in motor neurons to rescue electrophysiological deficits in the smnδ7 mouse model of sma. Hum Mol Genet. 24 (19), 5524-5541 (2015).
- Arnold, W. D., et al. Electrophysiological biomarkers in spinal muscular atrophy: Preclinical proof of concept. Ann Clin Transl Neurol. 1 (1), 34-44 (2014).
- Harrigan, M. E., et al. Assessing rat forelimb and hindlimb motor unit connectivity as objective and robust biomarkers of spinal motor neuron function. Sci Rep. 9 (1), 16699(2019).
- Arnold, W. D., et al. Electrophysiological motor unit number estimation (mune) measuring compound muscle action potential (cmap) in mouse hindlimb muscles. J. Vis. Exp: JoVE. (103), e52899(2015).
- Martin, M., Li, K., Wright, M. C., Lepore, A. C. Functional and morphological assessment of diaphragm innervation by phrenic motor neurons. J. Vis. Exp: JoVE. (99), e52605(2015).
- Mccomas, A., Fawcett, P. R. W., Campbell, M., Sica, R. Electrophysiological estimation of the number of motor units within a human muscle. J Neurol Neurosurg Psychiatry. 34 (2), 121-131 (1971).
- Felice, K. J. A longitudinal study comparing thenar motor unit number estimates to other quantitative tests in patients with amyotrophic lateral sclerosis. Muscle Nerve. 20 (2), 179-185 (1997).
- Vucic, S., Rutkove, S. B. Neurophysiological biomarkers in amyotrophic lateral sclerosis. Curr Opin Neurol. 31 (5), 640-647 (2018).
- Carleton, S., Brown, W. Changes in motor unit populations in motor neurone disease. J Neurol Neurosurg Psychiatry. 42 (1), 42-51 (1979).
- Yuen, E. C., Olney, R. K. Longitudinal study of fiber density and motor unit number estimate in patients with amyotrophic lateral sclerosis. Neurology. 49 (2), 573-578 (1997).
- Gooch, C. L., et al. Motor unit number estimation: A technology and literature review. Muscle Nerve. 50 (6), 884-893 (2014).
- Henderson, R. D., Ridall, P. G., Hutchinson, N. M., Pettitt, A. N., Mccombe, P. A. Bayesian statistical mune method. Muscle Nerve. 36 (2), 206-213 (2007).
- Shefner, J., et al. Multipoint incremental motor unit number estimation as an outcome measure in als. Neurology. 77 (3), 235-241 (2011).
- Stein, R. B., Yang, J. F. Methods for estimating the number of motor units in human muscles. Ann Neurol. 28 (4), 487-495 (1990).
- Shefner, J. M. Motor unit number estimation in human neurological diseases and animal models. Clin Neurophysiol. 112 (6), 955-964 (2001).
- Ahad, M., Rutkove, S. Correlation between muscle electrical impedance data and standard neurophysiologic parameters after experimental neurogenic injury. Physiol Meas. 31 (11), 1437(2010).
- Kasselman, L. J., Shefner, J. M., Rutkove, S. B. Motor unit number estimation in the rat tail using a modified multipoint stimulation technique. Muscle Nerve. 40 (1), 115-121 (2009).
- Ngo, S., et al. The relationship between bayesian motor unit number estimation and histological measurements of motor neurons in wild-type and sod1g93a mice. Clin Neurophysiol. 123 (10), 2080-2091 (2012).
- Feasby, T., Brown, W. Variation of motor unit size in the human extensor digitorum brevis and thenar muscles. J Neurol Neurosurg Psychiatry. 37 (8), 916-926 (1974).
- Nichols, N. L., Vinit, S., Bauernschmidt, L., Mitchell, G. S. Respiratory function after selective respiratory motor neuron death from intrapleural ctb-saporin injections. Exp Neurol. 267, 18-29 (2015).
- Nichols, N. L., et al. Ventilatory control in als. Respir Physiol Neurobiol. 189 (2), 429-437 (2013).
- Cifra, A., Nani, F., Nistri, A. Respiratory motoneurons and pathological conditions: Lessons from hypoglossal motoneurons challenged by excitotoxic or oxidative stress. Respir Physiol Neurobiol. 179 (1), 89-96 (2011).
- Kobayashi, Z., et al. Fals with gly72ser mutation in sod1 gene: Report of a family including the first autopsy case. J Neurol Sci. 300 (1), 9-13 (2011).
- Su, M., Wakabayashi, K., Tanno, Y., Inuzuka, T., Takahashi, H. An autopsy case of amyotrophic lateral sclerosis with concomitant alzheimer's and incidental lewy body diseases. No to shinkei= Brain and nerve. 48 (10), 931-936 (1996).
- Lladó, J., et al. Degeneration of respiratory motor neurons in the sod1 g93a transgenic rat model of als. Neurobiol Dis. 21 (1), 110-118 (2006).
- Borkowski, L. F., Smith, C. L., Keilholz, A. N., Nichols, N. L. Divergent receptor utilization is necessary for phrenic long-term facilitation over the course of motor neuron loss following ctb-sap intrapleural injections. J Neurophysiol. 126 (3), 709-722 (2021).
- Nicolopoulos-Stournaras, S., Iles, J. F. Motor neuron columns in the lumbar spinal cord of the rat. J Comp Neurol. 217 (1), 75-85 (1983).
- Tosolini, A. P., Morris, R. Targeting motor end plates for delivery of adenoviruses: An approach to maximize uptake and transduction of spinal cord motor neurons. Sci Rep. 6 (1), 33058(2016).
- Mchanwell, S., Biscoe, T. The localization of motoneurons supplying the hindlimb muscles of the mouse. Phil. Trans. R. , 477-508 (1981).
- Nair, J., et al. Histological identification of phrenic afferent projections to the spinal cord. Respir Physiol Neurobiol. 236, 57-68 (2017).
- Courtine, G., et al. Can experiments in nonhuman primates expedite the translation of treatments for spinal cord injury in humans. Nat Med. 13 (5), 561-566 (2007).
- Friedli, L., et al. Pronounced species divergence in corticospinal tract reorganization and functional recovery after lateralized spinal cord injury favors primates. Sci Transl Med. 7 (302), 134(2015).
- Arnold, R., et al. Nerve excitability in the rat forelimb: A technique to improve translational utility. J Neurosci Methods. 275, 19-24 (2017).
- Boriek, A., Rodarte, J., Reid, M. Shape and tension distribution of the passive rat diaphragm. Am J Physiol Regul Integr Comp Physiol. 280, R33-R41 (2001).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Przeglądaj więcej artykułów
Motoneurony nerwu przeponowegojednostki motoryczne przeponyszacowanie liczby jednostek motorycznychzłożony potencjał czynnościowy mięśniapotencjał pojedynczej jednostki motorycznejocena elektrofizjologicznafunkcja nerwowo-mięśniowakiełkowanie poboczneszczurzy model neurodegeneracjibiomarkery podłużne
