System do automatycznej i szybkiej analizy glikanów na białkach został wcześniej opracowany. W artykule przedstawiono protokół "analizy glikojakościowej", zoptymalizowany dla szerokiego spektrum użytkowników, takich jak osoby zajmujące się analizą struktur glikanów w biofarmaceutykach i innych materiałach glikokoniugatowych.
Artykuł metodologiczny
Szybka ocena glikojakościowa białek rekombinowanych przy użyciu w pełni zautomatyzowanego systemu
W tym artykule
Podsumowanie
Streszczenie
Glikozylacja białek, krytyczna modyfikacja potranslacyjna, wpływa na stabilność, skuteczność i immunogenność rekombinowanych białek, w tym biofarmaceutyków. Struktury glikanów wykazują znaczną niejednorodność, różniącą się w zależności od typu komórek produkcyjnych, warunków hodowli i metod oczyszczania. W związku z tym monitorowanie i ocena struktur glikanów rekombinowanych białek ma zasadnicze znaczenie, szczególnie w produkcji biofarmaceutycznej. Mikromatryca lektynowa, technika uzupełniająca spektrometrię mas, charakteryzuje się wysoką czułością i łatwością użycia. Jednak zazwyczaj potrzeba więcej niż jednego dnia, aby przynieść wyniki. Aby dostosować go do badań niezwiązanych z glikonauką lub opracowywaniem procesów leczniczych, potrzebna jest zautomatyzowana, wysokowydajna alternatywa. W związku z tym opracowano pierwszy na świecie w pełni zautomatyzowany system profilowania glikanów na bazie lektyn, wykorzystujący koncepcję technologii "matrycy kulek w pojedynczej końcówce (BIST)". System ten pozwala na przygotowanie i przechowywanie kulek unieruchomionych lektyną w jednostkach po 1 000 sztuk, z możliwością dostosowania równoległych zamówień insertowych do różnych celów. W artykule przedstawiono praktyczny protokół badań z udziałem "glikokwalifikowanych" białek rekombinowanych. Po przetestowaniu ich reaktywności w stosunku do 12 koniugatów poliakrylamidowo-glikanowych wybrano 15 lektyn, aby zwiększyć wszechstronność systemu. Ponadto proces etykietowania próbek został zoptymalizowany poprzez przejście z Cy3 na biotynę, co skróciło całkowity czas przetwarzania o 30 minut. W celu natychmiastowej kwalifikacji danych, sygnały wiążące lektyny są wyświetlane jako kod kropkowy na górnym monitorze. Niezawodność systemu została potwierdzona poprzez codzienne testy odtwarzalności, testy powtarzalności i testy długoterminowego przechowywania, ze współczynnikiem zmienności <10%. Ten przyjazny dla użytkownika i szybki analizator glikoanalizatora ma potencjalne zastosowania w monitorowaniu jakości endogennych glikoprotein w celu oceny i walidacji biomarkerów. Metoda ta ułatwia analizę osobom, które dopiero zaczynają przygodę z glikonauką, poszerzając tym samym jej praktyczną użyteczność.
Wprowadzenie
Glikozylacja białek jest kluczową modyfikacją potranslacyjną, która musi być oceniona w biofarmaceutykach. Profile glikanów białek mogą się różnić w zależności od warunków hodowli, procesów oczyszczania i komórek gospodarza1. Do kwalifikacji glikozylacji w procesie bioprocesu wymagane są proste przyrządy. Szacuje się, że ponad 50% wydzielanych i błonowych białek in vivo jest modyfikowanych wieloma glikanami, które zmieniają się w zależności od linii komórkowej, etapu rozwoju i statusu choroby, takiego jak początek nowotworu złośliwego2. Monitorowanie profili glikanów ma znaczny potencjał w zakresie identyfikacji unikalnych markerów diagnostycznych i celów leków. Zautomatyzowane urządzenia zdolne do szybkiego pomiaru wielkości próbek na dużą skalę są bardzo poszukiwane, aby zweryfikować i zweryfikować tak nieprawidłową glikozylację z setek próbek pacjentów w procesie odkrywania.
Technologia mikromacierzy została włączona do glikomiksu do oceny profilowania glikanów glikoprotein3. W tej metodzie kilka lektyn, które są białkami wiążącymi glikany, jest unieruchomionych na powierzchni, takiej jak szkiełko podstawowe. Ta technologia analizy glikologicznej oparta na interakcjach nie wymaga wcześniejszego uwalniania glikanów z białek rdzeniowych, co upraszcza proces dla naukowców początkujących w glikotechnologii. Pomimo jego powszechnego stosowania, do zastosowań przemysłowych, takich jak bioprodukcja, potrzebny był zautomatyzowany system zdolny do szybkiego i łatwego monitorowania glikanów dla większej liczby celów analizy. Aby rozwiązać ten problem, wcześniej opisano zautomatyzowany system profilowania glikanów oparty na unikalnej koncepcji zwanej "matrycą koralików w pojedynczej końcówce" (BIST), początkowo opracowany do genotypowania. Ten system upraszcza proces dzięki jednopunktowemu automatycznemu instrumentowi o wysokiej przepustowości4. Korzystając z końcówek, w których różne kulki utrwalone lektyną są ułożone równolegle4,5, ustalono metodę analizy struktur glikanów zmodyfikowanych w glikoproteinach i nazwano ją GlycoBIST (zwaną dalej "automatycznym systemem profilowania glikanów") (Rysunek 1A). Lektyny można utrwalić na 1,000 koralików i suszyć, aby utrzymać aktywność przez rok, zarówno przed, jak i po zapakowaniu w końcówkę. Po umieszczeniu końcówek i wkładów zawierających odczynniki, takie jak przeciwciało antystreptawidynowe znakowane HRP (SA-HRP) w prototypowym przyrządzie pomiarowym (zautomatyzowanym urządzeniu do pomiaru reakcji, patrz Tabela materiałów), końcówka działa jako autopipeta. Skaner do wykrywania chemiluminescencji znajdujący się z tyłu instrumentu określa ilościowo sygnały z ośmiu końcówek jednocześnie. Dane ilościowe z tych ośmiu końcówek są kompaktowo i jednocześnie wyświetlane jako kody punktowe na ekranie dotykowym przyrządu w celu szybkiego potwierdzenia wyników pomiarów. Co więcej, wartość reprezentowana jako maksimum zmierzonego piku jest transportowana z instrumentu jako surowe dane i pozwala na tworzenie wykresów przez indywidualnych badaczy (Rysunek 1A, dolny panel).
W tym artykule autorzy opisują ulepszoną metodę znakowania białek biotyną, skracającą czas przetwarzania do 30 minut. Białka docelowe są wcześniej biotynylowane i wykrywane przez SA-HRP (Rysunek 1B). Standardowa końcówka GlycoBIST (specjalistyczna końcówka do automatycznego profilowania glikanów) z 15 wybranymi lektynami została skonstruowana w celu uzyskania wszechstronnego profilowania glikanów glikoproteinowych w celu uzyskania kompleksowości analitycznej.
Protokół
Szczegóły dotyczące odczynników i sprzętu użytego do tego badania są wymienione w Tabeli Materiałów.
1. Przygotowanie specjalistycznej końcówki do automatycznego profilowania glikanów
- Przynieś wysuszone kulki utrwalone lektyną, przechowywane w temperaturze 4 °C w szczelnie zamkniętej torbie, na stół i pozwól im powrócić do temperatury pokojowej (~23 °C).
UWAGA: Zapobiega to kondensacji pary wodnej na koralikach, co może obniżyć ich jakość. Ta metoda przygotowania koralików utrwalających lektyny została już wcześniej opisana5. - Umieść antystatyczną szmatkę na biurku i umieść przenośny eliminator ładunków elektrostatycznych przodem do miejsca pracy. Pozwala to na późniejsze wykonywanie prac na stole z zabezpieczeniem antystatycznym (Rysunek 2A).
- Włóż koraliki do pustej końcówki za pomocą pęsety antystatycznej tak, aby dwa koraliki dystansowe zostały umieszczone między koralikami mocującymi lektyny (Rysunek 1A).
- Delikatnie ściśnij górną część końcówki szczypcami, aby zamknąć otwór, uważając, aby nie przeciąć końcówki po wypełnieniu wszystkich koralików (Rysunek 2B).
UWAGA: Ma to na celu zabezpieczenie koralików wewnątrz końcówki. Zaleca się, aby szczypce były wykonane tak, aby uniknąć przecięcia końcówki (Rysunek 2C). - Wyprostuj końcówkę ręcznie, jeśli jest wygięta.
- Przygotowany końców należy przechowywać w temperaturze 4 °C w szczelnie zamkniętej torbie ze środkiem osuszającym, aż będzie potrzebny.
UWAGA: Przed użyciem końcówki należy ją doprowadzić do temperatury pokojowej przed otwarciem szczelnie zamkniętej torebki i wyjęciem jej. Wilgoć drastycznie zmniejsza reaktywność lektyn.
2. Przygotowanie analitów
- Zapakuj odczynnik do biotynylacji do rutynowej analizy.
UWAGA: W przypadku rutynowej analizy pomocne jest wstępne zapakowanie odczynnika do biotynylacji (Biotyna-(AC5)2 Sulfo-Osu, patrz Tabela materiałów) w małe porcje w następujący sposób w celu szybkiej analizy. Zaleca się suszenie i przechowywanie odczynnika biotynylacyjnego, ponieważ jego ester sukcynimidylowy jest ogólnie podatny na hydrolizę.- Rozpuść odczynnik biotynylacji w wodzie dejonizowanej.
- Dozować 10 μg odczynnika do probówek za pomocą pipety.
- Wysuszyć probówki odczynnikiem biotynylacyjnym w chłodzonym koncentratorze próżniowym i przechowywać je ze środkiem osuszającym w temperaturze 4 °C w światłoszczelnej torbie do czasu użycia.
- Dodać roztwór analitu (białko o stężeniu 200 ng eq) do probówki zawierającej wysuszony odczynnik do biotynylacji przygotowany w kroku 2.1.
UWAGA: Należy zwrócić uwagę na skład buforu używany do rozpuszczania i rozcieńczania analitów, w zależności od właściwości zastosowanego odczynnika do biotynylacji. Na przykład należy unikać używania pierwszorzędowych odczynników aminowych jako do sprzęgania amin. Zapobiegnie to zmniejszeniu skuteczności biotynylacji analitów. - Dobrze wymieszaj przez wirowanie, a następnie odwiruj (1000 x g przez 5 s w temperaturze pokojowej) w wirówce stołowej, aby upuścić płyn z pokrywki na dno probówki.
- Inkubować probówki przez 1 godzinę w temperaturze pokojowej, osłonięte przed światłem.
- Rozcieńczyć biotynylowane próbki 10-krotnie w buforze sondującym (1% Triton X-100, 0,5 M glicyny, 1 mM CaCl2 i 1 mM MnCl2 w TBS) w celu dezaktywacji wszelkich nieprzereagowanych odczynników biotynylacji.
UWAGA: W przypadku reakcji sprzęgania amin, nieprzereagowany odczynnik biotynylacji jest zużywany w reakcji z buforem zawierającym pierwszorzędowy odczynnik aminowy, taki jak Tris w TBS, co zapobiega biotynylacji lektyn i innych substancji unieruchomionych na kulkach w kolejnym pomiarze. - Inkubować w temperaturze pokojowej, osłonięte przed światłem, przez 2 godziny.
- Oceń skuteczność biotynylacji analitów za pomocą Western bloting, używając streptawidyny znakowanej HRP jako sondy wykrywającej, jeśli to konieczne. Zapoznaj się z literaturą dotyczącą metod Western blot6.
3. Przygotowanie odczynników do profilowania glikanów za pomocą automatycznego urządzenia do pomiaru reakcji
- Rozcieńczyć streptawidynę sprzężoną z HRP roztworem blokującym w stosunku 1:3000.
- Wymieszać z równymi objętościami substratu A i substratu B (patrz Tabela materiałów). Użyć 160 μl zmieszanego substratu na próbkę.
- Dozować roztwór blokujący, bufor do płukania (0,1% Triton X-100/TBS), grużki, sprzężony z HRP roztwór streptawidyny i każdy substrat do wyznaczonych dołków wkładu z 10 zbiornikami cieczy.
UWAGA: Zalecana objętość i rozmieszczenie roztworów do wypełnienia każdej studzienki wkładu reakcyjnego są opisane poniżej. Jednak roztwory i rozmieszczenie studni można z wyprzedzeniem zmienić w automatycznym urządzeniu do pomiaru reakcji.- Dodaj 0,2 ml streptawidyny znakowanej HRP przygotowanej w kroku 3.1 do studzienki #2 za pomocą pipety. Studnia nosi nazwę #1 z przodu wkładu.
- Dodaj 0,2 ml roztworu blokującego do studzienki #3 za pomocą pipety.
- Dodaj 1 ml TBS do studzienek #4 i #6 za pomocą pipety.
- Dodaj 1 ml buforu do płukania do studzienek #7 i #8 za pomocą pipety.
- Dodaj 0,16 ml mieszaniny substratu do studzienki #10 za pomocą pipety.
- Upewnij się, że studzienki #1, #5 i #9 są puste.
- Dodaj anality przygotowane w kroku 2 do mikroprobówki z zakrętką o pojemności 2 ml i niskim poziomie adsorbcji.
- Otwórz przednie drzwiczki automatycznego urządzenia do pomiaru reakcji.
- Ustawić zbiorniki cieczy przygotowane w kroku 3.3, końcówki przygotowane w kroku 1 i anality przygotowane w kroku 3.4 w wyznaczonych pozycjach automatycznego urządzenia do pomiaru reakcji (Rysunek 2D) w następujący sposób. Każdy pomiar wykonywany jest w jednym kierunku linii pionowej.
- Umieść po jednej końcówce przygotowanej w kroku 1 w każdym otworze w pozycji "a" żółty symbol w Rysunek 2D.
UWAGA: Ponownie, jeśli są przechowywane w lodówce, doprowadź końcówki do temperatury pokojowej przed otwarciem zamkniętej torby. Lektyny drastycznie tracą swój sygnał z powodu wilgoci. - Zdjąć pokrywkę probówki zawierającej analit przygotowany w kroku 3.4 i włożyć ją do każdego otworu w pozycji "b" w podobny sposób.
- Włóż wkład zawierający płyn przygotowany w kroku 3.3, uważając, aby nie rozlać go w pozycji "c".
- Usuń cały "pojemnik na odpady" w Rysunek 2D, gdy jest pełny, wrzuć zawartość do kosza na śmieci i przywróć "pojemnik na odpady" do pierwotnej pozycji.
UWAGA: Odreagowane końcówki są po pomiarze automatycznie zbierane w "pojemniku na odpady".
- Umieść po jednej końcówce przygotowanej w kroku 1 w każdym otworze w pozycji "a" żółty symbol w Rysunek 2D.
4. Profilowanie glikanów za pomocą automatycznego urządzenia do pomiaru reakcji
- Włącz wyłącznik zasilania z boku jednostki głównej.
- Dotknij przycisku "Rozpocznij diagnostykę" wyświetlanego na ekranie (Rysunek 3A). Program autodiagnostyczny uruchamia się automatycznie. Po chwili program autodiagnostyczny zostaje zakończony i pojawia się ekran główny (Rysunek 3B).
UWAGA: Następujące operacje można wykonać, dotykając odpowiednich ikon. "Test", aby rozpocząć pomiar. "Konserwacja", aby potwierdzić ewentualny błąd systemu. "Historia", aby wyświetlić dane pomiarowe z przeszłości. - Dotknij opcji "Test" wyświetlanej na ekranie GŁÓWNYM, aby wybrać protokół ( Rysunek 3B).
- Wybierz "BAssaySTD" metody oznaczania (Rysunek 3C), a następnie naciśnij "Dalej" w prawym dolnym rogu.
- Wprowadź nazwę próbki (Rysunek 3D) dla każdej próbki zgodnie z potrzebami, a następnie dotknij "Dalej" w prawym dolnym rogu.
- Wprowadź nazwę końcówki (Rysunek 3E) używaną dla każdej próbki w razie potrzeby, a następnie dotknij "Dalej" w prawym dolnym rogu.
- Potwierdź nuty po prawej stronie (Rysunek 3F), a jeśli nie ma problemu, dotknij "Start" w prawym dolnym rogu, aby dokonać pomiaru.
- Potwierdź, że ekran przełącza się w tryb pracy (Rysunek 3G) i poczekaj, aż strzałka "zakończ" zostanie podświetlona. W razie potrzeby dotknij "Przerwa", aby zatrzymać tryb biegu.
UWAGA: Operacje automatycznie kontrolowane przez automatyczne urządzenie do pomiaru reakcji są następujące: (1) Dysze do automatycznego mikropipetowania wewnątrz przyrządu mocują jednocześnie maksymalnie osiem końcówek (patrz symbol żółty "a" w Rysunek 2D); (2) Kilkakrotnie aspirować/rozładowywać roztwór w probówce zawierającej analit przez 5 minut; (3) Przenieść do roztworu blokującego i aspirować/rozładować przez 5 minut; (4) Przeniesienie do TBS i aspiracja/rozładowanie przez 2 minuty; (5) Przenieść do roztworu streptawidyny znakowanego HRP i aspirować/wypisać 5 minut; (6) Przenieść do bufora płuczącego i aspirować/rozładować przez 7 minut; (7) Przeniesienie do TBS i aspiracja/wyładowanie przez 2 minuty; (8) Przenieść do mieszaniny substratów i natychmiast odessać; (9) Zeskanuj chemiluminescencję ośmiu końcówek jednocześnie z tyłu urządzenia, aby uzyskać dane o pikach; (10) Wrzuć zużyte końcówki do pojemnika na odpady; (11) Dysza powraca do pozycji wyjściowej. - Upewnij się, że ekran zmienił się w tryb wyników (Rysunek 3H) po zakończeniu pomiaru. Osiem kodów kropkowych jest jednocześnie wyświetlanych na ekranie w celu łatwej weryfikacji.
UWAGA: Dotknij "Historii" w lewym dolnym rogu, aby wyświetlić wykres skanowania (Rysunek 3I,J), wykres słupkowy (Rysunek 3K,L), tabelę (Rysunek 3M) i szczegół (Rysunek 3N) jako wynik na ekranie. Wyświetl wyniki z innych torów z rozwijanej listy "Tor". - Włóż pamięć USB do portu USB z boku jednostki głównej i dotknij "Eksportuj" w prawym dolnym rogu trybu wyników, aby zapisać dane wszystkich linii indywidualnie w pamięci USB.
- Eksportuj surowe dane (Rysunek 3M) jako plik CSV za pomocą portu USB w celu dalszej analizy danych i tworzenia indywidualnych wykresów w programie Excel. "Wartość" tabeli oznacza intensywność sygnału każdej lektyny. Wartości intensywności reprezentują maksymalną wartość danych piku (Rysunek 3I,J) w skanie przereagowanych końcówek.
UWAGA: Można ustawić szczytowy próg ekstrakcji. W zależności od analitów, sygnał w części kulki dystansowej może być ogólnie wyższy, w takim przypadku wartość w części dystansowej jest odejmowana jako tło.
Wyniki
W pierwszej kolejności przedstawiono rozkład sygnału dla każdej lektyny, aby zrozumieć charakterystykę macierzy kulek z lektynami. Przygotowano bibliotekę kulek z unieruchomionymi lektynami (po 1000 kulek każdej). Z puli 1000 kulek losowo wybrano piętnaście i przeniesiono do jednej końcówki. Typowy wykres przedstawiono na dole Rysunku 1A; obrazuje on niemal identyczną intensywność sygnału zaobserwowaną dla 15 kulek unieruchamiających tę samą lektynę. Tę procedurę pomiarową można zastosować do walidacji jakości samodzielnie przygotowanych kulek z lektynami przed ich wykorzystaniem do profilowania glikanów. Na przykład, do jednoczesnego pomiaru wykorzystano sześć końcówek, aby obliczyć współczynnik zmienności (CV) na podstawie sygnałów z 90 kulek. Typowy przykład przedstawiono w Tabeli 1. Po rozszerzeniu biblioteki kulek z unieruchomionymi lektynami do 28 różnych lektyn, 25 z nich wykazało wysoką powtarzalność z CV poniżej 10%.
Następnie przedstawiono dane dla macierzy kulek z lektynami zawierającej 15 różnych lektyn. Do macierzy kulek z lektynami wybrano 15 lektyn wyszczególnionych w Tabeli 2. Dodatkowo zmierzono 12 mono-/di-/trisacharydów poliakrylamidowych (PAA) wymienionych w Tabeli 3. Po ocenie niezawodności pomiaru za pomocą wyświetlacza dotcoding na ekranie, surowe dane wyeksportowano z automatycznego urządzenia do pomiaru reakcji (patrz krok protokołu 4.11), a w programie Excel stworzono wykres z wykorzystaniem wartości szczytowych reakcji dla każdego sacharydu (Rycina 4A). Wartości te wykorzystano następnie do analizy głównych składowych w celu wizualizacji korelacji między wybranymi 15 lektynami a zareagowanymi sacharydami (Rycina 4B,C). Doprowadziło to do wyraźnej różnicy w wzorcu wiązania każdej lektyny w odniesieniu do 12 cukrów PAA pokazanych na Rycynie 4A. W niniejszym opracowaniu wykazano, że poprawność każdego sygnału odnosi się do zintegrowanych wcześniejszych list specyficzności lektyn i sacharydów7,8 (specyficzności te znajdują się również w Tabeli 2). Ponieważ AAL wiąże terminalne α-Fuc, Sia-Lex oraz Lex, automatyczna analiza glikanów potwierdziła rozpoznawanie przez AAL cząsteczek zawierających fukozę (Rycina 4A). SSA i MAL (pełne nazwy lektyn i przyjęte skróty znajdują się w Tabeli 2) rozpoznawały odpowiednio Siaα2-6Gal/GalNAc i Siaα2-3Gal. MAL w macierzy kulek może wiązać się również z 3'-O-sulfo-Galβ3GalNAc i LacNAc. Jest to zgodne z wcześniejszymi wynikami analizowanymi za pomocą uczenia maszynowego7, w których MAL preferuje dominująco 3'-O-sulfo-Gal, natomiast LacNAc nie jest dominujący9. RCA120, lektyna rozpoznająca Gal, silnie zareagowała z terminalnym β-Gal, w tym z Lac/LacNAc, oraz wykazala zdolność do wiązania z Siaα2-6Lac, ale nie z Siaα2-3Lac. ECA wykazała reaktywność z LacNAc znacznie wyższą niż z Lac. WFA miała szerszą specyficzność, rozpoznając nie tylko α/β-GalNAc, ale także terminalny β-Gal, zgodnie z doniesieniami7,10. GSL II, która rozpoznaje GlcNAc oraz galaktozyliąne tri-/tetra-antenowe N-glikany, nie wiązała się z żadnymi sacharydami z wyjątkiem pojedynczego GlcNAc spośród przygotowanych analitów. GRFT, która rozpoznaje N-glikany typu wysokomannozowego, zareagowała z α-Man. ABA, jakalina i MAH były ogólnie stosowane do wykrywania O-glikanów. Ponieważ ABA preferuje struktury Galβ1-3GalNAcα-Thr/Ser (T) i sjalyl-T, ABA w macierzy kulek silnie zareagowała z 3'-O-sulfo-Galβ1-3GalNAc i słabo wiązała się z α-GalNAc. ABA rozpoznała również β-GlcNAc, co jest zgodne z wcześniejszymi doniesieniami o wiązaniu z agalaktozylowanymi N-glikanami7. Jakalina ma stosunkowo szerszą specyficzność i w związku z tym zareagowała z α-mannozą, β-GalNAc, βGal, α-GalNAc oraz 3'-O-sulfo-Galβ1-3GalNAc. MAH specyficznie rozpoznała 3'-O-siarczan-Galβ1,3GalNAc, jak zgłaszano wcześniej7. Pozostałe cztery lektyny: NPA, LCA, PHA-L i PHA-E, rozpoznawały wewnętrzną strukturę N-glikanu, która nie była zawarta w przygotowanych sacharydach PAA, i w związku z tym nie wykazały powinowactwa do żadnych analitów.
Wykorzystując uzyskane dane, podobieństwo lektyn przyczyniających się do wiązania z każdym sacharydem można wyjaśnić, przedstawiając je na wykresie analizy głównych składowych (Rysunek 4B). Wszystkie sacharydy, które przyczyniły się do wariancji na Rysunku 4B, zostały przedstawione za pomocą wektora własnego – metody analizy statystycznej, w której stosunek wkładu jest reprezentowany przez wektor (Rysunek 4C). Warto tutaj zauważyć, że reagujące sacharydy przyczyniają się do każdej lektyny bez stronniczości. Lektyny nie wykazują swoistości tylko wobec jednego rodzaju sacharydu. Na przykład obecność glikanów typu złożonego jest określana przez częściowe rozpoznawanie niektórych glikanów w obrębie glikanów typu złożonego u ludzi. Jakalina, która rozpoznaje glikany O (patrz swoistości w Tabeli 2), może rozpoznawać strukturę 3'suTF oraz α-GalNAc spośród sacharydów użytych w niniejszym badaniu, dlatego 3'suTF i α-GalNAc zostały naniesione (Rysunek 4C) przeciwlegle do kierunku pozycji jakaliny (brązowa kropka) naniesionej na Rysunku 4B. WFA może rozpoznawać α/β-GalNAc spośród sacharydów użytych w niniejszym badaniu; zatem α/β-GalNAc na Rysunku 4C został naniesiony w tym samym kierunku, co WFA na Rysunku 4B. W przeciwieństwie do tego, α-GalNAc jest naniesiony pomiędzy WFA a jakaliną, ponieważ jest to struktura sacharydowa, z którą jakalina może łatwo się wiązać. Wszystkie 11 sacharydów naniesionych w niniejszym badaniu jest zgodnych z wcześniej raportowaną swoistością (wiązaniem sacharydów) lektyn7,8, co wskazuje, że proponowana metoda jest niezawodną metodą pomiarową. Ponadto wektory własne odpowiadające każdemu sacharydowi są rozproszone, co potwierdza, że 15 lektyn wybrano z minimalną stronniczością, aby zapewnić kompleksowe pokrycie w analizie. W konsekwencji końcówka uzupełniona tymi 15 lektynami została zdefiniowana jako standardowa GlycoBIST-tip (Tabela 2).
W bardziej praktycznym przykładzie oczyszczone produkty białkowe poddano pomiarowi za pomocą końcówki (Rysunek 5). Tyroglobulina wołowa, która posiada Nmiejsce glikozylacji i zawiera glikany typu złożonego, hybrydowego oraz wysokomannozowego N-glikany11został poddany analizie. Standardowe zakończenie wykazało zwiększoną reaktywność określonych lektyn wobec sacharydów8 (proszę odnieść się do specyfiki w) Tabela 2): PHA-E, który rozpoznaje bisekujące GlcNAc; GRFT, rozpoznający mannozę N-glikany; SSA, rozpoznający Siaα2-6Gal/GalNAc; RCA120, rozpoznający laktozę i LacNAc; oraz AAL, rozpoznający fukozę. Struktury glikanowe te występują w typie złożonym, hybrydowym i wysokomannozowym N-glikany, co sugeruje, że N-struktura glikanów tyroglobuliny11 mogły być skutecznie ocenione. Co więcej, tyreoglobulina traktowana sialidazą A, enzymem trawiącym kwas sjalowy, wykazała zmniejszoną reaktywność z SSA, która rozpoznaje kwas sjalowy, oraz zwiększoną reaktywność z RCA120, WFA i ECA, które są łatwiej rozpoznawane po usunięciu kwasów sjalowych. Obecność OStruktury glikanów w bydlęcej tyroglobulinie nie były wcześniej opisywane. Zgodnie z oczekiwaniami nie stwierdzono rozpoznania O-glikan w tyreoglobulinie z lub bez zastosowaniem sialidazy w automatycznej analizie glikanów.
W celu oceny odporności pomiaru przeprowadzono test powtarzalności w obrębie serii z wykorzystaniem 15 wybranych lektyn (Tabela 4). Do testu przygotowano siedem standardowych końcówek z analitami oraz dodatkową końcówkę z kontrolą negatywną, a następnie wszystkie osiem końcówek zmierzono jednocześnie. Procedurę tę powtórzono trzykrotnie w ciągu jednego dnia. Do kontroli jakości macierzy kulek przygotowano „Mix Analytes” – mieszaninę analitów, która pozwoliła na uzyskanie istotnych sygnałów dla wszystkich lektyn. Mix Analytes sformułowano poprzez odpowiednie zmieszanie erytropoetyny (EPO) trawionej sialidazą, EPO trawionej sialidazą i galaktozydazą, ludzkiej IgA, metaloproteinazy macierzy 3 (MMP3) oraz tyroglobuliny. Każdą glikoproteinę (200 ng) znakowano 10 µg odczynnika do biotinylacji w PBS zawierającym Triton X-100. W razie potrzeby traktowanie sialidazą i galaktozydazą przeprowadzono zgodnie z instrukcjami. Po trawieniu produkty inkubowano w bloku grzewczym w temperaturze 75 °C przez 10 min w celu inaktywacji enzymu. Odpowiednie ilości biotinylowanych glikoprotein (3 ng EPO, 8 ng ludzkiej IgA, 5 ng MMP3 i 15 ng tyroglobuliny) zmieszano bezpośrednio przed analizą. Wyniki pomiarów wykazały, że maksymalna wartość CV wyniosła 13,5%, a średnia wartość CV dla 15 lektyn wyniosła 8,2%, co świadczy o wysokiej powtarzalności.
Dodatkowo przeprowadzono test powtarzalności dzień do dnia, aby zrozumieć zmienność wynikającą z daty pomiaru (Tabela 5). Standardowe końcówki oraz mieszaniny analitów (Mix Analytes) przygotowano z wyprzedzeniem, a pomiary siedmiu końcówek powtarzano codziennie przez pięć kolejnych dni. Wyniki wykazały, że większość lektyn miała współczynnik zmienności (CV) poniżej 10%. Jednak niektóre lektyny, takie jak LCA i ECA, wykazały wyższe wartości CV. Średni CV dla 15 lektyn na cykl wynosił do 7,7%, a średnie wartości CV w ciągu 5 dni były mniejsze niż 10%, co wskazuje na wysoką powtarzalność. Zauważono, że jakalina, ze względu na autotrawienie MMP3 w mieszaninie analitów, wykazała niską powtarzalność czasową. W związku z tym należy zidentyfikować bardziej odpowiedni analit w celu zastąpienia MMP3.
Aby ocenić stabilność kulek z unieruchomioną lektyną, przeprowadzono długoterminowy test stabilności z wykorzystaniem tych wysuszonych kulek (Tabela 6). Standardowe końcówki, odczynniki do analizy oraz mieszaniny analitów przygotowano wcześniej, a pomiary wykonano po 12 miesiącach przechowywania. Wymienione pięć rodzajów biotynilowanych analitów przechowywano oddzielnie i zmieszano przed wykonaniem pomiaru. Wyniki wykazały, że średni współczynnik zmienności (CV) dla 15 lektyn wynosił mniej niż 10%, nawet po 12 miesiącach przechowywania w stanie suchym. Sugeruje to możliwość przeprowadzania szybkich i precyzyjnych pomiarów dzięki jednorazowemu zmagazynowaniu licznej ilości końcówek (do 1 000) z tej samej serii.
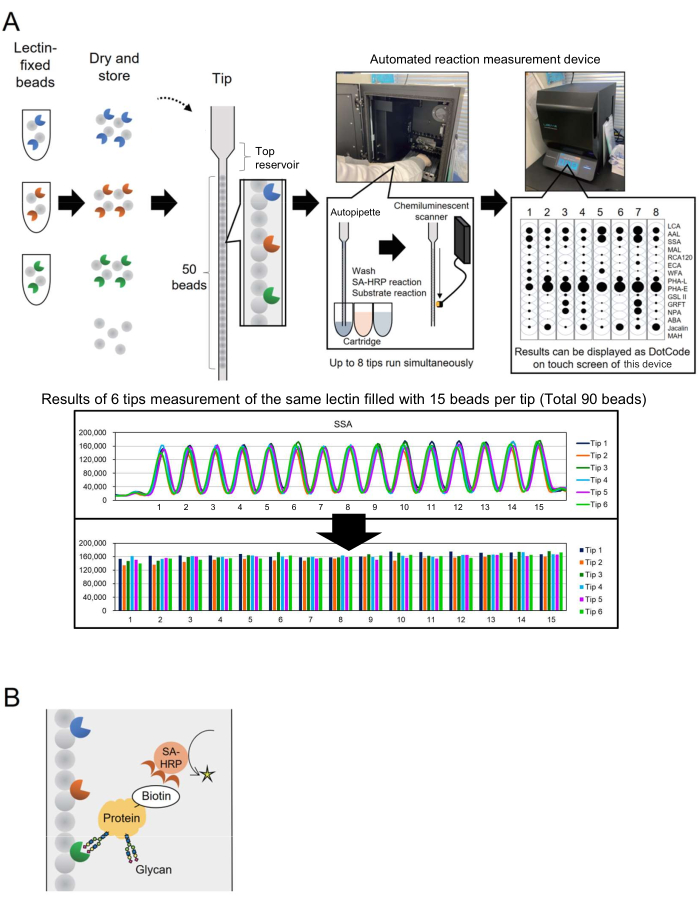
Rycina 1: Schematy urządzenia i metody analizy „macierzy kulek w pojedynczej końcówce”. (A) Schemat automatycznego systemu profilowania glikanów. Kulkami z unieruchomionymi lektynami można je wysuszyć i przechowywać w końcówkach. Po umieszczeniu końcówek oraz kartridży zawierających odczynniki, takie jak przeciwciało antystreptawidynowe znakowane HRP (SA-HRP), w urządzeniu pomiarowym (zautomatyzowanym urządzeniu do pomiaru reakcji) i ich aktywacji, końcówka pełni funkcję autopipety. Skaner detekcji chemiluminescencyjnej znajdujący się z tyłu urządzenia ilościowo określa sygnały z ośmiu końcówek jednocześnie. Dane ilościowe są wyświetlane jako kody kropkowe na ekranie dotykowym urządzenia w celu szybkiego potwierdzenia wyników pomiaru. Dolna sekcja przedstawia wyniki pomiaru 90 kulek z tą samą lektyną. Wyniki pomiarów są przesyłane z urządzenia i przedstawiane na wykresach przez badacza. (B) Schemat metody detekcji zastosowanej w tym eksperymencie. Białka docelowe są uprzednio biotynilowane i wykrywane przy użyciu SA-HRP. Prosimy kliknąć tutaj, aby wyświetlić większą wersję tej ryciny.
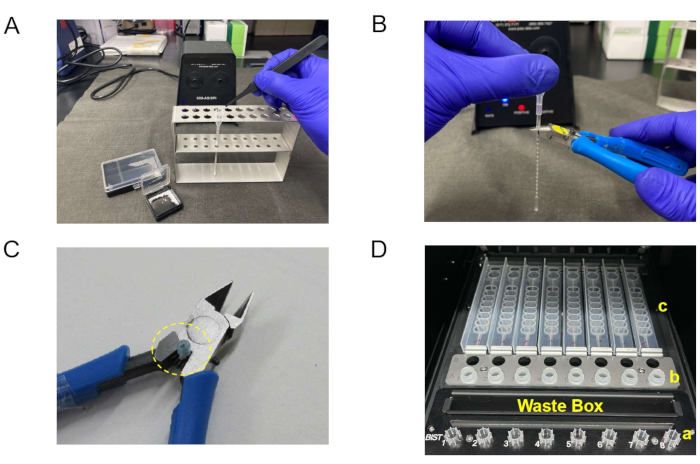
Rysunek 2: Zdjęcia materiałów i konfiguracji do automatycznego profilowania glikanów za pomocą zautomatyzowanego urządzenia do pomiaru reakcji. (A) Przedstawienie pakowania kulek unieruchamiających lektyny do końcówki. Pobieranie kulek pęsetą antystatyczną na macie antystatycznej i napełnianie końcówki kulekami. (B) Ściskanie końcówki kombinerkami. Ściśnięta zostaje niewielka górna część ostatniej kulki. (C) Kombinerki do zaciskania końcówek. Plastik (żółte koło) jest ściśnięty, aby zapobiec całkowitemu odcięciu końcówek. (D) Układ materiałów użytych w zautomatyzowanym urządzeniu do pomiaru reakcji. odpowiednio w odpowiednich miejscach powinny zostać umieszczone: a: końcówki, b: probówka zawierająca anality, oraz c: wkłady zawierające ciecz. W pojemniku na odpady zbierane są zużyte końcówki po pomiarze. Pojemnik można wyjąć. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
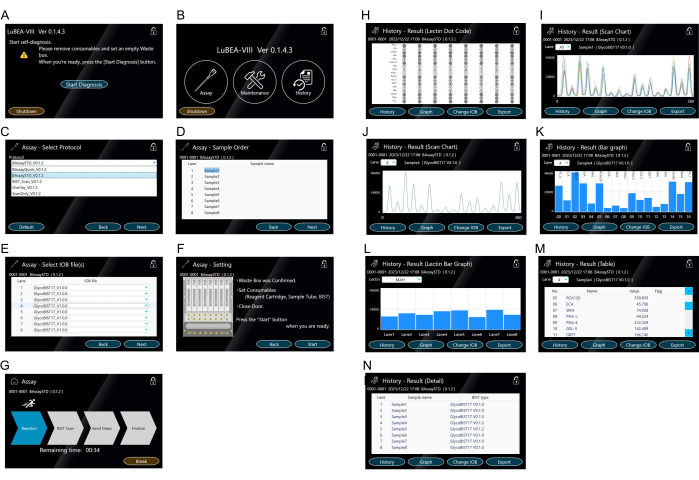
Rysunek 3: Ekran dotykowy do obsługi urządzenia. (A) Program autodiagnostyczny uruchamia się automatycznie po włączeniu zasilania. (B) Ekran główny (HOME) wyświetla opcje „Assay” (Analiza), „Maintenance” (Konserwacja) oraz „History” (Historia). (C-G) Obsługa trybu „Assay”. Wybór metody analizy (C). Możliwość wcześniejszej rejestracji wielu protokołów. Wprowadzanie kolejności próbek (analitów) (D). Wybór rodzaju końcówki (E). Potwierdzenie ustawień metody analizy (F) i uruchomienie analizy z ekranu „Start Assay” (G). (H-N) Prezentacja wyników w sekcji „History”. Kod kropkowy lektyny (H) wyświetlany po zakończeniu analizy lub w trybie „History”. Wykres skanujący 15 lektyn jest wyświetlany na ekranie dla wszystkich próbek (I) lub dla każdej próbki z osobna (J). Wykres skanujący jest przedstawiony jako wykres słupkowy (K). Wykresy słupkowe dla innych ścieżek można wybrać z rozwijanej listy „Lane”. Wykres słupkowy porównujący osiem ścieżek próbek dla danej lektyny (L). Inne lektyny można wybrać z rozwijanej listy „Lectin”. Tabela przedstawiająca wartości ilościowe (M). Zapis wykonanej metody pomiarowej (N). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
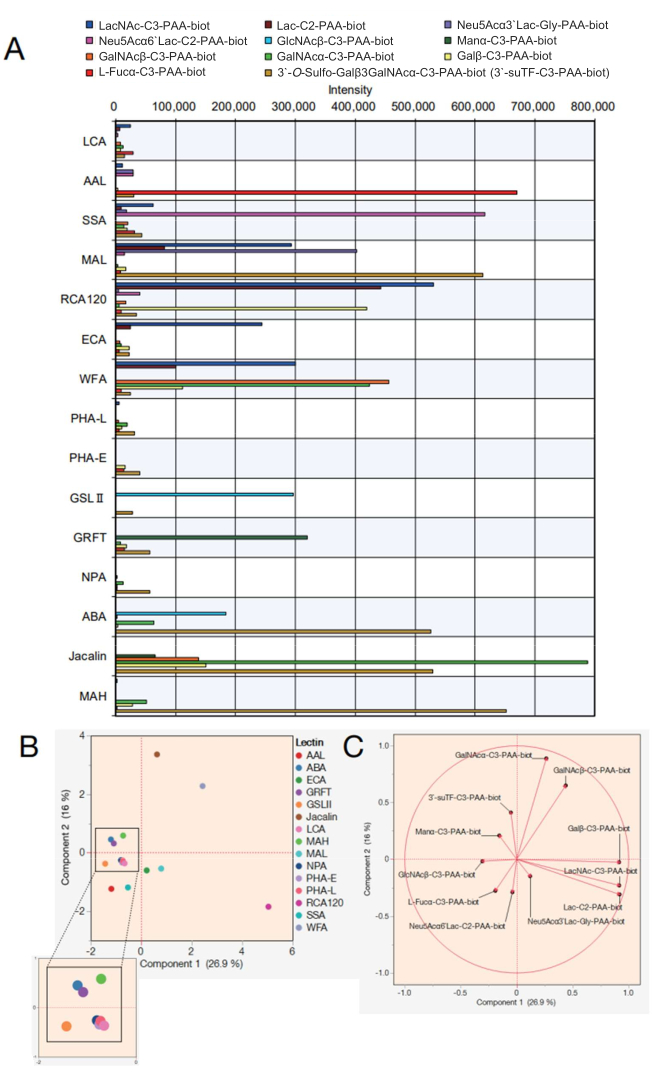
Rysunek 4: Ocena reaktywności z sacharydami PAA w automatycznym systemie profilowania glikanów. (A) Wykres przedstawiający reaktywność lektyn z różnymi sacharydami PAA, skorygowany o wartości kontroli negatywnej. (B) Analiza głównych składowych (PCA) na podstawie danych z (A). (C) Wektory własne z analizy w (B). Do części (B) i (C) wykorzystano kompatybilne oprogramowanie analityczne. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
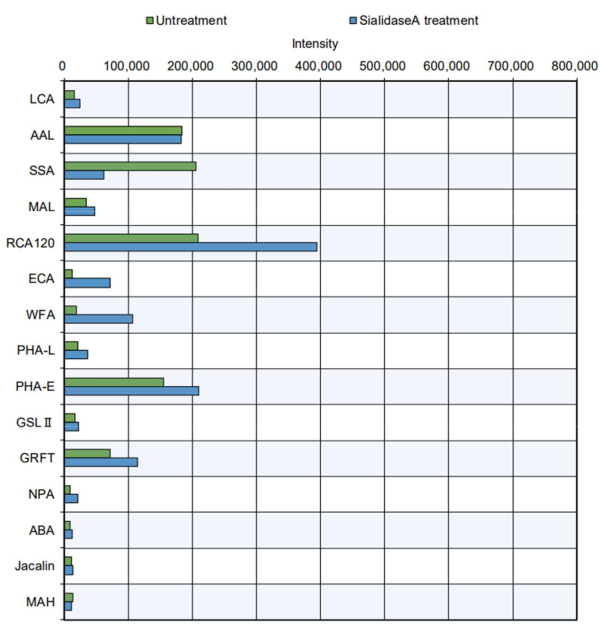
Rycina 5: Weryfikacja reaktywności GlycoBIST z wykorzystaniem oczyszczonego białka tyreoglobuliny bydlęcej. Przygotowanie próbek bez traktowania przeprowadzono w tych samych warunkach trawienia co w przypadku samego buforu, z wyłączeniem dodania sialidazy A. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Tabela 1: Test powtarzalności z użyciem kulek z unieruchomionymi lektynami. Oceńiono powtarzalność reaktywności dla 28 lektyn. Anality reagowano z każdą końcówką. EPO: erytropoetyna, PSA: swoiste antygeny prostaty, Tf: transferryna, M2BP: białko wiążące Mac-2, hIgG: ludzkie IgG, MMP3: metaloproteinaza macierzy 3, (Sia+): anality trawione sialidazą A, (Sia+, Gal+): anality trawione sialidazą A i galaktozydazą, Ab: przeciwciało. DSA: aglutynina Datura stramonium, HypninA2: aglutynina Hypnea japonica, WGA: aglutynina z zarodków pszenicy, UDA: aglutynina Urtica dioica, BPL: lektyna Bauhinia purpurea, Orysata: lektyna Oryza sativa, LSL-N: domena N-końcowa lektyny Laetiporus sulphureus, SNA: lektyna Sambucus nigra, BanLec: lektyna bananowa, MPA: aglutynina Maclura pomifera, TxLC-I: aglutynina Tulipa gesneriana, AOL: lektyna Aspergillus oryzae, ACG: galektyna Agrocybe cylindracea. CV: współczynnik zmienności. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Lista lektyn stanowiących zestaw standardowy do automatycznego profilowania glikanów. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 3: Sacharydy PAA użyte jako standardy dla automatycznego systemu profilowania glikanów. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 4: Wyniki testu powtarzalności wewnątrz serii. CV: współczynnik zmienności. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 5: Wyniki testu powtarzalności między dniami.CV: współczynnik zmienności. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 6: Wyniki testu stabilności długoterminowej. CV: współczynnik zmienności. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
W niniejszym badaniu opracowano technikę szybkiej oceny glikozylacji wykorzystującą technologię "układu kulek w jednej końcówce". W niniejszym badaniu wprowadzono standardową końcówkę GlycoBIST, przeznaczoną zarówno dla badaczy zajmujących się glikoologią, jak i nie, w celu ułatwienia rutynowej, kompleksowej oceny glikozylacji. Mikromatryca lektyn, zwykle wykorzystująca 20-100 lektyn12,13, jest szeroko wykorzystywana w ocenach. Biorąc jednak pod uwagę nakładającą się na siebie specyficzność niektórych lektyn na mikromacierzy i stosunkowo ograniczoną różnorodność glikoform na docelowej glikoproteinie w porównaniu z glikomikami surowych próbek klinicznych, oczekiwano, że 15 lektyn wystarczy do uproszczonej oceny ukierunkowanego profilowania glikanów.
Krytycznym krokiem w protokole jest umożliwienie unieruchomionym lektyną kulkom lub końcówkom wypełnionym tymi kulkami powrotu do temperatury pokojowej po przechowywaniu przed użyciem ich do pomiarów. W szczególności zaobserwowano, że kondensacja osłabia sygnały; Dlatego zaleca się, aby nigdy nie otwierać torby do przechowywania, dopóki nie powróci do temperatury pokojowej. Do przechowywania odczynników do biotynylacji konieczne jest również całkowite wysuszenie przed przechowywaniem. Niewystarczający proces suszenia zmniejsza skuteczność biotynylacji do białka ze względu na hydrolizę odczynnika biotynylacji14.
Jeśli chodzi o modyfikacje i rozwiązywanie problemów, zbadano metodę zmniejszania zmienności, zwłaszcza w odniesieniu do metody pomiaru w zautomatyzowanym urządzeniu do pomiaru reakcji. W szczególności, gdy objętość buforu w zbiorniku używanym do analizy wynosi 150 μl, pęcherzyki dostają się do końcówki, co prowadzi do zmniejszenia wydajności reakcji i powoduje duże różnice w wartościach. Dlatego zaleca się umieszczenie w zbiorniku co najmniej 200 μl buforu.
Ważnym czynnikiem jest również ilość płynu, która wypełnia końcówki podczas automatycznego pipetowania. Końcówki nie mogą całkowicie usunąć cieczy, gdy przechodzi ona do następnego etapu reakcji. W związku z tym, w niemałej ilości, bufor z poprzedniego kroku jest przenoszony do następnego kroku, a poprzedni bufor pozostaje w górnej części wprowadzonego roztworu, gdy nowy bufor jest zasysany. Dlatego podłoże i inne roztwory powinny być wystarczająco zasysane, aby napełnić górny zbiornik (patrz rysunek 1A). Biorąc pod uwagę nieodwracalność reakcji przeciwciał na instrumencie, należy zachować ostrożność i unikać błędów podczas początkowej konfiguracji.
Jednym z ograniczeń tej metody jest to, że jest ona ograniczona do rozpuszczalnych białek pochodzących z supernatantów surowicy i hodowli. W obecnej metodzie lektyna nie jest kowalencyjnie usieciowana ze kulką, co uniemożliwia analizę próbek zawierających wysokie stężenia środków powierzchniowo czynnych, takich jak ekstrakty komórkowe i tkankowe. W związku z tym konieczne są przyszłe ulepszenia, aby wyeliminować te ograniczenia.
Znaczenie układu koralików lektynowych polega na wymienności i rozszerzalności gatunków lektyny umocowanych na koralikach. Na przykład w wielkoskalowej analizie różnicowej (>1000 próbek) przy użyciu zautomatyzowanego systemu profilowania glikanów, użytkownicy mogą dostosować skład 15 lektyn w końcówce w oparciu o wstępne profilowanie glikoproteiny docelowej glikoproteiny (<100 próbek za pomocą mikromacierzy lektynowej). Co więcej, wysoka stabilność kulek mocowanych lektyną umożliwia natychmiastowe eksperymentowanie od początkowego projektu końcówki do pomiaru za pomocą rutynowych procedur. Nie tylko 25 z 28 lektyn, które wykazały wysoką wiarygodność (Tabela 1), ale także wszelkie lektyny interesujące użytkownika mogą być wykorzystane do stworzenia niestandardowego zautomatyzowanego systemu profilowania glikanów dla jego konkretnych eksperymentów, po przeprowadzeniu wyżej wymienionego rutynowego testu niezawodności. Podejście to doprowadziło do zaprojektowania możliwego układu 120-lektynowych kulek składającego się z ośmiu różnych typów końcówek do rozszerzonego pomiaru w połączeniu ze standardowym systemem profilowania glikanów.
Poprzednie badanie koncentrowało się na ustaleniu procedury wykrywania glikoprotein znakowanych Cy3 zgodnie z mikromacierzą lektyny15. Metoda ta była ograniczona do 13 lektyn równolegle w końcówce z powodu interferencji fluorescencji. Obecna metoda, wykorzystująca etykiety wykrywania HRP, mieści 15 kulek utrwalonych lektyną i dwa koraliki kontrolne (dodatnie i ujemne) w końcówce. Ponadto biotynylacja próbek skróciła proces analizy.
Ta metoda analityczna może być stosowana nie tylko w badaniach akademickich, ale także w badaniach medycznych i farmaceutycznych, żywności, kosmetykach i innych dziedzinach przemysłu. Chociaż technologie mikromacierzy lektynowych i glikoproteomiki są dobrze ugruntowane, podejście przyjęte w tym badaniu pozostaje istotne ze względu na jego pełną automatyzację i zdolność do szybkiej analizy przy mniejszej liczbie kroków. W przyszłości udoskonalenia tej analizy zostaną wprowadzone do metody ilościowej poprzez normalizację sygnału przy użyciu niektórych glikoprotein, wykorzystując kulki utrwalone przeciwciałami wraz z kulkami utrwalonymi lektyną w końcówce.
Oświadczenia
AO, TO, NT, HS, KK, MA, SY, TM, KN, OS i KS są pracownikami Precision System Science Co., Ltd.
Podziękowania
Ta praca była wspierana przez Program Adaptable and Seamless Technology transfer poprzez Target-driven R&D (A-STEP), finansowany przez Japońską Agencję Nauki i Technologii (JST), w ramach grantu numer JPMJTR204A oraz częściowo przez Japońskie Towarzystwo Promocji Nauki (JSPS) KAKENHI Grant numer 23H02680 dla AK. Serdecznie dziękujemy firmie Editage (www.editage.jp) za redakcję w języku angielskim.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 ml 8 probówek do PCR + płaska nakrętka | FastGene | FG-0028FC/SE | Do dozowania i przechowywania odczynników do znakowania biotyny |
| 2,0 ml SC Micro Tube protein LB | SARSTEDT AG&Co. KG | 72.694.600 | Do ładowania próbek do LuBEA-VIII |
| Oprogramowanie analityczne | SAS Institute Inc. | JMP 17 | |
| . 110 V | Plas-Labs | 800-AS/SPI | Używaj podczas wkładania koralików do końcówki BIST. |
| Pęseta antystatyczna NK2A | RUBIS | 9-5681-01 | Używaj podczas wkładania koralików do końcówki BIST. |
| Zautomatyzowane urządzenie do pomiaru reakcji | Precision System Science Co., Ltd. | LuBEA | Wszystkie dane w tym badaniu uzyskano przy użyciu LuBEA-VIII. Podczas gdy LuBEA jest komercjalizowana, LuBEA-VIII jest obecnie w fazie rozwoju. Strona internetowa, na której można znaleźć szczegółowe informacje o produktach LuBEA i LuBEA-VIII, znajduje się pod następującym adresem URL (https://www.pss.co.jp/english/technology/apit/bist02.html). |
| Biotyna-(AC5)2 Sulfo-Osu | Dojindo | 341-06801 | Jako odczynnik do biotynilacji |
| BIST dystans koralik - V-11 | Precision System Science Co., Ltd. | F4938000 | Średnica: 1 mm |
| końcówka i osłona BIST | Precision System Science Co., Ltd. | F4930-000 | Wypełnij tę pustą końcówkę koralikami. |
| Chlorek wapnia | Wako | 039-00475 | Do przygotowania roztworów buforowych |
| Może uzyskać roztwór sygnałowy 2 | TOYOBO | NKB-301 | Ten odczynnik blokujący jest dobry dla tej metody |
| Stołowe koncentratory próżniowe CentriVap | Labconco | 7810010 | Do suszenia odczynnika do biotynilacji. Możliwa jest zamiana zapewniona przez inne firmy. |
| Czystość Zachodnie Podłoże ECL | Bio-Rad | 1705060 | Do pomiaru próbek metodą LuVEA VIII |
| Wymrażarka CentriVap seria | Labconco | 7460040 | Do suszenia odczynnika do biotynilacji. Możliwa jest zamiana zapewniona przez inne firmy. |
| Glycine | Wako | 077-00735 | Do sporządzania roztworów buforowych |
| Chlorek manganu(II) Czterowodny | Wako | 139-00722 | Do sporządzania roztworów buforowych |
| Mili-Q odniesienie | MERCK | ZIQ7000T0C | Jako woda dejonizazowa do rozcieńczania odczynników i |
| PBS | Wako | 162-19321 | Do sporządzania roztworów buforowych |
| Peroksydaza Streptavidin | Jackson | 016-030-084 | To przeciwciało jest dobre do analizy GlycoBIST. Jest to przydatne do wykrywania western blotting, chociaż inne firmy mogą zapewnić zamienniki. |
| Koralik sondy | Precyzyjny system Science Co., Ltd. | FP4936000 | Do przygotowania koralików utrwalonych lektyną. Szczegółowe informacje można znaleźć w Shimazaki, H. et al., Current Protocols in Protein Science, 2020 w sekcji referencyjnej. |
| Probówki białkowe LoBind 1,5 ml | Eppendorf | 0030108442 | Stosować podczas przygotowywania próbek, takich jak biotynylacja. |
| Żel krzemionkowy (do środka osuszającego) | Kanto chemical | 37039-02 | Stosować podczas przechowywania końcówki GlycoBIST i wysuszonego odczynnika do biotynylacji. |
| Arkusz usuwania elektryczności statycznej M | TRUSCO NAKAYAMA | SD5050 | Używaj podczas wkładania koralików do końcówki BIST. |
| SV Cartridge II | Daido Chemical Industry | ED041 | Do pomiaru próbek za pomocą LuVEA VIII |
| Stołowa mikrowirówka-CAPSULEFUGE | TOMY | PMC-060 | Do odkręcania mieszaniny w każdym procesie |
| Triton X-100 | Nacalai tesque | 35501-15 | Do przygotowania roztworów buforowych |
Bibliografia
- Butler, M., Reichl, U. Animal cell expression systems. Adv Biochem Eng Biotechnol. 175, 1-36 (2021).
- Silva, M. L. S. Chapter One - Lectin biosensors in cancer glycan biomarker detection. Adv Clin Chem. 93, 1-61 (2019).
- Hiono, T., Nagai-Okatani, C., Kuno, A. 4.07 - Application of glycan-related microarrays. Comprehensive Glycoscience (Second Edition). , 134-148 (2021).
- Shimazaki, H., et al. Lectin bead array in a single tip facilitates fully automatic glycoprotein profiling). Anal Chem. 91 (17), 11162-11169 (2019).
- Shimazaki, H., et al. GlycoBIST: A System for automatic glycan profiling of a target protein using milli-bead array in a tip. Curr Protoc Protein Sci. 99 (1), e103(2020).
- Mahmood, T., Yang, P. C. Western blot: Technique, theory, and trouble shooting. N Am J Med Sci. 4 (9), 429-434 (2012).
- Bojar, D., et al. A useful guide to lectin binding: machine-learning directed annotation of 57 unique lectin specificities. ACS Chem Biol. 17 (11), 2993-3012 (2022).
- Nagai-Okatani, C., et al. 2.0: An integrated visualization for lectin microarray-based mouse tissue glycome mapping data with lectin histochemistry. J Proteome Res. 20 (4), 2069-2075 (2021).
- Geisler, C., Jarvis, D. L. Effective glycoanalysis with Maackia amurensis lectins requires a clear understanding of their binding specificities. Glycobiology. 21 (8), 988-993 (2011).
- Noro, E., et al. N -glycan structures of Wisteria floribunda agglutinin-positive Mac2 binding protein in the serum of patients with liver fibrosis. Glycobiology. 31 (10), 1268-1278 (2021).
- Rawitch, A. B., Pollock, H. G., Yang, S. X. Thyroglobulin glycosylation: Location and nature of the N-Linked oligosaccharide units in bovine thyroglobulin. Arch Biochem Biophys. 300 (1), 271-279 (1993).
- Dang, K., Zhang, W., Jiang, S., Lin, X., Qian, A. Application of lectin microarrays for biomarker discovery. Chemistry Open. 9 (3), 285-300 (2020).
- Chen, S., Qin, R., Mahal, L. K. Sweet systems: Technologies for glycomic analysis and their integration into systems biology. Crit Rev Biochem Mol Biol. 56 (3), 301-320 (2021).
- Dwivedi-Agnihotri, H., Srivastava, A., Shukla, A. K. Reversible biotinylation of purified proteins for measuring protein-protein interactions. Methods Enzymol. 633, 281-294 (2020).
- Shimazaki, H., et al. Auto-lectin dotcoding by two octopuses: Rapid analysis of fluorescence-labeled glycoproteins by an 8-channel fully-automatic bead array scanner with a rolling-circle detector. Anal Chem. 95 (32), 11868-11873 (2023).
Przedruki i uprawnienia
