Testy immunologiczne oparte na krwi pełnej dostarczają łatwego i zasobooszczędnego narzędzia do analizy odporności specyficznej dla antygenu do celów diagnostycznych i badawczych. W tym artykule przedstawiono zoptymalizowany protokół oparty na krwi pełnej z podwójną kostymulacją do kompleksowej analizy odporności gospodarza na patogeny grzybowe i wirusowe, w tym wersję o małej objętości dla pacjentów pediatrycznych i małych zwierząt.
Artykuł metodologiczny
Test krwi pełnej z podwójną kostymulacją do specyficznej dla antygenu analizy odporności gospodarza na patogeny grzybowe i wirusowe
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Szybkie i efektywne przetwarzanie próbek, wysoka przepustowość i wysoka wytrzymałość są kluczowe dla skutecznego naukowego i klinicznego zastosowania zaawansowanych testów immunologicznych specyficznych dla antygenu. Tradycyjnie, takie testy immunologiczne, zwłaszcza analiza swoistych dla antygenu limfocytów T za pomocą cytometrii przepływowej lub testy immunoenzymatyczne punktowe, często opierają się na izolacji komórek jednojądrzastych krwi obwodowej. Proces ten jest czasochłonny, podlega wielu czynnikom zakłócającym przed analizą i wymaga dużych objętości krwi. Testy oparte na krwi pełnej stanowią łatwą alternatywę o zwiększonej odporności przedanalitycznej i niższych wymaganiach dotyczących objętości krwi. Co więcej, testy oparte na krwi pełnej pozwalają na zachowanie interakcji międzykomórkowych, które nie są wychwytywane przez testy z użyciem izolowanych podzbiorów komórek. Niedawno zaproponowano udoskonalony test immunologiczny krwi pełnej z podwójną kostymulacją anty-CD28 i anty-CD49d do kompleksowej analizy zarówno funkcji komórek T specyficznych dla antygenu, jak i złożonych interakcji międzykomórkowych w odpowiedzi na różne antygeny grzybowe i wirusowe. Protokół ten zawiera wskazówki dotyczące przygotowania probówek stymulacyjnych, stymulacji krwi i dalszego przetwarzania próbek do cytometrii przepływowej, testów wydzielania cytokin i analiz transkrypcyjnych. Obejmuje to zwalidowany i funkcjonalnie równoważny, wcześniej niepublikowany, niskoobjętościowy protokół (250 μl), aby ułatwić dostęp do cytometrii przepływowej i monitorowania limfocytów T opartych na cytokinach w badaniach na pacjentach pediatrycznych lub badaniach przedklinicznych na małych zwierzętach (np. myszach). Podsumowując, protokoły te stanowią wszechstronny zestaw narzędzi do złożonej analizy immunologicznej specyficznej dla antygenu zarówno w warunkach badań klinicznych, jak i translacyjnych.
Wprowadzenie
Kwantyfikacja i charakterystyka odporności specyficznej dla antygenu, zwłaszcza specyficznych odpowiedzi limfocytów T, jest kluczowa dla badań immunobiologicznych i szczepień, a także niektórych testów diagnostycznych. Tradycyjnie, testy immunologiczne swoiste dla antygenu powszechnie opierały się na izolowanych komórkach jednojądrzastych krwi obwodowej (PBMC). Jednak izolacja tych komórek jest czasochłonna i zasobożerna oraz często wymaga stosunkowo dużych objętości krwi. Dodatkowo, aby zapobiec aktywacji granulocytów i późniejszym zaburzeniom limfocytów T podczas przechowywania przedanalitycznego1 kluczowe znaczenie ma szybkie przetwarzanie próbek, co często nie jest możliwe w praktyce klinicznej. Ograniczenia te ograniczają praktyczność testów immunologicznych swoistych dla antygenu w wysokoprzepustowych scenariuszach badawczych i procedurach klinicznych. W związku z tym opracowanie w ostatnich latach łatwych w użyciu i potencjalnie zautomatyzowanych metod opartych na krwi pełnej otworzyło nowe obszary zastosowań testów immunologicznych. Jednak obecnie dostępne na rynku systemy zwykle nie mają optymalnych środowisk kostymulujących dla limfocytów T i są podatne na opóźnienia przed analizą. Na przykład, szeroko stosowany test uwalniania IFN-γ oparty na krwi pełnej ma 19% dodatni do ujemnego wskaźnik rewersji po 6 godzinach wstępnego analitycznego przechowywania krwi2. Aby przezwyciężyć te ograniczenia, opracowano zoptymalizowane protokoły z podwójną kostymulacją anty-CD28 i anty-CD49d3,4,5,6.
Przedstawiony tutaj protokół pozwala na dokładne i powtarzalne kwantyfikowanie i charakterystykę limfocytów T specyficznych dla antygenu, ocenę odpowiedzi cytokin indukowanych antygenem oraz innych (cytometrycznych przepływowych lub transkrypcyjnych) funkcjonalnych markerów immunologicznych od minimalnej objętości krwi, tj. 500 μL krwi na probówkę stymulacyjną. Dalsze zalety tego protokołu to krótki czas pracy, wysoka odporność na czynniki zakłócające przed analizą oraz zachowanie funkcjonalnych interakcji międzykomórkowych w stosunkowo fizjologicznym środowisku ex vivo. Porównywalność charakterystyki limfocytów T specyficznych dla antygenu przepływu krwi pełnej z danymi wygenerowanymi z tradycyjnych testów opartych na PBMC została wcześniej pokazana w kontekście kwantyfikacji komórek T specyficznych dla pleśni 6. Co więcej, bezpośrednia stymulacja krwi badanych znosi potrzebę suplementacji autologicznym, allogenicznym, a nawet ksenogenicznym surowicą, która jest powszechnie wymagana do optymalnej stymulacji PBMC. Pominięcie izolacji komórek zmniejsza również stres ścinający i temperaturowy, poprawiając w ten sposób żywotność komórek. Co najważniejsze, testy oparte na krwi pełnej zachowują populacje granulocytów, które są tracone podczas wirowania gradientowego w celu izolacji PBMCs7. W ten sposób ta konfiguracja testu zachowuje i przechwytuje funkcjonalne pętle interakcji między granulocytami a komórkami jednojądrzastymi4.
Warto zauważyć, że ten protokół wymaga tylko minimalnych modyfikacji, aby dostosować się do różnych modalności odczytu, a nawet pozwala na podwójną analizę uwalniania cytokin i odpowiedzi transkrypcyjnych z tej samej probówki stymulującej. W szczególności, podczas gdy cytokiny są analizowane z supernatantu hodowli po stymulacji, osad komórkowy można wykorzystać do izolacji RNA z późniejszą analizą transkryptomiczną. Ogólny przepływ pracy dla różnych modalności odczytu jest podsumowany w Rysunek 1.
W ostatnich latach opracowano coraz większą liczbę testów opartych na krwi pełnej do monitorowania immunologicznego reagującego na patogeny w warunkach badawczych i klinicznych, np. dla Mycobacterium tuberculosis8,9, Bordetella pertussis3, Orientia tsutsugamushi10, oraz SARS-CoV-25,11,12. Na przykład wcześniej ustalony system został użyty dla wielu antygenów, w tym M. tuberculosis, wirusa grypy A i SARS-CoV-2, ale nie wykorzystuje czynników kostymulujących zoptymalizowanych pod kątem stymulacji komórek T-pomocniczych (Th)13,14,15. Mimo że objętość krwi wymagana do tych testów jest już znacznie niższa niż w przypadku tradycyjnych testów opartych na PBMC lub dostępnych na rynku zestawów do stymulacji krwi pełnej, jeszcze mniejsza objętość próbki może być uzasadniona do zastosowań w pediatrii, neonatologii, pacjentach na oddziale intensywnej terapii (OIOM) i badaniach przedklinicznych na małych modelach zwierzęcych. Na przykład, nawet końcowe pobieranie próbek krwi od myszy (np. przez nakłucie serca) zwykle daje maksymalnie 0,7-1 ml krwi. W związku z tym w ramach tego protokołu oceniono możliwość dalszego zmniejszania wcześniej ustalonych protokołów testów immunologicznych opartych na krwi pełnej4,6 w celu precyzyjnej kwantyfikacji i charakterystyki odpowiedzi limfocytów T reagujących na antygen z 250 μl objętości krwi na probówkę stymulacyjną
.Protokół
Komisja etyczna Uniwersytetu Ludwika Maksymiliana w Monachium (numer projektu 21-0689) zatwierdziła pobieranie próbek krwi ludzkiej. Ponadto części reprezentatywnych zbiorów danych zostały wygenerowane w ramach badania Corona-Register-Study o numerze 20-426, również zatwierdzonego przez komisję etyczną Uniwersytetu Ludwiga Maximiliana w Monachium. Uzyskano świadomą zgodę.
1. Przygotowanie probówek do stymulacji krwi pełnej
UWAGA: Ten krok jest zaadaptowany z Lauruschkat et al.4 i Weis et al.6. Tabela 1 zawiera szczegółowe informacje o stężeniach i objętościach odczynników.
- W sterylnych warunkach (sterylny stół warsztatowy) przygotuj probówki do pobierania krwi o pojemności 2,7 ml bez antykoagulantu, z antygenami i przeciwciałami kostymulującymi. Dodać 1 μg/ml α-CD28 i 1 μg/ml α-CD49d do każdej probówki, łącznie z kontrolą ujemną. Przy określaniu końcowych stężeń (250 μl lub 500 μl) należy wziąć pod uwagę objętość krwi, która ma być dodana do stymulacji krwi pełnej. Aby zachować geometrię komory i dostępność próbki, nie należy wyjmować tłoka z probówki do pobierania krwi.
- Na podstawie projektu badania określ, czy probówki kontroli ujemnej powinny nie zawierać dodatkowego bodźca (niestymulowana kontrola tła, jak pokazano w Tabeli 1), czy też wykorzystywać antygeny, do których kohorta badana powinna nie zawierać żadnych limfocytów T lub powinny zawierać minimalną liczbę limfocytów T specyficznych dla antygenu (np. pula peptydów HIV u osób seronegatywnych pod względem HIV 16).
- W celu stymulacji specyficznej dla antygenu zoptymalizuj idealne stężenia antygenów przez miareczkowanie we wstępnych eksperymentach. Aby wygenerować poniższe reprezentatywne dane, użyj następujących zoptymalizowanych stężeń antygenu: 1,2 μg/ml lizatu HSV-1, 0,6 nM/peptyd/ml CMV pp65, 0,6 nM/peptyd/ml Prot_S SARS-CoV-2, 50 μg/ml lizatu Aspergillus fumigatus i 1 ng/ml CRX-527.
- Należy uwzględnić kontrolę dodatnią, szczególnie w przypadku badań z udziałem pacjentów z limfopresją lub otrzymujących farmakoterapię immunosupresyjną. Stosować roztwór kontroli dodatniej CPI (0,6 nM/peptyd/ml), składający się z peptydów wirusa cytomegalii, wirusa paragrypy i wirusa grypy.
UWAGA: Alternatywnie można zastosować bodźce syntetyczne, takie jak PMA (10 μg/ml) ± jonomycyna (1 μg/ml), ale wywołują one mniej reakcji fizjologicznych i mogą wpływać na ekspresję antygenów powierzchniowych powszechnie stosowanych jako markery populacyjne w cytometrii przepływowej (w szczególności CD417). Należy zauważyć, że przeciwciała kostymulujące nie są potrzebne w połączeniu z większością syntetycznych bodźców kontroli pozytywnej, a nawet mogą negatywnie wpływać na żywotność i reaktywność komórek. - Aby zharmonizować objętości odczynników we wszystkich probówkach stymulacyjnych, dodaj pożywkę RPMI 1640 do następujących objętości całkowitych: Pełnoskalowy test cytometrii przepływowej: 50 μl; Pełnoskalowy test do analizy cytokin i transkryptomiki: 500 μL; Test małoskalowy do cytometrii przepływowej: 25 μl; Test na małą skalę do analizy cytokin i transkryptomiki: 250 μL.
UWAGA: Do przygotowania wielu zestawów probówek stymulacyjnych zaleca się przygotowanie mieszanek wzorcowych zawierających wszystkie składniki ze względu na mniejsze ryzyko zanieczyszczenia oraz małą objętość czynników i bodźców kostymulujących. - Przygotowane probówki należy natychmiast zużyć lub dokonać ich krioprezerwacji w temperaturze -20 °C. Większość odczynników można przechowywać do 4 tygodni; Należy jednak wstępnie zweryfikować maksymalne okresy przechowywania nowych odczynników/bodźców.
2. Stymulacja i inkubacja próbek krwi pełnej
- Około 30-60 minut przed stymulacją krwi pełnej rozmrozić gotowe do użycia probówki stymulacyjne i przechowywać je w temperaturze pokojowej.
- Pobrać krew żylną od dawcy/pacjenta za pomocą probówek do pobierania krwi z antykoagulantem heparyny litowej. Upewnij się, że pobrana objętość krwi spełnia indywidualne wymagania eksperymentu, tj. wymagane jest minimum 750 μl dla 3 warunków testu na małą skalę, w tym kontroli ujemnej i pozytywnej. W przypadku zakupionych na rynku probówek do pobierania krwi należy je całkowicie napełnić, aby osiągnąć stężenie robocze heparyny 16 - 25 IU/ml krwi.
UWAGA: Dane demograficzne zdrowych dorosłych osób zrekrutowanych w celu wygenerowania reprezentatywnych zbiorów danych przedstawiono w Tabeli 2. - Przenieść wymaganą ilość heparynizowanej krwi pełnej (odpowiednio 250 μl lub 500 μl dla testu na małą lub pełną skalę) do probówek stymulacyjnych, pipetując pod sterylnym stołem warsztatowym.
UWAGA: Jeśli sterylny stół warsztatowy jest niedostępny lub podczas pracy z próbkami wykazującymi minimalne ryzyko infekcji (np. krew wstępnie przebadanych ludzi lub zwierząt), próbki można przenieść do probówek stymulacyjnych za pomocą sterylnych strzykawek. Metoda ta umożliwia również przetwarzanie próbki przy łóżku pacjenta bezpośrednio po pobraniu krwi, co minimalizuje przechowywanie przedanalityczne i upośledzenie limfocytów T. Przed wstrzyknięciem krwi należy dokładnie zdezynfekować gumowe uszczelki zarówno probówki do pobierania krwi, jak i wszystkich probówek stymulacyjnych alkoholowym środkiem dezynfekującym. Pozostaw środek dezynfekujący do wyschnięcia na co najmniej 1 minutę. - Ostrożnie odwróć rurki stymulacyjne 5x-10x. Umieścić probówki do stymulacji w inkubatorze o temperaturze 37 °C. Należy pamiętać, że inkubator CO2 nie jest wymagany. Aby zapobiec niespecyficznej aktywacji neutrofili, nie należy przechowywać probówki do pobierania krwi w lodówce.
UWAGA: Protokół ten został zatwierdzony do przechowywania krwi przed analizą do 8 godzin w temperaturze pokojowej, aby umożliwić transport próbki. Jeśli jest to możliwe, zaleca się wstrzyknięcie krwi pełnej do probówek stymulacyjnych w miejscu pobrania i przetransportowanie krwi do centralnego laboratorium w probówkach stymulacyjnych, ponieważ czynniki kostymulujące poprawią żywotność limfocytów18,19. - Tylko w przypadku próbek używanych do testów cytometrii przepływowej z barwieniem wewnątrzkomórkowym, po 4 godzinach inkubacji dodać brefeldynę A (końcowe stężenie 10 μg/ml) do każdej probówki stymulującej.
- Przygotować roztwór brefeldyny A o stężeniu 1 mg/ml w RPMI i dodać 1 μl roztworu na 100 μl objętości próbki (tj. wstępnie zmieszany koktajl stymulacyjny + objętość krwi pełnej). Dodać brefeldynę A, odkręcając probówki i pipetując pod sterylnym stołem warsztatowym. Ponownie zamknąć i zwrócić probówki do inkubatora w temperaturze 37 °C na kolejne 16-18 godzin w temperaturze 37 °C (łącznie 20-22 godziny).
- W przypadku testów wydzielania cytokin lub analiz transkrypcyjnych nie należy dodawać brefeldyny A i kontynuować inkubację próbek w temperaturze 37 °C przez 24-26 h.
UWAGA: Brefeldyna A hamuje pracę aparatu Golgiego, a tym samym znosi wydzielanie cytokin i transport białek na powierzchnię komórki. Ponieważ wydzielanie lub ekspresja powierzchniowa ostatecznie spowoduje utratę i degradację białka po reinternalizacji, odpowiednio, inhibitory egzocytozy są niezbędne do wewnątrzkomórkowej akumulacji i barwienia cytokin i niektórych markerów aktywacji (np. CD154) do badań cytometrii przepływowej. Jednak brefeldyna A zaburza również fizjologiczne procesy komórkowe widoczne w transkryptomie i unieważnia testy wydzielania cytokin z supernatantów hodowlanych20,21, co wymaga użycia dwóch oddzielnych probówek (jednej z brefeldiną A, a drugiej bez niej) do równoległego wykonywania tych odczytów.
3. Przygotowanie próbek do cytometrii przepływowej
- Dodać 500 μl 0,5 M roztworu EDTA do każdej probówki stymulacyjnej i inkubować próbkę przez 15 minut w temperaturze pokojowej, aby oderwać przylegające komórki od powierzchni probówek.
- Przenieść próbki do nowych probówek wirówkowych o pojemności 15 ml. Przepłukać probówki stymulacyjne 1 ml buforu do lizy erytrocytów, aby zebrać pozostałe krwinki, a następnie dodać bufor i komórki do tych samych probówek wirówkowych o pojemności 15 ml.
- Odwirować probówki o pojemności 15 ml przez 7 minut przy 600 x g. Ostrożnie wyrzucić supernatant.
- Zawiesić osad komórek krwi w buforze do lizy erytrocytów (Rycina 2A). Użyj 5 ml buforu do lizy erytrocytów na 500 μl krwi pełnej i 3 ml na 250 μl krwi pełnej.
UWAGA: Optymalne warunki lizy erytrocytów muszą być wstępnie ocenione dla konkretnego zastosowanego buforu (przygotowanego we własnym zakresie lub produktu komercyjnego). Podane tutaj instrukcje zostały zoptymalizowane pod kątem buforu do lizy erytrocytów wymienionego w tabeli materiałów. - Próbki należy inkubować w temperaturze pokojowej, aż staną się przezroczyste (Rysunek 2B). Aby zapobiec lizie i agregacji granulocytów, nie należy przekraczać 6 minut inkubacji. Wskaźnikiem udanej lizy erytrocytów jest zdolność do zobaczenia liczb i skali na probówce 15 ml przez płyn (Rysunek 2C).
- Odwirować probówki o pojemności 15 ml przez 7 minut przy 600 x g. Ostrożnie wyrzuć supernatant, powtórz kroki 3.4-3.5, jeśli osad komórek jest nadal zauważalnie czerwony.
- Zawiesić osad komórkowy w 1 ml HBSS i przenieść komórki do probówek reakcyjnych o pojemności 2 ml.
- Odwirować probówki o pojemności 2 ml przez 5 minut przy 400 x g. Ostrożnie wyrzucić supernatant.
- Barwienie metodą cytometrii przepływowej należy wykonać zgodnie z instrukcjami producenta zestawu do barwienia wewnątrzkomórkowego i zastosowanych przeciwciał.
UWAGA: Panel przeciwciał użyty do wygenerowania reprezentatywnego zestawu danych podsumowano w Tabeli 3.
4. Przygotowanie próbek do testów cytokin
- Po kroku 2.6 przenieś rozcieńczoną krew z probówek stymulacyjnych do probówek o pojemności 1,5 ml.
- Odwirować probówki o pojemności 1,5 ml przez 20 minut przy 2000 x g. Ostrożnie odpipetować supernatant do świeżej probówki o pojemności 1,5 ml i użyć go natychmiast do analizy cytokin lub kriokonserwacji supernatantów w temperaturze -80 °C.
- Ponownie odwirować supernatant przez 5 minut w ≥ 7000 x g (w probówkach o pojemności 1,5 ml) w celu usunięcia resztek komórek przed analizą, zwłaszcza po rozmrożeniu. W zależności od protokołu oznaczania cytokin należy przeprowadzić wstępne rozcieńczenie próbek.
- Zawiesić osad komórkowy w 1 ml buforu ochronnego RNA i zakonserwować go w temperaturze -80 °C w celu późniejszej izolacji RNA. Alternatywnie, ponownie zawieś osad komórkowy w buforze do lizy w celu natychmiastowej izolacji RNA zgodnie z instrukcjami zestawu do izolacji RNA (lub protokołem wewnętrznym).
UWAGA: W razie potrzeby, w zależności od kolejnego protokołu przetwarzania RNA, przed dodaniem bufora ochronnego RNA można dodać etap lizy erytrocytów podobny do 3,4-3,5.
Wyniki
Wielomodalna analiza swoistych dla antygenów odpowiedzi immunologicznych po stymulacji krwi pełnej antygenami związanymi z patogenami
W celu wygenerowania reprezentatywnego zestawu danych wybrano zdrowego dorosłego dawcę seropozytywnego w kierunku HSV-1 i CMV, który został zaszczepiony przeciwko SARS-CoV-2. Oprócz kontroli niestymulowanej zastosowano następujące stymulanty, zgodnie z powyższym opisem: lizat wirusa opryszczki zwykłej typu 1 (HSV) (zalecenie producenta, dane niepublikowane), pp65 cytomegalowirusa (CMV)22, Prot_S koronawirusa z zespołem ostrej ciężkiej niewydolności oddechowej 2 (SARS-CoV-2)5,23, lizat Aspergillus fumigatus (powszechny patogen środowiskowy)4,24, CRX-527 (stymulant receptora Toll-podobnego 4 oparty na lipopolisacharydzie, który sam w sobie nie powinien aktywować limfocytów T)25 oraz CPI (pozytywna kontrola aktywacji limfocytów T CD4+, składająca się z peptydów CMV, wirusa parainfluency i wirusa grypy)26. Dane z cytometrii przepływowej oraz strategia bramkowania przedstawione są na Rysunku 3. Ogólnie zaleca się pomiar tak dużej liczby limfocytów, jak to możliwe, przy celowaniu w rzadkie populacje komórek (50 000 - 100 000 limfocytów), ponieważ precyzja i wiarygodność pomiarów zależą od całkowitej liczby zdarzeń27. Próbka niestymulowana służy do bramkowania poszczególnych subpopulacji komórek (np. komórek CD3+CD4+). Bramki dla CD45RO i CCR7 do fenotypowania limfocytów T pamięci powinny zostać ustawione na całkowitej populacji CD3+CD4+, a następnie przeniesione na populacje dodatnie pod kątem markerów aktywacji, ponieważ niska liczba zdarzeń w tych ostatnich często uniemożliwia wyraźną identyfikację odrębnych populacji. Niezbędne mogą być niewielkie korekty poszczególnych bramek, np. w celu uwzględnienia różnic w żywotności limfocytów. Up-regulacja CD154 (lub liganda CD40) została opisana jako globalny, spójny i szybko indukowany marker aktywacji limfocytów T pomocniczych28,29. IFN-γ jest uważany za jeden z najważniejszych i specyficznych dla typu 1 markerów aktywacji limfocytów T30,31. Co ważne, test ten został sprawdzony i opublikowany z zastosowaniem różnych dodatkowych markerów aktywacji, wyczerpania i cytokin (patrz Tabela 4 oraz24).
Częstość występowania populacji wykazujących ekspresję markerów aktywacji w próbce niestymulowanej reprezentuje tło nieswoiste, które odjęto od częstości uzyskanych po stymulacji antygenem. Po odjęciu tła nieswoistego u reprezentatywnego dawcy odnotowano odpowiednio 0,75% (HSV), 0,09% (CMV), 0,06% (SARS-CoV-2), 0,34% (A. fumigatus), 0,00% (CRX-527) oraz 1,21% (CPI) swoistych limfocytów T pomocniczych CD154+/CD3+CD4+. Ekspresję IFN-γ można analizować w podobny sposób, co w tym przypadku dało 0,12% (HSV), 0,07% (CMV), 0,03% (SARS-CoV-2), 0,04% (A. fumigatus), 0% (CRX-527) oraz 0,74% (CPI) komórek IFN-γ+/CD3+CD4+.
Populacje limfocytów T można dalej podzielić na naiwne limfocyty T (TN, CD45RO-CCR7+), limfocyty T pamięci centralnej (TCM, CD45RO+CCR7+), limfocyty T pamięci efektorowej (TEM, CD45RO+CCR7-) oraz limfocyty T efektorowe (oraz limfocyty T pamięci efektorowej ponownie wykazujące ekspresję CD45RA, TE/TEMRA, CD45RO-CCR7-). Wśród wszystkich limfocytów T CD3+CD4+ u reprezentatywnego dawcy stwierdzono odpowiednio 38,34% TN, 38,33% TCM, 20,77% TEM oraz 2,56% TE/TEMRA, co określono na podstawie próbki niepobudzonej (Rycina 3A). Jednakże wśród antygenowo swoistych reaktywnych limfocytów T pomocniczych (CD154+IFN-γ+), subpopulacje TCM i TEM były zdecydowanie najbardziej licznych, osiągając średnio odpowiednio 22,14% i 73,97%.
Dane dotyczące dodatkowych populacji leukocytów zostały wcześniej opublikowane z zastosowaniem tej metodologii24. Zastosowane kombinacje przeciwciał przedstawiono w Tabeli 4 w celu dalszego odniesienia.
Ponadto, aby zaprezentować pełny potencjał tej metodologii, przeprowadzono test ELISA dla IFN-γ na drugim zestawie stymulowanych próbek (bez dodania brefeldyny A). Aby zapobiec przekroczeniu zakresu detekcji zestawu ELISA dla IFN-γ, plazmę z próbek stymulowanych CPI rozcieńczono wstępnie w stosunku 1:4. Zmierzono następujące stężenia IFN-γ i znormalizowano je na 1 mL objętości krwi badanego, tj. skorygowano o rozcieńczenia zarówno w probówkach do stymulacji, jak i rozcieńczenia wstępne przed testem ELISA: 0 pg/mL (niestymulowane), 69,4 pg/mL (HSV), 471 pg/mL (CMV), 17,8 pg/mL (SARS-CoV-2), 61,9 pg/mL (A. fumigatus), 34,0 pg/mL (CRX-527) oraz 1958 pg/mL (CPI).
Na koniec, z tych samych próbek wyizolowano RNA, uzyskując spójne wyniki. Średnia wydajność wyniosła 719 ng, a średni stosunek absorbancji 260nm/280nm wyniósł 1,98.
Podsumowując, zestaw danych ten pokazuje, że przedstawiony protokół umożliwia wieloaspektowe spektrum odczytu oraz równoczesną analizę różnych antygenów związanych z infekcją przy użyciu minimalnej objętości krwi, tj. łącznie 8 mL dla wielu bodźców i modalności odczytu.
Reprezentatywny zestaw danych dla analiz transkrypcyjnych służących do monitorowania odpowiedzi na szczepienie z wykorzystaniem krwi pełnej stymulowanej antygenem
W ramach dowodu koncepcji dla badań transkrypcyjnych przeprowadzonych na krwi pełnej stymulowanej antygenem, pobrano krew od 9 zdrowych dorosłych osób bezpośrednio przed oraz 1 miesiąc po pierwszej dawce przypominającej szczepionki BNT162b2 (szczepionka mRNA przeciwko SARS-CoV-2)32,33, w odstępie 7–9 miesięcy po początkowej serii dwóch dawek szczepionki. Średnia wydajność RNA z 500 µL niestymulowanej i stymulowanej Prot_S krwi pełnej wyniosła 1,1 µg wysokiej czystości RNA, przy średnim stosunku absorbancji 260/280 wynoszącym 1,99. Po analizie nCounter liczba cząsteczek RNA została znormalizowana do 12 genów referencyjnych panelu (średnia geometryczna). Następnie dla każdego badanego i każdego genu wyznaczono stosunek znormalizowanych wartości mRNA w próbkach stymulowanych Prot_S w stosunku do niestymulowanych kontroli tła. Wyznaczono stosunki median pomiarów po szczepieniu w stosunku do pomiarów przed szczepieniem, a analizę wzbogacenia szlaków przeprowadzono przy użyciu pakietu oprogramowania wymienionego w Tabeli materiałów. Wzbogacenie kanonicznych szlaków uznano za istotne przy bezwzględnej wartości z-score ≥ 1,25 oraz wartości p skorygowanej metodą Benjamini-Hochberga < 0,05. Szlaki istotnie różniące się stopniem wzbogacenia zestawiono na Rysunku 4A, a uproszczoną sieć zmian skorygowanych o tło w odpowiedzi na Prot_S po szczepieniu w porównaniu z okresem przed szczepieniem przedstawiono na Rysunku 4B. Dodatkowo, na Rysunku 4C pokazano silniejszą, skorygowaną o tło indukcję reprezentatywnych genów związanych z dojrzewaniem komórek prezentujących antygen oraz indukowaną przez Prot_S aktywacją limfocytów T po dawce przypominającej (p < 0,01–0,03). Na koniec, za pomocą cytometrii przepływowej i drugiego zestawu probówek do stymulacji, potwierdzono u większości dawców wzrost liczby specyficznych dla Prot_S komórek T pomocniczych typu 1 (CD69+IFN-γ+) skorygowany o tło po szczepieniu (p = 0,03, Rysunek 4D).
Porównanie odpowiedzi limfocytów T reaktywnych na wirusy w pełnoskalowych i małymi objętościami protokołach testów immunoologicznych opartych na krwi pełnej
Następnie porównano częstotliwość występowania reaktywnych na wirusy komórek T pomocniczych CD154+IFN-γ+ (komórki CD3+CD4+) u zdrowych ochotników, stosując pełnoskalowy (500 µL, WB) oraz małymi objętościami (250 µL, WBS) protokół stymulacji antygenowej krwi pełnej (Rycina 5). Jak zgłoszono wcześniej34, w obu protokołach zaobserwowano minimalne nieswoiste częstotliwości tła dla komórek CD154+IFN-γ+, pomimo podwójnej kostymulacji (średnie wartości wynosiły odpowiednio 0,010% dla WB i 0,011% dla WBS). Należy zauważyć, że choć nieswoiste odpowiedzi tła są odejmowane od odpowiedzi swoistych dla antygenu, nadal przyczyniają się one do zwiększenia nieprecyzyjności testu, co omawiano wcześniej27. Podwyższone sygnały tła (tzn. >0,07-0,1% komórek Th CD154+ lub >0,05% komórek CD154+IFN-γ+) mogą wskazywać na zanieczyszczenie próbki, ostrą infekcję u badanego lub mogą być wynikiem niewłaściwego przygotowania próbki w fazie przedanalitycznej.
Średnie częstości limfocytów T reaktywnych na lizat HSV u dawców seropozytywnych (n = 5) wynosiły odpowiednio 0,151% i 0,107% w systemach WB i WBS, w porównaniu do 0,012% i 0,004% u dawców seronegatywnych (n = 4). W przypadku puli peptydów CMV pp65, u dawców seropozytywnych (n = 4) odnotowano 0,041% i 0,049% reaktywnych limfocytów T w porównaniu do 0,001% i 0,004% u dawców seronegatywnych (n = 5). Współczynniki korelacji zgodności Lin'a wyniosły 0,868 dla HSV i 0,985 dla CMV, co sugeruje silną korelację (Rycyna 5A). Należy zauważyć, że testy na limfocyty T swoiste dla CMV mogą być negatywne u zdrowych osób seropozytywnych, u których nie wystąpiły niedawne zdarzenia reaktywacji. Zarówno całkowite, jak i reaktywne na antygen repertuary limfocytów T pomocniczych CD3+CD4+ zostały następnie zróżnicowane na podstawie ekspresji CCR7 i CD45RO (Rycyna 5B). Co istotne, wyniki uzyskane przy użyciu protokołów WB i WBS były porównywalne zarówno dla populacji całkowitej, jak i reaktywnej na antygen. Zgodnie z oczekiwaniami, w obu testach proporcja bardziej zróżnicowanych komórek pamięci Th (tj. komórek pamięci efektorowej) była wyższa wśród limfocytów T reaktywnych na antygen niż w całkowitej populacji komórek Th. Jak można było przypuszczać, tylko niewielka liczba naiwnych limfocytów T została aktywowana przez stymulanty wirusowe (Rycyna 5B).
Ponadto w innym zestawie doświadczeń nadnadłożne ciecze z kultur stymulowanych analizowano za pomocą testu ELISA na IFN-γ (Rysunek 5C). Odnotowano minimalne nieswoiste tło (średnio 1,29 pg/mL i 2,18 pg/mL odpowiednio w protokołach WB i WBS). Próbki krwi od dawców seropozytywnych w kierunku HSV wykazały średnie, skorygowane o tło stężenia IFN-γ indukowane przez HSV wynoszące odpowiednio 111 pg/mL i 125 pg/mL w systemach WB i WBS. W przeciwieństwie do tego, stężenia IFN-γ w próbkach seronegatywnych były konsekwentnie poniżej 10 pg/mL w obu systemach (współczynnik korelacji zgodności Lina = 0,972, Rysunek 5C). Podobnie stymulacja pp65 krwi od dawców seropozytywnych w kierunku CMV dała średnie stężenia IFN-γ wynoszące odpowiednio 258 pg/mL i 272 pg/mL w systemach WB i WBS, podczas gdy w obu systemach przy użyciu próbek seronegatywnych odnotowano minimalną sekrecję IFN-γ indukowaną przez pp65 (współczynnik korelacji zgodności Lina = 0,953, Rysunek 5C).
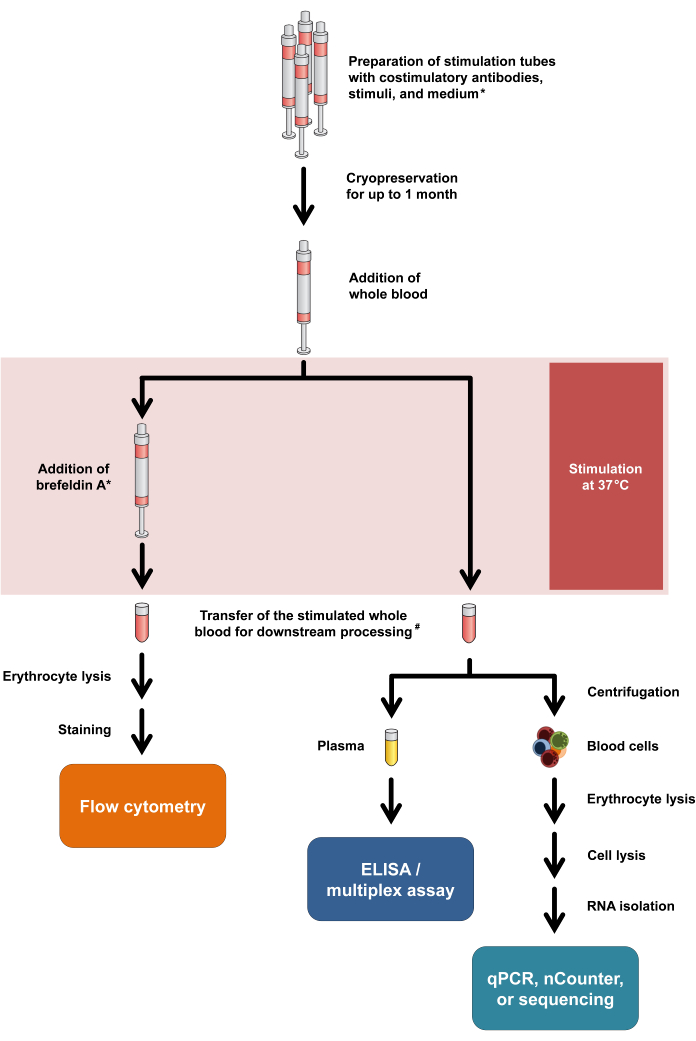
Rysunek 1: Schemat blokowy podsumowujący procedury eksperymentalne i analizy. Asterysk oznacza, że Brefeldyna A jest wymagana dla niektórych markerów aktywacji limfocytów T (np. CD154) oraz barwienia cytokin wewnątrzkomórkowych. Patrz kroki protokołu 2.5 i 2.6. #: Krew do cytometrii przepływowej jest początkowo przenoszona do probówek wirówkowych 15 mL w celu lizy erytrocytów, natomiast krew do analiz cytokin i transkryptomiki jest przenoszona do probótek mikrodo wirówki 1,5 mL. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
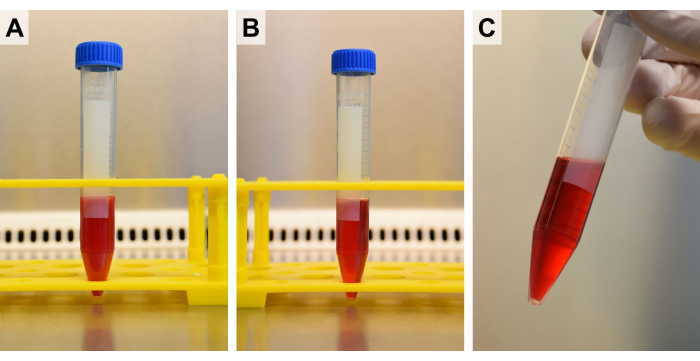
Rysunek 2: Liza erytrocytów. Po resuspensji stymulowanej krwi w (A) buforze do lizy erytrocytów, inkubuje się ją do momentu, aż (B) ciecz stanie się przejrzysta, jednak nie dłużej niż przez 6 min. (C) W przypadku użycia menzurkowej probówki o pojemności 15 mL, jej skala powinna stać się widoczna przez coraz bardziej przezroczystą próbkę. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
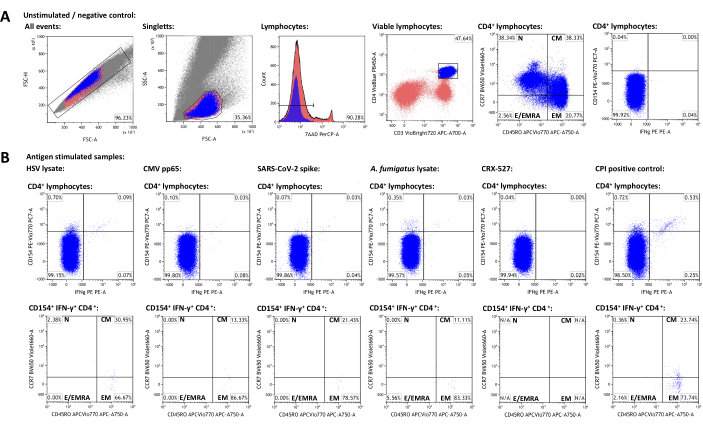
Rycina 3: Reprezentatywny zestaw danych i schematy bramkowania w cytometrii przepływowej. (A) Zdarzenia singletowe są identyfikowane na podstawie właściwości FSC-A i FSC-H. Z nich limfocyty są wyznaczane (bramkowane) przy użyciu FSC-A i SSC-A. Limfocyty są różnicowane na komórki T pomocnicze CD3+CD4+. Poziomy ekspresji CD45RO i CCR7 są wykorzystywane do fenotypowania populacji komórek pamięci i efektorowych. IFN-γ i CD154 zostały użyte jako markery aktywacji. Bramki ustawiono na podstawie populacji IFN-γ-CD154- w próbce niestymulowanej. Następnie bramki przeniesiono na próbki stymulowane (B). Charakterystykę populacji pamięci aktywowanych limfocytów T osiągnięto poprzez przeniesienie bramki kwadrantowej CCR7/CD45RO z populacji CD3+CD4+ do populacji IFN-γ+CD154+CD3+CD4+. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
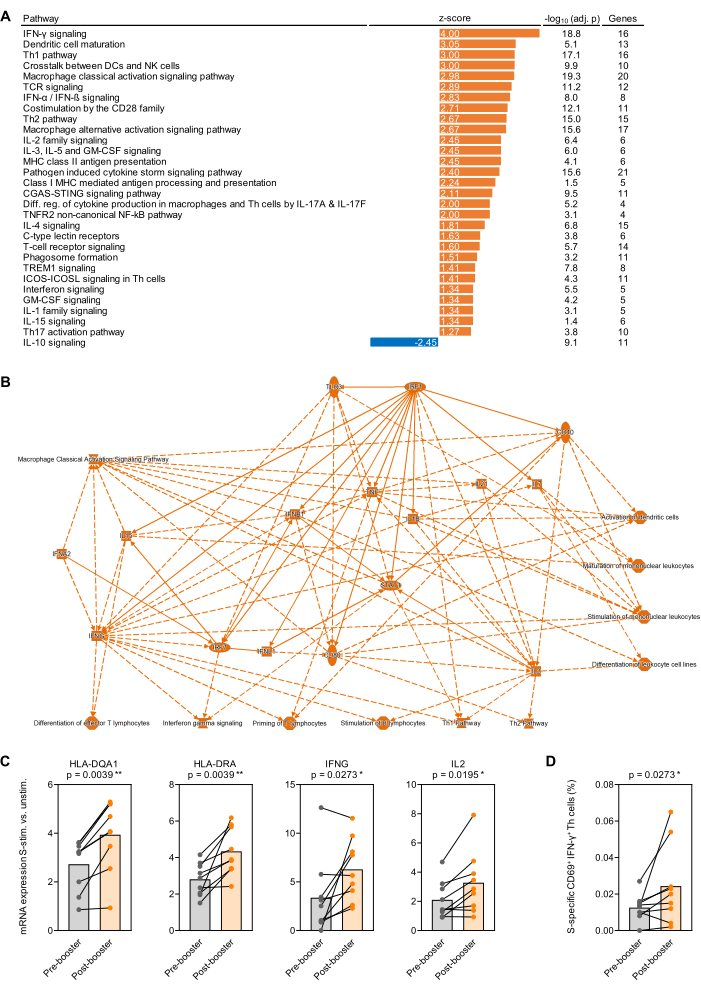
Rycina 4: Antygenowo indukowane zmiany transkrypcyjne po szczepieniu przypominającym przeciwko SARS-CoV-2. (A) Analiza wzbogacenia ścieżek transkrypcyjnych skorygowana o tło w krwi pełnej stymulowanej białkiem spike SARS-CoV-2 (Prot_S) po względem przed (pierwszą) dawką przypominającą szczepionki mRNA BNT162b2 u 9 zdrowych dorosłych osób. Przedstawiono kanoniczne ścieżki związane z odpornością z wartością p skorygowaną metodą Benjamini-Hochberga (BH-adj.) <0,05 (-log10[BH-adj. p] >1,3) i bezwzględną wartością z-score >1,25. (B) Uproszczona sieć podsumowująca geny i ścieżki silniej wzbogacone w krwi pełnej stymulowanej białkiem S po względem przed szczepieniem przypominającym. (C) Poziomy ekspresji skorygowane o tło dla reprezentatywnych genów związanych z prezentacją antygenu i aktywacją limfocytów T w krwi pełnej stymulowanej białkiem Prot_S przed i po szczepieniu przypominającym. Test Wilcoxona dla par. (D) Częstości limfocytów T IFN-γ+CD69+ specyficznych dla Prot_S skorygowane o tło przed i po szczepieniu przypominającym. Test Wilcoxona dla par. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
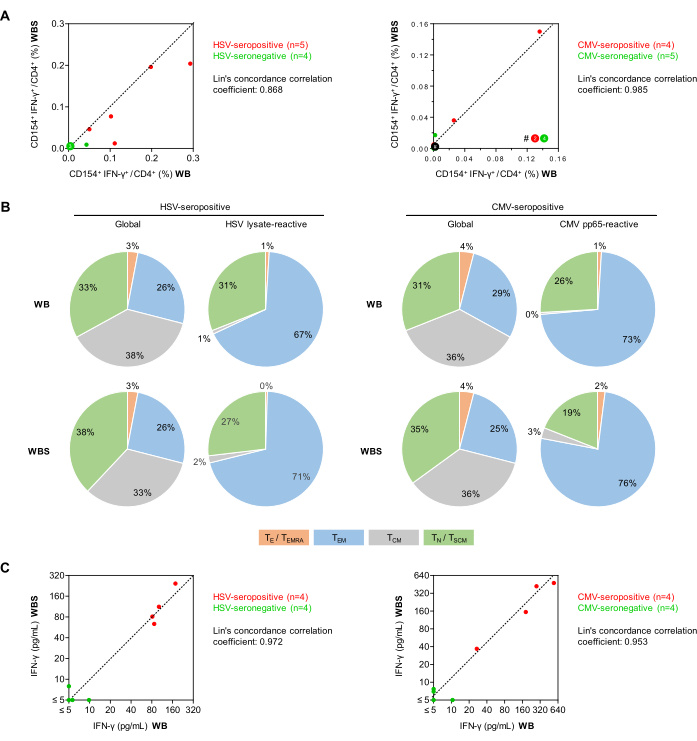
Rysunek 5: Reaktywność limfocytów T przeciwwirusowych w cytometrii przepływowej i testach ELISA. (A) Przedstawiono wykresy korelacji częstotliwości limfocytów T CD154+IFN-γ+/CD3+CD4+ po korekcie tła (cytometria przepływowa) uzyskane w standardowych testach z krwi pełnej (WB) oraz testach z małą objętością krwi pełnej (WBS). Zielone i czerwone kropki reprezentują odpowiednio osoby seronegatywne i seropozytywne w kierunku badanego wirusa. (B) Wykorzystując ocenę ekspresji CD45RO i CCR7 w cytometrii przepływowej, określono fenotypy limfocytów T pamięci/efektorowych wśród ogólnej populacji limfocytów T CD3+CD4+ oraz antygenowo reaktywnych limfocytów T IFN-γ+CD154+CD3+CD4+ po stymulacji lizatem HSV lub białkiem CMV pp65 z użyciem krwi od dawców seropozytywnych (odpowiednio n = 5 i 4). Przedstawiono średnie rozkłady. Zielony: naiwne limfocyty T (TN), CD45RO-CCR7+. Szary: limfocyty T pamięci centralnej (TCM), CD45RO+CCR7+. Niebieski: limfocyty T pamięci efektorowej (TEM), CD45RO+CCR7-. Pomarańczowy: limfocyty T efektorowe i limfocyty T pamięci efektorowej reekspresujące CD45RA (TE/TEMRA), CD45RO-CCR7-. (C) Wykresy korelacji uwalniania IFN-γ po korekcie tła (ELISA) zmierzonego w testach WB i WBS. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Tabela 1: Zawartość probówek ze stymulantami. Przedstawiono podsumowanie stężeń roztworów stokowych stymulantów i rozpuszczalników. Pełnoskalowy test z krwi pełnej (WB) wykonuje się z użyciem 500 µL krwi pełnej z heparyną litową, natomiast wersja małoscale (WBS) wymaga jedynie 250 µL krwi. W przypadku WBS objętości wszystkich odczynników stanowią połowę objętości stosowanych w WB. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Dane demograficzne zdrowych dorosłych badanych, których próbki posłużyły do utworzenia reprezentatywnych zbiorów danych. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 3: Reprezentatywny panel cytometryczny do analizy limfocytów T. Ten panel cytometryczny został wykorzystany do wygenerowania reprezentatywnego zbioru danych. Wyniki szczegółowo przedstawiono na Rysunku 3. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 4: Wcześniej opublikowane panele cytometryczne. Dane z wykorzystaniem tych kombinacji przeciwciał zostały wcześniej opublikowane przez Tappe et al.24. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Testy immunologiczne swoiste dla antygenu zapewniają wgląd w interakcje gospodarz-drobnoustroje, mają kluczowe znaczenie dla badań nad szczepieniami i immunoterapią i są coraz częściej uznawane za metody diagnostyczne i prognostyczne u pacjentów z infekcjami oportunistycznymi35. Protokół ten opisuje łatwy system stymulacji antygenu, który pozwala na solidną i multimodalną analizę odporności swoistej dla antygenu przy użyciu minimalnych objętości krwi (250-500 μl na antygen). Zmniejszony protokół 250 μl zapewnił doskonałą korelację częstości występowania limfocytów T specyficznych dla antygenu, fenotypów i produkcji cytokin w porównaniu z wcześniej ustalonym protokołem 500 μl. Pomimo dostępności rozwiązań o małej objętości dla niektórych etapów przetwarzania próbek36, zgodnie z wiedzą autorów, żaden obecnie dostępny system komercyjny nie jest w stanie niezawodnie wspierać stymulacji antygenów i wieloaspektowej analizy funkcjonalnej funkcjonalnych odpowiedzi immunologicznych sterowanych limfocytami T za pomocą cytometrii przepływowej, testów uwalniania cytokin i transkryptomiki z objętości krwi 250-500 μl. Najpowszechniej stosowany system komercyjny ułatwiający podobne spektrum zastosowań badawczych wykorzystuje 1 ml objętości krwi w środowisku stymulacji 3 ml, co skutkuje znacznie wyższymi kosztami i ilością potrzebnych antygenów w porównaniu z przedstawionym tutaj protokołem 13,14,15.
Pomimo ciągłej optymalizacji protokołów opartych na krwi pełnej do ilościowego oznaczania cytometrii przepływowej limfocytów T specyficznychdla antygenu 6,37,38, pomiary cytometrii przepływowej mają kilka wad. W szczególności mają one charakter pracochłonny i są trudne do standaryzacji ze względu na znaczną zmienność między operatorami (np. subiektywny proces bramkowania) oraz różne konfiguracje sprzętu, protokoły kompensacji i parametry akwizycji między laboratoriami. Chociaż ustandaryzowane raportowanie39 oraz zastosowanie zautomatyzowanego oprogramowania do analizy i bramkowania mogą poprawić standaryzację i porównywalność coraz bardziej złożonych wielokolorowych zestawów danych40,41, opisany tutaj protokół stymulacji został zaprojektowany tak, aby dostosować się do różnych modalności odczytu cytometrii przepływowej.
W szczególności testy uwalniania cytokin mogą być wykonywane przy niewielkim czasie pracy i stosunkowo niedrogim sprzęcie, a często są łatwo standaryzowane do rutynowych zastosowań klinicznych. Ponadto, jak wykazano w poprzednich badaniach z wykorzystaniem tego protokołu, wiele odpowiedzi cytokin można zmierzyć z minimalnych objętości próbek za pomocą nowoczesnych testów multipleksowanych, co pozwala na profilowanie złożonych sygnatur cytokin w warunkach badawczych 24,42. Warto zauważyć, że ten solidny protokół z podwójną kostymulacją ułatwia wiarygodną ocenę ilościową odpowiedzi cytokin specyficznych dla antygenu u pacjentów nielimfonowych (>800 limfocytów / μl krwi), nawet u tych, którzy otrzymują jatrogenną immunosupresję26,34. Wadą testów uwalniania cytokin jest to, że wydzielane cytokin nie mogą być odtworzone do poszczególnych populacji komórek. W niektórych przypadkach może to być złagodzone przez zastosowanie bodźców specyficznych dla komórek, jeśli są dostępne. Może być jednak konieczne połączenie stężeń cytokin z innymi metodami odczytu i/lub dostosowanie odpowiedzi cytokin w oparciu o hematologię kliniczną (tj. pełną morfologię krwi z różnicowaniem leukocytów). Warto zauważyć, że przedstawiony tutaj protokół pozwala na połączenie odczytów cytokin i sygnatur transkrypcyjnych z tej samej próbki, umożliwiając w ten sposób spójną analizę dobrze zdefiniowanych markerów aktywacji transkrypcji, które mogą dodać kontekst komórkowy i swoistość do globalnych sygnatur cytokin.
Przyszłym krokiem w kierunku pełnej standaryzacji i jeszcze lepszej praktyczności klinicznej byłaby pełna automatyzacja tych testów, od przetwarzania próbki do odczytu analitu. Mimo że udało się ustalić precyzyjną, zautomatyzowaną izolację poszczególnych populacji komórek43,44, analiza limfocytów T specyficznych dla antygenu nadal wymaga od personelu laboratoryjnego podjęcia sporadycznych kroków obsługi. Jednak pominięcie izolacji komórek i obchodzenia się z wrażliwym PBMC oraz zastosowanie komercyjnych, kompatybilnych z automatyzacją probówek stymulacyjnych może ułatwić wdrożenie prostych, w pełni zautomatyzowanych przepływów pracy opartych na krwi pełnej dla funkcjonalnych testów immunologicznych.
Podsumowując, wszechstronne protokoły oparte na krwi pełnej, takie jak ten przedstawiony w niniejszym dokumencie, dają nadzieję na rozszerzenie zastosowań funkcjonalnych testów immunologicznych specyficznych dla antygenu na nowe kohorty pacjentów i obszary badań, w tym badania przedkliniczne na małych zwierzętach. Testy immunologiczne swoiste dla antygenu są obecnie w dużej mierze niewykonalne w modelach mysich lub wymagają zebrania krwi od kilku zwierząt i/lub użycia niestandaryzowanych ekstraktów komórkowych, takich jak splenocyty. Biorąc pod uwagę rosnące zainteresowanie interwencjami immunoterapeutycznymi mającymi na celu wzmocnienie obrony gospodarza przed infekcjami oportunistycznymi (np. inhibitorami immunologicznych punktów kontrolnych, hematopoetycznymi czynnikami wzrostu, cytokinami itp.) oraz gwałtownym wzrostem innowacyjnych technologii szczepień, oczekuje się, że funkcjonalne testy immunologiczne swoiste dla antygenu będą odgrywać coraz większą rolę zarówno w przedklinicznych badaniach nad chorobami zakaźnymi, jak i w zastosowaniach klinicznych w różnych populacjach pacjentów. Solidny, niedrogi, łatwy w użyciu system stymulacji antygenów o małej objętości może ułatwić kompleksowe analizy immunologiczne specyficzne dla antygenu w niewykorzystanych obszarach. Co więcej, solidność przedanalityczna tego łatwego protokołu może stworzyć możliwości lepszego włączenia aplikacji testów immunologicznych do rutyny klinicznej, co pozwoli nam zbliżyć się o krok do spersonalizowanego, opartego na biomarkerach zarządzania chorobami zakaźnymi.
Oświadczenia
Nie ma żadnych konfliktów interesów, które mogłyby zostać ujawnione przez autorów.
Podziękowania
Dziękujemy działom chemii klinicznej i serologicznej zakażeń w Instytucie Medycyny Laboratoryjnej i Mikrobiologii Szpitala Uniwersyteckiego w Augsburgu za wykonanie pomiarów przeciwciał w surowicy. Dziękujemy dr Friederike Liesche-Starnecker oraz Instytutowi Patologii i Diagnostyki Molekularnej Szpitala Uniwersyteckiego w Augsburgu za udostępnienie urządzeń transkryptomicznych. Dziękujemy Marie Freitag ze Szpitala Uniwersyteckiego w Augsburgu za wsparcie w logistyce szczepień i pobieraniu próbek. Dziękujemy dr Olafowi Kniemeyerowi i Instytutowi Hansa-Knoella w Jenie w Niemczech za dostarczenie lizatu Aspergillus fumigatus. Inicjatywa badawcza Bay-VOC (numer finansowania GE2-2452-200-D37666/2022), Bawarskie Ministerstwo Nauki i Sztuki oraz Uniwersytet w Augsburgu w Niemczech wsparły te prace.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Roztwór 7-AAD | Miltenyi Biotec | 130-111-568 | |
| Anty-IFN-g-PE, człowiek, REA600, 100 testów | Miltenyi Biotec | 130-113-498 | |
| Lizat Aspergillus fumigatus | Nie | dotyczy | Nie dotyczy Uprzejmie dostarczone przez Instytut Hansa-Knoella Jena, Niemcy |
| Przeciwciało anty-ludzkie Brilliant Violet 650 anty-ludzkie CD197 (CCR7) | BioLegend | 353234 | |
| Bufor EL | Qiagen | 79217 | Bufor do lizy erytrocytów |
| CD154-PE-Vio770, człowiek, REA238, 100 testów | Miltenyi Biotec | 130-113-614 | |
| CD279 (PD1)-VioBright 515, człowiek, 100 testów | Miltenyi Biotec | 130-120-386 | |
| CD28 czysty, ludzki - klasa funkcjonalna | Miltenyi Biotec | 130-093-375 | |
| CD3-VioBright R720, człowiek, REA613, 100 testów | Miltenyi Biotec | 130-127-377 | |
| CD45RO-APC-Vio770, człowiek, REA611, 100 testów | Miltenyi Biotec | 130-113-557 | |
| CD49d czysty, ludzki | Miltenyi Biotec | 130-093-279 | |
| CD4-VioBlue, człowiek, REA623, 100 testów | Miltenyi Biotec | 130-114-534 | |
| CD69-PE-Vio615, człowiek, REA824, 100 testów | Miltenyi Biotec | 130-112-617 | |
| Inkubator CO2 | PHCbi | MCO-170AICD-PE | |
| CPI Roztwór kontroli pozytywnej | ImmunoSpot | CTL-CPI-001 | |
| CRX-527 | Invivogen | tlrl-crx527 | |
| Oprogramowanie do akwizycji i analizy CytExpert Beckman | Coulter | Wersja 2.4 | Cytometr przepływowy Oprogramowanie do obsługi |
| CytoFlex S B2-R3-V4-Y4 | Beckman Coulter | B75408 | Cytometr przepływowy |
| GraphPad Prism | GraphPad | Wersja 10.1.0 | |
| Wirus opryszczki pospolitej 1 lizat | AID Autoimmun Diagnostika | ELSP 5916K | |
| HU IFN G Niepowlekany ELISA 2X96T PLT | Thermo Fisher Scientific | 88-7316-22 | |
| HydroFLex Podkładka mikropłytkowa | Tecan | 30220085 | |
| Infinite M Plex | Tecan | 30213614 | Wielomodowy czytnik mikropłytek |
| Oprogramowanie do analizy Kaluza | Beckman Coulter | Wersja 2.1.00003.20057 | Oprogramowanie do analizy danych cytometrycznej |
| przepływowej MACS Zestaw do barwienia wewnętrznego | Miltenyi Biotec | 130-090-477 | |
| Mastercycler X50L | Eppendorf | 6303000010 | |
| Nanodrop One | Thermo Fisher Scientific | ND-ONE-W | |
| nCounter Sprint Cartridge | Nanostring | 100078 | |
| nCounter Sprint Profiler | Nanostring | 100170 | |
| nCounter Sprint Reagent Pack | Nanostring | 100077 | |
| nSolver | Nanostring Version 4.0 | Oprogramowanie do analizy danych Nanostring | |
| Octeniderm farblos 250 ml FL | Schuelke | 118211 | |
| Omnifix F Solo, 1 ml, bez żadnych informacji; le, 3-teilig | Braun | 9161406V | Strzykawki |
| PepTivator CMV pp65, ludzkie, 60nmol | Miltenyi Biotec | 130-093-435 | |
| PepTivator SARS-CoV-2 Prot_S, klasa badawcza, do stymulacji 1&razy; 108 komórek | Miltenyi Biotec | 130-126-700 | |
| QIAshredder | Qiagen | 79654 | |
| RNA Protect | Qiagen | 76526 | |
| RNeasy Plus Mini Kit | Qiagen | 74134 | |
| RPMI 1640 Medium, suplement GlutaMAX, HEPES | Thermo Fisher Scientific | 72400047 | |
| Safe 2020 1.5 Mikrobiologiczny Szafa bezpieczeństwa | Thermo Fisher Scientific | 51026959 | |
| S-Monovette heparyna litowa, 4,9 ml | Sarstedt | 04.1939.001 | Probówki do pobierania krwi |
| S-Monovette neutralne, 2,7 ml | Sarstedt | 05.1729 | Probówki do stymulacji |
| Sterican Safety G 19 x 1 1/2'' 1,1 x 40 mm | Braun | 4670052S-01 | Roztwór do zatrzymywania igieł |
| , 100 ml | Thermo Fisher Scientific | BMS409.0100 | |
| Bufor do płukania 20X, 500 ml | Thermo Fisher Scientific | BMS408.0500 | |
| Woda, 1 l | Carl Roth | 3478.1 | |
| XT Hs Exhaustion CSO | Nanostring | 115000466 | Nanostring Immunologiczny panel wyczerpaniowy |
Bibliografia
- Mckenna, K. C., Beatty, K. M., Vicetti Miguel, R., Bilonick, R. A. Delayed processing of blood increases the frequency of activated CD11b+ CD15+ granulocytes which inhibit t cell function. J Immunol Methods. 341 (1-2), 68-75 (2009).
- Doberne, D., Gaur, R. L., Banaei, N. Preanalytical delay reduces sensitivity of quantiferon-tb gold in-tube assay for detection of latent tuberculosis infection. J Clin Microbiol. 49 (8), 3061-3064 (2011).
- Corbiere, V., et al. A semi high-throughput whole blood-based flow cytometry assay to detect and monitor bordetella pertussis-specific th1, th2 and th17 responses. Front Immunol. 14, 1101366(2023).
- Lauruschkat, C. D., et al. Development of a simple and robust whole blood assay with dual co-stimulation to quantify the release of t-cellular signature cytokines in response to aspergillus fumigatus antigens. J Fungi (Basel). 7 (6), 462(2021).
- Riou, C., et al. simplified whole blood-based multiparameter assay to quantify and phenotype SARS-COV-2-specific T-cells. Eur Respir J. 59 (1), 2100285(2022).
- Weis, P., et al. Development and evaluation of a whole blood-based approach for flow cytometric quantification of CD154+ mould-reactive T cells. Med Mycol. 58 (2), 187-196 (2020).
- Boyum, A. Isolation of lymphocytes, granulocytes and macrophages. Scand J Immunol. 5, Suppl 5 9-15 (1976).
- Chen, G., Wang, H., Wang, Y. Clinical application of quantiferon-tb gold in-tube in the diagnosis and treatment of tuberculosis. Eur J Clin Microbiol Infect Dis. 39 (4), 607-612 (2020).
- Manuel, O., Kumar, D. Quantiferon-tb gold assay for the diagnosis of latent tuberculosis infection. Expert Rev Mol Diagn. 8 (3), 247-256 (2008).
- Inthawong, M., et al. A whole blood intracellular cytokine assay optimised for field site studies demonstrates polyfunctionality of CD4+ t cells in acute scrub typhus. PLoS Negl Trop Dis. 17 (3), e0010905(2023).
- Johnson, S. A., et al. Evaluation of quantiferon SARS-COV-2 interferon-gamma release assay following SARS-COV-2 infection and vaccination. Clin Exp Immunol. 212 (3), 249-261 (2023).
- Kruttgen, A., et al. Evaluation of the quantiferon SARS-COV-2 interferon-ɣ release assay in mrna-1273 vaccinated health care workers. J Virol Methods. 298, 114295(2021).
- Duffy, D., et al. Standardized whole blood stimulation improves immunomonitoring of induced immune responses in multi-center study. Clin Immunol. 183, 325-335 (2017).
- Duffy, D., et al. Functional analysis via standardized whole-blood stimulation systems defines the boundaries of a healthy immune response to complex stimuli. Immunity. 40 (3), 436-450 (2014).
- Smith, N., et al. Defective activation and regulation of type i interferon immunity is associated with increasing COVID-19 severity. Nat Commun. 13 (1), 7254(2022).
- Lauruschkat, C. D., et al. CD4+ T cells are the major predictor of hcmv control in allogeneic stem cell transplant recipients on letermovir prophylaxis. Front Immunol. 14, 1148841(2023).
- Pelchen-Matthews, A., Parsons, I. J., Marsh, M. Phorbol ester-induced downregulation of cd4 is a multistep process involving dissociation from p56lck, increased association with clathrin-coated pits, and altered endosomal sorting. J Exp Med. 178 (4), 1209-1222 (1993).
- Boise, L. H., et al. CD28 costimulation can promote t cell survival by enhancing the expression of bcl-xl. Immunity. 3 (1), 87-98 (1995).
- Udagawa, T., Woodside, D. G., Mcintyre, B. W. Alpha 4 beta 1 (CD49d/CD29) integrin costimulation of human t cells enhances transcription factor and cytokine induction in the absence of altered sensitivity to anti-cd3 stimulation. J Immunol. 157 (5), 1965-1972 (1996).
- Baumann, J., et al. Golgi stress-induced transcriptional changes mediated by mapk signaling and three ets transcription factors regulate mcl1 splicing. Mol Biol Cell. 29 (1), 42-52 (2018).
- Miller, S. G., Carnell, L., Moore, H. H. Post-golgi membrane traffic: Brefeldin a inhibits export from distal golgi compartments to the cell surface but not recycling. J Cell Biol. 118 (2), 267-283 (1992).
- Zandvliet, M. L., et al. Co-ordinated isolation of CD8(+) and CD4(+) t cells recognizing a broad repertoire of cytomegalovirus pp65 and ie1 epitopes for highly specific adoptive immunotherapy. Cytotherapy. 12 (7), 933-944 (2010).
- Kramer, K. J., et al. Single-cell profiling of the antigen-specific response to bnt162b2 sars-cov-2 rna vaccine. Nat Commun. 13 (1), 3466(2022).
- Tappe, B., et al. COVID-19 patients share common, corticosteroid-independent features of impaired host immunity to pathogenic molds. Front Immunol. 13, 954985(2022).
- Stover, A. G., et al. Structure-activity relationship of synthetic toll-like receptor 4 agonists. J Biol Chem. 279 (6), 4440-4449 (2004).
- Page, L., et al. Impact of immunosuppressive and antifungal drugs on pbmc- and whole blood-based flow cytometric CD154(+) Aspergillus fumigatus specific t-cell quantification. Med Microbiol Immunol. 209 (5), 579-592 (2020).
- Hedley, B. D., Keeney, M. Technical issues: Flow cytometry and rare event analysis. Int J Lab Hematol. 35 (3), 344-350 (2013).
- Bacher, P., Scheffold, A. Flow-cytometric analysis of rare antigen-specific T cells. Cytometry A. 83 (8), 692-701 (2013).
- Frentsch, M., et al. Direct access to CD4+ t cells specific for defined antigens according to cd154 expression. Nat Med. 11 (10), 1118-1124 (2005).
- Osum, K. C., Jenkins, M. K. Toward a general model of CD4(+) t cell subset specification and memory cell formation. Immunity. 56 (3), 475-484 (2023).
- Lighvani, A. A., et al. T-bet is rapidly induced by interferon-gamma in lymphoid and myeloid cells. Proc Natl Acad Sci U S A. 98 (26), 15137-15142 (2001).
- Lamb, Y. N. Bnt162b2 mrna COVID-19 vaccine: First approval. Drugs. 81 (4), 495-501 (2021).
- Arbel, R., et al. Bnt162b2 vaccine booster and mortality due to COVID-19. N Engl J Med. 385 (26), 2413-2420 (2021).
- Lauruschkat, C. D., et al. T-cell immune surveillance in allogenic stem cell transplant recipients: Are whole blood-based assays ready to challenge elispot. Open Forum Infect Dis. 8 (1), 547(2021).
- Albert-Vega, C., et al. Immune functional assays, from custom to standardized tests for precision medicine. Front Immunol. 9, 2367(2018).
- Biolegend. , Available from: https://www.biolegend.com/de-de/products/dry-human-aim-assay-cocktail-kit-23591?GroupID=GROUP28 (2024).
- Lauruschkat, C. D., et al. Susceptibility of a. Fumigatus-specific t-cell assays to pre-analytic blood storage and pbmc cryopreservation greatly depends on readout platform and analytes. Mycoses. 61 (8), 549-560 (2018).
- Wurster, S., et al. Quantification of a. Fumigatus-specific cd154+ t-cells-preanalytic considerations. Med Mycol. 55 (2), 223-227 (2017).
- Britten, C. M., et al. T cell assays and miata: The essential minimum for maximum impact. Immunity. 37 (1), 1-2 (2012).
- Cossarizza, A., et al. Guidelines for the use of flow cytometry and cell sorting in immunological studies (third edition). Eur J Immunol. 51 (12), 2708-3145 (2021).
- Le Lann, L., et al. Standardization procedure for flow cytometry data harmonization in prospective multicenter studies. Sci Rep. 10 (1), 11567(2020).
- Lauruschkat, C. D., et al. Chronic occupational mold exposure drives expansion of aspergillus-reactive type 1 and type 2 t-helper cell responses. J Fungi (Basel). 7 (9), 698(2021).
- Pascual-Garcia, M., et al. Lif regulates cxcl9 in tumor-associated macrophages and prevents cd8(+) t cell tumor-infiltration impairing anti-pd1 therapy. Nat Commun. 10 (1), 2416(2019).
- Paull, D., et al. Automated, high-throughput derivation, characterization and differentiation of induced pluripotent stem cells. Nat Meth. 12 (9), 885-892 (2015).
Przedruki i uprawnienia
