Generowanie anionów ponadtlenkowych jest niezbędne do stymulacji płytek krwi, a jeśli są rozregulowane, krytyczne dla chorób zakrzepowych. W tym miejscu przedstawiamy trzy protokoły selektywnego wykrywania anionów ponadtlenkowych oraz badania regulacji płytek krwi zależnej od redoks.
Artykuł metodologiczny
Alternatywne metody wykrywania wytwarzania anionów ponadtlenkowych w płytkach krwi
W tym artykule
Podsumowanie
Streszczenie
Reaktywne formy tlenu (ROS) są wysoce niestabilnymi cząsteczkami zawierającymi tlen. Ich niestabilność chemiczna sprawia, że są niezwykle reaktywne i dają im zdolność reagowania z ważnymi cząsteczkami biologicznymi, takimi jak białka, kwasy nukleinowe i lipidy. Aniony ponadtlenkowe są ważnymi ROS generowanymi przez redukcję redukcji tlenu cząsteczkowego (tj. Akwizycję jednego elektronu). Pomimo ich początkowego wpływu wyłącznie na procesy starzenia, zwyrodnieniowe i patogenne, ich udział w ważnych reakcjach fizjologicznych stał się ostatnio widoczny. Wykazano, że w układzie naczyniowym aniony ponadtlenkowe modulują różnicowanie i funkcję komórek mięśni gładkich naczyń krwionośnych, proliferację i migrację komórek śródbłonka naczyń krwionośnych w angiogenezie, odpowiedź immunologiczną i aktywację płytek krwi w hemostazie. Rola anionów ponadtlenkowych jest szczególnie ważna w rozregulowaniu płytek krwi i powikłaniach sercowo-naczyniowych związanych z wieloma schorzeniami, w tym rakiem, infekcjami, stanami zapalnymi, cukrzycą i otyłością. W związku z tym stało się to niezwykle istotne w badaniach sercowo-naczyniowych, aby móc skutecznie mierzyć wytwarzanie anionów ponadtlenkowych przez ludzkie płytki krwi, zrozumieć zależne od redoks mechanizmy regulujące równowagę między hemostazą a zakrzepicą i ostatecznie zidentyfikować nowe narzędzia farmakologiczne do modulacji odpowiedzi płytek krwi prowadzących do zakrzepicy i powikłań sercowo-naczyniowych. W pracy przedstawiono trzy protokoły eksperymentalne z powodzeniem przyjęte do wykrywania anionów ponadtlenkowych w płytkach krwi oraz badania zależnych od redoks mechanizmów regulujących hemostazę i zakrzepicę: 1) wykrywanie anionów ponadtlenkowych na bazie dihydroetydydy (DHE) za pomocą cytometrii przepływowej; 2) Wizualizacja i analiza anionów ponadtlenkowych na podstawie DHE za pomocą obrazowania pojedynczych płytek krwi; oraz 3) kwantyfikacja produkcji anionów ponadtlenkowych w płytkach krwi za pomocą sondy spinowej za pomocą elektronowego rezonansu paramagnetycznego (EPR).
Wprowadzenie
Anion ponadtlenkowy (O2•-) jest najbardziej funkcjonalnym ROS generowanym w płytkach krwi1. O2•- jest produktem redukcji tlenu cząsteczkowego i prekursorem wielu różnych ROS 2. Dysmutacja O2•- prowadzi do wytworzenia nadtlenku wodoru (H2O2) w wyniku spontanicznych reakcji w roztworze wodnym lub reakcji katalizowanych przez dysmutazy ponadtlenkowe (SODs3). Chociaż sugerowano różne źródła enzymatyczne (np. oksydaza ksantynowa4, lipooksygenaza5, cyklooksygenaza6 i syntaza tlenku azotu7), oddychanie mitochondrialne8,9 i oksydazy fosforanowe dinukleotydu nikotynamidoadeninowego (NOXs)10 są najbardziej widocznymi źródłami anionów ponadtlenkowych w komórkach eukariotycznych. Wydaje się, że tak jest również w przypadku płytek krwi, gdzie wyciek elektronów z oddychania mitochondrialnego11,12 i aktywność enzymatyczna NOXs13,14 zostały opisane jako główne czynniki przyczyniające się do produkcji anionów ponadtlenkowych.
Chociaż kilka badań skupiało się na regulacji płytek krwi przez O2•-, nie ma zgody co do odpowiedzialnych za to mechanizmów molekularnych. Zaproponowano modulację aktywności receptorów powierzchniowych poprzez bezpośrednie utlenianie i tworzenie wiązań dwusiarczkowych dla różnych receptorów płytkowych. Zasugerowano pozytywną regulację integryny αIIbβ3 przez ROS poprzez bezpośrednie utlenianie reszt cysteiny15,16,17. Podobnie, ponieważ odpowiedzi płytek krwi na kolagen zależą od dimeryzacji zależnej od dwusiarczku i wynikającej z niej dimeryzacji glikoproteiny VI (GPVI)18, zaproponowano wzmocnienie aktywności receptora przez utlenianie zależne od ROS19, chociaż nie w pełni udowodnione eksperymentalnie. Wreszcie, wykazano, że indukowane przez ROS utlenianie grup sulfhydrylowych glikoproteiny Ib (GPIb) sprzyja adhezji płytek krwi i interakcji płytka-leukocyty podczas stanu zapalnego20. I odwrotnie, jako możliwa konsekwencja zmniejszonego utleniania grupy sulfhydrylowej i aktywacji receptora, zrzucanie ektodomeny zarówno GPVI, jak i GPIb jest zmniejszone przez warunki redukcji21.
Zaproponowano również sposoby działania niezależne od bezpośredniego utleniania receptorów powierzchniowych płytek krwi. Wykazano, że ROS, w tym O2•-, pozytywnie modulują receptor kolagenowy GPVI poprzez osłabienie aktywności białka fosfatazy tyrozynowej 2 (SHP-2) regionu homologii Src 2, który negatywnie reguluje kaskadę sygnalizacyjną tego receptora22. Co więcej, O2•- może wytwarzać ONOO- (nadtlenoazotyn) w szybkiej reakcji z tlenkiem azotu (NO), który normalnie hamuje płytki krwi poprzez wrażliwą na NO cyklazę guanylilową (NO-GC) i wytwarzanie ujemnego regulatora płytek krwi cyklicznego GMP (cGMP)23,24. Wynikający z tego spadek poziomu NO może prowadzić do nasilenia płytek krwi. Alternatywnie, sugeruje się, że wytwarzanie O2•- przez NOX2 przyczynia się do peroksydacji lipidów i tworzenia izoprostanu, co jest niezbędne do aktywacji i adhezji płytek krwi25. Wreszcie, kinaza 5 (ERK5) kinazy białkowej aktywowanej mitogenem (MAPK), kinaza białkowa proponowana jako czujnik stresu redoks w płytkach krwi26, jest aktywowana przez O2•- i indukuje fenotyp prokoagulacyjny w płytkach krwi (zgodnie z oszacowaniem na podstawie pomiaru eksternalizacji fosfatydyloseryny opartego na cytometrii przepływowej)27.
Dysregulacja generacji O2•- i innych ROS w płytkach krwi została związana z przesadną reakcją hemostatyczną prowadzącą do zakrzepowych powikłań sercowo-naczyniowych związanych z miażdżycą, cukrzycą, nadciśnieniem, otyłością i rakiem28,29. W tych patologicznych warunkach produkcja ROS przez płytki krwi jest zwiększona, co prowadzi do nasilenia ich reakcji adhezyjnych i agregacyjnych. Oprócz wpływu na odpowiedź płytek krwi, wydzielanie wolnych rodników przez płytki krwi może mieć wpływ na inne komórki krwi i struktury naczyniowe, co jest słabo poznanym i niedostatecznie zbadanym obszarem zdrowia układu sercowo-naczyniowego30. Pomimo naszej ograniczonej wiedzy na temat mechanizmów molekularnych łączących stres oksydacyjny ze stanami zakrzepowymi, znaczenie kliniczne przeciwutleniaczy w ochronie przed chorobami sercowo-naczyniowymi spotkało się z dużym zainteresowaniem. Wykazano, że poziomy przeciwutleniaczy w osoczu są odwrotnie skorelowane z ryzykiem rozwoju chorób sercowo-naczyniowych, a spożycie przeciwutleniaczy w diecie chroni przed chorobą wieńcową31,32. W związku z tym stosowanie przeciwutleniaczy w diecie jest zalecane jako obiecujące podejście do zapobiegania chorobom sercowo-naczyniowym33,34,35. Wśród skutków wytwarzania ROS w płytkach krwi, wzrost apoptozy może mieć ważne efekty patofizjologiczne36,37. Ogólnie rzecz biorąc, wiarygodne protokoły wykrywania i ilościowego oznaczania wydzielaniaO2•- przez płytki krwi są coraz bardziej istotne w badaniach sercowo-naczyniowych.
Obecnie dostępne techniki wykrywania ROS mają istotne ograniczenia specyficzności (np. chemiczna natura wykrytych cząsteczek utleniacza jest nieznana) i niezawodności (np. niepożądana interakcja z cząsteczkami biologicznymi i eksperymentalnymi odczynnikami prowadzi do stronniczych wyników niefizjologicznych)38,39. Najczęściej stosowanym podejściem do wykrywania ROS w płytkach krwi jest użycie dioctanu dichlorodihydrofluoresceiny (DCFDA), który jest przekształcany w dichlorodihydrofluoresceinę (DCFH) przez esterazy wewnątrzkomórkowe, a w konsekwencji w wysoce fluorescencyjną dichlorofluoresceinę (DCF) przez utleniacze komórkowe, w tym rodniki hydroksylowe i półprodukty peroksydazy-H2O240,41. Pomimo jego szerokiego zastosowania, pojawiły się poważne wątpliwości co do wiarygodności tego podejścia do pomiaru wewnątrzkomórkowego ROS38. Utlenianie DCFH do DCF może być w rzeczywistości indukowane przez jony metali przejściowych (np. Fe2+) lub enzymy zawierające hem (np. cytochromy) zamiast ROS42. Ponadto DCFDA jest przekształcany przez peroksydazy komórkowe do formy wolnego rodnika semichinonu (DCF•-), która z kolei jest utleniana do DCF w reakcji z tlenem cząsteczkowym (O2) z uwalnianiem O2•-, co prowadzi do sztucznej amplifikacji odpowiedzi oksydacyjnych41,43,44. W związku z tym wykrywanie wewnątrzkomórkowych ROS przez DCFDA jest przydatne do uzyskania wstępnych informacji, ale wymaga ostrożnego rozważenia i szeroko zakrojonych kontroli eksperymentalnych38,39.
To badanie przedstawia trzy alternatywne techniki wykrywania i pomiaru kluczowego regulatora funkcji płytek krwi O2•-1. Pierwszą techniką jest detekcja za pomocą DHE i cytometrii przepływowej, która oferuje przewagę niezawodności i swoistości nad DCFDA. Druga proponowana tutaj technika również wykorzystuje DHE, ale metodą wykrywania jest obrazowanie fluorescencji żywych płytek krwi, które pozwala na badanie wytwarzania O2•- po sygnalizacji płytkowej z szybką kinetyką i rozdzielczością pojedynczej komórki. Wreszcie, protokół oparty na zastosowaniu sondy spinowej hydroksyloaminy 1-hydroksy-3-metoksykarbonylo-2,2,5,5-tetrametylopirolidyny (CMH) w eksperymentach rezonansowych EPR daje możliwość ilościowego określenia szybkości wytwarzania O2•- przez płytki krwi i porównania jej w różnych warunkach.
Protokół
Pobieranie krwi obwodowej od ochotników, którzy wyrazili zgodę, jest zatwierdzane przez lokalną Komisję Etyki i Krajowy Urząd ds. Badań nad Zdrowiem Służby Zdrowia (REC ref: 21/SC/0215; Identyfikator IRAS: 283854).
1. Metoda 1: Wykrywanie anionów ponadtlenkowych za pomocą DHE metodą cytometrii przepływowej
- Wstępnie podgrzej (37 °C) roztwór cytrynianu sodu (4% w/v) i użyj go jako antykoagulantu, dodając go bezpośrednio do krwi w momencie nakłucia żyły w stosunku 1:7 (0,5% w/v final).
- Pobrać obwodową krew ludzką od zdrowych ochotników przez nakłucie żyły łokciowej środkowej.
- Otrzymać osocze bogatopłytkowe (PRP) z krwi pełnej przez wstępne odwirowanie w temperaturze 200 x g przez 20 min.
- Odwirować PRP przy 500 x g przez 10 minut z odwracalnymi inhibitorami płytek krwi indometacyną (10 μM) i PGE1 (40 ng/ml).
- Powstałe w ten sposób osady płytkowe zawiesić w zmodyfikowanym buforze Tyrode'a (145 mM NaCl, 2,9 mM KCl, 10 mM kwasu 4-(2-hydroksyetylo)-1-piperazynoetanosulfonowego (HEPES), 1 mM MgCl2, 5 mM glukozy, pH 7,3) (37 °C) o gęstości 2 x 10⁸ płytek krwi/ml.
- Po wyizolowaniu płytki krwi odpoczywają przez 30 minut w temperaturze 37 °C.
- Przygotować DHE w dimetylosulfotlenku (DMSO) w stężeniu podstawowym 5 mM.
- Dodać DHE do zawiesiny płytek krwi o końcowym stężeniu 5 μM (rozcieńczyć roztwór podstawowy 1 do 1 000, o końcowym stężeniu DMSO 0,1% v/v) i inkubować przez 15 minut w temperaturze 37 °C.
- Traktuj płytki krwi środkami farmakologicznymi i/lub zmiataczami ROS przez 15 minut przed stymulacją pożądanymi bodźcami fizjologicznymi i stężeniami (np. 0,1 jednostki/ml trombiny lub 3 μg/ml kolagenu).
- Po stymulacji rozcieńczyć zawiesiny płytek krwi od 1 do 10 w lodowato modyfikowanym buforze HEPES.
- W przypadku cytometrii przepływowej ustaw wzmocnienie rozpraszania bocznego (SSC) i rozpraszania do przodu (FSC) odpowiednio na 40 mV i 220 mV, a następnie użyj wykresów rozproszenia w skali logarytmicznej do wizualizacji populacji cząstek w zawiesinie (przykład w Rysunek 1A).
- (OPCJONALNIE) Barwienie immunologiczne jednej podwielokrotności zawiesiny płytek krwi przy użyciu przeciwciała anty-CD41 w celu zidentyfikowania populacji zdarzeń odpowiadających płytkom krwi (przykład w Rysunek 1B).
- Analizuj próbki za pomocą cytometrii przepływowej z wykorzystaniem wzbudzenia przy długości fali 405 nm (laser fioletowy) i emisji przy długości fali 580 nm, która selektywnie wykrywa produkt specyficzny dla anionu ponadtlenkowego 2-hydroksyetydyny (2OH-Et+) (Rysunek 2).
UWAGA: Utrwalanie paraformaldehydem i długotrwałe przechowywanie próbki nie są wskazane.
2. Metoda 2: Wykrywanie anionów ponadtlenkowych za pomocą DHE za pomocą obrazowania fluorescencyjnego pojedynczej płytki
- Pokryj 8-dołkowy szkiełko μ w dniu eksperymentu 0,1 mg/ml fibrylarnego kolagenu I ze ścięgien koni (kolagen Horm), 0,2 mg/ml fibrynogenu lub 1 mg/ml poli-L-lizyny (PLL) w zmodyfikowanym buforze Tyrode'a przez 2 godziny w temperaturze 37 °C.
- Umyj dwukrotnie zmodyfikowanym buforem Tyrode (po 10 minut).
- Stłumić nieswoistą adhezję przez inkubację w zmodyfikowanym buforze Tyrode'a plus 5 mg/ml albuminy surowicy bydlęcej (BSA) przez co najmniej 30 minut (lub do czasu doświadczenia).
- Wstępnie podgrzej (37 °C) roztwór cytrynianu sodu (4% w/v) i użyj go jako antykoagulantu, dodając go bezpośrednio do krwi w momencie nakłucia żyły w stosunku 1:7 (0,5% w/v final).
- Pobrać obwodową krew ludzką od zdrowych ochotników przez nakłucie żyły łokciowej środkowej.
- Otrzymać osocze bogatopłytkowe (PRP) z krwi pełnej przez wstępne odwirowanie w temperaturze 200 x g przez 20 min.
- Odwirować PRP przy 500 x g przez 10 minut z odwracalnymi inhibitorami płytek krwi indometacyną (10 μM) i PGE1 (40 ng/ml).
- Powstałą osadkę płytek krwi zawiesić w zmodyfikowanym buforze Tyrode'a (145 mM NaCl, 2,9 mM KCl, 10 mM HEPES, 1 mM MgCl2, 5 mM glukozy, pH 7,3) (37 °C) o gęstości 4 x 10⁷ płytek krwi/ml.
- Po wyizolowaniu płytki krwi odpoczywają przez 30 minut w temperaturze 37 °C.
- Przygotować DHE w dimetylosulfotlenku (DMSO) w stężeniu podstawowym 10 mM.
- Dodać DHE w końcowym stężeniu 10 μM do zawiesiny płytek krwi (rozcieńczyć roztwór podstawowy 1 do 1 000, o końcowym stężeniu DMSO 0,1% v/v) i inkubować przez 1 minutę (37 °C).
- Po 1 minutach inkubacji z DHE należy usunąć roztwór blokujący z wybranych studzienek, umieścić μ-szkiełko na stoliku mikroskopu gotowe do obrazowania i delikatnie dozować płytki krwi.
- Monitoruj konwersję DHE do 2OH-Et+ za pomocą odwróconego obrazowania konfokalnego przez 10 minut (405/580 nm ex/em), z obrazami zbieranymi co 10 s za pomocą 40-krotnej soczewki olejowej.
- (OPCJONALNIE) W przypadku studzienek pokrytych PLL należy monitorować wytwarzanie anionów ponadtlenkowych w odpowiedzi na rozpuszczalnego agonistę (np. 0,1 jednostki/ml trombiny lub 3 μg/ml kolagenu), dodając agonistę 10 minut po dozowaniu płytek krwi i zebraniu obrazu fluorescencji przez kolejne 10 minut, jak opisano w kroku 2.13.
- (OPCJONALNIE) W razie potrzeby dodać zmiatacze anionów ponadtlenkowych lub selektywne inhibitory (np. inhibitor NOX), delikatnie dozując na bok studzienki w czasie trwania i zbierać obrazy fluorescencji, jak opisano w ppkt 2.13, przez kolejne 10 minut.
- Ilościowe określenie analizy fluorescencji pojedynczych komórek poprzez wybór obszaru zainteresowania (ROI) zawierającego reprezentatywne pojedyncze płytki krwi i przeanalizowanie intensywności fluorescencji w różnych klatkach za pomocą narzędzia Measure w pakiecie do obrazowania ImageJ 1.53t.
3. Metoda 3: Wykrywanie anionów ponadtlenkowych przez płytki krwi za pomocą elektronowego rezonansu paramagnetycznego (EPR)
- Wstępnie podgrzej (37 °C) roztwór cytrynianu sodu (4% w/v) i użyj go jako antykoagulantu, dodając go bezpośrednio do krwi w momencie nakłucia żyły w stosunku 1:7 (0,5% w/v final).
- Pobrać obwodową krew ludzką od zdrowych ochotników przez nakłucie żyły łokciowej środkowej.
- Otrzymać osocze bogatopłytkowe (PRP) z krwi pełnej przez wstępne odwirowanie w temperaturze 200 x g przez 20 min.
- Odwirować PRP przy 500 x g przez 10 minut z odwracalnymi inhibitorami płytek krwi indometacyną (10 μM) i PGE1 (40 ng/ml).
- Powstały osad płytek krwi zawiesić w zmodyfikowanym buforze Tyrode'a (145 mM NaCl, 2,9 mM KCl, 10 mM HEPES, 1 mM MgCl2, 5 mM glukozy, pH 7,3) (37 °C) o gęstości 2 x 10⁸ płytek krwi/ml.
- Po wyizolowaniu płytki krwi odpoczywają przez 30 minut w temperaturze 37 °C.
- Dodać 5 μM dietyloditiokarbaminianu (DETC) i 25 μM deferoksaminy do zawiesiny płytek krwi.
- Bez inkubacji dodać 200 μM 1-hydroksy-3-metoksykarbonylo-2,2,5,5-tetrametylopirolidyny (CMH).
- Załaduj próbki do agresjometru w kuwetach agregacyjnych (w tym magnesach mieszających pokrytych teflonem).
- Po 1 minucie dodaj bodźce o pożądanym stężeniu (np. 1 jednostka/ml trombiny lub 3 μg/ml kolagenu). Inkubować przez 10 minut.
- (OPCJONALNIE) Uzyskaj generowanie anionów ponadtlenkowych w różnych punktach czasowych, przechodząc do kroku 3.12 w żądanym czasie.
- Przenieść zawiesinę płytek krwi z kuwety agregacyjnej do probówki mikrowirówkowej i szybko wirować w dół z prędkością 6 000 x g przez 10 s.
- Załadować 50 μl supernatantu do mikropipet kapilarnych i uszczelnić woskiem uszczelniającym EPR.
- Przenieść próbki do skanera EPR.
- Ustaw skaner EPR w następujący sposób: pole środkowe 3 492,5 G, przemiatanie pola 60 G, amplituda modulacji 2 G, czas przemiatania 10 s, liczba skanów 10, częstotliwość mikrofal 9,39 GHz, moc mikrofal 20 mW, czas konwersji 327,68 ms, stała czasowa 5242,88 ms.
- Oszacuj utlenianie CMH do CM● jako pole pod krzywą (AUC) pików EPR zarejestrowanych przy użyciu powyższych parametrów.
- Zbuduj krzywą kalibracyjną wykreślającą intensywność EPR zmierzoną zgodnie z opisem w kroku 3.16 na osi y i stężenia dostępnego w handlu CM● na osi x (np. 0, 0,3, 1, 3, 10 i 30 μM).
- Ze stężenia CM● w próbkach należy uzyskać ilość anionu ponadtlenkowego generowanego przez płytki krwi w próbkach, korzystając ze wzorów opisanych w sekcji Reprezentatywne wyniki.
Wyniki
W przypadku detekcji fluorescencji DHE metodą cytometrii przepływowej przedstawiamy reprezentatywne wyniki dla płytek krwi w stanie spoczynku (Ryc. 3A) lub stymulowanych 0,1 jednostką/mL trombiny (Ryc. 3B). Produkcję O2•- określono jako średnią intensywność fluorescencji (MFI) płytek krwi, co zaprezentowano dla stymulacji 0,1 jednostką/mL trombiny (Ryc. 3C) lub 3 µg/mL peptydu związanego z kolagenem (CRP) (Ryc. 3D). W wyniku stymulacji płytek krwi zaobserwowano dwu- lub trzykrotny wzrost barwienia DHE. Aby potwierdzić, że pomiar dotyczy O2•-, sugerujemy zastosowanie przenikającego przez błony komórkowe neutralizatora O2•-, pegylowanej dysmutazy ponadtlenkowej (PEG-SOD, 100 jednostek/mL), natomiast w celu zidentyfikowania źródła O2•- zastosowano inhibitor NOX VAS2870 (10 µM). W przypadku kolagenu, jak i trombiny, PEG-SOD oraz VAS2870 zniosły wzrost fluorescencji DHE wywołany aktywacją płytek krwi, co potwierdza, że pomiar jest specyficzny dla O2•-, a ich źródłem w tych warunkach są enzymy NOX.
W celu detekcji obrazowej fluorescencji DHE przedstawiamy dane z eksperymentów oceniających generowanie O2•- w momencie adhezji do kolagenu lub fibrynogenu (oraz w ciągu kolejnych 10 min) (Rycina 4A) lub z eksperymentów mających na celu ocenę generowania O2•- przez płytki wcześniej przyłączone do PLL po stymulacji trombiną (Rycina 4B). Zgodnie z oczekiwaniami, adhezja do PLL nie wywołuje intensywnej produkcji O2•-. Najprawdopodobniej wynika to z faktu, że ta forma adhezji zależy od oddziaływań elektrostatycznych bez inicjacji jakiejkolwiek odpowiedzi sygnałowej45, co sprawia, że podejście to jest odpowiednie do pomiaru poziomu O2•- w odpowiedzi na dodanie rozpuszczalnych agonistów. Aby potwierdzić, że protokół ten pozwala na detekcję O2•-, można zastosować odpowiednio wymiatacze lub selektywne inhibitory. W poprzednich badaniach wykazaliśmy, że N-acetylocysteina (NAC) może wymiatać O2•- i znosić fluorescencję płytek w tych eksperymentach46. Tutaj wykazujemy, że selektywny inhibitor NOX, VAS2870, skutecznie i natychmiast redukuje fluorescencję w płytkach przylegających do kolagenu lub fibrynogenu (Rycina 4A) lub reagujących na trombinę (Rycina 4B). Sugeruje to, że NOX są źródłem O2•- w tych warunkach eksperymentalnych. Reprezentatywne filmy obrazujące fluorescencję DHE (wzbudzenie 405 nm) w odpowiedzi na adhezję do kolagenu lub fibrynogenu lub stymulację trombiną płytek przyłączonych do PLL są zawarte odpowiednio w Pliku uzupełniającym 1, Pliku uzupełniającym 2 i Pliku uzupełniającym 3. Warto zauważyć, że PEG-SOD, który był z powodzeniem stosowany w innych układach eksperymentalnych jako wymiatacz O2•-, nie jest skuteczny w tym typie eksperymentu. Obecnie nie mamy jasnego wyjaśnienia tego zjawiska. Możemy postawić hipotezę, że PEG-SOD dociera do przedziałów komórkowych, w których O2•- indukuje zwiększoną fluorescencję w testach obrazowych, z niską wydajnością lub powolną kinetyką. Do wyjaśnienia tej kwestii mogą być wymagane dalsze ukierunkowane badania.
Pomiar O2•- za pomocą EPR w płytkach krwi zastosowaliśmy w różnych wcześniej opublikowanych badaniach1,13,47,48,49,50. Kluczowym etapem tej techniki jest przygotowanie krzywej kalibracyjnej przy użyciu dostępnego w handlu CM● (tj. produktu reakcji między sondą spinową CMH a O2•- oraz gatunku rezonującego mierzonego metodą EPR). Reakcja CMH i O2•- przedstawiona jest na Rysunku 5A, a reprezentatywne przykłady sygnału EPR indukowanego przez różne stężenia CM● pokazano na Rysunku 5B. Dane z różnych stężeń CM● zostały wykorzystane do zbudowania krzywej kalibracyjnej opisującej liniową korelację między ilością utlenionego CMH a intensywnością sygnału EPR w próbkach (Rysunek 5C). Poniższe równanie opisuje korelację między stężeniem CM● a intensywnością sygnału EPR i stanowi punkt wyjścia do obliczenia krzywej kalibracyjnej dla eksperymentów w niniejszym badaniu (Równanie 1):

Ponieważ zarówno stężenia CM●, jak i odpowiadająca im intensywność EPR zostały wyznaczone eksperymentalnie, można obliczyć nachylenie oraz punkt przecięcia z osią Y krzywej kalibracyjnej. W przykładzie przedstawionym na Rysunku 5C nachylenie = 1 002 169 oraz punkt przecięcia = 596 383. W związku z tym równanie krzywej kalibracyjnej można zapisać w następujący sposób:
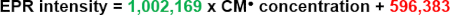
Poprzez przekształcenie powyższego równania można obliczyć stężenie CM● dla różnych próbek na podstawie wartości natężenia EPR (Równanie 2):

Po ustaleniu stężenia CM● w próbkach, możliwe jest obliczenie szybkości jego generowania na jedną płytkę krwi i jednostkę czasu za pomocą poniższego równania (Równanie 3):
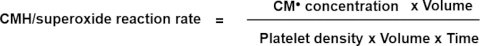
Korzystając z równania 2, równanie 3 można zapisać jako (równanie 4):
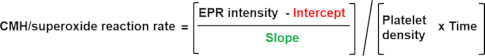
Co w przykładzie pokazanym na Rysunku 5C można zapisać jako:
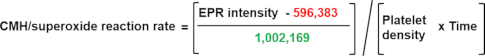
Szybkość utleniania CMH zostanie wyrażona jako attomole wygenerowanego CM● na płytkę krwi na minutę. Wartość ta może służyć do porównania szybkości generowania O2•- pomiędzy poszczególnymi eksperymentami i dawcami, co nie jest możliwe w przypadku sond fluorescencyjnych, takich jak DHE (lub DCFDA). Sondy fluorescencyjne zazwyczaj pozwalają jedynie na oszacowanie wpływu różnych warunków na generowanie O2•- jako zmian intensywności fluorescencji w ramach tego samego eksperymentu. Podobnie jak w przypadku wszystkich technik opisanych w niniejszym artykule, swoistość detekcji została potwierdzona za pomocą zmiataczy ROS (np. PEG-SOD, NAC) lub selektywnych inhibitorów enzymów generujących anion ponadtlenkowy (np. VAS2870 w celu zahamowania NOXs). Tutaj przedstawiamy dane dla stymulacji płytek krwi (Rysunek 6) trombiną (Rysunek 6A,C,E) lub kolagenem (Rysunek 6B,D,F). Dla obu agonistów zastosowano PEG-SOD, aby potwierdzić detekcję O2•-, podczas gdy brak efektu w przypadku pekylowanej katalazy (PEG-Cat.) sugeruje, że nadtlenek wodoru nie jest wykrywany tą techniką (Rysunek 6C,D, odpowiednio). VAS2870 znosi sygnały EPR indukowane trombiną (Rysunek 6E) oraz kolagenem (Rysunek 6F>), co sugeruje, że NOXs są głównym źródłem O2•- w płytkach krwi w odpowiedzi na oba te agonisty.
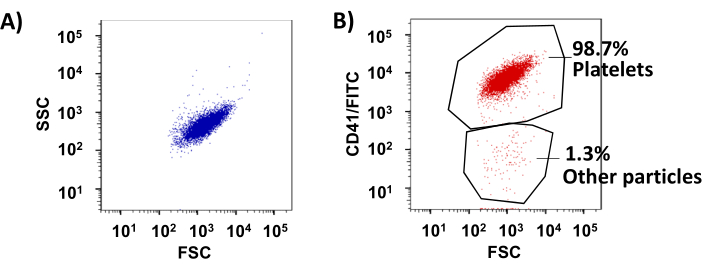
Rycina 1: analiza cytometrii przepływowej zawiesin płytek krwi. (A) Typowa prezentacja wykresów rozproszenia przedniego (FSC) i bocznego (SSC) dla izolowanych płytek krwi. (B) Immunobarwienie zawiesiny płytek krwi przeciwciałem anty-CD41 potwierdza, że >98% cząsteczek w preparacie to płytki krwi. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
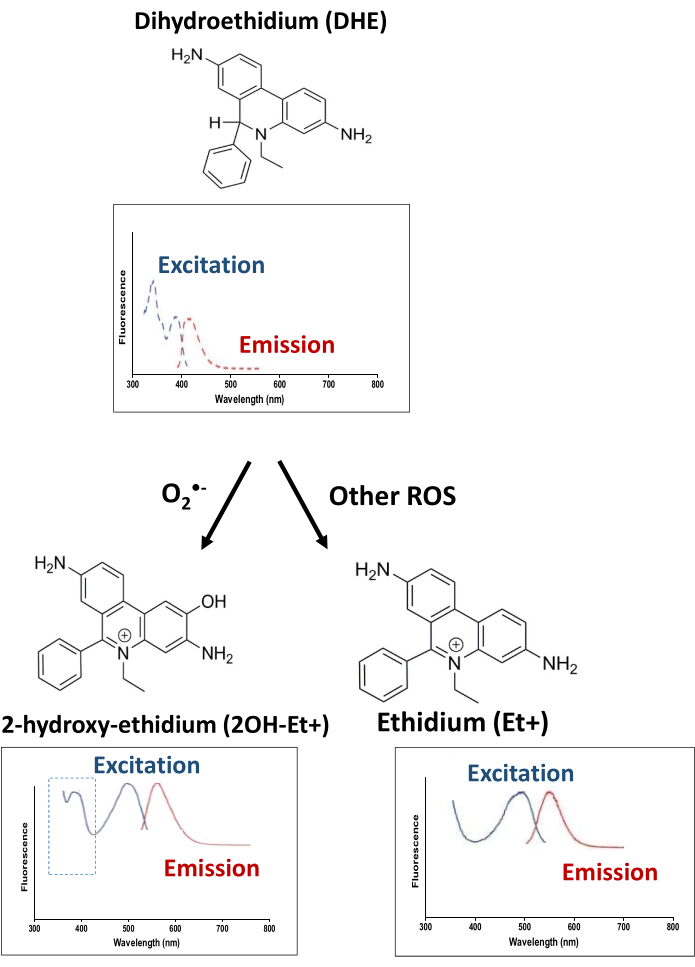
Rysunek 2: Reakcja chemiczna DHE z anionem ponadtlenkowym oraz innymi ROS i właściwości widmowe produktów tej reakcji. Struktura i właściwości widmowe DHE oraz jego dwóch produktów utleniania: 2-hydroksyetydium (2OH-Et+), powstającego w reakcji z anionami ponadtlenkowymi, oraz etydium (Et+), powstającego w reakcji z innymi rodzajami ROS (np. rodnikiem hydroksylowym i nadtlenkiem wodoru). Piki wzbudzenia przy 405 nm, zaznaczone na rysunku przerywanym niebieskim prostokątem, są specyficzne dla 2OH-Et+ i mogą zatem służyć do wykrywania/pomiaru O2•-. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
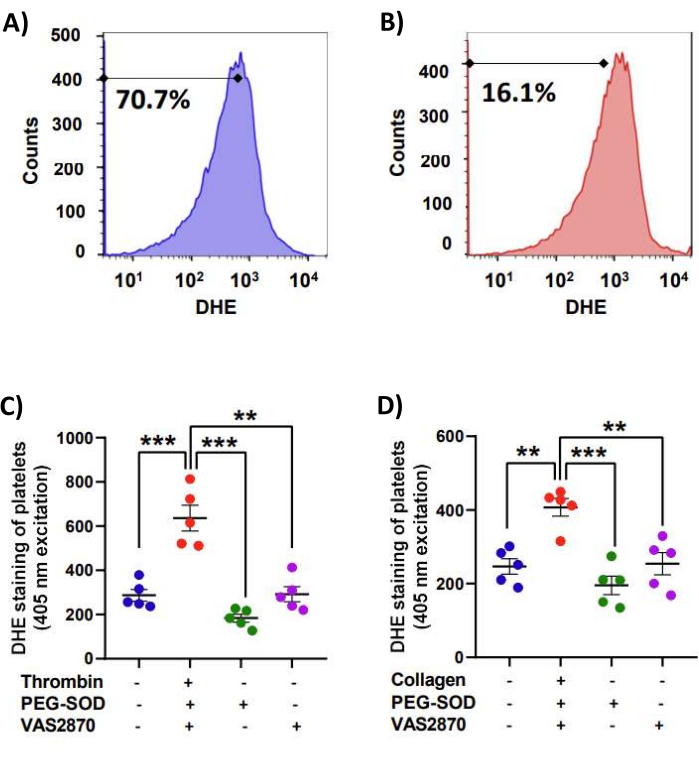
Rysunek 3: Generowanie anionu ponadtlenkowego zależne od trombiny i kolagenu wykryte za pomocą DHE i cytometrii przepływowej. Reprezentatywne histogramy barwienia DHE dla (A) płytek spoczynkowych i (B) płytek stymulowanych trombiną. Pasek wskazuje wartości barwienia DHE poniżej 500, co stanowi odpowiednio 70,7% i 16,1% dla płytek spoczynkowych i stymulowanych trombiną. Technikę tę wykorzystano do oszacowania generowania anionu ponadtlenkowego w płytkach stymulowanych (C) 0,1 unit/mL trombiną oraz (D) 3 µg/mL kolagenem. PEG-SOD (100 unit/mL) zastosowano w celu potwierdzenia, że w tym eksperymencie mierzone są aniony ponadtlenkowe, natomiast 10 µM VAS2870 wykorzystano do zidentyfikowania enzymów NOX jako źródła anionów ponadtlenkowych. Każdy punkt danych został obliczony jako średnia intensywność fluorescencji (MFI) z 50 000 płytek, a każdy eksperyment powtórzono pięć razy niezależnie (n = 5); na wykresach przedstawiono średnią ± SEM. Istotność statystyczną oceniono za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem post-hoc Tukey'a dla porównań parzystych (** = p < 0,01, *** = p < 0,001). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
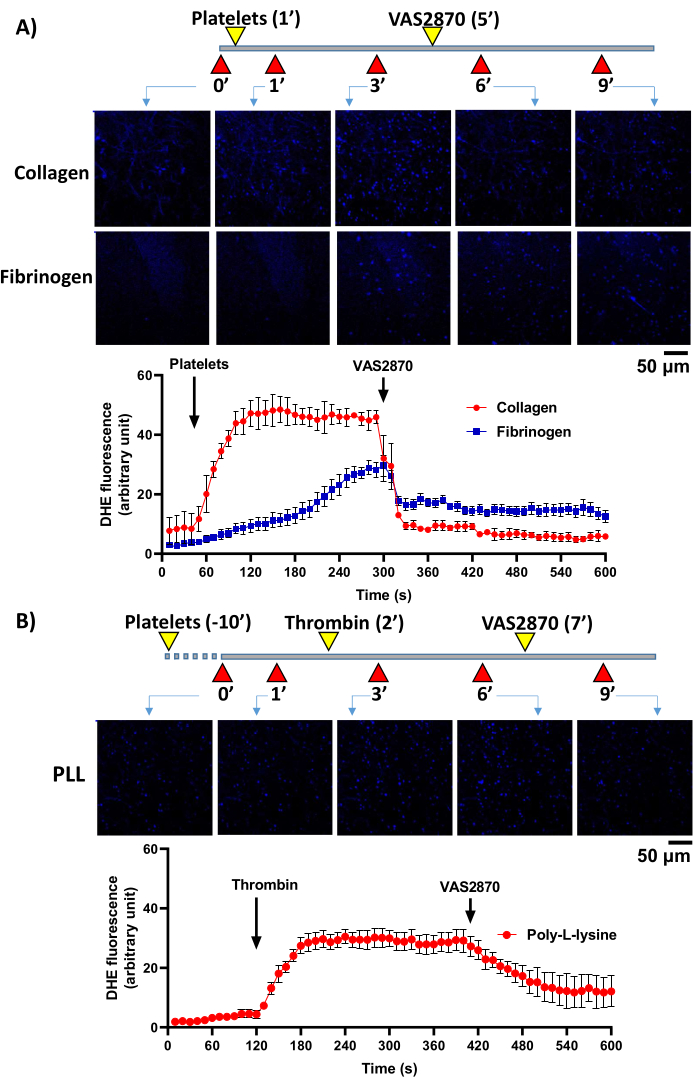
Rycina 4: Zależna od kolagenu, fibrynogenu i trombiny generacja anionu ponadtlenkowego wykryta za pomocą obrazowania fluorescencyjnego DHE. (A) Oceniono kinetykę generacji anionu ponadtlenkowego dla płytek przywierających do kolagenu lub fibrynogenu. Płytki naniesiono na powlekane µ-slajdy 1 min po rozpoczęciu obrazowania, natomiast 10 µM VAS2870 dodano w 5 min od rozpoczęcia zbierania obrazów. (B) Kinetyka generacji anionu ponadtlenkowego dla płytek po stymulacji trombiną. Płytkom pozwolono przywrzeć do µ-slajdów powlekanych PLL przez 10 min przed rozpoczęciem zbierania obrazów. Po 2 min dodano 0,1 unit/mL trombiny, a po kolejnych 5 min dodano 10 µM VAS2870 (tj. w 7 min od rozpoczęcia obrazowania). Schemat eksperymentalny przedstawiono w górnej części paneli, natomiast reprezentatywne obrazy z 0 min, 1 min, 3 min, 6 min i 9 min ukazano w środkowej części paneli. Ilościowe oznaczenie fluorescencji DHE pojedynczych płytek przedstawiono w dolnej części paneli; uzyskano je poprzez analizę intensywności fluorescencji przy użyciu programu ImageJ. Dane przedstawiono jako średnia ± SEM dla 8-12 płytek na warunek w 4 niezależnych eksperymentach. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
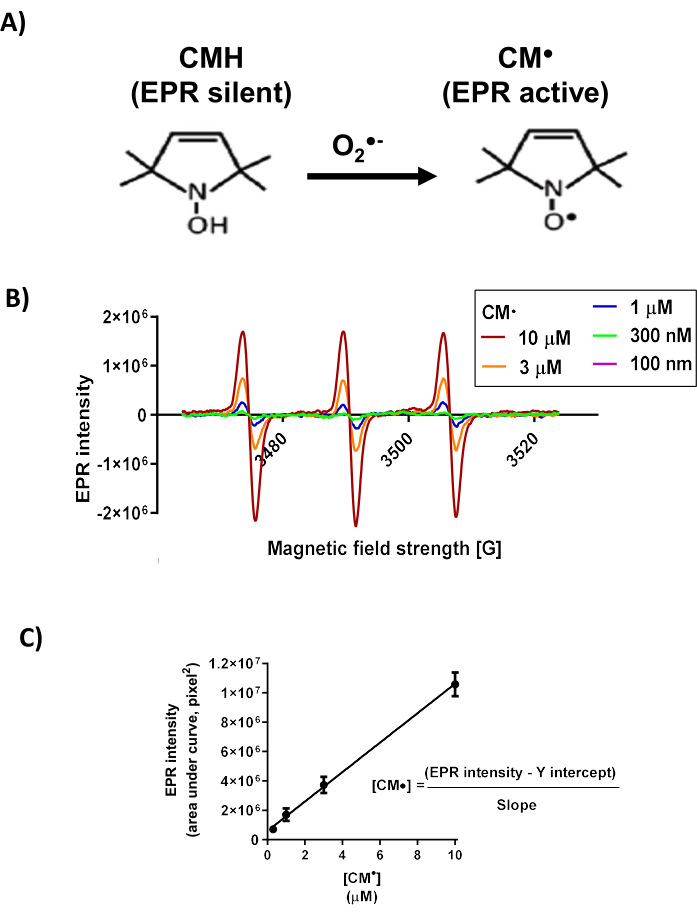
Rysunek 5: Krzywa kalibracyjna i obliczenia szybkości utleniania CMH. (A) Struktura chemiczna i właściwości EPR CMH oraz CM●. (B) Reprezentatywne przykłady danych EPR dla różnych stężeń CM● (od 100 nM do 10 µM). (C) Krzywa kalibracyjna intensywności EPR w funkcji stężenia CM●. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
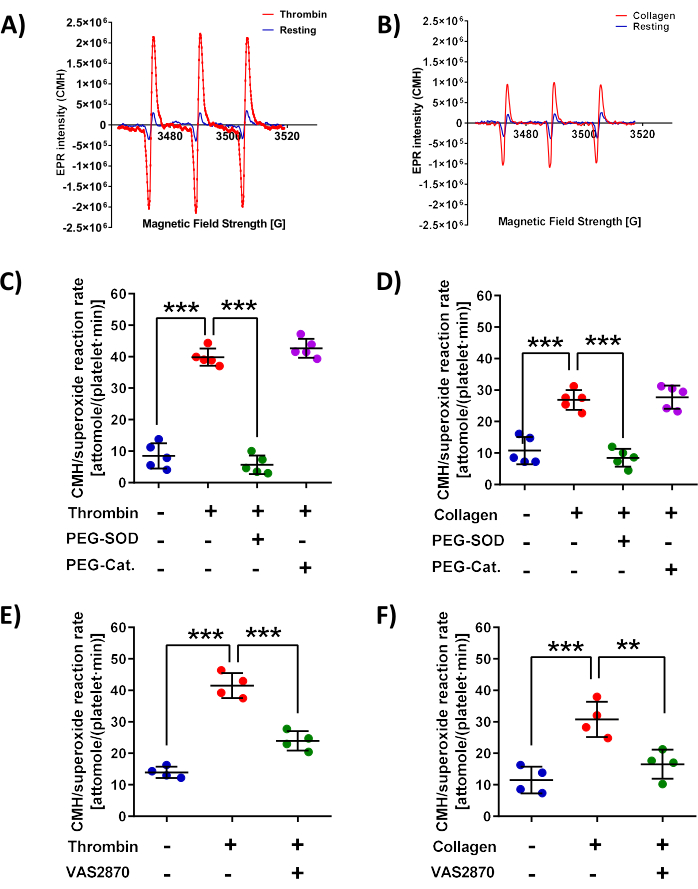
Rysunek 6: Wykrywanie produkcji anionu ponadtlenkowego przez płytki krwi po stymulacji trombiną lub kolagenem. Wydajność uwalniania anionu ponadtlenkowego mierzono metodą EPR przy użyciu sondy spinowej CMH w płytkach krwi stymulowanych odpowiednio (A) 0,1 unit/mL trombiny lub (B) 3 µg/mL kolagenu. (C, D) W warunkach testowych dla obu agonistów zastosowano stężenie 100 units/mL PEG-SOD (wymiatacza anionu ponadtlenkowego) lub 100 units/mL pegylowanej katalazy (PEG-Cat., wymiatacza nadtlenku wodoru). Źródło anionu ponadtlenkowego badano poprzez współinkubację z inhibitorem NOX VAS2870 (10 µM). Zarówno w przypadku trombiny (E), jak i kolagenu (F), generowanie anionu ponadtlenkowego zależy od aktywności NOX. Na wszystkich wykresach szybkość reakcji CMH/anion ponadtlenkowy została obliczona z sygnałów EPR, zgodnie z opisem w manuskrypcie (Equation 4). Dane przedstawiono jako średnia ± SEM z 5 (C,D) oraz 4 niezależnych eksperymentów (E,F). Istotność statystyczną oceniano za pomocą jednoczynnikowej analizy ANOVA z testem post-hoc Tukeya dla porównań parzystych (** = p < 0,01, *** = p < 0,001). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Plik uzupełniający 1: Reprezentatywny film pokazujący fluorescencję DHE (wzbudzenie 405 nm) w odpowiedzi na adhezję do kolagenu. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Reprezentatywny film przedstawiający fluorescencję DHE (wzbudzenie 405 nm) w odpowiedzi na adhezyjny fibrynogen. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 3: Reprezentatywny film przedstawiający fluorescencję DHE (wzbudzenie 405 nm) w odpowiedzi na stymulację trombina płytek krwi przylegających do PLL. Aby pobrać ten plik, kliknij tutaj.
Dyskusja
W tym manuskrypcie przedstawiamy trzy różne techniki, które mogą zwiększyć możliwości badania zależnej od redoks regulacji funkcji płytek krwi poprzez selektywne wykrywanie O2•-. Pierwsze dwie metody stanowią ulepszenie istniejących technik ze względu na zastosowaną sondę redoks (DHE zamiast bardziej powszechnej, ale mniej niezawodnej DCFDA). Techniki te są zatem łatwo dostępne, a większość laboratoriów może je skutecznie stosować bez specjalnego sprzętu lub kosztów szkolenia. Trzecia technika opiera się na wykorzystaniu specjalistycznego sprzętu do analizy utlenienia sondy spinowej CMH za pomocą EPR. Technika ta wymaga zakupu specjalistycznego sprzętu i odczynników oraz dedykowanego przeszkolenia użytkownika laboratorium. W związku z tym wydaje się odpowiedni dla laboratoriów koncentrujących się konkretnie na badaniu zdarzeń zależnych od redoks w płytkach krwi (lub innych komórkach).
W przypadku technik wykorzystujących DHE, wybór długości fali dla wzbudzenia ma kluczowe znaczenie dla uzyskania specyficznego wykrywaniaO2•-. 2-hydroksy-etydyna (2OH-Et+) wytworzona w reakcji DHE z O2•- jest wzbudzana przy 405 nm, podczas gdy etydyna (Et+) wytwarzana w ogólnej reakcji DHE z ROS (np. rodnik hydroksylowy i nadtlenek wodoru) ma pik wzbudzenia około 520 nm, ale nie ma wzbudzenia przy 405 nm (ryc. 1)51. Stosowanie DHE zamiast DCFDA chroni przed artefaktami spowodowanymi bezpośrednią reakcją tej sondy ze składnikami komórkowymi, takimi jak peroksydazy, inne enzymy zawierające hem i środki redukujące jony metali 42,43,44. DHE został zasugerowany jako bezpieczniejsze narzędzie do badań nad redoks komórkowym38,39. Tutaj proponujemy zastosowanie DHE z dwiema różnymi technikami odczytu: 1) cytometrią przepływową i 2) obrazowaniem fluorescencyjnym.
Cytometria przepływowa jest generalnie techniką, która umożliwia jednoczesne manipulowanie wieloma próbkami o niskiej lub średniej przepustowości52. Niestety, podejście zastosowane w tym badaniu nie pozwala na utrwalenie próbki. Chociaż rozcieńczenie próbek lodowatym modyfikowanym buforem Tyrode stabilizuje fluorescencję w próbkach przez okres do 30 minut, analiza wszystkich próbek musi zostać przeprowadzona w tym czasie. To znacznie ogranicza liczbę próbek w eksperymencie. Możliwe jest przeprowadzenie wielu wewnętrznie kontrolowanych serii eksperymentalnych w ciągu tego samego dnia i przy użyciu tego samego preparatu płytek krwi, chociaż wyniki powinny być znormalizowane do grupy kontrolnej i nie powinny być traktowane jako niezależne eksperymenty. Technika ta została wykorzystana przez autorów tego manuskryptu w celu podkreślenia roli modulacji płytek krwi zależnej od redoks w odpowiedziach na różnych agonistów i modulatory46,50. Metoda ta może być modyfikowana poprzez zastosowanie chemicznie zmodyfikowanej wersji DHE, która umożliwia celowanie w mitochondria (tj. Mitosox)53, która została wykorzystana do badań płytek krwi koncentrujących się na NOX254. Jest to ciekawa szansa, która nie została jeszcze wykorzystana przez nasze laboratoria.
Proponowana tu technika obrazowania fluorescencyjnego z wykorzystaniem DHE ma tę zaletę, że pozwala określić przebieg czasowy wytwarzaniaO2•- w płytkach krwi po adhezji (agoniści wchłonięci na powierzchni dołka obrazowania) lub stymulacji (agoniści w zawiesinie). Pozwala to na interpretację wzajemnych oddziaływań różnych faz procesu aktywacji płytek krwi oraz ocenę udziału różnych źródełO2•- (np. różnych enzymów wytwarzających ROS, np. NOX). Żadna istniejąca technika nie pozwala na tego typu badania. Wiąże się to z kosztem przepustowości testu, przy czym każdy badany stan zajmuje 30 minut (co obejmuje konfigurację μ szkiełka, ustawianie ostrości i wybór pola, obrazowanie i zapisywanie danych). W związku z tym technika ta pozwala na testowanie niewielkiej liczby warunków w ciągu dnia roboczego (tj. poniżej 10). Chociaż do przedstawionych tutaj danych użyto mikroskopu konfokalnego, potwierdziliśmy, że równie dobre wyniki można uzyskać za pomocą mikroskopu epifluorescencyjnego o zdolności wzbudzenia 405 nm. Zmniejsza to zapotrzebowanie na drogie zestawy mikroskopii konfokalnej i sprawia, że technika ta jest bardziej przystępna cenowo.
Protokół EPR został opracowany w oparciu o wcześniejsze badania na różnych typach komórek55. Technika ta jest powszechnie uznawana za najbardziej wiarygodne narzędzie do badania generacji ROS i badania zdarzeń zależnych od redoks w komórkach38. Oprócz wyższej niezawodności w porównaniu z innymi technikami ze względu na specyfikę reakcji sond spinowych hydroksyloaminy z wolnymi rodnikamitlenowymi 56, EPR pozwala na ilościowe określenie szybkości wytwarzaniaO2•- i jej porównanie między różnymi osobnikami i eksperymentami. Nie jest to możliwe w przypadku technik opartych na fluorescencji, które pozwalają jedynie oszacować wpływ wybranych warunków na intensywność fluorescencji w ramach jednego eksperymentu i preparatu płytek krwi. Chociaż ten protokół EPR został opracowany jako technika łącząca się z agregacją płytek krwi w celu równoległego monitorowania aktywacji płytek krwi i O2•- generacji1, eksperymenty te można przeprowadzić bez równoległej analizy agregacji. Nawet bez równoległej analizy agregacji płytek krwi sugerujemy przeprowadzenie inkubacji w agresjometrze, aby zagwarantować skuteczną stymulację płytek krwi, która wymaga naprężenia ścinającego zapewnianego przez ciągłe mieszanie. Jeśli eksperymenty muszą być przeprowadzone w probówkach mikrowirówek o pojemności 1,5 ml bez mieszania, poziomy produkcjiO2•- są znacznie niższe. Dlatego, jeśli wybierzemy to eksperymentalne podejście, sugerujemy przeprowadzenie inkubacji CMH na obracającym się kole i z gęściej skoncentrowanymi płytkami krwi (tj. 1 x 10⁹ / ml), co prowadzi do sygnału wystarczająco silnego do wykrycia przez spektrometr EPR.
Podsumowując, przedstawiamy tutaj trzy zwalidowane techniki wykrywaniaO2•- w płytkach krwi. Oferują one różne zalety i mogą być wybierane zgodnie z celami i priorytetami eksperymentu. Pierwsza technika oparta na zastosowaniu DHE za pomocą cytometrii przepływowej jest najmniej pracochłonna i czasochłonna, dlatego może być wybrana jako analiza na poziomie podstawowym. Druga technika, oparta na wykorzystaniu DHE za pomocą mikroskopii fluorescencyjnej, pozwala na ocenę szybkiej kinetyki wytwarzaniaO2•- i zbadanie, w jaki sposób różne kaskady sygnałowe mogą wpływać na odpowiedź oksydacyjną w skali sekundowej (podczas gdy inne techniki pozwalają tylko na badanie punktów końcowych zdarzeń zachodzących w ciągu kilku minut od stymulacji). Wreszcie, EPR pozwala na ilościowe określenie szybkości wytwarzaniaO2•- i porównanie eksperymentów z osobami. Z tego powodu ta ostatnia technika jest szczególnie przydatna w badaniach klinicznych mających na celu scharakteryzowanie odpowiedzi oksydacyjnej w płytkach krwi pochodzących od różnych osób (np. porównanie pacjentów lub pacjentów ze zdrowymi osobami z grupy kontrolnej). Ogólnie rzecz biorąc, te trzy techniki oferują znaczące korzyści w porównaniu z istniejącymi metodami i stanowią znaczący postęp w dostępnych nam narzędziach eksperymentalnych do badania zdarzeń zależnych od redoks w płytkach krwi.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została sfinansowana przez granty British Heart Foundation (PG/15/40/31522), Alzheimer Research UK (ARUK-PG2017A-3) oraz European Research Council (#10102507) dla G. Puli.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1-hydroksy-3-metoksykarbonylo-2,2,5,5-tetrametylopirolidyna (CMH) | Noxygen Science transfer and Diagnostics GmbH | NOX-02.1-50mg | Odczynnik do EPR (sondy spinowej) |
| BD FACSAria III | BD Biosciences | NA | Cytometr przepływowy |
| Albumina surowicy bydlęcej | Merck/Sigma | A7030 | Do powłoki μ-slide |
| Bruker E-scan M (Noxyscan) | Noxygen Science transfer and Diagnostics GmbH | NOX-E.11-BES | Spektrometr EPR |
| Katalaza– glikol polietylenowy (PEG-Cat.) | Merck/Sigma | C4963 | Pochłaniacz nadtlenku wodoru (kontrola swoistości) |
| ChronoLog Model 490+4 | Labmedics/Chronolog | NA | Aggregometr |
| CM radykalny | Noxygen Science transfer and Diagnostics GmbH | NOX-20.1-100mg | Odczynnik do EPR (kontrola kalibracyjna) |
| deferoksamina | Noxygen Science Transfer and Diagnostics GmbH | NOX-09.1-100mg | Odczynnik do EPR |
| dietyloditiokarbaminian (DETC) | Noxygen Science Transfer and Diagnostics GmbH | NOX-10.1-1g | Odczynnik do EPR |
| Dihydroethidium | Thermo Fisher Scientifics | D11347 | Sonda anionowa ponadtlenkowa |
| Dimetylosulfotlenek | Merck/Sigma | 34869 | Do przygotowania roztworu podstawowego |
| Woskowe płytki uszczelniające EPR Noxygen | Science transfer and Diagnostics GmbH | NOX-A.3-VPM | Materiał eksploatacyjny do EPR |
| Woda klasy EPR | Noxygen Science transfer and Diagnostics GmbH | NOX-07.7.1-0.5L | Odczynnik do EPR |
| Fibrynogen z ludzkiego osocza | Merck/Sigma | F4883 | Do powłoki μ-slide |
| FITC anty-ludzkie przeciwciało CD41 | BioLegend | 303704 | Barwienie płytkowe do cytometrii przepływowej |
| Kuwety szklane | Labmedics/Chronolog | P/N 312 | Materiał eksploatacyjny do inkubacji w agregegometrze |
| Horm Collagen | Labmedics/Chronolog | P/N 385 | Do stymulacji płytek |
| krwi ImageJ | National Institutes of Health (NIH) | NA | ImageJ 1.53t (Wayne Rasband) |
| Indometacyna | Merck/Sigma | I7378 | Do izolacji płytek krwi |
| Mikropipety DURAN 50µ l | Technologia i diagnostyka Noxygen Science GmbH | NOX-G.6.1-50µ L | Materiał eksploatacyjny do EPR |
| Chlorowodorek poli-L-lizyny | Merck/Sigma | P2658 | Do powłoki μ-slide |
| Prostaglandyna E1 (PGE1) | Merck/Sigma | P5515 | Do izolacji płytek |
| krwi Cytrynian sodu (4% w/v roztwór) | Merck/Sigma | S5770 | Do izolacji płytek |
| Mieszadła (pokryte teflonem) | Labmedics/Chronolog | P/N 313 | Materiał eksploatacyjny do inkubacji w agregegometrze |
| Dysmutaza ponadtlenkowa– glikol polietylenowy (PEG-SOD) | Merck/Sigma | S9549 | Wymiatacz anionów ponadtlenkowych (kontrola specyficzności) |
| Trombina z ludzkiego osocza | Merck/Sigma | T6884 | Do stymulacji płytek krwi i powłoki μ-slide |
| VAS2870 | Enzo Life Science | BML-EI395 | Inhibitor NOX |
| Mikroskop konfokalny Zeiss 510 LSM | Mikroskop konfokalny | Zeiss | NA |
Bibliografia
- Vara, D., Cifuentes-Pagano, E., Pagano, P. J., Pula, G. A novel combinatorial technique for simultaneous quantification of oxygen radicals and aggregation reveals unexpected redox patterns in the activation of platelets by different physiopathological stimuli. Haematologica. 104 (9), 1879-1891 (2019).
- Fridovich, I. Superoxide radical: An endogenous toxicant. Annu Rev Pharmacol Toxicol. 23, 239-257 (1983).
- Keele, B. B., Mccord, J. M., Fridovich, I. Superoxide dismutase from Escherichia coli B. A new manganese-containing enzyme. J Biol Chem. 245 (22), 6176-6181 (1970).
- Berry, C. E., Hare, J. M. Xanthine oxidoreductase and cardiovascular disease: Molecular mechanisms and pathophysiological implications. J Physiol. 555, Pt 3 589-606 (2004).
- Kim, C., Kim, J. Y., Kim, J. H. Cytosolic phospholipase a(2), lipoxygenase metabolites, and reactive oxygen species. BMB Rep. 41 (2), 555-559 (2008).
- Armstead, W. M., Mirro, R., Busija, D. W., Leffler, C. W. Postischemic generation of superoxide anion by newborn pig brain. Am J Physiol. 255 (2), Pt 2 H401-H403 (1988).
- Mayer, B., et al. Nitric oxide synthase-catalyzed activation of oxygen and reduction of cytochromes: Reaction mechanisms and possible physiological implications. J Cardiovasc Pharmacol. 20, Suppl 12 S54-S56 (1992).
- Du, G., Mouithys-Mickalad, A., Sluse, F. E. Generation of superoxide anion by mitochondria and impairment of their functions during anoxia and reoxygenation in vitro. Free Radic Biol Med. 25 (9), 1066-1074 (1998).
- Turrens, J. F. Mitochondrial formation of reactive oxygen species. J Physiol. 552, Pt 2 335-344 (2003).
- Jiang, F., Zhang, Y., Dusting, G. J. Nadph oxidase-mediated redox signaling: Roles in cellular stress response, stress tolerance, and tissue repair. Pharmacol Rev. 63 (1), 218-242 (2011).
- Wang, Z., et al. The role of mitochondria-derived reactive oxygen species in hyperthermia-induced platelet apoptosis. PLoS One. 8 (9), e75044(2013).
- Wachowicz, B., Olas, B., Zbikowska, H. M., Buczynski, A. Generation of reactive oxygen species in blood platelets. Platelets. 13 (3), 175-182 (2002).
- Vara, D., et al. Nadph oxidases are required for full platelet activation in vitro and thrombosis in vivo but dispensable for plasma coagulation and hemostasis. Arterioscler Thromb Vasc Biol. 41 (2), 683-697 (2021).
- Violi, F., Pignatelli, P. Platelet nox, a novel target for anti-thrombotic treatment. Thromb Haemost. 111 (5), 817-823 (2014).
- Begonja, A. J., et al. Platelet NAD(P)H-oxidase-generated ros production regulates alphaiibbeta3-integrin activation independent of the NO/CGMP pathway. Blood. 106 (8), 2757-2760 (2005).
- Vara, D. S., et al. Autocrine amplification of integrin αIIbβ3 activation and platelet adhesive responses by deoxyribose-1-phosphate. Thromb Haemost. 109 (6), 1108-1119 (2013).
- Essex, D. W. The role of thiols and disulfides in platelet function. Antioxid Redox Signal. 6 (4), 736-746 (2004).
- Arthur, J. F., et al. Ligand binding rapidly induces disulfide-dependent dimerization of glycoprotein vi on the platelet plasma membrane. J Biol Chem. 282 (42), 30434-30441 (2007).
- Arthur, J. F., Gardiner, E. E., Kenny, D., Andrews, R. K., Berndt, M. C. Platelet receptor redox regulation. Platelets. 19 (1), 1-8 (2008).
- Kim, K., Li, J., Tseng, A., Andrews, R. K., Cho, J. Nox2 is critical for heterotypic neutrophil-platelet interactions during vascular inflammation. Blood. 126 (16), 1952-1964 (2015).
- Hosseini, E., Solouki, A., Roudsari, Z. O., Kargar, F., Ghasemzadeh, M. Reducing state attenuates ectodomain shedding of GPVI while restoring adhesion capacities of stored platelets: Evidence addressing the controversy around the effects of redox condition on thrombosis. J Thromb Thrombolysis. 50 (1), 123-134 (2020).
- Jang, J. Y., et al. Reactive oxygen species play a critical role in collagen-induced platelet activation via SHP-2 oxidation. Antioxid Redox Signal. 20 (16), 2528-2540 (2014).
- Beckman, J. S., Koppenol, W. H. Nitric oxide, superoxide, and peroxynitrite: The good, the bad, and ugly. Am J Physiol. 271 (5), Pt 1 C1424-C1437 (1996).
- Koppenol, W. H., Kissner, R., Beckman, J. S. Syntheses of peroxynitrite: To go with the flow or on solid grounds. Methods Enzymol. 269, 296-302 (1996).
- Cammisotto, V., et al. Nox2-mediated platelet activation by glycoprotein (GP) VI: Effect of rivaroxaban alone and in combination with aspirin. Biochem Pharmacol. 163, 111-118 (2019).
- Yang, M., et al. Platelet CD36 promotes thrombosis by activating redox sensor ERK5 in hyperlipidemic conditions. Blood. 129 (21), 2917-2927 (2017).
- Yang, M., et al. Platelet CD36 signaling through ERK5 promotes caspase-dependent procoagulant activity and fibrin deposition in vivo. Blood Adv. 2 (21), 2848-2861 (2018).
- Freedman, J. E. Oxidative stress and platelets. Arterioscler Thromb Vasc Biol. 28 (3), s11-s16 (2008).
- Masselli, E., et al. ROS in platelet biology: Functional aspects and methodological insights. Int J Mol Sci. 21 (14), 4866(2020).
- Madamanchi, N. R., Vendrov, A., Runge, M. S. Oxidative stress and vascular disease. Arterioscler Thromb Vasc Biol. 25 (1), 29-38 (2005).
- Riemersma, R. A., et al. Risk of angina pectoris and plasma concentrations of vitamins a, c, and e and carotene. Lancet. 337 (8732), 1-5 (1991).
- Rimm, E. B., et al. Vitamin E consumption and the risk of coronary heart disease in men. N Engl J Med. 328 (20), 1450-1456 (1993).
- Zhang, W., Zheng, Y., Yan, F., Dong, M., Ren, Y. Research progress of quercetin in cardiovascular disease. Front Cardiovasc Med. 10, 1203713(2023).
- Russell, C., Keshavamurthy, S., Saha, S. Nutraceuticals in the management of cardiovascular risk factors: Where is the evidence. Cardiovasc Hematol Disord Drug Targets. 21 (3), 150-161 (2021).
- Rotariu, D., et al. Oxidative stress - complex pathological issues concerning the hallmark of cardiovascular and metabolic disorders. Biomed Pharmacother. 152, 113238(2022).
- Hosseini, E., Ghasemzadeh, M., Atashibarg, M., Haghshenas, M. R. O. S. scavenger, n-acetyl-l-cysteine and NOX specific inhibitor, VAS2870 reduce platelets apoptosis while enhancing their viability during storage. Transfusion. 59 (4), 1333-1343 (2019).
- Hosseini, E., Nodeh, F. K., Ghasemzadeh, M. Gamma irradiation induces a pro-apoptotic state in longer stored platelets, without progressing to an overt apoptosis by day 7 of storage. Apoptosis. 28 (7-8), 1141-1153 (2023).
- Griendling, K. K., et al. Measurement of reactive oxygen species, reactive nitrogen species, and redox-dependent signaling in the cardiovascular system: A scientific statement from the American heart association. Circ Res. 119 (5), e39-e75 (2016).
- Murphy, M. P., et al. Guidelines for measuring reactive oxygen species and oxidative damage in cells and in vivo. Nat Metab. 4 (6), 651-662 (2022).
- Hempel, S. L., Buettner, G. R., O'malley, Y. Q., Wessels, D. A., Flaherty, D. M. Dihydrofluorescein diacetate is superior for detecting intracellular oxidants: Comparison with 2',7'-dichlorodihydrofluorescein diacetate, 5(and 6)-carboxy-2',7'-dichlorodihydrofluorescein diacetate, and dihydrorhodamine 123. Free Radic Biol Med. 27 (1-2), 146-159 (1999).
- Kalyanaraman, B., et al. Measuring reactive oxygen and nitrogen species with fluorescent probes: Challenges and limitations. Free Radic Biol Med. 52 (1), 1-6 (2012).
- Burkitt, M. J., Wardman, P. Cytochrome c is a potent catalyst of dichlorofluorescin oxidation: Implications for the role of reactive oxygen species in apoptosis. Biochem Biophys Res Commun. 282 (1), 329-333 (2001).
- Rota, C., Fann, Y. C., Mason, R. P. Phenoxyl free radical formation during the oxidation of the fluorescent dye 2',7'-dichlorofluorescein by horseradish peroxidase. Possible consequences for oxidative stress measurements. J Biol Chem. 274 (40), 28161-28168 (1999).
- Rota, C., Chignell, C. F., Mason, R. P. Evidence for free radical formation during the oxidation of 2'-7'-dichlorofluorescin to the fluorescent dye 2'-7'-dichlorofluorescein by horseradish peroxidase: Possible implications for oxidative stress measurements. Free Radic Biol Med. 27 (7-8), 873-881 (1999).
- Rodig, S. J. Attaching suspension cells to slides for staining. Cold Spring Harb Protoc. 2020 (12), (2020).
- Abubaker, A. A., Vara, D., Eggleston, I., Canobbio, I., Pula, G. A novel flow cytometry assay using dihydroethidium as redox-sensitive probe reveals NADPH oxidase-dependent generation of superoxide anion in human platelets exposed to amyloid peptide beta. Platelets. 30 (2), 181-189 (2019).
- Gaspar, R. S., et al. Protein disulphide isomerase and NADPH oxidase 1 cooperate to control platelet function and are associated with cardiometabolic disease risk factors. Antioxidants (Basel). 10 (3), 497(2021).
- Gaspar, R. S., Ferreira, P. M., Mitchell, J. L., Pula, G., Gibbins, J. M. Platelet-derived extracellular vesicles express NADPH oxidase-1 (NOX-1), generate superoxide and modulate platelet function. Free Radic Biol Med. 165, 395-400 (2021).
- Vara, D., et al. NADPH oxidase 1 is a novel pharmacological target for the development of an antiplatelet drug without bleeding side effects. FASEB J. 34 (10), 13959-13977 (2020).
- Lopes-Pires, M. E., et al. Zinc regulates reactive oxygen species generation in platelets. Platelets. 32 (3), 368-377 (2021).
- Zielonka, J., Kalyanaraman, B. Hydroethidine- and mitoSOX-derived red fluorescence is not a reliable indicator of intracellular superoxide formation: Another inconvenient truth. Free Radic Biol Med. 48 (8), 983-1001 (2010).
- Linden, M. D. Platelet flow cytometry. Methods Mol Biol. 992, 241-262 (2013).
- Kauffman, M. E., et al. MitoSOX-based flow cytometry for detecting mitochondrial ROS. React Oxyg Species (Apex). 2 (5), 361-370 (2016).
- Sonkar, V. K., et al. NOX2 NADPH oxidase is dispensable for platelet activation or arterial thrombosis in mice. Blood Adv. 3 (8), 1272-1284 (2019).
- Dikalov, S. I., Kirilyuk, I. A., Voinov, M., Grigor'ev, I. A. EPR detection of cellular and mitochondrial superoxide using cyclic hydroxylamines. Free Radic Res. 45 (4), 417-430 (2011).
- Dikalov, S. I., Polienko, Y. F., Kirilyuk, I. Electron paramagnetic resonance measurements of reactive oxygen species by cyclic hydroxylamine spin probes. Antioxid Redox Signal. 28 (15), 1433-1443 (2018).
Przedruki i uprawnienia
