Tutaj prezentujemy krok po kroku przygotowanie premiksowanej, liofilizowanej amplifikacji izotermicznej opartej na rekombinazie i reakcji opartych na Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR), które mogą być wykorzystane do wykrywania biomarkerów kwasów nukleinowych patogenów chorób zakaźnych lub innych markerów genetycznych.
Artykuł metodologiczny
Diagnostyka oparta na CRISPR w miejscu opieki nad pacjentem z wstępnie zmieszanymi i liofilizowanymi odczynnikami
W tym artykule
Podsumowanie
Streszczenie
Diagnostyka molekularna oparta na wykrywaniu Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR) ma wysoką dokładność diagnostyczną i atrybuty, które są odpowiednie do stosowania w miejscach opieki nad pacjentem, takie jak szybki czas oczekiwania na wyniki, wygodne proste odczyty i brak konieczności stosowania skomplikowanych instrumentów. Jednak reakcje te mogą być kłopotliwe do przeprowadzenia w miejscu opieki nad pacjentem ze względu na wiele elementów i etapy ręcznej obsługi. W tym miejscu przedstawiamy krok po kroku, zoptymalizowany protokół do niezawodnego wykrywania patogenów chorobotwórczych i markerów genetycznych za pomocą amplifikacji izotermicznej opartej na rekombinazie i odczynników na bazie CRISPR, które są wstępnie mieszane, a następnie liofilizowane w łatwych do przechowywania i gotowych do użycia formatach. Wstępnie wymieszane, liofilizowane odczynniki mogą być ponownie uwodnione do natychmiastowego użycia i zachowują wysoką skuteczność amplifikacji i wykrywania. Udostępniamy również przewodnik rozwiązywania często występujących problemów związanych z przygotowywaniem i używaniem premiksowanych, liofilizowanych odczynników do diagnostyki opartej na CRISPR, aby platforma wykrywania była bardziej dostępna dla szerszych społeczności diagnostycznych/genetycznych.
Wprowadzenie
Diagnostyka oparta na systemie CRISPR do wykrywania biomarkerów kwasów nukleinowych została po raz pierwszy opisana w 2017 roku1,2,3,4, a od tego czasu została uznana za diagnostykę nowej generacji dzięki testom zatwierdzonym przez Food and Drug Administration (FDA), szczególnie do wykrywania RNA koronawirusa SARS-CoV-2 w wielu krajach5,6,7,8. Poza chorobą COVID-19 technologie te okazały się skuteczne w wykrywaniu różnorodnych wirusów i bakterii9,10,11,12,13, mutacji i delecji w chorobach genetycznych, a także mogą zostać zmodyfikowane w celu wykrywania białek i małocząsteczkowych biomarkerów2,12. Diagnostyka oparta na CRISPR często łączy metody amplifikacji izotermicznej – takie jak amplifikacja polimerazy zależna od rekombinazy (RPA) lub izotermiczna amplifikacja zapętlona (LAMP)14,15 – z detekcją opartą na CRISPR z wykorzystaniem enzymów CRISPR-associated (Cas) kierowanych przez RNA, wykazujących „uboczną” aktywność endonukleazy po rozpoznaniu celu3. Podwójne zastosowanie amplifikacji izotermicznej i detekcji opartej na CRISPR nadaje tym technologiom szereg pożądanych cech, w szczególności wysoką dokładność diagnostyczną zbliżoną do złotego standardu, jakim jest reakcja łańcuchowa polimerazy (PCR), oraz zdolność do multipleksowania i wykrywania niewielkich różnic w sekwencjach, w tym polimorfizmów pojedynczego nukleotydu1,9.
Najdokładniejsze wersje diagnostyki opartej na technologii CRISPR zawierają jednak wiele komponentów i etapów, a ich wykonanie przez osoby bez specjalistycznego przygotowania lub w punkcie opieki (POC) może być skomplikowane. Aby sprostać wyzwaniu rozszerzenia zastosowania wysoce dokładnej diagnostyki CRISPR w warunkach POC, opracowaliśmy protokoły przygotowania gotowych mieszanin liofilizowanych odczynników do izotermicznej amplifikacji opartej na rekombinazie oraz reakcji detekcji opartych na CRISPR, które są łatwe w użyciu i przechowywaniu7. Protokoły te powinny uzupełniać istniejące, doskonałe protokoły dotyczące diagnostyki opartej na CRISPR14, które zawierają dodatkowe informacje na temat produkcji komponentów biochemicznych niezbędnych do diagnostyki CRISPR7, wytyczne projektowe1 oraz formulacje z wykorzystaniem alternatywnych technik amplifikacji izotermicznej2,14,15,16 i enzymów Cas12. Ostatecznie mamy nadzieję, że diagnostyka oparta na CRISPR pomoże w realizacji szybkiej, niedrogiej i czułej detekcji kwasów nukleinowych w warunkach, w których wymagane są analizy przenośne i niewymagające użycia zaawansowanej aparatury1,9,17.
W naszych protokołach stosujemy przede wszystkim kombinację RPA i detekcji opartej na Cas13. RPA funkcjonuje w temperaturach bliskich temperaturze otoczenia (37-42 °C), a zatem charakteryzuje się niskimi wymaganiami sprzętowymi i energetycznymi. Inne reakcje amplifikacji izotermicznej wymagają wyższych temperatur (LAMP, 60-65 °C; amplifikacja z wypieraniem nici (SDA), 60 °C; wykładnicza reakcja amplifikacji (EXPAR), 55 °C; oraz amplifikacja zależna od helikazy (HDA), 65 °C)2. Projektowanie starterów RPA nie jest również skomplikowane, w przeciwieństwie do starterów LAMP, i może zostać rozszerzone na amplifikację multipleksową7,9,14. Mimo że w praktyce multipleksowanie ponad dwa cele za pomocą RPA jest trudne, istnieją jasne wytyczne dotyczące projektowania multipleksowych starterów RPA w celu zminimalizowania interferencji18.
Podczas gdy kontaminacja przeniesiona pozostaje poważnym problemem w dwuetapowym schemacie pracy, amplikony generowane przez RPA są niewielkie i z mniejszym prawdopodobieństwem powodują kontaminację przeniesioną w porównaniu do dużych amplikonów konkatemerycznych z LAMP14. Primery RPA można zaprojektować zgodnie ze standardowymi wytycznymi14: mają one zazwyczaj długość 25-35 nukleotydów, a ich temperatura topnienia wynosi od 54 do 67 °C. Rozmiar amplikonu powinien być mniejszy niż 200 par zasad. Do RPA można dodać enzym odwrotną transkryptazę (RT), aby umożliwić amplifikację z RNA, a w przypadku RPA z odwrotną transkrypcją (RT-RPA) zazwyczaj dodaje się niewielkie ilości innego enzymu, rybonukleazy H (RNaza H), aby pomóc w rozdzieleniu powstałego hybrydy RNA:DNA i wspomóc reakcję amplifikacji5,19. Aby umożliwić transkrypcję T7 dla detekcji opartej na Cas13, promotor polimerazy RNA T7 można umieścić na końcu 5' prawego prymera RPA.
Po wygenerowaniu amplikonów w procesie RPA można je wykryć za pomocą enzymów Cas programowanych przez crRNA. Spośród różnych enzymów Cas, które mogą być wykorzystane do detekcji amplikonów, preferujemy warianty Cas13 celujące w RNA ze względu na ich wysoką aktywność tnącą1 oraz dobrze scharakteryzowane preferencje dotyczące rozcinania polinukleotydów7,9, co może być wykorzystane do detekcji multipleksowej. Sekwencja crRNA dla Cas13 jest projektowana tak, aby była komplementarna (odwrotna komplementarna) do miejsca docelowego w wytworzonym RNA, z sekwencjami spacerowymi i bezpośrednimi powtórzeniami (DR). Sekwencja crRNA i primery RPA nie powinny na siebie nachodzić, aby uniknąć niepożądanego wykrywania przez enzymy Cas produktów amplifikacji poza celem, co zwiększa tło i liczbę wyników fałszywie dodatnich14.
Detekcja oparta na białkach Cas wykorzystuje różne metody detekcji w celu monitorowania rozszczepienia reporterowych cząsteczek kwasów nukleinowych (reporterów RNA w reakcjach opartych na Cas13)1,2,14. Różne metody detekcji obejmują kolorymetrię, odczyty elektrochemiczne, fluorescencję, odczyty sekwencjonowania oraz testy paskowe (lateral flow)2. Skupiamy się na odczycie fluorescencyjnym ze względu na dostępność różnorodnych fluoroforów i reporterów, takich jak cyjanina 5 (Cy5), rodamina X (ROX) i karboksyfluoresceina (FAM), które mogą być skutecznie pobudzane za pomocą pojedynczego niebieskiego źródła światła LED, a ich fluorescencja może być analizowana za pomocą czytnika mikropłytek lub termocyklera do PCR w czasie rzeczywistym7,14. Ponadto odczyt fluorescencyjny jest łatwy do skonfigurowania i pozwala na ciągłe monitorowanie, co umożliwia ilościowe oznaczanie w czasie rzeczywistym. Multipleksowa preamplifikacja RPA i multipleksowa detekcja oparta na Cas13 z wykorzystaniem enzymów Cas mogą być łączone z wielokolorowymi odczytami fluorescencyjnymi w celu jednoczesnego wykrywania wielu celów genetycznych2,7.
W naszych protokołach najpierw przeprowadzamy izotermiczną amplifikację RNA metodą RT-RPA, dodając próbkę RNA do liofilizowanej formy odczynnika RT-RPA (Rycina 1). Podczas RT-RPA do wytworzonego dwuniciowego amplikonu DNA dodawany jest promotor T7. Następnie produkty RPA są przenoszone do liofilizowanego układu detekcyjnego opartego na Cas13, który zawiera również polimerazę RNA T7. Ta reakcja detekcyjna przekształca amplikony DNA w RNA (za pośrednictwem polimerazy RNA T7), które mogą być łatwo wykryte przez Cas13 zaprogramowany za pomocą crRNA. Aktywowany celem Cas13 będzie przecinał cząsteczki reporterowe, generując wykrywalny sygnał fluorescencyjny2,7,14. Chociaż przedstawione tutaj protokoły dotyczą detekcji za pomocą Leptotrichia wadei (LwaCas13a), można je rozszerzyć na jednoczesną, multipleksową detekcję do czterech celów przy użyciu ortogonalnych enzymów Cas13 i Cas127,9. Reakcje RPA i detekcji opartej na Cas można również połączyć w jednej probówce, choć wiąże się to ze spadkiem czułości14.
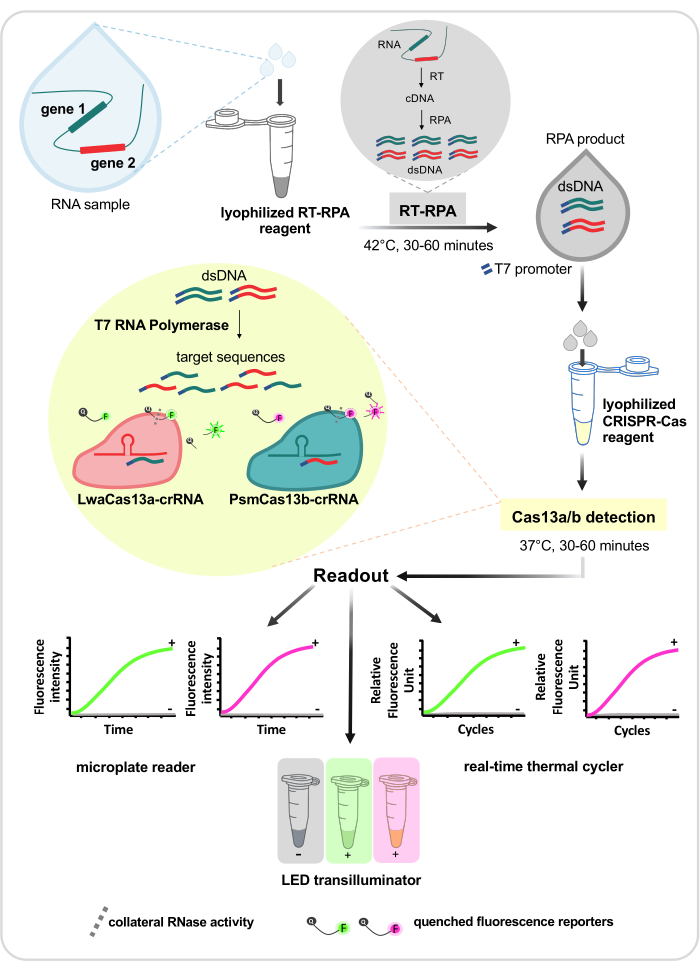
Rycina 1: Schemat detekcji opartej na CRISPR. Przedstawiony schemat ilustruje detekcję dwóch genów docelowych. W pierwszej kolejności regiony zainteresowania w obrębie docelowego DNA są amplifikowane izotermicznie za pomocą RPA; w przypadku detekcji celów RNA reakcja może być przeprowadzona z odwrotną transkrypcją (RT-RPA). Następnie transkrypcja T7 przekształca amplikony dsDNA w RNA, które z kolei są rozpoznawane przez kompleksy Cas13-crRNA zdolne do wywołania kolateralnej aktywności RNazy po związaniu z celem. Rozszczepienie wygaszonych reporterów fluorescencyjnych generuje sygnały fluorescencji, które mogą być monitorowane przy użyciu czytnika mikropłytek, wizualizowane za pomocą transiluminatora LED lub analizowane w termocyklerze do PCR w czasie rzeczywistym. Skróty: CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; RT = odwrotna transkrypcja; RPA = amplifikacja polimerazowa z rekombinazą; Cas = białko związane z CRISPR; LED = dioda emitująca światło. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Kluczowymi cechami przedstawionych tutaj protokołów są formulacje do wstępnego mieszania przed liofilizacją. Wstępne mieszanie upraszcza stosowanie reakcji i zwiększa powtarzalność, jednak wiele składników w detekcji opartej na RPA i Cas – w szczególności odwrotna transkrypcja oraz niektóre labilne kofaktory, takie jak ATP – nie jest stabilnych w roztworze. Dlatego przygotowujemy roztwory wstępnie zmieszane w taki sposób, aby mogły zostać poddane liofilizacji w celu długoterminowego przechowywania oraz łatwego transportu i wdrażania1,9,20. Wstępnie zmieszane, liofilizowane odczynniki pomagają również poprawić czułość detekcji, ponieważ do reaktywacji reakcji można dodać większą objętość próbki (a tym samym większą ilość wejściową DNA/RNA)10. W naszych formulacjach jako krioprotektant w liofilizowanych reakcjach detekcyjnych RPA i Cas stosujemy przede wszystkim trehalozę217. Oprócz konserwacji odczynników, trehaloza wspomaga również przebieg reakcji poprzez zwiększenie stabilizacji enzymów16,22,23,24 oraz obniżenie temperatur topnienia dsDNA23. Badania nad innymi stabilizatorami5,7,21,25,26 poza trehalozą mogą przynieść jeszcze bardziej optymalne formulacje dla różnych scenariuszy zastosowań.
Protokół
1. Przygotowanie liofilizowanych wstępnie zmieszanych odczynników RT-RPA
- Przygotowanie sprzętu
- Przygotuj dewara lub tacę z ciekłym azotem do błyskawicznego zamrażania reakcji. Napełnij dewara lub tacę ciekłym azotem.
- Liofilizator
- Sprawdź, czy w rurkach odpływowych i we wnętrzu komory nie ma skroplonej wody; w razie potrzeby usuń wodę.
- Wyczyść wnętrze komory i metalowy stojak na probówkę do mikrowirówek o pojemności 1,5 ml roztworem do odkażania RNazy, a następnie 70% etanolem.
- Zamknij drzwiczki komory i zawór spustowy podciśnienia.
- Włącz liofilizator.
- Ręcznie ustaw temperaturę półki na -30 °C.
- Aparatura do biologii molekularnej
- Roztworem do odkażania RNazy należy oczyścić następujące elementy: pipety, stojaki na końcówki do pipet, mieszalnik wirowy, miniwirówkę wirującą i marker permanentny.
- Umyj wodą z kranu, a następnie przetrzyj papierem do wycierania do czyszczenia: plastikowe stojaki na probówki do mikrowirówek i piankowe pudełko na lód.
- Przygotuj blok grzewczy (używany do rozpuszczania/rozpuszczania roztworu triglicyny), czyszcząc go roztworem do dekontaminacji RNazy i 70% etanolem. Następnie włącz go i ustaw temperaturę na 60 °C.
- Przygotowanie wstępnie zmieszanych reakcji RPA
UWAGA: Ten preparat jest przeznaczony na 10 reakcji (przy użyciu trzech granulek RPA).- Przed użyciem sprawdź, czy w roztworze triglicyny nie ma osadu. Jeśli występują osady, należy je rozpuścić w inkubacji w temperaturze 60 °C i dokładnie wymieszać przed użyciem. Schłodzić roztwór triglicyny przed dodaniem innych odczynników wrażliwych na ciepło.
UWAGA: Osady mogą łatwo się tworzyć, jeśli probówka jest pozostawiona w temperaturze pokojowej przez dłuższy czas. - Wyjmij trzy probówki z granulkami RPA z zamrażarki; postukaj w probówki, delikatnie uderzając nimi o stół laboratoryjny, aby usunąć białe granulki.
- Przenieś wszystkie trzy granulki do probówki mikrowirówkowej A o pojemności 1,5 ml.
- Odpipetować 25 μl wody wolnej od nukleaz, aby wypłukać pozostały proszek RPA w probówkach z paskami i przenieść roztwór płuczący do nowej probówki do mikrowirówki B o pojemności 1,5 ml.
- Dodać 10 μl 0,57 M roztworu triglicyny i 10 μl mieszanki starterów (po 10 μM każdy) do probówki B mastermix.
- Wymieszaj rurkę B z wirem, a następnie odwiruj i umieść probówkę na lodzie.
- Dodać 28,4 μl 5x buforu RPA (przygotowanego z 500 μl 50% (w/v) PEG20000, 250 μl 1 M Tris pH 7,4 i 100 μL 100 mM ditiotreitolu (DTT)) do probówki B mastermix i dokładnie wymieszać, wielokrotnie mocno stukając lub wstrząsając.
UWAGA: Wytwarzamy roztwór w ten sposób, aby pomóc rozcieńczyć/zmniejszyć lepkość PEG w tubie mastermix, przed dodaniem wszystkiego w celu rozpuszczenia granulek RPA. - Przenieś granulki zebrane w probówce A z kroku 1.2.3 do probówki Mastermix B, a następnie odwróć probówkę mastermix kilka razy, aby wymieszać. Obserwuj, czy roztwór wydaje się jednorodny i jednofazowy (będzie również wyglądał na lekko nieprzezroczysty), a następnie umieść probówkę na lodzie.
UWAGA: Jeśli mieszanie nie jest dokładne, PEG może spowodować separację fazową roztworu/zawiesiny. - Dodać 0,71 μl z 200 jednostek/μl RT i 2,84 μl z 5 jednostek/μl RNazy H do probówki mastermix. Delikatnie postukaj lub odwróć rurkę mastermix wiele razy w górę iw dół. Zakręć i umieść rurkę na lodzie.
UWAGA: Dodajemy te enzymy po ciężkim wymieszaniu wcześniejszych etapów, ponieważ RT i RNaza H są wrażliwe na ścinanie w wyniku mieszania; koniec z wirowaniem po dodaniu RT/RNazy H. - Porcję 8,4 μl roztworu mastermix rozprowadzić do 10 wstępnie schłodzonych probówek o pojemności 1,5 ml i umieścić probówki na lodzie. W tym celu zanurz końcówkę pipety w roztworze mastermix i powoli i równomiernie wciągaj roztwór mastermix do końcówki, aby zapobiec tworzeniu się pęcherzyków powietrza i zapewnić dokładny pomiar objętości. Dozować roztwór mastermix do wstępnie schłodzonej probówki o pojemności 1,5 ml.
UWAGA: Z naszego doświadczenia wynika, że przy podaniu 8,4 μl w probówce mastermix pozostanie ~1-2 μl zawiesiny. Eksperymentator może nieznacznie zmniejszyć objętość porcjowania, aby zapewnić wystarczającą ilość odczynników dla wszystkich 10 reakcji. Podczas pracy z lepkimi roztworami należy stosować odpowiednie techniki pipetowania. - Po zakończeniu porcjowania umieść probówki w metalowym stojaku zanurzonym w ciekłym azocie, aby przygotować je do liofilizacji. Pozwól rurkom zanurzyć się w ciekłym azocie na 5 minut.
UWAGA: Ponieważ liofilizacja usuwa nadmiar roztworu, pozwala nam dodać więcej danych wejściowych DNA/RNA, co pomaga zwiększyć czułość. Liofilizowane, wstępnie zmieszane reakcje RPA można przechowywać w temperaturze -20 °C przez 8 miesięcy. Liofilizacja pomaga w odtwarzalności, jeśli dany eksperyment jest wykonywany przy użyciu mastermixów RPA przygotowanych w tej samej partii, więc wykonanie większej partii również pomaga.
- Przed użyciem sprawdź, czy w roztworze triglicyny nie ma osadu. Jeśli występują osady, należy je rozpuścić w inkubacji w temperaturze 60 °C i dokładnie wymieszać przed użyciem. Schłodzić roztwór triglicyny przed dodaniem innych odczynników wrażliwych na ciepło.
- Liofilizacja
- W liofilizatorze sprawdź temperaturę kolektora i półki. W razie potrzeby poczekaj, aż temperatura kolektora osiągnie -75 ± 5 °C, a temperatura półki osiągnie -30 ± 1 °C.
- Przykryj otwarte probówki w metalowym stojaku arkuszem papieru do czyszczenia, umieść metalowy stojak wraz z otwartymi probówkami na półce liofilizatora i zamknij drzwiczki półki.
- Wybierz program pokazany w Tabeli 1 i naciśnij start. Po 30 minutach drugiego etapu suszenia (20 °C, <0,1 mbar; temperatura jest utrzymywana w nieskończoność, ustawiając czas kroku na "nieskończoność"), naciśnij przycisk zatrzymaj program.
UWAGA: Pozwalamy rurkom rozgrzać się w liofilizatorze, aby zapobiec kondensacji wody. - Zwolnij ciśnienie, otwierając zawór spustowy podciśnienia, a następnie wyjmij stojak z półki. Natychmiast zakryć probówki i przechowywać liofilizowane reakcje w temperaturze -20 °C.
UWAGA: Liofilizowane RPA i CRISPR-Cas13a wstępnie zmieszane reakcje można przechowywać w temperaturze -20 °C przez 8 miesięcy.
2. Przygotowanie liofilizowanych wstępnie zmieszanych odczynników detekcyjnych CRISPR-Cas13a
UWAGA: Postępuj zgodnie z krokiem 1.1, aby przygotować sprzęt.
- Wstępnie zmieszany preparat reakcyjny CRISPR-Cas13a (10 reakcji)
- Wyjmij następujące przedmioty z magazynu i umieść je na lodzie: 10 μL LwaCas13a (wyprodukowanego we własnym zakresie7,8,14) (2 mg/mL), bufor do przechowywania Cas, 10 ng/μL (225 nM) crRNA, 25 mM rNTP, 50 jednostek/μL polimerazy RNA T7, 2 μM reportera fluorescencji FAM.
- Przygotować roztwór roboczy LwaCas13a o stężeniu 126 μg/ml (900 nM), dodając 148,8 μl buforu do przechowywania Cas (50 mM Tris-HCl pH 7,4, 0,6 M NaCl, 5% glicerolu, 2 mM DTT) do 10 μl 2 mg/ml LwaCas13a.
- Przygotuj reakcję mastermix CRISPR-Cas13a w następujący sposób: 71 μL wody wolnej od RNaz, 20 μL 400 mM Tris pH 7,4, 20 μL 60% (w/v) trehalozy, 10 μL 10 ng/μL (225 nM) crRNA (w tym przypadku ukierunkowanie na geny s i n SARS-CoV-2), 8 μL 100 mM mieszanki rNTP (po 25 mM), 6 μl 50 jednostek/μl polimerazy T7 RNA, 25 μl 2 μM reportera fluorescencyjnego FAM i 10 μl 126 μg/ml (900 nM) LwaCas13a. Dobrze wymieszaj, odwracając rurkę mastermix; Następnie odkręć w dół.
- Podzielić 17 μl mastermixu na 10 probówek o pojemności 1,5 ml umieszczonych na lodzie. Umieść probówki w stojaku zanurzonym w ciekłym azocie i pozwól im zanurzyć się w ciekłym azocie na 5 minut.
- Liofilizacja
- W liofilizatorze sprawdzić temperaturę kolektora i półki i poczekać, aż temperatura kolektora osiągnie -75 ± 5 °C, a temperatura półki osiągnie -30 ± 1 °C.
- Umieść probówki w liofilizatorze. Wybierz program pokazany w Tabeli 1 i naciśnij start. Po 30 minutach etapu suszenia wtórnego (25 °C, <0,1 mbar; temperatura jest utrzymywana w nieskończoność, ustawiając czas kroku na "nieskończoność"), zatrzymaj program.
- Zwolnij ciśnienie, otwierając zawór spustowy podciśnienia i wyjmij stojak z półki. Natychmiast zakryć probówki i przechowywać liofilizowane reakcje w temperaturze -20 °C.
UWAGA: Liofilizowane wstępnie zmieszane odczynniki RPA i CRISPR-Cas13a można przechowywać w temperaturze -20 °C przez 8 miesięcy.
3. Amplifikacja kwasu nukleinowego RT-RPA
UWAGA: Aby zapobiec zanieczyszczeniu krzyżowemu, miejsca pracy i pipetory powinny być oddzielone do wstępnego amplifikacji, dodania próbki i po amplifikacji. Zalecamy używanie końcówek do pipet z filtrem.
- Podgrzej inkubator z wytrząsaniem termicznym w temperaturze 42 °C.
- Dodać 1 μl mieszaniny roztworu octanu magnezu (Mg(OAc)2) i octanu potasu (KOAc) (składającego się z 196 mM Mg(OAc)2 i 1,5 M KOAc) na bok probówki zawierającej liofilizowany, wstępnie zmieszany osad RT-RPA (z sekcji 1).
UWAGA: Sztuczka polegająca na dodaniu mieszanki Mg(OAc)2 i KOAc: kroplę należy umieścić w pobliżu oznaczenia objętości 1 ml na probówce. W tym przypadku kropla będzie wyraźnie widoczna i prawdopodobnie nie zostanie utracona w wyniku zamknięcia rurki lub innych działań. Wzmocnienie rozpocznie się po odkręceniu w dół, aby zebrać kroplę na dnie lampy. W przypadku przetwarzania więcej niż jednej reakcji na raz, amplifikacja może być zainicjowana jednocześnie. - Zawiesić osad RT-RPA, dodając 12,4 μl próbki RNA (lub próbek kontrolnych).
UWAGA: Sekwencja dodawania to próbka ujemna/kontrola ujemna, RNA/DNA do testowania, próbka dodatnia/kontrola pozytywna. - Aby zainicjować reakcję RT-RPA, należy na krótko odwirować dodany roztwór z kroków 3.2 i 3.3 za pomocą miniwirówki z odwirowaniem w temperaturze pokojowej przez 3 sekundy.
- Wymieszaj, ostrożnie stukając w rurkę, a następnie wykonaj kolejne krótkie wirowanie przez 3 sekundy.
- Inkubować reakcję w temperaturze 42 °C przez 60 minut, umieszczając ją w podgrzanym bloku grzewczym lub inkubatorze z wytrząsaniem termicznym.
- Po zakończeniu reakcji wyjmij probówki reakcyjne i umieść je na lodzie przed przejściem do etapu wykrywania CRISPR-Cas (sekcja 4).
UWAGA: Produkt wzmocniony RPA może być stosowany w reakcji detekcji natychmiast lub może być przechowywany w temperaturze 4 °C przez kilka dni lub w temperaturze -20 °C przez kilka miesięcy.
4. Wykrywanie kwasów nukleinowych CRISPR-Cas13
- Włączyć czytnik mikropłytek fluorescencyjnych, ustawić i podgrzać temperaturę ogrzewania do 37 °C, a następnie wybrać program pokazany w Tabeli 2.
- Umieść 384-dołkową płytkę na lodzie.
- Ponownie zawiesić liofilizowaną reakcję wykrywania wstępnie zmieszaną CRISPR-Cas (z sekcji 2), dodając 17 μl 8 mM roztworu chlorku magnezu. Wymieszaj, ostrożnie stukając w rurkę; Następnie krótko odkręć w dół przez 3 sekundy i umieść rurkę na lodzie.
- Przenieść 18 μl ponownie zawieszonej mieszaniny reakcyjnej do każdego dołka wstępnie schłodzonej 384-dołkowej płytki na lodzie.
- Dodać 2 μl produktu RPA przygotowanego w sekcji 3 do każdej studzienki reakcyjnej.
- Wyjmij płytkę z lodu, szybko umieść ją w nagrzanym czytniku mikropłytek fluorescencyjnych i naciśnij start.
UWAGA: Płytkę 384-dołkową umieszczono na lodzie, aby umożliwić synchronizację inicjacji reakcji, gdy płytka 384-dołkowa jest przenoszona do podgrzanego czytnika mikropłytek fluorescencyjnych.
Wyniki
Zwracamy uwagę na kinetykę generowania sygnału fluorescencji FAM z połączonej detekcji genów s i n wirusa SARS-CoV-2 oraz na to, w jaki sposób informacje te zostały wykorzystane do określenia optymalnych warunków dla liofilizowanych, wymieszanych wcześniej formulacji odczynników. We wszystkich przypadkach uwzględniliśmy próbki z wartościami Ct mieszczącymi się znacznie poniżej wyznaczonego granicy wykrywalności (LoD) (Ct ~31-33), a także próbki z Ct na poziomie LoD (Ct ~35-37)7, aby umożliwić rozróżnienie protokołów o lepszej czułości.
W przypadku liofilizowanego, wstępnie zmieszanego RT-RPA stwierdzono, że obecność KOAc w wstępnie zmieszanej reakcji negatywnie wpływa na jej czułość (Rysunek 2A). Dlatego pominięto KOAc w wstępnie zmieszanej reakcji i dodano go wraz z inicjatorem reakcji, Mg(OAc)2, po dodaniu próbki RNA. Podobnych testów użyto również do wyznaczenia optymalnego stężenia krioprotektanta trehalozy (Rysunek 2B) oraz do zbadania wpływu triglicyny7 na liofilizowaną reakcję RT-RPA (Rysunek 2C). W związku z tym optymalne liofilizowane, wstępnie zmieszane reakcje RT-RPA przygotowano z zastosowaniem 6% trehalozy, bez KOAc (dodawanego później, po dodaniu próbki RNA) oraz z dodatkiem triglicyny, zgodnie z opisem w sekcji 1 protokołu.
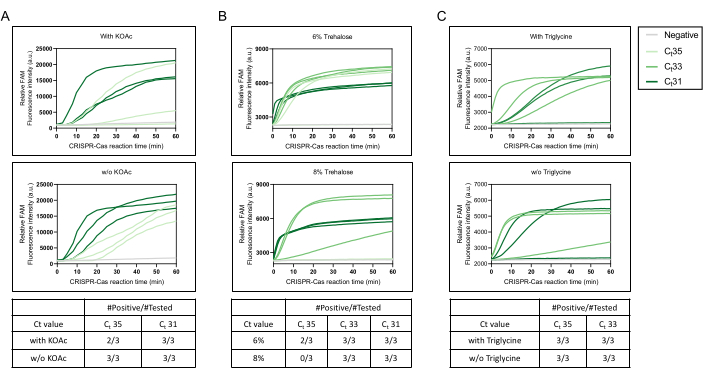
Rycina 2: Optymalizacja liofilizowanych, gotowych mieszanin do reakcji RT-RPA. Reakcję RT-RPA przygotowano z użyciem starterów nakierowanych na gen n SAR-CoV-2. Mg(OAc)2 został wykluczony ze wszystkich gotowych mieszanin. Oceniono wpływ (A) KOAc, (B) trehalozy oraz (C) triglicyny dodanych do gotowych mieszanin reakcyjnych. Monitorowanie reakcji poprzez generowaną fluorescencję FAM przeprowadzono przy użyciu termocyklera w czasie rzeczywistym lub mikroplatejskiego czytnika fluorescencji. Przedstawiono indywidualne dane z pomiarów w trzech powtórzeniach. Skróty: RT = odwrotna transkrypcja; RPA = amplifikacja polimerazy rekombinazy; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = białko CRISPR-associated; SAR-CoV-2 = Severe Acute Respiratory Syndrome Coronavirus 2; Ct = próg cyklu; FAM = karboksyfluoresceina. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W przypadku liofilizowanych, gotowych mieszanin do reakcji opartych na Cas13a, zweryfikowano znaczenie zastosowania odpowiedniego krioprotektanta: zarówno 6% trehalozy, jak i 2% sacharozy19 działały skutecznie, podczas gdy niższe stężenie sacharozy (1%) lub 5% w/v PEG20000 nie pozwoliły na zachowanie wydajności reakcji po liofilizacji (Rycina 3). MgCl2 pominięto we wszystkich reakcjach i dodano go na etapie rehydratacji. Optymalną liofilizowaną reakcję detekcji opartą na Cas13 przygotowano z użyciem 6% trehalozy, zgodnie z opisem w sekcji 2 protokołu.
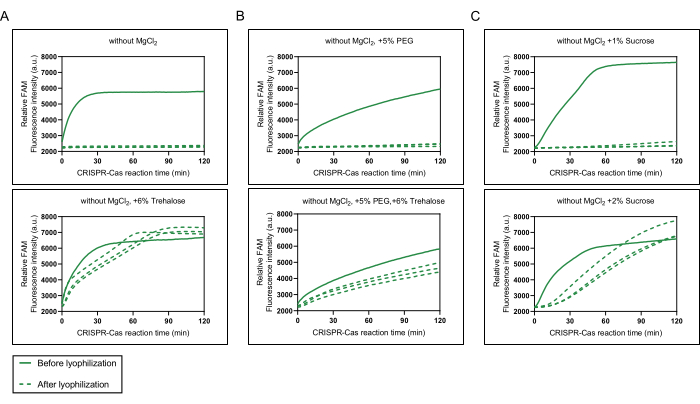
Rycina 3: Optymalizacja liofilizowanych, gotowych mieszanin reakcyjnych do detekcji opartych na Cas13. Reakcję detekcji przeprowadzono w temperaturze 37 °C, wykorzystując produkt RPA z genu n SARS-CoV-2. Testy wykonano przed i po liofilizacji. MgCl2 został wykluczony ze wszystkich gotowych mieszanin reakcyjnych. Oceniono zdolność (A) trehalozy, (B) PEG20000 oraz (C) sacharozy do zachowania wydajności reakcji po liofilizacji. Monitorowanie reakcji poprzez generowaną fluorescencję FAM przeprowadzono przy użyciu termocyklera czasu rzeczywistego. Przedstawiono dane indywidualne z pomiarów potrójnych dla warunków „po liofilizacji” oraz jedną próbę dla warunków „przed liofilizacją”. Rycina 3A,B została zaczerpnięta z pracy Patchsung et al.7. Skróty: RPA = amplifikacja polimerazowa z rekombinazą; SAR-CoV-2 = koronawirus 2 wywołujący ciężki ostry zespół oddechowy; FAM = karboksyfluoresceina. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Liofilizowane, wymieszane odczynniki do reakcji RT-RPA i opartych na Cas13 są stabilne w temperaturze -20 °C przez co najmniej 8 miesięcy [Rysunek 4].
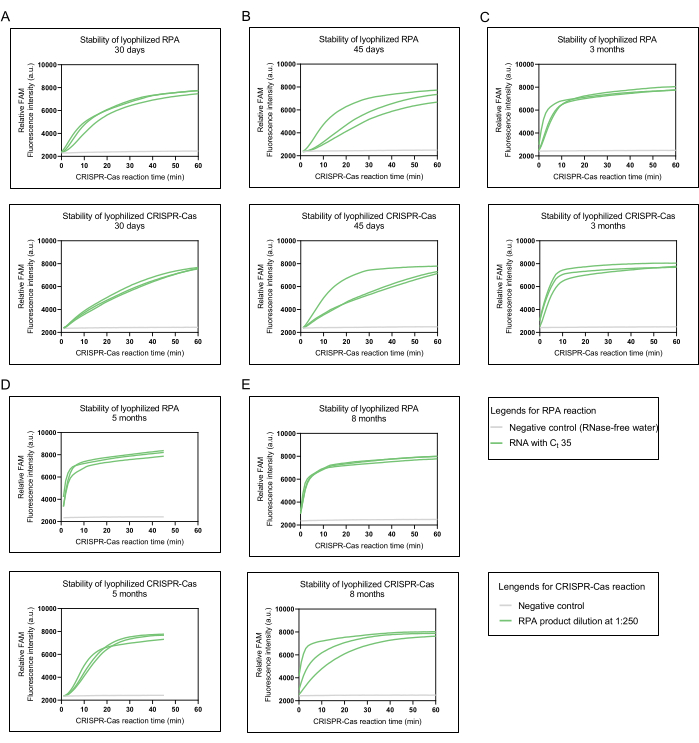
Rysunek 4: Testy stabilności liofilizowanych, zmieszanych odczynników RPA i CRISPR-Cas13a w temperaturze -20 °C. Test stabilności po (A) 30 dniach, (B) 45 dniach, (C) 3 miesiącach, (D) 5 miesiącach, (E) 8 miesiącach. Przedstawiono indywidualne dane z pomiarów wykonanych w trzech powtórzeniach. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Granica wykrywalności (LoD) liofilizowanych reakcji RT-RPA i opartych na Cas13 w celu wykrywania genów s oraz n SARS-CoV-2 przedstawiona jest na Rysunku 5. Kinetyka generowania sygnału może ulec poprawie w przypadku detekcji podwójnej w porównaniu do sytuacji, gdy wykrywany jest tylko jeden gen.
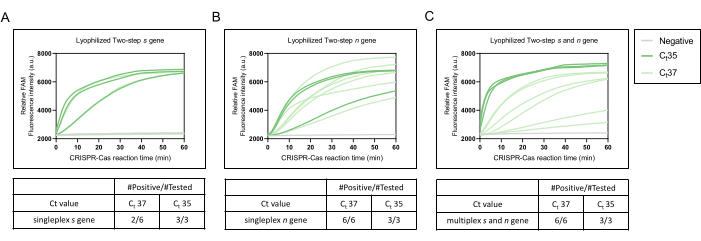
Rycina 5: Czułość analityczna detekcji pojedynczego genu w porównaniu z detekcją dwóch genów. (A) LoD liofilizowanych testów singleplex RT-RPA i detekcji opartej na Cas nakierowanych na gen s SARS-CoV-2. (B) LoD liofilizowanych testów singleplex RT-RPA i detekcji opartej na Cas nakierowanych na gen n SARS-CoV-2. (C) LoD liofilizowanych testów multiplex RT-RPA i podwójnej detekcji opartej na Cas nakierowanych na geny s i n. LoD określono przy użyciu seryjnie rozcieńczonych RNA SARS-CoV-2, których wartości Ct wyznaczono za pomocą testu RT-qPCR nakierowanego na gen n. Przedstawiono poszczególne dane z 3–6 pomiarów powtórzonych. Skróty: LoD = granica wykrywalności; RT = odwrotna transkrypcja; RPA = amplifikacja polimerazy z rekombinazą; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = białko związane z CRISPR; SARS-CoV-2 = Severe Acute Respiratory Syndrome Coronavirus 2; Ct = próg cyklu; qPCR = ilościowa reakcja łańcuchowa polimerazy. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Poza detekcją wirusów prezentujemy prototyp narzędzia do genotypowania w punkcie opieki (POC) opartego na diagnostyce CRISPR, które pomaga w identyfikacji jadowitych gatunków węży endemicznych dla Tajlandii (Rycina 6). Szybsza i dokładniejsza identyfikacja gatunków węży na podstawie próbek DNA pobranych z ran po ukąszeniu może wspomóc niezwłoczne podanie przeciwciał przeciwjadowych, zwiększając szanse pacjenta na przeżycie. Jako cele wybraliśmy regiony w obrębie mitochondrialnego genu cytochromu b (cytb) u ośmiu gatunków węży, w tym Ophiophagus hannah (kobry królewskiej) (Rycina 6A), i wykazaliśmy, że detekcja syntetycznych zamienników DNA genu cytb O. hannah może osiągnąć poziom czułości attomolarnej (Rycina 6B,C).
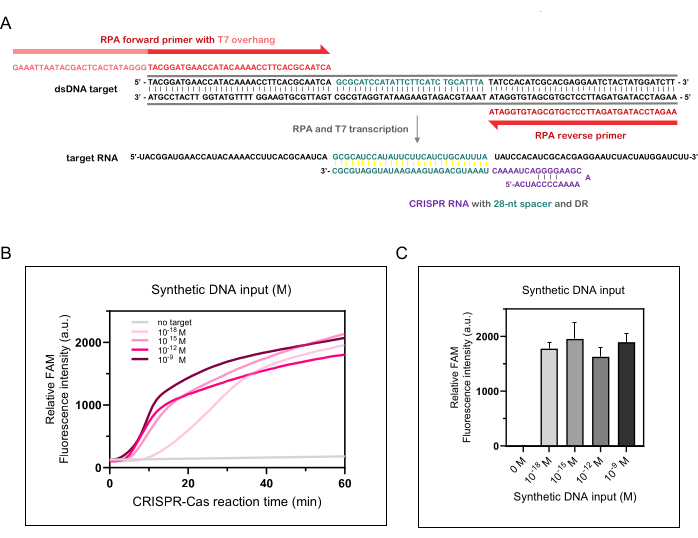
Rycina 6: Prototyp detekcji opartej na systemie CRISPR do identyfikacji gatunków węży na podstawie jadu z ukąszenia. (A) Projekt starterów RPA i crRNA LwaCas13a do detekcji genu cytb gatunku Ophiophagus hannah. Promotor T7 (overhang T7) został umieszczony na końcu 5' przedniego startera RPA. (B) Kinetyka generowania sygnału FAM w ciągu 60 min oraz (C) końcowa fluorescencja FAM z detekcji za pośrednictwem LwaCas13a dla syntetycznych wejściowych dsDNA odpowiadających segmentom genu cytb gatunku O. hannah. Zastosowano różne stężenia wejściowe (0, 10-9, 10-12, 10-15 oraz 10-18 M). Dane przedstawiają średnią ± s.d. z pomiarów w trzech powtórzeniach. Skróty: RPA = recombinase polymerase amplification; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = białko CRISPR-associated; FAM = karboksyfluoresceina. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Liofilizacja gotowych mieszanek odczynników detekcyjnych CRISPR-Cas13a | ||||
| Krok | Szybkość narastania temperatury | Temp. półki | Czas (gg:mm) | Próżnia |
| (°C/min) | (°C) | (mbar) | ||
| Zamrożenie 1 | 3 | -30 | wyłączony | - |
| Suszenie 1 | 3 | -30 | wyłączony | 0 |
| Suszenie 2 | 3 | 4 | 01:00 | 0 |
| Suszenie 3 | 3 | 20 | ∞ | 0 |
Tabela 1: Ustawienia liofilizatora dla zmieszanych odczynników do detekcji RT-RPA i CRISPR-Cas13a. Skróty: RT = odwrotna transkrypcja; RPA = amplifikacja polimerazy z rekombinazą; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = białko związane z CRISPR.
| Parametr | Kontekst | |
| Temperatura | 37 °C | |
| Cykl kinetyczny | Czas trwania | 02:00 (mm:ss) |
| Czas odstępu | 02:30 (mm:ss) | |
| Mieszanie z wytrząsaniem | Czas trwania | 1 s |
| Tryb | Liniowy | |
| Amplituda | 1 mm | |
| Intensywność fluorescencji | Długość fali wzbudzenia | 488 nm |
| Długość fali emisji | 520 nm | |
| Tryb | Góra | |
| Pozycja Z | 24470 | |
| Wzmocnienie | 71 | |
| Czas integracji | 20 µs | |
| Liczba błysków | 25 | |
Tabela 2: Program czytnika mikropłytek fluorescencyjnych do detekcji kwasów nukleinowych.
Dyskusja
W tym protokole znajdują się krytyczne kroki. Do segregacji obszarów zaleca się stosowanie oddzielnych przestrzeni do ekstrakcji kwasów nukleinowych, przygotowania mastermixu (obszar przed amplifikacją), dodawania próbki i wykrywania amplikonów (obszar po amplifikacji). Każdy obszar powinien być ustawiony za pomocą osobnego zestawu narzędzi i sprzętu. Nie przenoś narzędzi z jednego obszaru do drugiego, zwłaszcza z obszaru po amplifikacji do obszaru przed amplifikacja. Konieczne jest czyszczenie obszarów roboczych: należy czyścić obszary robocze, pipety, wirowniki i markery permanentne roztworem do dekontaminacji RNazy/DNazy/3% Cloroxem, a następnie 70% etanolem lub autoklawowaną wodą dejonizowaną. Wymagane jest mycie podstawowych przyborów laboratoryjnych i wyjmowanych części instrumentów, takich jak plastikowe stojaki na probówki o pojemności 1,5 ml i adapter wirnika miniwirówki. Woda wolna od nukleaz jest używana jako kontrola ujemna i składnik reakcji, a zatem jest wrażliwym odczynnikiem, który może zostać zanieczyszczony, jeśli nie będzie się z nim obchodzić ostrożnie. Dlatego zalecamy przygotowanie małych porcji wody, które można użyć tylko raz.
Zawsze przeprowadzaj reakcję kontroli ujemnej przy użyciu starterów testowych w celu sprawdzenia zanieczyszczenia. Dodatkowo, aby uniknąć problemów z zanieczyszczeniem, zalecamy przygotowanie reakcji kontroli ujemnej poprzez dodanie wody wolnej od nukleaz w obszarze wstępnej amplifikacji zamiast w pomieszczeniu dodawania próbki. Mieszanina octanu magnezu i octanu potasu powinna być podawana w małych objętościach (~ 20 μl / probówka), które są używane tylko raz, aby uniknąć zanieczyszczenia odczynnikiem przeniesionymi amplikonami. W przypadku dodawania mieszaniny octanu magnezu i potasu do liofilizowanych reakcji RPA premiksu zalecamy każdorazową wymianę końcówki pipety. W przypadku przepływu pracy eksperymentów należy zachować jednokierunkowy przepływ pracy, od eksperymentów przed wzmocnieniem do eksperymentów po wzmocnieniu. Przejdź od "czystszych" (przed wzmocnieniem) miejsc pracy do "brudniejszych" (po wzmocnieniu).
W celu modyfikacji i rozwiązywania problemów związanych z metodą w celu uniknięcia przeniesienia zanieczyszczenia amplikonów, zalecamy przestrzenne oddzielenie trzech głównych etapów eksperymentu: przygotowanie reakcji RPA; dodawanie próbek; oraz etapy wzmacniania i wykrywania. Mastermix powinien być przygotowany w obszarze laboratorium wolnym od szablonów. Podczas przebieralni należy również zmienić rękawice i fartuchy laboratoryjne. Pracuj jednokierunkowo od wzmocnienia przed i po. Unikaj używania tej samej pipety do różnych etapów. Najlepiej, jeśli do tych etapów zostaną ustawione różne zestawy pipet: przygotowanie mieszanek głównych; dodanie matrycowego DNA/RNA; oraz transfer amplifikowanego produktu. Używaj końcówek z filtrem, staraj się w jak największym stopniu zapobiegać tworzeniu się aerozolu i unikaj dotykania wnętrza tubki podczas jej otwierania. Jeśli eksperymenty z amplifikacją wykażą zanieczyszczenie, wszystkie odczynniki należy wymienić. Jeśli to możliwe, udaj się do innego laboratorium ze świeżymi odczynnikami i sprawdź, czy zanieczyszczenie utrzymuje się. Oprócz odczynników nie zabieraj ze sobą niczego innego, w tym pipet. Spróbuj sterylizować pipety w autoklawie, jeśli można je sterylizować w autoklawie.
Aby poprawić szybkość amplifikacji (optymalizację testu), najpierw zapoznaj się z instrukcjami producenta, takimi jak instrukcja RPA firmy TwistDx, aby zapewnić optymalne projekty. Następnie wypróbuj empiryczne optymalizacje reakcji, takie jak dodanie dodatków reakcyjnych, o których wiadomo, że wzmacniają reakcje RPA i CRISPR7; wydłużenie czasu reakcji (np. czas reakcji RPA do 60 min); lub różne sekwencje i stężenia starterów. Zalecamy również dodanie jak największej objętości próbki; Użycie odczynników liofilizowanych pozwala na dodanie większej objętości próbki. Aby zmniejszyć fluorescencję tła, można wykonać etap inaktywacji ciepłem (75 °C przez 5 minut) po zakończeniu RPA, przed przejściem do detekcji lub optymalizacji stężenia reportera. Zbyt dużo reportera da wyższe tło. Ponadto dodanie inhibitorów RNazy pomaga zapobiegać niezależnej od Cas degradacji reportera.
Poza optymalizacją warunków reakcji opartych na (RT)-RPA i CRISPR oraz procedurami ich obsługi, należy upewnić się, że stosowane odczynniki są dobrej jakości, a etap ekstrakcji kwasów nukleinowych poprzedzający wszystkie reakcje zakończył się sukcesem. Liofilizowane odczynniki zapewniają wysoką czułość wykrywania, są przenośne, umożliwiają testowanie POC i mogą być stosowane do różnych próbek klinicznych. Co więcej, liofilizowany (RT)-RPA można natychmiast uwodnić, dodając ekstrakt kwasu nukleinowego z próbek klinicznych. Poprzednie badanie wykazało wyższą czułość przy wprowadzaniu większej objętości kwasu nukleinowego bez ograniczonej objętości, skutecznie zwiększając całkowitą ilość docelowego kwasu nukleinowego.
Diagnostyka oparta na CRISPR została przystosowana do wykrywania patogenów poprzez pobieranie próbek klinicznych, takich jak wymazy z nosogardzieli i gardła, mocz i surowica 7,8,11. Zastosowano go również do rozróżniania wariantów pojedynczych nukleotydów, identyfikacji genów oporności na antybiotyki w organizmach opornych na środki przeciwdrobnoustrojowe oraz wykrywania mutacji związanych z rakiem. Użyteczność tej technologii może być największa w zastosowaniach terenowych, w których zmodyfikowane reakcje biochemiczne do amplifikacji izotermicznej i wykrywania opartego na CRISPR można połączyć z gotowymi do użycia w terenie urządzeniami i odczytami, takimi jak ręczny fluorometr lub boczne paski przepływowe.
Oświadczenia
M.P. i C.U. złożyły w Tajlandii patent na preparaty do multipleksowanego wykrywania RNA SARS-CoV-2. R.K. deklaruje, że nie ma sprzecznych interesów.
Podziękowania
C.U. potwierdza finansowanie z Siam Commercial Bank w ramach VISTEC-Siriraj Frontier Research Center, oraz z Thailand Science Research and Innovation (TSRI), fundusz fundamentalny, rok podatkowy 2024, numer grantu FRB670026/0457. R.K. i M.P. są wspierani odpowiednio przez fundusze stypendialne i asystentury badawczej z VISTEC.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Materiał | |||
| roztwór betainy | Sigma-Aldrich | B0300-1VL | |
| DEPC-Woda uzdatniona | Invitrogen | AM9915G | |
| Dithiothreitol (DTT) | Merck | 3870-25GM | |
| Odwrotna transkryptaza EpiScript | Lucigen | ERT12925K | |
| Gly-Gly-Gly& nbsp; | Sigma-Aldrich | SIA-50239-1G | |
| LwaCas13a | Produkcja własna | Nazwa szczepu: Leptotrichia wadei, Skrót: Lwa, Nazwa białka: LwaCas13a | |
| Roztwór chlorku magnezu, 1M | Sigma-Aldrich | M1028-10X1ML | |
| Polimeraza RNA NxGenT7 | Lucigen | 30223-2 | |
| Poli(glikol etylenowy) | Sigma-Aldrich | 81300-1KG | |
| Roztwór octanu potasu, 5M | Sigma-Aldrich | 95843-100ML-F | |
| Mieszanina roztworów ryobnukleotydów | NEB | N0466L | |
| RNaza H | NEB | M0297L | |
| Sacharoza | TCI TCI-S0111-500G | ||
| Trehaloza Dihydrat | Sigma-Aldrich | SIA-90210-50G | |
| Roztwór chlorowodorku trizmy, 1M, pH 7,4 | Sigma-Aldrich | T2194-100ML | |
| Zestaw podstawowy TwistAmp | TwistDx | TABAS03KIT | |
| Sprzęt | |||
| BluPAD Podwójny transiluminator LED światła niebieskiego/białego | Bio-Helix | BP001CU | |
| Sucha kąpiel Podwójny blok | ELITE | 4-2-EL-02-220 | Model: EL-02 |
| Mikropłytka fluorescencyjna czytnik | Tecan | 30050303 | Model: Liofilizator Infinite 200 Pro |
| LABCONCO | 794001030 | FreeZone Triad Liofilizator stołowy | |
| Microplate 384-well | Greiner | GDE0784076 | F-Bottom, mała objętość, Hibase, Med. Wiążące, czarne |
| Termocykler czasu rzeczywistego (CFX Connect Real-Time PCR System) | Bio-Rad | 185-5201 | Model: Moduł |
| optyki CFX ConnectOligonukleotyd | |||
| s-gen forward RPA starter IDT | GAAATTAATACGACTCAC TATAGGGAGGTTTCAAAC TTTACTTGCTTTACATAGA | ||
| s-gen reverse RPA primer | IDT | TCCTAGGTTGAAGA TAACCCACATAATAAG | |
| n-gene forward RPA primer | IDT | GAAATTAATACGACTC ACTATAGGAACTTCTC CTGCTAGAATGGCTG | |
| n-odwrócony starter RPA | genu IDT | CAGACATTTTGCTCTC AAGCTGGTTCAATC | |
| LwaCas13a-crRNA dla genu s | Synthego | GAUUUAGACUACCCCAAAAAC GAAGGGGACUAAAACGCA CCAGCUGUCCAACCUGAAGAAG | |
| LwaCas13a-crRNA dla genu n | Synthego | GAUUUAGACUACCAAAAACG AAGGGGACUAAAAAAAGCAAG AGCAGCAUCACCGCCAUUGC | |
| FAM-polyU-IABkFQ reporter | IDT | 56-FAM/rUrUrUrUrUrU/3IABkFQ | |
| O-hannah_cytb_F Podkład RPA | IDT | GAAATTAATACGACTCACTA TAGGGTACGGATGAACCATA CAAAACCTTCACGCAATCG | |
| O-hannah_cytb_R Podkład RPA | IDT | AAGATCCATAGTAGATTC CTCGTGGATGTGGATA | |
| synT7crRNA13a_ O_hannah | IDT | GCGCATCCATATTCTTCAT CTGCATTTAGTTTTAGTCC CCTTCGTTTTTGGGGTA GTCTAAATCCCCTATAGT GAGTCGTATTAATTTC |
Bibliografia
- Gootenberg, J. S., et al. Nucleic acid detection with CRISPR-Cas13a/C2c2. Science. 356 (6336), 438-442 (2017).
- Kaminski, M. M., Abudayyeh, O. O., Gootenberg, J. S., Zhang, F., Collins, J. J. CRISPR-based diagnostics. Nat Biomed Eng. 5 (7), 643-656 (2021).
- Makarova, K. S., Koonin, E. V. Annotation and classification of CRISPR-Cas systems. Methods Mol Biol. (1311), 47-75 (2015).
- Chen, J. S., et al. CRISPR-Cas12a target binding unleashes indiscriminate single-stranded DNase activity. Science. 360 (6387), 436-439 (2018).
- Arizti-Sanz, J., et al. Simplified Cas13-based assays for the fast identification of SARS-CoV-2 and its variants. Nat Biomed Eng. 6 (8), 932-943 (2022).
- Broughton, J. P., et al. CRISPR-Cas12-based detection of SARS-CoV-2. Nat Biotechnol. 38 (7), 870-874 (2020).
- Patchsung, M., et al. A multiplexed Cas13-based assay with point-of-care attributes for simultaneous COVID-19 diagnosis and variant surveillance. CRISPR J. 6 (2), 99-115 (2023).
- Patchsung, M., et al. Clinical validation of a Cas13-based assay for the detection of SARS-CoV-2 RNA. Nat Biomed Eng. 4 (12), 1140-1149 (2020).
- Gootenberg, J. S., et al. Multiplexed and portable nucleic acid detection platform with Cas13, Cas12a, and Csm6. Science. 360 (6387), 439-444 (2018).
- Lee, R. A., et al. Ultrasensitive CRISPR-based diagnostic for field-applicable detection of Plasmodium species in symptomatic and asymptomatic malaria. Proc Natl Acad Sci U S A. 117 (41), 25722-25731 (2020).
- Myhrvold, C., et al. Field-deployable viral diagnostics using CRISPR-Cas13. Science. 360 (6387), 444-448 (2018).
- Wu, H., et al. Versatile detection with CRISPR/Cas system from applications to challenges. Trends Analyt Chem. 135, 116150(2021).
- Yao, R., et al. CRISPR-Cas13a-based detection for bovine viral diarrhea virus. Front Vet Sci. 8, 603919(2021).
- Kellner, M. J., Koob, J. G., Gootenberg, J. S., Abudayyeh, O. O., Zhang, F. SHERLOCK: nucleic acid detection with CRISPR nucleases. Nat Protoc. 14 (10), 2986-3012 (2019).
- Selvam, K., et al. RT-LAMP CRISPR-Cas12/13-based SARS-CoV-2 detection methods. Diagnostics (Basel). 11 (9), 1646(2021).
- Carter, C., Akrami, K., Hall, D., Smith, D., Aronoff-Spencer, E. Lyophilized visually readable loop-mediated isothermal reverse transcriptase nucleic acid amplification test for detection Ebola Zaire RNA. J Virol Methods. 244, 32-38 (2017).
- Bhardwaj, P., Kant, R., Behera, S. P., Dwivedi, G. R., Singh, R. Next-generation diagnostic with CRISPR/Cas: Beyond nucleic acid detection. Int J Mol Sci. 23 (11), 6052(2022).
- Twistamp. Twistamp® assay design manual. , (2023).
- Qian, J., et al. An enhanced isothermal amplification assay for viral detection. Nat Commun. 11 (1), 5920(2020).
- Ghouneimy, A., Mahas, A., Marsic, T., Aman, R., Mahfouz, M. CRISPR-based diagnostics: Challenges and toward point-of-care applications. ACSSynth Biol. 12 (1), 1-16 (2023).
- Jones, K. L., Drane, D., Gowans, E. J. Long-term storage of DNA-free RNA for use in vaccine studies. Biotechniques. 43 (5), 675-681 (2007).
- Fang, X., et al. Real-time monitoring of strand-displacement DNA amplification by a contactless electrochemical microsystem using interdigitated electrodes. Lab Chip. 12 (17), 3190-3196 (2012).
- Mok, E., Wee, E., Wang, Y., Trau, M. Comprehensive evaluation of molecular enhancers of the isothermal exponential amplification reaction. Sci Rep. 6 (1), 37837(2016).
- Wan, J., et al. Development of a test kit for visual loop-mediated isothermal amplification of Salmonella in spiked ready-to-eat fruits and vegetables. J Microbiol Methods. 169, 105830(2020).
- Curti, L. A., et al. Evaluation of a lyophilized CRISPR-Cas12 assay for a ensitive, specific, and rapid detection of SARS-CoV-2. Viruses. 13 (3), 420(2021).
- Joung, J., et al. Detection of SARS-CoV-2 with SHERLOCK one-pot testing. N Engl J Med. 383 (15), 1492-1494 (2020).
Przedruki i uprawnienia
