Protokół łączy technologię organoidów jelitowych człowieka z analizą transkryptomiczną pojedynczej komórki, aby zapewnić znaczący wgląd w wcześniej niezbadaną biologię jelit.
Artykuł metodologiczny
Wykorzystanie organoidów jelitowych człowieka do zrozumienia nabłonka jelita cienkiego na poziomie transkrypcji pojedynczej komórki
W tym artykule
Podsumowanie
Streszczenie
Transkryptomika pojedynczych komórek zrewolucjonizowała nasze rozumienie biologii komórki ludzkiego ciała. Najnowocześniejsze hodowle organoidów ludzkiego jelita cienkiego zapewniają systemy modelowe ex vivo, które wypełniają lukę między modelami zwierzęcymi a badaniami klinicznymi. Zastosowanie transkryptomiki pojedynczych komórek do modeli ludzkich organoidów jelitowych (HIO) ujawnia wcześniej nierozpoznaną biologię, biochemię i fizjologię przewodu pokarmowego. Zaawansowane platformy transkryptomiki pojedynczych komórek wykorzystują partycjonowanie mikroprzepływowe i kodowanie kreskowe do generowania bibliotek cDNA. Te oznaczone kodami kreskowymi cDNA mogą być łatwo sekwencjonowane przez platformy sekwencjonowania nowej generacji i wykorzystywane przez różne narzędzia wizualizacyjne do generowania map. W tym miejscu opisujemy metody hodowli i różnicowania ludzkich HIO w jelicie cienkim w różnych formatach i procedurach izolowania żywotnych komórek z tych formatów, które są odpowiednie do stosowania na platformach profilowania transkrypcji pojedynczych komórek. Te protokoły i procedury ułatwiają wykorzystanie HIO w jelicie cienkim w celu lepszego zrozumienia odpowiedzi komórkowej ludzkiego nabłonka jelitowego na poziomie transkrypcji w kontekście wielu różnych środowisk.
Wprowadzenie
Nabłonek jelita cienkiego ma dwie odrębne strefy: kryptę, w której znajduje się komórka macierzysta jelita (ISC) i kosmki, które składają się ze zróżnicowanych komórek linii wydzielniczej i absorpcyjnej. Dodatkową złożonością jest regionalna specyfika nabłonka, która zapewnia unikalne właściwości funkcjonalne między regionami jelita cienkiego. Pionierskie prace pozwoliły stworzyć warunki hodowli, w których zarówno krypta ludzkiego jelita cienkiego, jak i strefy kosmków mogą być generowane ex vivo z tkanek chirurgicznych lub biopsji tkanek1. Kultury te wypełniają lukę między badaniami na zwierzętach a próbami klinicznymi i ujawniają wcześniej nierozpoznaną biologię komórki, biochemię i fizjologię przewodu pokarmowego. HIO są rozmnażane jako sferyczne struktury 3D przy użyciu pożywki z czynnikami wzrostu, które promują żywotność komórek macierzystych i zewnątrzkomórkowe matryce podporowe. Warunki te skutkują powstaniem przypominającego kryptę modelu HIO, który składa się głównie z komórek progenitorowych i komórek macierzystych. Usunięcie czynników wzrostu sprzyja różnicowaniu ISC (model podobny do kosmków) i wytwarzaniu dojrzałych komórek nabłonka jelitowego (kubkowego, enteroendokrynnego, kępkowego, enterocytowego) w odpowiednich proporcjach wraz z proliferacją i różnicowaniem komórek, polaryzacją, integralnością bariery, specyficznymi cechami regionu i odpowiednimi reakcjami fizjologicznymi2. Kultury HIO są stabilne genetycznie i mogą być rozmnażane w nieskończoność w stanie przypominającym kryptę. Łatwy dostęp do powierzchni wierzchołkowej tych kultur zapewniają warunki hodowli, które umożliwiają wzrost w formacie jednowarstwowym3. HIO pozwalają również na uwzględnienie w analizach biologicznych zmienności osobniczej gospodarza, takiej jak genetyka, wiek, płeć, pochodzenie etniczne i status choroby. Narzędzia analityczne i oceny funkcjonalnej są identyczne z tymi stosowanymi w podejściach skoncentrowanych na transformowanych liniach komórkowych i obejmują różne techniki molekularne, takie jak cytometria przepływowa, mikroskopia, transkryptomika, proteomika i metabolomika.
Transkryptomika pojedynczej komórki rewolucjonizuje nasze rozumienie biologii i fizjologii jelita cienkiego, dostarczając wglądu w indywidualny wkład każdego typu komórki w proces biologiczny. Pionierskie prace z wykorzystaniem tej technologii dostarczyły krajobrazu typów komórek obecnych w rodzimym jelicie ludzkim 4,5,6. Platformy profilowania transkrypcji pojedynczych komórek umożliwiają eksplorację krajobrazu transkrypcyjnego poszczególnych komórek, dzięki czemu heterogeniczność komórek może wysunąć się na pierwszy plan badań naukowych. W niektórych platformach profilowania transkrypcji pojedynczej komórki partycjonowanie mikroprzepływowe i kodowanie kreskowe są wykorzystywane do generowania bibliotek cDNA z komórkowych poliadenylowanych mRNA uzyskanych z maksymalnie 10 000 komórek na próbkę. Na tej platformie kropelki zawierające pojedyncze komórki, oligonukleotydy z kodem kreskowym, odczynniki odwrotnej transkrypcji i olej tworzą pęcherzyk reakcyjny, w wyniku którego wszystkie cDNA z jednej komórki mają ten sam kod kreskowy. Oznaczone kodami kreskowymi cDNA można następnie efektywnie sekwencjonować za pomocą sekwencjonowania nowej generacji. Wygenerowane dane mogą być przetwarzane za pomocą oprogramowania i narzędzi do wizualizacji, które przekształcają sekwencje kodów kreskowych w mapy wizualizacyjne i profile transkrypcyjne pojedynczych komórek. Populacje komórek można zidentyfikować za pomocą publicznie dostępnych baz danych ludzkiego nabłonka jelita cienkiego4,5,6. Chociaż w wielu badaniach wykorzystano tę platformę do badania mysich organoidów jelitowych na poziomie pojedynczej komórki, analiza odpowiedzi transkrypcyjnych pojedynczych komórek HIO pozostała w tyle7,8,9,10,11,12.
Tutaj udostępniamy przewodnik krok po kroku, jak izolować żywe komórki z HIO jelita cienkiego do przetwarzania na platformach profilowania transkrypcji pojedynczej komórki (Rysunek 1). Zapewniamy wytyczne dotyczące hodowli i różnicowania wraz z komponentami pożywki, które zostały zoptymalizowane pod kątem różnicowania nabłonka. Przedstawiamy metody odzyskiwania komórek dla trzech różnych formatów hodowli: hodowli trójwymiarowych (3D) i jednowarstwowych na plastiku lub na membranowych wkładkach do hodowli komórkowych. Dostarczamy dane dotyczące grupowania próbek uzyskane za pomocą oprogramowania typu open source w celu uzyskania genów o zróżnicowanej ekspresji w każdym klastrze.
Protokół
Użyte tutaj linie organoidowe zostały uzyskane z Texas Medical Center Digestive Disease Center GEMS Core. Krótko mówiąc, aby wstępnie ustalić linie organoidowe, próbki tkanek dawcy przemyto i trawiono enzymatycznie w celu uwolnienia krypt jelitowych. Krypty osadzano w błonie podstawnej i hodowano w pożywce. Instytucjonalna Komisja Rewizyjna w Baylor College of Medicine zatwierdziła protokół badania w celu uzyskania próbek tkanek, z których ustalono linie organoidów, oraz uzyskano świadomą zgodę wszystkich dawców na utworzenie linii organoidów z oddanej tkanki.
1. Przejście HIO 3D w celu rozbudowy dla zróżnicowania
- Usunąć i wyrzucić pożywkę z dołków organoidów wyhodowanych na płytkach 24-dołkowych (wokół stałej błony podstawnej) za pomocą pipety P1000. Dodaj 300 μl 0,05% trypsyny-EDTA do studzienki i mechanicznie rozdrobnij organoidy, pipetując pipetą P1000 w górę iw dół 5x.
- Inkubować płytkę w temperaturze 37 °C przez 4 minuty. Do każdej studzienki dodać 500 μl kompletnej pożywki bez czynników wzrostu (pożywka CMGF) z 10% FBS (tabela 1). Użyj pipety P1000 i pipety z pożywką CMGF i mieszaniną HIO, 10x tam iz powrotem w studzience. Przenieść całą objętość do probówki o pojemności 15 ml. Połączyć przejście z wielu studzienek do tej samej probówki o pojemności 15 ml. Nie łącz więcej niż 10 dołków na probówkę.
- Wirować komórki w temperaturze 4 °C za pomocą wirówki z wirnikiem obrotowym o sile 100 x g przez 5 minut. Usunąć całe podłoże, trzymając osad na dnie probówki. Trzymaj probówkę na lodzie.
- Oblicz ilość membrany podstawnej potrzebnej do liczby platerowanych HIO i ponownie zawieś granulat HIO w 30 μl / studzienkę membrany podstawnej za pomocą zimnych końcówek pipet P200. Odpipetować mieszaninę membrany podstawnej HIO w postaci kropli do środka płytki 24-dołkowej za pomocą zimnych końcówek pipet P200.
- Przenieść płytkę do inkubatora o temperaturze 37 °C. Pozwól błonie podstawnej zestalić się przez 5-10 minut, a następnie dodaj 500 μl kompletnej pożywki o temperaturze pokojowej zawierającej WNT, R-spondynę, nogginę, EGF i inhibitor ROCK (WRNE+Y; Tabela 1) do każdej studzienki i hodowli w inkubatorze o temperaturze 37 °C. Odświeżaj kulturę za pomocą WRNE+Y co drugi dzień przez 7 dni.
UWAGA: Zdrowy HIO będzie miał torbielowaty kształt z błyszczącym, pączkującym nabłonkiem (Rysunek 2). Nie można uwidocznić komórek w środku torbieli. Niezdrowy HIO będzie wyglądał matowo i będzie miał gruby nabłonek z solidnym środkiem. Najważniejszą cechą jest błyszczący wygląd.
2. Zróżnicowanie HIO: format 3D
- Użyj jednego dołka 3D HIO na 3 dołki HIO zróżnicowanych 3D 1 tydzień po hodowli.
- Usuń media z dołków. Zdyspersjonować membranę podstawną i HIO za pomocą pipety P1000 i dodać zimne 500 μl CMGF- na studzienkę i pipetować w górę iw dół co najmniej 5 razy. Odkręcać HIO w temperaturze 4 °C za pomocą wirówki z wirnikiem obrotowym o stężeniu 100 x g przez 5 minut. Usuń całe podłoże, trzymając granulki na dnie tuby.
- Dodać 30 μl membrany podstawnej na studzienkę platerowanych HIO. Odpipetować 30 μl kropli membrany podstawnej za pomocą HIO do dołka na 24-dołkowej płytce. Inkubować w temperaturze 37 °C przez 10 minut. Dodać 500 μl pożywki WRNE+Y/Diff (50/50).
- Po 24 godzinach należy zmienić pożywkę na pożywkę różnicującą na dodatkowe 3 dni, odświeżając pożywkę co drugi dzień. Przygotuj 3 studzienki na próbkę do puli, aby zmniejszyć zmienność techniczną.
3. Zróżnicowanie HIO: Format jednowarstwowy
- Pokryj wkładki lub studzienki z hodowli komórek błonowych 96-dołkowej płytki 100 μl/studzienkę ludzkiego kolagenu łożyskowego IV (1 mg / ml w 100 mM kwasie octowym) rozcieńczonego w zimnym H2O (1:30). Inkubować w temperaturze 37 °C przez minimum 1,5 godziny lub maksymalnie przez noc. W przypadku wkładki do hodowli komórek błonowych dodaj sterylny H2O w przestrzeni płytki, aby nawilżyć płytkę; w przypadku płytki 96-dołkowej dodać sterylny H2O do nieużywanych studzienek.
- Zebrać 3D HIOs hodowane w WRNE przez 7 dni, usuwając pożywkę i odzyskując błonę podstawną i komórki, dodając 500 μL/studzienkę zimnego 0,5 mM EDTA (0,5 M EDTA rozcieńczonego 1:1000 w sterylnym PBS). Za pomocą pipety P1000 pipetować organoidy i roztwór w górę iw dół 5x, a następnie przenieść do probówki do mikrowirówki o pojemności 15 ml. Nie należy gromadzić więcej niż 10 dołków organoidów w probówce. Wirować przez 5 minut przy 300 x g w obrotowym wirniku kubełkowym w temperaturze 4 °C.
UWAGA: Aby przygotować 3 dołki na 96-dołkowej płytce, użyj 1 dołka 3D HIOs. Aby przygotować 1 wkładkę do hodowli komórek błonowych, użyj 1 dołka HIO 3D (gęstość wysiewu pojedynczych komórek wynosi około 1-2 x 10⁵ komórek / dołek dla płytki 96-dołkowej, 2,5-3 x 10⁵ komórek / studzienka dla wkładki do hodowli komórek błonowych). - Usuń 500 μl pożywki, pozostawiając osad na dnie probówki. Dysocjację HIO należy dodać 500 μl 0,05% trypsyny/0,5 mM EDTA i inkubować przez 4-5 minut w temperaturze 37 °C. Energicznie pipetować w górę iw dół przez ~50x za pomocą P1000. Należy unikać tworzenia pęcherzyków poprzez pipetowanie o bok probówki.
- Dezaktywuj trypsynę, dodając 1 ml CMGF- zawierającego 10% FBS. Odfiltruj duże kępy niestrawionych komórek, zwilżając sitko o wielkości 40 μm 1 ml CMGF- zawierającego 10% FBS i dodając komórki do górnej części sitka komórkowego. Użyj grawitacji, aby umożliwić komórkom przejście przez sitko i wyrzuć sitko zawierające grudki komórek.
- Zebrać komórki przez odwirowanie przez 5 minut przy 400 x g w wahadłowym wirniku kubełkowym w temperaturze pokojowej.
- Usuń płyn z pokrytej kolagenem wkładki do hodowli komórek błonowych lub z płytki 96-dołkowej. Zawiesić osad HIO w 100 μl/basenik WRNE zawierającym 10 μM Y-27632, a następnie pipetować do górnej komory wkładki do hodowli komórek błonowych lub do płytki 96-dołkowej. W przypadku wkładu do hodowli komórek błonowych dodać 600 μl WRNE zawierającego 10 μM Y-27632 do dolnej komory studzienki.
- Po 24 godzinach usunąć pożywkę zarówno z górnej, jak i dolnej części wkładki do hodowli komórek błonowych lub z płytki 96-dołkowej i zastąpić pożywką różnicującą na 5 dni. Przygotuj 3 studzienki na próbkę do puli, aby zmniejszyć zmienność techniczną.
4. Przygotowanie zawiesin pojedynczych komórek ze zróżnicowanych HIO 3D do transkryptomiki pojedynczej komórki
- Umieścić odczynnik enzymatycznego do wytrawiania komórek w temperaturze 37 °C w inkubatorze CO2 w celu rozmrożenia i ogrzania 30 minut przed rozpoczęciem roztwarzania 3D HIO. Sprawdź HIO za pomocą mikroskopu jasnego pola przy 10-krotnym powiększeniu, aby zapewnić zdrowie komórek.
- Usunąć pożywkę z dołków i dodać do nich 500 μl roztworu do odzyskiwania zimnych komórek. Kilkakrotnie przesuń pipetę w górę i w dół, aby uwolnić komórki z błony podstawnej za pomocą pipety P1000 i standardowych końcówek do pipet. Przenieść zawiesinę komórek do probówki mikrowirówkowej o pojemności 1,5 ml.
UWAGA: Zastosowanie studzienek replikowanych zapewnia odpowiednią liczbę komórek i zmniejsza zmienność między studniami. Nie łącz studzienek przed krokiem 4.7 poniżej. - Inkubować probówki z komórkami na lodzie przez 10 minut, pipetując w górę i w dół co 5 minut. Zebrać komórki przez odwirowanie przez 3 minuty przy 400 x g w temperaturze 4 °C.
- Usuń płyn z probówki, uważając, aby nie naruszyć osadu komórkowego. Ponownie zawiesić komórki w 500 μl wstępnie podgrzanego enzymatycznego odczynnika do trawienia komórek. Pipetuj w górę i w dół za pomocą P1000 co najmniej 10x.
- Inkubować HIO przez 30 minut w temperaturze 37 °C w inkubatorze CO2 . Co 10 minut pipetować całą objętość 10 razy za pomocą pipety P1000, aby pomóc w dysocjacji komórek. Należy unikać wprowadzania pęcherzyków powietrza do zawiesiny komórek.
- Granulować komórki przez 3 minuty w temperaturze 400 x g w temperaturze 4 °C. Usunąć supernatant, ponownie zawiesić komórki w 1 ml pożywki różnicującej i przechowywać na lodzie.
UWAGA: Od tego momentu HIO muszą być zawsze trzymane na lodzie. - Pipetuj komórki 50 razy w górę i w dół szybko za pomocą P1000, aby upewnić się, że HIO są dysocjowane na pojedyncze komórki. Uważaj, aby na tym etapie nie wprowadzać pęcherzyków powietrza, ponieważ spowoduje to utratę komórek.
- Przefiltruj całą objętość przez sitko z końcówką o średnicy 70 μm za pomocą końcówki do pipety P1000. Użyj probówki mikrowirówkowej o pojemności 1,5 ml, aby zebrać eluat.
UWAGA: Końcówka filtra nie zostanie zatkana, jeśli czas trawienia jest wystarczający. Użyj wielu końcówek filtra, jeśli filtr zostanie zatkany; Nie przepuszczaj objętości na siłę przez filtr. - Powtórz krok 4.8 z sitkiem do końcówek o średnicy 40 μm. Próbki należy przechowywać na lodzie.
- Policz żywotne pojedyncze komórki w komorze zliczania komórek przy użyciu wykluczenia błękitu trypanowego, dodając 5 μl 0,4% błękitu trypanowego do 5 μl zawiesiny komórek. W razie potrzeby rozcieńczyć próbkę do 1000 komórek/μl. Jeśli gęstość komórek jest mniejsza niż 1000 komórek/μl, osadzać komórki przez 2 minuty w temperaturze 400 x g w temperaturze 4 °C, usunąć oryginalną pożywkę i ponownie zawiesić w pożywce do hodowli komórkowych. Ten protokół zwykle daje 5 x 10⁵-1 x 10⁶ komórek.
UWAGA: Przygotowanie wysokiej jakości zawiesiny (90% żywotnych i 90% pojedynczych komórek) jest niezbędne do uzyskania wysokiej jakości danych jednokomórkowych. Doświadczenie wskazuje jednak, że żywotność na poziomie zaledwie 75% może być akceptowana w przypadkach, gdy leczenie, takie jak infekcja lub stosowanie małych cząsteczek, wpływa na żywotność. - Przygotowanie bibliotek DNA dla platform profilowania transkrypcji pojedynczej komórki zgodnie z protokołami producenta. Przetwarzaj dane zgodnie z protokołami najlepszych praktyk w zakresie analizy danych scRNAseq13,14.
5. Przygotowanie zawiesin pojedynczych komórek z HIO zróżnicowanych na wkładce do hodowli komórek błonowych
- Umieścić odczynnik do enzymatycznego wytrawiania komórek w temperaturze 37 °C w inkubatorze CO2 w celu rozmrożenia i ogrzania 30 minut przed rozpoczęciem trawienia przez wkładkę do hodowli komórkowej błonowej HIO. Podzielić wstępnie podgrzany enzymatyczny odczynnik do trawienia komórek na 200 μl porcji w 1,5 ml probówkach do mikrowirówek, po 1 probówce na wkładkę do hodowli komórek membranowych. Probówki należy przechowywać w inkubatorze w temperaturze 37 °C do czasu, aż będą gotowe do użycia.
- Przygotować PBS-EDTA, dodając 5 μl 0,5 M EDTA do 5 ml PBS. Podaniec 500 μl PBS-EDTA na 24-dołkową płytkę, 1 dołek na wkładkę do hodowli komórek błonowych.
- Przemyć komórki PBS-EDTA: przenieść wkładki do hodowli komórek błonowych z dołków zawierających pożywki wzrostowe do studzienek zawierających PBS-EDTA. Usunąć pożywkę do hodowli komórkowych od strony wierzchołkowej i zastąpić ją 100 μl PBS-EDTA. Uważaj, aby nie naruszyć warstwy komórkowej.
- Natychmiast wyrzuć PBS-EDTA dodany do wierzchołkowej strony wkładek do hodowli komórek błonowych. Wyjmij wkładkę do hodowli komórek błonowych ze studzienki, osusz ją, delikatnie dotykając krawędzią ręcznika papierowego, a następnie odwróć ją na blacie. Użyj ostrego ostrza skalpela, aby usunąć membranę z wkładu, przecinając wokół wewnętrznego obwodu membrany. Pracuj szybko, aby zapobiec wysuszeniu.
- Za pomocą kleszczyków przenieś membranę do wstępnie podgrzanej probówki mikrowirówkowej o pojemności 1,5 ml wypełnionej enzymatycznym odczynnikiem do trawienia komórek i upewnij się, że membrana jest całkowicie zanurzona. Powtórz tę czynność dla wszystkich dodatkowych wkładek do hodowli komórek błonowych.
UWAGA: Zwiększenie objętości odczynnika enzymatycznego do trawienia komórek do 500 μl może pomóc w dysocjacji gęstych monowarstw. - Oddzielić komórki poprzez inkubację probówek z membranami w temperaturze 37 °C w inkubatorze CO2 . Mieszać, delikatnie pipetując całą objętość 5x pipetą o pojemności 200 μl co 10 minut, w sumie przez 30 minut. Unikaj pęcherzyków i zasysania membrany, aby zachować żywotność.
- Przenoś małą porcję komórek (1-2 μl) na szkiełko podstawowe co 10 minut, aby ocenić dysocjację poprzez jakościową ocenę procentu pojedynczych komórek. Z dodatkowym pipetowaniem może upłynąć do 50 minut, aby uzyskać 80%-90% pojedynczych komórek, w zależności od typu HIO. Delikatnie zeskrob membranę końcówką pipety podczas etapów mieszania, aby zachęcić do dysocjacji, szczególnie w przypadku komórek trudnych do dysocjacji, jednak skrobanie może wpłynąć na żywotność.
- Połączyć 3 dołki replikacji na warunki w jednej probówce mikrowirówkowej o pojemności 1,5 ml (łącznie 600 μl). Dodać 400 μl pożywki do hodowli komórkowych (diff) + 10 μM ROCKi (1 ml objętości całkowitej). Delikatnie wymieszać, pipetując.
UWAGA: Zastosowanie studzienek replikowanych zapewnia odpowiednią liczbę komórek i zmniejsza zmienność między studniami. Na tym etapie należy połączyć studnie. - Przefiltruj całą objętość przez sitko z końcówką o pojemności 70 μm za pomocą końcówki do pipety o pojemności 1 ml. Zebrać przepływ do świeżej probówki do mikrowirówki o pojemności 1,5 ml.
UWAGA: Końcówka filtra nie zostanie zatkana, jeśli czas trawienia jest wystarczający. Użyj wielu końcówek filtra, jeśli filtr zostanie zatkany; Nie przepuszczaj głośności na siłę. - Powtórz krok 5.9 z sitkiem do końcówek o średnicy 40 μm. Próbki należy przechowywać na lodzie.
- Policz żywotne pojedyncze komórki w komorze zliczania komórek przy użyciu wykluczenia błękitu trypanowego, dodając 5 μl 0,4% błękitu trypanowego do 5 μl zawiesiny komórek. Rozcieńczyć próbkę w razie potrzeby do 1000 komórek/μl. Jeśli gęstość komórek jest mniejsza niż 1000 komórek/μl, wirować przez 2 minuty przy 400 x g w temperaturze 4 °C, aby zagnieździć komórki, usunąć oryginalne podłoże i ponownie zawiesić w WRNE+Y przy żądanej gęstości komórek. Ten protokół zwykle daje 4 x 10⁵ - 6 x 10⁵ komórek.
UWAGA: Przygotowanie wysokiej jakości zawiesiny (90% żywotnych i 90% pojedynczych komórek) jest niezbędne do uzyskania wysokiej jakości danych jednokomórkowych. Doświadczenie wskazuje jednak, że żywotność na poziomie zaledwie 75% może być akceptowana w przypadkach, gdy leczenie, takie jak infekcja lub stosowanie małych cząsteczek, wpływa na żywotność. - Przygotowanie bibliotek DNA dla platform profilowania transkrypcji pojedynczej komórki zgodnie z protokołami producenta. Przetwarzaj dane zgodnie z protokołami najlepszych praktyk w zakresie analizy danych scRNAseq13,14.
6. Przygotowanie zawiesin pojedynczych komórek z HIO zróżnicowanych jako 96-dołkowe monowarstwy
- Umieścić odczynnik do enzymatycznego wytrawiania komórek w temperaturze 37 °C w inkubatorze CO2 do rozmrożenia i ogrzania 30 minut przed rozpoczęciem jednowarstwowej mineralizacji HIO.
- Przygotować PBS-EDTA, dodając 5 μl 0,5 M EDTA do 5 ml PBS. Wyrzucić pożywkę do hodowli komórkowych z płytki 96-dołkowej i zastąpić ją 100 μl PBS-EDTA. Uważaj, aby nie naruszyć warstwy komórkowej.
- Dysocjacja komórek: Wyrzuć PBS-EDTA i dodaj 100 μl ciepłego odczynnika enzymatycznego do trawienia komórek do każdej studzienki. Umieścić płytkę w temperaturze 37 °C w inkubatorze o stężeniu 5% CO2 i mieszać, delikatnie pipetując całą objętość 5 razy końcówką do pipety o pojemności 200 μl co 10 minut przez 20-30 minut. Unikaj pęcherzyków, aby zachować żywotność.
UWAGA: Zwiększenie objętości odczynnika enzymatycznego do trawienia komórek do 500 μl może pomóc w dysocjacji gęstych monowarstw. - Przenoś małą porcję komórek (1-2 μl) do szkiełka co 10 minut, aby ocenić dysocjację. Osiągnięcie 80%-90% pojedynczych komórek może zająć do 50 minut, w zależności od typu HIO. Delikatnie zeskrobać płytkę końcówką pipety podczas etapów mieszania, aby zachęcić do dysocjacji, szczególnie w przypadku komórek trudnych do dysocjacji; Jednak skrobanie może mieć wpływ na rentowność.
- Połącz 3 powtórzone studzienki na warunki w jednej probówce mikrowirówkowej o pojemności 1,5 ml (łącznie 300 μl). Dodać 700 μl pożywki do hodowli komórkowych (diff) + 10 uM ROCKi (1 ml całkowitej objętości). Delikatnie wymieszać, pipetując.
UWAGA: Zastosowanie powtórzonych dołków hodowlanych zapewnia odpowiednią liczbę komórek i zmniejsza zmienność między studniami. - Przefiltruj całą objętość przez sitko z końcówką o pojemności 70 μm za pomocą końcówki do pipety o pojemności 1 ml. Zebrać przepływ do świeżej probówki do mikrowirówki o pojemności 1,5 ml.
UWAGA: Końcówka filtra nie zostanie zatkana, jeśli czas trawienia odczynnikiem enzymatycznego trawienia komórek jest wystarczający. Użyj wielu końcówek filtra, jeśli filtr zostanie zatkany; Nie przepuszczaj głośności na siłę. - Powtórz krok 6.6 z sitkiem do końcówek o średnicy 40 μm. Próbki należy przechowywać na lodzie.
- Policz żywotne pojedyncze komórki w komorze zliczania komórek przy użyciu wykluczenia błękitu trypanowego, dodając 5 μl 0,4% błękitu trypanowego do 5 μl zawiesiny komórek. Rozcieńczyć w razie potrzeby do 1000 komórek/μL. Jeśli gęstość komórek jest mniejsza niż 1000 komórek/μl, wirować przez 2 minuty w temperaturze 400 x g 4 °C, aby osadzać komórki, usunąć oryginalną pożywkę i ponownie zawiesić w pożywce do hodowli komórkowych + ROCKi przy żądanej gęstości komórek. Ten protokół zwykle daje 2 x 10⁵ - 6 x 10⁵ komórek.
UWAGA: Przygotowanie wysokiej jakości zawiesiny (90% żywotnych i 90% pojedynczych komórek) jest niezbędne do uzyskania wysokiej jakości danych jednokomórkowych. Doświadczenie wskazuje jednak, że żywotność na poziomie zaledwie 75% może być akceptowana w przypadkach, gdy leczenie, takie jak infekcja lub stosowanie małych cząsteczek, wpływa na żywotność. - Przygotowanie bibliotek DNA zgodnie z protokołami producenta platformy do profilowania transkrypcji pojedynczej komórki. Przetwarzaj dane zgodnie z protokołami najlepszych praktyk w zakresie analizy danych scRNAseq13,14.
Wyniki
Zawiesiny pojedynczych komórek zebrano z 2-3 studzienek wkładki do hodowli komórek błonowych, monowarstwy oraz trójwymiarowych HIO, aby zapewnić odpowiednią liczbę komórek i zredukować zmienność między studzienkami. Biblioteki pojedynczych komórek przygotowano przy użyciu odczynników specyficznych dla platformy do profilowania transkrypcyjnego pojedynczych komórek, a następnie sekwencjonowano metodą odczytów par końcowych (paired end reads) na platformie sekwencjonowania nowej generacji, uzyskując 30 000 odczytów/komórkę. Odczyty zmapowano, przeliczono i przeanalizowano za pomocą narzędzi analitycznych dla genomiki pojedynczych komórek. Z analizy wykluczono komórki niskiej jakości z zawartością odczytów mitochondrialnych powyżej 20% lub liczbą policzonych genów poniżej 200. Aby ocenić jakość komórek, wykreślono liczbę genów, UMIs oraz procent odczytów mitochondrialnych na komórkę (Rysunek 3); komórki wysokiej jakości zawierają około 3500 genów, 15 000 UMIs i 10% odczytów mitochondrialnych. Po filtrowaniu uzyskano od 4000 do 9500 pojedynczych komórek, w zależności od formatu wzrostu HIO. Nienadzorowane grupowanie (unsupervised clustering) oraz redukcja wymiarowości UMAP pozwoliły zidentyfikować odrębne klastry reprezentujące oczekiwane typy komórek, w tym enterocyty chłonne i komórki wydzielnicze (Rysunek 4).

Rycina 1: Zarys etapów protokołu. Schematy przedstawiające główne etapy, od wysiewania HIO w różnych formatach po workflow analizy danych z pojedynczych komórek. Obraz został stworzony przy użyciu Biorender. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
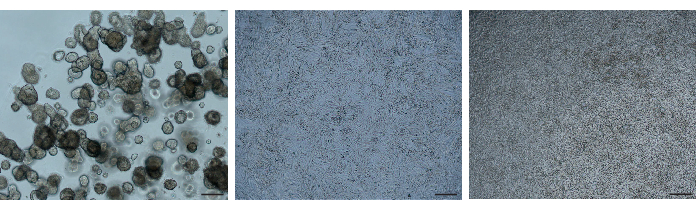
Rycina 2: Obrazy w polu jasnym. HIO gotowe do obróbki obrazowano za pomocą mikroskopu w polu jasnym przy powiększeniu 5X. Po lewej: organoidy 3D; w środku: płytka 96-dołkowa; po prawej: transwell. Paski skali = 200 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
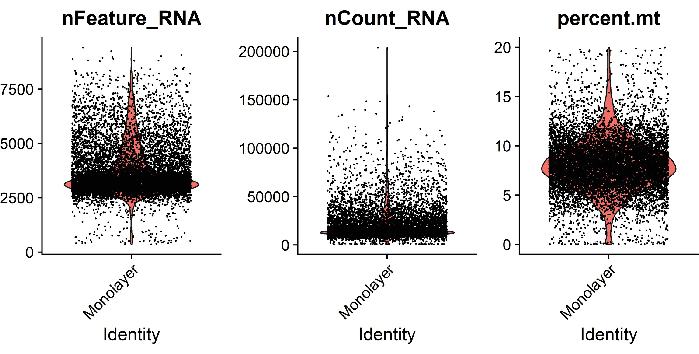
Rysunek 3: Kontrola jakości danych. Przykładowe metryki analizowanych pojedynczych komórek wyizolowanych z HIO jelita czczego hodowanych jako monowarstwy na płytkach 96-dołkowych. Wykresy skrzypcowe przedstawiają liczbę genów (nFeature_RNA), UMIs (nCount_RNA) oraz procent odczytów mitochondrialnych (percent.mt) na komórkę. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
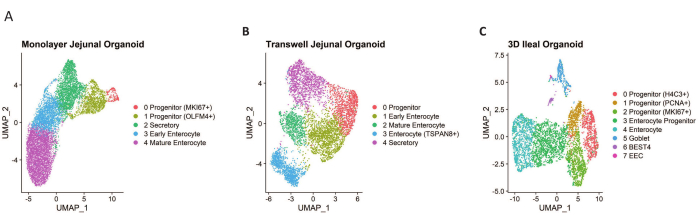
Rysunek 4: Wykresy UMAP analizowanych pojedynczych komórek. (A) Łącznie wyizolowano 9952 pojedyncze komórki z zróżnicowanych HIO jelita czczego hodowanych na płytkach 96-dołkowych. (B) Łącznie wyizolowano 5623 pojedyncze komórki z zróżnicowanych HIO jelita czczego hodowanych na wkładkach do hodowli komórkowych na membranach. (C) Łącznie wyizolowano 4402 pojedyncze komórki z zróżnicowanych 3D HIO jelita krętego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Pożywka wzrostowa WRNE | Pożywka różnicująca | ||
| Składnik | Objętość | Stężenie końcowe | Pożywka WRNE bez kondycjonowanej pożywki L-WRN, nikotynamidu i SB202190 |
| *Y-27632 (5 mM) opcjonalnie | 200 µL | 10 µM | |
| A 83-01 (500 µM) | 100 µL | 500 nM | |
| Advanced DMEM/F12 | 45 mL | ||
| B27 | 2 mL | ||
| EGF (50 µg/mL) | 100 µL | 50 ng/mL | |
| Gastryna (10 µM) | 100 µL | 10 nM | |
| GlutaMax (100X) | 1 mL | ||
| HEPES 1 M | 1 mL | ||
| Kondycjonowana pożywka L-WRN | 50 mL | ~50% | |
| N2 | 1 mL | ||
| N-acetylocysteina (500 mM) | 100 µL | 500 µM | |
| Nikotynamid 1 M | 1 mL | 10 mM | |
| SB202190 (10 mM) | 100 µL | 10 µM | |
| Objętość całkowita | 100 mL | ||
| Pożywka CMGF | |||
| Advanced DMEM/F12 | 500 mL | ||
| Glutamax | 5 mL | 100X | |
| Hepes 1 M | 5 mL |
Tabela 1: Skład poszczególnych stosowanych pożywek.
Dyskusja
Korzystając z platform genomiki pojedynczej komórki, złożone systemy biologiczne, takie jak hodowle HIO pochodzące z tkanek, które modelują nabłonek jelitowy, mogą zostać rozbite w celu uzyskania indywidualnego wkładu komórkowego w ogólną odpowiedź biologiczną 4,5,6. Można również zidentyfikować i zbadać heterogeniczność komórkową i rzadkie populacje komórek. Wejście komórkowe musi zostać zoptymalizowane, aby zmaksymalizować wydajność przy użyciu platform opartych na transkryptomii pojedynczej komórki. W tym miejscu opisujemy protokoły, które pozwolą uzyskać wysoce żywotne i dobrej jakości zawiesiny pojedynczych komórek, które zwiększą prawdopodobieństwo uzyskania dalszych danych transkryptomicznych wysokiej jakości. Znajomość protokołu ma ogromne znaczenie i zaleca się wykonanie kilku prób przed przystąpieniem do przygotowania biblioteki. Sugeruje się powtarzalne osiągnięcie żywotnych zawiesin pojedynczych komórek przed użyciem komórek do przygotowania biblioteki. Szybkość, z jaką protokół jest wdrażany, ma ogromne znaczenie, ponieważ szybkość jest wprost proporcjonalna do wyników rentowności. Na tej podstawie zaleca się ograniczenie liczby próbek obsługiwanych jednocześnie. Zaleca się nawiązanie kontaktu z jednostką, która przygotuje biblioteki przed zainicjowaniem tych protokołów, w celu uzyskania pomocy w rozwiązywaniu problemów.
Żywotność HIO ma bezpośredni wpływ na bibliotekę DNA wysyłaną do sekwencjonowania. Żywotność komórek HIO zależy od kilku etapów przygotowania zawiesiny pojedynczej komórki, w tym dysocjacji, wirowania,, pipetowania i dokładności zliczania. Celem przygotowania HIO do platformy jest zrównoważenie utrzymania żywotności komórek z jakością próbki. Kluczowe znaczenie dla uzyskania wysokiej jakości danych ma minimalizacja agregatów komórkowych, martwych komórek, niekomórkowych kwasów nukleinowych i biochemicznych inhibitorów odwrotnej transkrypcji. Umierające komórki zwiększają szum kwasów nukleinowych i przyczyniają się do zlepiania się komórek, co prowadzi do awarii danych i platform 7,8,9,10,11,12. Filtrowanie przy użyciu odpowiedniego rozmiaru filtru może pomóc w usuwaniu dużych wartości zagregowanych i poprawie jakości danych.
Należy wziąć pod uwagę kilka czynników, aby zminimalizować śmierć komórek HIO podczas przygotowywania zawiesin pojedynczych komórek. Konieczne jest uzyskanie co najmniej 80% żywotnych komórek, a >90% żywotności jest jeszcze bardziej pożądane. Próbki z dużą liczbą komórek niezdolnych do życia można ulepszyć, stosując strategie usuwania martwych komórek, takie jak mikrogranulki kolumnowe, chociaż wymagają one większej liczby komórek początkowych i większych objętości próbek z powodu strat podczas przenoszenia. HIO są szczególnie wrażliwe na i ulegną śmierci komórki, jeśli zostaną pozostawione zbyt długo w RT w niektórych. Pożywki organoidowe powodują najmniejszą utratę komórek i tworzenie agregatów. Pipetowanie może również wpływać na żywotność HIO podczas dysocjacji. Końcówki z regularnymi otworami mogą ścinać organoidy, pomagając w dysocjacji na zawiesiny pojedynczych komórek; jednak zbyt szybkie pipetowanie za pomocą końcówki o zwykłym otworze może spowodować uszkodzenie ogniw HIO w wyniku działania sił ścinających. Powolne pipetowanie z końcówkami o szerokim otworze minimalizuje naprężenia w ogniwach HIO i znacznie poprawia liczbę żywotnych komórek w dalszej części procesu. Wirowanie, mycie i ponowne zawieszanie to inne czynniki, które mogą wpływać na jakość zawiesin jednokomórkowych HIO. Wirowanie z wahadłowym wiadrem powoduje łagodniejsze granulowanie komórek HIO, co skutkuje mniejszą liczbą martwych komórek przy jednoczesnej minimalizacji utraty komórek. Wreszcie, dokładność zliczania w celu określenia stężenia jest niezbędna, aby zapewnić, że maksymalna liczba komórek dotrze do platformy w celu syntezy bibliotecznej. Dbałość o te szczegóły zaowocuje zminimalizowaniem naprężeń na ogniwach HIO podczas procesu izolacji i zapewni najwyższe prawdopodobieństwo powrotu danych po przetworzeniu.
Chociaż transkryptomika pojedynczych komórek jest potężnym narzędziem do analizy profili biologicznych i odpowiedzi na poziomie pojedynczej komórki 4,5,6, istnieje kilka ograniczeń, które należy wziąć pod uwagę przy stosowaniu tej technologii do analizy kultur organoidów jelitowych człowieka. Po pierwsze, może wystąpić znaczna zmienność transkrypcji ze względu na zmienność techniczną wprowadzoną podczas przygotowywania i sekwencjonowania biblioteki lub ze względu na efekty wsadowe wynikające z przygotowania próbki. Ponadto sekwencjonowanie może powodować błąd systematyczny w zakresie pokrycia, w którym występuje nierówna głębokość sekwencjonowania w genach lub komórkach. Powoduje to wyzwania podczas wykrywania genów o niskiej ekspresji lub identyfikacji rzadkich populacji komórek. Po drugie, identyfikacja typów komórek może być trudna ze względu na niejednorodność komórkową i transkrypcyjną kultur organoidów oraz mniej zróżnicowany profil komórkowy w porównaniu z natywnym nabłonkiem jelitowym. Sprzężenie odpowiedzi transkrypcyjnych z funkcjonalnymi fenotypami jest również wyzwaniem i wymaga dodatkowej walidacji przy użyciu innych podejść lub testów. Po trzecie, podejście to nie obejmuje uwzględnienia kontekstu przestrzennego ani dynamiki czasowej komórek. Procedura dysocjacji usuwa możliwość wnioskowania o interakcjach komórka-komórka na podstawie danych transkrypcyjnych. Dostarcza tylko jednej migawki w czasie stanu komórkowego, a nie kontinuum biologicznego. Wreszcie, podejścia transkrypcyjne oparte na pojedynczych komórkach mogą być kosztowne i wymagać specjalistycznych narzędzi obliczeniowych oraz wiedzy bioinformatycznej. Jednak podejście to nadal pozostaje dominującym najnowocześniejszym narzędziem do zrozumienia heterogeniczności komórkowej i identyfikacji nowych typów komórek.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
Autorzy przyjmują do wiadomości U19 AI157984, U01 DK103168, U19 AI144297, P30 DK56338, P01 AI057788, U19 AI116497 granty oraz NASA Cooperative Agreement Notice/TRISH NNX16AO69A.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| [Leu15]-Gastrin I | Sigma-Aldrich | G9145 | 10 nM |
| 0,05% Trypsyna-EDTA | Invitrogen | 25300054 | |
| 0,4% Błękit trypanowy | Millipore-Sigma | T8154 | |
| 0,5 M EDTA | Corning | 46-034-CI | |
| 1x PBS Ca- Mg-Corning | 21-040-CM | ||
| 24 mm Transwell | Costar | 3412 | |
| 24-dołkowe naczynie do hodowli tkankowych Nunclon delta | Thermo Scientific | 142475 | |
| 40 i mikro; m sitko komórkowe | Falcon | 352340 | |
| 40 µ m Sitko do końcówek Flowmi | SP Bel-Art Labware | H13680-0040 | |
| 70 µ m Sitko do końcówek Flowmi | SP Bel-Art Labware | H13680-0070 | |
| 96-dołkowa płytka | Corning | 3595 | |
| A-83-01 | Tocris | 2939 | 500 nM |
| Accutase | StemCell Technologies | 7920 | |
| Advanced DMEM/F12 | Suplement Invitrogen | 12634-028 | |
| B27 | Invitrogen | 17504-044 | 1X |
| Chromium Next GEM Pojedyncza komórka 3' GEM, Biblioteka & Zestaw kulek żelowych v3.1 | 10x Genomics | PN-1000128 | |
| Kolagen IV | Sigma-Aldrich | C5533-5MG | 33 &mikro; g/ml |
| Corning Cell Recovery Solution | VWR | 354253 | |
| DPBS (Mg2-, Ca2-) | Invitrogen | 14190-136 | 1X |
| GlutaMAX-I | Invitrogen | 35050-061 | 2 mM |
| HEPES 1M | Invitrogen | 15630-080 | 10 mM |
| L-WRN kondycjonowane media | ATCC | CRL-3276 | |
| Matrigel, GFR, bez fenolu | Mysz Corning | 356231 | |
| rekombinowany EGF | Invitrogen | PMG8043 | 50 ng/ml |
| suplement N2 | Invitrogen | 17502-048 | 1X |
| N-Acetylocysteina | Sigma-Aldrich | A9165-5G | 500 µ M |
| Nikotynamid | Sigma-Aldrich | N0636 | 10 mM |
| SB202190 | Sigma-Aldrich | S7067 | 10 &mikro; M |
| Transwell | Corning | 3413 | |
| Y27632 | Technologie komórek macierzystych | 72308 | 10 i mikro; M |
Bibliografia
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Blutt, S. E., et al. Gastrointestinal microphysiological systems. Exp Biol Med. 242 (16), 1633-1642 (2017).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Elmentaite, R., et al. Cells of the human intestinal tract mapped across space and time. Nature. 597 (7875), 250-255 (2021).
- Hickey, J. W., et al. Organization of the human intestine at single-cell resolution. Nature. 619 (7970), 572-584 (2023).
- Burclaff, J., et al. A proximal-to-distal survey of healthy adult human small intestine and colon epithelium by single-cell transcriptomics. Cell Mol Gastroenterol Hepatol. 13 (5), 1554-1589 (2022).
- Triana, S., et al. Single-cell transcriptomics reveals immune response of intestinal cell types to viral infection. Mol Syst Biol. 17 (7), e9833(2021).
- Triana, S., et al. Single-cell analyses reveal SARS-CoV-2 interference with intrinsic immune response in the human gut. Mol Syst Biol. 17 (4), e10232(2021).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture condition. Cell Stem Cell. 23 (6), 787-793 (2021).
- Beumer, J., et al. BMP gradient along the intestinal villus axis controls zonated enterocyte and goblet cell states. Cell Rep. 38 (9), 110438(2022).
- Beumer, J., et al. High-resolution mRNA and secretome atlas of human enteroendocrine cells. Cell. 182 (4), 1062-1064 (2020).
- Busslinger, G. A., et al. Human gastrointestinal epithelia of the esophagus, stomach, and duodenum resolved at single-cell resolution. Cell Rep. 34 (10), 108819(2021).
- Luecken, M. D., Theis, F. J. Current best practices in single-cell RNA-seq analysis: a tutorial. Mol Syst Biol. 15 (6), e8746(2019).
- Heumos, L., et al. Best practices for single-cell analysis across modalities. Nat Rev Genet. 24 (8), 550-572 (2023).
Przedruki i uprawnienia
