Szczegółowy protokół obrazowania pojedynczych migrujących płytek krwi za pomocą funkcjonalizowanych RGD uwięzi awidyna-biotyna o regulowanej gęstości jest dostarczony, ujawniając, że płytki krwi generują wystarczającą siłę, aby zerwać wiązanie awidyna-biotyna.
Artykuł metodologiczny
Test in vitro do badania migracji płytek krwi przy użyciu funkcjonalizowanych RGD tetherów awidyna-biotyna
W tym artykule
Podsumowanie
Streszczenie
Pomimo tego, że są to pozbawione jądra fragmenty komórek, płytki krwi są obecnie powszechnie rozpoznawane ze względu na swoje wieloaspektowe zdolności. Nie tylko tworzą skrzepy krwi, aby zapobiec krwawieniu po urazie, ale także zwalczają infekcje i utrzymują integralność naczyń krwionośnych podczas chorób zapalnych. Podczas gdy czopy hemostatyczne wymagają zbiorowej aktywacji i agregacji płytek krwi, ich rola w ochronie naczyń krwionośnych objętych stanem zapalnym jest wykonywana na poziomie pojedynczych komórek. W tym kontekście ostatnie dane wykazały, że płytki krwi mogą migrować autonomicznie, co zależy od mechanowykrywania ich adhezji. W tym miejscu przedstawiono szczegółowy protokół obrazowania migracji pojedynczych płytek krwi, wykorzystujący trójwarstwowy system powlekania składający się ze szkieletu poli-L-lizynowego z poli(glikolu etylenowego) (PLL-PEG)-biotyny (1), fluorescencyjnego łącznika awidyny (2) i biotynowo-cyklicznego Arg-Gly-Asp (cRGD) (3) jako motywu wiążącego integrynę płytkową. To redukcjonistyczne podejście pozwala na precyzyjną kontrolę właściwości adhezji substratu i służy jako prosty, standaryzowany test in vitro do badania mechanizmów leżących u podstaw migracji płytek krwi. Wyniki wskazują, że migrujące płytki krwi wiążące się z cRGD wywierają siły zdolne do przerwania wiązania awidyna-biotyna. Ponadto gęstość biotyny-cRGD znacząco wpływa zarówno na rozprzestrzenianie się płytek krwi, jak i migrację.
Wprowadzenie
Płytki krwi to małe fragmenty komórek jądrzastych pochodzące z megakariocytów w szpiku kostnym. Aktywowane płytki krwi łączą się w agregaty, które stanowią podstawę skrzepu krwi, aby uszczelnić zmiany naczyniowe w fizjologicznej hemostazie lub zamknąć chore naczynia krwionośne w patologicznej zakrzepicy1. Jednak w ostatnich dziesięcioleciach stało się jasne, że płytki krwi odgrywają również kluczową rolę w patofizjologii stanu zapalnego, infekcji i nowotworów złośliwych, gdzie wieloaspektowe interakcje z komórkami odpornościowymi, komórkami rakowymi i atakującymi patogenami mają kluczowe znaczenie dla kształtowania odpowiedzi immunologicznej gospodarza2,3. Ostatnie dane wykazały, że płytki krwi mają zdolność do autonomicznej migracji4. W odpowiedzi na bakteriemię ogólnoustrojową płytki krwi są rekrutowane do sinusoid wątroby, gdzie przylegają i migrują. Migracja umożliwia płytki krwi wychwytywanie i wiązanie bakterii, co z kolei wspomaga aktywację leukocytów. Warto zauważyć, że płytki krwi pozostają wewnątrznaczyniowe podczas tego procesu i nie migrują do tkanki podśródbłonkowej 4. Ponadto płytki krwi są strażnikami zapalenia naczyń krwionośnych, skanując naczynia krwionośne w stanie zapalnym w poszukiwaniu mikrourazów spowodowanych przez wynaczynione komórki odpornościowe5 i wykorzystując migrację do ochrony naczyń krwionośnych w stanie zapalnym6,7. W tym przypadku płytki krwi wykorzystują swoje integryny do wiązania fibrynogenu odkładającego się na śródbłonku objętym stanem zapalnym. Płytki krwi następnie tworzą blaszkowate wypukłości, które pozwalają im skanować właściwości adhezyjne ich środowiska. Płytki krwi następnie polaryzują się i migrują w kierunku większej gęstości fibrynogenu, proces znany jako haptotaksja. Ukierunkowana migracja płytek krwi ostatecznie wspomaga pozycjonowanie w mikrouszkodzeniach śródbłonka, które zapobiegają krwawieniu w tkankach objętych stanem zapalnym, w tym w mięśniach i płucach.
Migracja płytek krwi jest krytycznie zależna od właściwości mechanicznych podłoża adhezyjnego4,8. Zadanie wykrywania i przekształcania właściwości mechanicznych środowiska jest przede wszystkim pośredniczone przez receptory integrynowe, które są transbłonowymi białkami heterodimerycznymi złożonymi z podjednostki α i β, przy czym domena zewnątrzkomórkowa wiąże się z ligandem na macierzy zewnątrzkomórkowej, a domena wewnątrzkomórkowa wiąże się z cytoszkieletem aktyny za pośrednictwem białek adaptorowych9,10. Najliczniej występującą integryną płytkową jest αIIbβ3, a jej głównym ligandem jest fibryna(ogen)11. Zaangażowanie integryna-ligand wyzwala zdarzenia sygnalizacyjne, których kulminacją jest tworzenie blaszki sterowanej przez Arp2/3, która tworzy krawędź czołową przylegającego płytki krwi7. Przylegające płytki krwi natychmiast badają właściwości mechaniczne swojego adhezyjnego środowiska, ciągnąc je4. Kiedy zależne od miozyny IIa siły ciągnące pokonują mechaniczną stabilność macierzy zewnątrzkomórkowej (np. fibryny (genu)), płytki krwi mechanicznie rozrywają osłabione ligandy i wykorzystują ich blaszkowate występy do skanowania mikrośrodowiska w poszukiwaniu ligandów adhezyjnych, ustanawiania nowych wiązań substratowych i migracji z dala od środowiska zubożonego w ligand6. Migracja komórek napędzana przez nieproteolityczne, mechaniczne zubożenie ligandów prawdopodobnie odgrywa rolę wykraczającą poza funkcję płytek krwi, ponieważ wydaje się, że jest to ogólne zjawisko obserwowane w komórkach zdolnych do mechanicznej przebudowy ich macierzy adhezyjnej8. Szybkość wyczerpywania się ligandów określa prędkość migracji i zależy zarówno od stabilności liganda, jak i gęstości ligandu substratu8. Płytki krwi o niskiej gęstości ligandów są w stanie mechanicznie rozbijać zmodyfikowane ligandy integrynowe (cykliczne Arg-Gly-Asp (cRGD))6,7 związane ze szklanymi szkiełkami nakrywkowymi za pomocą wiązań biotyna-awidyna o sile rozwiązywania około 160 pikonewtonów (pN)12,13,14,15.
Tutaj te obserwacje są wykorzystywane do opracowania prostego protokołu in vitro do generowania labilnych powierzchni adhezyjnych ligandów, ułatwiając badanie mechanizmów migracji płytek krwi. Powłoka adhezyjna opisana w niniejszym protokole składa się z trzech zasadniczych elementów: (1) szkieletu PLL-PEG-biotyny oraz (2) łącznika izotiocyjanianu neutrawidyny-fluoresceiny (NA-FITC), który ułatwia wiązanie (3) biotyny-cRGD (liganda adhezyjnego) ze szkieletem PLL-PEG-biotyna (patrz również Rysunek 1B). Stabilność tego konstruktu zależy od siły wiązania biotyna-awidyna, które może pęknąć na granicy faz (A) PLL-PEG-biotyna-NA-FITC lub (B) FITC-NA-BIOTYNA-cRGD. Ponadto gęstość ligandów adhezyjnych można dostosować, dostosowując stosunek PLL-PEG-biotyny do PLL-PEG w dolnej warstwie. Przerwanie wiązania (A) powoduje uwolnienie FITC z powłoki, co prowadzi do zmniejszenia sygnału fluorescencji pod migrującymi płytkami krwi. Powłoka opisana w tym protokole umożliwia zatem precyzyjne dostrajanie właściwości mechanicznych i adhezyjnych podłoża oraz zapewnia łatwy fluorescencyjny odczyt migracji płytek krwi.
Protokół
Eksperymenty na zwierzętach przeprowadzone w tym badaniu zostały przeprowadzone zgodnie ze wszystkimi odpowiednimi przepisami etycznymi dotyczącymi badań na myszach i zostały zatwierdzone przez lokalne przepisy dotyczące ochrony zwierząt (Regierung von Oberbayern, Monachium, 190-15, 2015). W badaniu wykorzystano samice i samce myszy C57BL/6 w wieku 8-10 tygodni (masa ciała 20-25 g). Szczegółowe informacje na temat stosowanych odczynników i sprzętu są wymienione w Tabeli Materiałów.
1. Powłoka cRGD biotyna-neutrawidyna-biotyna
- Sonizować szklane szkiełka nakrywkowe (24 mm x 24 mm; # 1,5) w obrębie 20% HNO3 przez 1 minutę, a następnie sonikować w izopropanolu, etanolu iH2Oprzez 1 minutę. Po każdej sonikacji należy dokładnie wypłukać szkiełka nakrywkowe w wodzie destylowanej (ddH2O), a na koniec wysuszyć je w inkubatorze.
- Wstępnie oczyszczone szkiełka nakrywkowe należy traktować plazmąO2 w urządzeniu do czyszczenia plazmowego przez 2 minuty, a następnie złożyć z lepkimi szkiełkami, jak opisano wcześniej16. Lepkie szkiełka podstawowe i szklane szkiełka nakrywkowe utworzą między nimi kanał (jak pokazano w Rysunek 1A).
UWAGA: Ważna jest skuteczna obróbka plazmowa. Użyj O2 jako źródła plazmy. - Napełnij kanał 2,5 μl PLL-PEG-biotyny (1 mg/ml) rozcieńczonej w 97,5 μl PLL-PEG (1 mg/ml) i inkubuj przez 30 minut w temperaturze pokojowej (RT), a następnie przemyj trzykrotnie PBS. PLL-PEG-biotyna wiąże neutrawidynę w następnym etapie, podczas gdy szkielet PLL-PEG tworzy obojętny substrat, który zapobiega niespecyficznemu wiązaniu białek i płytek krwi.
UWAGA: Stężenie PLL-PEG-biotyny w roztworach powlekających określa końcową gęstość ligandów cRGD. - Dodać 100 μl Neutravidin-FITC (25 μg/ml) i inkubować przez 30 minut w ciemności w temperaturze pokojowej, a następnie przemyć trzykrotnie PBS.
UWAGA: Dostosuj stężenie neutrawidyny-FITC do stężenia PLL-PEG-biotyny. Zwiększyć stężenie neutrawidyny-FITC, jeśli powlekane są wyższe gęstości PLL-PEG-biotyny. - Dodać 100 μl cyklo [Arg-Gly-Asp-D-Phe-Lys (Biotin-PEG-PEG)] (cRGD-biotyny) (0,1-1 μM), inkubować przez 30 minut w temperaturze pokojowej i przemyć trzykrotnie PBS. Szkiełka nakrywkowe są gotowe do użycia. Schemat powłoki jest przedstawiony w Rysunek 1B.
2. Izolacja płytek krwi myszy od krwi
- Przygotuj zmodyfikowany bufor Tyrode'a, który zawiera 136,9 mM NaCl, 12,1 mM NaHCO3, 2,6 mM KCl, 5,5 mM glukozy, 10 mM HEPS i dostosuj pH do 7,4 i 6,5.
- Znieczulenie myszy (zgodnie z instytucjonalnie zatwierdzonymi protokołami) przez dootrzewnowe wstrzyknięcie 0,5 mg/kg fentanylu, 5 mg/kg midazolamu i 0,05 mg/kg medetomidyny. Po potwierdzeniu głębokości znieczulenia za pomocą uszczypnięcia palca u nogi, usuń skórę klatki piersiowej nożyczkami.
- Przygotuj strzykawkę o pojemności 2 ml (igła 26 G) ze 150 μl kwasu cytrynianu i dekstrozy (ACD) jako antykoagulantu. Włóż igłę między drugie i trzecie żebro po lewej stronie mostka, aby pobrać krew z serca. Następnie poddaj mysz eutanazji przez zwichnięcie szyjki macicy.
UWAGA: (1) Skład buforu ACD: 85 mM tribasic dehydrate cytrynianu sodu i 65 mM monohydratu kwasu cytrynowego w 111 mM glukozy. (2) Pobieranie krwi powinno odbywać się płynnie, aby uniknąć tworzenia się skrzepów. Od 8-10-tygodniowych myszy można uzyskać około 1 ml krwi. - Wymieszać krew z 1 ml buforu Tyrode'a (pH 6,5) w probówce FACS (polistyren o okrągłym dnie) o pojemności 5 ml i odwirować przy 70 x g przez 20 minut w temperaturze pokojowej przy wyłączonym hamulcu.
- Po odwirowaniu pobrać górną część (około 1 ml) zawierającą osocze bogatopłytkowe (PRP). Wymieszać z 3 ml buforu Tyrode'a (pH 6,5) i dodać 100 ng/ml prostacykliny (PGI2), aby zapobiec aktywacji płytek krwi.
- Wirować przy 1200 x g przez 5 minut w temperaturze pokojowej, odrzucić supernatant, ponownie zawiesić osad w 500 μl buforu Tyrode'a (pH 6,5) i zmierzyć liczbę płytek krwi za pomocą hemocytometru.
3. Migracja płytek krwi myszy na powłoce cRGD biotyna-neutrawidyna-biotyna
- Uzupełnij zmodyfikowany bufor Tyrode'a (pH 7,4) 10 x 10 3/μL mysich płytek krwi, 1 mM CaCl2, 2 μM U46619 i 4 μM soli sodowej adenozyno-5′-difosforanu (ADP) i odpipetuj całkowitą objętość 240 μl do kanałów przygotowanych w kroku 1.
- Rejestruj żywą migrację płytek krwi za pomocą odwróconego mikroskopu wyposażonego w inkubator stopniowy. Alternatywnie, inkubować kanał przez 1 godzinę w temperaturze 37 °C w inkubatorze.
- Utrwalić próbkę 4% paraformaldehydem przez 10 minut w temperaturze pokojowej i przemyć pięciokrotnie PBS.
- Udrażniać płytki krwi za pomocą Triton-X (0,2% w PBS) przez 5 minut, a następnie przemywać je pięciokrotnie PBS.
- Rozcieńczyć 2,5 μl falloidyny Alexa Fluor 594 (40x bulion metanolowy) w 100 μl PBS. Inkubować z płytkami krwi przez 30 minut o zmroku, a następnie przemyć pięć razy PBS.
- Zobrazuj szkiełka pod mikroskopem fluorescencyjnym.
4. Kwantyfikacja
UWAGA: Płytki krwi tworzące filopodia (wypukłości przypominające palce) lub lamellipodia (wypukłości przypominające arkusze) były liczone jako przylegające płytki krwi4. Płytki krwi, których odległość migracji jest większa niż jedna średnica, zdefiniowano jako płytki wędrowne.
- Frakcja migrujących płytek krwi: Policz adhezję płytek krwi lub liczbę migracji za pomocą narzędzia Multi Point na Fidżi. Kliknij prawym przyciskiem myszy menu rozwijane narzędzia Punkt na pasku narzędzi, aby wybrać narzędzie Wielopunktowe. Oblicz frakcję migrujących płytek krwi, dzieląc liczbę migrujących płytek krwi przez liczbę płytek adhezyjnych.
- Średnia odległość migracji: Wyodrębnij odległość migracji z utrwalonych próbek, mierząc długość ścieżki migracji "odciśniętej" w powłoce neutrawidyny FITC za pomocą narzędzia do wyznaczania linii z wolnej ręki. Kliknij prawym przyciskiem myszy menu rozwijane Linia prosta na pasku narzędzi, aby wybrać narzędzie Linia odręczna.
- Deskryptory kształtu płytek krwi: Generuj maski binarne, segmentując fluorescencyjne płytki krwi (Alexa594-Phalloidin) za pomocą funkcji Próg. Wybierz opcję Obraz > Dostosuj próg > pasku narzędzi.
- Deskryptory kształtu, takie jak powierzchnia, obwód, okrągłość i współczynnik kształtu, można uzyskać w analizowaniu cząstek. Wybierz deskryptory kształtów w obszarze Analizuj > ustaw pomiary, a następnie wybierz opcję Wyświetl wyniki w obszarze Analizuj > Analizuj cząstki.
Wyniki
Aktywowane płytki krwi łatwo przylegają i rozprzestrzeniają się na szkiełkach pokrytych PLL-PEG-biotin-neutravidin-FITC-biotin-cRGD (Rysunek 1C oraz Rysunek 2A; 0 min i 5 min), a następnie ulegają polaryzacji poprzez tworzenie lamelipodium na krawędzi prowadzącej (Rysunek 2A; 10 min). Podczas tego procesu pseudojądro (ciemny obszar w centrum płytki) przemieściło się z centrum do tylnej części płytki (Rysunek 2A). Spolaryzowane płytki krwi zaczynają następnie migrować bez wyraźnego kierunku (Rysunek 2A; 15 min i 20 min oraz Rysunek 2B). Zaobserwowano, że płytki krwi migrujące po powłokach PLL-PEG-biotin-neutravidin-FITC-biotin-cRGD mogą zrywać wiązanie neutravidin-FITC-biotin-PLL-PEG, co potwierdza spadek intensywności fluorescencji wzdłuż ścieżki migracji (Rysunek 1C oraz Rysunek 2A,B). Ponadto, rozbity kompleks neutravidin-FITC-biotin-cRGD gromadzi się na powierzchni płytki krwi (Rysunek 2A,B). Zjawisko to jest podobne do wcześniejszych odkryć, w których migrujące płytki krwi usuwały fibrynogen z podłoża i gromadziły go w swoim otwartym systemie kanalikowym (OCS)4.
Aby zbadać, w jaki sposób gęstość ligandów wpływa na migrację płytek krwi, dostosowano gęstość cRGD poprzez zmianę stosunku PLL-PEG-biotyny do PLL-PEG w pierwszej warstwie powłoki. Dane te wykazują, że płytki krwi myszy osiągają optymalną migrację przy stężeniu 2,5% PLL-PEG-biotyny. Migracja jest ograniczona zarówno przy niższych (1%), jak i wyższych (10%) stężeniach PLL-PEG-biotyny (Rysunek 3A,B). Tym zależnym od podłoża zmianom w zachowaniu migracyjnym towarzyszą zmiany w morfologii płytek krwi (Rysunek 3C). Przy niskiej gęstości ligandów (1%) płytki krwi nie rozprzestrzeniają się w sposób odpowiedni, co potwierdza niewielka rzutowana powierzchnia i obwód płytek (Rysunek 3C). Sugeruje to niewystarczającą aktywację integryn oraz sygnalizację zewnątrzkomórkową (outside-in)7. W konsekwencji płytki krwi nie są w stanie wywierać sił na ligandy cRGD, nie przebudowują podłoża i nie migrują (Rysunek 3A,B).
Przy pośrednim zagęszczeniu ligandów (2,5%) obserwuje się istotny wzrost powierzchni i obwodu płytek krwi (Rycyna 3C). Płytki krwi rozprzestrzeniają się efektywnie, mechanicznie rozrywając labilne ligandy cRGD, i migrują (Rycina 3A,B). Jednakże przy wysokim zagęszczeniu ligandów (10%), mimo wzrostu rozprzestrzeniania, płytki krwi nie polaryzują się, co wskazuje obniżony współczynnik kształtu (Rycina 3C). W tych warunkach płytki krwi pozostają przytwierdzone do lepkiego podłoża i nie migrują, ponieważ nie są w stanie przerwać wiązań labilnych ligandów cRGD (Rycina 3A,B).
Wyniki te wykazują, że migracja płytek krwi jest w stopniu krytycznym zależna od właściwości adhezyjnych podłoża. Płytki krwi mogą migrować tylko wtedy, gdy wystarczająco silnie wiążą się z ligandami adhezyjnymi i jednocześnie generują siły trakcyjne wystarczająco duże, aby pokonać tolerancję naprężeniową podłoża adhezyjnego4,6,7,8.
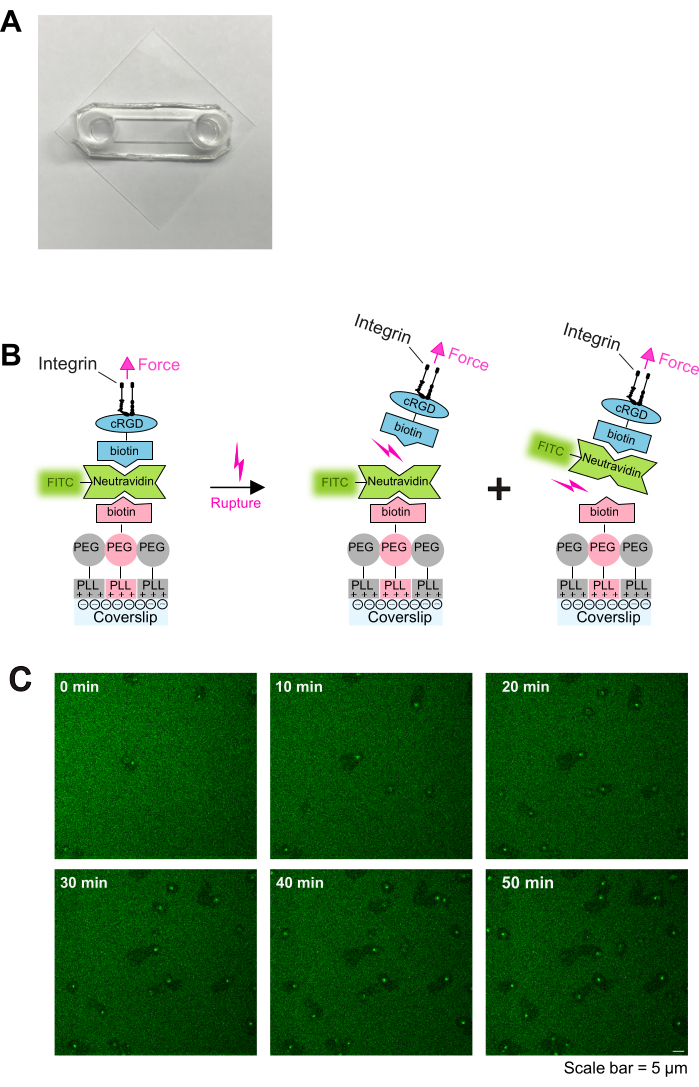
Rysunek 1: Procedura powlekania i obrazowanie na żywo interakcji płytek krwi z podłożem. (A) Zdjęcie zmontowanej komory. (B) Zasada protokołu. Po lewej: Schemat powlekania. Szklane szkiełka nakrywkowe poddane działaniu plazmy zostały pokryte trzema warstwami. Pierwszą warstwą jest mieszanina PLL-PEG i PLL-PEG-biotyny (szkielet PLL-PEG jest obojętny dla komórek i zapobiega nieswoistemu wiązaniu). Drugą warstwą jest neutrawidyna-FITC, a trzecią warstwą jest biotyna-cRGD. Neutrawidyna-FITC tworzy mostek między PLL-PEG-biotyną a biotyną-cRGD. Płytki krwi wiążą się z biotyną-cRGD poprzez integryny w błonie plazmatycznej. Po prawej: Ilustracja rozłączania biotyny i awidyny przez integryny płytek krwi. Płytki krwi wywierają siły na podłoże poprzez zaangażowanie integryny-cRGD i powodują zerwanie albo górnego wiązania cRGD-biotyna – neutrawidyna-FITC, albo dolnego wiązania neutrawidyna-FITC – PLL-PEG-biotyna. Zerwanie dolnego wiązania między neutrawidyną-FITC a biotyną-PLL-PEG skutkuje zmniejszeniem sygnału fluorescencyjnego, podczas gdy zerwanie górnego wiązania między biotyną-cRGD a neutrawidyną-FITC nie powoduje takiej zmiany. (C) Seria czasowa pokazująca migrację płytek krwi i ubytek labilnych ligandów cRGD. Obszary o zmniejszonej fluorescencji wskazują ślady migracji płytek krwi (patrz również Rysunek 2A), a obszary o zwiększonej fluorescencji wskazują akumulację FITC-neutrawidyny-biotyny-cRGD na migrujących płytkach krwi. Pasek skali: 5 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
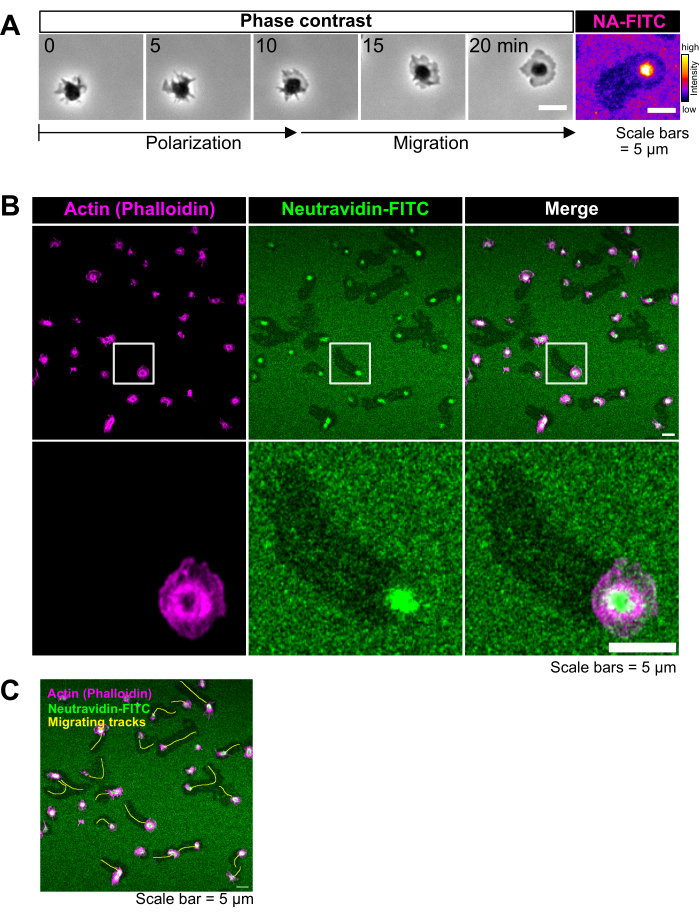
Rycina 2: Obrazowanie immunofluorescencyjne migracji płytek krwi zakodowanej przez przebudowane podłoże. (A) Reprezentatywna sekwencja filmowa migracji pojedynczej płytki krwi. Po lewej: obrazy w kontraście fazowym migrujących płytek krwi. Płytki krwi ulegają polaryzacji poprzez tworzenie lamellipodium na krawędzi prowadzącej, a następnie migrują. Po prawej: Neutravidin-FITC został usunięty z podłoża, pozostawiając „odcisk” migracji płytek krwi. Zerwany kompleks cRGD-biotyna-neutravidin-FITC gromadzi się w centrum migrujących płytek. (B) Reprezentatywne obrazy migracji płytek krwi na powłokach z labilnego liganda cRGD-biotyna-awidyna. Góra: płytki krwi barwione falloidyną (Alexa FluorTM 594) wykazały tworzenie dużego lamellipodium i spolaryzowany kształt charakterystyczny dla migrujących płytek. Migrujące płytki krwi zrywają wiązanie cRGD-biotyna-neutravidin-FITC, generując ścieżki migracji na podłożu, wskazane przez zredukowany sygnał FITC. Dół: wycinek obrazu z większym powiększeniem. (C) Ścieżki migracji zostały ręcznie narysowane w programie Fiji żółtymi liniami. Paski skali: 5 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
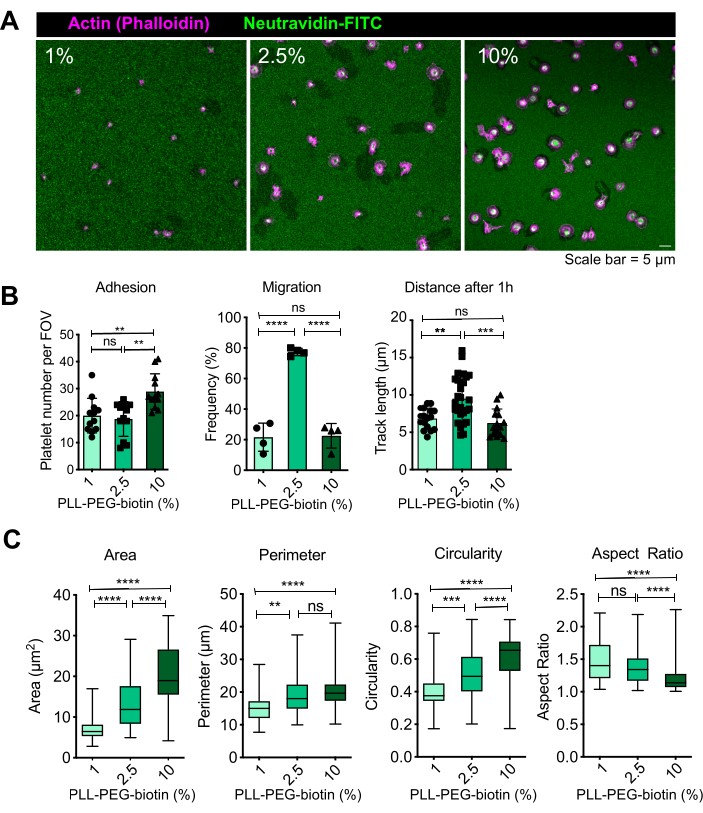
Rycina 3: Stosunek PLL-PEG-biotyny do PLL-PEG determinuje migrację i kształt płytek krwi. (A) Reprezentatywne obrazy płytek krwi na powłokach z 1%, 2,5% i 10% PLL-PEG-biotyny, pasek skali: 5µm. (B) Ilościowa ocena adhezji płytek krwi, wydajności migracji oraz dystansu migracji, n = 4 niezależne eksperymenty; średnia/SD; jednoczynnikowa ANOVA/test Tukeya; **p < 0.01; ***p < 0.001; ****p < 0.0001, ns: brak istotności statystycznej (C) Ilościowa ocena parametrów kształtu płytek krwi (pole powierzchni, obwód, kołowość i współczynnik kształtu), n = 4 niezależne eksperymenty; średnia/Min-Max; jednoczynnikowa ANOVA/test Tukeya; **p < 0.01; ***p < 0.001; ****p < 0.0001, ns: brak istotności statystycznej. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
Dyskusja
W niniejszym protokole przedstawiono procedurę powlekania trójwarstwowego składającą się z (1) szkieletu PLL-PEG-biotyny oraz (2) łącznika neutrawidyna-FITC, który ułatwia wiązanie (3) biotyny-cRGD (ligandu adhezyjnego) ze szkieletem PLL-PEG-biotyna (patrz również rysunek 1B), który umożliwia precyzyjne dostrajanie właściwości podłoża mechanicznego i adhezyjnego poprzez zmianę stosunku PLL-PEG-biotyny do PLL-PEG i zapewnia łatwy fluorescencyjny odczyt migracji płytek krwi. Podczas gdy ten protokół wykorzystuje neutralidynę sprzężoną z FITC i falloidynę sprzężoną z Alexa Fluor 594 do śledzenia migracji i kształtu płytek krwi, można stosować inne alidyny i falloidyny sprzężone z fluoroforem. Ponieważ wszystkie odczynniki powlekające, w tym PLL-PEG, PLL-PEG-biotyna, neutrawidyna-FITC i cRGD-biotyna, a także aktywatory płytek krwi są dostępne na rynku, eksperyment ten można przeprowadzić bez większego dodatkowego wysiłku. Krytycznym etapem jest obróbka plazmowa, ponieważ nieefektywna obróbka plazmowa prowadzi do niewystarczającego wiązania biotyny PLL-PEG/PLL-PEG z podłożem, co skutkuje zanikiem adhezji i migracji płytek krwi. Ważna jest wydajność myjki plazmowej. Ogólnie rzecz biorąc, myjki plazmowe z generatorami 13,6 MHz działają lepiej niż te z 40 kHz lub 100 kHz. Ponadto źródło plazmy tlenowej jest bardziej odpowiednie niż powietrze otoczenia. Po udanej obróbce plazmowej etapy powlekania prawie nie są podatne na błędy.
Wcześniej wykazano, że płytki krwi wykorzystują mezenchymalny tryb migracji, który jest w dużym stopniu zależny od adhezji substratu 4,17. Analogicznie do fibroblastów, niska gęstość ligandów utrudnia migrację, ponieważ płytki krwi mają trudności z przyleganiem do substratu, podczas gdy wysokie gęstości ligandów utrudniają migrację, zapobiegając rozłączaniu się twardych zrostów18 (ryc. 3). Przy gęstościach pośrednich płytki krwi przylegają, podczas gdy zależne od miozyny IIA siły ciągnące na wiązanie integrynowe są nadal wystarczające do zerwania zrostów. Warto zauważyć, że wysokie powinowactwo między integrynąα IIbβ3 a jej ligandem fibryną (ogenem) powoduje demontaż adhezji nie poprzez uwolnienie liganda adhezyjnego, ale raczej poprzez jego pęknięcie lub oderwanie się od podłoża znajdującego się pod spodem, takiego jak komórki śródbłonka in vivo lub szkiełka nakrywkowe in vitro 4,6. Siła wiązania wymagana do oderwania fibrynogenu od leżącego pod nim substratu jest silnie uzależniona od właściwości fizycznych i (bio)chemicznych, które często są trudne do kontrolowania, co może prowadzić do znacznej zmienności wydajności migracji. Przedstawiony tutaj test oferuje redukcjonistyczne podejście do rozwiązania tego problemu. Jednak siła zrywająca wiązania awidyna-biotyna jest ustalona na około 160 pN, dlatego do badania adhezji płytek krwi przy niższych warunkach siłynależy użyć bardziej wyrafinowanych czujników napięcia, takich jak te oparte na dwuniciowym uwięzi DNA.
Wcześniejsze badania wykazały, że migracja płytek krwi jest zaangażowana w infekcje bakteryjne i zapalenie naczyń krwionośnych in vivo. W związku z tym płytki krwi z defektami migracji, takimi jak upośledzona kurczliwość miozyny, polimeryzacja aktyny lub sygnalizacja integryna zewnątrz, wykazują upośledzony klirens bakterii i integralność naczyniową 4,6,7. Przedstawiony tutaj test jest prosty, stabilny, a zatem nadaje się do badań przesiewowych inhibitorów małocząsteczkowych i ich wpływu na migrację płytek krwi. Stanowi nowatorskie narzędzie in vitro do badania celów terapeutycznych w zapaleniu lub zakrzepicy.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Deutsche Forschungsgemeinschaft (DFG; Niemiecka Fundacja Badawcza) numery projektów 514478744 i 514477451 do F.G. Projekt jest finansowany przez Unię Europejską (ERC, MEKanics, 101078110). Wyrażone poglądy i opinie są wyłącznie poglądami i opiniami autora (autorów) i niekoniecznie odzwierciedlają poglądy i opinie Unii Europejskiej lub Agencji Wykonawczej Europejskiej Rady ds. Badań Naukowych. Ani Unia Europejska, ani organ przyznający pomoc nie mogą być za nie pociągnięte do odpowiedzialności.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Sól sodowa adenozyno-5&-difosforanu (ADP) | Sigma-Aldrich | A2754 | |
| Alexa Fluor 594 falloidyna | Thermofisher | A12381 | |
| Licznik krwi | Sysmex | XN-1000 | |
| Bezdenna 6-kanałowa prowadnica samoprzylepna | IBIDI, szkiełka samoprzylepne VI0,4 | 80608 | |
| Wirówka | Eppendorf | 5804 | |
| Mikroskop konfokalny | Zeiss | LSM880 | |
| cyclo [Arg-Gly-Asp-D-Phe-Lys(Biotin-PEG-PEG)] | Peptyd międzynarodowe | rurki PCI-3697-PI | |
| FACS | Corning | ||
| FITC koniugat neutrawidyny | Thermofisher | A2662 | |
| Formaldehyd | Thermofisher | 28908 | |
| Roztwór HEPES | Sigma-Aldrich | H0887 | |
| Mikroskop kontrastu fazowego i epifluorescencyjnego | Olympus | IX83 | |
| Środek do czyszczenia plazmowego | Diener | 116531 | |
| PLL(20)-g[3.5]-PEG(2)/PEG(3.4)-biotyna(50%) | Susos | PLL(20)-g[3.5]-PEG(2)/PEG(3.4)-biotyna (50%) | |
| Poli(L-lizyna)- kopolimer poli(glikolu etylenowego) | Susos | PLL(20)-g[3.5]-PEG(2)Sól | |
| sodowa prostaglandyny I2 (PGI2) | Abcam | ab120912 | |
| Sonikator | BANDELIN | SONNOREX RK514M | |
| Ttriton X-100 20% v/v | Cayman Chemical | ||
| U46619 | Enzo Life Sciences | BML-PG023-0001) |
Bibliografia
- Jackson, S. P. Arterial thrombosis--insidious, unpredictable and deadly. Nat Med. 17, 1423-1436 (2011).
- Kaiser, R., Escaig, R., Nicolai, L. Hemostasis without clot formation: how platelets guard the vasculature in inflammation, infection, and malignancy. Blood. 142 (17), 1413-1425 (2023).
- Gaertner, F., Massberg, S. Patrolling the vascular borders: Platelets in immunity to infection and cancer. Nat Rev Immunol. 19 (12), 747-760 (2019).
- Gaertner, F., et al. Migrating platelets are mechano-scavengers that collect and bundle bacteria. Cell. 171 (6), 1368-1382.e23 (2017).
- Gros, A., et al. Single platelets seal neutrophil-induced vascular breaches via GPVI during immune-complex-mediated inflammation in mice. Blood. 126 (8), 1017-1026 (2015).
- Nicolai, L., et al. Vascular surveillance by haptotactic blood platelets in inflammation and infection. Nature Comm. 11, 5778(2020).
- Kaiser, R., et al. Mechanosensing via a GpIIb/Src/14-3-3zeta axis critically regulates platelet migration in vascular inflammation. Blood. 141 (24), 2973-2992 (2023).
- Sarkar, A., LeVine, D. N., Kuzmina, N., Zhao, Y., Wang, X. Cell migration driven by self-generated integrin ligand gradient on ligand-labile surfaces. Curr Biol. 30 (20), 4022-4032 (2020).
- Hynes, R. O. Integrins: Bidirectional, allosteric signaling machines. Cell. 110 (6), 673-687 (2002).
- Kechagia, J. Z., Ivaska, J., Roca-Cusachs, P. Integrins as biomechanical sensors of the microenvironment. Nat Rev Mol Cell Biol. 20, 457-473 (2019).
- Shattil, S. J., Newman, P. J. Integrins: Dynamic scaffolds for adhesion and signaling in platelets. Blood. 104 (6), 1606-1615 (2004).
- Yuan, C., Chen, A., Kolb, P., Moy, V. T. Energy landscape of streptavidin-biotin complexes measured by atomic force microscopy. Biochemistry. 39 (33), 10219-10223 (2000).
- Florin, E. L., Moy, V. T., Gaub, H. E. Adhesion forces between individual ligand-receptor pairs. Science. 264 (5157), 415-417 (1994).
- Merkel, R., Nassoy, P., Leung, A., Ritchie, K., Evans, E. Energy landscapes of receptor-ligand bonds explored with dynamic force spectroscopy. Nature. 397, 50-53 (1999).
- Jurchenko, C., Chang, Y., Narui, Y., Zhang, Y., Salaita, K. S. Integrin-generated forces lead to streptavidin-biotin unbinding in cellular adhesions. Biophys J. 106 (7), 1436-1446 (2014).
- Fan, S., Lorenz, M., Massberg, S., Gaertner, F. Platelet migration and bacterial trapping assay underflow. Bio-Protocol. 8 (18), e3018(2018).
- Lauffenburger, D. A., Horwitz, A. F. Cell migration: A physically integrated molecular process. Cell. 84 (3), 359-369 (1996).
- Palecek, S. P., Loftus, J. C., Ginsberg, M. H., Lauffenburger, D. A., Horwitz, A. F. Integrin-ligand binding properties govern cell migration speed through cell-substratum adhesiveness. Nature. 385, 537(1997).
- Zhao, Y., Wetter, N. M., Wang, X. Imaging integrin tension and cellular force at submicron resolution with an integrative tension sensor. J Vis Exp. (146), e59476(2019).
Przedruki i uprawnienia
