Zbadaliśmy tkankę mięśni szkieletowych u buhajów Bos indicus i mieszańców, aby wyjaśnić różnice w cechach jakości mięsa. Stwierdzono, że siła tnąca Warnera-Bratzlera (WBSF) waha się od 4,7 kg do 4,2 kg. Izoformy łańcuchów ciężkich miozyny ujawniły różnice między zwierzętami, a wskaźnik fragmentacji miofibryli dostarczył dalszych informacji na temat zmienności tkliwości (WBSF).
Artykuł metodologiczny
Badanie mięśnia Longissimus: odkrywanie jego korelacji z jakością mięsa u buhajów Bos indicus i mieszańców
W tym artykule
Podsumowanie
Streszczenie
To badanie badało tkankę mięśniową u buhajów rasy Bos indicus i krzyżówek, aby wyjaśnić różnice w cechach jakości mięsa. Opisano cechy tuszy, parametry jakościowe mięsa oraz badania biochemiczne i molekularne białek miofibrylarnych. Przedstawiono metody oceny pH, tłuszczu śródmięśniowego (IMF), barwy mięsa (L*, a*, b*), strat wody, kruchości oraz testów biologii molekularnej. Opisano szczegółowe procedury szczegółowo opisujące kalibrację, przygotowanie próbki i analizę danych dla każdej metody. Należą do nich takie techniki, jak spektroskopia w podczerwieni pod kątem zawartości IMF, obiektywna ocena kruchości i elektroforetyczne rozdzielanie izoform MyHC.
Parametry kolorów zostały wyróżnione jako potencjalne narzędzia do przewidywania kruchości wołowiny, kluczowej cechy jakościowej wpływającej na decyzje konsumentów. W badaniach wykorzystano metodę siły ścinającej Warnera-Bratzlera (WBSF), ujawniając wartości odpowiednio 4,68 i 4,23 kg dla Nellore'a i Angusa-Nellore'a (P < 0,01). Całkowite straty po utracie podczas gotowania i analizy biochemiczne, w tym wskaźnik fragmentacji miofibryli (MFI), dostarczyły informacji na temat zmienności kruchości. Badano typy włókien mięśniowych, w szczególności izoformy łańcucha ciężkiego miozyny (MyHC), przy czym zauważalny był brak izoformy MyHC-IIb u badanych zwierząt Zebu. Związek między MyHC-I a kruchością mięsa ujawnił rozbieżne wyniki w literaturze, podkreślając złożoność tego związku. Ogólnie rzecz biorąc, badanie dostarcza kompleksowych informacji na temat czynników wpływających na jakość mięsa buhajów rasy Bos indicus i mieszańców (Bos taurus × Bos indicus), dostarczając cennych informacji dla przemysłu mięsnego.
Wprowadzenie
Brazylia ma największe komercyjne stado bydła na świecie, liczące około 220 milionów zwierząt i plasujące się jako drugi co do wielkości producent mięsa, dostarczający rocznie ponad 9 milionów ton tusz1. Sektor produkcji bydła mięsnego znacząco przyczynia się do krajowego systemu rolnictwa, a całkowita roczna sprzedaż przekracza 55 miliardów reali. Od 2004 roku Brazylia jest kluczowym graczem w światowym handlu mięsem, eksportując do ponad 180 krajów, co stanowi ~50% światowego handlu mięsem2.
Kruchość mięsa wyróżnia się jako najważniejszy atrybut jakości wpływający na zadowolenie konsumentów i konsumpcję mięsa3. Stosując biochemiczne i obiektywne metody pomiaru kruchości mięsa, naukowcy dążą do uzyskania cennych informacji na temat takich czynników, jak genetyka zwierząt, techniki przetwarzania i warunki przechowywania, ostatecznie poprawiając jakość i spójność produktów mięsnych dla konsumentów. Takie informacje są przydatne, ponieważ kruchość mięsa zyskała na znaczeniu w podejmowaniu decyzji konsumenckich podczas zakupów. Ponadto ocena kruchości mięsa dostarcza cennych informacji do kontroli jakości w przemyśle mięsnym i przetwórczym. Dzięki konsekwentnemu monitorowaniu kruchości producenci mogą zapewnić, że produkty mięsne spełniają pożądane normy i specyfikacje. W tym kontekście brazylijscy producenci bydła mięsnego stopniowo wdrażają intensywne systemy opaskowe z mieszańcami, aby zwiększyć rotację kapitału. System ten odpowiada za około 10% ton tusz produkowanych rocznie w Brazylii4,5.
Rosnące zapotrzebowanie konsumentów na poprawę jakości mięsa skłoniło producentów bydła mięsnego do krzyżowania z rasami europejskimi, głównie Aberdeen Angus6. Strategia ta ma na celu wyprodukowanie hybryd F1 Angus-Nellore, znanych z doskonałej wydajności, pożądanych cech tuszy i lepszej jakości mięsa w porównaniu z czystymi zwierzętami zebu7,8. W tropikalnych regionach Brazylii powszechną praktyką jest wykorzystywanie niekastrowanych zwierząt (byków) o zaawansowanej dojrzałości w gospodarstwach tuczu, co może potencjalnie pogorszyć cechy jakości mięsa, takie jak kolor, marmurkowatość i kruchość. Warto zauważyć, że badanie wykazało, że 95% zwierząt wykończonych w brazylijskich oborach to samce, z czego 73% to Nellore, a następnie 22% zwierząt mieszańcowych i 5% innych genotypów9,10.
Zrozumienie mechanizmów biochemicznych leżących u podstaw kruchości mięsa jest kluczowe dla poprawy jakości mięsa. Jednym z kluczowych aspektów jest proteoliza pośmiertna, która wpływa na integralność strukturalną włókien mięśniowych11. Wskaźnik fragmentacji miofibryli (MFI) jest szeroko stosowanym testem biochemicznym, który określa ilościowo zakres degradacji miofibryli, dostarczając wglądu w kruchość mięsa12. Metoda MFI polega na pomiarze fragmentacji białek miofibrylarnych, która bezpośrednio koreluje z kruchością mięsa. Test ten uzupełnia tradycyjne oceny jakości mięsa i oferuje głębsze zrozumienie procesów biochemicznych, które przyczyniają się do różnic w kruchości mięsa.
W tym kontekście, niniejsze badanie badało mięśnie szkieletowe buhajów Bos indicus w porównaniu z buhajami mieszańcami (Bos taurus × Bos indicus) wykończonymi w oborze, mając na celu wyjaśnienie różnic w cechach jakości mięsa.
Protokół
Wszystkie procedury z udziałem zwierząt były zgodne z etycznymi standardami badań ustanowionymi przez Komisję Etyki ds. Wykorzystania Zwierząt (CEUA) „Universidade Estadual Paulista Júlio de Mesquita Filho” – kampus UNESP Botucatu, zgodnie z protokołem 0171/2018.
1. Zwierzęta doświadczalne
- Wykończ 30 byków rasy Nellore (Bos indicus) oraz 30 byków F1 Angus-Nellore (Bos taurus × Bos indicus) w wieku 20-24 miesięcy w systemie intensywnego tuczu (feedlot). Umieść obie grupy zwierząt w zbiorowych zagrodach o wymiarach 5 m x 6 m z betonową podłogą, wyposażonych w poidełka muszlowe, mieszcząc do pięciu zwierząt w jednej zagrodzie. Upewnij się, że wszystkie zwierzęta należą do tej samej grupy zarządczej (urodzone i wychowane w tym samym gospodarstwie) i są poddawane takiemu samemu okresowi tuczu.
UWAGA: W niniejszym badaniu średnia początkowa masa ciała byków Nellore wynosiła 370,7 kg, natomiast średnia początkowa masa ciała byków F1 Angus-Nellore wynosiła 380,8 ± 17 kg. - Dawka paszowa w tuczu
- Upewnij się, że dawka wykończeniowa składa się w 11,3% z pasz objętościowych (siano Tifton i bagassa z trzciny cukrowej) oraz w 88,7% z koncentratów (mielone suche ziarno kukurydzy, mączka sojowa, mokre ziarna destylacyjne kukurydzy, sucha pasza glutenowa z kukurydzy oraz baza mineralna). Karm zwierzęta przez 120 dni, podając pasze ad libitum dwa razy dziennie (o godzinie 10:00 i 16:00).
- Ubój
- Zarejestruj końcową masę ciała (BWf) na koniec okresu doświadczalnego. Przetwórz wszystkie zwierzęta w pobliskiej rzeźni, przestrzegając standardowych procedur kontrolnych. Przed ubojem zapewnij zwierzętom minimum 16 h postu, z wyłączeniem paszy i wody.
UWAGA: Byki F1 Angus-Nellore osiągnęły końcową masę ciała 615,09 ± 57,53 kg, natomiast byki Nellore osiągnęły masę 545,47 ± 11,45 kg.
- Zarejestruj końcową masę ciała (BWf) na koniec okresu doświadczalnego. Przetwórz wszystkie zwierzęta w pobliskiej rzeźni, przestrzegając standardowych procedur kontrolnych. Przed ubojem zapewnij zwierzętom minimum 16 h postu, z wyłączeniem paszy i wody.
- Ocena cech tuszy
- Zważ początkowo tusze wołowe, a następnie poddaj je chłodzeniu w temperaturze 2-4 °C przez 48 h. Pomiary obejmują masę gorącej tuszy (HCW), powierzchnię mięśnia oka (REA) oraz grubość tłuszczu grzbietowego (BFT) na styku 12th/13th żebra, zgodnie z zaleceniami13. Wyznacz REA metodą siatki z użyciem małej siatki (18 cm x 13 cm) i zmierz BFT w milimetrach za pomocą suwmiarki.
- Zmierz REA w każdej tuszy, używając siatki retikularnej (takiej samej, jak w systemie klasyfikacji USDA Yield Grade), podzielonej na kwadraty 1 cm² z kropką w środku. Zsumuj wszystkie kwadraty wewnątrz obrysu mięśnia oka oraz te wzdłuż konturu obrysu przechodzące przez środkową kropkę.
- Zmierz BFT w określonym punkcie miejsca oceny, w dowolnym miejscu między 12th/13th żebrami. Aby wyznaczyć ten punkt, zmierz długość mięśnia oka; następnie, zaczynając od brzegu przyśrodkowego „A”, wyznacz punkt w trzech czwartych długości mięśnia oka i w połowie szerokości „B”. Przymierz suwmiarkę przez ten punkt, prostopadle do wskazanego żebra, do styku między tłuszczem podskórnym a tłuszczem międzymięśniowym. Zmierz tłuszcz podskórny, ustawiając suwmiarkę prostopadle do linii tłuszczu podskórnego, od punktu styku (Supplemental Figure S1).
- Zważ początkowo tusze wołowe, a następnie poddaj je chłodzeniu w temperaturze 2-4 °C przez 48 h. Pomiary obejmują masę gorącej tuszy (HCW), powierzchnię mięśnia oka (REA) oraz grubość tłuszczu grzbietowego (BFT) na styku 12th/13th żebra, zgodnie z zaleceniami13. Wyznacz REA metodą siatki z użyciem małej siatki (18 cm x 13 cm) i zmierz BFT w milimetrach za pomocą suwmiarki.
- Pobieranie próbek
- Pobierz próbkę mięśnia Longissimus thoracis (LT) z lewej połowy tuszy (fragment mięsa o długości ± 12,0 cm), między 11th a 13th żebrem w kierunku kranialnym. W laboratorium podziel próbki mięsa na steki o grubości 2,54 cm.
- Dojrzewanie
- Oceń cechy jakościowe mięsa po 14-dniowym okresie dojrzewania na mokro w temperaturze 0-2 °C w inkubatorze BOD (biologicznego zapotrzebowania na tlen). Do analizy barwy mięsa, pH, tłuszczu wewnątrzmięśniowego, ubytku cieczy (purge loss), pojemności wiązania wody, obiektywnej kruchości i ubytków podczas obróbki termicznej użyj steków o grubości 2,54 cm. Pakuj steki oddzielnie w worki plastikowe do wysokiej próżni o niskiej przepuszczalności tlenu, a po osiągnięciu czasu dojrzewania przechowuj je w zamrażarce w temperaturze -20 °C do momentu analizy. Rozmrażaj próbki wołowiny w temperaturze 4 °C przez 24 h i wystaw je na działanie tlenu przez 30 min w temperaturze 4 °C (czas napowietrzania/blooming).
2. pH mięsa
- Zmierz pH mięsa za pomocą cyfrowego pH-metru wyposażonego w sondę penetracyjną. Przeskaluj urządzenie przy użyciu buforów o pH 4,0 i 7,0 w temperaturze pokojowej 25 °C. Zmierz pH mięsa w trzech miejscach próbki mięśnia LT. Ręcznie zapisz odczyty, a następnie wyeksportuj arkusz danych; oblicz średnią z trzech odczytów pH mięsa.
3. Tłuszcz wewnątrzmięśniowy
UWAGA: Zawartość tłuszczu domięśniowego (IMF) określono za pomocą spektroskopii w bliskiej podczerwieni (NIR)14 oraz metodą grawimetryczną15.
- Usuń tkankę tłuszczową podskórną z mięśnia LT za pomocą skalpela. Następnie miel i homogenizuj stek przez 5 min za pomocą miksera, wykorzystując około 180 g próbki. Umieść próbkę w kubku, umieść go w komorze pomiarowej i wykonaj skanowanie podpodziałowe różnych stref próbki testowej poprzez obracanie kubka z próbką; połącz strefy w celu uzyskania końcowego wyniku.
- Wykonaj trzy pomiary dla każdej próbki. Po homogenizacji umieść próbki na płytce do późniejszego odczytu. Ustaw aparat na transmisję NIR, z monochromatorem z ruchomą siatką skanującym zakres od 850 nm do 1050 nm.
- Wyeksportuj arkusz danych, a następnie oblicz średnią z trzech pomiarów dla IMF. Wyniki wyraź w procentach, stosując wzór: [(średnia IMF ÷ masa próbki) × 100].
- Połącz i homogenizuj próbki mięśnia LT (3,0 g) z roztworem chloroform/metanol (2:1) przez 2 min i poddaj je wirowaniu (700 × g; 10 min; 20 °C), aby rozdzielić fazy: hydrofilową (górną), stałą (środkową) i hydrofobową (dolną).
- Przefiltruj fazę hydrofobową uzyskaną po wirowaniu, używając papieru filtracyjnego na lejku z lekkim podciśnieniem. Przenieś filtrat (faza dolna; lipidy w chloroformie) do kolby oznaczonej jako faza lipidowa, a następnie, po kilku minutach odstawienia, przenieś co najmniej 5 ml filtratu do wcześniej zważonego zlewka. Następnie odnotuj objętość warstwy chloroformu (co najmniej 150 ml) i odessij warstwę alkoholową.
- Homogenizuj 100 g aliquoty próbki świeżej lub mrożonej tkanki przez 2 min z mieszaniną 100 ml chloroformu i 200 ml metanolu. Dodaj do mieszaniny 100 ml chloroformu, mieszaj przez 30 s, dodaj 100 ml wody destylowanej i mieszaj przez kolejne 30 s.
- Przefiltruj homogenat przez papier filtracyjny na lejku z lekkim podciśnieniem. Gdy osad wyschnie, dociśnij go dnem zlewka, aby zapewnić maksymalny odzysk rozpuszczalnika.
- Przenieś filtrat do cylindra mierniczego o pojemności 500 ml i odstaw na kilka minut w celu rozdzielenia i klarowania. Odnotuj objętość warstwy chloroformu (co najmniej 150 ml) i odessij warstwę alkoholową.
- Upewnij się, że górna warstwa została całkowicie usunięta; warstwa chloroformu zawiera oczyszczone lipidy. Aby przeprowadzić ilościową ekstrakcję lipidów, odzyskaj lipidy uwięzione w osadzie tkankowym, mieszając osad i papier filtracyjny ze 100 ml chloroformu.
- Przefiltruj mieszaninę przez lejek i wypłucz kielich blendera oraz osad łącznie 50 ml chloroformu. Wymieszaj ten filtrat z pierwotnym filtratem przed usunięciem warstwy alkoholowej.
UWAGA: Filtracja przebiega zazwyczaj szybko; dociśnij dnem zlewka wyschnięty osad, aby zapewnić maksymalny odzysk rozpuszczalnika.
- Wysusz próbki w piekarniku, schłodź je w eksykatorze przez co najmniej 24 h, umieść w piekarniku w temperaturze 110 °C do całkowitego odparowania rozpuszczalnika, ponownie schłodź w eksykatorze przez noc i na koniec ponownie zważ.
- Wyznacz zawartość IMF, obliczając różnicę między masą początkową a końcową zlewka.
4. Barwa mięsa
- Zkalibruj urządzenie, używając czarnej i białej płytki wzorcowej. Umieść białą płytkę kalibracyjną w pobliżu środka płytki. Podczas kalibracji korzystaj z obszaru w pobliżu środka płytki. Kalibracja jest zakończona po trzykrotnym mignięciu lampy.
- Wykonaj pomiary po 30 min w temperaturze 4 °C (czas rozkwitu). Odczytaj wartości koloru z trzech różnych miejsc na próbce mięśnia LT, starannie unikając tkanki łącznej i tłuszczu.
- W temperaturze pokojowej (20 °C) oblicz średnią z tych pomiarów, zgodnie z zaleceniami16.
5. Straty wody
- Oceń ubytek cieczy (PL) dla wszystkich próbek. Wyznacz PL sekcji polędwicy wołowej, mierząc różnicę między masą początkową przed zamrażaniem a masą końcową po zamrażaniu/rozmrażaniu.
UWAGA: Nie należy oceniać PL w przypadku kontrolnych polędwic wołowych, które nie były mrożone. - Oceń zdolność do wiązania wody (WHC) na podstawie różnicy masy próbki mięsa (około 1,0 g) przed i po poddaniu jej naciskowi 10 kg przez 5 min17.
6. Obiektywna kruchość mięsa
UWAGA: Pomiar siły ścinania Warnera-Bratzlera (WBSF) przeprowadzono zgodnie z opisem18,19.
- Umieść próbki na kratce przymocowanej do szklanego naczynia ogniotrwałego i piecz je w przemysłowym piekarniku elektrycznym do osiągnięcia temperatury końcowej 71 °C. Po upieczeniu schłodź, zważ i przechowuj próbki w lodówce w temperaturze 4 °C przez 24 h.
- Wyznacz ubytki podczas obróbki cieplnej (CL) korzystając ze wzoru
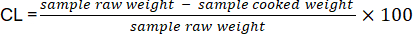 .
- Wyznacz ubytek treści (drip loss) poprzez zważenie naczynia ogniotrwałego przed i po upieczeniu próbki. W tym celu umieść próbki na kratce nad szklanym naczyniem ogniotrwałym, aby umożliwić odpływ soków mięsnych i tłuszczu podczas pieczenia.
- Wyznacz ubytek przez odparowanie poprzez zważenie samej próbki przed i po upieczeniu.
- Zanotuj masę surową i upieczoną, a następnie oblicz procentowy ubytek treści (DL) jako masę odcieku po upieczeniu podzieloną przez masę rozmrożonej próbki mięsa.
- Oblicz procentowy ubytek przez odparowanie (EVP) korzystając ze wzoru [100 - (masa po upieczeniu) ÷ masa surowa × 100].
- W celu oznaczenia WBSF, pobierz osiem rdzeni o średnicy 1,27 cm za pomocą analizatora tekstury wyposażonego w ostrze Warnera-Bratzlera o szerokości 3,07 mm i krawędzi tnącej w kształcie litery V (kąt 60°).
- Wyniki przedstaw jako średnią z sześciu wartości na próbkę, wyrażoną w kilogramach (kg), po wykluczeniu wartości ekstremalnie niskich i wysokich19.
7. Analiza biochemiczna
UWAGA: Proteolizę pośmiertną oceniano poprzez oszacowanie indeksu fragmentacji miofibryli (MFI), zgodnie z oryginalną procedurą opisaną przez Culler et al.20 i dostosowaną dla bydła Bos indicus przez Borges et al.21.
- Zhomogenizować fragmenty około 3 g próbek LT (tkanka mięśniowa odtłuszczona oraz tkanka łączna) w roztworze buforowym zawierającym 100 mM chlorku potasu, 20 mM fosforanu potasu o pH 7, 1 mM kwasu etylenodiaminotetraoctowego (EDTA), 1 mM chlorku magnezu i 1 mM azotku sodu w temperaturze 2 °C, a następnie odwirować (1 000 × g przez 15 min w 4 °C).
- Resuspender osad w 10 objętościach (v/w) medium izolacyjnego za pomocą pręta szklanego, następnie ponownie odwirować przy 1 000 × g przez 15 min i odlać nadsącz.
- Resuspender osad w 2,5 objętościach (v/w) medium izolacyjnego i oddzielić tkankę łączną oraz zanieczyszczenia, przepuszczając zawiesinę przez sito polietylenowe (18 mesh). Użyć dodatkowych 2,5 objętości (v/w), aby umożliwić przejście miofibryli przez sito.
- Wyznaczyć stężenie białka w zawiesinie miofibryli metodą biuretową według Gornalla i wsp.22. Rozcieńczyć alikwot zawiesiny miofibryli medium izolacyjnym do stężenia białka 0,5 ± 0,05 mg/mL.
- Niezwłocznie zmierzyć absorbancję tej zawiesiny przy 540 nm. Wyznaczyć MFI za pomocą spektrofotometrii przy 540 nm. Pomnożyć absorbancję przez 200, aby otrzymać wartość MFI dla każdej próbki (i podać ją jako indeks bez jednostki miary).
8. Analiza biologii molekularnej
UWAGA: W celu analizy ciężkiego łańcucha miozyny (MyHC), najliczniejszego białka w mięśniach szkieletowych bydła, próbki LT z obu grup przetwarzano zgodnie z protokołem opisanym w literaturze23,24.
- Przeprowadzić rozdział elektroforetyczny z wykorzystaniem żelu gradientowego SDS-PAGE (7-10%) oraz żelu koncentrującego 4%. Nanieść 25 µL każdej próbki na żel i prowadzić elektroforezę przy 70 V, 28 mA i 4 °C przez 1 h, a następnie przy 180 V, 12 mA i 4 °C przez 29 h.
- W trakcie przebiegu zastosować dwa różne bufory: górny bufor do żelu składający się z glicyny, Tris(hydroksymetyl)aminometanu, dodecylosiarczanu sodu (SDS) i wody destylowanej, natomiast dolny bufor do żelu identyczny z górnym, z dodatkiem merkaptoetanolu.
- Zabarwić żele błękitem Coomassie i zarejestrować obrazy przy użyciu odpowiedniego oprogramowania.
- Zidentyfikować izoformy MyHC (MyHC-I, MyHC-IIa, MyHC-IIx/d) na podstawie ich mas cząsteczkowych (odpowiednio 223.900, 224.243 i 223.875 kDa). Przeprowadzić analizę półilościową poprzez densytometrię prążków odpowiadających każdej izoformie, korzystając z odpowiedniego oprogramowania.
- Wykorzystać mięsień soleus szczura (Rat soleus) oraz mięsień prostownik długi palców (Extensor digitorum longus, EDL) jako kontrole pozytywne do klasyfikacji izoform MyHC, rezerwując w każdym żelu jedno wgłębienie do naniesienia 40 µL przetworzonej próbki.
- Dla wszystkich danych przeprowadzić analizę wariancji (ANOVA) testem F, stosując następujący model:
Yij = µ + ti + Ɛij
gdzie Yij jest wartością obserwowaną jednostki eksperymentalnej odnoszącą się do traktowania i w powtórzeniu j; µ to ogólny efekt średniej; t to efekt traktowania (grupa genetyczna), a ε to błąd eksperymentalny. - Porównać średnie za pomocą testu t Studenta, przyjmując wartość P-value < 0.05 jako prawdopodobieństwo krytyczne.
Wyniki
Tabela 1 przedstawia cechy tuszy dwóch grup genetycznych badanych w niniejszym badaniu. W szczególności zidentyfikowano różnice (P < 0.01) w HCW, REA i BFT, przy czym zwierzęta krzyżowe wykazywały wyższe wartości, co sugeruje efekt heterozji.
| Zmienna¹ | Nellore | F1 Angus x Nellore | SEM | P-wartość |
| BWfinal, kg | 545.47b | 615.09a | 7.32 | <.0001 |
| HCW, kg | 286.87b | 325.12a | 3.26 | <.0001 |
| REA, cm² | 75.17b | 90.48a | 1.66 | <.0001 |
| BFT, mm | 5.72b | 9.16a | 0.62 | 0.001 |
Tabela 1: Cechy tuszy byków rasy Nellore (Bos indicus) i krzyżówek F1 Angus-Nellore (Bos taurus × Bos indicus) wykańczanych w systemie intensywnym. a-b Różne małe litery oznaczają różnice przy P < 0.05. Skróty: BW = masa ciała; HCW = masa gorącej tuszy; REA = powierzchnia mięśnia długiego głowy; BFT = grubość tłuszczu grzbietowego; SEM = błąd standardowy średniej.
Przeprowadzono również porównania cech jakości mięsa (Tabela 2), nie stwierdzono różnic w pH mięsa, czerwieni, PL, EVP i CL (P > 0.05) między bykami rasy Nellore a krzyżówkami F1 Angus-Nellore. Jednak byki krzyżowe charakteryzowały się wyższym IMF, żółcią, WHC i MFI niż byki rasy Nellore (P < 0.05). W konsekwencji cechy jakości mięsa byków rasy Nellore były negatywnie ocenione pod kątem kruchości, wykazując wyższe WBSF i DL (mięso twardsze), a także niższe WHC i wyższą wilgotność.
| Zmienna¹ | Nellore | F1 Angus x Nellore | SEM | Pwartość p |
| pH | 5.58 | 5.63 | 0.06 | 0.122 |
| Wilgotność, % | 74.51 a | 73.65 b | 0.21 | 0.017 |
| IMF spektroskopia bliskiej podczerwieni (NIRS), % | 3.79a | 5.11 b | 0.25 | 0.002 |
| IMF metoda grawimetryczna, % | 1.95 a | 3.11 b | 0.34 | 0.005 |
| Jasność (L*) | 31.57 a | 30.98 b | 0.58 | 0.008 |
| Zaczerwienienie (a*) | 14.91 | 15.59 | 0.37 | 0.061 |
| Żółtość (b*) | 5.61 a | 6.19 b | 0.17 | 0.003 |
| Strata przy przedmuchu, % | 23.17 | 21.03 | 1.22 | 0.176 |
| Straty ociekowe, % | 3.96 a | 3.67 b | 0.05 | 0.039 |
| Strata przez odparowanie, % | 22.9 | 24.22 | 1.15 | 0.122 |
| Całkowita ubytkowość podczas obróbki cieplnej, % | 26.8 | 28.08 | 1.04 | 0.764 |
| WHC, % | 61.3 | 63.5 | 1.01 | 0.042 |
| WBSF, kg | 4.68 a | 4.23 b | 0.17 | 0.002 |
| MFI | 64.95 a | 81.76 b | 1.54 | 0.005 |
Tabela 2: Cechy jakości mięsa bydła rasy Nellore (Bos indicus) oraz krzyżówki F1 Angus-Nellore (Bos taurus × Bos indicus) tuczonego w systemie feedlot. a-bRóżne małe litery oznaczają różnice przy P < 0.05. Skróty: IMF = zawartość tłuszczu wmięśniowego; WBSF = siła ścinania Warnera-Blatzlera; MFI = indeks fragmentacji miofibryli; WHC = pojemność wodna mięsa.
Różnice w kruchości mięsa mogą być również związane z różnicami w zawartości MyHC IIa (P < 0,01) pomiędzy grupami eksperymentalnymi (Rysunek 1). Byki F1 Angus-Nellore wykazały wyższą obfitość MyHC IIa w porównaniu z bykami rasy Nellore. Wyniki te sugerują, że u zwierząt rasy Nellore nastąpiła modulacja z włókien szybkich glikolitycznych (MyHC IIx) w stronę włókien szybkich oksydacyjno-glikolitycznych (MyHC IIa). Z kolei u zwierząt F1 Angus-Nellore modulacja ta miała mniejszą skalę, wykazując zauważalny wzrost hipertroficzny włókien szybkich glikolitycznych (MyHC IIx). Zatem ekspresja izoform MyHC-IIa różniła się znacząco pomiędzy tymi grupami.
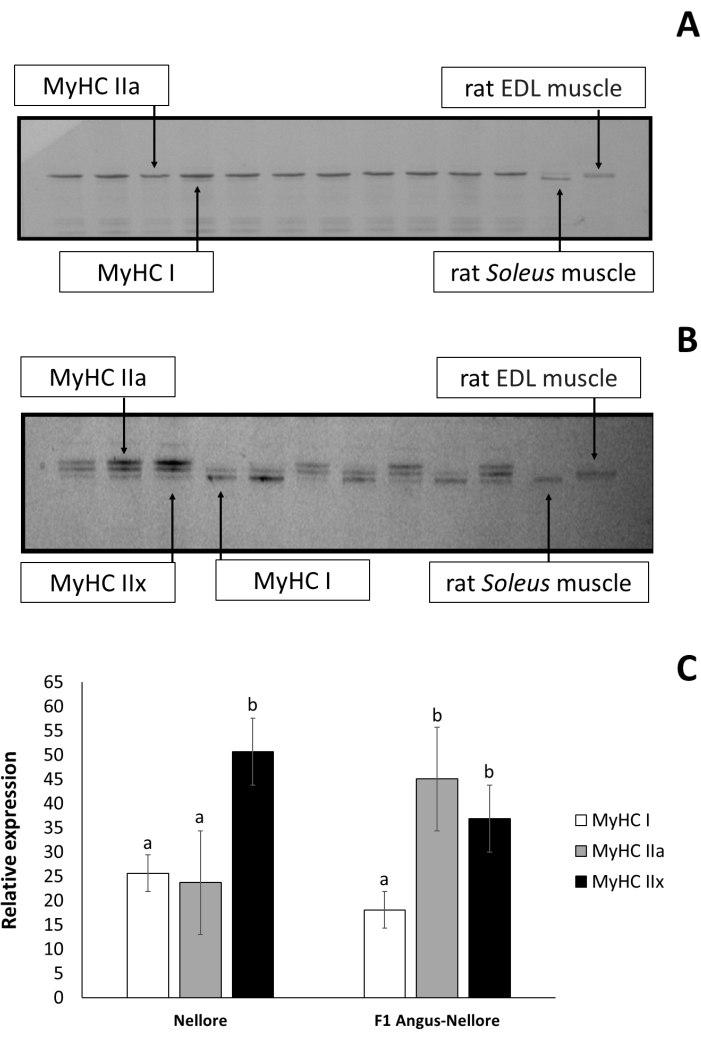
Rycina 1: Elektroforeza izoform ciężkiego łańcucha miozyny mięśnia Longissimus thoracis. (A) byki rasy Nellore i (B) byki F1 Angus-Nellore. (C) Względny procent izoform MyHC w mięśniu Longissimus thoracis dwóch grup eksperymentalnych (żel SDS-PAGE 7-10%). Skróty: MyHC = ciężki łańcuch miozyny; SDS-PAGE = elektroforeza w żelu poliakrylamidowym z dodecylosiarczanem sodu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rysunek uzupełniający S1: Metoda pomiaru grubości tłuszczu podszywnego (BFT) na styku tłuszczu podskórnego i tłuszczu wewnątrzmięśniowego.Proces ten obejmuje identyfikację konkretnych punktów anatomicznych, w tym brzegu przyśrodkowego „A” oraz punktu znajdującego się w trzech czwartych długości mięśnia długiego pleców (rib eye) i w połowie jego szerokości „B”. Następnie suwmiarkę ustawia się prostopadle do wskazanego żebra w punkcie B, rozciągając ją do styku między tłuszczem podskórnym a tłuszczem wewnątrzmięśniowym. Grubość tłuszczu podskórnego mierzy się, ustawiając suwmiarkę pod kątem prostym do linii tłuszczu podskórnego od punktu styku. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Podczas oceny tuszy kluczowe znaczenie ma dokładny pomiar cech wzrostu i jakości po 48-godzinnym okresie chłodzenia, aby uzyskać spójne i porównywalne dane. Oba modele biologiczne wykazywały rozbieżne cechy tuszy, w szczególności HCW, REA i BFT, które są zgodne z wynikami przedstawionymi w innych badaniach. Średnia HCW buhajów Nellore jest zgodna z preferencjami rynku brazylijskiego, który priorytetowo traktuje większą produkcję mięsa na jednostkę zwierzęcia przy mniejszej zawartości tłuszczu25. I odwrotnie, bydło mieszańcowe (Bos taurus × Bos indicus) ma wyższą masę tuszy i większą marmurkowatość, co daje mięso o wyższej jakości sensorycznej. Wychodzi to naprzeciw zapotrzebowaniu rynku na wołowinę o podwyższonej wartości dodanej, ponieważ cechy te są związane z produktami mięsnymi premium26.
Uzyskane średnie wartości pH, w zakresie od 5,3 do 5,5, są ściśle zgodne z wartościami podawanymi w literaturze dla wołowiny27, które zwykle wahają się od 5,3 do 5,6. Zmienne kolorystyczne L*, a*, b* są zgodne ze średnimi wartościami dla bydła mięsnego obserwowanymi w innych badaniach 7,28. W badaniach tych stwierdzono zmienne b*, a* i L* w zakresie odpowiednio od 4,0 do 7,0, od 13 do 16 i od 30,0 do 32,0. W tych testach jakości mięsa przygotowanie próbki musi być skrupulatne, obejmujące właściwe obchodzenie się z próbkami mięśni, w tym znormalizowany proces dojrzewania i czas kwitnienia przed analizą, aby zapewnić jednorodność. Protokoły kalibracji i pomiarów wymagają, aby wszystkie urządzenia, takie jak pH-metry i kolorymetry, były precyzyjnie kalibrowane przed użyciem w celu zachowania integralności pomiarów.
Kolor mięsa wynika z interakcji tlenu z mioglobiną w mięśniach, a stężenie mioglobiny wydaje się być proporcjonalne do wielkości zwierzęcia29. Podobne wyniki zostały zgłoszone przez Purchas i wsp.30 dla zwierząt europejskich (Bos taurus), gdzie zaobserwowali większe zaczerwienienie i zażółcenie mięsa szybko rosnącego bydła rasy Angus w porównaniu ze zwierzętami wolno rosnącymi. Wcześniejsze badania wykazały potencjalną użyteczność parametrów barwy (L*, a*, b*) jako narzędzia do przewidywania kruchości wołowiny zarówno u zwierząt rasy European31 , jak i Zebu32.
Badanie barwy mięsa ma kluczowe znaczenie, ponieważ należy ono do głównych czynników branych pod uwagę przez konsumentów przy zakupie mięsa, wraz z kwestiami bezpieczeństwa żywności (pochodzenie produktu i handel), rodzajem i rozmiarem kawałka, a także otłuszczeniem i tłuszczem śródmięśniowym (marmurkowatość). W związku z tym, aby zwiększyć prawdopodobieństwo, że mięso będzie delikatne i soczyste, zaleca się, aby konsumenci oceniali kolor mięsa, wielkość kawałków, a w szczególności marmurkowatość lub tłuszcz śródmięśniowy i podskórny33. Niemniej jednak oczywiste jest, że kolor ma największy wpływ na podejmowanie decyzji podczas zakupu mięsa.
Średnia uzyskana wartość WBSF mieściła się w przedziale od 4,0 do 4,7 kg. Obiektywna analiza kruchości mięsa jest szeroko stosowana do oceny kruchości mięsa, ponieważ uważa się, że jest ona stosunkowo opłacalna i nie wymaga udziału panelistów ani testów sensorycznych34. Biorąc pod uwagę subiektywny charakter ocen konsumentów dotyczących kruchości wołowiny, na który wpływ ma IMF35, metody instrumentalne mają kluczowe znaczenie dla przewidywania ocen kruchości. Ponadto czułość niektórych metod, takich jak spektroskopia w bliskiej podczerwieni, wymaga precyzyjnej kalibracji i spójności w przygotowaniu próbki; Wszelkie odchylenia mogą skutkować niedokładnymi odczytami.
Pierwotna koncepcja instrumentu WBSF uległa pewnym zmianom od lat 60.36. W kontekście wołowiny metoda ta została ustandaryzowana przez Wheelera i wsp.37. Zdaniem autorów, przygotowanie i gotowanie próbek musi być skrupulatnie kontrolowane: próbki umieszcza się na siatce nad szkłem ogniotrwałym i gotuje się, aż osiągną temperaturę wewnętrzną 71 °C. Po ugotowaniu próbki są schładzane, ważone i przechowywane w lodówce w temperaturze 4 °C przez 24 godziny w celu ustabilizowania ich przed dalszą analizą. Straty podczas gotowania są obliczane przy użyciu wzorów na wycieki i straty związane z parowaniem, zapewniając, że zmiany masy spowodowane gotowaniem są dokładnie określone ilościowo. Pomiar WBSF jest kluczowym krokiem, obejmującym przecięcie ośmiu rdzeni na próbkę, przy czym średnia z sześciu wartości siły ścinającej jest podawana po wyłączeniu skrajności, co zapewnia wiarygodną miarę kruchości mięsa. Całkowite straty podczas gotowania w obecnym badaniu, reprezentowane przez sumę EL i DL, były porównywalne z tymi zgłoszonymi u bydła mięsnego w oborze38. Ponadto powszechnie przyjmuje się, że zmiany w tkance łącznej wywołane ciepłem przyczyniają się do efektu zmiękczającego. Badania wykazały wpływ końcowej temperatury gotowania na kruchość, ujawniając zmiany w strukturze miofibrylarnej, przy czym denaturacja białek wpływa zarówno na kruchość, jak i CL39,40. Takie zdarzenia chemiczne lub molekularne mogą wpływać na właściwości sensoryczne ze względu na zmiany WHC.
Obserwowane wyniki dotyczące CL i WHC są zgodne z oczekiwaniami, ponieważ powszechnie wiadomo, że dystrybucja i dostępność wody w mięśniach odgrywają kluczową rolę w soczystości, kruchości i smaku41. W związku z tym wyższy DL i niższy WHC prowadzą do twardszego i mniej soczystego mięsa, jak zaobserwowano w tym badaniu dla buhajów Nellore.
Analizy biochemiczne, takie jak MIF, są stosowane jako wskaźnik kruchości mięsa. Wyniki uzyskane w obecnym badaniu potwierdzają, że MFI w wołowinie zmniejsza się wraz ze wzrostem wartości WBSF, co może wskazywać na zmniejszoną fragmentację miofibrylarów w twardszym mięsie. W ten sposób MFI służy jako wskaźnik proteolizy włókien mięśniowych, zwiększając się wraz ze zmniejszaniem się WBSF42. Naukowcy stwierdzili, że wyższy wskaźnik proteolizy miofibrylarnej doprowadził do zwiększonej kruchości wołowiny43 i jagnięciny44. Ten test biochemiczny do proteolizy pośmiertnej polega na homogenizacji próbek LT w określonym roztworze buforowym, a następnie odwirowaniu i ponownym zawieszeniu, przy czym stężenie białka określa się metodą biuretu. MFI jest następnie mierzony za pomocą spektrofotometrii, uzyskując indeks odzwierciedlający stopień fragmentacji miofibrylarnej. Te skrupulatnie kontrolowane kroki zapewniają integralność i wiarygodność danych, które mają kluczowe znaczenie dla oceny jakości i wartości rynkowej produktów mięsnych.
Co więcej, MIF może wyjaśnić ponad 50% różnic w kruchości dojrzałego mięsa. Badając różne rasy lub grupy, różnice w kruchości mięsa nie zależą wyłącznie od czynników genetycznych. Szczególnie w przypadku mięśnia LT, jak wskazano w tym badaniu, zmienność tkliwości przypisuje się przede wszystkim proteolizie białek miofibrylarnych oraz, w mniejszym stopniu, długości sarkomeru i zawartości tkanki łącznej45. Niemniej jednak współpraca między WBSF a MIF może służyć jako cenne narzędzie do wykrywania problemów z kruchością mięsa spowodowanych procesami poubojowego przechowywania w chłodniach w przemyśle mięsnym. Należy zauważyć, że chociaż nasze badanie dostarcza informacji na temat różnic między typami ras, nie stanowi ono kompleksowej oceny genetycznej ze względu na wielkość próby i zakres naszych badań.
Analiza molekularna wymaga ścisłej kontroli warunków elektroforezy i późniejszej analizy izoform MyHC w celu zapewnienia niezawodności separacji i identyfikacji białek. Przestrzeganie tych krytycznych etapów zapewnia solidność i odtwarzalność wyników badania. Rodzaj włókien mięśniowych odgrywa fundamentalną rolę w modulowaniu cech wzrostu i kruchości wołowiny. Białka MyHC są najliczniejszymi białkami w mięśniach bydlęcych46 i są powszechnie badane pod kątem molekularnego rozpoznawania typów włókien w każdym mięśniu. Niektóre izoformy MyHC, takie jak MyHC-IIx, zostały zasugerowane jako biomarkery kruchości mięsa w Bos taurus47. Przeprowadzono jednak ograniczone badania oceniające geny kodujące MyHC i określające ilościowo ich izoformy u zwierząt Zebu (Bos indicus). Brak izoformy MyHC-IIb u badanych zwierząt jest zgodny z wynikami badań nad identyfikacją i ekspresją MyHC w mięśniach szkieletowych dorosłego bydła48. W szczególności u bydła rasy Nellore wcześniejsze badania nie były w stanie wykryć obecności izoformy MyHC-IIb za pomocą elektroforezy w mięśniu LT. Ta izoforma jest bardziej powszechna u ras Bos taurus o podwójnych mięśniach, takich jak Blonde d'Aquitaine49.
Związek między rodzajem włókien mięśniowych a kruchością wołowiny jest przedmiotem toczącej się debaty. Zmienność próbki jest istotnym czynnikiem, ponieważ różnice w składzie mięśni i rodzajach włókien wśród zwierząt mogą prowadzić do niespójnych wyników. Czynniki środowiskowe, w tym dieta i warunki obchodzenia się z mięsem, również odgrywają kluczową rolę w kształtowaniu cech jakości mięsa. Ograniczenia te podkreślają potrzebę rygorystycznej kontroli i standaryzacji w całym procesie pomiarowym w celu zapewnienia wiarygodnych i porównywalnych wyników. Podobnie jak w przypadku wyników niniejszego badania, negatywny wpływ MyHC-I na tkliwość mięśni LT odnotowano u bydła rasy Charolais50,51. Natomiast inne badania opisywały pozytywny wpływ MyHC-I na kruchość mięsa u różnych ras, w tym Aubrac, Salers, Limousin, Charolais, Montbéliard, Holstein i Blonde d'Aquitaine 52,53,54. Rozbieżne wyniki znalezione w literaturze można przypisać różnicom genotypowym i ograniczeniom metod stosowanych do separacji i identyfikacji tej izoformy w bydlęcym mięśniu LT. Poza tym różne środowiska tła i diety mogą również wpływać na jakość mięsa i cechy typu mięśni.
Analizy biochemiczne, w szczególności MFI, rzuciły światło na mechanizmy pośmiertnej kruchości wołowiny, pokazując kluczową rolę rodzajów włókien mięśniowych, izoform łańcucha ciężkiego miozyny i ich wpływu na kruchość wołowiny. Stwierdzono brak niektórych izoform MyHC u bydła rasy Bos indicus , co ma wpływ na zmienność kruchości wołowiny. Ogólnie rzecz biorąc, złożone wzajemne oddziaływanie czynników genetycznych i biochemicznych reguluje kruchość wołowiny i podkreśla potrzebę dalszych badań w tej dziedzinie. Integracja wielu metod, takich jak pomiar WBSF, analiza zawartości IMF i elektroforeza izoformowa MyHC, pomaga wyjaśnić różnice w jakości mięsa. Opisane szczegółowe protokoły oferują precyzyjne etapy oceny jakości mięsa, zapewniając, że procedury mogą być dokładnie odtworzone lub dostosowane przez innych badaczy. Ponadto odkrycia dostarczają cennych informacji genetycznych, podkreślając znaczące różnice w cechach jakości mięsa między buhajami Bos indicus a mieszańcami.
Oświadczenia
Autorzy nie mają nic do ujawnienia. Fundatorzy nie odgrywali żadnej roli w projektowaniu badania, gromadzeniu i analizie danych, podejmowaniu decyzji o publikacji lub przygotowaniu manuskryptu.
Podziękowania
To badanie zostało sfinansowane przez FAPESP (granty 2023/05002-3; 2023/02662-2 i 2024/09871-9), CAPES (kod finansowy 001), CNPq (304158/2022-4) oraz przez PROPE (grant IEPe-RC numer 149) ze Szkoły Medycyny Weterynaryjnej i Nauk o Zwierzętach, Uniwersytet Stanowy w São Paulo.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Aceton | Merk, Darmstadt, Niemcy | CAS 67-64-1 | 100014 | roztwory stosowane do separacji elektroforetycznej Przeciwciało |
| anty-MYH-1 | Merk, Darmstadt, Niemcy | MABT846 | Przeciwciało |
| anty-miozynowe | Abcam, Massachusetts, Stany Zjednoczone | ab37484 | Przeciwciało |
| przeciwko miozynie przeciwko miozynie w łańcuchu ciężkim przeciwko miozynie-2 (MYH2) | Merk, Darmstadt, Niemcy | MABT840 | Extensor digitorum longus (EDL) |
| Inkubator biologicznego zapotrzebowania na tlen (BZT) | TECNAL, Sã o Paulo, Brazylia | TE-371/240L | Chloroform dojrzewający w mięsie |
| ; bezwzględny odczynnik analityczny | Sigma-Aldrich, Missouri, Stany Zjednoczone | 67-66-3 | Tłuszcz śródmięśniowy |
| System CIELab | Konica Minolta Sensing, Tokio, Japonia | Kolorymetr CR-400 | Kolor mięsa |
| Coomassie Blue | Sigma-Aldrich, Missouri, Stany Zjednoczone | CI 42655) | Ciężki łańcuch Myosin |
| Elektryczny piekarnik | Venâ ncio Aires, Rio Grande do Sul, Brazylia | Kruchość mięsa | |
| Etanol | Merk, Darmstadt, Niemcy | 64-17-5 | roztwory stosowane do separacji elektroforetycznej |
| Kwas etylenodiaminotetraoctowy | Sigma-Aldrich, Missouri, Stany Zjednoczone | 60-00-4 | Proteoliza pośmiertna |
| Kolby szklane | Sigma-Aldrich, Missouri, Stany Zjednoczone | roztwory stosowane do Separacje elektroforetyczne | |
| Glycine | Sigma-Aldrich, Missouri, Stany Zjednoczone | G6761 | ciężkim łańcuchu miozyny |
| - FoodScan | Foss NIRSystems, Madson, Stany Zjednoczone | FoodScan™ 2 | Tłuszcz śródmięśniowy |
| Chlorek magnezu | Sigma-Aldrich, Missouri, Stany Zjednoczone | 7786-30-3 | Proteoliza pośmiertna |
| Mercaptoetanol | Sigma-Aldrich, Missouri, Stany Zjednoczone | M6250 | o ciężkim łańcuchu miozyny |
| , bezwzględny odczynnik analityczny | Sigma-Aldrich, Missouri, Stany Zjednoczone | 67-56-1 | Miernik pH tłuszczu śródmięśniowego |
| LineLab, Sã o Paulo, Brazylia | AKLA 71980 | Meat pH | |
| PlusOne 2-D Quant Kit | GE Healthcare | Kod produktu 80-6483-56 | Proteoliza pośmiertna |
| Polipropylen | Sigma-Aldrich, Missouri, Stany Zjednoczone | roztwory stosowane do separacji elektroforetycznych | |
| Chlorek potasu | Sigma-Aldrich, Missouri, Stany Zjednoczone | 7447-40-7 | Proteoliza |
| pośmiertnaFosforan potasu | Sigma-Aldrich, Missouri, Stany Zjednoczone | P0662 | Proteoliza pośmiertna |
| R oprogramowanie | Wiedeń, Austria | wersja 3.6.2 | Analiza danych |
| Azydek sodu | Sigma-Aldrich, Missouri, Stany Zjednoczone | 26628-22-8 | Proteoliza pośmiertna |
| Dodecylosiarczan sodu ( SDS) | Sigma-Aldrich, Missouri, Stany Zjednoczone | 822050 | łańcuchowy miozyny |
| Perkin Elmer, Shelton, Stany Zjednoczone | Perkin Elmer Lambda 25 UV/Vis | Proteoliza pośmiertna | |
| System Analizy Statystycznej | SAS, Cary, Karolina Północna, Stany Zjednoczone | wersja 9.1, | Analiza danych |
| Analizator tekstur | AMETEK Brookfield, Massachusetts, Wielka Brytania Stany | CTX | Kruchość mięsa |
| Tris(hydroksymetylo)aminometan | Sigma-Aldrich, Missouri, Stany Zjednoczone | 77-86-1 | łańcuchowa o ciężkim łańcuchu miozyny |
| Indrel Scientific, Londrina, Paraná, Brazylia. | INDREL IULT 335 D - LCD | Przechowywanie próbek | |
| Woda ultraczysta | Elga PURELAB Ultra Rozwiązania systemowe | stosowane do separacji | |
| Mieszalnik szybkotnący Ultra-Turrax | Marconi – MA102/E, Piracicaba, Sã o Paulo, Brazylia | Proteoliza pośmiertna |
Bibliografia
- Nunes, C. L. deC., Pflanzer, S. B., Rezende-de-Souza, J. H., Chizzotti, M. L. Beef production and carcass evaluation in Brazil. Anim Front. 14 (2), 15-20 (2024).
- MAPA. Projeções Do Agronegócio: Brasil 2017/18 a 2027/28 Projeções de Longo Prazo / Ministério Da Agricultura, Pecuária e Abastecimento. Biblioteca Nacional de Agricultura. , BINAGRI. Brasília-DF. (2018).
- Bernués, A., Ripoll, G., Panea, B. Consumer segmentation based on convenience orientation and attitudes towards quality attributes of lamb meat. Food Qual Prefer. 26, 211-220 (2012).
- Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding management and marketing decisions on feedlots: A national survey in Brazil (Part II). Can J Anim Sci. 100 (4), 759-770 (2020).
- de Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding the optimal economic slaughter endpoint in feedlots: A national survey in Brazil (Part I). Can J Anim Sci. 100 (4), 745-758 (2020).
- Santiago, B., et al. Comparison of dental carcass maturity in non-castrated male F1 Angus-Nellore cattle finished in feedlot. Food Sci Anim Resour. 41 (3), 554-562 (2021).
- Miguel, G. Z., et al. Immunocastration improves carcass traits and beef color attributes in Nellore and Nellore×Aberdeen Angus crossbred animals finished in feedlot. Meat Sci. 96 (2), 884-891 (2014).
- Costa, N. V., et al. Carcass and meat quality traits in Nellore and F1 Nellore-Araguaia crosses. Genet Mol Res. 14 (2), 5379-5389 (2015).
- Pinto, A. C. J., Millen, D. D. Nutritional recommendations and management practices adopted by feedlot cattle nutritionists: the 2016 Brazilian survey. Can J Anim Sci. 99 (2), 392-407 (2019).
- Costa Junior, C., et al. Brazilian beef cattle feedlot manure management: A country survey. J Anim Sci. 91 (4), 1811-1818 (2013).
- Huang, C., et al. Proteomics discovery of protein biomarkers linked to meat quality traits in post-mortem muscles: Current trends and future prospects: A review. Trends Food Sci Technol. 105, 416-432 (2020).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20, 609-619 (2020).
- Official United States Standards for Grades of Carcass Beef. United States Standards for Grades of Carcass Beef. USDA. , Available from: https://www.ams.usda.gov/sites/default/files/media/CarcassBeefStandard.pdf 1-20 (1997).
- Anderson, S. Determination of fat, moisture, and protein in meat and meat products by using the FOSS FoodScan near-infrared spectrophotometer with FOSS artificial neural network calibration model and associated database: Collaborative study. J AOAC Int. 90 (4), 1073-1083 (2007).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can J Biochem Physiol. 37 (8), 911-917 (1959).
- Hernández Salueña, B., Sáenz Gamasa, C., Diñeiro Rubial, J. M., Alberdi Odriozola, C. CIELAB color paths during meat shelf life. Meat Sci. 157, 107889(2019).
- Rao, M. V., Gault, N. F. S., Kennedy, S. Variations in water-holding capacity due to changes in the fibre diameter, sarcomere length and connective tissue morphology of some beef muscles under acidic conditions below the ultimate pH. Meat Sci. 26 (1), 19-37 (1989).
- Wheeler, T. L., Koohmaraie, M., Cundiff, L. V., Dikeman, M. E. Effects of cooking and shearing methodology on variation in Warner-Bratzler shear force values in beef. J Anim Sci. 72 (9), 2325-2330 (1994).
- AMSA. Research Guidelines for Cookery, Sensory Evaluation, and Instrumental Tenderness Measurements of Meat. American Meat Science Association Educational Foundation. , (2015).
- Culler, R. D., Parrish, F. C., Smith, G. C., Cross, H. R. Relationship of myofibril fragmentation index to certain chemical, physical and sensory characteristics of bovine longissimus muscle. J Food Sci. 43 (4), 1177-1180 (1978).
- Borges, B. O., et al. Polymorphisms in candidate genes and their association with carcass traits and meat quality in Nellore cattle. Pesqui Agropecu Bras. 49 (5), 364-371 (2014).
- Gornall, A. G., Bardawill, C. J., David, M. M. Determination of serum proteins by means of the biuret reaction. J Biol Chem. 177 (2), 751-766 (1949).
- Chardulo, L. A. L., et al. Gene and protein expression of myosin heavy chain in Nellore cattle comparing growth or meat tenderness traits. Anim Biotechnol. 32 (3), 300-309 (2019).
- Vechetti-Júnior, I. J., et al. NFAT isoforms regulate muscle fiber type transition without altering can during aerobic training. Int J Sports Med. 34 (10), 861-867 (2013).
- Ferraz, J. B. S., de Felício, P. E. Production systems - An example from Brazil. Meat Sci. 84, 238-243 (2010).
- Liang, R. R., et al. Tenderness and sensory attributes of the longissimus lumborum muscles with different quality grades from Chinese fattened yellow crossbred steers. Meat Sci. 112, 52-57 (2016).
- Viljoen, H. F., De Kock, H. L., Webb, E. C. Consumer acceptability of dark, firm and dry (DFD) and normal pH beef steaks. Meat Sci. 61 (2), 181-185 (2002).
- Lopes, L. S. F., et al. Application of the principal component analysis , cluster analysis , and partial least square regression on crossbreed Angus-Nellore bulls feedlot finished. Trop Anim Health Prod. 52 (6), 3655-3664 (2020).
- Oddy, V. H., Harper, G. S., Greenwood, P. L., McDonagh, M. B. Nutritional and developmental effects on the intrinsic properties of muscles as they relate to the eating quality of beef. Aust J Exp Agric. 41 (7), 921-942 (2001).
- Purchas, R. W., Burnham, D. L., Morris, S. T. Effects of growth potential and growth path on tenderness of beef longissimus muscle from bulls and steers. J Anim Sci. 80 (12), 3211-3221 (2002).
- Wulf, D. M., O’Connor, S. F., Tatum, J. D., Smith, G. C. Using objective measures of muscle color to predict beef Longissimus tenderness. J Anim Sci. 75 (3), 684-692 (1997).
- Baldassini, W. A., et al. Meat quality traits of Nellore bulls according to different degrees of backfat thickness: A multivariate approach. Anim Prod Sci. 57 (2), 363-370 (2017).
- Chardulo, L. A. L., Silveira, A. C., Vianello, F. Analytical aspects for tropical meat quality assessment. Food Quality, Safety and Technology. Lima, G. P. P., Vianello, F. , Springer-Verlag Wien. 53-62 (2013).
- Chen, L., Opara, U. L. Texture measurement approaches in fresh and processed foods - A review. Food Research International. 51 (2), 823-835 (2013).
- Luo, L., Guo, D., Zhou, G., Chen, K. An investigation on the relationship among marbling features, physiological age and Warner–Bratzler Shear force of steer longissimus dorsi muscle. J Food Sci Technol. 55 (4), 1569-1574 (2018).
- Essex, E. Objective measurements for texture in foods. J Texture Stud. 1, 19-37 (1969).
- Wheeler, T. L., Koohmaraie, M., Shackelford, S. D. Standardized Warner-Bratzler shear force procedures for meat tenderness measurement. , Available from: https://www.ars.usda.gov/ARSUserFiles/30400510/protocols/shearforceprocedures.pdf (1995).
- Severino, M., et al. Proteomics unveils post-mortem changes in beef muscle proteins and provides insight into variations in meat quality traits of crossbred young steers and heifers raised in feedlot. Int J Mol Sci. 23 (20), 12259(2022).
- Bertola, N. C., Bevilacqua, A. E., Zaritsky, N. E. Heat treatment effect on texture changes and thermal denaturation of proteins in beef muscle. J Food Process Preserv. 18 (1), 31-46 (1994).
- Palka, K., Daun, H. Changes in texture, cooking losses, and myofibrillar structure of bovine M. semitendinosus during heating. Meat Sci. 51 (3), 237-243 (1999).
- Pearce, K. L., Rosenvold, K., Andersen, H. J., Hopkins, D. L. Water distribution and mobility in meat during the conversion of muscle to meat and ageing and the impacts on fresh meat quality attributes - A review. Meat Sci. 89 (2), 111-124 (2011).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20 (4), 609-619 (2020).
- Baldassini, W., et al. Meat quality and muscle tissue proteome of crossbred bulls finished under feedlot using wet distiller grains by-product. Foods. 11 (20), 3233(2022).
- della Malva, A., et al. In-depth characterization of myofibrillar muscle proteome changes in lambs fed hazelnut skin by-products. Food Biosci. 53, 102836(2023).
- Koohmaraie, M., Kent, M. P., Shackelford, S. D., Veiseth, E., Wheeler, T. L. Meat tenderness and muscle growth: Is there any relationship. Meat Sci. 62 (3), 345-352 (2002).
- Lefaucheur, L., et al. Muscle characteristics and meat quality traits are affected by divergent selection on residual feed intake in pigs. J Anim Sci. 89 (4), 996-1010 (2011).
- Picard, B., et al. Inverse relationships between biomarkers and beef tenderness according to contractile and metabolic properties of the muscle. J Agric Food Chem. 62 (40), 9808-9818 (2014).
- Chikuni, K., Muroya, S., Nakajima, I. Myosin heavy chain isoforms expressed in bovine skeletal muscles. Meat Sci. 67 (1), 87-94 (2004).
- Picard, B., Cassar-Malek, I. Evidence for expression of IIb myosin heavy chain isoform in some skeletal muscles of Blonde d’Aquitaine bulls. Meat Sci. 82 (1), 30-36 (2009).
- Crouse, J. D., Koohmaraie, M., Seideman, S. D. The relationship of muscle fibre size to tenderness of beef. Meat Sci. 30 (4), 295-302 (1991).
- Zamora, F., et al. Predicting variability of ageing and toughness in beef M. Longissimus lumborum et thoracis. Meat Sci. 43 (3-4), 321-333 (1996).
- Strydom, P. E., Naude, R. T., Smith, M. F., Scholtz, M. M., Van Wyk, J. B. Characterisation of indigenous African cattle breeds in relation to meat quality traits. Meat Sci. 55 (1), 79-88 (2000).
- Renand, G., Picard, B., Touraille, C., Berge, P., Lepetit, J. Relationships between muscle characteristics and meat quality traits of young Charolais bulls. Meat Sci. 59 (1), 49-60 (2001).
- Chriki, S., et al. Meta-analysis of the comparison of the metabolic and contractile characteristics of two bovine muscles: Longissimus thoracis and semitendinosus. Meat Sci. 91 (4), 423-429 (2012).
Przedruki i uprawnienia
