Ten manuskrypt przedstawia protokół chirurgicznego usuwania zazwojowych neuronów współczulnych odcinka lędźwiowego u myszy. Procedura ta ułatwi wiele badań mających na celu zbadanie roli unerwienia współczulnego w dystalnych celach tkankowych.
Artykuł metodologiczny
Chirurgiczna sympatektomia lędźwiowa u myszy
W tym artykule
Podsumowanie
Streszczenie
Urazy nerwów obwodowych są powszechne, a pełne sprawne odzyskanie po urazie osiąga się tylko u 10% pacjentów. Współczulny układ nerwowy odgrywa wiele kluczowych ról w utrzymaniu homeostazy organizmu, ale rzadko był badany w kontekście uszkodzenia nerwów obwodowych. Zakres pozazwojowych funkcji neuronów współczulnych w dystalnych celach na obrzeżach jest obecnie niejasny. Aby lepiej zbadać rolę współczulnego unerwienia celów obwodowych, alternatywnym podejściem jest chirurgiczny model "nokautu". Chociaż można to osiągnąć chemicznie, chemiczne niszczenie zazwojowych neuronów współczulnych może być niespecyficzne i zależne od dawki. Zastosowanie chirurgicznej sympatektomii lędźwiowej u myszy, kiedyś uważanej za "praktycznie niewykonalną" u małych zwierząt, pozwala na specyficzne ukierunkowanie na pozazwojowe neurony współczulne, które unerwiają kończyny tylne. Ten manuskrypt opisuje, jak chirurgicznie usunąć zwoje współczulne lędźwiowe L2-L5 u myszy jako operację przetrwania, która niezawodnie zmniejsza reakcję potu tylnej łapy i liczbę aksonów współczulnych w nerwie kulszowym.
Wprowadzenie
Uszkodzenia nerwów obwodowych (PNI) mogą prowadzić do deficytów motorycznych, czuciowych i współczulnych w tkankach dystalnych, które rzadko są w pełni funkcjonalne1. Badania PNI często koncentrowały się na regeneracji motorycznej i sensorycznej; Jednak prawie jedna czwarta nerwu kulszowego szczura składa się z niezmielinizowanych aksonów współczulnych2. Rola unerwienia współczulnego w tkankach obwodowych nie jest jednak w pełni poznana3. Współczulny układ nerwowy odgrywa główną rolę w utrzymaniu homeostazy organizmu, uczestnicząc w regulacji immunologicznej, termoregulacji, napięciu naczyniowym, biogenezie mitochondriów i nie tylko4,5,6,7,8,9,10,11. W przypadku utraty unerwienia współczulnego w połączeniu nerwowo-mięśniowym obserwuje się utrzymujące się osłabienie mięśni i niestabilność synaptyczną pomimo utrzymania unerwienia neuronów ruchowych12. Wykazano, że ta współczulna regulacja przekaźnictwa synaptycznego w połączeniu nerwowo-mięśniowym zmniejsza się wraz z wiekiem13,14, co przyczynia się do sarkopenii, definiowanej jako zależne od wieku zmniejszenie masy mięśniowej, siły i mocy15. Lepsze zrozumienie roli unerwienia współczulnego tkanek obwodowych jest niezbędne do opracowania terapii, które zoptymalizują wyniki funkcjonalne u pacjentów z PNI i innymi formami dysfunkcji układu współczulnego.
Sympatektomia to potężne narzędzie eksperymentalne, które pozwoli na badanie roli unerwienia współczulnego w dystalnych tkankach docelowych. W szczególności usunięcie zwojów współczulnych na poziomie L2-L5 usuwa większość unerwienia współczulnego kończyn dolnych, co jest szczególnie przydatne dla badaczy zainteresowanych nerwem kulszowym.
Ten protokół szczegółowo opisuje usunięcie pozwojowych neuronów współczulnych poziomu L2-L5 u myszy jako operację przetrwania. Zabieg ten wymaga umiejętności mikrochirurgicznych gryzoni i znajomości anatomii myszy, a gdy jest wykonywany skutecznie, nie powoduje widocznych różnic fenotypowych. Chirurgiczna sympatyktomia lędźwiowa została wykorzystana w badaniach nad gryzoniami, częściej u szczurów niż u myszy16,17,18,19,20,21; Jednak obecnie nie istnieje szczegółowy protokół opisujący ten protokół. Wcześniejsze badania wykorzystujące sympatektomię lędźwiową koncentrowały się przede wszystkim na roli unerwienia współczulnego w reakcji bólowej, która jest na ogół osłabiana przez sympatektomię w różnych modelach uszkodzenia nerwów. W mniejszej liczbie badań stosowano tę technikę na myszach22, prawdopodobnie ze względu na mniejszy rozmiar anatomicznych punktów orientacyjnych, ponieważ zastosowanie chirurgicznej sympatektomii uważano za "praktycznie niewykonalne" u małych zwierząt23,24. Zlokalizowane sympatektomie w postaci mikrosympatyektomii zostały również wykorzystane w modelach gryzoni, również głównie w kontekście zachowań bólowych25,26,27. Mikrosympatektomia, w przeciwieństwie do całkowitej sympatektomii lędźwiowej, wykorzystuje podejście grzbietowe, przez które odłącza się i usuwa segment szarego ramusa do określonego nerwu rdzeniowego, co pozwala na bardzo ukierunkowaną sympatektomię, która pozwoli uniknąć szerzej rozprzestrzeniających się skutków ubocznych.
Ponieważ modele mysie są kluczowe dla wielu badań wymagających manipulacji genetycznej, procedura ta będzie miała wszechstronne zastosowanie poza szerokim zakresem uszkodzeń nerwów obwodowych. Korzystając z dostępu przezbrzusznego, zwoje współczulne lędźwiowe mogą być wiarygodnie uwidocznione i wycięte z myszy bez widocznych skutków ubocznych. Chociaż dostępne są protokoły chemicznego niszczenia zazwojowych neuronów współczulnych, takie jak użycie 6-hydroksydopaminy (6-OHDA)23,24, ta procedura chirurgiczna pozwala na anatomicznie specyficzne ukierunkowanie na zazwojowe zwoje współczulne lędźwiowe. Zastosowanie chirurgicznej sympatektomii pozwala również uniknąć niespecyficznych i zależnych od dawki problemów związanych z metodami farmakologicznymi28,29.
Użycie chemicznej sympatektomii poprzez podawanie 6-OHDA zostało opisane w 1967 roku jako prosty sposób na osiągnięcie selektywnego niszczenia adrenergicznych zakończeń nerwowych, ponieważ chirurgiczne sympatyektomie u małych zwierząt nie były preferowane23,24. 6-OHDA jest neurotoksyną katecholaminergiczną, która jest endogennie tworzona u pacjentów z chorobą Parkinsona, a jej toksyczność wynika z jej zdolności do tworzenia się wolnych rodniki i hamują łańcuch transportu elektronów w mitochondriach30,31. Poprzez mechanizmy transportu wychwytu noradrenaliny-1, 6-OHDA jest w stanie gromadzić się w neuronach noradrenergicznych, takich jak postganglioniczne neurony współczulne28. Ostatecznie neuron jest niszczony przez 6-OHDA; Jednak zakończenia w obwodowym układzie nerwowym regenerują się, przywracając aktywność funkcjonalną nawet wtedy, gdy poziom amin jest nadal obniżony. Różne progi dawkowania są również obecne dla różnych narządów w odpowiedzi na 6-OHDA, a wyższe dawki 6-OHDA wykazały bardziej niespecyficzne działanie, rozszerzając jego neurotoksyczne konsekwencje na neurony niezawierające katecholamin, a nawet komórki nieneuronalne. Oprócz neuronów noradrenergicznych, neurony dopaminergiczne są również dotknięte 6-OHDA29, co sprawia, że sympatektomia chemiczna jest ostatecznie mniej specyficzna dla neuronów współczulnych po zwoju niż sympatektomia chirurgiczna.
Dlatego chirurgiczna sympatektomia lędźwiowa umożliwia celową ablację unerwienia współczulnego do kończyn dolnych, co można połączyć z różnymi technikami eksperymentalnymi i manipulacjami genetycznymi u myszy, aby zbadać, jak współczulny układ nerwowy przyczynia się do różnych urazów i stanów chorobowych.
Protokół
Wszystkie eksperymenty zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt (IACUC) Uniwersytetu Emory (zgodnie z protokołem IACUC numer PROTO202100177). W badaniu wykorzystano cztery dorosłe samice myszy C57BL/6J typu dzikiego w wieku 14 tygodni i o wadze od 16 do 21 g. Szczegółowe informacje na temat stosowanych tu odczynników i sprzętu znajdują się w Tabeli materiałów.
1. Przygotowanie przedoperacyjne
- Autoklaw narzędzi chirurgicznych: 1 para ostrych nożyczek, 2 pęsety z cienką końcówką, 1 wkrętak igłowy.
- Rozgrzej poduszkę grzewczą do temperatury 37 °C i umieść ją pod blatem chirurgicznym.
- Spryskaj obszar operacyjny, w tym komorę indukcyjną znieczulenia, środkiem dezynfekującym i dokładnie wytrzyj ręcznikiem papierowym.
- Umyj ręce i załóż odpowiednie środki ochrony osobistej do obsługi myszy.
- Meloksykam należy podawać doustnie w dawce 5 mg/kg masy ciała, kropla po kropli podczas połykania przez mysz. Należy odczekać wystarczająco dużo czasu, aby zwierzę całkowicie połknęło lek, aby uniknąć zachłyśnięcia podczas indukcji.
- Indukować mysz w znieczuleniu za pomocą 3% izofluranu w 1 l/min tlenu (zgodnie z instytucjonalnie zatwierdzonymi protokołami).
- Gdy mysz zostanie znieczulona (brak reakcji na uszczypnięcie palca), połóż mysz na blacie chirurgicznym, na wznak, z nosem w dopasowanym stożku nosowym.
- Po prawidłowym dopasowaniu myszy do stożka nosowego, dostosuj izofluran do 2% w celu utrzymania znieczulenia.
- Umieść lubrykant okulistyczny na oczach myszy, aby zapobiec zapaleniu rogówki i spojówki (suchego oka).
- Upewnij się, że mysz jest odpowiednio przymocowana taśmą chirurgiczną do blatu chirurgicznego.
- Monitoruj w sposób ciągły, aby ułatwić oddychanie i odpowiednią częstość oddechów.
- Ogol futro z brzucha myszy od poziomu genitaliów do poniżej żeber.
- Po usunięciu sierści najpierw przetrzyj obszar chirurgiczny okrężnymi ruchami, od środka do obwodu, 70% etanolem. Następnie przetrzyj obszar operacyjny betadyną tymi samymi okrężnymi ruchami. Powtórz kroki z etanolem i betadyną w sumie 3 razy.
- Załóż maskę chirurgiczną, osłonę włosów, sterylny fartuch i sterylne rękawiczki.
- Ułóż mysz sterylną serwetą chirurgiczną z otworem wyciętym w środku o odpowiedniej wielkości, aby uwidocznić pole operacyjne. Romboidalny kształt można wykonać, składając serwetkę na pół i wycinając trójkąt równoramienny o wysokości ~10 mm i podstawie ~15 mm.
2. Nacięcia
- Za pomocą ostrych nożyczek i pęsety z cienką końcówką wykonaj nacięcie w linii środkowej od ~1 mm powyżej poziomu spojenia łonowego do ~2 mm poniżej żeber.
- Zidentyfikuj powięź powięziową w linii środkowej (linea alba) między obustronnymi mięśniami prostymi brzucha. Za pomocą pęsety unieś mięśnie brzucha z dala od leżących poniżej narządów i przetnij wzdłuż kresy białej, aby wejść do jamy brzusznej.
UWAGA: Linea alba można zidentyfikować, delikatnie pociągając obustronne mięśnie proste brzucha na boki, aby odsłonić cieńszą linię powięzi, która leży wzdłużnie wzdłuż linii środkowej32. Wykonanie nacięcia przez linea alba pozwala na łatwiejsze zamknięcie mięśnia. - Wycofaj mięśnie brzucha i skórę za pomocą szwów 5-0 z boku, aby prawidłowo zwizualizować kolejne kroki.
3. Identyfikacja L2-L5 lędźwiowych zwojów współczulnych
- Zwoje współczulne lędźwiowe leżą za aortą brzuszną i żyłą główną dolną. Aby uwidocznić aortę, należy częściowo usunąć jelita z jamy brzusznej.
UWAGA: Zwoje współczulne na poziomie L2-L5 przechodzą od poziomu rozwidlenia aorty do naczyń biodrowych do poziomu lewej tętnicy nerkowej21,33.- Połóż sterylny bawełniany kwadrat nasączony sterylną solą fizjologiczną na serwecie, leżąc wyżej i na lewo od nacięcia. Ostrożnie, za pomocą 2 sterylnych aplikatorów z bawełnianą końcówką, wypchnij okrężnicę i jelito cienkie częściowo na nasączony solą fizjologiczną bawełniany kwadrat.
UWAGA: Upewnij się, że jelito ślepe i wyrostek robaczkowy znajdują się poza jamą brzuszną i że można uwidocznić okrężnicę zstępującą. - Przykryj odsłonięte jelita kolejnym wacikowym kwadracikiem nasączonym solą fizjologiczną.
- Okresowo monitoruj perystaltykę jelit przez cały czas trwania operacji, którą można rozpoznać po rytmicznym ruchu jelit.
- Połóż sterylny bawełniany kwadrat nasączony sterylną solą fizjologiczną na serwecie, leżąc wyżej i na lewo od nacięcia. Ostrożnie, za pomocą 2 sterylnych aplikatorów z bawełnianą końcówką, wypchnij okrężnicę i jelito cienkie częściowo na nasączony solą fizjologiczną bawełniany kwadrat.
- Zidentyfikuj okrężnicę zstępującą, która jest częścią jelita, która przemieszcza się w kierunku odbytnicy i odbytu i może zawierać widoczny kał, i odchyl tę strukturę w lewo za pomocą zamkniętej pęsety, aby odsłonić aortę brzuszną i żyłę główną dolną. Te dwa naczynia są połączone tkanką łączną i powinny poruszać się jako jedna jednostka.
- Za pomocą pęsety podnieś naczynia brzuszne za otaczającą je tkankę łączną. Podczas podnoszenia ostrożnie umieść nylonowy szew 5-0 przez tkankę łączną.
UWAGA: NIE nakłuwać naczyń brzusznych igłą: Doprowadzi to do szybkiej dekompensacji myszy i prawdopodobnej śmierci. - Po wprowadzeniu szwu przez tkankę łączną odchylić naczynia brzuszne w lewo. Da to trójkątne okno, umożliwiające bezpośrednią wizualizację obustronnych mięśni lędźwiowo-lędźwiowych.
UWAGA: Ze względu na intymne połączenia, które zwoje mają z naczyniami brzusznymi, zwoje współczulne, choć zwykle znajdują się w linii środkowej, zostaną lekko odchylone w lewo (po prawej stronie myszy) wraz z naczyniami. Po odchyleniu naczyń brzusznych należy uwidocznić trójkąt, przy czym dwa boki po lewej stronie składają się z odchylonych naczyń brzusznych, a prawa strona jest zdefiniowana przez linię środkową myszy (między obustronnymi mięśniami lędźwiowo-lędźwiowymi). Zwoje współczulne leżą w środku tego trójkąta (Rysunek 1A). Poruszają się pionowo obok siebie i wydają się półprzezroczyste. Mogą zachodzić na małe naczynie, które zanurza się w linii środkowej myszy i leży płasko na prawym mięśniu lędźwiowym. Użyj pęsety, aby bez ogródek wyciąć przylegającą powięź, aby odsłonić zwoje (Rysunek 1B).
- Za pomocą pęsety podnieś naczynia brzuszne za otaczającą je tkankę łączną. Podczas podnoszenia ostrożnie umieść nylonowy szew 5-0 przez tkankę łączną.
- Zidentyfikuj lewą tętnicę nerkową i lewą tętnicę jądrową lub jajnikową.
UWAGA: Są to duże naczynia, które utworzą czworobok, którego boki składają się z lewej tętnicy nerkowej powyżej, linii środkowej zwierzęcia i aorty brzusznej/żyły głównej dolnej bocznie oraz lewej tętnicy jądrowej lub jajnikowej niżej. Zwoje na poziomie L2 są duże i leżą w obrębie tego czworokąta (Rysunek 1A). Ostrożnie sekcję aby wejść do tego czworokąta za pomocą pęsety i zidentyfikować obustronne zwoje L2 (Rysunek 1B). - Po zidentyfikowaniu dolnej i górnej części zwojów nerwowych chwyć dolną część widocznych obustronnych zwojów za pomocą pęsety i pociągnij w górę. Wizualizację niżej położonych zwojów nerwowych, takich jak L4 i L5, można zwiększyć, delikatnie popychając narządy zasłaniające widok niżej za pomocą drugiej pary pęsety.
UWAGA: Wizualizacja naczynia perforującego linię środkową, o której mowa w kroku 3.2.2, zapewni pełniejszą sympatektomię odcinka lędźwiowego. Trzymając drugą parę pęsety w drugiej ręce, odciągnij powięź i połączenia neuronalne utrzymujące zwoje w jamie brzusznej, jednocześnie pociągając za same zwoje za pomocą pierwszej pary pęsety. Tylko jedna para pęset powinna trzymać się zwojów, podczas gdy druga oczyszcza powięź i połączenia neuronalne. Po znalezieniu się na poziomie lewej tętnicy jądrowej lub jajnikowej może być pomocne w identyfikacji L2, jeśli dolne zwoje łańcuchowe są nadal nienaruszone, ponieważ zwoje L2 poruszają się, gdy są ciągnięte przez dolny łańcuch. Zwoje L3-5 można złamać w tętnicy jądrowej lub jajnikowej przed usunięciem zwojów L2 z czworokąta za pomocą pęsety. Jedynymi zwojami obecnymi w czworokącie są zwoje L2. - Ta procedura powinna mieć minimalną utratę krwi. Jeśli wystąpi krwawienie, przed zamknięciem należy zapewnić odpowiednią hemostazę.
4. Zamknięcie skóry
- Po uzyskaniu odpowiedniej hemostazy należy zdjąć szew przytrzymujący naczynia brzuszne na miejscu.
- Za pomocą 2 sterylnych aplikatorów z bawełnianą końcówką ostrożnie włóż zewnętrzne jelita do jamy brzusznej.
- W przypadku szwu wchłanialnego 5-0 wykonaj ścieg biegowy, aby przybliżyć mięśnie brzucha.
- W przypadku nylonowego szwu 5-0 użyj prostych przerywanych szwów, aby zamknąć skórę.
- Nałóż obfitą warstwę maści z antybiotykiem, taką jak Neosporin, na miejsce nacięcia.
- Umieść mysz w czystej klatce na poduszce grzewczej.
- Obserwuj mysz co 15 minut, aż się obudzi i zacznie chodzić. Zwykle zajmuje to mniej niż 30 minut.
5. Test potu pilokarpiny
UWAGA: Aby ocenić wyczerpanie współczulnej aktywności funkcjonalnej po sympatektomii lędźwiowej, zastosowano test potu pilokarpinowego 7 dni po sympatektomii lędźwiowej.
- Przygotuj 1% roztwór chlorowodorku pilokarpiny w 0,9% NaCl wraz z mieszaniną 10% skrobi ziemniaczanej w oleju rycynowym.
- Za pomocą pędzla pokryj podeszwową powierzchnię stopy betadyną. Pozostaw tę warstwę do całkowitego wyschnięcia.
- Po wyschnięciu warstwy betadyny za pomocą osobnego pędzla nałóż warstwę 10% skrobi w oleju rycynowym.
- Podawać 0,25 μl/g masy ciała 1% pilokarpiny podskórnie za pomocą strzykawki w luźną skórę nad szyją. Uruchom minutnik natychmiast po podaniu pilokarpiny.
- Po 8 minutach od wstrzyknięcia zrób zdjęcia podeszwowej powierzchni stopy.
- Korzystając z Fidżi, policz liczbę ciemnych plam znajdujących się na wszystkich sześciu (6) podnóżkach (Rysunek 2A).
6. Immunohistochemia
UWAGA: Aby ocenić zwyrodnienie aksonów współczulnych w nerwach obwodowych po sympatektomii lędźwiowej, obustronne nerwy kulszowe zostały pobrane w 21 dniu po operacji.
- Znieczulij myszy (zgodnie z krokiem 1 protokołu), zbierz obustronne nerwy kulszowe, a następnie niezwłocznie poddaj zwierzę eutanazji (zgodnie z instytucjonalnie zatwierdzonymi protokołami).
- Umieścić nerwy kulszowe bezpośrednio w 4% paraformaldehydzie w 0,01 M soli fizjologicznej buforowanej fosforanami (PBS) na 20 minut, a następnie przenieść je do 20% sacharozy w 0,1 M PBS w celu krioprotekcji przez noc w temperaturze 4 °C.
- Przeciąć nerwy kulszowe wzdłużnie za pomocą kriostatu o wielkości 20 μm i umieścić skrawki na naładowanych szkiełkach.
- Zablokuj odcinki nerwowe 10% normalną surowicą kozią (NGS) w tris buforowanym roztworem soli fizjologicznej z 1% Tween 20 (TBST) przez 1 godzinę w temperaturze pokojowej.
- Usunąć bufor blokujący i zastąpić go pierwszorzędowymi przeciwciałami, króliczą hydroksylazą antytyrozynową i kurczakiem o dużej zawartości antyneurofilamentów, rozcieńczonymi w buforze blokującym (10% NGS w TBST) odpowiednio w stosunku 1:750 i 1:1000. Pozostawić przeciwciała pierwotne do inkubacji przez noc w komorze wilgotnościowej w temperaturze pokojowej.
- Przemyć szkiełko z TBST 3 razy, po 10 minut każde przemycie, przed nałożeniem przeciwciał drugorzędowych kozich anty-króliczych 647 i kozich anty-kurczaków 488, oba rozcieńczone w stosunku 1:200 w buforze blokującym. Pozostawić przeciwciała drugorzędowe do inkubacji w komorze wilgotnościowej przez 2 godziny w temperaturze pokojowej.
- Umyj szkiełko TBST 4 razy po 10 minut każde pranie i pozostaw szkiełko do wyschnięcia w miejscu chronionym przed światłem przed montażem.
- Zobrazuj odcinki nerwów oddalone od siebie o co najmniej 40 μm pod mikroskopem fluorescencyjnym na obiektywie 10x.
- Na Fidżi wyprostuj sekcje nerwowe i narysuj trzy losowo rozmieszczone pionowe linie rozciągające się na całej szerokości sekcji. Policz liczbę aksonów przecinających każdą linię pionową i podziel ją przez szerokość sekcji na linii pionowej. Powtórz te czynności dla każdej z trzech pionowych linii na sekcję. Uśrednij trzy wartości uzyskane na sekcję, a następnie uśrednij wartości trzech odcinków na nerw.
Wyniki
Niniejszy protokół opisuje chirurgiczne usunięcie pozagańglionowych neuronów współczulnych lędźwiowych u myszy. Dwie myszy poddano lędźwiowej sympatektomii, a dwie pozostałe posłużyły jako grupa kontrolna. Aby pomyślnie przeprowadzić chirurgiczną lędźwiową sympatektomię, należy uzyskać odpowiednią widoczność co najmniej obustronnych zwojów współczulnych lędźwiowych L2 i L3, co przedstawiono na Rysunku 1. Usunięcie zwojów L4 i L5 pozwoliłoby na całkowitą dennerwację współczulną dolnej części ciała, jednak widoczność dolnych zwojów może być ograniczona przez narządy urogenitalne. Wcześniejsze badania z wykorzystaniem śledzenia retrogradowego wykazały, że większość neuronów w zwojach L2-L5 znajduje się w zwojach L2 i L3. Choć do uzyskania reprezentatywnych wyników wykorzystano wyłącznie samice myszy w tym samym wieku, procedura chirurgiczna ta była wielokrotnie powtarzana u samców i samic, nie stwierdzono przy tym istotnych różnic anatomicznych w lokalizacji tętnicy jądrowej lub jajnikowej oraz zwojów współczulnych.
Po usunięciu zwojów odpowiedź potna na pilokarpinę gwałtownie spada, a istotne różnice są widoczne do 7. dnia po operacji (Rycina 2). Wybór 7. dnia po operacji wynika z wykładniczego spadku aktywności pocenia zapośredniczonego przez układ współczulny w ciągu 7 dni po różnych urazach nerwu kulszowego u szczurów34. Ponieważ degeneracja aksonów może trwać do 14 dni, a wizualizacja zwojów L4 i L5 podczas operacji może być utrudniona (widoczność może być ograniczona przez pęcherz moczowy i organy płciowe), odpowiedź potna może nie zostać całkowicie zniesiona35,36.
Gęstość aksonów dodatnich dla hydroksylazy tyrozynowej (TH+) uległa znacznemu zmniejszeniu do 21. dnia po operacji, przy braku zmian w gęstości ciężkiego łańcucha neurofilamentów (NF-H) (Rysunek 3). Jest mało prawdopodobne, aby aksony TH+ zostały całkowicie wyeliminowane, ze względu na obecność sensorycznych aksonów TH+ unerwiających mechanoreceptory o niskim progu pobudzenia oraz potencjalne trudności w wizualizacji całego lędźwiowego łańcucha współczulnego37.
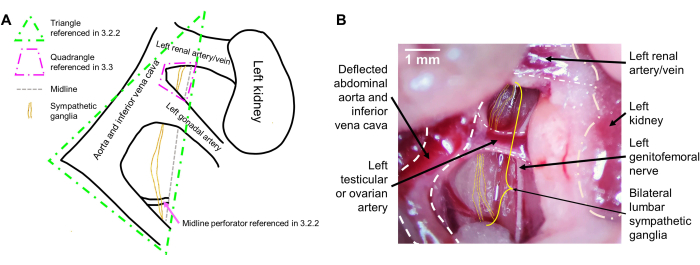
Rysunek 1: Widok śródoperacyjny zwojów współczulnych lędźwiowych. (A) Schemat z oczekiwanymi punktami orientacyjnymi. (B) Reprezentacyjny obraz śródoperacyjny z oznaczonymi punktami orientacyjnymi. Zwoje współczulne lędźwiowe znajdują się za zstępującą aortą brzuszną i żyłą główną dolną (odsuniętymi). Zwoje są przesunięte na prawo u myszy wraz z odsunięciem naczyń brzusznych i znajdują się na prawym mięśniu lędźwiowym większym, przebiegając w dół i w górę. Obustronne zwoje L2 można zlokalizować pomiędzy lewą tętnicą nerkową a lewą tętnicą jądrową lub jajnikową, natomiast zwoje L3 widoczne są poniżej lewej tętnicy jądrowej lub jajnikowej. Pasek skali: 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Chirurgiczna sympatomektomia lędźwiowa zmniejsza liczbę plam potu na tylnej łapie. (A) Schemat rozmieszczenia poduszek stopy na powierzchni podeszwowej tylnej łapy myszy. (B) Reprezentatywny obraz reakcji potnej 8 min po wstrzyknięciu pilokarpiny u zwierzęcia nienaruszonego. (B') Powiększony obraz z białymi strzałkami wskazującymi wybraną liczbę plam potu. (C) Reprezentatywny obraz reakcji potnej 8 min po wstrzyknięciu pilokarpiny u zwierzęcia po sympatomektomii w 7. dobie pooperacyjnej. (C') Powiększony obraz z białymi strzałkami wskazującymi wybraną liczbę plam potu. (D) Całkowita liczba plam potu na wszystkich sześciu poduszkach stopy tylnej łapy u myszy nienaruszone w porównaniu do myszy po sympatomektomii. Dane przedstawiono z linią reprezentującą medianę. Test Manna-Whitneya. *p < 0.05. Paski skali: 1 mm. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
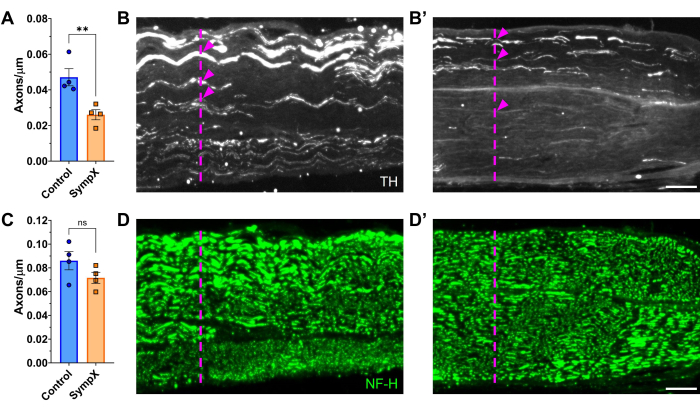
Rycina 3: Chirurgiczna sympatektomia lędźwiowa (Sympx) redukuje liczbę aksonów współczulnych w nerwie kulszowym. (A) Liczba aksonów dodatnich pod kątem tyrozynowej hydroksylazy (TH) na µm nerwu kulszowego (szerokość nerwu) w 21. dniu po operacji. Reprezentatywne przekroje nerwu z barwieniem TH u myszy nienaruszonej (B) i po sympatektomii (B'). (C) Liczba aksonów dodatnich pod kątem ciężkiego łańcucha neurofilamentów (NF-H) na µm nerwu kulszowego. Reprezentatywny przekrój nerwu z barwieniem NF-H u myszy nienaruszonej (D) i po sympatektomii (D'). Purpurowe przerywane linie reprezentują przykładowe, losowo rozmieszczone linie pionowe obejmujące szerokość przekroju nerwu, wykorzystane do obliczenia gęstości aksonów w nerwie. Purpurowe strzałki wskazują wybraną liczbę aksonów przecinających losowo rozmieszczone linie pionowe. Dane przedstawiono jako średnia ± SEM. Nieparzysty t-test. **p < 0.01. Paski skali: 100 µm. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Dyskusja
Zwoje współczulne lędźwiowe są bardzo małymi strukturami znajdującymi się za wieloma krytycznymi narządami jamy brzusznej i dużymi naczyniami. Dlatego ta procedura wymaga znacznej precyzji i dokładności. Duża trudność polega na śródoperacyjnej identyfikacji zwojów współczulnych. Sugeruje się, aby uczeń najpierw był w stanie zidentyfikować zwoje w zwłokach myszy przed przystąpieniem do tej procedury na żywej myszy. Rozwiązywanie problemów często będzie musiało nastąpić podczas identyfikacji zwojów współczulnych po przekierowaniu jelit. Aby zapewnić odpowiednią wizualizację, dwukropek zniżkujący musi być widoczny. Przekierowanie jelit na zewnątrz jamy brzusznej musi obejmować jelito ślepe. Dodatkowo pęcherz moczowy może być pełny i powiększony, co może zasłaniać widok na okrężnicę zstępującą, a następnie aortę brzuszną zstępującą i żyłę główną dolną. Idealnie byłoby, gdyby pęcherz moczowy był odciągany ręcznie, gdy mysz jest pod narkozą przed wykonaniem pierwszego nacięcia skóry. Jeśli jednak pęcherz nie zostanie odciągnięty, a widok śródoperacyjny zostanie zablokowany, możliwe jest delikatne odciąganie za pomocą 2 sterylnych aplikatorów z bawełnianą końcówką. Należy uważać, aby nie uszkodzić moczowodów, które są przyczepione do tylnej części pęcherza. Po zidentyfikowaniu aorty brzusznej i żyły głównej dolnej za okrężnicą zstępującą, odpowiednie ugięcie i stabilizacja naczyń ma kluczowe znaczenie dla wizualizacji zwojów współczulnych. Powięź jest stosunkowo twarda i jeśli szew jest umieszczany wyłącznie przez warstwę powięzi i połączeń neuronalnych, a nie przez ściany naczynia, naczynia należy pociągnąć co najmniej 1 mm od linii środkowej. Powięź leżącą nad zwojami współczulnymi można delikatnie wyciąć pęsetą. W przypadku pęknięcia któregokolwiek z małych naczyń podczas zabiegu, należy uciskać sterylnym aplikatorem z bawełnianą końcówką przez co najmniej 10 sekund, aby zapewnić odpowiednią hemostazę przed zamknięciem. Jeśli podczas operacji dojdzie do nakłucia dużych naczyń brzusznych, mysz powinna zostać szybko poddana eutanazji.
Chociaż metoda ta pozwala na bezpośrednią wizualizację i usunięcie zwojów współczulnych, co pozwala na bardziej precyzyjne ukierunkowanie tych zazwojowych neuronów współczulnych w porównaniu z sympatektomią chemiczną23, istnieją pewne ograniczenia. Operacja ta skutkuje usunięciem zwojów współczulnych lędźwiowych L2-L5; jednak ze względu na niedrożność wzrokową spowodowaną przez ważne narządy układu moczowo-płciowego, najniższe zwoje, takie jak zwoje na poziomie L4-L5, są trudniejsze do uwidocznienia i usunięcia podczas tej procedury. Większość neuronów unerwiających kończyny dolne znajduje się w dużych zwojach L2. Zwoje L5 są niezwykle małe i zawierają mniej neuronów, jak zaobserwowano w poprzednich fluorescencyjnych eksperymentach śledzenia wstecznego38; Jednak nieusunięcie tych neuronów może zniekształcić analizę wyników z najbardziej dystalnych struktur, takich jak stopy. Aby zapewnić lepsze wyniki podczas badania dystalnych celów w stopach, wskazane byłoby sprawdzenie pobranej tkanki w celu policzenia liczby usuniętych zwojów. Można to zrobić za pomocą fluorescencyjnej myszy reporterowej, w której można łatwo uwidocznić zazwojowe neurony współczulne lub za pomocą fluorescencyjnego znacznika wstecznego wstrzykniętego do dystalnego celu przed operacją. Niektóre fluorescencyjne myszy reporterowe do tego celu obejmują ThCre: mTmG (patrz Tabela materiałów), która ma niezwykle rzadkie znakowanie neuronów hydroksylazy tyrozynowej39, Phox2bCre: tdTomato (patrz Tabela materiałów), która ma umiarkowane znakowanie zazwojowych neuronów współczulnych40,41 i ThCre: tdTomato (patrz Tabela materiałów), który ma obszerne znakowanie zazwojowych neuronów współczulnych42. Nie jest to wyczerpująca lista dostępnych linii.
Dodatkowo, ze względu na duże nacięcie wymagane do tego zabiegu chirurgicznego, myszy mogą potrzebować dłuższego okresu rekonwalescencji, zanim będzie można przeprowadzić dalsze eksperymenty. Myszy powinny być monitorowane przez co najmniej 3 dni pod kątem prawidłowego wypróżniania, oddawania moczu i karmienia. Co więcej, nieprawidłowa hemostaza może prowadzić do nieleczonego krwawienia śródbrzusznego, co może skutkować śmiercią myszy w nieoczekiwanych momentach. Dlatego zapewnienie osiągnięcia hemostazy przed zamknięciem operacji ma kluczowe znaczenie dla powodzenia przyszłych eksperymentów. Neurony współczulne mogą być również celowane chemicznie, jak wspomniano24.
Zastosowanie sympatyektomii chirurgicznej pozwoli na przeprowadzenie wielu badań, które mają na celu zbadanie roli pozazwojowego unerwienia współczulnego w celach dystalnych, takich jak rola unerwienia współczulnego w złączu nerwowo-mięśniowym12. Dodatkowo, fluorescencyjne techniki śledzenia wstecznego mogą być stosowane do ilościowego określenia współczulnego unerwienia tkanek dystalnych, ponieważ protokół ten można dostosować do ekstrakcji zwojów en bloc od myszy utrwalonych paraformaldehydem38. W kontekście uszkodzeń nerwów obwodowych ten chirurgiczny model "nokautu" pozwoli na lepsze scharakteryzowanie oczekiwanej poprawy funkcjonalnej układu współczulnego w tkankach wcześniej unerwionych.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez NIH National Institute of Neurological Disorders and Stroke w ramach nagrody numer K01NS124912 oraz częściowo przez grant rozwojowy z finansowanego przez NIH Emory Specialized Center of Research Excellence in Sex Differences U54AG062334 oraz Medical Scientist Training Program of Emory University School of Medicine. Podziękowania dla Davida Kima, absolwenta studiów pomaturalnych, za przecięcie nerwów kulszowych oraz dla HaoMin SiMa, specjalisty ds. badań, za wydrukowanie w 3D uchwytu do telefonu do naszego mikroskopu stereoskopowego, który pozwolił na nakręcenie filmu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Szew absorbalny 5-0 | CP Medical | 421A | |
| Szew nylonowy 5-0 | Med-Vet International | MV-661 | |
| 70% etanol | Sigma-Aldrich | E7023-4L | |
| Kent Scientific VetFlo | VetFlo-0530XS | ||
| Waporyzator anestezjologiczny | Kent Scientific VetFlo | 13-005-202 | |
| Betadine | HealthyPets | BET16OZ | |
| myszy C57BL/6J | Jackson Laboratory | #000664 | |
| Kurczak z dużą ilością neurofilamentów | Abcam | ab72996 | |
| Cryostat | Leica | CM1850 | |
| Oprogramowanie do analizy danych | Prism | ||
| Pęseta z cienką końcówką | World Precision Instruments | 500233 | |
| Mikroskop fluorescencyjny | Nikon | Ti-E Koza | |
| anty-kurczak 488 | Invitrogen | A32931 | |
| Koza anty-królik 647 | Invitrogen | A21245 | |
| Poduszka grzewcza | Braintree Scientific | 39DP | |
| Oprogramowanie do analizy obrazu | Fidżi | ||
| Nikon | NIS-Elements | ||
| Isoflurane | Med-Vet International | RXISO-250 | |
| Meloxicam | Med-Vet International | RXMELOXIDYL32 | |
| Sterownik igieł | Sklep chirurgiczny Roboz | RS-7894 | |
| Normalna surowica kozia | Abcam | ab7481 | |
| Maść okulistyczna | Refresh Refresh | P.M. | |
| Phox2bCre:tdTomato zmutowane myszy | Jackson Laboratory | #016223, #007914 | |
| Chlorowodorek pilokarpiny | Sigma-Aldrich | P6503 | |
| Królik hydroksylaza anty-tyrozynowa | Abcam | ab112 | |
| Małe proste nożyczki | Fine Science Tools | 14084-09 | |
| Sterylne waciki bawełniane 2x2 | Dynarex | 3252 | |
| Sterylne aplikatory z bawełnianą końcówką | Dynarex | 4301 | |
| Sterylna serweta | Med-Vet International | DR4042 | |
| Sterylny roztwór soli fizjologicznej | Med-Vet International | 1070988-BX | |
| ThCre:mTmG zmutowane myszy | Centra Zasobów i Badań Zmutowanych Mysz szczep | #017262-UCD | Jackson Laboratory, szczep #007576 |
| ThCre:tdTomato mutant | myszy Szczep European Mouse Mutant Archive | #00254 | Jackson Laboratory, szczep #007914 |
Bibliografia
- Scholz, T., et al. Peripheral nerve injuries: An international survey of current treatments and future perspectives. J Reconstr Microsurg. 25 (06), 339-344 (2009).
- Schmalbruch, H. Fiber composition of the rat sciatic nerve. Anat Rec. 215 (1), 71-81 (1986).
- Tian, T., Moore, A. M., Ghareeb, P. A., Boulis, N. M., Ward, P. J. A perspective on electrical stimulation and sympathetic regeneration in peripheral nerve injuries. Neurotrauma Rep. 5 (1), 172-180 (2024).
- Gagnon, D., Crandall, C. G. Sweating as a heat loss thermoeffector. Hand Clin Neurol. 156, 211-232 (2018).
- Grassi, G. Role of the sympathetic nervous system in human hypertension. J Hypertens. 16 (12), 1979-1987 (1998).
- Dibona, G. F. Sympathetic nervous system and the kidney in hypertension. Curr Opin Nephrol Hypertens. 11 (2), 197-200 (2002).
- Elenkov, I. J., Wilder, R. L., Chrousos, G. P., Vizi, E. S. The sympathetic nerve-An integrative interface between two supersystems: The brain and the immune system. Pharmacol Rev. 52 (4), 595-638 (2000).
- Besedovsky, H. O., Del Rey, A., Sorkin, E., Da Prada, M., Keller, H. Immunoregulation mediated by the sympathetic nervous system. Cell Immunol. 48 (2), 346-355 (1979).
- Straka, T., et al. Postnatal development and distribution of sympathetic innervation in mouse skeletal muscle. Int J Mol Sci. 19 (7), 1935(2018).
- Geng, T., et al. Pgc-1α plays a functional role in exercise-induced mitochondrial biogenesis and angiogenesis but not fiber-type transformation in mouse skeletal muscle. Am J Physiol Cell Physiol. 298 (3), C572-C579 (2010).
- Lin, J., Handschin, C., Spiegelman, B. M. Metabolic control through the pgc-1 family of transcription coactivators. Cell Metab. 1 (6), 361-370 (2005).
- Khan, M. M., et al. Sympathetic innervation controls homeostasis of neuromuscular junctions in health and disease. Proc Natl Acad Sci. 113 (3), 746-750 (2016).
- Delbono, O., Rodrigues, A. C. Z., Bonilla, H. J., Messi, M. L. The emerging role of the sympathetic nervous system in skeletal muscle motor innervation and sarcopenia. Ageing Res Rev. 67, 101305(2021).
- Rodrigues, A. C. Z., et al. Heart and neural crest derivative 2-induced preservation of sympathetic neurons attenuates sarcopenia with aging. J Cachexia Sarcopenia Muscle. 12 (1), 91-108 (2021).
- Rosenberg, I. H. Summary comments. Am J Clin Nutr. 50 (5), 1231-1233 (1989).
- Murata, Y., Olmarker, K., Takahashi, I., Takahashi, K., Rydevik, B. Effects of lumbar sympathectomy on pain behavioral changes caused by nucleus pulposus-induced spinal nerve damage in rats. Eur Spine J. 15, 634-640 (2006).
- Xie, J., Park, S. K., Chung, K., Chung, J. M. The effect of lumbar sympathectomy in the spinal nerve ligation model of neuropathic pain. J Pain. 2 (5), 270-278 (2001).
- Lee, D. H., Katner, J., Iyengar, S., Lodge, D. The effect of lumbar sympathectomy on increased tactile sensitivity in spinal nerve ligated rats. Neurosci Lett. 298 (2), 99-102 (2001).
- Ringkamp, M., et al. Lumbar sympathectomy failed to reverse mechanical allodynia-and hyperalgesia-like behavior in rats with l5 spinal nerve injury. Pain. 79 (2-3), 143-153 (1999).
- Zhao, C., et al. Lumbar sympathectomy attenuates cold allodynia but not mechanical allodynia and hyperalgesia in rats with spared nerve injury. J Pain. 8 (12), 931-937 (2007).
- Zheng, Z. -F., et al. Recovery of sympathetic nerve function after lumbar sympathectomy is slower in the hind limbs than in the torso. Neural Regen Res. 12 (7), 1177(2017).
- Holmberg, K., Shi, T. -J. S., Albers, K. M., Davis, B. M., Hökfelt, T. Effect of peripheral nerve lesion and lumbar sympathectomy on peptide regulation in dorsal root ganglia in the ngf-overexpressing mouse. Exp Neurol. 167 (2), 290-303 (2001).
- Thoenen, H., Tranzer, J. Chemical sympathectomy by selective destruction of adrenergic nerve endings with 6-hydroxydopamine. Naunyn Schmiedebergs Arch. Exp. Pathol. Pharmakol. 261, 271-288 (1968).
- Thoenen, H., Tranzer, J. P., Häusler, G. Chemical sympathectomy with 6-hydroxydopamine. New Aspects of Storage and Release Mechanisms of Catecholamines. , 130-143 (1970).
- Xie, W., et al. Localized sympathectomy reduces mechanical hypersensitivity by restoring normal immune homeostasis in rat models of inflammatory pain. J Neuroscience. 36 (33), 8712-8725 (2016).
- Zhu, X., Xie, W., Zhang, J., Strong, J. A., Zhang, J. -M. Sympathectomy decreases pain behaviors and nerve regeneration by downregulating monocyte chemokine ccl2 in dorsal root ganglia in the rat tibial nerve crush model. Pain. 163 (1), e106-e120 (2022).
- Tonello, R., et al. Local sympathectomy promotes anti-inflammatory responses and relief of paclitaxel-induced mechanical and cold allodynia in mice. Anesthesiology. 132 (6), 1540-1553 (2020).
- Kostrzewa, R. M., Jacobowitz, D. M. Pharmacological actions of 6-hydroxydopamine. Pharmacol Rev. 26 (3), 199-288 (1974).
- Michel, P., Hefti, F. Toxicity of 6-hydroxydopamine and dopamine for dopaminergic neurons in culture. J Neuroscience Res. 26 (4), 428-435 (1990).
- Andrew, R., et al. The determination of hydroxydopamines and other trace amines in the urine of parkinsonian patients and normal controls. Neurochemical Res. 18, 1175-1177 (1993).
- Glinka, Y., Gassen, M., Youdim, M. Mechanism of 6-hydroxydopamine neurotoxicity. J Neural Transm Suppl. 5, 55-66 (1997).
- Treuting, P. M., Dintzis, S. M., Montine, K. S. Comparative anatomy and histology: A mouse, rat, and human atlas. , Academic Press. 119(2017).
- Hweidi, S. A., Lee, S., Wolf, P. Effect of sympathectomy on microvascular anastomosis in the rat. Microsurgery. 6 (2), 9-96 (1985).
- Navarro, X., Kennedy, W. R. Sweat gland reinnervation by sudomotor regeneration after different types of lesions and graft repairs. Exp Neurol. 104 (3), 229-234 (1989).
- Gaudet, A. D., Popovich, P. G., Ramer, M. S. Wallerian degeneration: Gaining perspective on inflammatory events after peripheral nerve injury. J Neuroinflammation. 8 (1), 1-13 (2011).
- Babetto, E., et al. Targeting nmnat1 to axons and synapses transforms its neuroprotective potency in vivo. J Neuroscience. 30 (40), 13291-13304 (2010).
- Brumovsky, P. R. Dorsal root ganglion neurons and tyrosine hydroxylase-an intriguing association with implications for sensation and pain. Pain. 157 (2), 314(2016).
- Tian, T., Harris, A., Owyoung, J., Sima, H., Ward, P. J. Conditioning electrical stimulation fails to enhance sympathetic axon regeneration. bioRxiv. , (2023).
- Tian, T., Ward, P. J. The ThCre: Mtmg mouse has sparse expression in the sympathetic nervous system. bioRxiv. , 2023(2023).
- Ohman-Gault, L., Huang, T., Krimm, R. The transcription factor Phox2b distinguishes between oral and non-oral sensory neurons in the geniculate ganglion. J Comparative Neurol. 525 (18), 3935-3950 (2017).
- Pattyn, A., Morin, X., Cremer, H., Goridis, C., Brunet, J. -F. The homeobox gene phox2b is essential for the development of autonomic neural crest derivatives. Nature. 399 (6734), 366-370 (1999).
- François, M., et al. Sympathetic innervation of the interscapular brown adipose tissue in mouse. Ann N Y Acad Sci. 1454 (1), 3-13 (2019).
Przedruki i uprawnienia
