Tutaj opisujemy kompleksową metodę pomiaru mitochondrialnej fosforylacji oksydacyjnej w świeżych, przepuszczalnych włóknach mięśni szkieletowych z mięśni ludzkich lub myszy. Metoda ta pozwala na ilościowe określenie oddychania mitochondriów w czasie rzeczywistym oraz ocenę preferencji paliwowych i elastyczności metabolicznej przy jednoczesnym zachowaniu istniejących sieci mitochondrialnych i integralności błony.
Artykuł metodologiczny
Pomiar oddychania mitochondrialnego we włóknach mięśni szkieletowych ludzi i myszy za pomocą respirometrii o wysokiej rozdzielczości
W tym artykule
Podsumowanie
Streszczenie
Funkcja mitochondriów, kamień węgielny produkcji energii komórkowej, jest kluczowa dla utrzymania homeostazy metabolicznej. Jego dysfunkcja w mięśniach szkieletowych jest związana z powszechnymi zaburzeniami metabolicznymi (np. cukrzycą i otyłością), dystrofiami mięśniowymi i sarkopenią. Chociaż istnieje wiele technik oceny zawartości i morfologii mitochondriów, charakterystyczną metodą oceny funkcji mitochondriów jest pomiar mitochondrialnej fosforylacji oksydacyjnej (OXPHOS) za pomocą respirometrii. Kwantyfikacja mitochondriów OXPHOS dostarcza informacji na temat efektywności mitochondrialnej produkcji energii oksydacyjnej i bioenergetyki komórkowej. Respirometr o wysokiej rozdzielczości zapewnia bardzo czułe, solidne pomiary mitochondrialnego OXPHOS w przepuszczalnych włóknach mięśniowych, mierząc w czasie rzeczywistym zmiany w tempie zużycia tlenu w mitochondriach. Zastosowanie przepuszczalnych włókien mięśniowych, w przeciwieństwie do izolowanych mitochondriów, zachowuje sieci mitochondrialne, utrzymuje integralność błony mitochondrialnej i ostatecznie pozwala na bardziej fizjologicznie istotne pomiary. System ten pozwala również na pomiar preferencji paliwowych i elastyczności metabolicznej - dynamicznych aspektów metabolizmu energetycznego mięśni. W tym miejscu przedstawiamy obszerny przewodnik po mitochondrialnych pomiarach OXPHOS we włóknach mięśni szkieletowych ludzi i myszy przy użyciu respirometru o wysokiej rozdzielczości. Grupy mięśni szkieletowych składają się z różnych rodzajów włókien, które różnią się preferencjami paliwowymi mitochondriów i bioenergetyką. Za pomocą respirometru o wysokiej rozdzielczości opisujemy metody oceny zarówno tlenowych substratów glikolitycznych, jak i kwasów tłuszczowych w celu oceny preferencji paliwowych i elastyczności metabolicznej w sposób zależny od rodzaju włókna. Protokół jest wszechstronny i ma zastosowanie zarówno do włókien mięśniowych ludzi, jak i gryzoni. Celem jest zwiększenie odtwarzalności i dokładności ocen funkcji mitochondriów, co poprawi naszą wiedzę na temat organelli ważnych dla zdrowia mięśni.
Wprowadzenie
Mitochondria są kamieniem węgielnym produkcji energii komórkowej, co czyni je niezbędnymi do utrzymania optymalnej homeostazy komórkowej i organizmu. Te organelle o podwójnej membranie są przede wszystkim odpowiedzialne za fosforylację oksydacyjną. Proces ten skutecznie przekształca składniki odżywcze, takie jak cukry i kwasy tłuszczowe, w adenozynotrójfosforan (ATP), komórkową walutę energii. Poza rolą w metabolizmie energetycznym, mitochondria są również kluczowymi regulatorami różnych procesów komórkowych, w tym apoptozy, homeostazy wapnia i reaktywnych form tlenu (ROS)1,2. Ze względu na ich kluczową rolę w utrzymaniu homeostazy komórkowej i organizmu, zakłócenia funkcji mitochondriów często mają szkodliwy wpływ na zdrowie tkanek i organizmów. W mięśniach szkieletowych dysfunkcja mitochondriów jest związana z licznymi stanami chorobowymi, w tym zaburzeniami metabolicznymi (np. otyłością, cukrzycą i chorobami układu krążenia), sarkopenią i dystrofią mięśniową3,4,5,6,7,8.
Dysfunkcja mitochondriów może objawiać się przede wszystkim zmienioną zawartością, liczbą i morfologią mitochondriów, a także zaburzonym metabolizmem. W związku z tym osiągnięcie kompleksowego zrozumienia dysfunkcji mitochondriów wymaga integracyjnego i holistycznego podejścia. Wstępne badania charakteryzacyjne obejmują badanie poziomów ekspresji kompleksów białek łańcucha oddechowego jako odczyt zawartości mitochondriów, ilościowe określenie mitochondrialnego DNA i markerów biogenezy jako miary biogenezy mitochondriów oraz zaawansowane obrazowanie mikroskopem elektronowym w celu oceny morfologii mitochondriów9,10. Dodatkowe oceny funkcji mitochondriów obejmują ocenę produkcji komórkowych ROS i ATP oraz potencjału błony mitochondrialnej9.
Ponieważ mitochondria są niezbędne do produkcji energii komórkowej i homeostazy, cechą charakterystyczną oceny funkcji mitochondriów jest pomiar mitochondrialnej fosforylacji oksydacyjnej (OXPHOS). Respirometria przepuszczalnych włókien mięśniowych o wysokiej rozdzielczości pozwala na pomiar zmian w czasie rzeczywistym w tempie zużycia tlenu w mitochondriach jako odczyt dynamicznych zmian aktywności mitochondrialnego łańcucha oddechowego OXPHOS9,11,12. Zastosowanie selektywnych modulatorów i inhibitorów chemicznych pozwala na bezpośredni i sekwencyjny pomiar aktywności różnych kompleksów oddechowych. Chociaż izolowane mitochondria mogą być wykorzystywane w respirometrii, użycie świeżych, przepuszczalnych włókien mięśniowych utrzymuje endogenne sieci mitochondrialne i integralność błony - umożliwiając w ten sposób bardziej fizjologicznie istotne pomiary. Dodatkowo, ponieważ różne typy włókien mięśniowych mają różne preferencje dotyczące podłoża i tempa oddychania, system ten pozwala mierzyć zmiany w preferencjach paliwowych i elastyczności metabolicznej w oparciu o typ włókna13.
Tutaj opisujemy kompleksowy protokół pomiarów mitochondrialnych OXPHOS przy użyciu ludzkich lub mysich włókien mięśni szkieletowych w systemie respirometrycznym o wysokiej rozdzielczości. Uwzględniono metody ilościowego oznaczania mitochondrialnego oddychania tlenowego we włóknach oksydacyjnych lub glikolitycznych przy użyciu pirogronianu lub palmitoilo-karnityny jako substratu. Protokół ten pozwala na użycie innych substratów paliwowych w celu rozwiązania określonych problemów metabolicznych związanych z defektami w wykorzystaniu substratu i preferencjami paliwowymi.
Protokół
Wszystkie procedury z użyciem myszy zostały zatwierdzone przez Instytucjonalny Komitet Opieki i Wykorzystania Zwierząt (Institutional Animal Care and Use Committee) Uniwersytetu Waszyngtońskiego. W eksperymentach tych można wykorzystać myszy każdej płci, w każdym wieku i o dowolnej masie ciała, w zależności od charakteru pytania badawczego. Myszy wykorzystane w niniejszej procedurze to dorosłe (w wieku 12–16 tygodni) samce myszy typu dzikiego szczepu C57BL/6. Wszystkie procedury z udziałem ludzi zostały zatwierdzone przez Instytucjonalną Radę Recenzencką (Institutional Review Board) Uniwersytetu Waszyngtońskiego. Uczestnicy badania wyrazili zgodę na wykorzystanie danych, a reprezentatywne dane dotyczące ludzi zawarte w niniejszym protokole pochodzą z opublikowanego badania.14Dane pochodzą od kobiet w okresie pomenopauzalnym (w wieku 55–75 lat) bez cukrzycy. Szczegółowe informacje dotyczące przygotowania odczynników niezbędnych do przeprowadzenia analizy przedstawiono w Tabela 1Informacje dotyczące konkretnych odczynników, narzędzi i urządzeń wykorzystanych w analizie wymieniono w Tabela materiałówSchematyczny przegląd protokołu przedstawiono w Rysunek 1.

Rycina 1: Schemat wysokorozdzielczej respirometrii na próbkach permeabilizowanych mięśni szkieletowych. Metoda szczegółowo opisana w niniejszym opracowaniu podzielona jest na 6 etapów: 1) przygotowanie buforów do oddychania i odczynników, 2) przygotowanie aparatury i odczynników w dniu analizy, 3) przygotowanie i permeabilizacja próbek mięśni, 4) przygotowanie próbki i urządzenia, 5) przeprowadzenie analizy oddychania oraz 6) analiza danych. Stworzono za pomocą BioRender.com Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
1. Przygotowanie analizy i kalibracja urządzenia
- W dniu przeprowadzenia analizy wyjąć wymaganą liczbę alikwotów każdego związku oddechowego (blebbistatyna, palmitoylo karnityna, glutaminian, jabłczan, ADP, bursztynian, cytochrom C, FCCP) i rozmrozić je na lodzie. Rozmrozić fiolki z BIOPS i MiR05 na lodzie.
- Przygotować roztwory saponiny i pirogronianu zgodnie z treścią Tabeli 1. Przygotować roztwór roboczy MiR05 zgodnie z Tabelą 1. Przygotować 5 mL roztworu roboczego MiR05 na każdy przyrząd (2 komory). Zwiększyć objętość w razie potrzeby.
- Włączyć system respirometrii wysokiej rozdzielczości oraz system próżniowy. Zdjąć korki, usunąć roztwór konserwujący z 70% etanolu za pomocą próżni i ponownie napełnić komorę ultrapure wodą H2O klasy molekularnej. Usunąć H2O próżniowo i ponownie napełnić. Powtórzyć czynność łącznie 3 razy. Po ostatnim płukaniu dodać do każdej komory 2 mL MiR05 (bez kreatyny lub blebbistatyny).
- Otworzyć oprogramowanie respirometryczne. Po uruchomieniu oprogramowania pojawi się okno wyskakujące z ustawieniami instrumentu. Ustawić prędkość mieszania w komorze na 750 rpm, temperaturę na 37 °C oraz interwał rejestracji danych na 2 s. Ustawić wzmocnienie (gain) na 1 i napięcie polaryzacji na 800 mV dla czujników tlenu. Kliknąć Connect to Oxygraph, aby nawiązać komunikację z instrumentem.
- Po nawiązaniu komunikacji otworzy się okno dialogowe umożliwiające nazwanie i zapisanie pliku eksperymentalnego. Zapisać plik z bieżącą datą i dopiskiem o kalibracji. Po zapisaniu pliku pojawi się okno dialogowe z detalami eksperymentu. Dla pomiaru kalibracyjnego żadne informacje nie są wymagane i można zamknąć to okno.
- Rejestrować stężenie tlenu przez co najmniej 30 min, aby umożliwić rozgrzanie się komór i zarejestrowanie sygnałów do kalibracji powietrznej. Można to robić podczas przygotowywania włókien mięśniowych, zgodnie z opisem w kroku 2 poniżej.
- Pod koniec okresu kalibracji zaznaczyć obszar kalibracji w miejscu, w którym stężenie tlenu (niebieska linia) jest stabilne. Aby to zrobić, przytrzymać klawisz Shift oraz lewy przycisk myszy i przeciągnąć kursor po wybranym obszarze na osi czasu.
- Otworzyć okno kalibracji, przechodząc do Oxygraph > O2 Calibration. Dla kalibracji powietrznej (Air Calibration) wybrać znacznik utworzony w kroku 1.8. Kliknąć Calibrate and Copy to Clipboard.
- Powtórzyć kroki 1.6-1.8 dla pozostałej komory. Kalibrację powietrzną przeprowadzać codziennie. Zatrzymać rejestrację kalibracji powietrznej i zapisać plik, rozłączając się z instrumentem. Po przygotowaniu próbek przejść do kroku 3 w celu przeprowadzenia analizy.
2. Pozyskiwanie i permeabilizacja włókien mięśni szkieletowych
- Izolacja tkanki mysiej
- Dla każdej próbki przeznaczonej do analizy, napełnij jeden dołek 12-dołkowej płytki hodowlanej 1 mL BIOPS. Umieść płytkę na lodzie w celu schłodzenia.
- Po uśmierceniu myszy poprzez inhalację dwutlenkiem węgla, a następnie zwichnięcie stawów szyjnych, pobierz interesujący badacza mięsień szkieletowy, upewniając się, że usunięto całą tkankę łączną i tłuszczową (Rysunek 2A). Umieść mięsień w jednym z dołków zawierających BIOPS. Przechowuj na lodzie do czasu przygotowania włókien.
UWAGA: Zgodnie z niniejszym protokołem można badać dowolny mięsień szkieletowy – typ badanego mięśnia zależy od pytania badawczego, na które szukamy odpowiedzi. W przypadku mięśni szkieletowych o mieszanym typie włókien, takich jak mięsień brzuchaty łydki, możliwe jest rozdzielenie tkanki na sekcje białe i czerwone, aby zmierzyć włókna głównie szybkokurczliwe (sekcje białe) i głównie wolnokurczliwe (sekcje czerwone) (Rysunek 2B).
- Izolacja tkanki ludzkiej
- Pobierz tkankę zgodnie z protokołem klinicznym14. Szybko opłucz tkankę zimnym, sterylnym PBS i umieść ją w probówce stożkowej zawierającej 2 mL roztworu BIOPS. Przechowuj tkankę na lodzie do czasu przygotowania włókien.
- Przygotowanie włókien
- Permeabilizacja zostanie przeprowadzona w 6-dołkowej płytce do hodowli tkanek. Dodaj 2 mL roztworu BIOPS do jednego zestawu dołków i 2 mL MiR05 do drugiego zestawu dołków. Jeden zestaw dołków będzie wymagany dla każdej analizowanej próbki.
- Wypełnij tackę lodem i umieść na nim szklaną szalkę Petriego dnem do góry. Pamiętaj, aby mięsień zawsze znajdował się na lodzie.
- Przenieś pobrane próbki mięśni na schłodzoną platformę z szalką Petriego za pomocą pęsety. Używając dwóch pęset z cienkimi końcówkami oraz mikroskopu sekcyjnego z źródłem światła, delikatnie oczyść tkankę, usuwając wszelkie ścięgna, powięzi i tkankę tłuszczową przylegającą do mięśnia.
- Po usunięciu wszystkich zbędnych tkanek pozamięśniowych, delikatnie rozdziel włókna mięśniowe pęsetą z cienkimi końcówkami, aż powstaną małe pęczki półprzezroczystych włókien o długości od 0,75 - 1,0 mm (Rysunek 2C-D). Po rozdzieleniu włókien, za pomocą pęsety przenieś pęczki włókien do dołka na płytce 6-dołkowej zawierającego roztwór BIOPS na lodzie.
- Dodaj 20 µL roztworu saponiny o stężeniu 5 mg/mL do każdego dołka z BIOPS i inkubuj płytkę na lodzie, delikatnie kołysząc w pomieszczeniu chłodniczym przez 20 min.
- Po traktowaniu saponiną przenieś włókna mięśniowe do dołka zawierającego MiR05 w celu opłukania przed analizą. Inkubuj na lodzie, delikatnie kołysząc w pomieszczeniu chłodniczym przez 15 min.
- Po zakończeniu inkubacji włókien w MiR05, zbierz włókna ostrą pęsetą i delikatnie osusz je na chłonnym ręczniku papierowym. Wyzeruj plastikową probówkę do mikrocentryfugi o pojemności 1,5 mL na wadze analitycznej i umieść w probówce 2-3 mg włókien. Zapisz końcową masę włókien na boku każdej probówki. Umieść probówkę na lodzie. Powtórz czynność dla pozostałych próbek. Natychmiast przejdź do kroku 3.
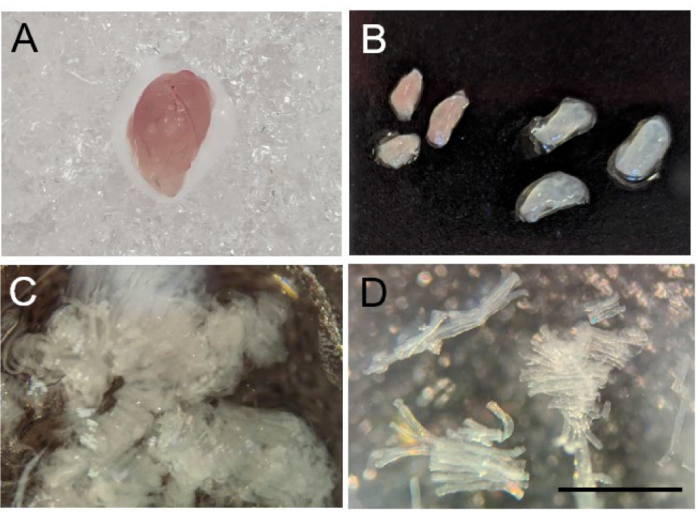
Rysunek 2: Separacja włókien mięśni szkieletowych myszy. (A) Makroskopowa morfologia mięśnia brzuchatego myszy po pobraniu. (B) Disekcja mięśnia brzuchatego na segmenty czerwony (lewy) i biały (prawy). (C) Mechanicznie odseparowane włókna mięśniowe. (D) Obraz przy powiększeniu 10x przedstawiający pomyślnie odseparowane włókna mięśniowe. Pasek skali wynosi 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
3. Przygotowywanie próbek mięśni w respirometrze
- Odssać za pomocą próżni roztwór MiR05 użyty do kalibracji urządzenia, zgodnie z opisem w kroku 1 powyżej, a następnie dodać 2,1 ml roboczego roztworu MiR05 do każdej komory.
- Utwórz nowy plik dla eksperymentu, stosując te same ustawienia instrumentu, które opisano w kroku 1.5. powyżej. Określ nazwę pliku i ustawienia zapisu.
- Po ustawieniu nazwy pliku wyświetli się kolejne okno dialogowe służące do wprowadzenia szczegółów eksperymentu. Należy wpisać informacje o próbkach oraz masę każdej próbki dodanej do poszczególnych komór. Następnie należy zamknąć okno dialogowe.
- Po przejściu do nowego pliku eksperymentalnego należy przeprowadzić kalibrację, otwierając okno O2 Calibration. Kliknij Kopiuj z pliku i wybierz plik zapisany w kroku 1.9. powyżej. Kliknij Kalibruj i kopiuj do schowka przycisk. Powtórz proces dla pozostałej komory.
- Za pomocą precyzyjnej pęsety ostrożnie przenieś pęczki włókien mięśniowych do roztworu oddechowego przeznaczonego dla odpowiedniej komory. Powtórz czynność dla pozostałej komory.
- Umieść zatyczki w komorze i ostrożnie przymknij komorę, dociskając zatyczki mniej więcej do połowy ich wysokości. Gdy uszczelki typu o-ring na zatyczkach zetkną się ze ścianką komory i pojawi się opór, dociśnij je, wykonując jednocześnie ruch obrotowy, aby zamknąć komorę. Gdy komora zostanie zamknięta do połowy, na jej górnej części można zauważyć niewielki pęcherzyk powietrza.
UWAGA: Włókna przepuszczalne podlegają ograniczeniom dyfuzji tlenu w standardowych warunkach oddychania. Aby ominąć to ograniczenie, badanie prowadzone jest przy podwyższonych stężeniach tlenu.11. - Napełnić plastikową strzykawkę o pojemności 10 ml czystym tlenem z butli tlenowej. Na strzykawkę nałożyć długą, tępą igłę dołączoną do instrumentu. Wprowadzić igłę do pierwszej komory i powoli podać do niej około 1 ml tlenu.
- Monitoruj stężenie tlenu w komorze w oprogramowaniu do respirometrii. Gdy stężenie tlenu w komorze osiągnie poziom 350-400 nmol/mL, delikatnie przekręć korek, jednocześnie dociskając go, aby całkowicie zamknąć komorę. Zajrzyj do komory i upewnij się, że nie pozostały w niej pęcherzyki powietrza. Jeśli obecny jest pęcherzyk powietrza, ostrożnie i szybko otwórz komorę, dodaj 100 µL dodatkowej ilości roztworu roboczego MiR05, a następnie szybko ponownie zamknąć komorę. Powtórzyć czynność dla pozostałych komór.
- Podczas analizy należy utrzymywać stężenie tlenu powyżej 250 nmol/mL. W razie potrzeby należy uzupełnić tlen, częściowo otwierając komorę, wprowadzając dodatkową ilość tlenu strzykawką do pęcherzyka powietrznego, a następnie ostrożnie zamykając komorę.
- Znormalizuj dane dotyczące strumienia tlenu do masy tkanki wykorzystanej w eksperymencie. Aby dostosować wykresy, zmień układ tak, aby odzwierciedlał O2 Strumień (pmol O22 / (s x mg)). Z menu układu (layout menu) wybierz 06 - Układ specyficznego strumienia na jednostkę próbkiDane zostaną teraz przedstawione w formie znormalizowanej do ilości tkanki w każdej komorze.
4. Respirometria wysokiej rozdzielczości
- Gdy stężenie tlenu (niebieska linia) i strumień O2 (czerwona linia) ustabilizują się po dodaniu tlenu, rozpocznij protokół oddychania. Tlen można uznać za stabilny, gdy niebieska linia jest płaska lub powoli opada. Strumień O2 również powinien być płaski i mieścić się w zakresie 5 pmol O2 / s x mg.
- Wszystkie odczynniki dodawaj za pomocą szklanych strzykawek. Ważne jest, aby nie używać tej samej strzykawki do substratów, inhibitorów i odsprzęgaczy. Dla każdego z nich przygotuj osobną strzykawkę. Po dodaniu każdego związku rejestruj strumień tlenu przez 1-2 min po ustabilizowaniu się tempa oddychania, zanim dodasz kolejny odczynnik.
- Pomiar oddychania
- Za pomocą szklanej strzykawki 10 µL dodaj 2,5 µL 0,8 M jabłczanu do każdej komory. Naciśnij F4, aby zaznaczyć oś czasu i opisz znacznik literą M. Rejestruj stabilny strumień O2 przez 1-2 min.
- Dodaj odczynniki specyficzne dla składnika odżywczego zgodnie z poniższym opisem.
- Glikoliza tlenowa: Za pomocą szklanej strzykawki 10 µL dodaj 10 µL 2 M glutaminianu i 5 µL 2 M pirogronianu do każdej komory. Naciśnij F4 , aby zaznaczyć oś czasu i opisz znacznik jako G P. Rejestruj stabilny strumień O2 przez 1-2 min.
- Kwasy tłuszczowe: Za pomocą szklanej strzykawki 10 µL dodaj 10 µL 2 M glutaminianu i 10 µL 10 mM palmitylo-karnityny do każdej komory. Naciśnij F4 , aby zaznaczyć oś czasu i opisz znacznik jako G PC. Rejestruj stabilny strumień O2 przez 1-2 min.
- Za pomocą szklanej strzykawki 25 µL dodaj 20 µL 0,5 M ADP (z MgCl2) do każdej komory. Naciśnij F4, aby zaznaczyć oś czasu i opisz znacznik jako ADP. Rejestruj stabilny strumień O2 przez 1-2 min.
- Za pomocą szklanej strzykawki 25 µL dodaj 20 µL 1 M bursztynianu do każdej komory. Naciśnij F4 , aby zaznaczyć oś czasu i opisz znacznik literą S. Rejestruj stabilny strumień O2 przez 1-2 min.
- Za pomocą szklanej strzykawki 10 µL dodaj 5 µL 4 mM cytochromu C do każdej komory. Naciśnij F4 , aby zaznaczyć oś czasu i opisz znacznik jako Cyt C. Rejestruj stabilny strumień O2 przez 1-2 min.
- Tytruj trzy bolusy po 1 µL 1 mM FCCP za pomocą szklanej strzykawki 10 µL. Przy dodawaniu FCCP zazwyczaj występuje efekt mieszania, który skutkuje krótkotrwałym spadkiem poziomu strumienia O2. Odczekaj, aż strumień O2 wzrośnie i się ustabilizuje przed przejściem do następnego kroku. Po każdym dodaniu naciśnij F4, aby zaznaczyć oś czasu i opisz znacznik jako FCCP. Rejestruj stabilny strumień O2 przez 1 min po każdym dodaniu.
- Po zakończeniu pomiaru oddychania ostrożnie wyjmij korki, przekręcając i wyciągając je do góry. Przepłucz komory 3x ultra czystą wodą H2O z butelki z atomizerem, a następnie 3x 70% etanolem z butelki z atomizerem. Po ostatnim płukaniu etanolem napełnij komory 70% etanolem w celu przechowywania.
- Osadź korki w komorach aż do poczucia oporu. Nie domykaj korków całkowicie. Nałóż nasadki na korki, zapisz plik z pomiarem i odłącz urządzenie od oprogramowania Respirometry. Wyłącz urządzenie.
5. Analiza danych
- Otwórz plik analizy w oprogramowaniu do respirometrii. Wyodrębnij dane z obszarów stabilnego przepływu tlenu uzyskanych po wstrzyknięciu związków oddechowych.
- Aby zaznaczyć interesujące obszary, przytrzymaj klawisz Shift, kliknij lewy przycisk myszy i przeciągnij ramkę przez obszar stabilnej szybkości przepływu O2 dla etapów analizy opisanych poniżej.
- Etapy analizy14,15,16,17,18,19,20
- Zaznacz oś czasu po dodaniu malonianu/glutaminianu/pirogronianu (protokół glikolityczny tlenowy) lub malonianu/glutaminianu/palmitoylo-karnityny (protokół kwasów tłuszczowych). Szybkość ta reprezentuje szybkość oddychania stanu 2 Kompleksu I (LEAK(n)).
- Zaznacz oś czasu po dodaniu ADP. Szybkość ta reprezentuje szybkość oddychania stanu 3 Kompleksu I (CI OXPHOS).
- Zaznacz oś czasu po dodaniu bursztynianu. Szybkość ta reprezentuje szybkość oddychania stanu 3 Kompleksów I+II (CI+II OXPHOS).
- Zaznacz oś czasu po dodaniu cytochromu C. Szybkość ta reprezentuje szybkość oddychania stanu 3 Kompleksów I+II+cytochrom (CI+II+Cyt C OXPHOS).
- Zaznacz na osi czasu miareczkowanie FCCP z najwyższą szybkością przepływu O2. Szybkość ta reprezentuje maksymalną szybkość oddychania (MAX ETS).
- Pobierz wartości danych dla zaznaczonych obszarów na osi czasu, wybierając Mark > Statistics. Skopiuj szybkość przepływu O2 (pmol O2/(s x mg)) dla zaznaczonej komory do arkusza kalkulacyjnego.
- Powtórz zaznaczanie i wyodrębnianie danych dla pozostałych komór.
- Oblicz wskaźnik kontroli oddechowej (RCR), dzieląc szybkość stanu 3 Kompleksów I+II (po dodaniu bursztynianu) przez szybkość stanu 2 Kompleksu I (przed dodaniem ADP).
Wyniki
Rysunek 3 i Rysunek 4 przedstawiają odpowiednio wykresy zużycia tlenu dla protokołów respirometrii glikolitycznej tlenowej oraz respirometrii kwasów tłuszczowych dla prawidłowo przygotowanych włókien czerwonych i białych mięśnia brzuchłego myszy. Przedstawiono również reprezentatywne wyniki ilościowe dla odniesienia. Rysunek 5 przedstawia wykres zużycia tlenu w respirometrii glikolitycznej tlenowej w prawidłowo przygotowanych próbkach biopsji mięśni ludzkich. Przedstawiono również reprezentatywne wyniki ilościowe. Należy zauważyć, że w przypadku Rysunku 3, Rysunku 4 i Rysunku 5 dodanie cytochromu C po dodaniu ADP nie wpływa na przepływ tlenu, co wskazuje, że zewnętrzna błona mitochondrialna próbki jest nienaruszona. Rysunek 6 przedstawia wykres zużycia tlenu w respirometrii glikolitycznej tlenowej, w której dodanie cytochromu C po ADP powoduje gwałtowny wzrost (o 40%) przepływu tlenu, co wskazuje na uszkodzenie zewnętrznej błony mitochondrialnej, w związku z czym próbka nie powinna być użyta do respirometrii – potencjalnymi przyczynami takiego wyniku mogą być niewłaściwa obsługa lub zamrażanie/rozmrażanie tkanki, zbyt długotrwała permeabilizacja tkanki oraz nieużycie świeżo wyizolowanej tkanki.
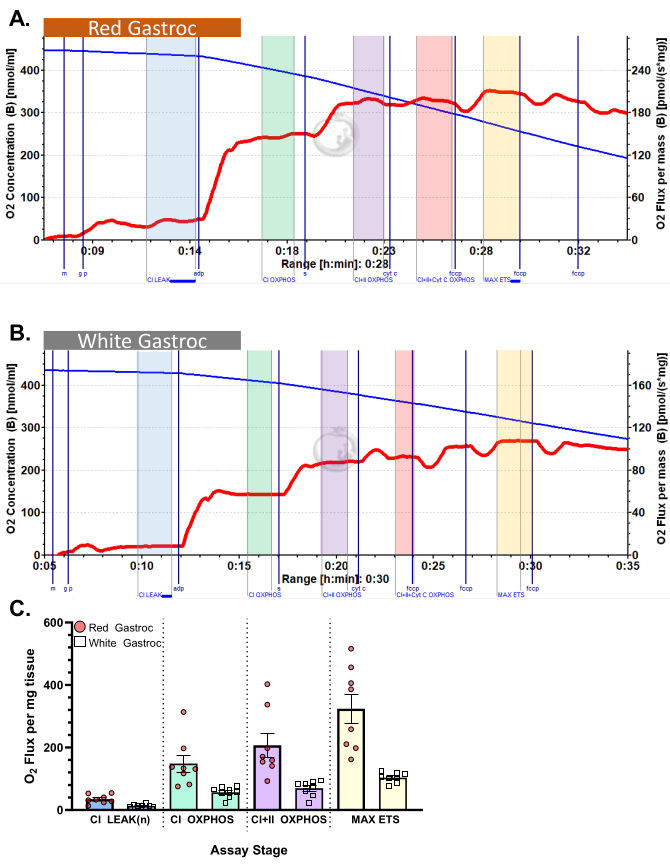
Rysunek 3: Zużycie tlenu u myszy. Wyniki pokazują zużycie tlenu w (A) czerwonych i (B) białych mięśniach brzuchatym z zastosowaniem protokołu pirogronianowego. Strumień stanu 2 po dodaniu malonianu, glutaminianu i pirogronianu (cień niebieski, CI LEAK). Znaczną stymulację zużycia O2 obserwuje się po podaniu ADP (cień zielony, CI OXPHOS), a oddychanie jest dalej napędzane po dodaniu bursztynianu (cień fioletowy, CI+II OXPHOS). Cytochrom C nie wywołał znaczącego wzrostu (<15%), co wskazuje na nienaruszoną zewnętrzną błonę mitochondrialną (cień pomarańczowy, CI+II+Cyt C OXPHOS). Mitochondria zostają rozsprzęzone po dodaniu FCCP (cień żółty, MAX ETS). Linia niebieska reprezentuje stężenie tlenu w zamkniętej komorze. Linia czerwona reprezentuje tempo zużycia tlenu (strumień O2). Dodane związki: malonian (m), glutaminian (g), pirogronian (p), adenozylodyfosforan (ADP), cytochrom C (cyt c), cyjano-karbonyl cyjanek p-trifluorometoksyfenylohydrazona (FCCP). (C) Histogram odzwierciedla reprezentatywne wyniki (n=8). Dane przedstawiono jako ± SEM. Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
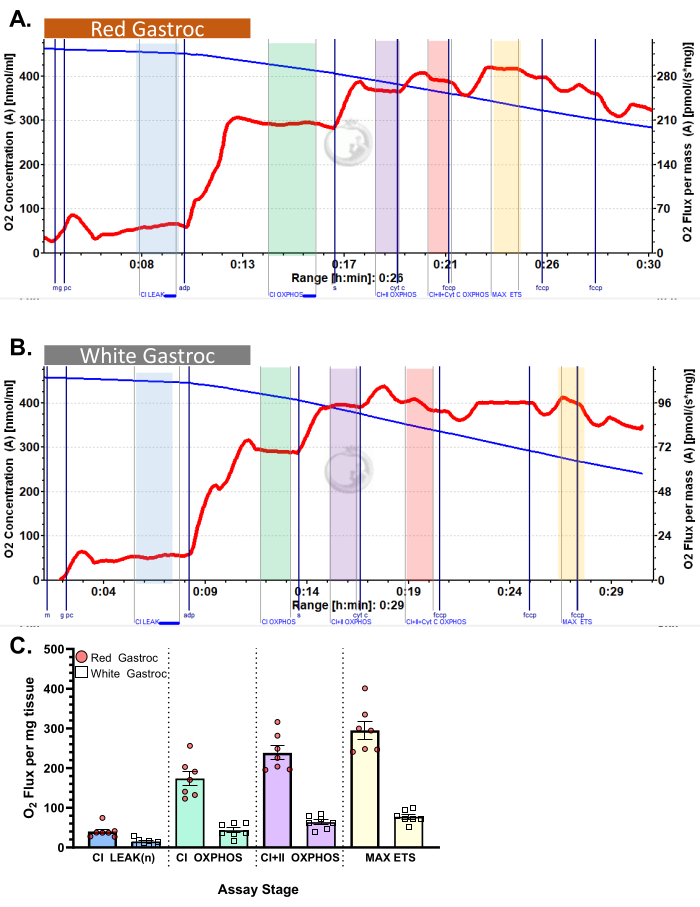
Rycina 4: Zużycie tlenu u myszy. Wyniki przedstawiają zużycie tlenu w (A) czerwonych i (B) białych włóknach mięśnia brzuchatego z zastosowaniem protokołu palmitoilokarnitynowego. Przepływ w stanie 2 po dodaniu malonianu, glutaminianu i palmitoilokarnityny (odcień niebieski, CI LEAK). Znaczną stymulację zużycia O2 obserwuje się po podaniu ADP (odcień zielony, CI OXPHOS), a oddychanie jest dalej napędzane po dodaniu bursztynianu (odcień fioletowy, CI+II OXPHOS). Cytochrom C nie wywołał znaczącego wzrostu (<15%), co wskazuje na nienaruszoną zewnętrzną błonę mitochondrialną (odcień pomarańczowy, CI+II+Cyt C OXPHOS). Mitochondria zostają odsprzężone po dodaniu FCCP (odcień żółty, MAX ETS). Linia niebieska reprezentuje stężenie tlenu w zamkniętej komorze. Linia czerwona reprezentuje tempo zużycia tlenu (przepływ O2). Dodane związki: malonian (m), glutaminian (g), palmitoilokarnityna (pc), adenozynodifosforan (ADP), cytochrom C (cyt c), karbonylowy cyjanek-p-trifluorometoksyfenylohydrazon (FCCP). (C) Wykres słupkowy przedstawia reprezentatywne wyniki (n=7). Dane przedstawiono jako ± SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
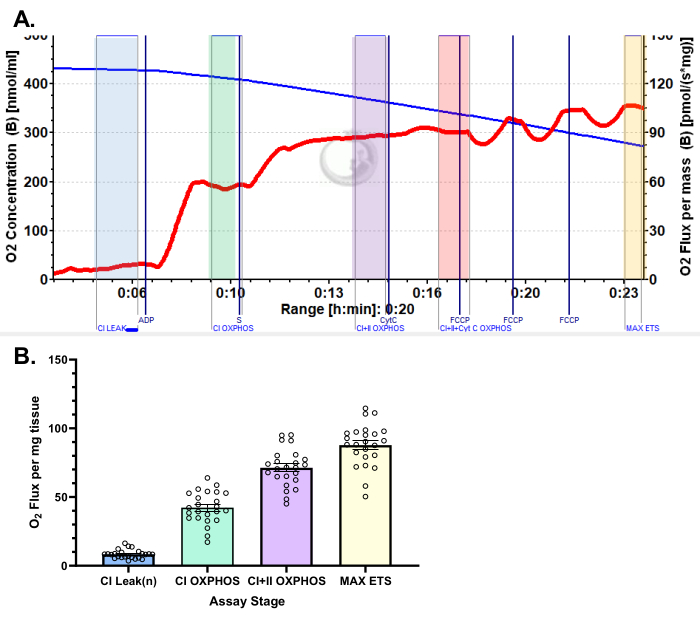
Rysunek 5: Reprezentatywne wyniki zużycia tlenu w ludzkim mięśniu obszernym bocznym z zastosowaniem protokołu z pirogronianem. (A) Przepływ w stanie 2 po dodaniu jabłczanu, glutaminianu i pirogronianu (odcień niebieski, CI LEAK). Znaczną stymulację zużycia O2 obserwuje się po podaniu ADP (odcień zielony, CI OXPHOS), a oddychanie jest dalej stymulowane po dodaniu bursztynianu (odcień fioletowy, CI+II OXPHOS). Cytochrom C nie wywołał znaczącego wzrostu (<15%), co wskazuje na nienaruszoną zewnętrzną błonę mitochondrialną (odcień pomarańczowy, CI+II+Cyt C OXPHOS). Mitochondria zostają rozsprzężone po dodaniu FCCP (odcień żółty, MAX ETS). Niebieska linia reprezentuje stężenie tlenu w zamkniętej komorze. Czerwona linia reprezentuje tempo zużycia tlenu (przepływ O2). Dodane związki: jabłczan (m), glutaminian (g), pirogronian (p), difosforan adenozyny (ADP), cytochrom C (cyt c), karbonylo cyjanid-p-trifluorometoksyfenylohydrazona (FCCP). (B) Wykres słupkowy przedstawia reprezentatywne wyniki uzyskane z biopsji mięśnia obszernego bocznego (n = 24). Dane przedstawiono jako ± SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
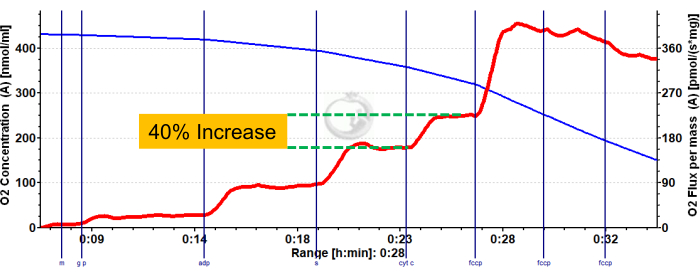
Rysunek 6: Reprezentatywny wynik wykazujący upośledzoną integralność zewnętrznej błony mitochondrialnej w czerwonym mięśniu brzuchatym myszy. Strumień stanu 2 po dodaniu malonianu, glutaminianu i pirogronianu (odcień niebieski, CI LEAK). Znaczną stymulację zużycia O2 obserwuje się po podaniu ADP (odcień zielony, CI OXPHOS), a oddychanie jest dalej napędzane po dodaniu bursztynianu (odcień fioletowy, CI+II OXPHOS). Cytochrom C wywołał znaczny wzrost zużycia O2 (>15%), co wskazuje na uszkodzenie zewnętrznej błony mitochondrialnej. Linia niebieska przedstawia stężenie tlenu w zamkniętej komorze. Linia czerwona przedstawia szybkość zużycia tlenu (strumień O2). Dodane związki: malonian (m), glutaminian (g), pirogronian (p), adenozynodifosforan (ADP), cytochrom C (cyt c), karbonylocyjanid-p-trifluorometoksyfenylohydrazon (FCCP). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Tabela 1: Przygotowanie odczynników w postaci związków oddechowych i roztworów oddechowych. Przedstawiono szczegóły dotyczące przygotowania odczynników niezbędnych do analizy, w tym końcowe stężenia zapasowe oraz sposób ich przygotowania i przechowywania. Proszę kliknąć tutaj, aby pobrać tę tabelę.
Dyskusja
Protokół ten zapewnia kompleksowy i prosty protokół szablonowy do oceny funkcji mitochondriów w przepuszczalnych włóknach mięśni szkieletowych zarówno dla próbek ludzkich, jak i mysich. Istnieje kilka zalet stosowania włókien przepuszczalnych zamiast izolowanych mitochondriów. Jedną z kluczowych zalet jest to, że zastosowanie przepuszczalnych włókien wymaga niewielkich (2-5 mg) ilości tkanki, dzięki czemu metoda ta jest odpowiednia zarówno dla próbek biopsji mięśni ludzkich, jak i mięśni myszy. Kolejną zaletą w stosunku do izolowanych mitochondriów jest to, że architektura komórkowa pozostaje nienaruszona, zapewniając zachowanie strukturalnych i funkcjonalnych interakcji między mitochondriami a komponentami komórkowymi 12,21,22,23.
Zastosowanie pirogronianu, jabłczanu i glutaminianu w naszym tlenowym protokole glikolitycznym zapewnia kompleksową, szeroką ocenę dostarczania NADH do kompleksu I 24,25,26,27,28. Chociaż to kompleksowe podejście zapewnia ocenę aktywności kompleksu I w holistycznych i fizjologicznie istotnych warunkach metabolicznych, zastosowanie jabłczanu pirogronianu lub jabłczanu glutaminianu może być bardziej odpowiednim podejściem eksperymentalnym. Na przykład stosowanie jabłczanu glutaminianu może uwypuklić różnice w funkcji mitochondriów związane z katabolizmem aminokwasów29. Zachęcamy badaczy do starannego rozważenia odpowiedniego podejścia do ich konkretnego modelu badawczego.
Chociaż protokół ten koncentruje się na wykorzystaniu substratów do oceny aktywności mitochondriów, zastosowanie specyficznych inhibitorów może być konieczne do osiągnięcia celów eksperymentalnych. Na przykład rotenon może być stosowany do hamowania kompleksu I 12,21,30, oligomycyny do hamowania kompleksu V (syntazy ATP)12,21, a antymycyny A do blokowania kompleksu III12,21 w celu oceny oddychania niemitochondrialnego. Przedstawiony powyżej protokół można łatwo dostosować do stosowania określonych inhibitorów. Warto zauważyć, że jednym z zastrzeżeń dotyczących stosowania inhibitorów jest to, że związki te są lepkie i wymagają intensywnego czyszczenia w celu usunięcia z komory instrumentu. Stwierdzamy, że użycie roztworu 10% BSA przez 60 minut jest wystarczające do usunięcia resztkowych inhibitorów.
Oddychanie nieszczelne odnosi się do szybkości zużycia tlenu, która jest niezależna od syntezy ATP. Szybkość ta reprezentuje przepływ protonów z powrotem do macierzy mitochondrialnej przez wewnętrzną błonę mitochondrialną. Istnieją trzy akceptowane metody oceny zużycia tlenu niezależnie od syntezy ATP (LEAK). Pierwsza, LEAK(n), mierzy szybkość zużycia tlenu w obecności substratów, ale bez dodatku adenylanów (ADP lub ATP)31,32,33. Ten stan LEAK reprezentuje wewnętrzną nieszczelność błony mitochondrialnej. Druga metoda, LEAK(t), jest mierzona w obecności ATP34, a trzecia, LEAK(o), jest mierzona w obecności inhibitora syntazy ATP oligomycyny 35,36,37. Protokół ten wykorzystuje LEAK(n) do tej oceny, ale w zależności od celów i modeli eksperymentalnych, inne metody pomiaru strumienia tlenu LEAK mogą być odpowiednie.
W tym teście MiR05 jest uzupełniany zarówno kreatyną (3 mg/ml), jak i blebbistatyną (10 μM). Mitochondrialny transport ADP jest ułatwiony przez kinazę kreatynową (CK), a kreatyna jest dodawana do roztworu oddechowego w celu nasycenia aktywności CK38,39. Włókna mięśniowe mogą spontanicznie się kurczyć i są również wrażliwe na skurcz wywołany przez ADP. Aby ocenić aktywność oddechową mitochondriów bez wpływu skurczu, dodano blebbistatynę, aby zahamować aktywność skurczową włókien38. Ponadto badania nad ludzkimi mięśniami sugerują, że metoda biopsji może mieć wpływ na wydolność oddechową (mikrobiopsja kontra igła Bergstroma) i że różnica ta może wynikać z różnic w uzyskanej długości włókien40,41. Krótsze włókna mogą być bardziej podatne na uszkodzenia podczas przygotowywania, a stosowanie blibstatyny pomaga zachować funkcję. Mogą istnieć pewne warunki, w których relaksacja błonnika nie pasuje do celów badawczych i w takim przypadku blebbistatyna może zostać wykluczona z roztworu MiR05.
Przepuszczalność włókien mięśni szkieletowych saponiną generuje pory w błonie plazmatycznej, co pozwala substratom i inhibitorom swobodnie wnikać do komórki. Saponina ma wysokie powinowactwo do cholesterolu, który jest bogaty i obfity w błony komórkowe plazmatyczne, podczas gdy błony mitochondrialne są ubogie w cholesterol42,43. Oczekuje się, że leczenie saponinami zastosowanymi do przygotowania błonnika w tym protokole zachowa integralność błony mitochondrialnej. Do uszkodzenia mitochondriów może również dojść z powodu sił ścinających, które wynikają z mechanicznego rozdzielenia tkanki na włókna. Sugerujemy, aby rozdzielanie tkanek na wiązki włókien odbywało się szybko i przy minimalnej obsłudze. Aby ocenić potencjalne uszkodzenie mitochondriów, włączyliśmy miareczkowanie cytochromu C do protokołu oddychania. Cytochrom C nie może przejść przez nienaruszoną zewnętrzną błonę mitochondrialną12, dlatego każdy wzrost strumieniaO2 po dodaniu cytochromu C wskazuje, że podczas procesu przygotowania próbki doszło do uszkodzenia zewnętrznej błony mitochondrialnej. W jednym z naszych ostatnich badań stwierdziliśmy, że strumieńO2 wzrósł o 8%15 po dodaniu cytochromu C, potwierdzając, że użycie saponin sugerowane w tym protokole nie powoduje uszkodzenia mitochondriów. Sugerujemy, że każda próbka wykazująca większy niż 15% wzrost strumieniaO2 po dodaniu cytochromu C powinna zostać wyłączona z analizy44. Ten etap jest uwzględniany wyłącznie jako środek kontroli jakości, a nie jako ocena aktywności kompleksu dożylnego.
Podczas gdy respirometria o wysokiej rozdzielczości doskonale sprawdza się w zapewnianiu bardzo czułych i wiarygodnych pomiarów zużycia tlenu, znaczącym ograniczeniem oprzyrządowania jest to, że tylko dwie próbki mogą być mierzone jednocześnie na urządzenie. Wymaga to starannego rozważenia przy projektowaniu badań obejmujących kohorty z wieloma próbami. Chociaż może istnieć pokusa, aby przeprowadzać pomiary na różnych zestawach próbek w ciągu dnia, zdecydowanie zalecamy badaczom rozważenie wpływu rytmu okołodobowego na metabolizm. Badania nad mięśniami szkieletowymi zarówno ludzi, jak i gryzoni wykazały wpływ zegara biologicznego na funkcję mitochondriów45,46. W związku z tym zalecamy przeprowadzanie pomiarów przez kilka dni o tej samej porze dnia, aby uwzględnić te wahania okołodobowe.
Wreszcie, aby zapewnić powtarzalne i solidne pomiary respirometryczne, respirometr musi być regularnie czyszczony, konserwowany i kalibrowany. Kalibracja powietrza, zgodnie z opisem w protokole, powinna być przeprowadzana codziennie. Zalecamy użytkownikom przeprowadzanie pełnej comiesięcznej kalibracji (zarówno powietrznej, jak i zerowej) polarograficznych czujników tlenu. Użytkownicy powinni zapoznać się z dokumentacją producenta i webstrona w celu uzyskania dalszych informacji na temat tej metody kalibracji oraz instrukcji dotyczących rutynowej konserwacji przyrządu.
Respirometria o wysokiej rozdzielczości pozostaje złotym standardem w pomiarze oddychania mitochondrialnego. Metoda opisana w tym protokole ułatwia rzetelną ocenę pojemności mitochondriów zarówno w mięśniach szkieletowych gryzoni, jak i ludzkich. Protokół ten został zastosowany w badaniach oceniających funkcję mitochondriów związaną z genetycznymi modelami myszy15,16, w kontekście przewlekłej choroby nerek19, po podaniu suplementu diety14,20 i ćwiczeniach17,18.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badania opisane w tej publikacji były wspierane przez Nutrition Obesity Research Center, NIH grant P30 DK056341 i NIH grant K01 HL145326.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10 &mikro; L Strzykawka Hamilton (szklana strzykawka) | ThermoFisher | 14-813-125 | Do miareczkowania do testu oddechowego |
| 25 &mikro; L Strzykawka Hamilton (szklana strzykawka) | ThermoFisher | 14-813-133 | Do miareczkowania do pomiaru oddechu |
| ADP | Merck | 117105 | Test respirometryczny |
| Naczynie do spreparowania z czarnego szkła | Scintica | DD-90-S-BLK | Do przygotowania próbki |
| Blebbistatyna | Sigma | B0560 | Roboczy roztwór MiR05 |
| BSA, bez kwasów tłuszczowych | Sigma | A6003 | MiR05 |
| Roztwór Węglan wapnia | Sigma | C4830 | BIOPS Roztwór |
| Kreatyna | Sigma | 27900 | Działający roztwór MiR05 |
| Cytochrom C | Sigma | C7752 | Test respirometryczny |
| DatLab | Oroboros Instruments | N/A | Oprogramowanie do respirometrii |
| Dithiothreitol (DTT) | Sigma | D0632 | Rozwiązanie BIOPS |
| D-Sacharoza | Sigma | 84097 | MiR05 Rozwiązanie |
| EGTA | Sigma | E4378 | BIOPS & Roztwór MiR05 |
| FCCP | Sigma | C2920 | Test respirometryczny |
| Glutaminian | Sigma | G1626 | Test respirometryczny |
| HEPES | Sigma | H7523 | MiR05 Roztwór |
| Imidazol | Rozwiązanie Sigma | 56750 | BIOPS |
| KH2PO4 | Sigma | P5379 | MiR05 Roztwór |
| Kwas laktobionowy | Sigma | 153516 | MiR05 |
| Roztwór Jabłczan | Sigma | M1000 | Test respirometryczny |
| Hydrat MES | Sigma | M8250 | BIOPS Roztwór |
| MgCl2 - 6 H2O | Sigma | M2670 | BIOPS & MiR05 Roztwór |
| System Oroboros Oxygraph-2K (O2K) | Oroboros Instruments | 10203-03 | Respirometr o wysokiej rozdzielczości |
| Palmitoilo-karnityna | Sigma | P4509 | Test respirometryczny |
| Wodorotlenek potasu | Sigma | P1767 | Roztwór BIOPS |
| Precyzyjna pęseta | Fisher | 17-467-168 | Do przygotowania próbki |
| Saponina | Sigma | S2149 | Do przepuszczalności włókien |
| Sód ATP | Sigma | A2383 | Roztwór BIOPS |
| Fosfokreatyna sodu | Sigma | P7936 | BIOPS Roztwór |
| Pirogronian sodu | Sigma | P2256 | Test respirometryczny |
| Bursztynian | Sigma | S2378 | Test respirometryczny |
| Tauryna | Sigma | T0625 | BIOPS & Rozwiązanie MiR05 |
Bibliografia
- Rizzuto, R., De Stefani, D., Raffaello, A., Mammucari, C. Mitochondria as sensors and regulators of calcium signalling. Nat Rev Mol Cell Biol. 13 (9), 566-578 (2012).
- Ruegsegger, G. N., Creo, A. L., Cortes, T. M., Dasari, S., Nair, K. S. Altered mitochondrial function in insulin-deficient and insulin-resistant states. J Clin Invest. 128 (9), 3671-3681 (2018).
- Simoneau, J. A., Kelley, D. E. Altered glycolytic and oxidative capacities of skeletal muscle contribute to insulin resistance in NIDDM. J Appl Physiol. 83 (1), 166-171 (1997).
- Ryan, T. E., et al. Extensive skeletal muscle cell mitochondriopathy distinguishes critical limb ischemia patients from claudicants. JCI Insight. 3 (21), 123235(2018).
- Sullivan, M. J., Green, H. J., Cobb, F. R. Skeletal muscle biochemistry and histology in ambulatory patients with long-term heart failure. Circulation. 81 (2), 518-527 (1990).
- Giebelstein, J., et al. The proteomic signature of insulin-resistant human skeletal muscle reveals increased glycolytic and decreased mitochondrial enzymes. Diabetologia. 55 (4), 1114-1127 (2012).
- Tezze, C., et al. Age-associated loss of OPA1 in muscle impacts muscle mass, metabolic homeostasis, systemic inflammation, and epithelial senescence. Cell Metab. 25 (6), 1374-1389 (2017).
- Hughes, M. C., et al. Early myopathy in Duchenne muscular dystrophy is associated with elevated mitochondrial H(2) O(2) emission during impaired oxidative phosphorylation. J Cachexia Sarcopenia Muscle. 10 (2), 643-661 (2019).
- Yin, Y., Shen, H. Common methods in mitochondrial research (Review). Int J Mol Med. 50 (4), 5182(2022).
- Vue, Z., et al. 3D reconstruction of murine mitochondria reveals changes in structure during aging linked to the MICOS complex. Aging Cell. 22 (12), e14009(2023).
- Doerrier, C., et al. High-resolution fluoRespirometry and OXPHOS protocols for human cells, permeabilized fibers from small biopsies of muscle, and isolated mitochondria. Methods Mol Biol. 1782, 31-70 (2018).
- Pesta, D., Gnaiger, E. High-resolution respirometry: OXPHOS protocols for human cells and permeabilized fibers from small biopsies of human muscle. Methods Mol Biol. 810, 25-58 (2012).
- Picard, M., Hepple, R. T., Burelle, Y. Mitochondrial functional specialization in glycolytic and oxidative muscle fibers: tailoring the organelle for optimal function. Am J Physiol Cell Physiol. 302 (4), C629-C641 (2012).
- Yoshino, M., et al. Nicotinamide mononucleotide increases muscle insulin sensitivity in prediabetic women. Science. 372 (6547), 1224-1229 (2021).
- Mousa, M. G., et al. Site-1 protease inhibits mitochondrial respiration by controlling the TGF-beta target gene Mss51. Cell Rep. 42 (4), 112336(2023).
- Moon, S. H., et al. Genetic deletion of skeletal muscle iPLA(2)gamma results in mitochondrial dysfunction, muscle atrophy and alterations in whole-body energy metabolism. iScience. 26 (6), 106895(2023).
- Bittel, A. J., et al. A single bout of premeal resistance exercise improves postprandial glucose metabolism in obese men with prediabetes. Med Sci Sports Exerc. 53 (4), 694-703 (2021).
- Bittel, A. J., et al. A single bout of resistance exercise improves postprandial lipid metabolism in overweight/obese men with prediabetes. Diabetologia. 63 (3), 611-623 (2020).
- Bittel, D. C., Bittel, A. J., Varadhachary, A. S., Pietka, T., Sinacore, D. R. Deficits in the skeletal muscle transcriptome and mitochondrial coupling in progressive diabetes-induced CKD relate to functional decline. Diabetes. 70 (5), 1130-1144 (2021).
- Mills, K. F., et al. Long-term administration of nicotinamide mononucleotide mitigates age-associated physiological decline in mice. Cell Metab. 24 (6), 795-806 (2016).
- Djafarzadeh, S., Jakob, S. M. High-resolution respirometry to assess mitochondrial function in permeabilized and intact cells. J Vis Exp. (120), e54985(2017).
- Lemieux, H., Semsroth, S., Antretter, H., Hofer, D., Gnaiger, E. Mitochondrial respiratory control and early defects of oxidative phosphorylation in the failing human heart. Int J Biochem Cell Biol. 43 (12), 1729-1738 (2011).
- Gnaiger, E. Capacity of oxidative phosphorylation in human skeletal muscle: new perspectives of mitochondrial physiology. Int J Biochem Cell Biol. 41 (10), 1837-1845 (2009).
- Appelman, B., et al. Muscle abnormalities worsen after post-exertional malaise in long COVID. Nat Commun. 15 (1), 17(2024).
- O'Rourke, A. R., et al. Impaired muscle relaxation and mitochondrial fission associated with genetic ablation of cytoplasmic actin isoforms. FEBS J. 285 (3), 481-500 (2018).
- Inigo, M. R., et al. Estrogen receptor-alpha in female skeletal muscle is not required for regulation of muscle insulin sensitivity and mitochondrial regulation. Mol Metab. 34, 1-15 (2020).
- Musci, R. V., et al. Phytochemical compound PB125 attenuates skeletal muscle mitochondrial dysfunction and impaired proteostasis in a model of musculoskeletal decline. J Physiol. 601 (11), 2189-2216 (2023).
- Englund, D. A., et al. p21 induces a senescence program and skeletal muscle dysfunction. Mol Metab. 67, 101652(2023).
- Zhang, K., et al. Mitochondrial supercomplex assembly regulates metabolic features and glutamine dependency in mammalian cells. Theranostics. 13 (10), 3165-3187 (2023).
- Davis, M. S., Barrett, M. R. High-resolution fluoro-respirometry of equine skeletal muscle. J Vis Exp. (192), e65075(2023).
- Schytz, C. T., et al. Skeletal muscle mitochondria demonstrate similar respiration per cristae surface area independent of training status and sex in healthy humans. J Physiol. 602 (1), 129-151 (2024).
- Hingst, J. R., et al. Inducible deletion of skeletal muscle AMPKalpha reveals that AMPK is required for nucleotide balance but dispensable for muscle glucose uptake and fat oxidation during exercise. Mol Metab. 40, 101028(2020).
- Krumschnabel, G., Eigentler, A., Fasching, M., Gnaiger, E. Use of safranin for the assessment of mitochondrial membrane potential by high-resolution respirometry and fluorometry. Methods Enzymol. 542, 163-181 (2014).
- Gnaiger, E., Mendez, G., Hand, S. C. High phosphorylation efficiency and depression of uncoupled respiration in mitochondria under hypoxia. Proc Natl Acad Sci U S A. 97 (20), 11080-11085 (2000).
- Basse, A. L., et al. Nampt controls skeletal muscle development by maintaining Ca(2+) homeostasis and mitochondrial integrity. Mol Metab. 53, 101271(2021).
- Flensted-Jensen, M., et al. Combined changes in temperature and pH mimicking exercise result in decreased efficiency in muscle mitochondria. J Appl Physiol. 136 (1985), 79-88 (2024).
- Porter, C., et al. Mitochondrial respiratory capacity and coupling control decline with age in human skeletal muscle. Am J Physiol Endocrinol Metab. 309 (3), E224-E232 (2015).
- Perry, C. G., et al. Inhibiting myosin-ATPase reveals a dynamic range of mitochondrial respiratory control in skeletal muscle. Biochem J. 437 (2), 215-222 (2011).
- Veksler, V. I., et al. Muscle creatine kinase-deficient mice. II. Cardiac and skeletal muscles exhibit tissue-specific adaptation of the mitochondrial function. J Biol Chem. 270 (34), 19921-19929 (1995).
- Isner-Horobeti, M. E., et al. Microbiopsies versus Bergstrom needle for skeletal muscle sampling: impact on maximal mitochondrial respiration rate. Eur J Appl Physiol. 114 (5), 885-889 (2014).
- Hughes, M. C., et al. Mitochondrial bioenergetics and fiber type assessments in microbiopsy vs. Bergstrom percutaneous sampling of human skeletal muscle. Front Physiol. 18 (6), 360(2015).
- Kuznetsov, A. V., et al. Analysis of mitochondrial function in situ in permeabilized muscle fibers, tissues and cells. Nat Protoc. 3 (6), 965-976 (2008).
- Elustondo, P., Martin, L. A., Karten, B. Mitochondrial cholesterol import. Biochim Biophys Acta Mol Cell Biol Lipids. 1862 (1), 90-101 (2017).
- Ramos, P. M., Li, C., Elzo, M. A., Wohlgemuth, S. E., Scheffler, T. L. Mitochondrial oxygen consumption in early postmortem permeabilized skeletal muscle fibers is influenced by cattle breed. J Anim Sci. 98 (3), 044(2020).
- van Moorsel, D., et al. Demonstration of a day-night rhythm in human skeletal muscle oxidative capacity. Mol Metab. 5 (8), 635-645 (2016).
- de Goede, P., et al. Time-restricted feeding during the inactive phase abolishes the daily rhythm in mitochondrial respiration in rat skeletal muscle. FASEB J. 36 (2), e22133(2022).
Przedruki i uprawnienia
