Bakteriofagi, wszechobecne i różnorodne na Ziemi, infekują i namnażają się w organizmach bakteryjnych, odgrywając kluczową rolę w ekosystemach mikrobiologicznych. Pomimo ich znaczenia, ich obecność może zakłócić procesy przemysłowe. Opracowaliśmy metodę wykorzystującą lipopolisacharydy bakteryjne do eliminacji bakteriofagów z kultur Salmonelli.
Artykuł metodologiczny
Usuwanie bakteriofagów z zakażonych kultur salmonelli
W tym artykule
Podsumowanie
Streszczenie
Bakteriofagi, lub po prostu fagi, odgrywają istotną rolę w środowisku mikrobiologicznym, wpływając na populacje bakterii i kształtując ich ewolucję i interakcje. Organizmy te to wirusy, które infekują i replikują się w obrębie gospodarzy bakteryjnych. Fagi są wszechobecne na Ziemi, bardzo zróżnicowane i bardzo liczne. Chociaż bakteriofagi odgrywają cenne role w różnych środowiskach i są kluczowym obszarem badań w dziedzinie mikrobiologii i ekologii, ich obecność może być niepożądana w niektórych procesach przemysłowych lub produktach. Biorąc pod uwagę obfitość i wszechobecność bakteriofagów na Ziemi, projektowanie procedur usuwania bakteriofagów z kultur bakteryjnych ma kluczowe znaczenie w różnych zastosowaniach laboratoryjnych i przemysłowych w celu zachowania integralności kultur i zapewnienia dokładnych wyników eksperymentalnych lub jakości produktu. W tym przypadku dopracowaliśmy protokół eliminacji bakteriofagów z zakażonych kultur Salmonella enterica, stosując strategię opartą na wykorzystaniu lipopolisacharydów (LPS) znajdujących się w zewnętrznej błonie bakterii Gram-ujemnych. Bakteryjny LPS odgrywa ważną rolę w rozpoznawaniu gospodarza przez fagi, a my wykorzystujemy tę właściwość do zaprojektowania skutecznej procedury usuwania fagów, które wykorzystują LPS jako receptor, w kulturach bakterii Salmonella.
Wprowadzenie
Populacje mikroorganizmów stoją przed wieloma wyzwaniami w środowisku naturalnym, a szczególnie poważnym zagrożeniem jest możliwość infekcji bakteriofagami, wirusami infekującymi bakterie1. Wirusy te są szeroko rozpowszechnione na planecie, wykazując dużą różnorodność i obfitość2,3,4,5. Chociaż bakteriofagi różnią się pod względem wielkości, morfologii i organizacji genomu, wszystkie mają tę samą strukturę: genom DNA lub RNA otoczony kapsydem utworzonym przez białka kodowane przez fagi6. Bakterie wykształciły różnorodny wachlarz mechanizmów obronnych przed nimi7. Kluczowym aspektem zakażenia bakteriofagiem, który jest istotny zarówno dla charakterystyki, jak i wykrywania, są domeny wiążące receptory obecne na włóknach ogonowych. Bakteriofagi mają na swojej powierzchni białka zwane białkami wiążącymi receptory lub włóknami ogonowymi do rozpoznawania i wiązania się z określonymi miejscami receptorowymi na powierzchni komórki bakteryjnej. W przypadku bakterii Gram-ujemnych rozpoznawanie struktur powierzchniowych, takich jak lipopolisacharydy (LPS), białka błony zewnętrznej, pilusy i/lub wici, jest zaangażowane w interakcję-bakteria8. Ta interakcja między bakteriofagami a bakteriami jest wysoce specyficzna i zależy głównie od ich zdolności do przyczepiania się do powierzchni gospodarza. Antygen O lipopolisacharydu jest powszechnie stosowanym receptorem9.
Badanie interakcji bakteriofag-bakteria jest nie tylko fascynujące z biologicznego punktu widzenia, ale ma również praktyczne zastosowania w takich dziedzinach jak terapia fagowa i biotechnologia. Chociaż bakteriofagi odgrywają ważną rolę w różnych kontekstach, na przykład zmieniając populacje drobnoustrojów10, ich obecność może być niepożądana w niektórych procesach przemysłowych. W przemyśle farmaceutycznym, biotechnologicznym i produkcji żywności obecność bakteriofagów może wpływać na jakość i bezpieczeństwo produktów końcowych, co sprawia, że ich usunięcie jest niezbędne do spełnienia norm jakości. W bioprzetwórstwie i bioprodukcji, gdzie kultury bakteryjne są wykorzystywane do produkcji różnych związków (np. białek, enzymów lub antybiotyków), obecność bakteriofagów może prowadzić do zakłócenia procesów produkcyjnych ze względu na ich zdolność do równoważenia populacji bakterii w każdym wspólnym środowisku. Fagi mogą od czasu do czasu zamienić życie zawodowe mikrobiologa przemysłowego w koszmar11. Opracowanie skutecznych procedur usuwania fagów ma kluczowe znaczenie dla zapewnienia spójnej i niezawodnej produkcji, zwiększając wydajność procesu. Oprócz tych aspektów przemysłowych, w warunkach laboratoryjnych badawczych, gdzie precyzja i odtwarzalność mają kluczowe znaczenie, eliminacja bakteriofagów jest niezbędna do uzyskania dokładnych i wiarygodnych wyników. Co więcej, usunięcie fagów może być również wykorzystane do symulacji różnych środowisk w celu przetestowania różnych hipotez12. Usuwanie fagów może być również bardzo przydatne w środowisku badawczym, ponieważ wiele badań opartych na fagach, takich jak liczenie bakterii po zastosowaniu fagów, skorzystałoby na kroku w celu usunięcia fagów w celu uzyskania znacznie bardziej wiarygodnych żywotnych zliczeń.
Podsumowując, projektowanie opłacalnych procedur usuwania bakteriofagów jest kluczowe dla utrzymania jakości produktów, bezpieczeństwa i efektywności procesów w różnych branżach oraz dla postępu w badaniach podstawowych i stosowanych. W tym miejscu opisujemy wysoce skuteczny protokół oparty na wykorzystaniu LPS do usuwania bakteriofagów, które wykorzystują LPS jako receptor, z zakażonych kultur Salmonelli, który jest zarówno efektywny czasowo, jak i wymaga minimalnego sprzętu.
Protokół
UWAGA: Przed przeprowadzeniem procedury eliminacji fagów, opisujemy przygotowanie kultury Salmonelli zakażonej bakteriofagami 9NA. W Rysunek 1 ilustrowany jest ogólny obraz kompletnej procedury usuwania bakteriofagów w kulturach bakteryjnych.
1. Przygotowanie kultur Salmonelli zakażonych bakteriofagami
- Przygotowanie kultur bakteryjnych
UWAGA: W tym badaniu użyto Salmonella enterica subsp. enterica serowar Typhimurium szczep ATCC 14028 opvAB::lacZ (SV8011)13.- Powoli rozmrozić fiolkę pobraną z temperatury -80 °C, która zawiera interesujący szczep S. enterica, umieszczając ją na lodzie.
- Szczep S. enterica należy wyprowadzić z rozmrożonego bulionku dimetylosulfotlenku na talerzu bulionu Lennox (LB) (10 g/l tryptonu, 5 g/l NaCl, 5 g/l ekstraktu drożdżowego i 15 g/l agaru, patrz tabela materiałów). Inkubować płytkę w temperaturze 37 °C przez 24 godziny.
- Za pomocą igły do zaszczepiania przenieś kolonię z płytki S. enterica i zaszczep ją w 5 ml płynnego LB w szklanej probówce. Inkubować w temperaturze 37 °C przez 24 godziny z napowietrzaniem przez wytrząsanie z prędkością 200 obr./min.
- Preparat bakteriofagowy
UWAGA: W tym protokole użyto bakteriofaga 9NA, który należy do rodziny Siphoviridae (rząd Caudovirales)14. W szczególności można stosować inne bakteriofagi Salmonella enterica, które wykorzystują antygen O lipopolisacharydu jako receptor.- Przygotować bulion bakteriofagowy, dodając 0,1 ml skoncentrowanego lizatu bakteriofagowego do mieszaniny 100 ml bulionu odżywczego (NB; 5 g/L peptonu i 3 g/l ekstraktu drożdżowego), 2 ml 50x soli E (38,78 mMMgSO47 H2O, 520,5 mM Kwas cytrynowyH2O, 2,87 M K2HPO4 bezwodny i 829 mM NaNH4HPO44 H2O) i 0,4 ml 50% glukoza. Dokładnie wymieszaj przez odwrócenie.
- Reprezentatywnym przykładem stężenia bakteriofagów może być 109 PFU/ml (jednostki tworzące płytkę nazębną/ml), ale z podobnymi wynikami można zastosować niższe stężenia (patrz tabela materiałów). Oszacować stężenie bakteriofagów zgodnie z krokiem 1.2.3.
- Przygotuj lizat, wykonując czynności opisane poniżej.
- Przygotować inokulum S. enterica w 5 ml LB (10 g/l tryptonu, 5 g/l NaCl i 5 g/l ekstraktu drożdżowego). Inkubować w temperaturze 37 °C i 200 obr./min przez 24 godziny.
- Wymieszaj 4 ml bulionu bakteriofagowego z 1 ml nocnej kultury S. enterica. Inkubować mieszaninę w temperaturze 37 °C i 200 obr./min przez 8 godzin.
- Aby odróżnić bakterie od bakteriofagów, należy odwirować mieszaninę przy 2,377 x g przez 20 minut. Odzyskać supernatant w szklanej probówce, dodać 800 μl chloroformu (patrz Tabela Materiałów) i przemieszać go wirowo. Upewnij się, że górna faza jest przenoszona tylko wtedy, gdy używana jest mieszanina z chloroformem.
UWAGA: Ważne jest, aby zapobiec przenoszeniu resztkowego chloroformu, który mógłby wpłynąć na skuteczność zabiegu. Etap chloroformu jest powszechny zarówno w protokołach izolacji, jak i rozmnażania jako sposób na maksymalizację uwalnianych fagów. Jednak chloroform może dezaktywować niektóre fagi lub zniszczyć ich zakaźność15. Dlatego ten krok ma zastosowanie tylko do fagów odpornych na chloroform. - Utrzymuj lizaty w temperaturze pokojowej przez 2 godziny, a następnie przechowuj je w temperaturze 4 °C.
- Miareczkować lizat w celu ilościowego określenia liczby bakteriofagów/liczby PFU na ml obecnych w przygotowanym lizacie. Aby to zrobić, wykonaj technikę nakładki opisaną poniżej.
- Przygotować 5 ml LB inokulum dla S. enterica. Inkubować w temperaturze 37 °C przez 24 godziny z napowietrzaniem przez wytrząsanie z prędkością 200 obr./min.
- Wykonać seryjne rozcieńczenia lizatu do LB, aby osiągnąć policzalną liczbę PFU/ml. Aby określić niezbędne współczynniki rozcieńczenia, zidentyfikuj początkowy skoncentrowany lizat bakteriofagów. Dla reprezentatywnego przykładu stężenia bakteriofagów na poziomie około 109 PFU/ml, współczynniki rozcieńczenia, które skutkują policzalną liczbą blaszek, mieszczą się w przedziale 106-10 10.
- Dodać 100 ml odpowiedniego rozcieńczenia lizatu i 60 μl nocnej kultury S. enterica przygotowanej dzień wcześniej do 5 ml miękkiego agaru LB, przygotowanego przez zmieszanie płynnego LB i LB-agaru w proporcji 1:1 i utrzymywanie w temperaturze 56 °C w celu uniknięcia zestalenia. Dokładnie wymieszaj, unikając bąbelków.
- Wlej każdą mieszankę na wierzch talerza LB i trzymaj na stole, aż podłoże stwardnieje.
- Inkubować płytki przez 24 godziny w temperaturze 37 °C. Policz liczbę blaszek na każdej płytce. Aby określić liczbę PFU/ml, pomnóż liczbę blaszek na każdej płytce przez współczynnik rozcieńczenia (FD). Aby zapewnić skuteczną infekcję fagami, konieczne jest 109-10 12 PFU/ml.
PFU/ml = Nie. blaszki w tabliczce x FD
- Przygotować bulion bakteriofagowy, dodając 0,1 ml skoncentrowanego lizatu bakteriofagowego do mieszaniny 100 ml bulionu odżywczego (NB; 5 g/L peptonu i 3 g/l ekstraktu drożdżowego), 2 ml 50x soli E (38,78 mMMgSO47 H2O, 520,5 mM Kwas cytrynowyH2O, 2,87 M K2HPO4 bezwodny i 829 mM NaNH4HPO44 H2O) i 0,4 ml 50% glukoza. Dokładnie wymieszaj przez odwrócenie.
- Zakażenie kultur Salmonelli bakteriofagami
- Rozcieńczyć nocną hodowlę S. enterica w stosunku 1:100 w końcowej objętości 5 ml LB i dodać 0,1 ml lizatu (stężonego w 109-10 12 PFU/ml). Inkubować w temperaturze 37 °C i 200 obr./min przez 24 godziny.
- Oznaczanie miana faga jako PFU w teście na płytce
- Aby określić ilościowo liczbę bakteriofagów w zakażonej kulturze, należy wykonać testy płytkowe w celu określenia miana faga jako PFU/ml, jak opisano poniżej.
- Przenieś 1 ml kultury do probówki. Odwirować przy 17,115 x g przez 2 minuty i wlać supernatant do nowej, oznakowanej fiolki.
- Dodać 100 μl chloroformu do fiolki i odwirować, aby usunąć resztki bakteryjne z roztworu. Wykonaj krok 1.2.3.
- Aby określić ilościowo liczbę bakteriofagów w zakażonej kulturze, należy wykonać testy płytkowe w celu określenia miana faga jako PFU/ml, jak opisano poniżej.
2. Usuwanie bakteriofagów z zakażonych kultur Salmonella enterica (patrz Rysunek 2)
UWAGA: Aby monitorować proces usuwania bakteriofagów, w protokole czyszczenia pobierane są różne porcje do miareczkowania. W sumie istnieje osiem podwielokrotności potwierdzających, że liczba PFU/ml zmniejsza się przez cały proces czyszczenia, aż do całkowitej eliminacji.
- Usuwanie bakteriofagów w zawiesinie
- Rozcieńczyć kulturę bakteryjną zawierającą fagi w stosunku 1:100 w 5 ml LB przefiltrowanego przez 0,22 μm w stożkowej probówce wirówkowej o pojemności 50 ml. Punkt miareczkowania 1: Jest to pierwsza podwielokrotność do miareczkowania (początkowa zakażona hodowla Salmonelli).
- Odwirowywać zawiesinę przez 10 minut przy 2,377 x g. Ostrożnie usunąć supernatant. Nie używaj pipety; Wlej rurkę. Spróbuj pozostawić trochę objętości na dnie stożkowej probówki wirówkowej, aby zapewnić obecność komórek.
- Umyj komórki bakteryjne 10 ml pożywki LB przefiltrowanej przez 0,22 μm. Powtórz kroki wirowania i mycia 3 razy. Zawiesić osad w 5 ml LB przefiltrowanego przez 0,22 μm. Punkt miareczkowania 2: Jest to druga podwielokrotność do miareczkowania.
- Przenieść 50 μl powyższej zawiesiny bakteryjnej przez sterylny filtr 0,45 μm (patrz tabela materiałów) za pomocą systemu filtracji próżniowej. Wypłucz filtr 100 ml LB.
z filtrem 0,22 μm UWAGA: Rozmiar głowy bakteriofaga 9NA wynosi 0,067 μm. Natomiast Salmonella ma 2-5 μm długości i 0,5-1,5 μm szerokości. Tak więc, jeśli zastosujesz membrany 0,45 μm, większość bakterii nie przejdzie, ponieważ są one większe niż 0,45 μm, podczas gdy większość fagów przejdzie przez pory filtracyjne 0,45 μm.
- Usuwanie bakteriofagów zawartych w komórkach Salmonelli
- Aby ułatwić uwalnianie fagów z komórek bakteryjnych, należy inkubować filtr 0,45 μm zawierający komórki przez 2 godziny w temperaturze 37 °C wewnątrz inkubatora bez demontażu systemu.
UWAGA: Ten etap inkubacji jest wymagany, aby przyspieszyć lizę zakażonych bakterii i uwolnienie wewnątrzkomórkowych fagów do filtra. - Umyj filtr 0,45 μm za pomocą systemu filtracji próżniowej, przepłukując filtr 100 ml LB z filtrem 0,22 μm.
- Odzyskaj komórki bakteryjne z filtra w 2 ml 2x LB (20 g/L tryptonu, 10 g/L NaCl, 10 g/L ekstraktu drożdżowego; patrz Tabela Materiałów). W tym celu przenieś filtr 0,45 μm do kolby za pomocą sterylnych kleszczyków. Następnie dodaj 2 ml 2x LB na filtr i kilkakrotnie pipetować, aby uwolnić komórki z filtra.
- Odwirować 1 ml tej zawiesiny przez 2 minuty przy 10,354 x g. Odrzucić sklarowany osad i przemyć komórki bakteryjne 3 razy 1 ml przefiltrowanej pożywki LB. Ponownie zawiesić komórki w 1 ml 2x LB. Punkt miareczkowania 3: To jest trzecia porcja do miareczkowania.
UWAGA: Zdecydowanie zaleca się stosowanie bardziej skoncentrowanego LB (2x LB), ponieważ, jak opisano poniżej, zostanie dodany komercyjny lipopolisacharyd (LPS), który rozpuszcza się w wodzie, rozcieńczając w ten sposób podłoże.
- Aby ułatwić uwalnianie fagów z komórek bakteryjnych, należy inkubować filtr 0,45 μm zawierający komórki przez 2 godziny w temperaturze 37 °C wewnątrz inkubatora bez demontażu systemu.
- Unikaj ponownego zakażenia, oszukując bakteriofagi uwalniane z komórek bakteryjnych za pomocą dostępnego w handlu lipopolisacharydu, jak opisano poniżej.
- Inkubować 20 μl zawiesiny bakteryjnej w obecności handlowego lipopolisacharydu S. enterica (LPS; patrz tabela materiałów) do końcowego stężenia 3,75 mg/ml w 1 ml LB przefiltrowanego przez 0,22 μm przez 2 godziny w temperaturze 37 °C z wytrząsaniem przy 200 obr./min.
UWAGA: Fagi uwalniane z komórek do pożywki mogą wiązać się z komercyjnym S. enterica LPS zamiast z bakteryjnym LPS. - Po 2 godzinach inkubacji przenieść 1 ml kultury do probówki mikrowirówkowej i odwirowywać zawiesinę przez 2 minuty przy 10,354 x g. Punkt miareczkowania 4: Użyć supernatantu jako czwartej podwielokrotności do miareczkowania.
- Przemyć granulat 3x 1 ml przefiltrowanego podłoża LB.
- Po umyciu ponownie zawiesić osad w 1 ml 2x LB. Inkubować 20 μl tej mieszanki w 1 ml LB przefiltrowanego 0,22 μm z 0,8 mg/ml handlowego LPS przez 2 godziny w temperaturze 37 °C z wytrząsaniem przy 200 obr./min. Punkt miareczkowania 5: Resztę zawiesiny bakteryjnej należy wykorzystać do piątego miareczkowania.
- Po 2 godzinach inkubacji przenieść 1 ml kultury do probówki do mikrowirówki i osadzać przez wirowanie przez 2 minuty przy 10,354 g. Punkt miareczkowania 6: Użyć supernatantu jako szóstej porcji do miareczkowania, przelewając supernatant do nowej fiolki.
- Umyj komórki bakteryjne 3x filtrowanym LB. Po umyciu ponownie zasmuś zebrane komórki w 1 ml LB z filtrem 0,22 μm.
- Przepuść 1 ml zawiesiny bakteryjnej przez sterylny filtr 0,45 μm za pomocą systemu filtracji próżniowej. Wypłucz filtr za pomocą 100 ml LB z filtrem 0,22 μm.
- Odzyskaj komórki z filtra 0,45 μm w 2 ml pożywki 2x LB. W tym celu przenieść filtr 0,45 μm do kolby za pomocą sterylnych kleszczyków. Następnie dodaj 2 ml 2x LB na filtr i odpipetuj kilka razy, aby spróbować uwolnić komórki z filtra.
- Osad 1 ml komórek przez odwirowanie przez 2 minuty przy 10,354 x g. Przemyć 3x filtrem 0,22 μm LB. Po umyciu ponownie zawieś zebrane komórki w 1 ml 2x LB. Punkt miareczkowania 7: Jest to siódma podwielokrotność do miareczkowania. Podwielokrotność ta będzie informować o skuteczności usuwania fagów w kulturach bakteryjnych.
- Inkubować 20 μl zawiesiny bakteryjnej w obecności handlowego lipopolisacharydu S. enterica (LPS; patrz tabela materiałów) do końcowego stężenia 3,75 mg/ml w 1 ml LB przefiltrowanego przez 0,22 μm przez 2 godziny w temperaturze 37 °C z wytrząsaniem przy 200 obr./min.
3. Przygotowanie kultury Salmonelli wolnej od bakteriofagów po usunięciu bakteriofaga
- Przygotować inokulum wolne od fagów. Dodać 100 μl komórek z zawiesiny bakteryjnej do 900 μl LB zawierającego 0,45 mg/ml LPS. Inkubować w temperaturze 37 °C przez 24 godziny z wytrząsaniem przy 200 obr./min.
- Punkt miareczkowania 8: Przygotować ósmą podwielokrotność do miareczkowania (ostateczna potencjalna niezakażona hodowla). Ten punkt ma na celu potwierdzenie braku ponownego zakażenia fagami.
Wyniki
Salmonella enterica oraz inne bakterie Gram-ujemne posiadają błonę zewnętrzną zawierającą LPS. Antygen O LPS jest powszechnie wykorzystywanym receptorem przez bakteriofagi 9NA do infekowania kultur Salmonella16,17.
Biorąc pod uwagę specyficzne powinowactwo bakteriofagów do antygenu O lub regionów polisacharydowego rdzenia LPS, chcieliśmy sprawdzić, czy komercyjny LPS z Salmonella enterica może służyć jako przynęta do wykluczania bakteriofagów 9NA. W tym celu zmieszaliśmy znane stężenia komercyjnego LPS i lizatu 9NA, a następnie przeprowadziliśmy miareczkowanie. Komercyjny LPS i bakteriofagi 9NA zmieszano w całkowitej objętości 200 µL i inkubowano przez 2 h w temperaturze 37 °C bez wstrząsania. Do miareczkowania 100 µL mieszaniny LPS-9NA oraz 60 µL hodowli nocnej dodano do 5 mL miękkiego agaru LB i wylano na powierzchnię płytki z LB. Płytki inkubowano przez 24 h w temperaturze 37 °C. Jak pokazano na Rysunku 3, miano lizatu spada proporcjonalnie do wzrostu stężenia komercyjnego LPS z S. enterica. Wyniki te wskazują, że komercyjny LPS prawidłowo funkcjonuje jako przynęta dla bakteriofagów 9NA.
Interesujące jest to, że czas potrzebny fagi 9NA na lizę komórek Salmonella i uwolnienie fagów jest zależny od liczby bakterii i fagów (Rysunek 4). Aby zbadać, w jaki sposób ten aspekt może wpływać na protokół usuwania fagów, przetestowano różne proporcje bakterie:fagi (1:1, 1:10, 1:100 oraz 1:1000). Jak widać na Rysunku 4, następuje spadek wartości OD600 nm hodowli w czasie od 1,5 do 2,5 h po dodaniu faga 9NA. Wartości OD600 nm zbliżone do zera wskazują na lizę hodowli bakteryjnej18. Z tego powodu czasy inkubacji w niniejszym protokole określono na 2 h, aby zapewnić wystarczający czas na lizę bakterii przez fagi zawarte w komórkach Salmonella i ich uwolnienie. Czas ten należy oszacować dla każdego systemu gospodarz-fag przed przeprowadzeniem tego protokołu.
Po ustaleniu, że komercyjny LPS działa jako przynęta, oraz czasu lizy bakterii zainfekowanych 9NA, przeprowadziliśmy protokół opisany dla oczyszczania kultur Salmonella z bakteriofagów (Rysunek 1 i Rysunek 2). Aby monitorować obecność bakteriofagów na każdym etapie protokołu, wykonaliśmy testy płytkowe w celu obliczenia zakaźności otrzymanych kultur w 100 µL mieszaniny w różnych punktach czasowych (Rysunek 5). Można zauważyć, że wielokrotne przemywanie i filtrowanie nie są wystarczające do wyeliminowania bakteriofagów z kultur (punkty miareczkowania 1-3); jednak liczba fagów spada w momencie zastosowania etapu inkubacji z komercyjnym LPS (punkt miareczkowania 4). Kluczowym krokiem dla całkowitego usunięcia bakteriofagów z kultury bakteryjnej jest druga inkubacja z komercyjnym LPS (punkt miareczkowania 6). Krok ten jest niezbędny do skutecznego usunięcia bakteriofaga 9NA z kultur Salmonella.
Interesującym aspektem tego protokołu byłoby określenie poziomu oporności na fagi po etapach usuwania bakteriofagów. Procedura oddzielająca fagi od bakterii opornych na fagi nie ma żadnego zastosowania. Z tego powodu kluczowe jest wykazanie, że bakterie pozostające w kulturze są podatne na fagi. Aby udowodnić, że w kulturach po przeprowadzeniu procedury pozostają komórki podatne na fagi, zastosowano test płytkowy z użyciem barwników Evans Blue i Uranine (EBU) w celu wykrycia kontaminacji fagowej19. Płytki EBU przygotowano z pożywki LB uzupełnionej o 10 mL/L 25% K2HPO4, 5 mL/L 50% glukozy, 2,5 mL/L 1% fluoresceiny, 1,25 mL/L 1% Evans Blue oraz 15 g/L agaru. Do rozróżnienia izolatów opornych i podatnych na fagi wykorzystano metodę posiewu krzyżowego na płytkach EBU z użyciem faga 9NA (Rysunek 6). Kultury bakterii uzyskane na koniec protokołu oczyszczania wykorzystano do wyizolowania pojedynczych kolonii, które sprawdzono pod kątem kontaminacji fagowej (Rysunek 6B). Można zaobserwować obecność zarówno komórek opornych, jak i podatnych. Niniejszy protokół nie sprzyja selekcji komórek opornych na fagi; służy on jedynie do eliminacji bakteriofagów.
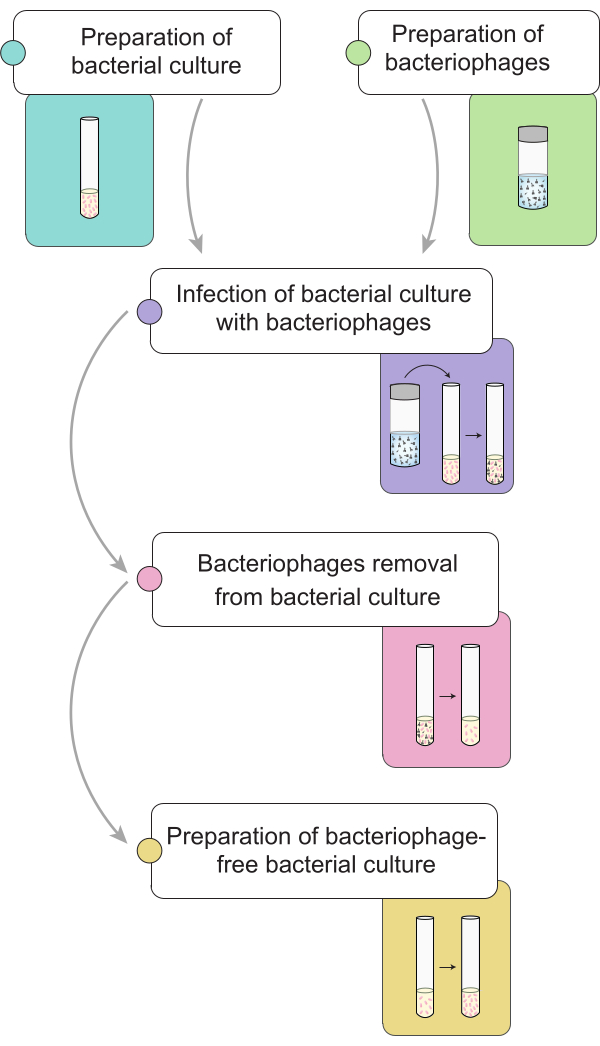
Rycina 1: Zwięzły schemat procedury eliminacji bakteriofagów z kultur Salmonella. Przebieg pracy podzielono na różne etapy: przygotowanie hodowli bakteryjnej i lizatu, infekcję hodowli bakteryjnej bakteriofagami, usuwanie bakteriofagów z zainfekowanych kultur bakteryjnych oraz przygotowanie wolnego od fagów inokulum bakteryjnego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Procedura usuwania bakteriofagów z zainfekowanych kultur Salmonella enterica. Proces składa się z trzech faz: 1) Usuwanie bakteriofagów w zawiesinie, 2) Usuwanie fagów znajdujących się wewnątrz komórek bakteryjnych oraz 3) Zapobieganie ponownej infekcji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
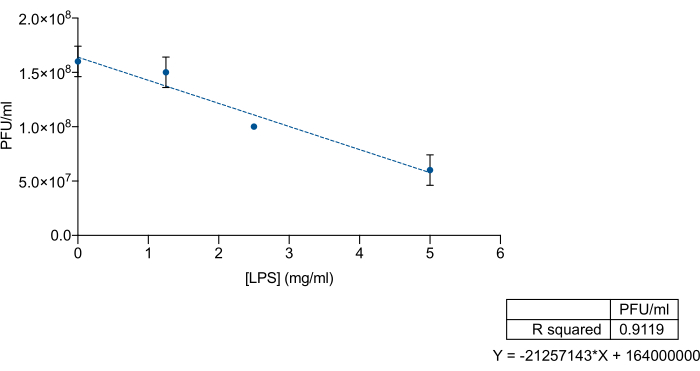
Rycina 3: Test z pułapką LPS w celu pomiaru wydajności wiązania bakteriofagów przez komercyjny LPS z Salmonella enterica. Miareczkowanie lizatu 9NA (PFU/mL) przy zwiększających się stężeniach komercyjnego LPS z Salmonella enterica. Eksperyment przeprowadzono w trzech powtórzeniach. Przedstawiono średnią i odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
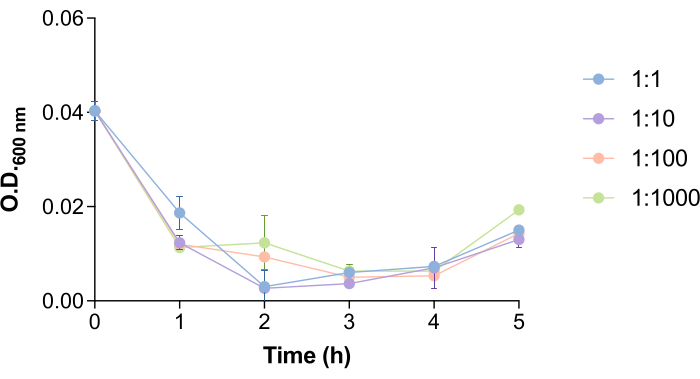
Rysunek 4: Czas lizy bakteriofaga 9NA w kulturach Salmonella. Krzywe wzrostu kultur Salmonella enterica w obecności bakteriofaga 9NA przy stosunkach bakterie:fag wynoszących 1:1, 1:10, 1:100 i 1:1000. Eksperyment przeprowadzono w trzech powtórzeniach. Przedstawiono średnią i odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
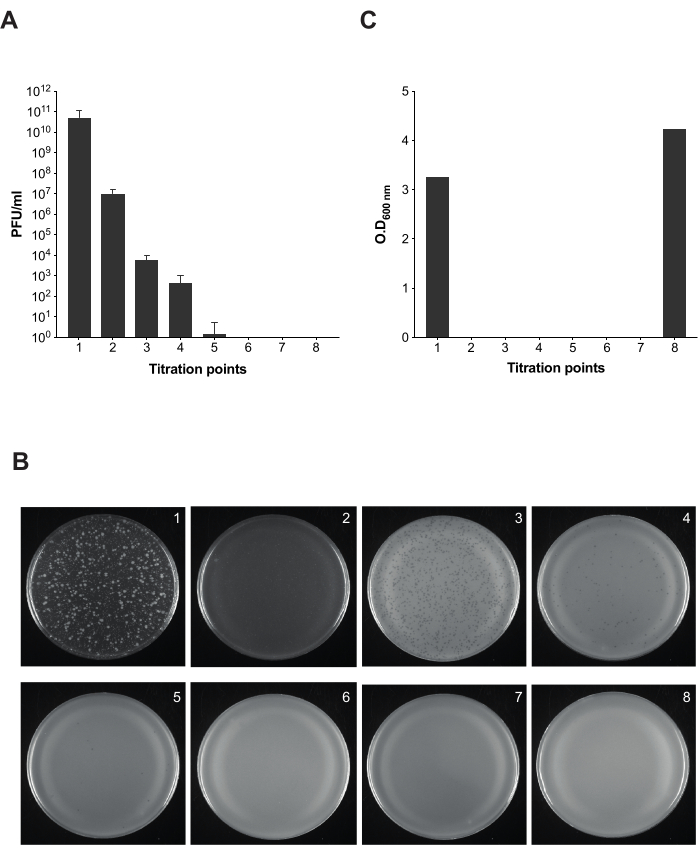
Rycina 5: Test plackowy oceny zakaźności podczas usuwania bakteriofagów z kultur Salmonella. (A) Miareczkowanie ośmiu alikwotów pobranych w różnych punktach protokołu (punkty miareczkowania 1-7 zaznaczono na Rycinie 2). W tym doświadczeniu wykorzystano szczep Salmonella enterica serowaru Typhimurium ATCC 14028 opvAB::lacZ (SV8011) oraz bakteriofaga 9NA. Doświadczenia przeprowadzono w trzech powtórzeniach; przedstawiono średnie i odchylenia standardowe. (B) Płytki z miękkim agarem z Salmonella enterica przygotowano metodą nakładkową z wykorzystaniem alikwotów z ośmiu punktów miareczkowania. Płytki odpowiadają punktom miareczkowania 1-8, licząc od lewej do prawej. (C) Gęstość optyczna przy 600 nm kultury bakteryjnej w różnych momentach protokołu usuwania fagów. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
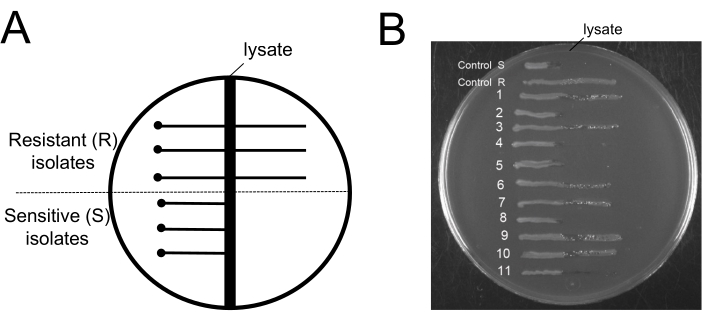
Rycina 6: Badanie obecności bakterii opornych na fagi po przeprowadzeniu procedury usuwania bakteriofagów. (A) Schemat typowej szalki agarowej EBU stosowanej w teście krzyżowego smugowania na agarze: pionowy ciemny obszar w centrum reprezentuje strefę lizatu 9NA. Kropka oznacza miejsce inokulacji badanych komórek w bezpiecznej odległości od strefy lizatu, a poziome linie ciągłe reprezentują albo komórki oporne na fagi, które rosną przez strefę lizatu, albo komórki wrażliwe na fagi, które nie rosną poza strefę lizatu. (B) Testy na szalkach EBU dla 11 kolonii uzyskane po zakończeniu protokołu usuwania. Kontrole R i S są odpowiednio przykładami izolatów opornych na fagi i wrażliwych na fagi. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Bakteriofagi stosują różne strategie do rozpoznawania i infekowania gospodarzy bakteryjnych. Różne struktury molekularne na powierzchni bakterii mogą działać jako receptory fagowe: białka, polisacharydy, lipopolisacharydy (LPS) i ugrupowania węglowodanowe20. W bakteriach Gram-ujemnych LPS jest powszechnym receptorem dla fagów. Ponadto innymi receptorami są białka błony zewnętrznej, pilusy i wici21.
Specyficzna interakcja między bakteriofagami a bakteriami oparta na rozpoznaniu LPS8 została wykorzystana w niniejszej pracy do opracowania wysoce skutecznego protokołu eliminacji bakteriofagów w zakażonych kulturach bakteryjnych (ryc. 1 i ryc. 2). Nasz protokół nie faworyzuje selekcji komórek odpornych na fagi; eliminuje tylko bakteriofagi (ryc. 6). Zarówno komórki podatne na fagi, jak i oporne na fagi pozostają w kulturze bakteryjnej po wykonaniu tego protokołu usuwania fagów.
Tradycyjną standardową praktyką w przypadku infekcji fagowej jest próba wyeliminowania całego skażonego materiału, a następnie oczyszczenie i sterylizacja22. Procedura dekontaminacji polega na wystawieniu kultury bakteryjnej na działanie warunków stresowych, takich jak wysokie temperatury, w celu częściowego lub całkowitego wyeliminowania komórek bakteryjnych. Jak opisano w reprezentatywnych wynikach, kluczowym krokiem w tym protokole jest inkubacja kultur bakteryjnych zakażonych fagami za pomocą komercyjnego LPS, substancji nieszkodliwej dla kultur bakteryjnych. Pomaga to zachować żywotność kultur bakteryjnych i oferuje znaczące korzyści w zastosowaniach przemysłowych w fermentorach i bioreaktorach.
Czas inkubacji w tym protokole wynosi 2 godziny, aby zapewnić wystarczający czas na lizę fagową komórek bakteryjnych. Jeżeli mają być stosowane różne szczepy bakterii i bakteriofagi, parametr ten powinien być rozważony i zdefiniowany przez użytkownika. W takim przypadku przed eksperymentem należy przeprowadzić test podobny do opisanego na rysunku 4 .
Co ciekawe, skuteczność tego protokołu czyszczenia można również przeanalizować za pomocą testu, który monitoruje zawartość fagów w danej próbce. W tym sensie biosensory epigenetyczne są nowym narzędziem do wykrywania bakteriofagów23. Dobrze znanym biosensorem fagowym zdolnym do wykrywania colifagów, które wykorzystują LPS jako receptor, jest system opvAB::gfp 13,18,23,24. Ten bioczujnik fagowy wykrywa wzrost subpopulacji OpvABON w obecności fagów, które wykorzystują antygen O jako receptor. W tym sensie możemy użyć fuzji opvAB::gfp do monitorowania fagów wiążących LPS na różnych etapach tego protokołu i/lub w różnych pożywkach i warunkach. Podejścia te mogą być cenne w określaniu czasu i miejsc, w których może być konieczny skuteczny protokół.
Podczas gdy rozpoznawanie LPS jest powszechne, fagi mogą również wykorzystywać wiele innych receptorów powierzchniowych na komórkach bakteryjnych do przyczepiania się i infekcji. W tym przypadku użyliśmy Gram-ujemnej Salmonelli jako reprezentatywnej enterobakterii i bakteriofaga 9NA, który wykorzystuje LPS jako wyzwalacz wyrzutu receptora i genomu. Inne fagi enterobakterii (np. Escherichia coli T5) wiążą się luźno z LPS i wymagają białka błony zewnętrznej do wstrzyknięcia genomu. Opisany protokół ma zastosowanie do bakteriofagów, które rozpoznają i potrzebują antygenu O LPS do udanej infekcji, takich jak 9NA, Det7 i P22 13,25,26,27. W związku z tym pomyślne wdrożenie tego protokołu dekontaminacji fagów kultur bakteryjnych polega na ustaleniu, czy źródło infekcji fagowej wymaga rozpoznania LPS w gospodarzu.
Podsumowując, i pomimo potencjalnych ograniczeń protokołu, nasze reprezentatywne wyniki wyraźnie pokazują, że metoda ta jest potężnym narzędziem do czyszczenia bakteryjnych kultur bakteriofagów Salmonella , które wykorzystują LPS jako wyzwalacz receptora i wyrzutu genomu.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy dr Carmen R. Beuzón i Rocío Carvajal-Holguera za pomocne dyskusje i sugestie. Prace te były wspierane przez grant PID2020-116995RB-I00 ufundowany przez MICIU/AEI/ 10.13039/5011100011033 oraz VI Plan Propio de Investigación y Transferencia z Universidad de Sevilla.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Strzykawka 20 ml | BD Discardit II | 300296 | Brak specjalnych wymagań |
| Probówki stożkowe 50 ml | Avantor | 525-0610 | Brak specjalnych wymagań |
| Szalki Petriego 90 x 14 mm | Deltalab | 200209 | Brak specjalnych wymagań |
| Agar | Sigma-Aldrich | A1296 | Brak specjalnych wymagań |
| Lizat | bakteriofagowyMinimalne stężenie: 109 PFU/mL | ||
| Wirówka | Eppendorf | Brak specjalnych wymagań | |
| Chloroform | Panreac | 131252 | Brak specjalnych wymagań |
| Kwas cytrynowy i middot; H2O | Merck | 1.00247 | |
| Licznik | Brak specjalnych wymagań | ||
| Evans Blue | Kolby | ||
| Brak specjalnych wymagań | |||
| Brak specjalnych wymagań | |||
| Glukoza | Sigma-Aldrich | G7021 | |
| K2HPO4 | Merck | 1.05104.1000 | |
| K2HPO4 bezwodny | Merck | 1.05104 | |
| Lipopolisacharyd z serotypu Salmonella enterica Typhimurium | Sigma-Aldrich | L6511-25 mg | Rozpuszczony w sterylnej wodzie |
| Membrana 0,45 i mikro; m | MF-Millipore | HAWP02500 | Brak specjalnych wymagań |
| MgSO4 · 7 H2O | Merck | 1.05886 | |
| NaCl | Sigma-Aldrich | S9888 | Brak specjalnych wymagań |
| NaNH4HPO4 · 4 H2O | Sigma-Aldrich | S9506 | |
| Peptone | iNtRON | Ba2001 | Brak specjalnych wymagań |
| Filtr strzykawkowy 0,22 i mikro; m | Millex | SLGSR33SB | Brak specjalnych wymagań |
| Wykałaczki | Brak specjalnych wymagań | ||
| Trypton | Panreac | 403682.1210 | Brak specjalnych wymagań |
| Pompa próżniowa | Thermo Scientific | Brak specjalnych wymagań | |
| Ekstrakt drożdżowy | iNtRON | 48045 | Brak specjalnych wymagań |
Bibliografia
- Kasman, L. M., Porter, L. D. Bacteriophages. , StatPearls Publishing. (2024).
- Lawrence, D., Baldridge, M. T., Handley, S. A. Phages and human health: More than idle hitchhikers. Viruses. 11 (7), 587(2019).
- Beller, L., Matthijnssens, J. What is (not) known about the dynamics of the human gut virome in health and disease. Curr Opin Virol. 37, 52-57 (2019).
- Roux, S., Hallam, S. J., Woyke, T., Sullivan, M. B. Viral dark matter and virus-host interactions resolved from publicly available microbial genomes. eLife. 4, 08490(2015).
- Wommack, K. E., Colwell, R. R. Virioplankton: Viruses in aquatic ecosystems. Microbiol Mol Biol Rev. 64 (1), 69-114 (2000).
- Louten, J. Virus structure and classification. Essentl Human Virol. , 19-29 (2016).
- Egido, J. E., Costa, A. R., Aparicio-Maldonado, C., Haas, P. J., Brouns, S. J. J. Mechanisms and clinical importance of bacteriophage resistance. FEMS Microbiol Rev. 46 (1), 048(2022).
- Rakhuba, D. V., Kolomiets, E. I., Dey, E. S., Novik, G. I. Bacteriophage receptors, mechanisms of phage adsorption and penetration into host cell. Polish J Microbiol. 59 (3), 145-155 (2010).
- Lindberg, A. A. Bacteriophage receptors. Ann Rev Microbiol. 27 (1), 205-241 (1973).
- Koskella, B., Meaden, S. Understanding bacteriophage specificity in natural microbial communities. Viruses. 5 (3), 806-823 (2013).
- Marcó, M. B., Moineau, S., Quiberoni, A. Bacteriophages and dairy fermentations. Bacteriophage. 2 (3), 149-158 (2012).
- Fernández-Fernández, R., et al. Evolution of a bistable genetic system in fluctuating and non-fluctuating environments. bioRxiv. , 2024.01.22.576666 (2024).
- Cota, I., Blanc-Potard, A. B., Casadesús, J. STM2209-STM2208 (opvAB): a phase variation locus of Salmonella enterica involved in control of O-antigen chain length. PloS one. 7 (5), e36863(2012).
- Kropinski, A. M., Mazzocco, A., Waddell, T. E., Lingohr, E., Johnson, R. P. Enumeration of bacteriophages by double agar overlay plaque assay. Methods Mol Biol. 501, 69-76 (2009).
- Ackermann, H. W. Tailed bacteriophages: The order Caudovirales. Adv Virus Res. 51, 135-201 (1998).
- Wilkinson, R. G., Gemski, P., Stocker, B. A. D. Non-smooth mutants of Salmonella typhimurium: Differentiation by phage sensitivity and genetic mapping. J Gen Microbiol. 70 (3), 527-554 (1972).
- Casjens, S. R., Leavitt, J. C., Hatfull, G. F., Hendrix, R. W. Genome sequence of Salmonella Phage 9NA. Genome Announc. 2 (4), e00531(2014).
- Cota, I., et al. Epigenetic control of Salmonella enterica O-antigen chain length: A tradeoff between virulence and bacteriophage resistance. PLoS Genet. 11 (11), e1005667(2015).
- Chan, K., Botstein, D., Watanabe, T., Ogata, Y. Specialized transduction of tetracycline resistance by phage P22 in Salmonella typhimurium. Virology. 50, 883-898 (1972).
- Bertozzi Silva, J., Storms, Z., Sauvageau, D. Host receptors for bacteriophage adsorption. FEMS Microbiol Lett. 363 (4), 002(2016).
- Sørensen, M. C. H., et al. Bacteriophage F336 recognizes the capsular phosphoramidate modification of Campylobacter jejuni NCTC11168. J Bacteriol. 193 (23), 6742-6749 (2011).
- Ogata, S., Hongo, M. Bacteriophages of the Genus Clostridium. Adv Appl Microbiol. 25, 241-273 (1979).
- Olivenza, D. R., Casadesús, J., Ansaldi, M. Epigenetic biosensors for bacteriophage detection and phage receptor discrimination. Environ Microbiol. 22 (8), 3126-3142 (2020).
- Olivenza, D. R., et al. A portable epigenetic switch for bistable gene expression in bacteria. Sci Rep. 9 (1), 862(2019).
- Walter, M., et al. Structure of the receptor-binding protein of bacteriophage Det7: a Podoviral tail spike in a Myovirus. J Virol. 82 (5), 2265-2273 (2008).
- Davies, M. R., Broadbent, S. E., Harris, S. R., Thomson, N. R., vander Woude, M. W. Horizontally acquired Glycosyltransferase operons drive Salmonellae lipopolysaccharide diversity. PLoS Genet. 9 (6), e1003568(2013).
- Wahl, A., Battesti, A., Ansaldi, M. Prophages in Salmonella enterica: a driving force in reshaping the genome and physiology of their bacterial host. Mol Microbiol. 111 (2), 303-316 (2019).
Przedruki i uprawnienia
