Ta praca wyjaśnia, jak przekształcić mitochondria drożdży za pomocą metody biolistycznej. Pokazujemy również, jak selekcjonować i oczyszczać transformanty oraz jak wprowadzić pożądaną mutację w docelowej pozycji w genomie mitochondrialnym.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Transformacja mitochondrialna w drożdżach piekarskich w celu zbadania translacji i składania kompleksów oddechowych
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Drożdże piekarskie Saccharomyces cerevisiae są powszechnie używane do zrozumienia biologii mitochondriów od dziesięcioleci. Model ten dostarczył wiedzy na temat niezbędnych, konserwatywnych szlaków mitochondrialnych wśród eukariontów oraz szlaków specyficznych dla grzybów i drożdży. Jedną z wielu zdolności S. cerevisiae jest zdolność do manipulowania genomem mitochondrialnym, co do tej pory było możliwe tylko u S. cerevisiae i jednokomórkowych glonów Chlamydomonas reinhardtii. Biolistyczna transformacja mitochondriów drożdży pozwala nam na wprowadzenie mutacji ukierunkowanych na miejsce, dokonanie rearanżacji genów i wprowadzenie reporterów. Podejścia te są stosowane głównie do zrozumienia mechanizmów dwóch wysoce skoordynowanych procesów w mitochondriach: translacji przez mitoribosomy i składania kompleksów oddechowych oraz syntazy ATP. Jednak transformacja mitochondrialna może być potencjalnie wykorzystana do badania innych szlaków. W niniejszej pracy pokazujemy, jak przekształcić mitochondria drożdży poprzez bombardowanie mikropociskami z dużą prędkością, wybrać i oczyścić zamierzony transformant oraz wprowadzić pożądaną mutację w genomie mitochondrialnym.
Wprowadzenie
Drożdże Saccharomyces cerevisiae są powszechnie uznanym modelem wykorzystywanym do badania biogenezy mitochondriów. Ponieważ drożdże są organizmem anaerobowym i fakultatywnym, możliwe jest szczegółowe badanie przyczyn i skutków wprowadzania mutacji upośledzających oddychanie. Ponadto organizm ten dysponuje dostępnymi narzędziami genetycznymi i biochemicznymi do badania szlaków mitochondrialnych. Jednym z najpotężniejszych zasobów pozwalających na badanie mechanizmów składania kompleksów oddechowych oraz syntezy białek mitochondrialnych jest możliwość transformacji mitochondriów i modyfikacji genomu tego organellum. Wcześniej pomocne było wprowadzanie do mitochondrialnego DNA (mtDNA) mutacji punktowych lub niewielkich delecji/insercji1,2,3,4,5, usuwanie genów6,7, dokonywanie reorganizacji genów7,8, dodawanie epitopów do białek mitochondrialnych9,10, przenoszenie genów z jądra do mitochondriów11,12 oraz wprowadzanie genów reporterowych, takich jak BarStar13, GFP14,15, lucyferaza16 oraz najpowszechniej stosowany ARG8m17,18. Modyfikacje genomu mitochondrialnego pozwoliły na przeanalizowanie i zidentyfikowanie mechanizmów, które w przeciwnym razie byłyby trudne do zrozumienia. Na przykład gen reporterowy ARG8m wprowadzony w locus COX1 w mitochondrialnym DNA był kluczowy dla zrozumienia, że Mss51 pełni podwójną rolę w biogenezie Cox1. Po pierwsze, jest on aktywatorem translacyjnym mRNA COX1, a po drugie, pełni funkcję chaperonu składania nowo syntetyzowanego białka Cox17,19. Niniejsza praca przedstawia szczegółową metodę transformacji mitochondriów S. cerevisiae. Choć protokół transformacji mitochondrialnej został opublikowany wcześniej16,20,21,22,23, podejście wizualne za pomocą wideo jest niezbędne do pełnego zrozumienia poszczególnych etapów i szczegółów tej metody. Metoda składa się z kilku kroków i jest podzielona na cztery ogólne etapy:

Rycina 1: Przegląd procedury transformacji mitochondrialnej poprzez bombardowanie mikroprojektylami z dużą prędkością: 1) Cząsteczki wolframu są sterylizowane i przygotowywane przed powleczeniem DNA. 2) Dwa różne plazmidy są wytrącane na powierzchni WPs. Jeden to plazmid bakteryjny zawierający konstrukt, który zostanie skierowany do macierzy mitochondrialnej. Drugi to jądrowy wektor ekspresyjny drożdży niosący marker auksotrofii. 3) Receptorowy szczep drożdży pozbawiony mitochondrialnego DNA (rho0) jest hodowany na fermentacyjnym źródle węgla, takim jak galaktoza lub rafinoza, które nie wywołuje represji glukozowej ekspresji genów mitochondrialnych34,35. Kultura jest wysiewana na płytki Petri zawierające medium do bombardowania. 4) WPs powleczone plazmidami są wstrzykiwane do szczepu receptorowego za pomocą bombardowania mikroprojektylami z dużą prędkością. 5) Pozytywne syntetyczne kolonie rho- zawierające plazmid mitochondrialny są selekcjonowane poprzez krzyżowanie ze szczepem testowym. 6) Konstrukt mitochondrialny jest integrowany z genomem mitochondrialnym w pożądanym locus poprzez krzyżowanie syntetycznego szczepu rho- (donor) ze szczepem akceptorem w procesie znanym jako cytodukcja. 7) Pozytywny receptorowy szczep haploidalny niosący konstrukt mitochondrialny jest selekcjonowany i oczyszczany w różnych mediach. Skróty: WPs = cząsteczki wolframu; mtDNA = mitochondrialne DNA. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Transformacja komórek konstruktem DNA przeznaczonym do integracji z genomem mitochondrialnym (Rysunek 1, kroki 1-4)
Choć możliwa jest bezpośrednia transformacja drożdży posiadających kompletny genom mitochondrialny (rho+), wydajność transformacji jest 10-20x wyższa, jeśli komórki są pozbawione mitochondrialnego DNA (rho0)24. Cząsteczki wolframu (WPs) są powlekane dwoma różnymi plazmidami, które zostaną poddane kotransformacji. Pierwszym z nich jest wektor ekspresyjny drożdżowy 2 µ zawierający marker aukstroficzny, taki jak LEU2 lub URA3 (np. odpowiednio YEp351 lub YEp352). Jeśli biolistyczna introdukcja DNA do komórek drożdży zakończy się sukcesem, transformanty będą rosły na podłożu aukstroficznym (tj. podłożu pozbawionym leucyny lub uracylu). Plazmid ten jest pomocny przy wstępnej selekcji komórek, które nabyły plazmid jądrowy; w przeciwnym razie liczba powstałych kolonii nasyciłaby płytkę. Drugim plazmidem jest plazmid bakteryjny (taki jak pBluescript lub podobny) zawierający konstrukt mitochondrialny przeznaczony do integracji z genomem mitochondrialnym. Konstrukt musi zawierać co najmniej 100 nt flankujących sekwencji mitochondrialnych 5' i 3' w celu rekombinacji z mitochondrialnym regionem zainteresowania. W naszym doświadczeniu większe sekwencje flankujące częściej ulegają pomyślnej rekombinacji z docelowym locus w genomie mitochondrialnym.
Konkretny przykład przedstawiono na Rysunku 225. W tym przykładzie celem było usunięcie regionu mitochondrialnego genu COX1 kodującego ostatnie 15 aminokwasów odpowiadającego białka (Cox1ΔC15) (Rysunek 2A). Bakteryjny plazmid niosący mutację COX1ΔC15 zawierał odpowiednio 395 nt i 990 nt niekodujących regionów 5' i 3' genu. Plazmid został wyprowadzony z pBluescript (pXPM61) i wraz z plazmidem 2 µ YEp352 został współstrącony na powierzchni WPs (Rysunek 2B). Następnie WPs wprowadzono poprzez bombardowanie mikrocząsteczkami do wybranego szczepu biorcy (Rysunek 2C). Szczep ten, nazwany NAB6926, jest szczepem MATa, rho0 posiadającym allele kar1-1 oraz ade2 (znaczenie tych cech omówiono poniżej). Komórki wysiano na podłoża do bombardowania pozbawione uracylu, aby wyselekcjonować te, które nabyły plazmid 2 µ (Rysunek 2C). Komórki hodowano przez 5-7 nocy w temperaturze 30 °C.
Selekcja komórek, które nabyły bakteryjny plazmid zawierający konstrukt mitochondrialny oraz jądrowy plazmid 2 µ przenoszący marker aukzotrofii (Rysunek 1, krok 5)
Kolonie pozytywne będą utrzymywać wiele kopii plazmidu bakteryjnego w swoich mitochondriach22. Ponieważ przetransformowane komórki są pierwotnie rho0, żadne sekwencje mitochondrialne nie wspierają translacji konstruktu mitochondrialnego obecnego w plazmidzie; w związku z tym przetransformowany gen mitochondrialny nie będzie ulegał ekspresji. Konieczne jest skrzyżowanie transformantów ze szczepem testerowym, aby wykryć kolonie drożdży, które nabyły plazmid mitochondrialny. Genom mitochondrialny szczepu testerowego zawiera niefunkcjonalną, zmutowaną wersję badanego genu. Po zapłodnieniu mitochondria połączą się, a sekwencja mitochondrialna zawarta w przetransformowanym plazmidzie zrekombinuje się z zmutowanym genem mitochondrialnym ze szczepu testerowego; w konsekwencji odzyskanie genu WT przywróci funkcję. Powstały diploid będzie wykazywał wykrywalny fenotyp pozytywny (zazwyczaj zdolność do wzrostu na podłożu oddechowym lub podłożu pozbawionym argininy). Pozytywne komórki przenoszące plazmid bakteryjny w mitochondriach nazywa się „syntetycznymi komórkami rho-”. W konkretnym przykładzie na Rysunku 2D, syntetyczne komórki rho- przenoszące konstrukt COX1ΔC15 (nazwane XPM199) zostały przeniesione metodą replica-plating na podłoże pozbawione uracylu (jest to płyta główna, z której oczyszczono kolonie pozytywne). Zostały one również przeniesione metodą replica-plating na trawnik szczepu testerowego L4527, który zawiera niefunkcjonalną mutację cox1D369N. Po dwóch nocach krzyżowania genom mitochondrialny L45 i XPM199 zrekombinował się, co doprowadziło do powstania funkcjonalnego genu COX1; w związku z tym diploidy odzyskały zdolność do wzrostu na podłożach oddechowych. Z płyty głównej wybrano kolonie pozytywne. Zostały one wyse sownane na płytki pozbawione uracylu, a testy selekcyjne powtórzono w celu otrzymania czystych syntetycznych komórek rho- (Rysunek 2E). Należy zauważyć, że płytka testowa służy wyłącznie do identyfikacji syntetycznych kolonii rho- i z tych płytek nie można odzyskać mutantów.
Integracja konstruktu z genomem mitochondrialnym docelowego szczepu
Krok ten jest realizowany poprzez proces zwany cytodukcją28,29 (Rysunek 1, krok 6). W tej metodzie syntetyczny szczep rho- (szczep donora) jest krzyżowany z docelowym szczepem akceptora o przeciwstawnym typie matingu. Niezbędnym wymogiem jest, aby przynajmniej jeden z dwóch krzyżowanych szczepów posiadał mutację kar1-1 w celu zablokowania fuzji jąder30. W konsekwencji krzyżowanie dwóch komórek prowadzi do powstania zygoty dwątrakowej (Rysunek 3). Sieci mitochondrialne komórek rodzicielskich (donora i akceptora) łączą się, a cząsteczki mitochondrialnego DNA ulegają rekombinacji. Zygoty dwątrakowe są inkubowane/regenerowane, aby umożliwić pączkowanie, w wyniku którego powstają komórki haploidalne. Komórki te dziedziczą tło jądrowe jednej z komórek rodzicielskich. Podobnie, haploidy mogą posiadać mitochondrialne DNA pochodzące od jednej z komórek rodzicielskich lub zrekombinowane mitochondrialne DNA, będące przedmiotem zainteresowania. Jednakże mutacja kar1-1 nie jest w 100% skuteczna i podczas krzyżowania powstanie część prawdziwych diploidów28,29. W tym przykładzie syntetyczny szczep rho- (donor, XPM199) posiadał allel kar1-1. Jako marker selekcyjny posiadał allel ade2, co czyniło go aukstrofem w stosunku do adeniny (Rysunek 4). Szczepem akceptorem był XPM10, szczep rho+ zawierający konstrukt cox1Δ::ARG8m , w którym reporter ARG8m zastąpił kodony COX1 w genomie mitochondrialnym7. Mieszaninę obu kultur komórkowych naniesiono w formie kropli na płytkę YPD, aby umożliwić krzyżowanie. Po 3-5 h komórki obserwowano pod mikroskopem świetlnym w celu wykrycia powstania shmoos (Rysunek 3B), czyli kształtu komórek charakterystycznego dla procesu krzyżowania. Po czasie inkubacji/regeneracji zygoty dwątrakowe wysiano na podłoże pozbawione adeniny, aby zapobiec wzrostowi komórek donora.
Wybór szczepu haploidalnego niosącego interesujący genom mitochondrialny (Rycina 1, krok 7)
Po cytodukcji powstaje mieszanina komórek dawcy, akceptora oraz komórek diploidalnych. W związku z tym po inkubacji/regeneracji zygot dwojądrowych komórki należy hodować na różnych pożywkach selekcyjnych w celu zidentyfikowania i wyizolowania interesujących nas haploidów. Dobór pożywek selekcyjnych zależy od genotypów szczepów dawcy i akceptora oraz planowanej konstrukcji mitochondrialnej. Ogólne zasady wyboru pożywek selekcyjnych są następujące: i) po inkubacji/regeneracji mieszaninę cytodukcyjną hoduje się na podłożu selektywnym, na którym szczep rodzicielski donora nie może rosnąć. W konkretnym przykładzie w Rycina 4A,B, donor (syntetyczne rho- szczep) posiada niefunkcjonalny ade2 allel. W związku z tym mieszaninę do cytodukcji należy inkubować na płytce z podłożem pozbawionym adeniny. Jest to płytka główna. iiPo wyrośnięciu kolonii płytka matka jest ponownie replikowana na pożywce bez adeniny (w celu przygotowania nowej płytki matki, z której zostaną oczyszczone interesujące nas kolonie pozytywne), a następnie na pożywce, na której mogą rosnąć wyłącznie diploidy. Jest to konieczne, aby uniknąć przypadkowego, dalszego oczyszczania kolonii diploidalnych. W przypadku przykładu z Rycina 4Ctylko diploidy mogą rosnąć na pożywkach pozbawionych leucyny. iiiPłyta matrycowa zostaje również powielona na podłożach, na których wzrastają jedynie te haploidy akceptory, które włączyły interesujące badacza DNA mitochondrialne. W przykładzie Rysunek 4Chaploidy rosną na podłożach oddechowych zawierających etanol/glicerol jako źródło węgla, ponieważ Cox1ΔBiałko C15 jest funkcjonalne. Wynikowe rho+ szczep posiadający interesujące mtDNA nazwano XPM20925. Szczepy wykorzystane w Rycina 2 i Rysunek 4 wymieniono w Tabela 1.
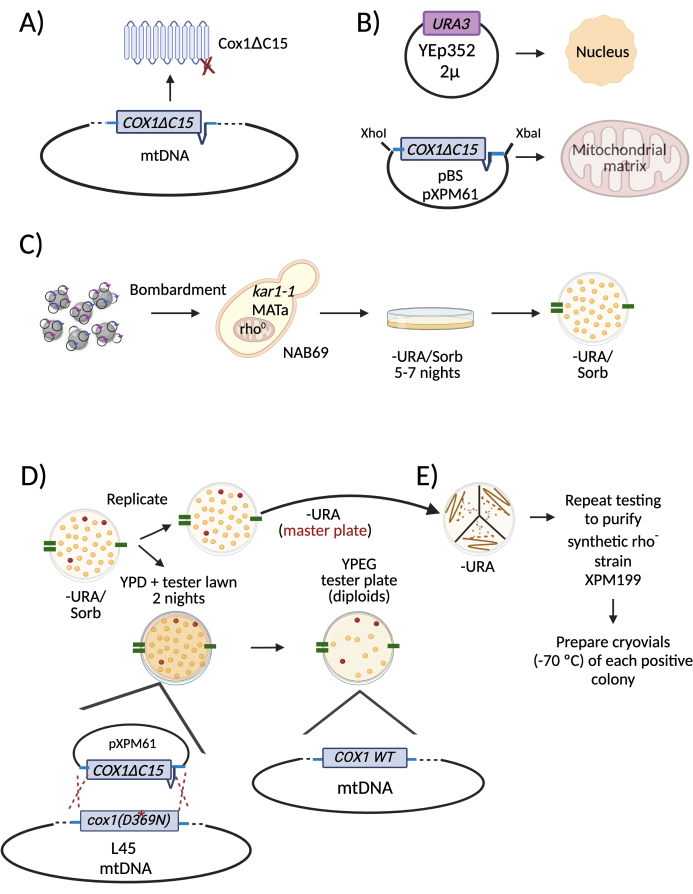
Rysunek 2: Schemat opisujący konkretny przykład transformacji mitochondrialnej i selekcji pozytywnych komórek rho-. (A) Zamierzoną modyfikacją genomu mitochondrialnego była delecja regionu kodującego ostatnie 15 aminokwasów podjednostki Cox1 (Cox1ΔC15). (B) WPs zostały pokryte dwoma plazmidami w celu transformacji komórek drożdży. Jednym z nich był plazmid 2 µ Yep352, który był kierowany i ekspresowany w jądrze komórkowym. Drugim był plazmid pXPM61, który zawiera allel COX1ΔC15 oraz odpowiednio 395 nt i 990 nt regionów 5'- i 3'-UTR genu COX1. (C) WPs wprowadzono do komórek szczepu NAB69, który nie posiada DNA mitochondrialnego (szczep rho0). Kolonie transformantów uzyskane z płytek po bombardowaniu replikowano na podłożu pozbawionym uracylu, będącym markerem aukstroficznym jądrowego plazmidu YEp352. (D) Aby wyselekcjonować pozytywne kolonie rho-, płytkę -URA replikowano na podłożu pozbawionym uracylu. Była to płytka główna, z której wybierano i izolowano pozytywne kolonie. Replikowano je również na płytkach z bogatym podłożem (YPD) oraz na trawniku szczepu testerowego. Podczas kojenia syntetyczne DNA mitochondrialne rho- rekombinowało się z DNA mitochondrialnym szczepu testerowego, L4527, który niesie mutację w genie COX1 (D369N). Diploidy, które urosły na podłożu oddechowym, zawierały transformowane DNA. Odpowiadające im kolonie wybrano z płytki głównej do ponownego wysiewu i oczyszczenia. Aby ułatwić identyfikację pozytywnych kolonii na płytce głównej podczas wszystkich etapów replikacji, na krawędziach płytek wykonano oznaczenia permanentnym markerem (zielone linie). (E) Wybrane pozytywne kolonie wysiano ponownie na podłoże pozbawione uracylu. Była to nowa płytka główna. Podobnie jak w punkcie D, przeprowadzono dwie kolejne rundy testów w celu oczyszczenia syntetycznych kolonii rho-. Skróty: WPs = cząstki wolframowe; mtDNA = DNA mitochondrialne; -URA/Sorb = brak uracylu/zawiera sorbitol; WT = typ dziki. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 3: Schemat opisujący procedurę cytodukcji. (A) Ogólny przegląd procesu kojarzenia się komórek podczas cytodukcji. Podczas cytodukcji mitochondria szczepów donora i akceptora ulegają fuzji, co umożliwia rekombinację mtDNA obu szczepów. Ponieważ fuzja jąder jest ograniczona z powodu mutacji kar1-1 30, powstają zygoty binuklearne. Po pewnym czasie inkubacji/regeneracji zygoty binuklearne pączkują, a następnie wyselekcjonowane są haploidne akceptory zawierające zamierzoną mutację mitochondrialną. (B) Kojarzenie syntetycznego szczepu rho- (donor) ze szczepem akceptora poprzez cytodukcję prowadzi do powstania shmoo (czerwone strzałki) – charakterystycznego kształtu kojarzących się drożdży. Obraz wykonano pod mikroskopem świetlnym z obiektywem 100x. Pasek skali = 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 4: Schemat opisujący konkretny przykład cytodukcji w celu zintegrowania mutacji COX1ΔC15 w genomie mitochondrialnym. (A) Hodowle ciekłe syntetycznego szczepu rho- (donor, XPM199) oraz szczepu docelowego (akceptor, XPM10) zmieszano w celu przeprowadzenia kojarzenia. Po utworzeniu się struktur shmoo, mieszaninę inkubowano w kulturze ciekłej przez 2-4 h. Następnie mieszaninę do cytodukcji wysiano na płytkę z pożywką pozbawioną adeniny, aby zapobiec wzrostowi komórek donora. (B) Schematyczne przedstawienie zdarzeń rekombinacji DNA mitochondrialnego z donora (XPM199) i akceptora (XPM10) podczas cytodukcji. (C) Płytkę główną replikowano na różnych pożywkach selekcyjnych w celu identyfikacji i oczyszczenia tych haploidów, które zintegrowały zamierzony gen mitochondrialny w DNA organelli (XPM209)25. Skróty: -ADE = brak adeniny; -LEU = brak leucyny. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Zalecamy wykonanie sześciu transformacji dla każdego konstruktu, ponieważ efektywność transformacji mitochondrialnej jest zazwyczaj niska. Skład różnych pożywek wzrostowych przedstawiono w tabeli 2.
1. Przygotowanie cząsteczek wolframu
- Odważyć 30 mg cząstek wolframu o wielkości 0,7 μm (WP, mikronośniki) w mikroprobówce. Dodaj 1,5 ml 70% etanolu (EtOH) do sterylizacji. Wiruj WP i pozwól im odpocząć przez 10 minut w temperaturze pokojowej.
- Wirować przy 13 200 x g przez 15 minut w temperaturze pokojowej. Umyj WPs, dodając 1,5 ml sterylnej wody do cząstek, wirując je i odwirowując przy 13 200 × g przez 15 minut w temperaturze pokojowej. Odrzucić supernatant.
- Dodać 500 μl sterylnego 50% glicerolu (końcowe stężenie wynosi 60 μg WPs/μL).
UWAGA: WP można przechowywać w temperaturze -20 °C przez co najmniej 6 miesięcy. Z tego zapasu weź wymaganą ilość na sześć przemian (100 μL).
2. Powłoka DNA WPs
- Dodać 5 μg plazmidu 2 μ i 15 μg plazmidu bakteryjnego zawierającego sekwencję mitochondrialną do mikroprobówki na lodzie.
UWAGA: Ostateczna objętość nie może przekraczać 50 μl, aby uniknąć dalszego rozcieńczania odczynników potrzebnych do powlekania DNA. - Dodać 100 μl zawiesiny WP i wirować przez 5 s (6 mg WP).
- Dodać 4 μl 1 M spermidyny. Krótko wir.
- Dodać 100 μl lodowatego 2,5 M CaCl2, krótko zwirować. Inkubować na lodzie przez 10 minut; Krótko mieszaj mieszankę co 3 min.
UWAGA: Roztwór CaCl2 jest sterylizowany filtrem i nie może być sterylizowany w autoklawie. - Odwirować WP przez 30 s w temperaturze 13 200 × g w temperaturze 4 °C i odrzucić supernatant. Umyj cząstki, delikatnie zawieszając je ponownie w 200 μl 100% EtOH w temperaturze -20 °C.
- Odwirować WP przez 30 s w temperaturze 13 200 × g w temperaturze 4 °C i odrzucić supernatant. Powtórz pranie.
- Zawiesić WP w 60-70 μl 100% EtOH o temperaturze pokojowej za pomocą końcówki pipety; nie wirować.
UWAGA: Aby zapewnić jakość plazmidów, powlekanie DNA powinno być wykonane tego samego dnia, co transformacja biolistyczna.
3. Przygotowanie materiału biolistycznego
- Przed bombardowaniem wysterylizuj sześć uchwytów makronośników (Rysunek 5) w autoklawie i dokładnie je wysusz. Alternatywnie namocz je w EtOH i wysterylizuj za pomocą płomienia za pomocą kleszczy. Umieść je na sterylnej szklanej płycie.
- Podczas wytrącania DNA (10-minutowa inkubacja na lodzie w kroku 2.4) należy umieścić sześć makronośników (lub latających dysków) w każdym z sześciu uchwytów makronośników za pomocą sterylnych kleszczy.
UWAGA: Nie sterylizuj makronośników. - Wymieszaj WP pokryte DNA z pipetą. Dodaj 10 μl WP do każdej powierzchni makronośnika i rozprowadź na całej powierzchni za pomocą końcówki pipety. W razie potrzeby dodaj kilka dodatkowych mikrolitrów 100% EtOH do powierzchni makronośnika, aby równomiernie rozprowadzić WP. Pozostaw zawiesinę do wyschnięcia w temperaturze pokojowej przez ~20 min.
4. Przygotowanie komórek drożdży i płytek bombardujących
- Zaszczepić szczep receptora rho0 na 2 ml pożywki YPR (Tabela 2). Uprawiaj przez jedną noc w temperaturze 30 °C w obracającym się kole.
- Rozcieńczyć 300 μl kultury w 30 ml świeżej pożywki YPR. Uprawiać w temperaturze 30 °C i 200 obr./min na wytrząsarce obrotowej przez dwie noce, aż kultura zostanie nasycona.
- Odwirować komórki drożdży w temperaturze 600 × g przez 5 minut w temperaturze pokojowej. Odrzucić supernatant i ponownie zawiesić komórki drożdży w 600 μl pożywki YPD (Tabela 2).
- Za pomocą sterylnego szklanego uchwytu rozprowadzić 100 μl zawiesiny komórek drożdży na stałej pożywce do bombardowania.
UWAGA: W pożywce bombardującej nie może znajdować się znacznik wyboru plazmidu o μ 2, który zostanie użyty do transformacji. - Powtórz krok 4.4 dla pozostałych pięciu płytek.
- Inkubować przez 1-3 godziny w temperaturze pokojowej przed bombardowaniem, aby upewnić się, że płynne podłoże zostało całkowicie wchłonięte na powierzchni płytki.
5. Wytwarzanie syntetycznego szczepu rho- przez transformację biologiczną
UWAGA: Zanim zaczniesz, koniecznie przeczytaj instrukcję obsługi sprzętu biolistycznego. Opiszemy protokół sprzętu referencyjnego (Tabela materiałów i Rysunek 5).
- Wyczyść komorę biolistycznego systemu dostarczania cząstek 70% etanolem, aby zapobiec zanieczyszczeniu i odstaw na co najmniej 10 minut. Tuż przed bombardowaniem wytrzyj powierzchnię czystym ręcznikiem papierowym.
- Otwórz zawory zbiornika helu, aby ustawić około 2,000 psi.
- Włącz urządzenie i włącz źródło podciśnienia.
- Za pomocą kleszczy umieść makronośnik skierowany w dół na uchwycie makronośnika.
UWAGA: Nie używaj ekranu zatrzymania dołączonego do urządzenia. - Przykręć pokrywę makronośnika do górnej części makronośnika. Wszystkie części razem tworzą system startowy mikrolotniskowca (Rysunek 5).
- Umieść system startowy mikronośnika w komorze próżniowej na piątym poziomie od dołu.
- Umieść jedną z płyt zawierających trawnik szczepu rho0 na drugim poziomie od dna komory. Upewnij się, że talerz jest skierowany do góry i nie ma pokrywy.
- Za pomocą sterylnych kleszczy umieść jedną tarczę bezpieczeństwa na nasadce mocującej. Przykręć nasadkę mocującą na rurze przyspieszenia; Upewnij się, że nasadka mocująca jest dobrze dopasowana.
UWAGA: Nie należy traktować pękniętych krążków izopropanolem zgodnie z sugestią zawartą w instrukcji, ponieważ zaobserwowaliśmy, że wydajność przemiany spada. - Zamknij drzwiczki komory próżniowej.
- Ustaw przełącznik VAC/VENT/HOLD w pozycji VAC. Po osiągnięciu podciśnienia 25-28 inHg zmień przełącznik VAC/VENT/HOLD na pozycję HOLD.
UWAGA: Należy pamiętać, że osiągalna próżnia może się różnić w zależności od poziomu morza. Odnieśliśmy sukces osiągając 25 inHg. - Naciśnij przełącznik FIRE, aby wystrzelić WPs. Poczekaj, aż ciśnienie wzrośnie w rurze przyspieszającej, aż osiągnie 1,300 psi, kiedy płytka pęka, wydając trzask.
- Natychmiast po zerwaniu płytki bezpieczeństwa, wyłącznik FIRE i podciśnienie są zwalniane poprzez przestawienie przełącznika VAC/VENT/HOLD w pozycję VENT.
- Ostrożnie, za pomocą sterylnych kleszczyków, usunąć wszelkie zanieczyszczenia płytki pękającej znajdujące się na powierzchni płytki i przykryć płytkę pokrywką.
- Powtórz procedurę dla pozostałych pięciu płytek, umieszczając nowy krążek pęknięcia i makronośnik w każdej rundzie.
- Na koniec zamknij główny zawór zbiornika helu.
- Zamknij komorę i wytwórz podciśnienie, ustawiając przełącznik VAC/VENT/HOLD w pozycji VAC. Uwolnij system od dowolnego ciśnienia helu, naciskając i zwalniając kilkakrotnie przełącznik FIRE. Powtórz przy otwartych drzwiach.
- Wyłącz pompę próżniową i sprzęt do bombardowania.
- Oczyść system dostarczania za pomocą 70% EtOH. Umyj podpory makronośników 0,1% roztworem SDS; spłukać sterylną wodą destylowaną i 100% EtOH.
6. Syntetyczny wybór kolonii
- Inkubować płytki bombardujące przez 5-7 nocy w temperaturze 30 °C.
UWAGA: Ważne jest, aby codziennie sprawdzać płytki pod kątem zanieczyszczeń. W razie potrzeby zanieczyszczony obszar można wyciąć sterylną szpatułką, aby uniknąć dalszego zanieczyszczenia. - Zaszczep szczep testowy przeciwnego typu krycia w 2 ml pożywki YPD przez noc (patrz konkretny przykład w Rysunek 2D,E).
- Zaszczepić 150 μl kultury szczepu testera na płytce YPD. Za pomocą sterylnego szklanego uchwytu rozprowadź tester równomiernie na powierzchni płytki. Pozostaw talerz do wyschnięcia na co najmniej 5 minut.
- Wykonaj repliki płyt bombardowania za pomocą aksamitnych podkładek replikujących i stempla replikatora.
- Powtórzyć na płytce z pożywką typu dropout odpowiadającą przekształconemu markerowi auksotrofii plazmidu o sile 2 μ. Wzrost trwa jedną noc inkubacji w temperaturze 30 °C. Następnie przechowywać w temperaturze 4 °C do dalszego użycia. Ta płyta jest płytą główną.
- Powtórzyć na płytce YPD zawierającej trawnik testera z kroku 6.3. Inkubować w temperaturze 30 °C przez dwie noce. Następnie powtórzyć tę płytkę na pożywce selektywnej, aby wykryć obecność interesującego genu mitochondrialnego, na przykład pożywki oddechowej lub pożywki pozbawionej argininy, i inkubować przez noc w temperaturze 30 °C. Tylko komórki, które zawierały syntetyczny plazmid bakteryjny w mitochondriach, będą rosły na selektywnej pożywce po połączeniu ze szczepem testowym.
- Zidentyfikuj na płytce wzorcowej (krok 6.4.1) odpowiednie kolonie, które wyrosły w kroku 6.4.2.
UWAGA: Ponieważ płyta bombardująca (a tym samym płyta główna) jest zatłoczona koloniami transformantów, identyfikacja tych dodatnich kolonii zaobserwowanych na płytce współpracującej testera może być trudna. Z tego powodu zdecydowanie zaleca się narysowanie kilku małych linii po każdej stronie wszystkich płytek za pomocą trwałego markera. Narysuj podobne linie na pierścieniu replikującego się stempla. Linie te będą pomocne w orientowaniu i lokalizowaniu dodatnich kolonii na płycie głównej (patrz przykład w Rysunek 2D). - Oczyść dodatnie kolonie, przesuwając je z płytki głównej na drugą selektywną płytkę opadającą, jak w kroku 6.4.1. Inkubować przez dwie noce w temperaturze 30 °C.
UWAGA: Istotne jest, aby smugi umożliwiały wzrost pojedynczych kolonii, aby zapewnić czystą odmianę. - Powtórz proces selekcji (kroki 6.2-6.5), aby potwierdzić obecność plazmidu bakteryjnego w mitochondriach.
UWAGA: Zazwyczaj proces ten można powtórzyć jeszcze dwa razy, aby wybrać stabilne syntetyczne odmiany krwi. - Gdy syntetyczny szczep rho- stabilnie utrzyma plazmidowe DNA w mitochondriach, wybierz 3-5 różnych dodatnich kolonii i zaszczep je w 2 ml YPD. Użyć tej kultury do przygotowania wywaru kriowialnego (przez zmieszanie 600 μl kultury i 600 μl 50% glicerolu w celu zachowania w temperaturze -70 °C) i wprowadzenia sekwencji plazmidowej do interesującego mtDNA przez cytokdukcję (krok 6.7).
UWAGA: Ponieważ nie ma selektywnego nacisku na utrzymanie przekształconego plazmidu w mitochondriach z syntetycznego szczepu rho, plazmid może być łatwo utracony. Dlatego zalecamy wykonanie cytokcji tak szybko, jak to możliwe.
7. Integracja struktury obecnej w syntetycznym szczepie rho- z miejscem docelowym w genomie mitochondrialnym poprzez cytokdukcję
- Zaszczepić dwie probówki 3 ml pożywki YPD, jedną komórkami dawcy (syntetyczne komórki RHO), a drugą komórkami akceptorowymi (komórka drożdży, w której spodziewana jest ostateczna konstrukcja). Inkubować przez noc w temperaturze 30 °C.
- Wymieszaj 750 μl szczepu dawcy i 250 μl szczepu receptorowego w sterylnej mikroprobówce (proporcja 3:1).
- Odwirować mieszaninę przez 1 minutę przy sile 13 200 × g; odrzucić supernatant. Używając końcówki do pipety o pojemności 1 ml z odciętym końcem, weź jedną kroplę osadu komórkowego i umieść go na płytce YPD. Inkubować w temperaturze 30 °C przez 2-4 h.
UWAGA: Aby uniknąć zanieczyszczenia krzyżowego, nie należy umieszczać więcej niż dwóch zawiesin komórek na jednej płytce (patrz przykład w Rysunek 4A). - Pobrać niewielką ilość mieszaniny komórek, zawiesić ją ponownie w 15 μl sterylnej wody na szkiełku podstawowym i umieścić szkiełko nakrywkowe. Sprawdź pod mikroskopem świetlnym pod kątem obecności shmoos za pomocą obiektywu 40x lub 100x; ten charakterystyczny kształt pojawia się, gdy obecne są dwa typy krycia (Rysunek 3B).
- Jeśli shmoos są obecne, ponownie wymieszaj niewielką ilość (~0,5 mm3) masy komórkowej w 2 ml pożywki YPD. Inkubować przez 2 godziny w temperaturze 30 °C w obracającym się kole, aby umożliwić zygotom dwujądrowym regenerację.
- Zmieszać mieszaninę i rozcieńczyć 10 μl zawiesiny komórek w 990 μl sterylnej wody (rozcieńczenie 1:100). Użyj szklanych kulek lub sterylnego szklanego uchwytu, aby rozprowadzić 100 μl rozcieńczenia komórek na pożywce, na której rośnie tylko szczep akceptorowy (i sporadyczne diploidy). Inkubować przez 2-3 noce w temperaturze 30 °C.
- Powtórz powstałe kolonie na niezbędnych pożywkach selektywnych, jak wyjaśniono we wprowadzeniu (etap 4; zobacz Rysunek 4C dla konkretnego przykładu).
- Po zidentyfikowaniu dodatnich kolonii, umieść je ponownie na tych samych selektywnych pożywkach, aby oczyścić haploidalny szczep przenoszący mtDNA, który jest przedmiotem zainteresowania.
- Wybierz co najmniej dwie dodatnie kolonie i hoduj je na 2 ml pożywki YPD w temperaturze 30 °C przez noc. Wykonaj kriogeniczną kopię zapasową, mieszając 600 μl 50% glicerolu z 600 μl nasyconej kultury YPD. Przechowywać w temperaturze -70 °C.
- Wyizoluj DNA powstałych szczepów31,32. Amplifikuj żądany region za pomocą PCR i sekwencji, aby potwierdzić obecność mutacji mitochondrialnej.
UWAGA: Każda dodatnia kolonia jest techniczną repliką, która musi zostać potwierdzona niezależnie, aby zapewnić prawidłową sekwencję w genomie mitochondrialnym.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W tej sekcji przedstawiono reprezentatywne wyniki z różnych etapów transformacji mitochondrialnej. Rysunek 6 przedstawia procedurę bombardowania. Syntetyczne komórki rho- przenosiły bakteryjny plazmid z genem reporterowym ARG8m, który zastępuje sekwencję kodującą genu mitochondrialnego (Rysunek 6A). Po bombardowaniu płytkę przeniesiono na podłoże pozbawione uracylu (-URA); jest to płytka matka (
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W niniejszej pracy opisano, w jaki sposób można skutecznie przekształcić mitochondria z drożdży S. cerevisiae . Proces, od bombardowania mikropociskami o dużej prędkości do oczyszczenia zamierzonego szczepu drożdży, trwa ~ 8-12 tygodni, w zależności od tego, ile rund oczyszczania syntetycznego szczepu jest koniecznych. Niektóre z krytycznych kroków metody są następujące. Po pierwsze, im większe regiony flankujące dodane wokół miejsca mutacji w konstrukcie genu mitochondrialnego, tym większe prawdopodo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają żadnych konfliktów interesów, które mogliby ujawnić.
Podziękowania
Ta publikacja była wspierana przez Programa de Apoyo a Proyectos de Investigación e Innovación Tecnológica (PAPIIT), UNAM [IN223623 do XP-M]. UPD jest członkiem CONAHCYT (CVU:883299). Pragniemy podziękować dr Ariann Mendoza-Martínez za pomoc techniczną przy wykonywaniu zdjęć z mikroskopu świetlnego. Licencje Biorender: DU26OMVLUU (Rysunek 2); BK26TH9GXH (rysunek 3); GD26TH80R5 (rysunek 4); PU26THARYD (rysunek 7); ML26THAIFG (Rysunek 9).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1 ml końcówki do pipet | Axygen | T-1000-B | |
| 1,5 ml Mikroprobówka | Axygen | MCT-150-C | |
| 10 μ L końcówki do pipet | Axygen | T-10-C | |
| 15 ml stożkowa rurka dolna | Axygen | SCT-25ML-25-S | |
| 200 μ L końcówki do pipet | Axygen | T-200-Y | |
| 50 mL stożkowe dno probówka | Axygen | SCT-50ML-25-S | |
| AfiII | New England BioLabs | R0520S | |
| Agaroza | SeaKem | 50004 | |
| Waga analityczna | Autoklaw OHAUS | ARA520 | |
| TOMY | ES-315 | ||
| Agar Bacto | BD | 214010 | |
| Bacto pepton | BD | 211677 | |
| Biolisitic Macrocarrier holder | BIO-RAD | 1652322 | |
| Palnik Bunsena | VWR | 89038-528 | |
| Chlorek wapnia | Fisher Scientific | C79-500 | |
| CSM -ADE | Formedium | DCS0049 | |
| CSM -ARG | Formedium | DCS0059 | |
| CSM -LEU | Formedium | DCS0099 | |
| CSM -URA | Formedium | ||
| Szklana kolba hodowlana | KIMAX KIMBLE | 25615 | |
| Rurka ze szkła hodowlanego | Pyrex | 9820 | |
| Dekstroza | BD | 215520 | |
| Etanol | JT Baker | 9000 | |
| Kleszcze | Millipore | 620006 | |
| Koraliki szklane | Sigma | Z265926 | |
| Uchwyt szklany | Sigma | S4647 | |
| Glicerol | JT BAKER | 2136-01 | |
| Zbiornik helu klasy 5 (99,99 %) | - | - | |
| HSTaq Zestaw | do PCR BIO | ||
| Mikrowirówka | Eppendorf | 022620100 | |
| NdeI | New England BioLabs | R0111L | |
| Wytrząsarka orbitalna | New Brunswick scientific | NB-G25 | |
| PCR | Axygen | PCR-02-C | |
| PDS-1000/He TM Biolistyczny system dostarczania cząstek | BIO-RAD | 165-2257 | |
| Szalki Petriego (100X10) | BD | 252777 | |
| QIAprep Spin Miniprep | Qiagen | 27106 | |
| Rafinoza | Formedium | RAF03 | |
| Replika platera | Scienceware | Z363391 | |
| Płytki bezpieczeństwa 1350 Psi | BIO-RAD | 1652330 | |
| Sorbitol | Sigma | S7547 | |
| Spermidine | Sigma | S0266 | |
| T4 DNA Ligase | Thermo Scientific | EL0011 | |
| Rotator do hodowli tkankowych | Thermo Scientific 88882015 | ||
| Mikronośniki wolframowe M10 | BIO-RAD | 1652266 | |
| Pompa próżniowa o wydajności 100 l / min | - | ||
| Aksamitne podkładki | Bel-Art | H37848-0002 | |
| Wir | Scientifc Industries | SI-0236 | |
| Aplikator do drewna w sztyfcie | PROMA | 1820060 | |
| Ekstrakt drożdżowy | BD | 212750 | |
| Drożdże Azot na bazie bez aminokwasów | BD | 291920 |
Bibliografia
- Bonnefoy, N., Fox, T. D. In vivo analysis of mutated initiation codons in the mitochondrial COX2 gene of Saccharomyces cerevisiae fused to the reporter gene ARG8m reveals lack of downstream reinitiation. Mol Gen Genet. 262 (6), 1036-1046 (2000).
- Franco, L. V. R., Su, C. H., McStay, G. P., Yu, G. J., Tzagoloff, A. Cox2p of yeast cytochrome oxidase assembles as a stand-alone subunit with the Cox1p and Cox3p modules. J Biol Chem. 293 (43), 16899-16911 (2018).
- Flores-Mireles, D., et al. The cytochrome b carboxyl terminal region is necessary for mitochondrial complex III assembly. Life Sci Alliance. 6 (7), (2023).
- Rubalcava-Gracia, D., Vázquez-Acevedo, M., Funes, S., Pérez-Martínez, X., González-Halphen, D. Mitochondrial versus nuclear gene expression and membrane protein assembly: the case of subunit 2 of yeast cytochrome. Mol Biol Cell. 29 (7), 820-833 (2018).
- García-Villegas, R., et al. The Cox1 C-terminal domain is a central regulator of cytochrome c oxidase biogenesis in yeast mitochondria. J Biol Chem. 292 (26), 10912-10925 (2017).
- Rak, M., et al. Yeast cells lacking the mitochondrial gene encoding the ATP synthase subunit 6 exhibit a selective loss of complex IV and unusual mitochondrial morphology. J Biol Chem. 282 (15), 10853-10864 (2007).
- Perez-Martinez, X., Broadley, S. A., Fox, T. D. Mss51p promotes mitochondrial Cox1p synthesis and interacts with newly synthesized Cox1p. EMBO J. 22 (21), 5951-5961 (2003).
- Sanchirico, M. E., Fox, T. D., Mason, T. L. Accumulation of mitochondrially synthesized Saccharomyces cerevisiae Cox2p and Cox3p depends on targeting information in untranslated portions of their mRNAs. EMBO J. 17 (19), 5796-5804 (1998).
- Saracco, S. A., Fox, T. D. Cox18p is required for export of the mitochondrially encoded Saccharomyces cerevisiae Cox2p C-tail and interacts with Pnt1p and Mss2p in the inner membrane. Mol Biol Cell. 13 (4), 1122-1131 (2002).
- McStay, G. P., Su, C. H., Thomas, S. M., Xu, J. T., Tzagoloff, A. Characterization of assembly intermediates containing subunit 1 of yeast cytochrome oxidase. J Biol Chem. 288 (37), 26546-26556 (2013).
- Golik, P., Bonnefoy, N., Szczepanek, T., Saint-Georges, Y., Lazowska, J. The Rieske FeS protein encoded and synthesized within mitochondria complements a deficiency in the nuclear gene. Proc Natl Acad Sci U S A. 100 (15), 8844-8849 (2003).
- Franco, L. V. R., et al. Allotopic expression of COX6 elucidates Atco-driven co-assembly of cytochrome oxidase and ATP synthase. Life Sci Alliance. 6 (11), e202301965(2023).
- Mireau, H., Arnal, N., Fox, T. D. Expression of Barstar as a selectable marker in yeast mitochondria. Mol Genet Genomics. 270 (1), 1-8 (2003).
- Cohen, J. S., Fox, T. D. Expression of green fluorescent protein from a recoded gene inserted into Saccharomyces cerevisiae mitochondrial DNA. Mitochondrion. 1 (2), 181-189 (2001).
- Suhm, T., et al. A novel system to monitor mitochondrial translation in yeast. Microb Cell. 5 (3), 158-164 (2018).
- Rzepka, M., Suhm, T., Ott, M. Incorporation of reporter genes into mitochondrial DNA in budding yeast. STAR Protoc. 3 (2), 101359(2022).
- Steele, D. F., Butler, C. A., Fox, T. D. Expression of a recoded nuclear gene inserted into yeast mitochondrial DNA is limited by mRNA-specific translational activation. Proc Natl Acad Sci U S A. 93 (11), 5253-5257 (1996).
- Flores-Mireles, D., Camacho-Villasana, Y., Pérez-Martínez, X. The ARG8m reporter for the study of yeast mitochondrial translation. Methods Mol Biol. 2661, 281-301 (2023).
- Perez-Martinez, X., Butler, C. A., Shingu-Vazquez, M., Fox, T. D. Dual functions of Mss51 couple synthesis of Cox1 to assembly of cytochrome c oxidase in Saccharomyces cerevisiae mitochondria. Mol Biol Cell. 20 (20), 4371-4380 (2009).
- Bonnefoy, N., Remacle, C., Fox, T. D. Genetic transformation of Saccharomyces cerevisiae and Chlamydomonas reinhardtii mitochondria. Methods Cell Biol. 80, 525-548 (2007).
- Veloso Ribeiro Franco, L., Barros, M. H. Biolistic transformation of the yeast Saccharomyces cerevisiae mitochondrial DNA. IUBMB Life. 75 (12), 972-982 (2023).
- Bonnefoy, N., Fox, T. D. Directed alteration of Saccharomyces cerevisiae mitochondrial DNA by biolistic transformation and homologous recombination. Methods Mol Biol. 372, 153-166 (2007).
- Butow, R. A., Henke, R. M., Moran, J. V., Belcher, S. M., Perlman, P. S. Transformation of Saccharomyces cerevisiae mitochondria using the biolistic gun. Methods Enzymol. 264, 265-278 (1996).
- Bonnefoy, N., Fox, T. D. Genetic transformation of Saccharomyces cerevisiae mitochondria. Methods Cell Biol. 65, 381-396 (2001).
- Shingú-Vázquez, M., et al. The carboxyl-terminal end of Cox1 is required for feedback assembly regulation of Cox1 synthesis in Saccharomyces cerevisiae mitochondria. J Biol Chem. 285 (45), 34382-34389 (2010).
- Bonnefoy, N., Bsat, N., Fox, T. D. Mitochondrial translation of Saccharomyces cerevisiae COX2 mRNA is controlled by the nucleotide sequence specifying the pre-Cox2p leader peptide. Mol Cell Biol. 21 (7), 2359-2372 (2001).
- Meunier, B., Lemarre, P., Colson, A. M. Genetic screening in Saccharomyces cerevisiae for large numbers of mitochondrial point mutations which affect structure and function of catalytic subunits of cytochrome-c oxidase. Eur J Biochem. 213 (1), 129-135 (1993).
- Dorweiler, J. E., Manogaran, A. L. Cytoduction and plasmiduction in yeast. Bio Protoc. 11 (17), 4146(2021).
- Zakharov, I. A., Yarovoy, B. P. Cytoduction as a new tool in studying the cytoplasmic heredity in yeast. Mol Cell Biochem. 14 (1-3), 15-18 (1977).
- Conde, J., Fink, G. R. A mutant of Saccharomyces cerevisiae defective for nuclear fusion. Proc Natl Acad Sci U S A. 73 (10), 3651-3655 (1976).
- Burke, D., Dawson, D., Stearns, T. Cold Spring Harbor Laboratory. Methods in yeast genetics : a Cold Spring Harbor Laboratory manual. 2000 ed. , Cold Spring Harbor Laboratory Press. (2000).
- Dunham, M. J., Gartenberg, M. R., Brown, G. W. : a. Methods in yeast genetics and genomics : a Cold Spring Harbor Laboratory course manual. 2015 edition. , Cold Spring Harbor Laboratory Press. (2015).
- Ding, M. G., et al. Chapter 27 An improved method for introducing point mutations into the mitochondrial cytochrome B gene to facilitate studying the role of cytochrome B in the formation of reactive oxygen species. Methods Enzymol. 456, 491-506 (2009).
- Klein, C. J. L., Olsson, L., Nielsen, J. Glucose control in Saccharomyces cerevisiae: the role of Mig1 in metabolic functions. Microbiology (Reading). 144, Pt 1 13-24 (1998).
- Rolland, F., Winderickx, J., Thevelein, J. M. Glucose-sensing and -signalling mechanisms in yeast. FEMS Yeast Res. 2 (2), 183-201 (2002).
- Gruschke, S., et al. The Cbp3-Cbp6 complex coordinates cytochrome b synthesis with bc(1) complex assembly in yeast mitochondria. J Cell Biol. 199 (1), 137-150 (2012).
- Seshadri, S. R., Banarjee, C., Barros, M. H., Fontanesi, F. The translational activator Sov1 coordinates mitochondrial gene expression with mitoribosome biogenesis. Nucleic Acids Res. 48 (12), 6759-6774 (2020).
- Rak, M., Tzagoloff, A. F1-dependent translation of mitochondrially encoded Atp6p and Atp8p subunits of yeast ATP synthase. Proc Natl Acad Sci U S A. 106 (44), 18509-18514 (2009).
- He, S., Fox, T. D. Mutations affecting a yeast mitochondrial inner membrane protein, pnt1p, block export of a mitochondrially synthesized fusion protein from the matrix. Mol Cell Biol. 19 (10), 6598-6607 (1999).
- Rak, M., et al. Regulation of mitochondrial translation of the ATP8/ATP6 mRNA by Smt1p. Mol Biol Cell. 27 (6), 919-929 (2016).
- Barrera-Paez, J. D., Moraes, C. T. Mitochondrial genome engineering coming-of-age. Trends Genet. 38 (8), 869-880 (2022).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
