Aby zbadać ewolucję języka, ważne jest porównanie mechanizmów mózgowych u ludzi z tymi u naczelnych. Opracowaliśmy metodę nieinwazyjnego pomiaru elektroencefalografii (EEG) obudzonych zwierząt. Pozwala nam to na bezpośrednie porównywanie danych EEG między ludźmi i zwierzętami w dłuższej perspektywie, bez szkody dla nich.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Pomiary elektroencefalograficzne u obudzonych marmozet słuchających wokalizacji współgatunkowych
W tym artykule
Podsumowanie
Streszczenie
Komunikacja głosowa odgrywa kluczową rolę w interakcjach społecznych naczelnych, szczególnie w przetrwaniu i organizacji społecznej. Ludzie opracowali unikalną i zaawansowaną strategię komunikacji głosowej w postaci języka. Aby zbadać ewolucję ludzkiego języka, konieczne jest zbadanie mechanizmów neuronalnych leżących u podstaw przetwarzania głosu u ludzi, a także zrozumienie, w jaki sposób ewoluowały mechanizmy mózgowe, porównując je z tymi u naczelnych innych niż ludzie. W tym celu opracowaliśmy metodę nieinwazyjnego pomiaru elektroencefalografii (EEG) przytomnych naczelnych innych niż ludzie. Ta metoda rejestrowania pozwala na długoterminowe badania bez szkody dla zwierząt i, co ważne, pozwala nam bezpośrednio porównywać dane EEG naczelnych z danymi ludzkimi, dostarczając wglądu w ewolucję ludzkiego języka. W obecnym badaniu zastosowaliśmy metodę zapisu EEG skóry głowy do zbadania aktywności mózgu w odpowiedzi na specyficzne dla gatunku wokalizacje u marmozet. Badanie to dostarcza nowych informacji dzięki wykorzystaniu EEG skóry głowy do uchwycenia rozległych reprezentacji neuronalnych u marmozet podczas percepcji głosu, wypełniając luki w istniejącej wiedzy.
Wprowadzenie
Naczelne używają specyficznych dla gatunku wokalizacji do przekazywania biologicznie ważnych informacji, takich jak stan emocjonalny rozmówcy lub zamiar utrzymania więzi społecznych, obecność drapieżników lub inne niebezpieczne sytuacje. Badanie mechanizmów neuronalnych leżących u podstaw percepcji wokalizacji u bogatych w głos naczelnych może dostarczyć nam kluczowych wskazówek, które pozwolą lepiej zrozumieć ewolucyjne pochodzenie ludzkiego języka.
Marmozety pospolite to małe naczelne pochodzące z Ameryki Południowej. W ostatnich latach marmozety są coraz częściej wykorzystywane jako zwierzęta modelowe, obok makaków, ze względu na ich wysoką reprodukcję, łatwość użycia ze względu na niewielkie rozmiary oraz rozwój użytecznych technik transgenicznych1,2,3. Oprócz ich użyteczności jako modeli chorób, bogata komunikacja głosowa w grupach jest kolejną unikalną cechą tego gatunku4,5,6,7. Marmozety rutynowo wymieniają sygnały głosowe, aby komunikować się z niewidzialnymi przedstawicielami tego samego gatunku w lesie. Badając aktywność mózgu zaangażowaną w percepcję i produkcję głosu u marmozet, możemy określić, w jaki sposób przetwarzają one informacje słuchowe o swoich własnych lub współgatunkowych wywołaniach w mózgu i określić, które obwody neuronalne są zaangażowane. Poprzednie badania wykazały aktywność neuronalną w pierwszorzędowej korze słuchowej8,9,10,11,12 i kora czołowa13,14 zaangażowany w produkcję głosu u marmozetów. Co więcej, te wzbudzone i stłumione reakcje neuronalne były modulowane przez interakcje słuchowo-głosowe w pierwszorzędowej korze słuchowej8,10. Badania te dostarczyły szczegółowych danych dotyczących aktywności neuronalnej na poziomie pojedynczego neuronu przy użyciu inwazyjnych metod rejestrowania. Liczne badania dokładniej analizowały aktywność neuronalną zaangażowaną w produkcję głosu marmozety; Jednak percepcja wokalna pozostaje słabo zrozumiana15,16.
Kilka nieinwazyjnych badań obrazowania mózgu wyjaśniło neuronalne mechanizmy przetwarzania głosu u marmozetów17,18,19; ich wysoka rozdzielczość przestrzenna jest zaletą, jednak utrzymanie zwierząt w stanie czuwania podczas skanowania wymaga zaawansowanych technik. Jednak ostatnio Jafari i in. zidentyfikowali obszary czołowo-skroniowe zaangażowane w percepcję głosu u obudzonych marmozet za pomocą funkcjonalnego rezonansu magnetycznego (fMRI)19. Prawie wszystkie eksperymenty mające na celu wyjaśnienie funkcji mózgu związanych z percepcją i produkcją głosu u ludzi zostały przeprowadzone przy użyciu metod nieinwazyjnych, takich jak elektroencefalografia skóry głowy (EEG), magnetoencefalografia (MEG)20,21, oraz fMRI22,23,24. Liczne badania na ludziach dotyczyły aktywności mózgu związanej z percepcją głosu za pomocą EEG. Większość z tych badań koncentrowała się na informacjach emocjonalnych25,26,27 oraz istotności słów emocjonalnych28, a wyniki ujawniają zmiany w potencjałach związanych ze zdarzeniami podczas percepcji głosu29. Elektrokortykografia (ECoG) i zapisy pojedynczych neuronów przy użyciu elektrod wszczepionych wewnątrzczaszkowo u ludzi zostały przeprowadzone tylko w ograniczonej liczbie eksperymentów u pacjentów poddawanych leczeniu neurochirurgicznemu30,31.
Perspektywa ewolucyjna porównująca ludzi z małpami jest ważna dla zrozumienia unikalnych mechanizmów neuronalnych leżących u podstaw percepcji i produkcji głosu, które rozwinęły się u ludzi. Aby bezpośrednio porównać mechanizmy neuronalne zaangażowane w percepcję mowy i wokalizację u bogatych w głos naczelnych innych niż ludzie, takich jak marmozety, z ludźmi, ważne jest porównanie danych między tymi dwoma gatunkami przy użyciu tej samej metody. Funkcjonalny rezonans magnetyczny umożliwia obrazowanie całego mózgu i ma wysoką rozdzielczość przestrzenną. Ma tę zaletę, że rejestruje aktywność prostopadłą do czaszki lub w głębokich obszarach, które są trudne do zarejestrowania za pomocą EEG lub MEG. Jednak aparat do rezonansu magnetycznego jest drogi w instalacji i utrzymaniu, a ze względu na charakter urządzenia istnieje wiele ograniczeń dotyczących bodźców, które mogą być prezentowane. Dla porównania, EEG, potencjały związane ze zdarzeniami (ERP) i MEG mają wysoką rozdzielczość czasową, co czyni je przydatnymi do analizy przetwarzania głosu w szeregach czasowych. W szczególności EEG ma zalety wysokiej mobilności i możliwości wykorzystania w różnych warunkach eksperymentalnych, stosunkowo niskich kosztów i konieczności zatrudniania tylko jednego operatora.
Ponieważ duża ilość danych EEG została już uzyskana u ludzi, potrzebne są metody pomiaru EEG przy użyciu nieinwazyjnych paradygmatów dla naczelnych innych niż ludzie. Nasza grupa badawcza opracowała unikalną nieinwazyjną metodę zapisu EEG przy użyciu tubes32 dla makaków i marmozet. W tym miejscu przedstawiamy kilka nowych odkryć dotyczących przetwarzania słuchowego u naczelnych innych niż ludzie33,34,35,36,37. Aby scharakteryzować aktywność mózgu w odpowiedzi na specyficzne dla gatunku wokalizacje u marmozet, skonstruowaliśmy eksperymentalny system do nieinwazyjnego rejestrowania aktywności mózgu za pomocą elektrod umieszczonych na skórze głowy. W niniejszej pracy opisano metodę pomiaru EEG dla marmozet.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty zostały zatwierdzone przez Komitet ds. Eksperymentów na Zwierzętach EHUB (nr 2022-003, 2023-104) i przeprowadzone zgodnie z Wytycznymi dotyczącymi opieki i wykorzystania naczelnych w laboratorium opublikowanymi przez EHUB. Do eksperymentu wykorzystano dziewięć uroskopatek (Callithrix jacchus, sześć samców i trzy samice, w wieku 2–12 lat, o masie 330–490 g). Cztery z dziewięciu uroskopatek przebywały w parach lub rodzinach, natomiast pięć przebywało indywidualnie. Uroskopatki w kolonii zazwyczaj pozostają w zakwaterowaniu rodzinnym do ukończenia dwóch lat, po czym są przenoszone do zakwaterowania w parach lub indywidualnie, w zależności od sukcesu formowania par.
1. Zwierzęta
- Zakwateruj marmosety w pojedynczych klatkach wyposażonych w budki gniazdowe, drewniane żerdzie oraz inne urządzenia wzbogacające środowisko.
- Utrzymuj pomieszczenia w 12-godzinnym cyklu światło-ciemność, przy temperaturze 28 ± 2 °C i wilgotności powietrza 40 ± 20%.
- Karmij zwierzęta dwa razy dziennie 14 g granulatu dla małp Nowego Świata, uzupełniając dietę o pokarmy takie jak guma arabska i mączniki. Zapewnij dostęp do wody ad libitum.
- Wszystkie eksperymenty przeprowadź w wygłuszonej komorze w pomieszczeniu doświadczalnym.
2. Sprzęt (Rycina 1B i Tabela Materiałów)
- Należy użyć srebrnych elektrod o średnicy 4 mm. Powłoka z AgCl na powierzchni elektrody zapobiega polaryzacji i zapewnia stabilny zapis.
- Do rejestracji sygnałów EEG należy użyć wzmacniacza. Zastosuj filtr pasmowy (0,016-250 Hz) i próbkowanie danych z częstotliwością 1 000 Hz.
- Do wzmacniacza należy podłączyć 64-kanałowe pudełko wejściowe elektrod (Electrode Input Box), umieszczając je przed badanym osobnikiem.
- Głośnik należy umieścić w odległości 30 cm od głowy marmoszeta i kontrolować poziom dźwięku w zakresie 65-75 dB, mierzonym na wysokości ucha. Bodźce słuchowe należy podawać za pomocą tego głośnika.
- Przed badanym osobnikiem należy ustawić kamerę, aby monitorować jego stan podczas rejestracji EEG.
- Krzesło dla naczelnych wykonane jest z płyt akrylowych i słupków z żywicy syntetycznej. Podczas eksperymentu badacz powinien przytrzymać zwierzęta, gdy siedzą one na podestu dla stóp; w tym momencie należy włożyć obręcz szyjną i przymocować ją do panelu szyjnego, a następnie włożyć i przymocować obręcz talii do panelu talii. Należy upewnić się, że całe ciało każdego marmoszeta jest zabezpieczone w sposób niewyciskający.
3. Znieczulenie
- Zanurz zwierzęta w narkozie poprzez domięśniowy zastrzyk z alfaxalone (6-8 mg/kg) i atropiną (0,05 mg/kg). Protokół ten pozwala na utrzymanie znieczulenia przez około 20 min. W przypadku dłuższych procedur podać dodatkowe dawki alfaxalone, aby przedłużyć czas trwania anestezji. Przed zabiegiem podać również leki przeciwwymiotne (maropitant 1 mg/kg, zastrzyk podskórny), aby zniwelować nudności będące efektem ubocznym stosowania alfaxalone.
UWAGA: Marmosety podczas procedur muszą znajdować się pod narkozą wstrzykniętą lub wziewną, a po zgoleniu sierści powinno im pozwolić na natychmiastowe wybudzenie. - Monitorować funkcje życiowe za pomocą pulsoksymetru i w razie potrzeby podawać mieszankę tlenowo-powietrzną (O2 0,5 L/min, powietrze 0,5 L/min).
- Utrzymywać temperaturę w pomieszczeniu powyżej 27 °C oraz owinąć ciało marmosety ogrzewającą tkaniną, aby zapobiec hipotermii.
4. Usuwanie włosów
- Zgolić całą głowę (w tym obszary za małżowinami usznymi) za pomocą golarki elektrycznej.
- Nałożyć krem do depilacji przeznaczony dla skóry wrażliwej. Po 5 min usunąć krem za pomocą wilgotnej gazy.
5. Przygotowanie maski
- Przygotuj wcześniej maskę termoplastyczną dopasowaną do rozmiaru krzesła dla małp. W szczególności wywierć w części tylnej, która wystaje poza pionową długość krzesła, cztery otwory na śruby, aby można było ją przymocować do płyty szyjnej krzesła.
UWAGA: Maski termoplastyczne są bezpieczne i mogą być stosowane do unieruchomienia głowy pacjentów podczas radioterapii. Użyliśmy małej maski przeznaczonej dla dzieci i przycięliśmy ją do rozmiaru marmosetów. Maska ta mięknie po umieszczeniu w ciepłej wodzie o temperaturze 75 °C i twardnieje wraz ze spadkiem temperatury po wyjęciu z wody. - Do przeprowadzenia eksperymentów umieść zwierzęta w krześle dla naczelnych. Podeprzyj znieczulone zwierzę za pomocą płyt szyjnej i lędźwiowej, a następnie przymocuj zwierzę oraz płyty do krzesła.
- Rozgrzej maskę w gorącej wodzie, a następnie uformuj ją tak, aby pasowała do głowy marmoseta. Po wyjęciu maski z ciepłej wody odczekaj do obniżenia temperatury (mniej więcej do zakresu 50 °C), aby zapobiec oparzeniom, a następnie nałóż ją na głowę osobnika w celu formowania maski.
- Po ochłodzeniu i stwardnieniu zdejmij maskę ze zwierzęcia i wytnij w niej otwory w części górnej głowy oraz w miejscach uszu, aby odsłonić obszar przeznaczony do rozmieszczenia elektrod.
UWAGA: Po wykonaniu takiej maski można ją było wykorzystać u innych osobników.
6. Adaptacja do krzesła i maski (30 min/dzień przez 3 dni)
- Przyzwyczajaj zwierzę do krzesła w stanie czuwania, umieszczając je w krześle i nagradzając przez około 30 min. Powtarzaj tę procedurę przez 3 dni.
- Przyzwyczajaj zwierzę do unieruchomienia głowy za pomocą maski przez 2 dni.
UWAGA: Ten proces adaptacji został dostosowany do stanu poszczególnych osobników. Po adaptacji zwierzęta mogą tymczasowo stawiać opór podczas chwytania i zakładania maski na głowę, jednak po posadzeniu w krześle i unieruchomieniu głowy stają się spokojne. - Podczas adaptacji do krzesła oceniaj następujące parametry behawioralne: i) wydawanie dźwięków niepokoju lub alarmu, ii) odrzucanie oferowanej nagrody oraz iii) gwałtowne ruchy. Jeśli zaobserwuje się którekolwiek z tych zachowań, przerwij sesję na dany dzień, aby umożliwić marmoszecie stopniową adaptację do środowiska eksperymentalnego.
7. Rejestracja EEG (2 h/dobę)
- Przygotowanie obiektu
- Przymocuj klatkę transportową do małego okna klatki macierzystej i przenieś marmoseta z klatki macierzystej do klatki transportowej, zazwyczaj pojedynczo. Przykryj klatkę transportową tkaniną i przenieś ją do pomieszczenia eksperymentalnego.
- Fixacja głowy
- Chwyć marmoseta, używając rękawic ochronnych, i umieść go w specjalnym krześle.
- Załóż przygotowaną maskę na głowę marmoseta. Przełóż korpus śruby przymocowanej do krzesła przez otwór w masce i zablokuj go za pomocą śrub motylkowych.
- Lekko zabezpiecz głowę i maskę opaską tuż poniżej nasion.
UWAGA: Głowa obiektu nie wymagała całkowitego unieruchomienia, o ile elektrody nie były przemieszczane podczas ruchu. W związku z tym zastosowano tę samą maskę u wszystkich osobników.
- Wyznaczenie lokalizacji elektrod
- Wykorzystaj nasion, inion oraz płatki uszne jako punkty orientacyjne anatomiczne w celu wyznaczenia lokalizacji elektrod zgodnie z międzynarodową metodą 10-2032,33,34,35,36,37. Zmierz odległość między nasion a inion w linii środkowej za pomocą miary krawieckiej. Wyznacz lokalizację Cz w połowie tej odległości. Ustaw pozostałe elektrody (Fz, Pz, Oz, F3 lub F4), przyjmując 20% długości odcinka inion-nasion jako odstęp między elektrodami. Zaznacz pozycje elektrod na skórze głowy za pomocą dermatografu na bazie olejów.
- Przygotowanie skóry
- Przetrzyj zaznaczony obszar cienkim patyczkiem bawełnianym nasączonym alkoholem izopropylowym, aby usunąć zanieczyszczenia i sebum ze skóry głowy.
- Ustawienia elektrod
UWAGA: Wykonaj kroki 7.2.1-7.2.3 dla wszystkich pozycji elektrod, aby umieścić elektrody w punktach Fz, Cz, C3, C4, Pz, A1, A2 oraz F3 (lub F4).- Za pomocą przecinaka do rurek odetnij fragment rurki silikonowej o średnicy wewnętrznej 4 mm i średnicy zewnętrznej 7 mm o długości około 20 mm.
- Nałóż klej na krawędzie odciętej rurki i przyklej ją do skóry głowy.
- Wypełnij wnętrze rurki żelem do EEG za pomocą strzykawki z nieostrą igłą.
- Podłącz elektrodę referencyjną do Pz, a elektrody uziemiające do F3 lub F4 (Rysunek 1C).
- Wsuń elektrody do rurki i podłącz kabel elektrody do skrzynki wejściowej.
- Uruchom aplikację do rejestracji EEG, aby zmierzyć impedancję elektrod, i dostosuj parametry tak, aby impedancja wszystkich elektrod była poniżej 5 kΩ.
- Zwiąż kable elektrod w wiązkę, aby zredukować szumy.
- Podawaj nagrody podczas procedury unieruchomienia głowy oraz pomiędzy sesjami zadań, aplikując ręcznie 1-3 mL płynnej nagrody (gumy lub pożywki) za pomocą strzykawki.
- Określ nazwę pliku do zapisania w oprogramowaniu do rejestracji EEG i naciśnij przycisk Start Recording. Uruchom skrypt prezentacji bodźców natychmiast po rozpoczęciu rejestracji EEG. Naciśnij przycisk stop w programie do rejestracji EEG po zakończeniu wykonywania skryptu prezentacji bodźców, aby zakończyć wszystkie pomiary. Po zakończeniu rejestracji usuń elektrody i maskę na głowę.
- Chwyć zwierzęta i przenieś je z powrotem do klatek transportowych. Pozostaw rurki na skórze głowy; wszystkie rurki odpadły naturalnie w ciągu około 1 dnia.
UWAGA: W początkowym okresie stosowano aceton do rozpuszczenia kleju i usunięcia rurki po sesjach rejestracji; jednak wystąpiły przypadki uszkodzenia skóry, dlatego w dalszej kolejności zwierzęta przenoszono do klatek macierzystych bez usuwania rurek. W przeprowadzonych do tej pory kilkudziesięciu eksperymentach marmosety nie wykazały zainteresowania odpadłymi rurkami i nigdy nie doszło do ich przypadkowego połknięcia. - Bodźce
- Nagraj naturalne wołania proste i złożone w pomieszczeniu dla zwierząt lub pomieszczeniu eksperymentalnym od osobników marmosetów, które nie są wykorzystywane w późniejszych pomiarach EEG. Wyodrębnij z nagranych plików trzy gatunkowo specyficzne wołania proste i złożone (wołania Phee, Tsik-Ek oraz Tsik-String5).
- Oprócz bodźców w postaci wołań, stwórz biały szum za pomocą funkcji w oprogramowaniu programistycznym i wykorzystaj go jako bodziec.
- Stosując niniejszy protokół, wykorzystaj w eksperymencie trzy pliki dźwiękowe (16 bit, 48 kHz) z wołaniami marmosetów. Steruj zadaniem za pomocą niestandardowego skryptu.
UWAGA: Każdy blok zawiera 50 wołań dla każdego bodźca, co daje łącznie 200 wołań. Każdy blok rejestracji trwa około 10 min. Każdy uczestnik musi wykonać dwa bloki. Odstęp między wołaniami wynosi 3 s. Spośród czterech plików bodźców dźwiękowych (zob. Supplemental File 1), bodziec wołania Phee trwał około 2 s, natomiast pozostałe trzy trwały około 1 s. Wynikało to z faktu, że pojedyncze wołanie Phee jest nadal wołaniem długotrwałym (Rysunek 1D). - W każdym pliku bodźca dźwiękowego prawy kanał zawiera dane wołania marmoseta lub szumu, a lewy kanał zawiera sygnał wyzwalający dla początku bodźca. Prześlij ten sygnał wyzwalający do systemu rejestracji EEG za pomocą urządzenia synchronizującego i zarejestruj go jako czas zdarzenia.
8. Analiza danych
UWAGA: Do postprocesowania danych EEG wykorzystano oryginalny kod napisany w oprogramowaniu programistycznym oraz zestawie narzędzi, zgodnie z opisem poniżej (Plik uzupełniający 2)37.
- Wstępne przetwarzanie
- Ponowne odniesienie do połączonej referencji ucha.
- Filtr górnoprzepustowy przy 2 Hz.
- Epokowanie od 100 ms przed do 1000 ms po wystąpieniu bodźca.
- Korekta linii bazowej do średniej z 100-ms okresu przedbodźcowego. Odrzucanie artefaktów przy użyciu kryterium ±150 µV.
- Wykreślanie potencjałów wywołanych (ERP)
- Uśrednianie wszystkich danych z prób dla każdego badanego.
- Uzyskanie średnich fal grupowych poprzez uśrednienie danych wszystkich badanych.
- Aby porównać uśrednione ERP pomiędzy typami wołań a bodźcami szumowymi, zastosowano jednoczynnikową analizę wariancji (ANOVA), przyjmując bodźce jako czynnik międzygrupowy w odpowiedzi z elektrody Cz.
- Zastosowanie analizy porównań wielokrotnych post hoc metodą Tukeya.
- Wykreślanie perturbacji widmowych związanych z zdarzeniem (ERSP)
- Obliczanie ERSP w celu wizualizacji średniej zmiany mocy widmowej związanej z zdarzeniem w czasie w szerokim zakresie częstotliwości przy użyciu równania (1). Fk (f,t) to estymata widmowa próby k przy częstotliwości f i czasie t:
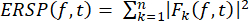 (1)
- Zastosowanie dekompozycji czasowo-częstotliwościowej aktywności przy użyciu sinusoidalnych przekształceń falkowych, z trzema cyklami długości przy najniższej częstotliwości (10 Hz), zwiększającymi się liniowo wraz z częstotliwością do 32 cykli przy najwyższej częstotliwości (120 Hz).
- Zdefiniowanie odpowiedzi początkowej i przejściowej w okresie 150 ms po wystąpieniu bodźca w zakresie 2-30 Hz oraz odpowiedzi trwałych w okresie 800 ms od 151 do 950 ms po wystąpieniu bodźca w zakresie 40-100 Hz.
- Aby przetestować różnice w odpowiedziach początkowych i trwałych w Fz i Cz pomiędzy wiekiem badanych a typami wołań, przeprowadzono dwuczynnikową analizę ANOVA, przyjmując typ wołania jako czynnik wewnątrzgrupowy, a wiek jako czynnik międzygrupowy.
- Obliczanie ERSP w celu wizualizacji średniej zmiany mocy widmowej związanej z zdarzeniem w czasie w szerokim zakresie częstotliwości przy użyciu równania (1). Fk (f,t) to estymata widmowa próby k przy częstotliwości f i czasie t:
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Najpierw wykreśliliśmy średnie potencjały wywołane (ERP) dla każdego bodźca słuchowego u marmosetów (Rysunek 2). Potencjał wywołany słuchowo (AEP) był wyraźny w warunku Noise, co odzwierciedlało wyraźny początek bodźców (patrz Rysunek 1D). Aby porównać uśrednione ERP pomiędzy typami wołań a bodźcami szumu, zastosowaliśmy jednoczynnikową analizę wariancji (ANOVA), przyjmując bodźce jako czynnik międzygrupowy dla odpowiedzi w punkcie Cz. Stwierdzono istot...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Punkty, na które należy zwrócić uwagę na temat znieczulenia
Próbowano podawać zarówno ketaminę, jak i ksylazynę, i chociaż są one przeciwbólowe, a zatem nadają się do długich, bolesnych zadań, marmozety mają tendencję do odczuwania spadku poziomu tlenu we krwi bez wdychania tlenu44. Krótko mówiąc, alfaxalon prawdopodobnie najlepiej nadaje się do bezbolesnych zadań, takich jak golenie lub tworzenie masek. Ponadto do golenia, które trwa tylko 10-15 minut, najbardziej odpowiedni...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Ta praca była wspierana przez Projekt Hakubi Uniwersytetu w Kioto, Grant-in-Aid for Challenging Research (Pioneering) (No.22K18644), Grant-in-Aid for Scientific Research (C) (No. 22K12745 ), Grant-in-Aid for Scientific Research (B) (No. 21H02851), oraz Grant-in-Aid for Scientific Research (A) (No. 19H01039). Serdecznie dziękujemy firmie Editage (www.editage.jp) za redakcję w języku angielskim.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Alfaxalone | Meiji Zdrowie zwierząt | Alfaxan | |
| Wzmacniacz | dla mózgu | BrainAmp | |
| Atropine | Fuso Przemysł farmaceutyczny | Siarczan atropiny do wstrzykiwań | |
| Edytor audio | Adobe | Adobe Audition | |
| Oprogramowanie do przetwarzania danych | MathWorks | MATLAB | wersja R2023a |
| Zestaw narzędzi do przetwarzania danych | Uniwersytet Kalifornijski-SanDiego | EEGLAB | |
| Zestaw narzędzi do przetwarzania danych | Uniwersytet Kalifornijski-Davis | ERPLAB | |
| Golarka elektryczna | Elektroda ER803PPA | ||
| Unikalna medyczna | UL-3010 | Powłoka AgCl (niestandardowa) | |
| Żel elektrodowy | Neurospec AG | V16 SuperVisc | |
| Skrzynka wejściowa elektrod | Produkty mózgowe | EIB64-DUO | 64ch |
| Klej | 3M | Scotch 7005S | |
| Krem do depilacji | Depilat Kracie | do skóry | |
| Isoflurane | Bussan Animal Health | ds isoflurane | |
| Guma w płynie | San-ei Yakuhin Boeki | Arabic Call SS | Guma arabska + woda |
| Płynne odżywianie | Nestlé Firma Nauk o Zdrowiu | Isocal 1.0 Junior | Formuła polimerowa |
| Maropitant | Zoetis | Cerenia roztwór | |
| Monitor Kamera | Intel | RealSense LiDAR Camera L515 | |
| Granulki małpy | Orientalne drożdże | SPS | |
| Krzesło naczelne | Natsume Seisakusho | Zamówienie wykonane | |
| Pulsoksymetry | Covident | Nellcor | PM10N |
| Makaron do przygotowywania skóry | Mammendorfer Institut fü r Physik und Medizin | NeuPrep | |
| Slicon tube | AsONE& | Phi; 4 x 7mm | |
| Głośnik | Fostex | PM0.3 | |
| Urządzenie synchronizujące | Brain Vision | StimTrak | |
| Maska termoplastyczna | CIVCO | MTAPU Typ Uniframe Maska termoplastyczna 2,4 mm |
Bibliografia
- Miller, C. T., et al. Marmosets: A neuroscientific model of human social behavior. Neuron. 90 (2), 219-233 (2016).
- Okano, H., Hikishima, K., Iriki, A., Sasaki, E. The common marmoset as a novel animal model system for biomedical and neuroscience research applications. Semin Fetal Neonatal Med. 17 (6), 336-340 (2012).
- t'Hart, B. A., Abbott, D. H., Nakamura, K., Fuchs, E. The marmoset monkey: a multi-purpose preclinical and translational model of human biology and disease. Drug Discov Today. 17 (21-22), 1160-1165 (2012).
- Bezerra, B. M., Souto, A. Structure and usage of the vocal repertoire of Callithrix jacchus. Int J Primatol. 29 (3), 671-701 (2008).
- Agamaite, J. A., Chang, C. J., Osmanski, M. S., Wang, X. A quantitative acoustic analysis of the vocal repertoire of the common marmoset (Callithrix jacchus). J Acoust Soc Am. 138 (5), 2906-2928 (2015).
- Pistorio, A. L., Vintch, B., Wang, X. Acoustic analysis of vocal development in a New World primate, the common marmoset (Callithrix jacchus). J Acoust Soc Am. 120 (3), 1655-1670 (2006).
- Grijseels, D. M., Prendergast, B. J., Gorman, J. C., Miller, C. T. The neurobiology of vocal communication in marmosets. Ann N. Y. Acad Sci. 1528 (1), 13-28 (2023).
- Eliades, S. J., Wang, X. Neural substrates of vocalization feedback monitoring in primate auditory cortex. Nature. 453 (7198), 1102-1106 (2008).
- Eliades, S. J., Wang, X. Comparison of auditory-vocal interactions across multiple types of vocalizations in marmoset auditory cortex. J Neurophysiol. 109 (6), 1638-1657 (2013).
- Eliades, S. J., Wang, X. Contributions of sensory tuning to auditory-vocal interactions in marmoset auditory cortex. Hear Res. 348, 98-111 (2017).
- Eliades, S. J., Wang, X. Neural correlates of the lombard effect in primate auditory cortex. J Neurosci. 32 (31), 10737-10748 (2012).
- Tsunada, J., Wang, X., Eliades, S. J. Multiple processes of vocal sensory-motor interaction in primate auditory cortex. Nat Commun. 15 (1), 3093(2024).
- Miller, C. T., Thomas, A. W., Nummela, S. U., de la Mothe, L. A. Responses of primate frontal cortex neurons during natural vocal communication. J Neurophysiol. 114 (2), 1158-1171 (2015).
- Roy, S., Zhao, L., Wang, X. Distinct neural activities in premotor cortex during natural vocal behaviors in a New World Primate, the common marmoset (Callithrix jacchus). J Neurosci. 36 (48), 12168-12179 (2016).
- Wang, X., Merzenich, M. M., Beitel, R., Schreiner, C. E. Representation of a species-specific vocalization in the primary auditory cortex of the common marmoset: temporal and spectral characteristics. J Neurophysiol. 74 (6), 2685-2706 (1995).
- Zeng, H. -h, et al. Distinct neuron populations for simple and compound calls in the primary auditory cortex of awake marmosets. National Science Review. 8 (11), nwab126(2021).
- Sadagopan, S., Temiz-Karayol, N. Z., Voss, H. U. High-field functional magnetic resonance imaging of vocalization processing in marmosets. Sci Rep. 5, 10950(2015).
- Kato, M., et al. Individual identity and affective valence in marmoset calls: in vivo brain imaging with vocal sound playback. Anim Cogn. 21 (3), 331-343 (2018).
- Jafari, A., et al. A vocalization-processing network in marmosets. Cell Rep. 42 (5), 112526(2023).
- Papanicolaou, A. C., et al. Differential brain activation patterns during perception of voice and tone onset time series: a MEG study. Neuroimage. 18 (2), 448-459 (2003).
- Capilla, A., Belin, P., Gross, J. The early spatio-temporal correlates and task independence of cerebral voice processing studied with MEG. Cereb Cortex. 23 (6), 1388-1395 (2012).
- Belin, P., Zatorre, R. J., Lafaille, P., Ahad, P., Pike, B. Voice-selective areas in human auditory cortex. Nature. 403 (6767), 309-312 (2000).
- Perrodin, C., Kayser, C., Abel, T. J., Logothetis, N. K., Petkov, C. I. Who is that? Brain networks and mechanisms for identifying individuals. Trends Cogn Sci. 19 (12), 783-796 (2015).
- Pernet, C. R., et al. The human voice areas: Spatial organization and inter-individual variability in temporal and extra-temporal cortices. Neuroimage. 119, 164-174 (2015).
- Chen, X., Pan, Z., Wang, P., Zhang, L., Yuan, J. EEG oscillations reflect task effects for the change detection in vocal emotion. Cogn Neurodyn. 9 (3), 351-358 (2015).
- Hiyoshi-Taniguchi, K., et al. EEG correlates of voice and face emotional judgments in the human brain. Cogn Comput. 7 (1), 11-19 (2015).
- Lévêque, Y., Schön, D. Listening to the human voice alters sensorimotor brain rhythms. PloS One. 8, e80659(2013).
- Liu, T., et al. Electrophysiological insights into processing nonverbal emotional vocalizations. NeuroReport. 23, 108-112 (2012).
- Bruneau, N., et al. Early neurophysiological correlates of vocal versus non-vocal sound processing in adults. Brain Res. 1528, 20-27 (2013).
- Flinker, A., et al. Single-Trial speech suppression of auditory cortex activity in humans. J Neurosci. 30, 16643-16650 (2010).
- Greenlee, J. D. W., et al. Human auditory cortical activation during self-vocalization. PloS One. 6 (3), e14744(2011).
- Itoh, K., Konoike, N., Iwaoki, H., Igarashi, H., Nakamura, K. A novel "dip-in electrode" method for electrode application to record noninvasive scalp electroencephalograms and evoked potentials in an awake common marmoset. Neuroimage: Reports. 2 (3), 100116(2022).
- Itoh, K., et al. Cerebral cortical processing time is elongated in human brain evolution. Sci Rep. 12 (1), 1103(2022).
- Itoh, K., Nejime, M., Konoike, N., Nakamura, K., Nakada, T. Evolutionary elongation of the time window of integration in auditory cortex: macaque vs. human comparison of the effects of sound duration on auditory evoked potentials. Front Neurosci. 13, 630(2019).
- Itoh, K., Iwaoki, H., Konoike, N., Igarashi, H., Nakamura, K. Noninvasive scalp recording of the middle latency responses and cortical auditory evoked potentials in the alert common marmoset. Hear Res. 405, 108229(2021).
- Itoh, K., Nejime, M., Konoike, N., Nakada, T., Nakamura, K. Noninvasive scalp recording of cortical auditory evoked potentials in the alert macaque monkey. Hear Res. 327, 117-125 (2015).
- Konoike, N., et al. Comparison of noninvasive, scalp-recorded auditory steady-state responses in humans, rhesus monkeys, and common marmosets. Sci Rep. 12 (1), 9210(2022).
- Eliades, S. J., Miller, C. T. Marmoset vocal communication: Behavior and neurobiology. Dev Neurobiol. 77 (3), 286-299 (2017).
- Ray, S., Hsiao, S. S., Crone, N. E., Franaszczuk, P. J., Niebur, E. Effect of stimulus intensity on the spike-local field potential relationship in the secondary somatosensory cortex. J Neurosci. 28 (29), 7334-7343 (2008).
- Leonard, M. K., et al. Large-scale single-neuron speech sound encoding across the depth of human cortex. Nature. 626 (7999), 593-602 (2024).
- Dubey, A., Ray, S. Comparison of tuning properties of gamma and high-gamma power in local field potential (LFP) versus electrocorticogram (ECoG) in visual cortex. Sci Rep. 10 (1), 5422(2020).
- Ray, S., Crone, N. E., Niebur, E., Franaszczuk, P. J., Hsiao, S. S. Neural correlates of high-gamma oscillations (60-200 Hz) in Macaque local field potentials and their potential implications in electrocorticography. Journal Neurosci. 28 (45), 11526-11536 (2008).
- Buzsáki, G., Anastassiou, C. A., Koch, C. The origin of extracellular fields and currents--EEG, ECoG, LFP and spikes. Nat Rev Neurosci. 13 (6), 407-420 (2012).
- Konoike, N., Miwa, M., Ishigami, A., Nakamura, K. Hypoxemia after single-shot anesthesia in common marmosets. J Med Primatol. 46 (3), 70-74 (2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
