Ten protokół opisuje model zwierzęcy do badania, jak przeciwności losu we wczesnym okresie życia, sprowokowane przez zubożałe środowisko i nieprzewidywalną opiekę matki we wczesnym okresie poporodowym, wpływają na rozwój mózgu i przyszłe ryzyko zaburzeń psychicznych.
Artykuł metodologiczny
Ograniczone ściółkowanie i gniazdowanie jako model przeciwności losu we wczesnym okresie życia u myszy
W tym artykule
Podsumowanie
Streszczenie
Przeciwności losu we wczesnym okresie życia (ELA), takie jak znęcanie się, zaniedbanie, brak zasobów i nieprzewidywalne środowisko domowe, są znanym czynnikiem ryzyka rozwoju zaburzeń neuropsychiatrycznych, takich jak depresja. Modele zwierzęce ELA zostały wykorzystane do zbadania wpływu przewlekłego stresu na rozwój mózgu i zazwyczaj polegają na manipulowaniu jakością i/lub ilością opieki nad matką, ponieważ jest to główne źródło doświadczeń we wczesnym okresie życia u ssaków, w tym ludzi. W tym miejscu przedstawiono szczegółowy protokół stosowania modelu Limited Bedding and Nesting (LBN) u myszy. Model ten naśladuje środowisko o niskich zasobach, które prowokuje fragmentaryczne i nieprzewidywalne wzorce opieki nad matką w krytycznym oknie rozwojowym (dni po porodzie 2-9) poprzez ograniczenie ilości materiałów gniazdowych podawanych matce w celu zbudowania gniazda dla jej młodych i oddzielenie myszy od ściółki za pomocą siatki w klatce. Przedstawiono reprezentatywne dane w celu zilustrowania zmian w zachowaniu matki, a także zmniejszonej masy ciała młodych i długoterminowych zmian w podstawowym poziomie kortykosteronu, które wynikają z modelu LBN. Wykazano, że jako dorośli dzieci wychowane w środowisku LBN wykazują nieprawidłową reakcję na stres, deficyty poznawcze i zachowania podobne do anhedonii. Dlatego model ten jest ważnym narzędziem do określenia, w jaki sposób dojrzewanie wrażliwych na stres obwodów mózgowych jest zmieniane przez ELA i skutkuje długoterminowymi zmianami behawioralnymi, które nadają podatność na zaburzenia psychiczne.
Wprowadzenie
Wczesny okres poporodowy to krytyczne okno rozwojowe, w którym wpływy środowiska mogą zmienić trajektorię rozwoju. Na przykład przeciwności losu we wczesnym okresie życia (ELA) mogą zmienić rozwój mózgu, aby wywołać długotrwałe zmiany w funkcjach poznawczych i emocjonalnych. Przykłady ELA obejmują przemoc fizyczną lub emocjonalną, zaniedbanie, niewystarczające zasoby i nieprzewidywalne środowisko domowe występujące w dzieciństwie lub okresie dojrzewania1. Wiadomo, że ELA jest czynnikiem ryzyka rozwoju zaburzeń, takich jak depresja, zaburzenia związane z używaniem substancji, zespół stresu pourazowego (PTSD) i lęk2,3,4,5. Jest to ważne, biorąc pod uwagę, że poziom ubóstwa wśród dzieci w USA wzrósł ostatnio ponad dwukrotnie, z 5,2% w 2021 r. do 12,4% w 2022 r6, i chociaż ubóstwo samo w sobie niekoniecznie jest ELA, zwiększa prawdopodobieństwo wystąpienia różnych rodzajów ELA7.
Modele zwierzęce od dawna są niezbędne do zrozumienia wpływu stresu we wczesnym okresie życia na rozwój mózgu i wyniki dorosłych. Dwa główne modele zwierzęce wykorzystywane w ostatnich latach do analizy tego zjawiska to separacja matek (MS) i zubożałe środowisko wywołane ograniczoną ilością ściółki i materiałów do budowy gniazd (LBN). Stwardnienie rozsiane zostało opracowane jako model deprywacji rodzicielskiej8. W nim matki gryzoni są zabierane od swoich młodych, zwykle na kilka godzin, każdego dnia, aż do odsadzenia8. Stwierdzono, że paradygmat stwardnienia rozsianego skutkuje zachowaniami depresyjnymi i lękowymi w wieku dorosłym9, a także nieprawidłową reakcją na przewlekły stres10,11. Z drugiej strony, model LBN, po raz pierwszy opracowany w laboratorium Baram 12, nie oddziela matki od szczeniąt, ale raczej modyfikuje środowisko, w którym młode są hodowane, naśladując środowisko o niskich zasobach12,13. Zmniejszenie ilości materiału do gniazdowania i uniemożliwienie bezpośredniego dostępu do ściółki w tym modelu powoduje zakłócenie opieki nad matką ze strony matek3. Ponieważ solidna i przewidywalna opieka matczyna jest niezbędna do prawidłowego rozwoju poznawczych i emocjonalnych obwodów mózgu14, fragmentaryczna opieka matczyna z LBN może skutkować szeregiem wyników, w tym nadaktywną osią podwzgórze-przysadka-nadnercza (HPA), przesuniętą równowagą pobudzająco-hamującą w wielu regionach mózgu, zwiększonym poziomem hormonu uwalniającego kortykotropinę (CRH) i zachowaniem podobnym do depresyjnego u potomstwa13,15,16,17,18,19.
Dokładny mechanizm, dzięki któremu ELA powoduje zwiększone ryzyko zaburzeń neuropsychiatrycznych, nie jest w pełni zrozumiały. Uważa się, że jest to związane ze zmianami w obwodach osi HPA19,20, a ostatnie dowody wskazują, że może to być spowodowane zmianami w przycinaniu synaps mikrogleju19. Wykazano, że model LBN jest kluczowym narzędziem do zrozumienia wpływu środowiska okołoporodowego na rozwój mózgu i długoterminowe wyniki behawioralne. Chociaż model ten został początkowo opracowany dla szczurów, został również zaadaptowany dla myszy, aby wykorzystać istniejące narzędzia transgeniczne12,13. Warto zauważyć, że model jest bardzo podobny u obu gatunków i prowokuje wysoce zbieżne wyniki, takie jak zmiany w osi HPA, deficyty poznawcze i zachowania podobne do depresji, podkreślając w ten sposób jego międzygatunkową użyteczność i potencjał translacyjny. W tym artykule szczegółowo opisano, w jaki sposób zastosować model ograniczonego ściółkowania i gniazdowania u myszy, zbierając i analizując zachowania matek i wyniki potomstwa w celu zweryfikowania skuteczności modelu i oczekiwanych wyników.
Protokół
Wszystkie procedury z udziałem zwierząt zostały przeprowadzone zgodnie z wytycznymi National Institutes of Health Guide for the Care and Use of Laboratory Animals i zatwierdzone przez Institutional Animal Care and Use Committee z Georgia State University (numer zatwierdzenia A24011). Myszy były hodowane i utrzymywane w Animal Facilities na Georgia State University. Eksperymenty przeprowadzono na szczepie C57BL/6J w okresie okołoporodowym (dni postnatalne [P] 2-10), włączając samce i samice. Odczynniki i sprzęt użyte w tym badaniu są wymienione w Tabeli materiałów.
1. Przygotowanie materiałów
- Dotnij siatkową przegrodę zgodnie z wymiarami klatki, pozostawiając 3 cm zapasu na dłuższych bokach.
UWAGA: Siatka podana w tabeli materiałów jest docięta przez producenta. - Zagiń krawędzie, w tym zapas materiału, w taki sposób, aby utworzyć platformę dopasowaną precyzyjnie do krawędzi klatki, znajdującą się na wysokości ~2,5 cm nad podłożem. Pozwoli to na przesiąkanie moczu i kału przez przegrodę siatkową, uniemożliwiając jednocześnie zwierzętom dostanie się do ściółki z kolb kukurydzy. Na koniec upewnij się, że wszystkie ostre krawędzie są zagięte do dołu, aby zapobiec zranieniu zwierząt.
UWAGA: Przegrody siatkowe są wielorazowego użytku i przed każdym użyciem powinny być dokładnie czyszczone gorącą wodą z mydłem, a następnie spryskane 70% etanolem. - Ustaw kamery na statywach i przygotuj system nagrywania.
UWAGA: Zaleca się stosowanie oprogramowania do zarządzania wideo. Wynikiem tych nagrań są pliki .mp4, które są automatycznie dzielone na 1 h segmenty. - Ustaw parametry na nagrywanie ciągłe.
UWAGA: Dodatkowo zalecane ustawienia to rozdzielczość 1920 x 1080 oraz 30 klatek/s. - Skonfiguruj pliki .mp4 tak, aby były dzielone na 1 h segmenty, jeśli nie jest to robione automatycznie przez oprogramowanie do zarządzania wideo.
- W przypadku analizy okresu z wyłączonym światłem, należy zastosować oświetlenie w podczerwieni.
UWAGA: Aby zmniejszyć odblaski na ściankach klatki, zaleca się wyłączenie podczerwieni (IR) w kamerze. Zamiast tego, podczas nagrywania w fazie ciemnej, należy używać zewnętrznych naświetlaczy IR w pomieszczeniu.
2. Paradygmat ograniczonej ściółki i gniazdowania (LBN)
- Sparuj 1-4 samice z jednym samcem hodowlanym przetrzymywanym osobno.
UWAGA: Zalecany wiek dla pierwszego parowania samic eksperymentalnych to P75. Idealne jest wykorzystanie samic nulliparnych, jednak w sytuacjach, gdy nie jest to możliwe, np. w przypadku cennych linii myszy transgenicznych, samice multiparne mogą kontynuować rozród przez około cztery miesiące później. Zaleca się, choć nie jest to wymagane, codzienne sprawdzanie obecności czopów pochwowych w celu potwierdzenia dnia kopulacji (dzień embrionalny [E]0).- Gdy samice zajdą w ciążę, należy zminimalizować wszelkie zakłócenia.
UWAGA: Samice multiparne mogą zazwyczaj być ponownie wykorzystywane do uzyskania do pięciu miotów przed spadkiem płodności. Jeśli samice są ponownie wykorzystywane w eksperymencie, powinny być preferencyjnie przypisane do tej samej grupy warunków za każdym razem lub przenoszone tylko z grupy kontrolnej (Control) do LBN, ale nigdy odwrotnie, aby uniknąć ewentualnych resztkowych, długotrwałych efektów LBN u samicy.
- Gdy samice zajdą w ciążę, należy zminimalizować wszelkie zakłócenia.
- W dniu E17 (lub, jeśli nie sprawdzano czopów, gdy samice wyglądają ewidentnie na ciężarne), przenieś samice do ich własnych standardowych klatek z pleksiglasu i podaj im jeden bawełniany nestlet (5 x 5 cm) do zbudowania gniazda.
UWAGA: W celu przygotowania warunków dla grup kontrolnej i LBN optymalne jest przeniesienie odseparowanych samic do cichego, małego pomieszczenia, oddzielonego od głównego pomieszczenia z kolonią, z 12-godzinnym cyklem światła/ciemności i minimalnymi zakłóceniami ze strony personelu. - Zapisz datę narodzin (około E19).
- W dniu P2 policz młode i określ ich płeć. Losowo przypisz mioty do warunków LBN lub kontrolnych (jeśli jest to pierwszy miot samicy). Interakcja z młodymi powinna zostać zakończona od 1 do 4 h po zapaleniu świateł.
- Ostrożnie przenieś młode do nowej, czystej klatki w celu segregacji według płci. Odległość anogenitalna między odbytem a narządami płciowymi jest większa u samców niż u samic i może służyć jako wyróżnik.
- Rozdziel samce i samice na grupy, aby je policzyć.
- Wyeliminuj mioty liczące więcej niż 8 młodych i odrzuć mioty z mniej niż 4 młodymi. Optymalna wielkość miotu wynosi 4-8 młodych, ponieważ każda liczba poza tym zakresem może zakłócić rozkład opieki macierzyńskiej podczas badania.
UWAGA: Zmienne, na które może wpłynąć wielkość miotu, to masa ciała młodych, możliwość karmienia oraz interakcje matka-młode, co mogłoby wprowadzić błąd do eksperymentu. Idealnie myszy nie powinny być przekazywane do adopcji zastępczej (cross-fostered), ponieważ mają mniejszą szansę na przeżycie niż szczury.
- Przygotuj warunki kontrolne i LBN zgodnie z Rysunkiem 1.
- Control: Użyj standardowej klatki typu shoebox dla myszy (19,4 cm x 13,0 cm x 38,1 cm) z ~220 g ściółki z kolb kukurydzy (zależnie od wymiarów klatki, dążąc do wysokości ~1 cm) i jednego standardowego kwadratowego bawełnianego nestletu (5 x 5 cm).
- Aby pomóc myszom zaaklimatyzować się w tym nieznanym środowisku, umieść jedną z ich granulek odchodów ze starej klatki w każdym rogu nowej klatki. Dodatkowo, umieść niewielką (wielkości monety) ilość używanego bawełnianego nestletu z poprzedniej klatki na nowym nestlecie.
- LBN: Włóż wcześniej przygotowany przegrodowy siatkowy separator do standardowej klatki shoebox z ~110 g ściółki z kolb kukurydzy (dążąc do wysokości ~0,5 cm). Siatka powinna zapobiegać bezpośredniemu kontaktowi myszy ze ściółką z kolb kukurydzy.
- Na koniec dodaj połowę kwadratu bawełnianego nestletu (2,5 x 5 cm). Powtórz wszystkie powyższe kroki, aby pomóc w aklimatyzacji.
UWAGA: Zaleca się utrzymywanie klatek shoebox na standardowych, niewentylowanych regałach, ponieważ wykazano, że taka konfiguracja jest cicha i nie indukuje hipotermii u młodych wychowywanych w klatkach LBN21. Może to jednak nie mieć miejsca przy zwiększonym przepływie powietrza w klatkach wentylowanych; dlatego badacze powinni zmierzyć poziomy hałasu i temperaturę wewnętrzną młodych w swoim systemie, jeśli używają klatek wentylowanych.
- Na koniec dodaj połowę kwadratu bawełnianego nestletu (2,5 x 5 cm). Powtórz wszystkie powyższe kroki, aby pomóc w aklimatyzacji.
- Control: Użyj standardowej klatki typu shoebox dla myszy (19,4 cm x 13,0 cm x 38,1 cm) z ~220 g ściółki z kolb kukurydzy (zależnie od wymiarów klatki, dążąc do wysokości ~1 cm) i jednego standardowego kwadratowego bawełnianego nestletu (5 x 5 cm).
- Przenieś młode do wyznaczonej klatki i umieść je na nestlecie. Następnie umieść samicę w klatce przodem do młodych, co pomoże jej szybciej zauważyć ich obecność. Upewnij się, że zapewniono wystarczającą ilość pokarmu i wody na co najmniej 8 dni, aby uniknąć niepokojenia zwierząt w klatce aż do zakończenia eksperymentu w dniu P10.
- Ustaw kamerę na statywie przed klatką, aby zapewnić wyraźny widok boczny na samicę i jej młode. Opcjonalnie, rozmieść lustra wokół klatki, aby lepiej uchwycić wszystkie kąty. Chociaż do analizy potrzebna jest tylko 1 h nagrania wideo na dzień, kamera jest ustawiona na ciągły zapis 24/7 podczas eksperymentu, aby można było monitorować wszelkie zakłócenia.
UWAGA: Myszy mogą być również obserwowane osobiście, a zachowania macierzyńskie mogą być oceniane ręcznie, choć preferowane jest nagrywanie wideo, aby zapobiec zakłóceniom wynikającym z obecności eksperymentatora w pomieszczeniu. W przypadku stosowania regałów wentylowanych może być konieczne zastosowanie innej procedury rozmieszczenia kamer do rejestracji opieki macierzyńskiej niż ta opisana tutaj. - Rankiem w dniu P10 przywróć wszystkie zwierzęta do standardowych warunków klatkowych (idealnie identycznych z powyższymi warunkami kontrolnymi) i zważ młode.
- Traktuj wszystkie młode w ten sam sposób i odsadź je w dniu P21 do grup od 2 do 5 jednopłciowych rodzeństwa z jednego miotu.
UWAGA: Dąż do tego, aby jednopłciowe rodzeństwo z jednego miotu mieszkało razem, jeśli to możliwe, ale w razie potrzeby umieszczaj razem jednopłciowe potomstwo z różnych miotów w tych samych warunkach. Zaleca się unikanie wspólnego pomieszczenia potomstwa z grupy kontrolnej i LBN (patrz Yang et al. w kwestii wpływu składu grupy klatkowej na fenotypy behawioralne22).

Rycina 1: Przykład konfiguracji klatek. Klatka po lewej stronie obrazu przedstawia standardową klatkę kontrolną (CTL) zawierającą pełną ilość ściółki i pełny nestlet. Klatka po prawej stronie przedstawia konfigurację z ograniczoną ilością ściółki i materiału do gniazdowania (LBN), z połową ilości ściółki, połową nestleta oraz siatkową przegrodą oddzielającą zwierzęta od ściółki. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
3. Ocena zachowań macierzyńskich
- Mimo że w tym układzie zbierane są nagrania ciągłe, należy analizować tylko 1 h z okresu P3 do P6. Zaleca się analizę filmów nagranych nie wcześniej niż 1 h po zmianie oświetlenia, aby umożliwić habituację, oraz analizę filmów z tej samej godziny każdego dnia.
UWAGA: Okres od P3 do P6 zazwyczaj wykazuje największe różnice w opiece macierzyńskiej wynikające z LBN; dlatego analiza tylko tych dni jest wystarczająca. Sugerowany czas obserwacji/nagrywania pozwala na uchwycenie aktywności po przejściu z cyklu aktywnego do nieaktywnego lub odwrotnie. Jednak faza nieaktywna jest czasem, w którym samica najchętniej wykazuje zachowania opiekuńcze i wcześniej wykazano, że zawiera ona największe różnice między grupami w zachowaniu macierzyńskim3.
UWAGA: Nagrania z P2 należy przeprowadzić później niż w pozostałe dni, ponieważ myszy potrzebują co najmniej 1 h na habituację po zmianie klatki. Jeśli nie jest to zmienna interesująca badacza, dzień ten należy wykluczyć z analizy. - Wszystkie zachowania należy ocenić zgodnie z Tabelą 1. Zazwyczaj zachowania są oceniane przez pierwsze 50 min od rozpoczęcia czasu zbierania danych.
UWAGA: Można to zrobić ręcznie lub elektronicznie, używając oprogramowania Behavioral Observation Research Interactive Software (BORIS, oprogramowanie open-source) lub podobnego rodzaju programu. Poniższe instrukcje dotyczą oceny ręcznej i mogą zostać dostosowane do dowolnego wybranego oprogramowania. - W wydrukowanej tabeli należy zapisywać zaobserwowane zachowanie za pomocą skrótu, czas rozpoczęcia i czas trwania epizodu oraz wszelkie uwagi opisowe. Na przykład, jeśli samica aktywnie karmi młode, a następnie opuszcza gniazdo, podczas gdy młode nadal są do niej przyczepione, należy odnotować to jako AN, a następnie O. Opis młodych (i ich liczba), które nadal są przyczepione, powinien zostać zapisany jako uwaga z boku, na wypadek gdyby było to później potrzebne.
UWAGA: Jakiekolwiek zachowanie trwające krócej niż 3 s nie jest analizowane. Reguła ta pomaga odfiltrować chwilowe zachowania wynikające z zakłóceń zewnętrznych, takich jak hałas w otoczeniu. Wyjątek stanowi sytuacja, gdy występuje widoczna przerwa w epizodzie AN (np. z powodu dużego ruchu lub przeciągnięcia się), która jest szybko wznowiona. W takim przypadku odnotowanym zachowaniem jest AN, a następnie N-AN, zgodnie z opisem w Tabeli 1. - W przypadku jednoczesnego wystąpienia wielu zachowań, należy zapisać to najbardziej aktywne. Przykładem jest sytuacja, gdy samica karmi młode w pozycji niskiej, ale później zaczyna je lizać i pielęgnować; wówczas odnotowuje się koniec LN, a kolejne zachowanie należy oznaczyć jako LG z uwagą, że miało ono miejsce podczas LN.
| Typ zachowania | Skrót | Opis | ||||
| Lizanie / pielęgnacja (grooming) | LG | Matka zajmuje się lizaniem/pielęgnacją swoich młodych. | ||||
| Aktywna opieka pielęgniarska | AN | Suka karmi szczenięta w pozycji stojącej, z wygiętym grzbietem. | ||||
| Nowoczesne pielęgniarstwo aktywne | N-AN | Zachowanie to jest stosowane konkretnie w sytuacji, gdy samica przerywa karmienie, ale szybko do niego powraca. Jest to wyjątek od reguły 3 sekund. | ||||
| Niska pielęgnacja | LN | Suka aktywnie karmi szczenięta, jednak jej grzbiet jest niski lub niemal płaski. Zachowanie to powszechnie występuje po pewnym czasie od wystąpienia AN. | ||||
| Pielęgniarstwo przyłóżkowe | SN | Suka leży na boku podczas karmienia (znane również jako karmienie pasywne). | ||||
| Poza gniazdem | O | Samica nie znajduje się w gnieździe i nie przyjmuje pokarmu ani wody. Można to zaobserwować podczas jej spacerowania po klatce lub eksploracji otoczenia. | ||||
| Jedzenie/picie | E | Matka oddaliła się od gniazda, aby zjeść lub napić się. | ||||
| Pielęgnacja ciała (self-grooming) | SG | Suka pielęgnuje się. | ||||
| Przenoszenie szczeniąt | C | Samica przenosi młode, zazwyczaj w celu ich powrotu do gniazda. | ||||
| Budowa gniazda | NB | Bóbr aktywnie buduje lub przenosi gniazdo. | ||||
| Przesuń się na gniazdo | M | Samica porusza się w gnieździe. Objawia się to interakcjami samicy z młodymi, które różnią się od LG lub jakiejkolwiek formy karmienia, np. w postaci wąchania, stania na tylnych łapach (rearing) lub nadeptywania na młode. | ||||
Tabela 1: Opis zachowań związanych z opieką macierzyńską.
4. Analiza danych dotyczących zachowań macierzyńskich
- Zestaw wyniki punktacji w arkuszu kalkulacyjnym.
- Jeśli filmy były analizowane elektronicznie, usuń zachowania z epizodami trwającymi krócej niż 3 s, zgodnie z opisem w kroku 3.
- Oblicz średnią długość epizodu, średnią częstotliwość oraz całkowity czas trwania lizania i pielęgnacji dla każdego dnia obserwacji.
UWAGA: Statystyka opisowa może być przeprowadzona dla dowolnego z punktowanych zachowań, jednak lizanie i pielęgnacja zazwyczaj wykazują najbardziej wyraźne zaburzenia pod kątem fragmentacji przez LBN (tj. krótsze i częstsze epizody). Zmienne te można analizować jako średnią z okresu P3-P6 lub jako pomiary powtarzane w zależności od dnia, aby zbadać ewentualne zmiany w czasie, jeśli jest to przedmiotem zainteresowania.
5. Obliczanie entropii
UWAGA: Entropię, czyli nieprzewidywalność zachowań opiekuńczych matki, oblicza się w oparciu o metodę zaproponowaną przez Vegetabile i wsp.23. Metoda ta opiera się na założeniu, że zachowania opiekuńcze matki działają jak łańcuch Markowa, który może być wykorzystany do oszacowania tempa entropii sekwencji behawioralnej. Sekwencję zachowań każdej matki charakteryzuje empiryczna macierz przejść ij> i,j = 1…7 prawdopodobieństw warunkowych przejścia z jednego zachowania (i) do innego zachowania (j), a tempo entropii oblicza się na tej podstawie, jak opisano wcześniej3,23 i zgodnie z poniższym wzorem:
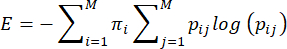
gdzie pij to prawdopodobieństwo warunkowe, że po zaobserwowaniu u matki zachowania i, jako następne zostanie zaobserwowane zachowanie j, πi to częstotliwość występowania zachowania i, a M (=7) to całkowita liczba różnych zachowań. W kwestii teoretycznych podstaw równań odsyłamy do pracy Vegetabile i wsp.23; tutaj nacisk położono na zastosowanie tej metody w modelu LBN.
- Aby to obliczyć, przygotuj format wymagany do analizy.
- Połącz AN, LN, SN i N-AN w jedną zmienną o nazwie N, sumując czasy ich trwania, ponieważ wszystkie one dotyczą karmienia.
UWAGA: Opis zachowań opiekuńczych matki znajduje się w Tabeli 1. - Dodaj zachowania niezwiązane z czynnościami skierowanymi do siebie lub do młodych (M i O) do kategorii O.
- Wprowadź oddzielnie LG, E, SG, C i NB, aby uzyskać łącznie 7 rodzajów zachowań.
- Połącz AN, LN, SN i N-AN w jedną zmienną o nazwie N, sumując czasy ich trwania, ponieważ wszystkie one dotyczą karmienia.
- Utwórz arkusz kalkulacyjny z kolumnami w następującej kolejności: Mouse ID, Litter ID, Litter #, Treatment, Day, Time, Behavior i Status.
- W kolumnie mouse ID wpisz linię/genotyp matki.
- W kolumnie litter ID użyj identyfikatora matki, a następnie numeru miotu.
- W kolumnie litter # wskaż liczbę miotów, które miała matka.
- Upewnij się, że w kolumnie treatment wpisano LBN lub Control, zgodnie z warunkami, w jakich znajdowały się zwierzęta.
- W kolumnie day wskaż odpowiadający analizowany dzień postnatalny.
- W kolumnie time wskaż znacznik czasu w wideo, w którym zachowanie się rozpoczęło i zakończyło (względem początku nagrania).
- Wybierz zachowanie spośród siedmiu opisanych wcześniej (N, O, LG, E, SG, C i NB) (Tabela 1).
- Oznacz dwa rodzaje statusów: START i STOP. W związku z tym każde zachowanie pojawi się dwukrotnie; pierwszy zapis oznacza start, a drugi stop.
- Zgodnie z tym formatem wprowadź informacje ze wszystkich analizowanych dni.
- W środowisku R zaimportuj zbiory danych sformatowane w opisany wyżej sposób.
- Zainstaluj pakiety dostępne pod adresem https://github.com/bvegetabile/entropyRate.
UWAGA: Uruchomienie tego kodu skutkuje utworzeniem folderu o nazwie LBN; niezależnie od warunków, folder ten zawiera obliczoną entropię. Dodatkowo, entropię z każdego dnia można następnie uśrednić dla każdego obiektu w dniach P3-P6 i porównać między grupami.
Wyniki
Reprezentatywne wyniki pokazują, jak ELA, wywołana przez zubożone środowisko w klatkach LBN, wpływa na opiekę macierzyńską oraz fizjologiczne skutki u potomstwa. Dzienną entropię zachowań opieki macierzyńskiej w grupie LBN jest wyższa w dniach P3-P6 (F1,58 = 7.21, p = 0.0094; Rysunek 2A), podobnie jak średnia entropia każdej samicy w tym okresie (t15 = 3.03, p = 0.0085; Rysunek 2B). Co istotne, nie stwierdzono istotnej różnicy w średnim tempie entropii między różnymi miotami tej samej samicy w obrębie tej samej grupy badawczej (F1.699,4.247 = 0.57, p = 0.58; Rysunek 2C), co sugeruje, że tempo entropii może być cechą stosunkowo stabilną dla każdej samicy. Wśród wszystkich zachowań, lizanie i pielęgnacja okazały się najbardziej fragmentaryczne w warunkach LBN3. Samice LBN wykazują wyższą częstotliwość lizania i pielęgnacji młodych (LG) (t16 = 4.04, p = 0.0010; Rysunek 2D) oraz krótsze serie tych zachowań (t16 = 3.25, p = 0.0050; Rysunek 2E). Jednak nie ma istotnej różnicy w całkowitym czasie trwania LG między samicami z grupy kontrolnej a grupą LBN (t16 = 1.52, p = 0.15; Rysunek 2F).

Rycina 2Analiza zachowań macierzyńskich. (A) Dobowa stopa entropii jest wyższa u samic z ograniczonym dostępem do ściółki i gniazdowania (LBN) kontrakontrolną (CTL) analizowaną za pomocą modelu efektów mieszanych (F1,58 = 7.21, p = 0.0094). (B) Średnia stopa entropii jest wyższa w przypadku zapór LBN kontraCTL (t15 = 3.03, p = 0.0085). (CŚrednia szybkość entropii (P3-P6) nie wykazuje istotnych różnic pomiędzy wieloma miotami u tej samej samicy, gdy są one utrzymywane w tej samej grupie badawczej (F1.699,4.247 = 0.57, p = 0,58). Każda linia reprezentuje jedną samicę matkę. (D) Skumulowana częstotliwość zdarzeń lizania i pielęgnacji (LG) jest wyższa u matek LG kontraCTL (limfocyty T cytotoksyczne)16 = 4.04, p = 0.0010). (E) Średnia długość pojedynczego epizodu LG jest krótsza u matek LG kontraCTL (t16 = 3.25, p = 0.0050). (F) skumulowany czas spędzony w pozycji LG nie różni się znacząco ze względu na LBN (t16 = 1.52, p = 0,15). Dane przedstawiono jako średnia ± SEM, * p < 0.05. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
Szczenięta hodowane w warunkach LBN są znacząco mniejsze w 10. dniu po urodzeniu (P10) (t61 = 6,30, p < 0,0001; Rysunek 3A). Różnica ta zazwyczaj utrzymuje się w wieku odsadzenia (t62 = 6,29, p = <0,0001; Rysunek 3B), ale nie jest już obserwowana w wieku dorosłym (t38 = 1,08, p = 0,29; Rysunek 3C). Jednak poziomy kortykosteronu w stanie spoczynkowym są podwyższone w wieku dorosłym (t18,79 = 2,23, p = 0,038; Rysunek 3D), co sugeruje trwałe efekty fizjologiczne LBN. Są to spodziewane różnice w przypadku prawidłowo przeprowadzonego układu doświadczalnego. W przypadku układu suboptymalnego wartości długości epizodów LG, entropii oraz wagi szczeniąt mogą nie wykazywać różnic, co prawdopodobnie wynika z wystąpienia stresu w grupie „Kontrolnej”. Na potrzeby niniejszej pracy, podczas analizy wyników potomstwa pominięto podział na płeć, ponieważ różnice płciowe zazwyczaj nie są obserwowane w opisanych tutaj efektach fizjologicznych; jednak różnice płciowe w innych typach wyników, takich jak zachowania poznawcze i emocjonalne, są powszechnie raportowane w tym modelu i powinny być dalej badane4.

Rycina 3: Wyniki potomstwa. (A) Ograniczenie dostępności ściółki i materiałów do budowy gniazda (LBN) zmniejsza masę młodych w P10, tuż przed powrotem do standardowych klatek (t61 = 6,30, p < 0,0001). (B) Masa w wieku odsadzenia nadal pozostaje obniżona w grupie LBN (t62 = 6,29, p < 0,0001). (C) Masa dorosłych osobników nie wykazuje już różnic wynikających z LBN (t38 = 1,08, p = 0,29). (D) Podstawowe stężenie kortykosteronu w wieku dorosłym jest zwiększone w grupie LBN, zgodnie z analizą testem t Welcha (t18,79 = 2,23, p = 0,038). Na wszystkich wykresach samice oznaczono kółkami, a samce trójkątami. Dane przedstawiono jako średnia ± SEM, *p < 0,05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Ten artykuł zawiera szczegółowy protokół stosowania modelu LBN u myszy. Model ten jest ważnym narzędziem do zrozumienia, w jaki sposób etologicznie i translacyjnie istotna forma przewlekłego stresu we wczesnym okresie życia przyczynia się do rozwoju zaburzeń neuropsychiatrycznych upotomstwa13. Jest również przydatny do badania zachowań matek i wszelkich zmian w mózgu matek z perspektywy molekularnej, neuroendokrynnej lub opartej na obwodach24. W przypadku tego typu pytań wieloparzystość może być ważniejszą zmienną do rozważenia. Zaobserwowaliśmy, że wyniki entropii zachowania matki pozostają spójne w wielu miotach w obrębie tej samej matki (Rysunek 2C), co sugeruje, że entropia może być nieco stabilną cechą dla każdej matki. Odkrycie to może uzasadniać wykorzystanie wieloródek samic myszy, gdy nie jest możliwe użycie tylko nieródek, tak jak w przypadku kosztownych lub rzadkich myszy transgenicznych. Ze względu na możliwy niezamierzony wpływ wielorózdności na inne zmienne (np. środowisko wewnątrzmaciczne), zaleca się, aby eksperymentator statystycznie kontrolował wykorzystanie wieloródek podczas analizy danych.
Należy zauważyć, że model ten jest bardzo wrażliwy na zakłócenia środowiskowe. Wiele czynników może zakłócać pracę zwierząt, powodując problemy i nieoptymalne wyniki, takie jak zalanie klatki lub głośne dźwięki, takie jak pobliskie budowy. Zazwyczaj zakłócenia te spowodują, że zwierzęta kontrolne będą zestresowane, a zatem nie będzie różnic między warunkami kontrolnymi i LBN. Wskaźnikiem tych problemów mogą być podobne wagi u szczeniąt kontrolnych i LBN na poziomie P10 oraz podobne wartości entropii w zachowaniach związanych z opieką nad matką. Z tego powodu idealnym miejscem jest pokój opieki nad matką, który jest używany wyłącznie do tego celu, cichy i z dala od kolonii i innego personelu laboratoryjnego. Zaburzenia mogą również prowadzić do kanibalizmu młodych, zwłaszcza u matek młodszych niż P75. Ryzyko utraty młodych z powodu kanibalizmu jest mniejsze u matek po P75 i często po pierwszym miocie. Alternatywna wersja tej metody przesuwa czas eksperymentalnej manipulacji na P4-P11, aby jeszcze bardziej zmniejszyć ryzyko kanibalizmu25,26; chociaż nie jest to konieczne w obecnych warunkach laboratoryjnych. Inna wersja LBN nie wykorzystuje przegrody siatkowej, ale nadal ogranicza ilość ściółki i materiału gniazdowego przez cały okres przed odsadzeniem po urodzeniu27. Ważne jest, aby pamiętać, że zmiana osi czasu może prowadzić do różnych wyników, takich jak znęcanie się nad matką, co z kolei może skutkować różnymi wynikami dla potomstwa, takimi jak zachowania podobne do lęku25,28. Inne częste problemy obejmują utratę danych o zachowaniu matki z powodu kąta kamery i dużego rozmiaru gniazda; Aby temu zapobiec, zaleca się umieszczenie lustra z tyłu klatki i upewnienie się, że w stanie kontrolnym jest tylko jedno gniazdo, aby zapobiec zbyt dużemu gniazdu i ukryciu szczeniąt przed kamerą. Wreszcie, niezbędne jest upewnienie się, że siatka jest prawidłowo dopasowana do klatki, aby zapobiec utknięciu lub zranieniu szczeniąt.
Zaletą modelu LBN jest to, że można go łatwo dostosować i połączyć z innymi czynnikami eksperymentalnymi. Przykładami zmiennych, które można dodać do tego protokołu, są dieta29,30, wyzwania immunologiczne30,31, różne linie transgeniczne32,33 i chemogenetyka19. Co więcej, niektóre wersje tego modelu wykorzystują ramy czasowe P10-P17 i łączą je z separacją matek (MS)34,35,36. Ten paradygmat został również zaadaptowany jako stresor prenatalny, w którym matki są trzymane w środowisku LBN od E14 do E1937,38, ale młode nigdy nie są bezpośrednio narażone na stres. Wreszcie, niektóre badania wykorzystują model dwóch trafień, który obejmuje ELA w połączeniu z różnymi testami warunków skrajnych na potomstwie, gdy osiąga dorosłość19,39.
Jednym z ograniczeń tej metody jest to, że nie ma ona dużej przepływności. Ilość generowanych danych jest ograniczona liczbą kamer i przestrzenią dostępną w tym samym czasie, chociaż śmieci można łatwo rozłożyć w czasie. Ręczna ocena zachowania matki jest szczególnie czasochłonna i może wprowadzać stronniczość obserwatora, ale automatyczna ocena jest obecnie rozwijana40, dzięki pojawieniu się podejść opartych na uczeniu maszynowym. Jeśli dane są oceniane ręcznie, zaleca się, aby ta sama osoba oceniła wszystkie filmy w jednym eksperymencie w celu zmniejszenia zmienności między obserwatorami. Innym ograniczeniem jest to, że model ten jest przeznaczony dla gryzoni, które polegają głównie na opiece matczynej, co utrudnia badanie opieki dwurodzicielskiej. Jednak niektóre grupy przyjęły deprywację ojcowską jako alternatywę dla stwardnienia rozsianego u gatunków dwurodzicielskich, takich jak mysz kalifornijska41,42, więc można sobie wyobrazić, że LBN może być również przystosowany do tych gatunków.
Oprócz LBN, separacja matki jest drugim najbardziej widocznym modelem ELA, ponieważ inne formy stresu stosowane u dorosłych (tj. stres związany z powściągliwością) nie są etologicznie istotne i nie wpływają w ten sam sposób na młode. LBN różni się od stwardnienia rozsianego, ponieważ jest to forma przewlekłego stresu, która wywołuje fragmentaryczne i nieprzewidywalne zachowanie matki, podczas gdy w stwardnieniu rozsianym deprywacja jest przerywana i zwykle występuje w przewidywalnych porachkażdego dnia. Co ciekawe, oba modele mogą powodować zmiany w osi HPA i zachowania podobne do depresji u gryzoni, chociaż LBN może być bardziej powtarzalnym protokołem z mniejszą interakcją eksperymentatora i wyższą spójnością we wszystkich laboratoriach 1,11,13,16. Chociaż protokół ten jest przydatny w łagodzeniu niektórych źródeł zmienności (takich jak związane z eksperymentatorem), inne aspekty, takie jak różnice w obiektach dla zwierząt, pochodzenie zwierząt lub szczep, mogą wpływać na wyniki. Na przykład wiadomo, że myszy BALB/c mają wyraźniejszą reakcję na przewlekły stres związany z powściągliwością i mogą być inaczej wrażliwe na ELA niż C57BL/6J27,44.
Podsumowując, model LBN wykorzystuje środowisko o niskich zasobach z nieprzewidywalną opieką matczyną i jest użytecznym podejściem do zrozumienia, w jaki sposób stres we wczesnym okresie życia wpływa na wiele różnych procesów, takich jak fizjologiczne adaptacje do stresu, zachowanie matki i rozwój mózgu. Warto zauważyć, że model ten został wykorzystany do zrozumienia, w jaki sposób i dlaczego ELA jest czynnikiem ryzyka zaburzeń neuropsychiatrycznych 1,5,9,12. W przyszłości zastosowanie LBN poszerzy naszą wiedzę na temat biologicznych podstaw zaburzeń zarówno psychicznych, jak i fizycznych oraz pomoże wyjaśnić nowe cele terapeutyczne w leczeniu skutków stresu w wrażliwym okresie okołoporodowym.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
Ta praca była wspierana przez NIMH K99/R00 Pathway to Independence Award #MH120327, Whitehall Foundation Grant #2022-08-051 oraz NARSAD Young Investigator Grant #31308 od Brain & Behavior Research Foundation oraz The John and Polly Sparks Foundation. Autorzy chcieliby podziękować Wydziałowi Zasobów Zwierzęcych na Uniwersytecie Stanowym Georgii za zapewnienie wyjątkowej opieki naszym zwierzętom oraz Ryanowi Sleethowi za doskonałe wsparcie techniczne w konfiguracji i utrzymaniu naszego systemu zarządzania wideo. Dr Bolton chciałaby również podziękować dr Tallie Z. Baram, która stworzyła model LBN i podzieliła się nim z nią.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-calowa kamera sieciowa 4 MP z 4-krotnym zoomem IR Mini PT Dome | Hikvision | DS-2DE2A404IW-DE3(S6) | |
| Amazon Basics Aluminiowy statyw fotograficzny z etui - zestaw 2, 2,8 - 6,7 stopy, 3,66 funta, | Amazon | od Amazon | |
| Niebieska tęczówka | Niebieska tęczówka Bezpieczeństwo | niebieskiej tęczówki Opcjonalne oprogramowanie | |
| do zarządzania materiałem wizyjnymCAMVATE 1/4"-20 Mini głowica kulowa z uchwytem sufitowym do CCTV i Uchwyt do monitorów ściennych wideo - 1991 | Camvate | od Amazon | |
| Ściółka z kolb kukurydzy | Gniazdo bawełniane Andersons | 4B | |
| Ancare | NES3600 | ||
| Przegroda siatkowa | McNICHOLS | 4700313244 | Standard, aluminium, stop 3003-H14, 3/16" nr .032 Standard (podniesiony), 70% otwarta przestrzeń |
| Oświetlacz podczerwieni Tendelux DI20 | Tendelux | od Amazonka |
Bibliografia
- Warhaftig, G., Almeida, D., Turecki, G. Early life adversity across different cell- types in the brain. Neurosci Biobehav Rev. 148, 105113(2023).
- Duffy, K. A., Mclaughlin, K. A., Green, P. A. Early life adversity and health-risk behaviors: Proposed psychological and neural mechanisms. Ann N Y AcadSci. 1428 (1), 151-169 (2018).
- Molet, J., et al. Fragmentation and high entropy of neonatal experience predict adolescent emotional outcome. Transl Psychiatry. 6 (1), e702(2016).
- Garvin, M. M., Bolton, J. L. Sex-specific behavioral outcomes of early-life adversity and emerging microglia-dependent mechanisms. Front Behav Neurosci. 16, 1013865(2022).
- Andersen, S. L. Neuroinflammation, early-life adversity, and brain development. Harv Rev Psychiatry. 30 (1), 24-39 (2022).
- Shrider, E. A., Creamer, J. Poverty in the United States: 2022. , Washington, DC. 60(2023).
- Roos, L. L., Wall-Wieler, E., Lee, J. B. Poverty and early childhood outcomes. Pediatrics. 143 (6), e20183426(2019).
- Ader, R., Tatum, R., Beels, C. C. Social factors affecting emotionality and resistance to disease in animals: I. Age of separation from the mother and susceptibility to gastric ulcers in the rat. J Comp Physiol Psychol. 53 (5), 446-454 (1960).
- Nishi, M. Effects of early-life stress on the brain and behaviors: Implications of early maternal separation in rodents. Int J Mol Sci. 21 (19), 7212(2020).
- Trujillo, V., Durando, P. E., Suárez, M. M. Maternal separation in early life modifies anxious behavior and fos and glucocorticoid receptor expression in limbic neurons after chronic stress in rats: Effects of tianeptine. Stress. 19 (1), 91-103 (2016).
- Yu, S., et al. Early life stress enhances the susceptibility to depression and interferes with neuroplasticity in the hippocampus of adolescent mice via regulating miR-34c-5p/SYT1 axis. J Psychiatr Res. 170, 262-276 (2023).
- Walker, C. D., et al. Chronic early life stress induced by limited bedding and nesting (LBN) material in rodents: Critical considerations of methodology, outcomes and translational potential. Stress. 20 (5), 421-448 (2017).
- Rice, C. J., Sandman, C. A., Lenjavi, M. R., Baram, T. Z. A novel mouse model for acute and long-lasting consequences of early life stress. Endocrinology. 149 (10), 4892-4900 (2008).
- Glynn, L. M., Baram, T. Z. The influence of unpredictable, fragmented parental signals on the developing brain. Front Neuroendocrinol. 53, 100736(2019).
- Karst, H., et al. Acceleration of GABA-switch after early life stress changes mouse prefrontal glutamatergic transmission. Neuropharmacology. 234, 109543(2023).
- Demaestri, C., et al. Resource scarcity but not maternal separation provokes unpredictable maternal care sequences in mice and both upregulate CRH-associated gene expression in the amygdala. Neurobiol Stress. 20, 100484(2022).
- Breton, J. M., et al. Early life adversity reduces affiliative behavior with a stressed cagemate and leads to sex-specific alterations in corticosterone responses in adult mice. Horm Behav. 158, 105464(2023).
- Bath, K. G., Manzano-Nieves, G., Goodwill, H. Early life stress accelerates behavioral and neural maturation of the hippocampus in male mice. Horm Behav. 82, 64-71 (2016).
- Bolton, J. L., et al. Early stress-induced impaired microglial pruning of excitatory synapses on immature CRH-expressing neurons provokes aberrant adult stress responses. Cell Rep. 38 (13), 110600(2022).
- Dahmen, B., et al. Effects of early-life adversity on hippocampal structures and associated HPA axis functions. Dev Neurosci. 40 (1), 13-22 (2018).
- Bolton, J. L., Short, A. K., Simeone, K. A., Daglian, J., Baram, T. Z. Programming of stress-sensitive neurons and circuits by early-life experiences. Front Behav Neurosci. 13, 30(2019).
- Yang, M., Lewis, F., Foley, G., Crawley, J. N. In tribute to Bob Blanchard: Divergent behavioral phenotypes of 16p11.2 deletion mice reared in same-genotype versus mixed-genotype cages. Physiol Behav. 146, 16-27 (2015).
- Vegetabile, B. G., Stout-Oswald, S. A., Davis, E. P., Baram, T. Z., Stern, H. S. Estimating the entropy rate of finite Markov chains with application to behavior studies. J Educ Behav Stat. 44 (3), 282-308 (2019).
- Rincón-Cortés, M., Grace, A. A. Postpartum scarcity-adversity disrupts maternal behavior and induces a hypodopaminergic state in the rat dam and adult female offspring. Neuropsychopharmacology. 47 (2), 488-496 (2022).
- Gallo, M., et al. Limited bedding and nesting induces maternal behavior resembling both hypervigilance and abuse. Front behav neurosci. 13, 167(2019).
- Manzano Nieves, G., Bravo, M., Baskoylu, S., Bath, K. G. Early life adversity decreases pre-adolescent fear expression by accelerating amygdala pv cell development. eLife. 9, e55263(2020).
- Johnson, F. K., et al. Amygdala hyper-connectivity in a mouse model of unpredictable early life stress. Transl Psychiatry. 8 (1), 49(2018).
- Demaestri, C., et al. Type of early life adversity confers differential, sex-dependent effects on early maturational milestones in mice. Horm Behav. 124, 104763(2020).
- Reemst, K., et al. Molecular underpinnings of programming by early-life stress and the protective effects of early dietary ω6/ω3 ratio, basally and in response to LPS: Integrated mRNA-miRNAs approach. Brain Behav Immun. 117, 283-297 (2024).
- Reemst, K., et al. Early-life stress and dietary fatty acids impact the brain lipid/oxylipin profile into adulthood, basally and in response to LPS. Front Immunol. 13, 967437(2022).
- Reemst, K., et al. Early-life stress lastingly impacts microglial transcriptome and function under basal and immune-challenged conditions. Transl Psychiatry. 12 (1), 507(2022).
- Wang, T., et al. The nucleus accumbens CRH-CRHR1 system mediates early-life stress-induced sleep disturbance and dendritic atrophy in the adult mouse. Neurosci Bull. 39 (1), 41-56 (2023).
- Knop, J., Van, I. M. H., Bakermans-Kranenburg, M. J., Joëls, M., Van Der Veen, R. Maternal care of heterozygous dopamine receptor d4 knockout mice: Differential susceptibility to early-life rearing conditions. Genes Brain Behav. 19 (7), e12655(2020).
- Bennett, S. N., Chang, A. B., Rogers, F. D., Jones, P., Peña, C. J. Thyroid hormones mediate the impact of early-life stress on ventral tegmental area gene expression and behavior. Horm Behav. 159, 105472(2024).
- Parel, S. T., et al. Transcriptional signatures of early-life stress and antidepressant treatment efficacy. Proc Natl Acad Sci U S A. 120 (49), e2305776120(2023).
- Julie-Anne, B., et al. Reactivation of early-life stress-sensitive neuronal ensembles contributes to lifelong stress hypersensitivity. J Neurosci. 43 (34), 5996(2023).
- Bolton Jessica, L., et al. Maternal stress and effects of prenatal air pollution on offspring mental health outcomes in mice. Environ Health Perspect. 121 (9), 1075-1082 (2013).
- Block, C. L., et al. Prenatal environmental stressors impair postnatal microglia function and adult behavior in males. Cell Rep. 40 (5), 111161(2022).
- Peña, C. J., et al. Early life stress alters transcriptomic patterning across reward circuitry in male and female mice. Nat Commun. 10 (1), 5098(2019).
- Lapp, H. E., Salazar, M. G., Champagne, F. A. Automated maternal behavior during early life in rodents (amber) pipeline. Sci Rep. 13 (1), 18277(2023).
- Madison, F. N., Palin, N., Whitaker, A., Glasper, E. R. Sex-specific effects of neonatal paternal deprivation on microglial cell density in adult California mouse (Peromyscus californicus) dentate gyrus. Brain, Behav. Immun. 106, 1-10 (2022).
- Walker, S. L., Sud, N., Beyene, R., Palin, N., Glasper, E. R. Paternal deprivation induces vigilance-avoidant behavior and accompanies sex-specific alterations in stress reactivity and central proinflammatory cytokine response in California mice (Peromyscus californicus). Psychopharmacology. 240 (11), 2317-2334 (2023).
- Molet, J., Maras, P. M., Avishai-Eliner, S., Baram, T. Z. Naturalistic rodent models of chronic early-life stress. Dev Psychobiol. 56 (8), 1675-1688 (2014).
- Tsuchimine, S., et al. Comparison of physiological and behavioral responses to chronic restraint stress between C57BL/6J and balb/c mice. Biochem Biophys Res Commun. 525 (1), 33-38 (2020).
Przedruki i uprawnienia
