W tym protokole pokazujemy, jak przygotować tkankę aksolotla do mikroskopii sił atomowych (AFM) i wykonać pomiary wgłębień w nienaruszonej i regenerującej się chrząstce kończyny.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Pomiary mikroskopii sił atomowych chrząstki w nienaruszonych i regenerujących się kończynach aksolotla
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Siły mechaniczne dostarczają ważnych sygnałów dla prawidłowego funkcjonowania komórek i tworzenia wzorców w rozwijających się tkankach, a ich rola była szeroko badana podczas embriogenezy i patogenezy. Stosunkowo niewiele wiadomo na temat tych sygnałów podczas regeneracji zwierząt.
Aksolotl jest ważnym organizmem modelowym do badań nad regeneracją, ze względu na jego zdolność do pełnej odbudowy wielu organów i tkanek po urazach, w tym brakujących chrząstek i kości. Ze względu na jej kluczową rolę jako głównej tkanki podporowej w organizmie kręgowców, odzyskanie funkcji kośćca podczas regeneracji wymaga zarówno odtworzenia brakujących struktur, jak i ich właściwości mechanicznych. Protokół ten opisuje metodę przetwarzania próbek kończyn aksolotla do mikroskopii sił atomowych (AFM), która jest złotym standardem w badaniu właściwości mechanicznych komórek i tkanek w wysokiej rozdzielczości przestrzennej.
Korzystając z możliwości regeneracyjnych aksolotl, to badanie zmierzyło sztywność chrząstki kończyny podczas homeostazy i dwóch etapów regeneracji kończyn: histolizy tkanek i kondensacji chrząstki. Pokazujemy, że AFM jest cennym narzędziem do uzyskania wglądu w dynamiczną restrukturyzację tkanek i zmiany mechaniczne, które zachodzą podczas regeneracji.
Wprowadzenie
Szkielet, zwłaszcza chrząstki i kości, stanowi główne mechaniczne wsparcie dla tkanek miękkich ciała u kręgowców. Dlatego wszelkie uszkodzenia układu kostnego mogą znacznie zagrozić funkcjonalności, a nawet przeżyciu. U ludzi złamania kości są jednym z najczęstszych urazów1, z których większość naprawia się w ciągu kilku tygodni, ale 5%-10% z nich będzie miało opóźnienia w gojeniu lub nigdy nie wyzdrowieje w pełni2,3. Co więcej, ludzie nie są w stanie odzyskać sił po rozległej utracie kości lub chrząstki4,5. Niektóre salamandry mogą jednak regenerować różne struktury ciała, w tym pełne kończyny6, co czyni je idealnym modelem do badań nad regeneracją szkieletu.
Aksolotl (Ambystoma mexicanum) to rodzaj salamandry, gdzie regeneracja kończyn była szeroko badana. Proces ten zachodzi w czterech głównych, sekwencyjnych, ale nakładających się na siebie fazach: 1) gojenie się ran, 2) zapalenie/histoliza, 3) powstawanie blastemy i 4) wyrastanie/różnicowanie blastemy (przejrzane w7,8). Po amputacji keratynocyty graniczące z miejscem urazu szybko migrują, zamykając ranę i tworząc nabłonek rany (WE). Podczas następującego po tym stanu zapalnego i histolizy patogeny są eliminowane, zanieczyszczenia i uszkodzone komórki są usuwane, a macierz zewnątrzkomórkowa (ECM) pod powierzchnią amputacji jest przebudowywana9. Histoliza tkanek jest niezbędna do regeneracji kończyn10, gdzie wydzielanie enzymów proteolitycznych ma kluczowe znaczenie nie tylko dla ogólnej przebudowy ECM, ale także dla uwolnienia komórek powodujących powstanie blastemy i wolnych bioaktywnych cząsteczek sekwestrowanych w samym ECM8. W rzeczywistości badania w wielu kontekstach regeneracyjnych i organizmach modelowych wykazały, że unikalne właściwości materiałowe ECM podczas histalizy są w stanie indukować procesy odróżnicowania lub kierować migrację komórek w kierunku miejsca uszkodzenia (recenzja w11). Co więcej, resorpcja zwapniałej tkanki w późnych stadiach histolizy okazała się kluczem do prawidłowej integracji nowo powstałych elementów szkieletu kończyny12. Po etapie histolizy blastema powstaje pod nabłonkiem rany (WE) jako nagromadzenie niezróżnicowanych, wieloliniowych komórek progenitorowych powstałych z odróżnicowanych dojrzałych komórek tkankowych lub rezydentnych komórek macierzystych. Komórki blastemy namnażają się i różnicują we wszystkie brakujące typy komórek. Wreszcie zachodzi morfogeneza kończyn, w której tkanka szkieletowa jest regenerowana poprzez kondensację chondroprogenitorów pochodzących z komórek okołoszkieletowych i transzróżnicowanych fibroblastów skóry13,14,15.
Chociaż zidentyfikowano wiele biochemicznych sygnałów regulujących zmiany w tożsamości komórki i składzie ECM10,13,14,16,17,18, właściwości mechaniczne tkanek podczas różnych faz regeneracji kończyn, a także ich wpływ na regenerację, pozostały w dużej mierze niezbadane. Wiele badań wykazało, że komórki wyczuwają i integrują mechaniczne sygnały, które regulują ich los i zachowanie w kilku kontekstach (recenzja w19,20). Dlatego uzupełnienie naszej wiedzy komórkowej i molekularnej na temat regeneracji kończyn o pomiary mechaniczne tkanek znacznie poprawi nasze zrozumienie tych procesów.
Opracowano różne techniki, które pozwalają na mechaniczną charakterystykę i manipulację siłą próbek biologicznych21. Wśród tych technik mikroskopia sił atomowych (AFM) stała się złotym standardem w mechanobiologii, w której właściwości lepkosprężyste próbek biologicznych są badane w wysokiej rozdzielczości przestrzennej poprzez wgłębienie za pomocą ultraczułego czujnika siły, AFM cantilever22. Ponieważ technika ta wymaga bezpośredniego kontaktu z próbką, zazwyczaj generowane są wycinki tkanki, co w niektórych przypadkach może być trudne. W związku z tym warunki przygotowania muszą być dostosowane i zoptymalizowane dla każdej konkretnej próbki, tak aby mogła pozostać jak najbardziej zbliżona do warunków fizjologicznych i generowane były minimalne artefakty23. Protokół ten opisuje, jak mierzyć sztywność tkanek w kończynach aksolotla za pomocą AFM, koncentrując się na tkankach chrzęstnych w nienaruszonych warunkach, podczas histolizy i na etapach kondensacji chrząstki (Rysunek 1 i Rysunek 2). Metoda ta może być również rozszerzona o pomiar innych typów tkanek.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Aksolotle (Ambystoma mexicanum) były hodowane w ośrodku dla aksolotli w Centrum Terapii Regeneracyjnych w Dreźnie (CRTD) na Uniwersytecie Technicznym w Dreźnie (TUD). Pełny opis warunków hodowli znajduje się w24. W skrócie, w pomieszczeniach utrzymywano temperaturę 20-22 °C przy 12/12 h cyklu dnia i nocy. Wszystkie zabiegi i procedury chirurgiczne były przeprowadzane zgodnie z wytycznymi lokalnej komisji etycznej i zostały zatwierdzone przez Landesdirektion Sachsen w Niemczech.
W niniejszym badaniu we wszystkich eksperymentach wykorzystano białe (d/d) aksolotle, naturalnie występujący szczep mutantów pozbawiony pigmentacji ciała (z niewielką liczbą melanoforów i ksantoforów lub ich całkowitym brakiem), z irydoforami występującymi jedynie w tęczówkach oczu. W badaniu użyto aksolotli o długości od 8 do 15 cm od pyska do ogona (w wieku 5-7 miesięcy), bez rozróżnienia ze względu na płeć.
1. Przygotowanie
- Przygotuj 10% (w/v) roztwór zapasowy benzokainy, który zostanie wykorzystany do znieczulania i eutanazji aksolotli (patrz poniżej). W tym celu wymieszaj w kolbie miarowej 50 g benzokainy z 100% etanolem do osiągnięcia objętości 500 ml.
- Przygotować 0,03% (m/v) roztwór zapasowy benzokainy.
- Aby przygotować 1 l roztworu, zmieszać 50 ml 10x soli buforowej Tris (TBS), 30 ml 10% (w/v) benzokainy oraz 5 ml 4000% (w/v) roztworu Holtfretera z 915 ml wody destylowanej i mieszać przez noc przy użyciu magnetycznego mieszadła.
- Aby przygotować 1 l 10-krotnego roztworu TBS, należy wymieszać 24,2 g zasady Trizma oraz 90 g NaCl z 990 ml wody dejonizowanej. Roztwór należy dokładnie wymieszać za pomocą magnetycznego mieszadła. Następnie dodać około 10 ml stężonego HCl (12 M lub 37%) i dostosować pH do wartości 8.
- Aby przygotować 1 l 4000% (m/v) roztworu Holtfretera, zmieszać 158,4 g NaCl, 11,13 g MgSO4·7H2O, 5,36 g CaCl22·2H2i 2,88 g KCl w wodzie dejonizowanej do objętości 1 l.
- Przygotuj 0,01% (m/v) roztwór roboczy benzokainy w wodzie z zasobnika do przetrzymywania zwierząt w celu przeprowadzenia anestezji, rozcieńczając 0,03% (m/v) roztwór stokowy w stosunku 1:3.
- Aby przygotować 1 l roztworu, należy użyć 333 ml roztworu zapasowego benzokainy oraz 666 ml wody z zbiornika magazynowego.
- Przygotować roztwór zapasu winianu butorfanolu o stężeniu 5 mg/ml do zastosowań przeciwbólowych. W tym celu wymieszać 100 mg soli (+)-winianu butorfanolu z 20 ml wody ultrapure. Alikwoty przechowywać w 4 °C.
- W dniu amputacji należy przygotować świeży roztwór roboczy tartratu butorfanolu o stężeniu 0,5 mg/l w celu zmniejszenia bólu zwierząt po zabiegach chirurgicznych, rozcieńczając roztwór zapasowy w wodzie z zasobnika w stosunku 1:10 000.
- W przypadku zwierząt o długości mniejszej niż 8 cm, wymieszać 20 µL roztworu zapasowego do 200 ml wody w zbiorniku przejściowym.
- W przypadku większych zwierząt wymieszać 60 µL roztworu zapasu do 600 ml wody w zbiorniku retencyjnym.
- Przygotować sterylny roztwór soli fosforanowej dla płazów (APBS), będący 80% (v/v) roztworem PBS, mieszając 800 ml DPBS z 200 ml wody dejonizowanej, a następnie przechowywać go w temperaturze pokojowej (RT).
- Przygotuj roztwór zapasowy insuliny o stężeniu 1 mg/mL. W tym celu wymieszaj 250 mg proszku insulinowego z 25 mL 0,1 M HCl i powoli mieszaj do całkowitego rozpuszczenia. Podczas mieszania dodawaj 225 mL APBS, aż roztwór stanie się klarowny. Przefiltruj sterylnie i przechowuj w alikwotach po 4 mL w temperaturze -20 °C.
- Przygotować sterylne pożywkę hodowlaną (wszystkie stężenia % (v/v): 62,5% pożywki L15, 10% nieaktywnej cieplnie FBS, 1% penicyliny/streptomycyny, 1% insuliny, 1% L-glutaminy) i przechowywać w 4 °C do dnia użycia. W dniu eksperymentu doprowadzić do temperatury pokojowej przed zastosowaniem.
- Aby przygotować 400 mL pożywki hodowlanej, należy użyć 250 mL pożywki L15, 40 mL inaktywowanego ciepłem FBS, 4 mL penicyliny/streptomycyny, 4 mL roztworu insuliny (z kroku 1.7), 4 mL L-glutaminy oraz 98 mL sterylnej wody dejonizowanej. Po wymieszaniu wszystkich składników pożywkę należy przygotować w warunkach sterylnych i przefiltrować sterylnie. Następnie należy przygotować aliquoty o objętości 15 mL.
- Przygotować 2,5% i 3% (m/v) agarozę o niskiej temperaturze topnienia (lmp) w roztworze APBS i podgrzać do 70 °C do całkowitego rozpuszczenia agarozy. Przygotować alikwoty w probówkach o pojemności 1,5 ml i przechowywać w 4 °C do dnia użycia.
- Aby przygotować 20 ml 2,5% (m/v) agarosy lmp, wymieszać 0,5 g agarosy lmp z 20 ml APBS w probówce o pojemności 50 ml i podgrzewać w kąpieli wodnej w temperaturze 70 °C aż do całkowitego rozpuszczenia agarozy. Roztwór musi stać się klarowny i przejrzysty. Przygotować alikwoty, gdy roztwór jest jeszcze ciepły.
- Aby przygotować 20 ml 3% (m/v) agarozy lmp, należy zmieszać 0,6 g agarozy lmp z 20 ml APBS i postąpić zgodnie z powyższą procedurą.
- (Opcjonalnie): Aby przygotować 20 ml 1% (m/v) agarozy lmp, należy zmieszać 0,2 g agarozy lmp z 20 ml APBS i postępować zgodnie z powyższą instrukcją.
UWAGA: Czas topnienia zależy od stężenia agarozy lmp i może wynosić w przybliżeniu od 15 do 40 min.
- Do amputacji i montażu tkanek należy użyć stereoskopu w polu jasnym.
- Przygotować plastikowe szalki Petriego o średnicy 100 mm, pęsetę, skalpel oraz nożyczki chirurgiczne do przeprowadzania amputacji i pobierania tkanek.
- Przygotować plastikowe szalki Petriego o średnicy 35 mm do pomiarów wgnieceń.
- Przygotować cylindry o długości ok. 1 cm i średnicy ok. 1 cm. W tym celu rozgrzać nożyk do tektury w płomieniu palnika Bunsena i odciąć fragment probówki o pojemności 15 ml za pomocą rozgrzanego ostrza.
- Odciąć mały fragment o wielkości 1 cm2 wyciąć kwadraty z Parafilmu i przechowywać.
- Przygotować blok metalowy lub chłodzący w temperaturze -20 °C pozostawiając go w zamrażarce na co najmniej 1 h.
- Przygotować plastikowe pipety Pasteura.
- (Opcjonalnie): Przygotować utrwalający roztwór MEMFa (kwas 3-(N-morfolino)propanosulfonowy [MOPS] 0,1 M pH 7,4, kwas etylenoglikol-bis(2-aminoetyloeter)-N,N,N′,N′-tetraoctowy [EGTA] 2 mM, MgSO4·7H2O 1 mM, 3,7% formaldehydu). W tym celu należy dodać 10,465 g MOPS, 0,123 g MgSO4·7H2O, 2 ml 0,5 M EDTA o pH 8,0, a następnie dodać wodę do objętości 45 ml. Dodać 5 ml formaldehydu 37% (m/v) do całkowitej objętości 50 ml.
2. Odczynniki
- W celu zapoznania się z odczynnikami wykorzystanymi w tej pracy należy odnieść się do Tabeli materiałów, jednak można również skorzystać z ofert innych dostawców komercyjnych.
3. Amputacja i regeneracja kończyny aksolotla
- Przed wszystkimi procedurami eksperymentalnymi znieczul zwierzę w 0,01% (w/v) benzokainie rozcieńczonej w wodzie z pojemnika zbiorczego (krok 1.3) przez 20 min, upewniając się, że zwierzęta są głęboko znieczulone i nie reagują na bodźce dotykowe.
- Wyjmij aksolotla z roztworu znieczulającego i połóż go na 100 mm szalce Petriego zawierającej ręcznik papierowy zwilżony wodą z znieczuleniem. Ustaw kończynę prostopadle do osi ciała i umieść szalkę pod stereoskopem w celu lepszej wizualizacji.
UWAGA: W tym przypadku użyto stereoskopu z kompaktową lampą na gęsim szyi. - Amputuj kończynę ostrym, sterylnym skalpelem bezpośrednio dystalnie względem obszaru zwapniałego regionu zeugopodialnego (kość promieniowa/kość łokciowa) (Rysunek 1A).
UWAGA: Zgodnie z zasadą dobrostanu zwierząt 3R zaleca się wykorzystanie kończyn usuniętych podczas amputacji jako kontroli nienaruszonej. - Pozostaw zwierzę na szalce i przykryj je wilgotnym ręcznikiem papierowym nasączonym wodą z benzokainą na 15 min, aby umożliwić krzepnięcie krwi i zamknięcie rany.
- Przenieś zwierzęta do zbiornika zawierającego świeżą wodę z lekami przeciwbólowymi (tartrat butorfanolu, 0,5 mg/L, z kroku 1.5).
- Przenieś zwierzęta do ich pierwotnego zbiornika ze świeżą wodą 24 h po pooperacyjnym leczeniu przeciwbólowym.
- Pozostaw zwierzęta do regeneracji aż do osiągnięcia pożądanego etapu.
UWAGA: Analizowane kończyny pobierano w dniu amputacji dla fazy nienaruszonej oraz 5 dni po amputacji (dpa) dla fazy histolizy u 5-miesięcznych zwierząt. Etap kondensacji chrząstki mierzono w 21 dpa u 7-miesięcznych zwierząt.
4. Montowanie i przygotowanie tkanek do pomiarów
- Podgrzać probówki o pojemności 1.5 mL zawierające 2,5% lub 3% (w/v) lmp-agarozy (z kroku 1.9) w bloku grzejnym w temperaturze 70 °C, aż agaroza całkowicie się rozpuści. Przenieść probówki do innego bloku grzejnego w temperaturze 37 °C i pozwolić na wyrównanie temperatury przed użyciem.
UWAGA: W tym przypadku do pomiarów tkanek regenerujących zastosowano 2,5% lmp-agarozy, a do tkanek nienaruszonych 3%. - Zakryć jeden koniec cylindrów o długości 1 cm (z kroku 1.13) jednym z kawałków parafilmu (krok 1.14) w taki sposób, aby były całkowicie uszczelnione od dołu.
- Dostosować temperaturę 15 mL alikwotów pożywki hodowlanej do RT (z kroku 1.8).
- Zznieczulić zwierzęta poprzez zanurzenie ich w wodzie zawierającej środek znieczulający (0,01% (w/v) benzokainy rozpuszczonej w wodzie z akwarium) na co najmniej 20 min.
- Wykonać obrazowanie kończyn pod stereomikroskopem przy użyciu oprogramowania umożliwiającego pomiary ilościowe. Zmierzyć długość interesującej struktury i obliczyć, ile tkanki należy usunąć z dystalnego końca kończyny, aby dotrzeć do interesującego fragmentu.
- W przypadku kończyn regenerujących pobrać je, odcinając skalpelem i/lub nożyczkami chirurgicznymi na poziomie łokcia i usuwając nadmiar tkanki z kończyny. Pozostawić tkankę w roztworze APBS podczas przygotowywania kolejnego kroku. Upewnić się, że cięcie jest poprzeczne (90°) do osi przedramienia, aby uzyskać równą powierzchnię. W przypadku kończyn nienaruszonych usunąć dłoń, przecinając region nadgarstka.
- Uśmiercić zwierzęta poprzez podanie letalnej dawki znieczulenia (0,1% benzokainy) przez co najmniej 20 min. W tym celu dodać wymaganą objętość 10% (w/v) roztworu benzokainy, aby osiągnąć stężenie 0,1% (w/v).
- Jeśli zwierzęta były znieczulane w 100 mL 0,01% (w/v) roztworu benzokainy, dodać 900 µL 10% (w/v) roztworu benzokainy.
- Opłukać kończyny poprzez zanurzenie ich w roztworze APBS.
- Upewnić się, że pipety Pasteura i blok grzejny (stabilizowany w 37 °C z alikwotami agarozy) znajdują się blisko stanowiska pracy. Wyjąć blok chłodzący z zamrażarki -20 °C i ustawić na nim cylinder końcem zakrytym parafilmem do dołu.
- Chwycić wypreparowaną kończynę i delikatnie usunąć nadmiar cieczy ręcznikiem papierowym. Umieścić kończynę na czystej płytce, nanieść na nią roztopioną lmp-agarozę i krótko przemieszczać kończynę w agarozie, aby usunąć pozostały APBS z powierzchni skóry.
- Szybko umieścić kończynę wewnątrz cylindra, dbając o to, aby była zorientowana pionowo, z obszarem zainteresowania skierowanym ku górze.
- Trzymając delikatnie kończynę pęsetą, dodawać lmp-agarozę do wnętrza cylindra, aż tkanka zostanie całkowicie zakryta. Delikatnie usunąć pęsetę przed stężeniem agarozy.
- Zdjąć cylinder z bloku chłodzącego i pozwolić agarozie całkowicie stężenie w RT przez około 30 s.
- Niezwłocznie przenieść blok agarozy z tkanką do pomieszczenia z wibratomem, wraz ze sterylnymi alikwotami pożywki hodowlanej i APBS, w temperaturze RT.
- Usunąć parafilm z dna cylindra i przymocować agarozę zawierającą tkankę do stolika wibratomu za pomocą kleju cyjanoakrylowego. Upewnić się, że zarówno agaroza, jak i próbka są przyklejone do stolika.
- Zanurzyć stolik w APBS w celu sekcjonowania.
UWAGA: Tkanki nienaruszone zawierają sztywniejszą kość/chrząstkę, podczas gdy tkanki regenerujące są miększe. Dlatego parametry wibratomu muszą zostać odpowiednio dostosowane. W tej badaniu zastosowano następujące parametry: tkanki nienaruszone (amplituda 1,2 mm i prędkość 0,1 mm/s) oraz tkanki regenerujące (amplituda 0,9 mm i prędkość 0,4 mm/s). - Rozpocząć sekcjonowanie agarozy krótkimi krokami (np. w krokach 100 µm), aż do osiągnięcia końcówki tkanki. Następnie sekcjonować blok tkanki do momentu usunięcia dystalnej części tkanki (obliczonej w kroku 4.5). W ten sposób łatwo dostępny będzie poprzeczny przekrój interesującego obszaru.
UWAGA: Usunięty fragment tkanki będzie zawierał powierzchnię bezpośrednio sąsiadującą z tą badaną za pomocą AFM i może służyć jako referencja dla struktury tkanki. Dlatego może być wykorzystany do bezpośredniej analizy komplementarnej lub utrwalony do późniejszego barwienia (patrz sekcja 6). - Ostrożnie usunąć blok z tkanką ze stolika wibratomu za pomocą żyletki i usunąć wszelkie ślady kleju. Niezwłocznie przykleić blok do plastikowej szalki Petriego o średnicy 35 mm za pomocą chirurgicznego kleju tkankowego i dodać około 2 mL pożywki hodowlanej w RT, aby upewnić się, że tkanka jest całkowicie zakryta.
UWAGA: Odsłonięta powierzchnia tkanki w bloku agarozy jest powierzchnią przeznaczoną do badania.
5. Pomiary z wykorzystaniem AFM
- Przynajmniej 1 dzień przed pomiarami przygotować cantilever do pomiarów.
UWAGA: W niniejszej pracy bezkońcówkowe krzemowe cantilevery funkcjonalizowano kuleczkami polistyrenowymi (średnica 20 µm), a wiązanie między kuleczką a cantileverem pozostawiono do wzmocnienia na co najmniej 1 dzień przed wykorzystaniem do pomiarów wgniatania.- Przytwierdzić kuleczki do cantileverów za pomocą kleju epoksydowego o czasie przetwarzania 5 min.
- Szybko opuścić cantilever przy minimalnym kontakcie na szkiełko przedmiotowe pokryte klejem, tak aby na jego końcówce utworzyła się mała kropla kleju, a następnie natychmiast doprowadzić go do kontaktu z odpowiednią kuleczką.
- Utrzymać kontakt cantilever-kuleczka przez ~10 min przed podniesieniem cantilevera z przytwierdzoną kuleczką z powierzchni.
- Zkalibrować cantilever przed pomiarami.
UWAGA: Zmodyfikowany cantilever był kalibrowany przed każdym zestawem eksperymentów metodą szumu termicznego z wykorzystaniem wbudowanych procedur oprogramowania AFM. - Włożyć szalkę Petriego z blokiem tkanki (z kroku 4.18) i pożywką hodowlaną do uchwytu na szalki Petriego w AFM i uzyskać obraz przekrojowy w mikroskopii w polu jasnym (Rycina 1B).
UWAGA: Do testów wgniatania stosuje się układ wyposażony w stół motorowy zamontowany na mikroskopie świetlnym pionowym. Zamontować głowicę AFM, ustawić cantilever nad tkanką i zbliżyć go do powierzchni. - Wybrać konkretny obszar zainteresowania i zarejestrować macierz krzywych siła-odległość (Rycina 2A).
UWAGA: W celu uzyskania porównywalnych głębokości wgniatania rzędu ~1-4 µm dla tkanek o różnej sztywności stosowano względne wartości zadane siły 2-25 nN, przy prędkości zbliżania i cofania 7,5 µm/s, długości z wynoszącej 50 µm oraz rozmiarze siatki 70 µm x 70 µm z 3 x 3 punktami. - Dla każdego badanego obszaru uzyskać obraz z mikroskopii w polu jasnym, aby przypisać uzyskane wartości do każdego konkretnego regionu w przekroju kończyny.
- Dla wszystkich próbek zbadać co najmniej 3 różne obszary na typ tkanki.
UWAGA: We wszystkich przypadkach w niniejszym badaniu zmierzono 4 obszary w centrum chrząstki i 3 obszary na obwodzie regionu chrzęstnego, a tkankę utrzymywano pod mikroskopem maksymalnie przez 1 h. - Po zakończeniu pomiarów wgniatania utylizować tkankę lub utrwalić ją do dalszych analiz.
UWAGA: Próbki utrwalano po zakończeniu pomiarów poprzez umieszczenie ich w probówkach 2 mL zawierających roztwór MEMFa i inkubowano przez noc w 4 °C. Stosowano MEMFa (krok 1.17), lecz można również użyć 4% (w/v) roztworu formaldehydu w PBS.
6. (Opcjonalnie) Przetwarzanie sąsiednich przekrojów tkanek
- Jeśli sąsiednie skrawki tkanki mają zostać wykorzystane do późniejszego barwienia, należy je niezwłocznie po cięciu umieścić w małej probówce 2 mL zawierającej utrwalacz i utrwalać przez noc w 4 °C.
- Aby uwidocznić architekturę tkanki poprzez znakowanie cytoreszkieletu aktynowego i jąder komórkowych, wypłukać próbki 3 razy w PBS przez 5 min każdorazowo w celu usunięcia utrwalacza, a następnie barwić roztworem zawierającym falloidynę sprzężoną z Alexa Fluor 488 (1:250) oraz Hoechst 33258 (1:10000) w PBS przez 1 h w RT na platformie kołyszącej.
- Następnie unieruchomić zabarwione próbki na szalkach z szklanym dnem, używając 1% (w/v) agarozy lmp w APBS ustabilizowanej w 37 °C (z kroku 1.9). Należy upewnić się, że interesująca powierzchnia jest skierowana w stronę szkła. Po zestaleniu agarozy przykryć próbki PBS, aby zapobiec odwodnieniu.
UWAGA: Próbki nienaruszone i poddane histolizie są obrazowane za pomocą odwróconego mikroskopu konfokalnego (powiększenie 10x i sekcje optyczne 8 µm). Obrazy na Rysunku 1C stanowią projekcje maksymalne 8 sekcji optycznych.
- Jeśli sąsiedni skrawek tkanki jest wykorzystywany do natychmiastowej analizy wymagającej świeżej tkanki (np. ekstrakcja RNA, inkubacja z barwnikami do żywych komórek itp.), należy pracować szybko i używać pożywki do hodowli komórkowej (z kroku 1.8), aby zapewnić jak najwyższą integralność tkanki.
7. Analiza i prezentacja danych
- Aby obliczyć pozorny moduł Younga, przeanalizuj krzywe siła-odległość, stosując model Hertza/Sneddona (Eq.1) dla wkluwacza sferycznego przy użyciu oprogramowania do przetwarzania danych JPK/Bruker, przyjmując współczynnik Poissona równy 0.5.
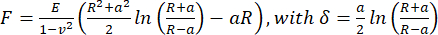 (Eq.1)
Gdzie R: promień wkluwacza, E: moduł sprężystości, ν: współczynnik Poissona, a: promień okrągłego obszaru kontaktu między wkluwaczem a próbką, δ: głębokość wklucia. - W celu analizy wiskoelastycznej przeanalizuj fragmenty zbliżeniowe krzywych siła-wklucie w programie PyJibe 0.15.0 z rozszerzeniem „Hertz model corrected for viscoelasticity using Kelvin-Voigt-Maxwell (KVM)” (autorstwa Paula Müllera, https://github.com/AFM-analysis/PyJibe)25. Funkcja dopasowania opiera się na modelu opisanym przez Abuhattum i wsp.26, integrującym elementy modelu Kelvina-Voigta-Maxwella.
- Przeprowadź wstępne przetwarzanie krzywych siła-wklucie, aby oszacować punkt kontaktu, stosując dopasowanie odcinkowe z linią (linia bazowa) i funkcją dopasowania wielomianowego dla fragmentu zbliżeniowego.
- Dopasuj krzywe siła-wklucie do „modelu Hertza skorygowanego o wiskoelastyczność przy użyciu modelu Kelvina-Voigta-Maxwella (KVM)”. Na podstawie dopasowania wyznacz nierelaksacyjny moduł Younga, pozorny moduł Younga oraz pozorną lepkość. Model podaje również czas relaksacji Maxwella oraz czas wklucia.
UWAGA: W kilku analizowanych krzywych siła-wklucie (w szczególności w tkance nienaruszonej) czasy relaksacji Maxwella były znacznie większe lub mniejsze niż czas wklucia, co wskazuje odpowiednio na zachowanie raczej sprężyste lub mechaniczne zachowanie typu Kelvina-Voigta.
- Wyeksportuj wszystkie pomiary do arkusza kalkulacyjnego i oblicz mediany pozornych modułów Younga dla każdego typu tkanki i próbki.
- Przedstaw dane na wykresach i przeprowadź analizę statystyczną przy użyciu odpowiedniego oprogramowania.
UWAGA: W tym przypadku zastosowano program GraphPad Prism, a przy opisie wyników w badaniu odniesiono się do średniej ± SD z median pozornych modułów Younga na próbkę (przedstawione na Rysunku 2D-F). - Wyświetl przekroje optyczne z obrazów konfokalnych, rzutując je za pomocą funkcji projekcji maksymalnej (maximum projection) w programie Fiji. Dostosuj jasność i kontrast każdego kanału w celu optymalnej wizualizacji barwień fluorescencyjnych.
- Przygotuj panel z rycinami za pomocą odpowiedniego oprogramowania.
UWAGA: Do generowania paneli użyto programu Affinity Designer; model na Rysunku 1A został narysowany w programie Affinity Designer.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Korzystając z opisanego powyżej protokołu, zmierzyliśmy pozorny moduł Younga tkanek chrzęstnych kończyn aksolotla w warunkach homeostatycznych („Intact”), podczas wczesnej histolizy chrząstki oraz w późniejszych etapach kondensacji chrząstki (Rycina 1A). Zbadaliśmy również właściwości mechaniczne elementów szkieletowych w różnych obszarach, w tym w ich centrum i na obwodzie, co przedstawiono na obrazach obrazujących położenie wspornika (Rycina 1B). Aby zobrazowa...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Tutaj demonstrujemy technikę pomiaru sztywności chrząstki w kończynach aksolotla z AFM. Jednak metoda ta może być rozszerzona o sondowanie również innych typów tkanek. Kluczowym krokiem do udanych pomiarów AFM jest przygotowanie próbki, która okazała się szczególnie trudna w przypadku próbek aksolotlów. Odkryliśmy, że badanie powierzchni tkanki, która była nadal osadzona w bloku agarozowym, było najlepszym sposobem na zachowanie integralności tkanki. Dzieje się tak, ponieważ skóra aksolotla wydziela duże ilości śluzu na ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konfliktu interesów
Podziękowania
Dziękujemy wszystkim członkom laboratorium Sandoval-Guzmán za ciągłe wsparcie i towarzystwo podczas rozwoju tej pracy. Jesteśmy również wdzięczni Anji Wagner, Beate Gruhl i Judith Konantz za ich zaangażowanie w opiekę nad aksolotlami. Dziękujemy również Paulowi Müllerowi za dostarczenie kodów do analizy danych AFM. Prace te były wspierane przez Zakład Mikroskopii Świetlnej Platformy Technologicznej CMCB na Uniwersytecie Technicznym w Dreźnie. AT jest stypendystą Mildred Scheel Early Career Center Dresden P2 finansowanego przez Niemiecką Pomoc Onkologicznemu (Deutsche Krebshilfe). RA jest finansowany przez tymczasowe stanowisko kierownika (Eigene Stelle) z Deutsche Forschungsgemeinschaft (DFG, Niemiecka Fundacja Badawcza) – AI 214/1-1.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Affinity Designer | Affinity | wersja 1.10.4 | Do montażu figur |
| Agaroza o niskiej stopie topliwości | Roth | 6351.1 | Do przygotowania próbki |
| Alexa Fluor 488 Phalloidin | Invitrogen | A12379 | Do barwienia tkanek |
| Axiozoom | Zeiss | Do obrazowania próbki pod AFM | |
| Benzokaina | Sigma-Aldrich | E1501 | Aby znieczulić zwierzęta |
| Winian butorfanolu (+) sól | Sigma-Aldrich | B9156 | Jako środek przeciwbólowy |
| Cantilever | NanoWorld | Arrow TL1 | Do pomiarów wgnieceń AFM |
| Zestaw Cellhesion 200 wyposażony w motorstage | JPK/Bruker | Do pomiarów wgłębień AFM | |
| CellSense Entry | Do obrazowania w stereoskopie Olympus UC90 | ||
| Dulbecco' s Sól fizjologiczna buforowana fosforanami (DPBS, 1x) | Gibco | 14190-144 | Do czyszczenia próbek i sekcji pod wibratomem |
| FIJI (ImageJ2) | https://imagej.net/software/fiji | wersja 2.9.0/1.53t | Do przetwarzania obrazu |
| GraphPad | Prism Oprogramowanie GraphPad | (wersja 8.4.3) | Do wykresu i analizy statystycznej danych |
| Inaktywowany termicznie FBS | Gibco | 10270-106 | Do komórki pożywka |
| hodowlana Klej histoakrylowy (2-butyl-cyjanoakryl) | Braun | Do przyklejania próbki do szalek Petriego | |
| Hoechst 33258 | Abcam | ab228550 | Do barwienia tkanek |
| Insulina | Sigma-Aldrich | I5500 | Do pożywki do hodowli komórkowych |
| Odwrócony mikroskop konfokalny | Zeiss | 780 LSM | Do obrazowania skrawków tkanek |
| Odwrócony mikroskop konfokalny | Zeiss | 980 LSM | Do obrazowania skrawków tkanek |
| Oprogramowanie do przetwarzania danych JPK/Bruker | JPK/Bruker | SPM 6.4 | Do analizy krzywych siła-odległość |
| L15 medium (Leibovitz) | Sigma | L1518 | Do pożywki do hodowli komórkowych |
| L-glutamina | Gibco | 25030-024 | Do pożywki do hodowli komórkowych |
| Penicylina/Streptomycyna | Gibco | 15140-122 | Do komórki pożywka |
| hodowlana kulki polistyrenowe ( 20 & mikro; m średnicy); ) | mikrocząstki | do pomiarów wgnieceń AFM | |
| Pyjibe | napisane przez Paula Mü ller https://github.com/AFM-analysis/PyJibe | 0.15.0 | Do analizy lepkosprężystej |
| Stereoskop Olympus SX10 | Olympus | SX10 | Do amputacji kończyn i montażu tkanek |
| Stereoskop Olympus UC90 | Olympus | UC90 | Do obrazowania |
| Vibratome | Leica | Leica VT 1200S | Do sekcji tkanek |
Bibliografia
- Mills, L. A., Aitken, S. A., Simpson, A. H. R. W. The risk of non-union per fracture: current myths and revised figures from a population of over 4 million adults. Acta Orthop. 88 (4), 434-439 (2017).
- Calori, G. M., et al. Non-unions. Clin Cases Miner Bone Metab. 14 (2), 186-188 (2017).
- Nandra, R., Grover, L., Porter, K. Fracture non-union epidemiology and treatment. Trauma. 18 (1), 3-11 (2016).
- Nauth, A., Schemitsch, E., Norris, B., Nollin, Z., Watson, J. T. Critical-size bone defects: Is there a consensus for diagnosis and treatment. J Orthop Trauma. 32 (3 Suppl), S7-S11 (2018).
- Schemitsch, E. H. Size matters: Defining critical in bone defect size. J Orthop Trauma. 31 (10), S20-S22 (2017).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: Salamanders. Development (Cambridge). 146 (14), 0-2 (2019).
- Aires, R., Keeley, S. D., Sandoval-Guzmán, T. Basics of Self-Regeneration. Cell Engineering and Regeneration. , Springer. Cham. (2020).
- Stocum, D. L. Mechanisms of urodele limb regeneration. Regeneration. 4 (4), 159-200 (2017).
- Bassat, E., Tanaka, E. M. The cellular and signaling dynamics of salamander limb regeneration. Curr Opin Cell Biol. 73, 117-123 (2021).
- Vinarsky, V., Atkinson, D. L., Stevenson, T. J., Keating, M. T., Odelberg, S. J. Normal newt limb regeneration requires matrix metalloproteinase function. Dev Biol. 279 (1), 86-98 (2005).
- Godwin, J., Kuraitis, D., Rosenthal, N. Extracellular matrix considerations for scar-free repair and regeneration: Insights from regenerative diversity among vertebrates. International J Biochem Cell Biol. 56, 47-55 (2014).
- Riquelme-Guzmán, C., et al. Osteoclast-mediated resorption primes the skeleton for successful integration during axolotl limb regeneration. ELife. 11, e79966(2022).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. 362 (6413), aaq0681(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Currie, J. D., et al. Live Imaging of Axolotl Digit Regeneration Reveals Spatiotemporal Choreography of Diverse Connective Tissue Progenitor Pools. Dev Cell. 39 (4), 411-423 (2016).
- Qin, T., et al. Single-cell RNA-seq reveals novel mitochondria-related musculoskeletal cell populations during adult axolotl limb regeneration process. Cell Death Differ. 28 (3), 1110-1125 (2021).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14, 174-187 (2014).
- Currie, J. D., et al. The Prrx1limb enhancer marks an adult subpopulation of injury-responsive dermal fibroblasts. Biol Open. 8, bio043711(2019).
- Wagh, K., Ishikawa, M., Garcia, D. A., Stavreva, D. A., Upadhyaya, A., Hager, G. L. Mechanical regulation of transcription: Recent advances. Trends Cell Biol. 31 (6), 457-472 (2021).
- d'Angelo, M., et al. The role of stiffness in cell reprogramming: A potential role for biomaterials in inducing tissue regeneration. Cells. 8 (9), 1036(2019).
- Akhtar, R., Sherratt, M. J., Cruickshank, J. K., Derby, B. Characterizing the elastic properties of tissues. Mater Today (Kidlington). 14 (3), 96-105 (2011).
- Krieg, M., et al. Atomic force microscopy-based mechanobiology. Nat Rev Phys. 1 (1), 41-57 (2019).
- El Kirat, K., Burton, I., Dupres, V., Dufrene, Y. F. Sample preparation procedures for biological atomic force microscopy. J Microsc. 218 (3), 199-207 (2005).
- Riquelme-Guzmán, C., et al. Postembryonic development and aging of the appendicular skeleton in Ambystoma mexicanum. Dev Dyn. 251 (6), 1015-1034 (2021).
- López-Alonso, J., Eroles, M., Janel, S., et al. PyFMLab: Open-source software for atomic force microscopy microrheology data analysis [version 2; peer review: 2 approved]. Open Res Europe 2024. 3 (187), (2024).
- Abuhattum, S., Mokbel, D., Müller, P., Soteriou, D., Guck, J., Aland, S. An explicit model to extract viscoelastic properties of cells from AFM force-indentation curves. iScience. 25 (4), 104016(2022).
- Glorieux, L., et al. In-depth analysis of the pancreatic extracellular matrix during development for next-generation tissue engineering. Int J Mol Sci. 24 (12), 10268(2023).
- Hiratsuka, S., et al. Power-law stress and creep relaxations of single cells measured by colloidal probe atomic force microscopy. Jpn J Appl Phys. 48 (8 PART 3), 08JB17(2009).
- Johnson, K. L., Kendall, K., Roberts, A. D. Surface energy and the contact of elastic solids. Proc R Soc Lond A. 324, 301-313 (1971).
- Kondiboyina, V., Duerr, T. J., Monaghan, J. R., Shefelbine, S. J. Material properties in regenerating axolotl limbs using inverse finite element analysis. J Mech Behav Biomed Mater. 150, 106341(2024).
- Calve, S., Simon, H. Biochemical and mechanical environment cooperatively regulate skeletal muscle regeneration. FASEB J. 26 (6), 2538-2545 (2012).
- Calve, S., Simon, H. G. Extracellular control of limb regeneration. IUTAM Symposium on Cellular, Molecular and Tissue Mechanics. IUTAM Bookseries. 16, Springer. Dordrecht. 257-266 (2010).
- Kaufmann, R. A., Kozin, S. H., Barnes, A., Kalluri, P. Changes in strain distribution along the radius and ulna with loading and interosseous membrane section. J Hand Surg Am. 27 (1), 93-97 (2002).
- Martin, A. R., et al. Measurement of distal forearm bone mineral density: Can different forearm segments be used interchangeably. J Clin Densitom. 2 (4), 381-387 (1999).
- Riquelme-Guzmán, C., et al. In vivo assessment of mechanical properties during axolotl development and regeneration using confocal Brillouin microscopy. Open Biol. 12 (6), 220078(2022).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
