Tutaj opisana jest metoda wysokosprawnej chromatografii cieczowej fazy normalnej, mająca na celu wykrywanie i ilościowe określanie krytycznych retinoidów zaangażowanych w ułatwianie funkcji wzrokowych zarówno w tkance ocznej, jak i ogólnoustrojowej, w kontekście ogólnoustrojowego dostarczania witaminy A do wytwarzania niezbędnego światłoczułego chromoforu rodopsyny 11-cis-retinal.
Artykuł metodologiczny
Analiza ilościowa metabolitów witaminy A w diecie metabolitów witaminy A w mysich tkankach ocznych i nieocznych przy użyciu wysokosprawnej chromatografii cieczowej
W tym artykule
Podsumowanie
Streszczenie
Receptory sprzężone z białkiem G (GPCR) to nadrodzina białek transbłonowych, które inicjują kaskady sygnałowe poprzez aktywację białka G po połączeniu z jego ligandem. We wszystkich zmysłach widzenia ssaków rodopsyna jest GPCR odpowiedzialnym za inicjację kaskady fototransdukcji. W fotoreceptorach rodopsyna jest związana ze swoim chromoforem 11-cis-retinalem i jest aktywowana poprzez światłoczułą izomeryzację 11-cis-retinalu do all-trans-siatkówki, co aktywuje białko transducyny G, powodując kaskadę fototransdukcji.
Chociaż fototransdukcja jest dobrze zrozumiana, procesy związane z dostarczaniem w diecie prekursorów witaminy A do generowania 11-cis-siatkówki w oku, jak również choroby powodujące zakłócenie tego dostarczania, nie są jeszcze w pełni zrozumiałe. Po wchłonięciu prekursorów witaminy A do jelita są one przechowywane w wątrobie w postaci estrów retinylu i uwalniane do krwiobiegu jako all-trans-retinol związany z białkiem wiążącym retinol 4 (RBP4). Ten krążący RBP4-retinol zostanie wchłonięty przez narządy ogólnoustrojowe, takie jak wątroba, płuca, nerki i oko. W związku z tym metoda ilościowego oznaczania różnych metabolitów witaminy A w diecie witaminy A w oku i narządach ogólnoustrojowych ma kluczowe znaczenie dla badania prawidłowej funkcji rodopsyny GPCR.
W tej metodzie prezentujemy kompleksową metodę ekstrakcji i analizy witaminy A w tkance mysjej. Dzięki analizie wysokosprawnej chromatografii cieczowej w fazie normalnej wszystkie istotne izomery retinaldehydów, retinoli i estrów retinylu mogą być wykrywane jednocześnie w jednym przebiegu, co pozwala na efektywne wykorzystanie próbek eksperymentalnych i zwiększa wewnętrzną niezawodność dla różnych metabolitów witaminy A w tej samej próbce. Dzięki tej kompleksowej metodzie badacze będą w stanie lepiej ocenić ogólnoustrojową podaż witaminy A w funkcji rodopsyny GPCR.
Wprowadzenie
Receptory sprzężone z białkiem G (GPCRs) są jedną z najlepiej zbadanych i scharakteryzowanych znanych nadrodzin białek. W swojej najbardziej znanej funkcji GPCR służą jako receptor powierzchniowy komórki w transdukcji sygnału, inicjując odpowiedzi wewnątrzkomórkowe po związaniu się ze specyficznym ligandem. GPCR charakteryzują się siedmioma transbłonowymi (TM) domenami spiralnymi i sześcioma całkowitymi domenami pętlowymi. Spośród sześciu pętli, trzy pętle są zorientowane zewnątrzkomórkowo, aby ułatwić wiązanie liganda, podczas gdy pozostałe trzy pętle wewnątrzkomórkowe są sprzężone z heterotrimerycznym białkiem G składającym się z podjednostek Gα, Gβ i Gγ1,2.
GPCR są klasyfikowane do kilku klas, w tym klasy A, rodopsynopodobnych klas, rodziny receptorów sekretyny klasy B, glutaminianu klasy C, receptorów feromonów klasy D do kojarzenia grzybów, cyklicznych receptorów AMP klasy E i klasy F Frizzled/Smoothened3,4. Jak sama nazwa wskazuje, podklasa klasy A podobna do rodopsyny GPCR obejmuje rodopsynę, krytyczny GPCR odpowiedzialny za fototransdukcję i funkcje wzrokowe. Rodopsyna zawiera wszystkie istotne kluczowe cechy i elementy strukturalne, które znajdują się w kanonicznym modelu GPCR, w tym wspomniane wcześniej siedem domen helikalnych TM, sześć pętli zewnątrzkomórkowych i wewnątrzkomórkowych oraz związek z heterotrimerycznym białkiem G, znanym również jako transducyna (Gt) w fotoreceptorach1,5,6,7. W kieszeni wiążącej rodopsyny, 11-cis-retinal, światłoczuły ligand chromoforowy, wiąże się z rodopsyną na lizynie 296 poprzez kowalencyjne wiązanie zasady Schiffa, tworząc w ten sposób 11-cis-retinyliden1,8. Po absorpcji fotonu 11-cis-retinyliden fotoizomeryzuje się do all-trans-retinylidenu, wywołując zmianę konformacyjną w rodopsyny. Dlatego ligand 11-cis-siatkówki ma kluczowe znaczenie dla funkcji rodopsyny GPCR, a solidne i wydajne dostarczanie 11-cis-retinalu musi być stale utrzymywane, aby przezwyciężyć wysokie tempo obrotu w fotoreceptorach.
Retinaldehydy, takie jak 11-cis-retinal, należą do grupy cząsteczek zbiorczo nazywanych retinoidami, a biologicznie istotne retinoidy są szerzej określane jako witamina A. Retinoidy charakteryzują się cykliczną grupą końcową połączoną ze sprzężonym łańcuchem polietylenowym, z polarną grupą końcową na drugim końcu. Retinaldehydy i związane z nimi witaminy A nie są wyjątkiem od tej charakterystyki, które zawierają pierścień β-jononowy jako cykliczną grupę końcową, łańcuch diterpenowo-polietylenowy i różną polarną grupę końcową w zależności od witaminy, czyli grupę aldehydową dla retinaldehydów, grupę hydroksylową dla retinoli, grupę karboksylową dla kwasów retinowych, wiązanie estrowe dla estrów retinylu, itd. (Rysunek 1)9,10.
Ssaki nie mogą syntetyzować witaminy A de novo, ale rośliny mogą; dlatego wszystkie retinoidy w systemach ssaków muszą pochodzić z diety producentów roślinnych do konsumentów w łańcuchu pokarmowym. W kanonicznym modelu metabolizmu witaminy A β-karoten, archetypowa roślinna prowitamina A, jest wchłaniany do enterocytów jelitowych przez receptor zmiatacza klasy B, członek 1 (SCARB1), rozszczepiony na dwie cząsteczki all-trans-siatkówki przez β-karotenową oksygenazę 1 (BCO1/BCMO1), która wiąże się z białkiem wiążącym retinaldehyd 2 (RBP2) i jest redukowany do all-trans-retinol przez dehydrogenazy retinolu (RDH), przekształcony w estry retinylu przez acylotransferazę retinolu lecytyny (LRAT), a następnie wysłany do krwiobiegu w chylomikronach11,12,13,14. Z drugiej strony estry retinylu, takie jak palmitynian retinylu, służą jako dominująca prowitamina A ze źródeł zwierzęcych. Palmitynian retinylu ze światła jelita jest hydrolizowany do all-trans-retinolu przez karboksyloesterazy 1 (CES1) i dyfunduje do enterocytów jelitowych15. Wątroba jest głównym narządem magazynującym i homeostatycznym homeostazy witaminy A, który wchłania estry retinylu w tych chylomikronach, które są hydrolizowane do all-trans-retinolu związanego z komórkowym białkiem wiążącym retinol 1 (CRBP1) przez hydrolazy estrów retinylu, wnika do komórek gwiaździstych wątroby i jest przekształcany z powrotem w estry retinylu przez LRAT w celu przechowywania13,16, 17. Aby utrzymać homeostatyczny poziom witaminy A w organizmie, wątroba uwalnia witaminę A w postaci all-trans-retinolu związanego z kompleksem transportowym surowicy, składającym się z białka wiążącego retinol 4 (RBP4) i transtyretyny (TTR)15,18,19. Kompleks ten będzie w tym manuskrypcie określany jako holo-RBP4.
Aby korzystać z tego ogólnoustrojowego dostarczania witaminy A do krwi, tkanki ogólnoustrojowe, w tym tkanka oka, gdzie utrzymywane jest solidne źródło witaminy A, muszą mieć metodę wchłaniania holo-RBP4 do tkanki. W siatkówce bogatej w fotoreceptory w tkance oka receptor błonowy stymulowany przez kwas retinowy 6 (STRA6) jest transporterem zaangażowanym w tę funkcję. W badaniach mechanistycznych wykazano, że STRA6 jest w stanie ułatwić przyjmowanie zewnątrzkomórkowego all-trans-retinolu z holo-RBP4 do klasy RPE20. Ten importowany all-trans-retinol wejdzie następnie w cykl widzenia, który jest procesem, w którym all-trans-retinol jest przekształcany w 11-cis-retinal w RPE i zewnętrznym segmencie fotoreceptora, ułatwiając w ten sposób funkcje wzrokowe po związaniu z rodopsyną9,21.
Gdy all-trans-retinol z krążącego holo-RBP4 przekroczy barierę krew-siatkówka do RPE w tkance oka przez STRA6, all-trans-retinol w RPE jest najpierw estryfikowany do estrów retinylu przez LRAT, a następnie hydrolizowany do 11-cis-retinolu przez białko 65 kDa specyficzne dla pigmentu siatkówki (RPE65). 11-cis-retinol jest następnie przekształcany w 11-cis-retinol przez dehydrogenazę retinolu 5. Ten 11-cis-retinal jest następnie przenoszony do zewnętrznego segmentu fotoreceptora (OS) przez białko wiążące retinoidy między fotoreceptorami (IRBP)9,21. W obrębie retikulum endoplazmatycznego, które otacza jądro fotoreceptora w zewnętrznej warstwie jądrowej (ONL), opsyna GPCR są syntetyzowane i transportowane przez rzęskę łączącą (CC). Białka motoryczne, które są zaangażowane w ten transport przez CC, są sporne, ale obecne hipotezy sugerują, że transport wewnątrzwiciowy oparty na kinezynie i dyneinie (IFT) lub transport oparty na miozynie są prawdopodobnymi ułatwieniami tego procesu14,22,23,24,25,26. Gdy te dwa składniki spotkają się w błoniastych dyskach w systemie operacyjnym, 11-cis-retinal i opsyna tworzą 11-cis-retinyliden poprzez wiązanie kowalencyjne zasady Schiffa w lizynie 196 na rodopsynę, gotowe do fototransdukcji8.
Podczas gdy ekspresja STRA6 w RPE siatkówki ułatwia przyjmowanie all-trans-retinolu z holo-RBP4, nie stwierdzono, aby STRA6 był wyrażany w wątrobie, pomimo jego roli jako głównego narządu homeostatycznego dla witaminy A i wykazywania zdolności do przyjmowania all-trans-retinolu z holo-RBP415,19,27,28, 29,30,31. Ostatecznie odkryto analogiczny receptor zwany białkiem wiążącym retinol 4 receptor 2 (RBPR2), wykazujący zdolność do przyjmowania all-trans-retinolu z holo-RBP4, podobnie jak STRA6, ale ulega ekspresji w tkance wątrobowej32.
Dlatego pełne zrozumienie roli rodopsyny w funkcjonowaniu wzroku wymaga zrozumienia procesów biologicznych, które kończą się regeneracją pigmentu wzrokowego. To z kolei jest ściśle związane z wcześniej opisanymi procesami, w tym metabolizmem prekursorów prowitaminy A, magazynowaniem w wątrobie, uwalnianiem holo-RBP4 przez wątrobę i ostatecznym wychwytem holo-RBP4 przez receptory błonowe STRA6 i RBPR2. Jak wspomniano powyżej, modele zwierzęce, takie jak myszy, pozostają jednym z głównych modeli w badaniu takich procesów. W związku z tym chcielibyśmy przedstawić metodę ekstrakcji retinoidów w tkance myszy, a także metodę wysokosprawnej chromatografii cieczowej (HPLC) w fazie normalnej, która może wykryć i określić ilościowo te retinoidy. Za pomocą tych metod można analizować ważne retinoidy opisane powyżej, takie jak ligand rodopsyny 11-cis-retinal lub główny transport retinoidu all-trans-retinol, w narządach oka, wątroby i układu. Oceniając podaż retinoidów w tkance mysi, możemy jeszcze bardziej pogłębić naszą wiedzę na temat stanów chorobowych i patologii związanych z logistycznym zaopatrzeniem w retinoidy.
Oprócz funkcjonowania jako chromofor w funkcji wzrokowej poprzez powiązanie z opsynami GPCR, retinoidy odgrywają również ważną rolę w sygnalizacji komórek ssaków poprzez sygnalizację kwasu retinowego, ułatwianą przez dwie rodziny receptorów jądrowych, receptory kwasu retinowego (RAR) i receptory retinoidowe X (RXR), które wiążą się bezpośrednio z DNA i regulują transkrypcję genów33. Te dwie rodziny lub receptory wykorzystują retinoidy w postaci kwasów retinowych jako ligand. Wykazano, że RAR mają powinowactwo zarówno do kwasu all-trans-retinowego, jak i kwasu 9-cis-retinowego, podczas gdy RXR wyrażają powinowactwo tylko do kwasu 9-cis-retinowego34,35. Kwasy retinowe w niekontrolowanych ilościach są teratogenne, a sygnalizacja kwasu retinowego musi być niezwykle ściśle kontrolowana36. Produkcja kwasów retinowych do sygnalizacji musi odbywać się lokalnie i w bardzo określonych punktach czasowych dla prawidłowego rozwoju tkanek, takich jak rozwój tyłomózgowia i kończyn, ale niezliczone inne przykłady wykorzystują sygnalizację kwasu retinowego37,38. W komórkach biorących udział w sygnalizacji kwasu retinowego kwasy retinowe są syntetyzowane przez dwie grupy enzymów, dehydrogenazy alkohol/retinol (ADH/RDHs), które ułatwiają utlenianie retinoli pobieranych przez STRA6 lub RBPR2 do retinaldehydów oraz dehydrogenazy retinaldehydowe (RALDH), które ułatwiają utlenianie retinaldehydów do kwasów retinowych39. Chociaż nie uczestniczą w sygnalizacji GPCR per se, kwasy retinowe są jednak kluczowym retinoidem, który działa również jako ligand dla receptorów sygnałowych.
Chociaż nie jest to tutaj szczegółowo opisane, chcielibyśmy podziękować za wcześniej ustalone metody wykrywania retinoidów za pomocą HPLC w różnych kontekstach, takich jak badania żywności i badania mikrobiologicznej rodopsyny. Metody te wykorzystują różne cele i podejścia do wykrywania retinoidów, w tym wykorzystanie technik odwróconej fazy, które wymagają mniej lotnych i niebezpiecznych faz ruchomych40,41,42, wykrywanie kwasów retinowych i związanych z nimi izomerów40,41, oraz oczyszczanie i ekstrakcja z różnych źródeł biologicznych43. Nasza metoda koncentruje się w szczególności na wykrywaniu palmitynianu retinylu, izomerów retinaldehydu i izomerów retinolu w tkance ssaków. Należy rozważyć różne protokoły, jeśli zamierzony przypadek użycia różni się od tego konkretnego zastosowania.
Protokół
UWAGA: Wszystkie eksperymenty na zwierzętach zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt (IACUC) Uniwersytetu Minnesoty (protokół # 2312-41637A) i przeprowadzone zgodnie z Oświadczeniem ARVO dotyczącym wykorzystania zwierząt w badaniach okulistycznych i wzrokowych. Wykonuj wszystkie ekstrakcje w ciemności, w słabym czerwonym świetle dla oświetlenia. Należy zwrócić uwagę na szczątkowe światło emitowane przez wyświetlacze wskaźników i diody LED akcesoriów.
1. Generacja wzorca spektrofotometrycznego retinoidu i zewnętrzna krzywa wzorcowa
UWAGA: Przygotuj pojemnik na suchy lód do tymczasowego przechowywania retinoidów przed analizą za pomocą HPLC.
- Zważyć dowolną, ale odpowiednią ilość retinoidów i rozpuścić je w odpowiednim rozpuszczalniku w celu ilościowego określenia za pomocą spektrofotometrii.
UWAGA: Rozpuszczalnikiem z wyboru użytym w tym badaniu jest etanol, a wartości absorpcji molowej retinoidów rozpuszczonych w etanolu są szczegółowo opisane w Tabeli 1. Do rozpuszczania wzorców i próbek należy użyć bezwodnego etanolu klasy HPLC. Etanol oczyszczony wyłącznie przez destylację tworzy azeotropową mieszaninę z wodą, zawierającą około 4% objętości wody. Woda nie miesza się z heksanową fazą ruchomą i spowoduje uwodnienie stacjonarnej fazy krzemionki, co doprowadzi do ostatecznej degradacji kolumny. - Wykorzystując prawo Beera-Lamberta i absorpcję molową odpowiedniego retinoidu, określ ilościowo stężenie wygenerowanego wzorca (Tabela 1).
Absorbancja = Chłonność molowa (ε) × Stężenie molowe × długość ścieżki - Wykonaj seryjne rozcieńczenia, aby uzyskać stężenia, które mogą wygenerować krzywą wzorcową w zakresie ilościowym dla pożądanej tkanki.
UWAGA: Należy pamiętać o podstawowych ograniczeniach prawa Beera-Lamberta, takich jak jego brak ważności przy wysokich stężeniach analitu. Aby uniknąć tego problemu, rozcieńczone wzorce retinoidów powinny unikać generowania wartości absorbancji większych niż 1. W przypadku naszych zastosowań w oznaczaniu ilościowym retinolu i retinaldehydu w narządach mysich stwierdziliśmy, że krzywa kalibracyjna w zakresie 1-10 ng była w stanie pokryć typowe znalezione ilości. W przypadku oznaczania ilościowego palmitynianu retinylu z mysiej wątroby stwierdziliśmy, że krzywa kalibracyjna w zakresie 20-80 μg była w stanie pokryć typowe znalezione ilości. - Poprzez stopniową zmianę objętości wstrzyknięcia z wcześniej utworzonego roztworu podstawowego, a tym samym stopniową zmianę wstrzykniętej ilości retinoidu, zintegruj piki, aby wygenerować zewnętrzną krzywą wzorcową odpowiednią do kwantyfikacji retinoidów, w której integracja pików jest wprost proporcjonalna do ilości wstrzykniętego retinoidu.
2. Pobieranie tkanek i pobieranie próbek
UWAGA: Przygotuj pojemnik na suchy lód do tymczasowego przechowywania tkanek przed homogenizacją tkanek i ekstrakcją retinoidów. Zalecane ilości pobranych tkanek są wyszczególnione w Tabeli 2. Aby uwzględnić zmiany retinoidów spowodowane zmianami w zawartości krwi dla każdej tkanki, ekstrakcję tkanek należy przeprowadzić na w pełni perfundowanych myszach, a ekstrakcję krwi należy zakończyć na oddzielnych myszach.
- Poddaj myszy eutanazji zgodnie z wytycznymi określonymi przez Instytucjonalny Komitet ds. Opieki nad Zwierzętami i Użytkowania (IACUC) podyktowany protokołem (uduszenie CO2 tutaj).
- Krew: Bezpośrednio po eutanazji odetnij głowy myszom nożyczkami i spuść krew z głównego tułowia myszy do probówki o pojemności 1,5 ml.
- Oko: Za pomocą kleszczy usuń oczy z odciętej głowy.
- Mózg: Za pomocą małych nożyczek przetnij odciętą głowę i usuń mózg za pomocą kleszczy.
- Nerka, wątroba, śledziona, serce i płuco: Za pomocą małych nożyczek wykonaj nacięcie w jamie brzusznej, przeciąć w górnym kierunku wzdłuż linii środkowej i przeciąć mostek i klatkę piersiową. Usuń odsłoniętą tkankę za pomocą kleszczy.
3. Homogenizacja tkanek
UWAGA: Jeśli pożądana jest analiza mniejszych podziałów narządów, takich jak w większych narządach (np. wątroba lub tkanka płucna), cały narząd powinien być homogenizowany, aby uniknąć różnic w zawartości retinoidów w różnych częściach tkanki. Zamiast tego należy podzielić homogenat, jeśli pożądane są mniejsze ilości tkanki. Schemat protokołu jest szczegółowo opisany w Rysunek 2. Ten zmodyfikowany protokół został zaadaptowany z Kane and Napoli44.
- Umieść chusteczkę w probówce młynka do tkanek wraz z 50% lodowatą solą fizjologiczną (0,9%) i 50% metanolem. Patrz Tabela 2, aby zapoznać się z objętością stosowaną dla każdego typu tkanki.
- Umieść tłuczek w rurce młynka, powoli i delikatnie wykonaj pięć pełnych obrotów tłuczkiem, aby uzyskać homogenat.
- Próbki należy przenieść do probówek o pojemności 15 ml natychmiast po homogenizacji.
- Dodać 2 ml metanolu i odstawić na 15 minut w temperaturze pokojowej.
UWAGA: Jeśli pożądana jest analiza pochodnych oksymu retinaldehydu, dodaj 1 ml 0,1 M chlorowodorku hydroksyloaminy do 0,1 M HEPESA (pH 6,5) (Rysunek 1).
4. Ekstrakcja retinoidów
UWAGA: Heksan jest wysoce łatwopalny, wysoce lotny i wysoce toksyczny. Podczas obchodzenia się z heksanem należy używać respiratorów zatwierdzonych przez National Institute for Occupational Safety and Health (NIOSH), ochrony oczu, rękawic butylowych i okapu wyciągowego. Podczas odparowywania heksanu z próbek zaleca się stosowanie jakiejś formy aparatu o zwiększonej cyrkulacji powietrza, aby zapobiec gromadzeniu się oparów rozpuszczalnika, na przykład aparatu do odsysania fajki.
- Dodać 10 ml heksanu do homogenatu i mieszać probówkę w poziomie przez co najmniej 10 s.
UWAGA: Bardzo ważne jest, aby fazy w pełni się wymieszały. - Odwirować mieszaninę homogenatu i heksanu przez 3 minuty w temperaturze 1 000 × g, aby ułatwić separację faz.
- Przeprowadź ekstrakcję 2x, aby zapewnić całkowitą ekstrakcję retinoidów z homogenatu. Powtórz kroki 4.1 i 4.2.
- Odciągnąć warstwę heksanu za pomocą pipety i umieścić warstwę heksanu w osobnym zestawie szklanych probówek o pojemności 15 ml do odparowania próżniowego.
UWAGA: Do odparowania należy używać SZKLANYCH probówek o pojemności 15 ml, aby uniknąć przywierania retinoidów do ścianek probówki. - Za pomocą wirówki próżniowej całkowicie odparować heksan.
5. Ponowne zawieszenie i analiza HPLC
UWAGA: Ponieważ system HPLC użyty w tym manuskrypcie był binarnym systemem pompowym, czteroskładnikowa faza ruchoma została wstępnie zmiksowana w pojedynczej butelce przed uruchomieniem.
UWAGA: Wszystkie cztery rozpuszczalniki organiczne używane w tej metodzie są wysoce łatwopalne, wysoce lotne i wysoce toksyczne. 1,4-dioksan jest podatny na wybuchowe tworzenie się nadtlenku po wystawieniu na działanie tlenu. Przechowywać wszystkie naczynia zawierające 1,4-dioksan zamknięte, gdy nie są używane. Podczas pracy z tymi rozpuszczalnikami należy używać respiratorów zatwierdzonych przez National Institute for Occupational Safety and Health (NIOSH), ochrony oczu, rękawic butylowych i dygestorium. Podczas uruchamiania tych rozpuszczalników w HPLC zaleca się stosowanie jakiejś formy aparatu o zwiększonej cyrkulacji powietrza, aby zapobiec gromadzeniu się oparów rozpuszczalnika, na przykład aparatu do odsysania fajki.
- Ponownie zawiesić wysuszoną probówkę o pojemności 15 ml ze 100 μl heksanu; dobrze przemieszać, aby upewnić się, że wszystkie retinoidy są rozpuszczone.
- Odpipetować wszystkie 100 μl heksanu do jednej szklanej wkładki w celu analizy HPLC.
- Konfiguracja HPLC (zaadaptowana z Landers i Olson45): faza ruchoma: 85,4% heksan (v/v), 11,2% octan etylu (v/v), 2% dioksan (v/v), 1,4% 1-oktanol (v/v); kolumna: dwie kolumny ID 4,6 mm x 250 nm, 5 μm, połączone szeregowo; wielokolumnowy Temperatura termostatu: 25 °C; objętość wtrysku: 100 μL; natężenie przepływu: 1 ml/min; Czas trwania: 40 min. Użyj wykrywania absorbancji widma UV; pozostaw zaznaczoną opcję, aby uzyskać widmo UV od 200 nm do 400 nm.
6. Identyfikacja i integracja pików
- Zidentyfikuj piki za pomocą czasu retencji i widm UV każdego interesującego retinoidu, jak zaobserwowano na podstawie analizy wzorców retinoidów (Rysunek 3, Tabela 3 i Tabela 4).
- Korzystając z systemu danych chromatograficznych wybranego systemu HPLC, zintegruj zidentyfikowane piki. Całkowanie lub pole pod krzywą jest wprost proporcjonalne do ilości analitu. Odwołać się do krzywej wzorca zewnętrznego wygenerowanej w kroku 1 w celu ilościowego określenia analitu.
- Do analizy chromatogramów wygenerowanych z tkanki biologicznej należy stosować całkowanie ręczne zamiast całkowania automatycznego oferowane przez typowe systemy danych chromatograficznych, ponieważ w takich próbkach często obserwuje się zmiany parametrów, takich jak czas retencji.
- Upewnij się, że chromatogramy nie wykazują nieprawidłowości, które mogą wskazywać na problemy podczas przebiegu, takie jak hałaśliwe linie podstawowe lub piki niegaussowskie. Problemy te wskazują na zanieczyszczenia w HPLC lub zużycie kolumn i powinny zostać naprawione w celu prawidłowej analizy.
Wyniki
W niniejszej pracy wykorzystaliśmy opisaną powyżej metodę do wykrywania i oznaczania ilościowego retinoidów w tkankach oka oraz tkankach systemowych myszy, a następnie wygenerowaliśmy reprezentatywne chromatogramy. Dodatkowo przedstawimy podsumowanie typowych retinoidów, które można wykryć w tych tkankach.
Myszy w wieku 6 miesięcy uśmiercono poprzez uduszenie CO2. Aby zachować zawartość retinoidów w oku, myszy adaptowano do ciemności przez 2 dni przed uśmierceniem i ekstrakcją. Do ekstrakcji retinoidów i późniejszej analizy HPLC pobrano dwa oczy, 0,2 g wątroby oraz 75 μL krwi. W przypadku tkanek oka jedno oko ekstrahowano bez dodatku hydroksyloaminy, natomiast drugie poddano działaniu hydroksyloaminy. W przypadku wątroby i krwi traktowanie hydroksyloaminą nie było konieczne, ponieważ w tych tkankach zazwyczaj nie wykrywa się retinaldehydów.
Na chromatogramie oka myszy niepoddanego działaniu hydroksyloaminy zidentyfikowano 13-cis-retinal, będący jednym z dwóch niekanonicznych izomerów retinaldehydu. Ponadto zidentyfikowano oba kanoniczne izomery retinaldehydu: 11-cis-retinal oraz all-trans-retinal. Na obu chromatogramach zidentyfikowano zarówno 11-cis-retinol, będący produktem pośrednim cyklu wzrokowego, jak i all-trans-retinol, główną formę transportową witaminy A (Rycyna 4A).
W chromatogramie oka myszy traktowanego hydroksyloaminą wszystkie wcześniej wspomniane izomery retinaldehydu były nadal obecne. Jednakże czasy retencji dla tych izomerów uległy znacznemu wydłużeniu. Co więcej, izomery retinaldehydu występują obecnie zarówno w formie izomerów syn, jak i anti. Podczas ilościowego oznaczania za pomocą całkowania pików należy zsumować piki syn oraz anti, aby uzyskać dokładną wartość całkowania. Zarówno 11-cis-retinol, jak i all-trans-retinol były nadal obecne (Rycyna 4B).
Na chromatogramie tkanki wątrobowej myszy zidentyfikowano palmitynian retinylu oraz all-trans-retinol. Palmitynian retinylu, będący estrem retinylu, służy jako główna forma magazynowania witaminy A u ssaków i występuje w znacznych ilościach w tkance wątrobowej ssaków. Wątroba uwalnia witaminę A do tkanek systemowych w postaci holo-RBP4, zawierającej all-trans-retinol w kompleksie RBP4-transtyretyna. W związku z tym na tym chromatogramie można zidentyfikować duży pik all-trans-retinolu (Rysunek 4C).
Na chromatogramie krwi mysiej zidentyfikowano duży pik all-trans-retinolu. Biorąc pod uwagę, że holo-RBP4 z wątroby jest uwalniana do tkanek systemowych poprzez układ krwionośny, jest to wynik oczekiwany (Rysunek 4D). Charakterystyczne absorbancje w widmie UV (~250-400 nm) izoform retinoidów w rozdzielonych w czasie pikach HPLC mogą być pomocne przy wstępnym potwierdzaniu obecności danej izoformy w odpowiednim piku (Rysunek 5).
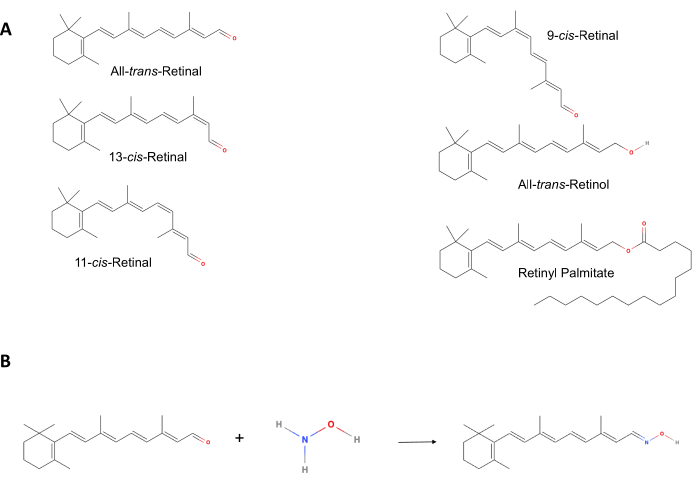
Rycina 1: Struktury chemiczne retinoidów. (A) Retinoidy te są zazwyczaj spotykane w ekstraktach z tkanek mysich. Należy zwrócić uwagę na różnice w polarnych grupach końcowych, a także na odmienne położenia wiązań podwójnych cis w izomerach retinoidów. (B) Konwersja retinaldehydów do oksymów retinalu zwiększa wydajność ekstrakcji, zapobiega koelucji pików z palmitynianem retinylu, a także koelucji w obrębie izomerów retinaldehydu. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 2: Schemat pobierania tkanek, homogenizacji, ekstrakcji i analizy retinoidów. Siatkówki i próbki tkanek od myszy zaadaptowanych do ciemności zostały poddane homogenizacji i ekstrakcji. Krok 1: Po eutanazji myszy zgodnie z wytycznymi pobiera się krew i różne tkanki. Kroki 2-4: Homogenizację tkanek przeprowadza się z użyciem soli fizjologicznej i metanolu, z dodatkiem chlorowodorku hydroksyloaminy do analiz ilościowych. Kroki 5-7: Retinoidy są traktowane heksanem, a następnie odparowywane. Kroki 8,9: Próbki są resuspenderowane w 100 µL heksanu, aby zapewnić całkowite rozpuszczenie wszystkich retinoidów. Krok 10: Na koniec próbki są analizowane za pomocą HPLC. Skrót: HPLC = wysokosprawna chromatografia cieczowa. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 3: Chromatogram standardów retinoidów oraz standardów retinoidów traktowanych hydroksyloaminą. (A) Ten chromatogram zawiera standardy palmitynianu retinylu, 13-cis-retinalu, 11-cis-retinalu, all-trans-retinalu, 11-cis-retinolu, 13-cis-retinolu oraz all-trans-retinolu. (B) Ten chromatogram zawiera standardy palmitynianu retinylu, 13-cis-retinalu, 11-cis-retinalu, all-trans-retinalu, 11-cis-retinolu, 13-cis-retinolu oraz all-trans-retinolu. Chromatogram ten zawiera izomery oksymu retinaldehydu w postaci syn i anti, oprócz izomerów retinolu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Reprezentatywne chromatogramy. (A) Reprezentatywny chromatogram tkanki ocznej myszy. Ten chromatogram zawiera retinoidy typowo występujące w tkance ocznej myszy, w tym izomery retinaldehydu oraz izomery retinolu. (B) Reprezentatywny chromatogram tkanki ocznej myszy traktowanej hydroksyloaminą. Należy zauważyć, że zamiast niemodyfikowanych chemicznie retinaldehydów występujących na poprzednim chromatogramie (Rycina 4A), ten chromatogram zawiera izomery oksymowe retinaldehydu w postaci syn i anti, a także izomery retinolu. (C) Reprezentatywny chromatogram tkanki wątroby myszy. Ten chromatogram zawiera retinoidy typowo występujące w tkance wątrobowej myszy, w tym palmitynian retinylu oraz all-trans-retinol. (D) Reprezentatywny chromatogram krwi myszy. Ten chromatogram zawiera retinoidy typowo występujące we krwi myszy, w tym all-trans-retinol. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
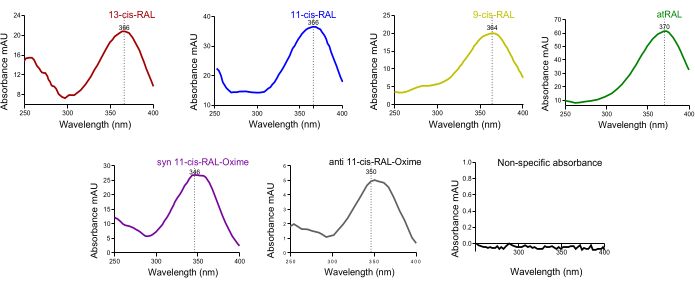
Rycina 5: Widmo absorbancji UV izomerów retinaldehydu z tkanki ocznej myszy. Widma absorbancji dla (A) 13-cis-retinalu, (B) 11-cis-retinalu, (C) 9-cis-retinalu, (D) all-trans-retinalu, (E) syn 11-cis-oksymu retinalu, (F) anti 11-cis-oksymu retinalu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 6: Przegląd modułów HPLC, przepływu fazy ruchomej oraz pozostałej aparatury. Przepływ fazy ruchomej rozpoczyna się od przygotowanych butelek z rozpuszczalnikiem, który jest pompowany pod wysokim ciśnieniem przez pompę binarną do autopróbownika, gdzie analityt zostaje wprowadzony do strumienia rozpuszczalnika. Faza ruchoma i analityt trafiają do termostatowanej komory kolumny, a na koniec do detektora macierzy diodowej w celu pomiaru. (A) Ekran monitora z czerwonym filtrem minimalizujący fotoizomeryzację retinoidów. (B) Pompa binarna. (C) Próbownik do fiolek. (D) Termostat wielokolumnowy. (E) Detektor macierzy diodowej. (F) Analityczny kolektor frakcji. (G) Pojemnik na odpady z polietylenu o wysokiej gęstości. (H) Od lewej do prawej: aluminiowy zakrętek zaciskowy, wkładka 250 μL z polimerowymi nóżkami, bursztynowa fiolka z zakrętką zaciskową, końcowy montaż fiolki do wstrzykiwania. (I) Po lewej: wirówka chłodząca. Po prawej: koncentrator wirówkowy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Związek | Współczynnik absorpcji molowej (ε) | Rozpuszczalnik | Literatura |
| Palmitynian retinylu | 49260 | Etanol | Hubbard i wsp.49 |
| 13-cis-Siatkówkowy | 35500 | Etanol | Hubbard i wsp.49 |
| 11-cis-Siatkówkowy | 24935 | Etanol | Hubbard i wsp.49 |
| 9-cis-Siatkówkowy | 36100 | Etanol | Robeson i wsp.51 |
| Wszystkie-Proszę podać tekst źródłowy do przetłumaczenia.-Siatkówkowy | 42880 | Etanol | Hubbard i wsp.49 |
| 11-cis-Retinol | 34890 | Etanol | Hubbard i wsp.49 |
| 13-cis-Retinol | 48305 | Etanol | Robeson i wsp.50 oraz Robeson i wsp.51 |
| Wszystkie-Proszę podać tekst źródłowy do przetłumaczenia.-Retinol | 52770 | Etanol | Hubbard i wsp.49 |
Tabela 1: Absorpcja molowa retinoidów w etanolu.Wartości absorpcji molowej retinoidów zostały pobrane z prac Kane i Napoli44, Hubbard i wsp.46, Robeson i wsp.47 oraz Robeson i wsp.48. Absorpcja molowa zależy od rozpuszczalnika. Wartości wymienione tutaj dotyczą retinoidów rozpuszczonych w etanolu.
| Tkanka | Ilość pobranej tkanki | Objętość do homogenizacji |
| Krew | 75 µL | N/D |
| Wątroba | 0.2 g | 2 mL |
| Nerka | 2 całe nerki | 2 mL |
| Skóra | 0.2 g | 1 mL – 1.5 mL |
| Śledziona | 1 cała śledziona | 1 mL |
| Oko | Obie siatkówki, pula 4 siatkówek | 1 mL |
| Mózg | 1 cały mózg | 2 mL |
| Serce | 1 całe serce | 1 mL |
| Płuco | 0.2 g | 2 mL |
Tabela 2: Zalecana ilość tkanki na analizę. Ilość tkanki na analizę oraz objętość 50% lodowatej soli fizjologicznej (0.9%) i 50% metanolu do homogenizacji tkanki, zgodnie z zaleceniami Kane i Napoli44.
| Związek | Czas retencji (min) | Maksimum absorbancji UV (nm) |
| Palmitynian retinylu | 5.177 | 326 |
| 13-cis-Retinal | 7.268 | 366 |
| 11-cis-Retinal | 7.691 | 366 |
| 9-cis-Retinal | 7.931 | 364 |
| All-trans-Retinal | 8.993 | 370 |
| 11-cis-Retinol | 17.003 | 318 |
| 13-cis-Retinol | 17.83 | 328 |
| All-trans-Retinol | 23.933 | 326 |
Tabela 3: Czasy retencji i maksymalne długości fal absorbancji retinoidów. Wartości te zaobserwowano przy zastosowaniu opisanego метода i fazy ruchomej, w detekcji z użyciem wspomnianego detektora macierzy diodowej.
| Związek | Czas retencji (min) | Maksimum absorbancji UV (nm) |
| Syn 11-cis-oksym retinalu | 9.59 | 346 |
| Syn all-trans-oksym retinalu | 10.6 | 356 |
| Syn 13-cis-oksym retinalu | 11.3 | 352 |
| Anti 13-cis-oksym retinalu | 13 | 356 |
| Anti 11-cis-oksym retinalu | 15.1 | 350 |
| Anti all-trans-oksym retinalu | 19.7 | 360 |
Tabela 4: Czasy retencji i długości fal maksymalnej absorbancji retinaldehydów traktowanych hydroksylaminą, w wyniku czego powstały izomery oksymowe syn i anti dla każdego retinaldehydu. Wartości te zaobserwowano przy zastosowaniu opisanego protokołu i fazy ruchomej, przy użyciu wskazanego detektora macierzowego diodowego.
Dyskusja
W tej metodzie HPLC w fazie normalnej służy do wykrywania i ilościowego oznaczania odpowiednich retinoidów, w tym estrów retinylu, retinaldehydów i retinoli. Biorąc pod uwagę znaczenie 11-cis-retinalu jako krytycznego chromoforu w aktywacji rodopsyny GPCR, metoda, która może wykryć metabolity związane z produkcją 11-cis-retinalu, ma kluczowe znaczenie dla badania ogólnych funkcji wzrokowych. Główną zaletą tej metody jest to, że wszystkie istotne izomery zarówno retinaldehydów, jak i retinoli mogą być jednocześnie wykrywane i oznaczane ilościowo w jednym przebiegu. Biorąc pod uwagę, jak rzadkie są żywotne tkanki doświadczalne, metoda ta pozwala na efektywne wykorzystanie tkanek w wykrywaniu retinoidów. Podczas gdy stosowanie faz ruchomych na bazie heksanu i octanu etylu odnotowano w rozdzielaniu retinoidów49, dodanie 1,4-dioksanu i 1-oktanolu poprawia rozdzielczość izomerów retinoidów. 1,4-dioksan jest niezbędny do rozdzielczości 13-cis-retinolu i 11-cis-retinolu50, podczas gdy długołańcuchowe alkohole, takie jak 1-oktanol, dodatkowo poprawiają separację izomerów retinolu 45,51,52.
Do ilościowego oznaczania izomerów retinaldehydu wymagana jest wcześniejsza konwersja do odpowiednich oksymów retinaldehydu z hydroksyloaminą, ponieważ reaktywna grupa aldehydowa jest podatna na reakcje z innymi biocząsteczkami, takimi jak białka i lipidy 45,53,54. Oksymy retinaldehydu są łatwiej ekstrahowane i powodują wymywanie pików retinaldehydu w późniejszym czasie, zapobiegając w ten sposób koelucji pików z nieznaną grupą pików i pikiem palmitynianu retinylu, który eluuje po ~ 5-8 minutach dla tkanek biologicznych. Traktowanie retinaldehydów hydroksyloaminą zapobiega również koelucji retinaldehydów o podobnym czasie elucji45. Konwersja do oksymów retinaldehydu generuje zarówno izomery syn, jak i anty, które eluują w dwóch różnych momentach z dwoma różnymi pikami dla każdego izomeru retinaldehydu. Całkowanie dla obu pików należy zsumować, aby prawidłowo określić ilościowo każdy izomer retinaldehydu. Oprócz czasu retencji, widma UV dostarczają innego wskaźnika, który można wykorzystać do identyfikacji pików. Każdy retinoid wykazuje nieco inne maksimum absorbancji UV. Biorąc pod uwagę czas retencji, te dwa wskaźniki pozwalają na dokładną identyfikację szczytów (Tabela 3 i Tabela 4).
Podczas gdy oczekuje się obecności kanonicznych izomerów retinaldehydu, takich jak 11-cis-retinal i all-trans-retinal, przy czym 11-cis-retinal jest krytycznym chromoforem ligandu rodopsyny, a all-trans-retinal jest fotoizomeryzowanym ligandem, inne niekanoniczne izomery retinaldehydu są wykrywane tą metodą. W szczególności 13-cis-retinal był łatwo wykrywany w przebiegach HPLC mysiej tkanki oka podczas naszej analizy (ryc. 4A-D). Pojawienie się tych niekanonicznych retinaldehydów nie jest całkowicie nieoczekiwane, jednak zarówno 13-cis-retinal, jak i 9-cis-retinal są znanymi produktami ubocznymi wynikającymi ze stresu wywołanego światłem na siatkówce55,56. Te izomery retinaldehydu nie uczestniczą w znanym kanonicznym szlaku kaskadowym fototransdukcji, a ich losy metaboliczne pozostają stosunkowo nieznane. Wykazano jednak, że 9-cis-retinal również stabilnie wiąże się z kieszenią wiążącą rodopsyny, tworząc izorodopsynę. Rola izorodopsyny nie została jeszcze w pełni scharakteryzowana, ale badania wykazały, że izorodopsyna wykazuje zdolności światłoczułe, podobnie jak rodopsyna na bazie 11-cis-retinalu57,58. Przynajmniej zdolność 9-cis-retinalu do stabilnego tworzenia izorodopsyny i fotoizomeryzacji do all-trans-retinalu dostarcza rozsądnego wyjaśnienia jej braku w naszej analizie HPLC56. Z drugiej strony nie wykazano, aby 13-cis-retinal uczestniczył w żadnym znanym szlaku biochemicznym oka, a jego akumulacja w tkance oka może powodować stres oksydacyjny w siatkówce 55,59,60.
Chociaż 9-cis-retinal zazwyczaj nie występuje w tkance mysjej, należy wspomnieć, że metoda traktowana hydroksyloaminą nie jest realną metodą separacji i ilościowego oznaczania 9-cis-siatkówki. Piki dla syn 9-cis-retinal i syn 13-cis-retinal będą koeluować po 11,2 min. W przypadkach, w których spodziewane są znaczne ilości 9-cis-retinalu, na przykład gdy jest on stosowany egzogennie, możliwe będzie tylko ilościowe określenie połączonych 9-cis-retinalu i 13-cis-retinalu. W celu identyfikacji jakościowej, wykonanie metody bez traktowania tkanki hydroksyloaminą pozwala na całkowite oddzielenie pików 13-cis-retinalu i 9-cis-retinalu.
Oprócz tkanki oka, metoda ta może być również łatwo stosowana do tkanki ogólnoustrojowej. Podczas gdy retinaldehydy w różnych formach izomerycznych zazwyczaj nie występują w tkance ogólnoustrojowej, all-trans-retinol związany z białkiem wiążącym retinol 4 (holo-RBP4) jest główną formą transportu witaminy A w organizmach ssaków, a all-trans-retinol można łatwo wykryć we krwi za pomocą tej metody. Oprócz krwi, all-trans-retinol można również wykryć we wszystkich tkankach ogólnoustrojowych. W związku z tym, stosując tę metodę, można uzyskać pełny ogólnoustrojowy profil retinoidowy obejmujący całą tkankę.
Ponieważ retinaldehydy, zwłaszcza krytyczny ligand rodopsyny 11-cis-retinal, są niezwykle podatne na fotoizomeryzację, bardzo ważne jest podjęcie środków zapobiegawczych, aby zapobiec przypadkowemu narażeniu na światło podczas któregokolwiek z opisanych powyżej kroków. Oprócz oczywistych źródeł z oświetlenia pomieszczeń i tablic przyrządów, odkryliśmy, że błędne światło z dodatkowych diod LED w różnych instrumentach, takich jak te znajdujące się za instrumentami, w tym samym HPLC, jest głównym źródłem przypadkowej ekspozycji na światło (Rysunek 6). Ponadto odkryliśmy, że dedykowana ciemnia była niezbędna do prawidłowego obchodzenia się z izomerami retinaldehydu i tkankami eksperymentalnymi. Oprócz minimalizacji światła, zalecamy, aby tkanka była szybko i szybko przetwarzana po eutanazji i zbiorze, ponieważ degradacja izomerów retinaldehydu zachodzi nawet przy braku światła. Idealnie byłoby, gdyby pobieranie tkanek, ekstrakcja i analiza HPLC zostały zakończone tego samego dnia.
Tkanka, która nie jest przetwarzana natychmiast, musi być przechowywana w ciemności w temperaturze -80 °C i nie powinna być przechowywana dłużej niż tydzień przed przetworzeniem. Jak wspomniano powyżej, wszystkie rozpuszczalniki stosowane w fazie ruchomej i na etapach ekstrakcji w powyższej metodzie są wysoce toksyczne, lotne i łatwopalne. Podczas obchodzenia się z tymi niebezpiecznymi rozpuszczalnikami należy stosować odpowiednie procedury i sprzęt. Odpowiednie środki ochrony osobistej (PPE), takie jak rękawice butylowe, maski oddechowe zatwierdzone przez NIOSH i ochrona oczu, muszą być założone przed użyciem rozpuszczalnika, a wszystkie transfery rozpuszczalników muszą odbywać się wewnątrz dygestorium. Należy pamiętać, że 1,4-dioksan jest podatny na tworzenie się wybuchowego nadtlenku po wystawieniu na działanie tlenu i przechowywać wszystkie pojemniki z rozpuszczalnikiem z 1,4-dioksanem szczelnie zamknięte przed dostępem powietrza.
Jeśli metoda HPLC w fazie normalnej jest nieopłacalna z powodu nieodpowiednich materiałów lub sprzętu, istnieją bardziej typowe metody odwrócenia fazy z mniej lotnymi rozpuszczalnikami, takimi jak acetonitryl i woda, do wykrywania i ilościowego oznaczania retinaldehydów i retinoli. Jednak metody te nie są w stanie oddzielić izomerów i są w stanie wykryć tylko całkowite retinaldehydy lub całkowite retinole 44,54.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
Ta praca była wspierana przez granty NIH-NEI (EY030889 i 3R01EY030889-03S1) oraz częściowo przez fundusze startowe Uniwersytetu Minnesoty dla G.P.L. Chcielibyśmy również podziękować Narodowemu Instytutowi Okulistyki za udostępnienie nam standardu 11-cis-retinal użytego w tym manuskrypcie.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Odczynnik | |||
| 1-Octanol, odpowiedni do HPLC, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-dioksan, odpowiedni do HPLC, ≥ 99,5% | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-cis-retinol | National Eye Institute | N/A | |
| 11-cis-retinol | Research Chemicals | TRC-R252105 | |
| 13-cis-retinal | Toronto Research Chemicals | TRC-R239900 | |
| 13-cis-retinol | Toronto Research Chemicals | TRC-R252110 | |
| All-trans-Retinal | Toronto Research Chemicals | TRC-R240000 | |
| All-trans-Retinol | Toronto Research Chemicals | TRC-R252002 | |
| Octan etylu, odpowiedni do HPLC, ≥ 99,7% | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| Heksan, klasa HPLC | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| Metanol (HPLC) | Fisher Scienctific | A452SK-4 | |
| Palmitynian retinylu | Toronto Research Chemicals | TRC-R275450 | |
| Chlorek sodu (krystaliczny / certyfikowany ACS) | Fisher Scientific | S271-500 | |
| Instruments | |||
| 1260 Analityczny kolektor frakcji Infinity II | Agilent | G1364F | |
| 1260 Infinity II Pompa | binarna Agilent | G7112B | |
| 1260 Detektor diodowy Infinity II | Agilent | G7115A | |
| Infinity II | Agilent | G7116A | |
| 1260 Infinity II Vialsampler | Agilent | G7129A | |
| ST40R Wirówka z chłodzeniem | Thermo Scientific | TSST40R | |
| Vacufuge Plus Koncentrator wirówek | Eppendorf | 22820168 | |
| Consumables | |||
| 2 mL Bursztynowe fiolki z zakrętką | Agilent | 5188-6535 | |
| Nasadka zaciskana z przegrodą PTFE/czerwona guma, 11 mm | Agilent | 5183-4498 | |
| Jednorazowe szklane stożkowe probówki wirówkowe | Millipore Sigma | CLS9950215 | |
| Probówka z nakrętką, 15 ml | Sarstedt | 62.554.502 | |
| Wkładka do fiolki, 150 &mikro; L, szkło z nóżkami polimerowymi | Agilent | 5183-2088 |
Bibliografia
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
Przedruki i uprawnienia
