Tutaj opisujemy dwie ilościowe metody badania oddziaływań białko-ligand receptorów błonowych witaminy A i opsyny fotoreceptorów z ich odpowiednimi fizjologicznymi ligandami.
Artykuł metodologiczny
Metodologia badania oddziaływań receptorów błonowych witaminy A i białka opsyny z ich ligandami w wytwarzaniu białka retinylidenu
W tym artykule
Podsumowanie
Streszczenie
Dystrybucja witaminy A/all-trans retinolu (ROL) w organizmie jest kluczowa dla utrzymania funkcji retinoidów w tkankach obwodowych i generowania białka retinylidenu dla funkcji wzrokowych. RBP4-ROL to kompleks ROL z białkiem wiążącym retinol 4 (RBP4), który jest obecny we krwi. Dwa receptory błonowe, Retinol Binding Protein 4 Receptor 2 (RBPR2) w wątrobie i STimulowane przez kwas retinowy 6 Retinol (STRA6) w oku, wiążą krążący RBP4 i ten mechanizm ma kluczowe znaczenie dla internalizacji ROL w komórkach. Ustalenie metod badania kinetyki receptor-ligand jest niezbędne do zrozumienia fizjologicznej funkcji receptorów witaminy A dla homeostazy retinoidów. Za pomocą testów powierzchniowego rezonansu plazmonowego (SPR) możemy analizować powinowactwo wiązania i parametry kinetyczne receptorów błonowych witaminy A z jej fizjologicznym ligandem RBP4.
Te metodologie mogą ujawnić nowe strukturalne i biochemiczne informacje o motywach wiążących RBP4 w RBPR2 i STRA6, które są kluczowe dla zrozumienia patologicznych stanów niedoboru witaminy A. W oku zinternalizowany ROL jest metabolizowany do 11-cis retinal, wizualnego chromoforu, który wiąże się z opsyną w fotoreceptorach, tworząc białko retinylidenu, rodopsynę. Absorbancja światła powoduje izomeryzację cis-to-trans siatkówki 11-cis, indukując zmiany konformacyjne w rodopsyny, a następnie aktywację kaskady fototransdukcji. Zmniejszone stężenie ROL w surowicy i oku może wpływać na tworzenie białka retinylidenu, co z kolei może powodować nieprawidłową lokalizację rodopsyny, akumulację opsyny apoproteinowej, ślepotę nocną i zwyrodnienie zewnętrznego segmentu fotoreceptora, prowadząc do barwnikowego zwyrodnienia siatkówki lub wrodzonej ślepoty Lebera.
Dlatego metodologie spektrofotometryczne do ilościowego oznaczania kompleksu siatkówkowego opsyn-11-cis sprzężonego z białkiem G w siatkówce są kluczowe dla zrozumienia mechanizmów degeneracji komórek siatkówki w wyżej wymienionych stanach patologicznych. Dzięki tym kompleksowym metodologiom badacze będą w stanie lepiej ocenić podaż witaminy A w diecie w utrzymaniu homeostazy retinoidów ogólnoustrojowych i ocznych, co ma kluczowe znaczenie dla generowania i utrzymywania stężeń białka retinylidenu w fotoreceptorach, co ma kluczowe znaczenie dla utrzymania funkcji wzrokowych u ludzi.
Wprowadzenie
Witamina A/all-trans retinol/ROL jest ważnym składnikiem odgrywającym rolę w funkcjonowaniu wzrokowym1,2. Chromofor 11-cis retinal, metabolit witaminy A w diecie, wiąże się z opsyną receptora sprzężonego z białkiem G (GPCR) w celu wytworzenia białka retinylidenu, rodopsyny, w fotoreceptorach. Kiedy światło pada na oko, konfiguracja rodopsyny ulega fundamentalnej zmianie poprzez konwersję jej 11-cis-retinalnego komponentu do all-trans-retinalu. Ta zmiana konfiguracji uruchamia kaskadę fototransdukcji w fotoreceptorach pręcików, przekształcając światło w sygnał elektryczny, który jest przesyłany do kory wzrokowej w mózgu za pośrednictwem nerwu wzrokowego3,4,5,6,7,8,9,10. Zmniejszone stężenie surowicy i ROL w oku może wpływać na tworzenie białka retinylidenu, co z kolei powoduje błędną lokalizację opsyny, akumulację opsyny apoproteinowej, ślepotę nocną i zwyrodnienie OS fotoreceptorów, prowadząc do barwnikowego zwyrodnienia siatkówki lub wrodzonej ślepoty Lebera, co może powodować ślepotę3,10.
Retinol all-trans jest podstawową formą transportu witaminy A w diecie i jest źródłem, z którego pochodzą wszystkie funkcjonalne retinoidy i metabolity witaminy A w diecie. Wątroba służy jako główny organ do magazynowania witaminy A w diecie. Retinol wątrobowy jest transportowany przez surowicę jako jego kompleks z białkiem wiążącym retinol 4 (RBP4). RBP4, ulegający głównie ekspresji w wątrobie, tworzy holokompleks z substratem retinolu i transtyretyną (TTR), który dostaje się do krążenia11,12,13,14,15,16,17. Doniesienie o receptorze powierzchniowym komórki dla RBP4 w latach siedemdziesiątych XX wieku doprowadziło do hipotezy, że białka transportowe błony wspomagają transport retinoidów do i z komórek. Receptor powierzchniowy komórki dla retinolu związanego z RBP4 (RBP4-ROL) został zidentyfikowany jako STimulowany przez kwas retinowy 6 Retinol (STRA6) w nabłonku barwnikowym siatkówki (RPE) oka. STRA6 wiąże się z krążącym kompleksem holo-RBP4 i przenosi retinol związany z RBP4 przez RPE, który jest wykorzystywany przez fotoreceptory18,19. Mutacje w STRA6 mogą prowadzić do niezliczonych chorób i fenotypów związanych ze zmniejszonym stężeniem ROL w oku. Mutacje STRA6 podczas rozwoju mogą prowadzić do anoftalmii, mikroftalmii i innych objawów niezwiązanych z oczami, które pokrywają się z fenotypami związanymi z zespołem Matthew-Wooda20,21,22,23,24,25,26,27. STRA6 ulega ekspresji w różnych narządach i tkankach, takich jak RPE w oku, ale nie we wszystkich tkankach26,27. Chociaż głównym miejscem magazynowania retinoidów jest wątroba, STRA6 nie ulega ekspresji w wątrobie.
Alapatt i współpracownicy odkryli, że Retinol Binding Protein 4 Receptor 2 (RBPR2) wiąże RBP4 z wysokim powinowactwem i jest odpowiedzialny za wychwyt retinolu związanego z RBP4 w wątrobie, podobnie jak STRA6 w klasie RPE28. Doniesiono, że RBPR2 dzieli homologię strukturalną z STRA629,30,31. Proponuje się, aby RBP4 wiązał się z resztami S294, Y295 i L296 na RBPR2, domenie wiążącej aminokwasy częściowo konserwatywnej również między RBPR2 i STRA629,30,31. Na podstawie tych badań sugeruje się, że receptory błonowe witaminy A, takie jak STRA6 i RBPR2, które zawierają jedną lub więcej reszt/domen wiążących zewnątrzkomórki, wchodzą w interakcje z krążącym RBP4-ROL. Receptory błonowe odgrywają zatem ważną rolę w wiązaniu receptorów z krążącymi RBP4 w celu internalizacji ROL do tkanek docelowych, takich jak wątroba i oko.
W pierwszej części tego badania wykorzystaliśmy Powierzchniowy Rezonans Plazmonowy (SPR) do zbadania interakcji dwóch receptorów błonowych witaminy A (RBPR2 i STRA6) z ich fizjologicznym ligandem RBP431. Powinowactwo wiązania i kinetyka asocjacji/dysocjacji białka z kompleksami ligandów można mierzyć w czasie rzeczywistym za pomocą SPR. Metodologia ta miała na celu dostarczenie krytycznych informacji kinetycznych, strukturalnych i biochemicznych na temat motywów wiążących RBP4 w RBPR2 i STRA6, które mają kluczowe znaczenie dla zrozumienia patologicznych stanów niedoboru witaminy A31,32. Jak wspomniano powyżej, krążący ROL jest internalizowany do RPE przez STRA6 w celu wytworzenia chromoforu 11-cis retinal, który wiąże się z opsyną w celu wytworzenia białka retinylidenu, rodopsyny, w fotoreceptorach33. Użyliśmy metodologii spektrofotometrii do ilościowego określenia GPCR-opsyny i jej kompleksu ligandowego 11-cis siatkówki w mysich lizatach siatkówki, co ma kluczowe znaczenie dla zrozumienia mechanizmów zmniejszonego białka retinylidenu, rodopsyny, w barwnikowym zwyrodnieniu siatkówki lub wrodzonej ślepo-guzowatej chorobie Lebera34. Ogólnie rzecz biorąc, protokoły te można zastosować do badania in vitro fizjologicznych konsekwencji zmutowanego RBP4, STRA6 lub RBPR2 we wpływie na homeostazę witaminy A w układzie ogólnym i ocznej lub wpływu zmutowanej rodopsyny lub białek cyklu retinoidowego na funkcje wzrokowe35,36.
Protokół
1. Metodologia powierzchniowego rezonansu plazmonowego (SPR)
- Przygotowanie i oczyszczanie mysiego białka RBP4
- Zaprojektuj startery do generowania cDNA myszy RBP4 (msRBP4) o pełnej długości (sekwencja referencyjna NCBI: NM_001159487.1). Sklonuj cDNA msRBP4 do wektora ekspresyjnego opornego na kanamycynę pET28a His-tag i ulegnij ekspresji w komórkach BL-21 DE3 (tabela materiałów).
- Przekształć kompetentne komórki BL-21 DE3 (zgodnie z protokołem producenta) za pomocą ligowanego wektora msRBP4-pET28a, a następnie płytkę na płytkach agarowych bulionu Luria-Bertani (LB) zawierających Kanamycynę 50 μg/ml30,37. Inkubować płytki przez noc w temperaturze 37 °C w inkubatorze, a następnego dnia przeprowadzić badanie przesiewowe w poszukiwaniu dodatnich kolonii.
- Wybierz pojedynczą kolonię i inkubuj przez noc w temperaturze 37 °C w 5 ml bulionu LB zawierającego kanamycynę 50 μg/ml.
- Dla hodowli wtórnej w 500 ml bulionu LB zawierającego Kanamycynę 50 μg/ml należy użyć 1% objętości kultury podstawowej (od kroku 1.1.3) i inkubować w temperaturze 37 °C przez 3-4 godziny; sprawdzić gęstość optyczną za pomocą spektrofotometru. Najlepiej postępować, jeśli wartość OD wynosi od 0,6 do 1, aby indukować ekspresję białka za pomocą 0,5 mM IPTG w temperaturze 24 °C przez noc.
- Stosować wiele stężeń IPTG w zakresie 0,1-1 mM i 16-30 °C, aby zoptymalizować ekspresję i stabilność msRBP4.
- Odwirować kulturę (od etapu 1.1.5) w temperaturze 16 000 × g przez 10 minut, odrzucić supernatant i pozostawić osad na lodzie.
- Homogenizować osad z buforem do lizy (50 mM Tris-HCl, 150 mM NaCl, 0,1% (v/v) Triton X-100, 10% glicerol, 0,5 mM PMSF i inhibitory proteazy [pH 8,0]). Sonikuj lizat przez 15 s cyklu ON i 30 s OFF za pomocą homogenizatora o mocy wyjściowej 250 W i częstotliwości wyjściowej 40-50% 20 kHz. Powtórz 5 razy.
- Usunąć resztki komórek i niezlizowane komórki przez odwirowanie w stężeniu 16 000 × g przez 20 minut. Przepuścić supernatant lizatu przez kolumnę NTA z buforem zrównoważonym.
- Przemyć kolumnę buforem do lizy (z etapu 1.1.8) zawierającym 30 mM imidazolu.
- We frakcjach eluować związane białko msRBP4 za pomocą buforu zawierającego 250 mM imidazolu. Uruchom eluowane frakcje i wizualnie monitoruj ilość białka za pomocą 12% żelu poliakrylamidowego SDS, wybarwionego Coomassie Brilliant Blue R-250 w roztworze metanolu: woda: kwas octowy (45:45:10) i odbarwiaj roztworem bez barwnika Coomassie metanol: woda: kwas octowy (45:45:10).
- Połącz niewykorzystane frakcje i dializa połączonych frakcji za pomocą kasety dializacyjnej 10K o mocy 10 kDa MWCO.
- Oceń jakość dializowanej frakcji na 12% żelu SDS-PAGE i określ ilościowo stężenie białka.
UWAGA: W analizie SPR wykorzystano białko Apo-RBP4. Aby uzyskać informacje na temat generowania holo-RBP4 (RBP4-retinol), zapoznaj się ze szczegółowymi protokołami opublikowanymi w innym miejscu36,37.
- Wstępna walidacja peptydów RBPR2 i STRA6 z RBP4 pod kątem struktury i interakcji za pomocą testu fluorescencji tryptofanu i spektroskopii dichroizmu kołowego (CD)
- Test fluorescencji tryptofanu
- Skorzystaj z internetowego narzędzia do analizy składu białek (https://web.expasy.org/protparam/) i wklej sekwencję aminokwasów w jednoliterowym kodzie, aby ocenić skład strukturalny rekombinowanego białka RBP4 oraz poszczególnych peptydów RBPR2 i STRA6 w celu określenia reszt aminokwasowych tryptofanu w poszczególnych peptydach i białku (tabela materiałów).
- Kliknij przycisk parametrów obliczeniowych i oceń skład aminokwasowy dla reszt tryptofanu (Trp).
UWAGA: Reszty tryptofanu muszą być obecne w poszczególnych analizowanych peptydach lub białkach. - Rozcieńczyć poszczególne peptydy RBPR2 i STRA6 w różnych stężeniach mikromolowych i inkubować pojedynczo z 3 μg msRBP4 na 96-dołkowej płytce w temperaturze pokojowej przez 5 minut. Wzbudzić mieszaninę przy 290 nm i zeskanować emisję od 300 nm do 400 nm długości fali.
- Znormalizuj dane za pomocą ślepej próby (tylko bufor, bez peptydu i bez białka) i warunku kontroli peptydu (bez białka) i wykreśl.
UWAGA: Przyrost fluorescencji tryptofanu po ekspozycji na niskie lub wysokie stężenie peptydu sugeruje pozytywną interakcję między dwoma pojedynczymi peptydami a białkiem RBP4.
- Spektroskopia dichroizmu kołowego (CD)
- Rozcieńczyć poszczególne peptydy i rekombinowane białko RBP4 w 1x buforze PBS, pH 7,0. Do kontroli jakości należy użyć różnych stężeń peptydów RBPR2 i STRA6 oraz białka RBP4 od 0,1 do 10 μg/ml, jak opisano poniżej.
- Dodać pojedyncze rozcieńczone peptydy i białko do kuwety o długości ścieżki 0,1 cm i zmierzyć absorbancję/eliptyczność CD za pomocą spektrofotometru CD (195-250 nm). Skorzystaj z poniższego wzoru, aby obliczyć średnią eliptyczność pozostałości (θ).
[v] = (S × mRw)/(10cl)
S oznacza sygnał CD w mθ; mRw oznacza średnią masę pozostałości; c oznacza stężenie białka w mg/ml; a l oznacza długość ścieżki w cm. - Oblicz procentową zmianę struktury cząsteczki za pomocą analizy struktury drugorzędowej BeStSel do przewidywania fałdowania białek za pomocą spektroskopii CD (https://bestsel.elte.hu).
UWAGA: Struktura drugorzędowa wskazuje na prawidłowe fałdowanie i konserwatywne potwierdzenia kluczowe dla badania interakcji i wyniku interakcji. Sprawdź przewidywaną strukturę domeny i kontynuuj badanie interakcji.
- Test fluorescencji tryptofanu
2. Analiza SPR w celu określenia powinowactwa wiązania i parametrów kinetycznych receptorów błonowych witaminy A (RBPR2 i STRA6) z ich fizjologicznym ligandem RBP4
- Do unieruchomienia RBP4 na powierzchni chipa CM5 używamy chipa czujnika SPR, który przenosi łącznik karboksymetylodekstranowy wydłużony do rozmiaru ~100 nm kowalencyjnie przymocowany do złotej powierzchni. W obecności chlorowodorku 1-etylo-3-(3-dimetyloaminopropylo)karbodimidu (EDC), N-hydroksysukcynimid (NHS) przekształca grupy karboksylowe na powierzchni chipa w estry N-hydroksysukcynimidowe, które spontanicznie reagują z grupami aminowymi aminokwasów i białek, zmuszając ligand do kowalencyjnego wiązania się z powierzchnią chipa (tabela materiałów).
- Unieruchomić oczyszczone białko msRBP4 na chipie czujnika (Rysunek 1 i Rysunek 2). W menu Uruchom oprogramowanie wybierz Kreatora i przejdź do opcji unieruchomienia. Rozcieńczyć ligand (msbiałka RBP4 otrzymanego z kroku 1.1) w buforze immobilizacyjnym (10 mM bufor octanu sodu, pH 5,0) do 10 μg/ml (4 μl liganda + 396 μl buforu) i poddzielić odczynniki sprzęgające w fiolkach. Otwórz okno kreatora konfiguracji unieruchomienia z kontrolki oprogramowania, wybierz chip CM5 i opcję Unieruchomić komórkę przepływową 2 i docelowy poziom 1,200 jednostki odpowiedzi (RU) w celu osiągnięcia Rmax 30 RU w badaniu kinetycznym i roztworze do mycia: etanoloamina. Wprowadź nazwę RBP4 i kliknij przycisk Dalej.
UWAGA: Opcjonalnie: Okno dialogowe Przygotowanie systemu dla opcji Przygotowanie systemu przed uruchomieniem nie jest wymagane, jeśli wcześniej przeprowadzono zalewanie buforem PBST (buforowany fosforanem roztwór soli fizjologicznej z 0,05% roztworem detergentu Tween 20). - W oknie dialogowym Pozycja szafy kliknij przycisk Wysuń stelaż. Weź stojak i umieść fiolki z przypisanymi objętościami dla każdego odczynnika: 156 μl msRBP4, 177 μl etanoloaminy, 89 μl EDC, 89 μl NHS i pustą fiolkę. Włóż stojak z fiolkami na próbki i kliknij OK i Dalej.
- W oknie dialogowym Prepare Run Protocol (Przygotowywanie protokołu uruchamiania) kliknij przycisk Start and Save (Zapisz).
- Unieruchomić oczyszczone białko msRBP4 na chipie czujnika (Rysunek 1 i Rysunek 2). W menu Uruchom oprogramowanie wybierz Kreatora i przejdź do opcji unieruchomienia. Rozcieńczyć ligand (msbiałka RBP4 otrzymanego z kroku 1.1) w buforze immobilizacyjnym (10 mM bufor octanu sodu, pH 5,0) do 10 μg/ml (4 μl liganda + 396 μl buforu) i poddzielić odczynniki sprzęgające w fiolkach. Otwórz okno kreatora konfiguracji unieruchomienia z kontrolki oprogramowania, wybierz chip CM5 i opcję Unieruchomić komórkę przepływową 2 i docelowy poziom 1,200 jednostki odpowiedzi (RU) w celu osiągnięcia Rmax 30 RU w badaniu kinetycznym i roztworze do mycia: etanoloamina. Wprowadź nazwę RBP4 i kliknij przycisk Dalej.
- Zestaw testów kinetycznych peptydów RBPR2 i STRA6
- Seryjnie rozcieńczyć mysie peptydy RBPR2, zmutowane RBPR2 i STRA6 (chemicznie zsyntetyzowane wcześniej31 i wymienione w Tabeli Materiałów) w buforze do pracy w zakresie 0,8-26,6 μM.
- Otwórz oprogramowanie sterujące i wybierz Kreatora Kinetyki/Powinowactwa. Kliknij pozycję Plik | Otwórz szablon i wybierz Kinetyka/Powinowactwo. Wprowadź ścieżkę przepływu 2-1 w oknie dialogowym sekwencji wtrysku (komórka przepływu 2 jako aktywna i komórka przepływu 1 jako odniesienie), sprawdź typ układu CM5 i kliknij przycisk Dalej. W oknie dialogowym konfiguracji zaznacz opcję Uruchom cykle uruchamiania, wprowadź Rozwiązanie: bufor i cykle: i kliknij przycisk Dalej.
- W oknie dialogowym parametrów wtrysku wprowadź wartości parametrów próbki: czas kontaktu: 120 s, natężenie przepływu 30 μL/min, czas dysocjacji 300 s; dla parametrów regeneracji: wprowadź nazwę roztworu do regeneracji: Glycine-HCl (pH 2,5), czas kontaktu: 30 s, natężenie przepływu: 30 μL/min i kliknij Dalej.
- W oknie dialogowym próbek wprowadź nazwę peptydów, masę cząsteczkową i stężenia, a następnie kliknij przycisk Dalej. W oknie dialogowym Pozycja stojaka przypisz rozcieńczone peptydy jako pojedyncze próbki ~120 μL o różnych stężeniach od 1 do 100 μM i ~230 μL buforu, ~120 μL buforu i ~1,000 μL glicyny, pH 2,5, do pozycji na stojaku. Kliknij przycisk Eject Rack (Wysuń stojak) i włóż wszystkie fiolki. Kliknij przycisk Dalej, a następnie w oknie dialogowym Prepare Run Protocol kliknij przycisk Start, wprowadź nazwę pliku i Zapisz (Rysunek 2).
- W oprogramowaniu kliknij menu Start i wybierz opcję Ocena. Wybierz otwórz plik w oprogramowaniu, a następnie z rozwijanego menu wyboru wybierz Fc2-1, aby przeanalizować komórkę referencyjną Blank-subtracted Active sensorgram dla faz asocjacji i dysocjacji peptydów msRBP4 i zmutowanych msRBPR2 i msSTRA6.
- Kliknij przycisk listy rozwijanej Kinetyka/Powinowactwo i wybierz opcję Graniczna powierzchnia; aby otworzyć okno dialogowe Wybierz krzywe, zaznacz opcję Uwzględnij kolumnę w tabeli i kliknij przycisk Dalej. Wybierz okno dialogowe Dane, aby wyświetlić sensorgramy odjęte od pustego miejsca; kliknij Kinetyka i Powinowactwo, zachowaj parametry domyślne, a następnie kliknij opcję Dopasuj dla dopasowania krzywej. Sprawdź kartę Raport pod kątem stałej dysocjacji równowagi Kd i Ka lub Kna współczynniku asocjacji i Kd lub Kpoza współczynnikiem dysocjacji. Zapisz sensorgram danych Kinetics w formacie rozdzielanym tabulatorami .txt i użyj wartości do wykreślenia wykresów (Rysunek 3).
- Aby określić stałą kinetyki powinowactwa Kd (stężenie liganda, które wiąże się z połową receptorów w stanie równowagi), skopiuj i wklej kolumny danych w pliku w formacie .txt wygenerowanym na podstawie wykresu oceny do XY używanego w oprogramowaniu. Kliknij opcję Analiza i regresja nieliniowa (dopasowanie krzywej), sprawdź kolumnę danych i kliknij przycisk OK. W oknie dialogowym parametrów kliknij opcję Nasycenie powiązania i Model dopasowania powiązania specyficzny dla jednego miejsca ze wzorem:
Y= (Bmax*X)/(Kd + X)
Gdzie Bmax to maksymalna liczba miejsc wiązania (jednostka odpowiedzi), X to stężenie peptydów, a Y to wiązanie (jednostka odpowiedzi) (Rysunek 3).
3. Metodologia spektrofotometrii do ilościowego oznaczania kompleksu białkowego siatkówki GPCR-11- cis (białko retinylidenu rodopsyny) w lizatach siatkówki
- Przenieś z góry określoną grupę myszy składającą się z dorosłych myszy WT-C57BL/6J do ciemnego pokoju.
- Ciemne myszy przystosowują się przez noc przez 12-16 godzin, a przy czerwonym świetle umieszczają mysz w komorze eutanazyjnej i otwierają zawór gazowy CO2 na regulatorze do 5 l/min na ~5 min. Upewnij się, że umrą, wywierając nacisk na szyję i ogon ciągnięty do tyłu (zwichnięcie szyjki macicy).
- Wyłuszczyć gałki oczne i homogenizować oczy w lodowatym buforze zawierającym 20 mM bis-tris propan (1,3-bis (tris(hydroksymetylo)metyloamino)propan; BTP) pH 7,4, 150 mM NaCl, 1 mM EDTA oraz z inhibitorem proteazy (tabela materiałów).
- Odwirować homogenat przez 15 minut w temperaturze 16000 x g w temperaturze 4 °C, odrzucić sklarowany sklarant zawierający rozpuszczalne w wodzie białka cytozolowe. Ponownie zawiesić i rozpuścić granulowane białka błonowe i błonowe w buforze zawierającym 20 mM n-dodecylo-β-d-maltozydu (DDM), 20 mM bis-trispropanu (BTP) o pH 7,4, 100 mM NaCl, 1 mM EDTA i inhibitorem proteazy przez 1 godzinę w temperaturze 4 °C na platformie obrotowej.
- Odwirować rozpuszczoną frakcję membranową przez 1 godzinę w temperaturze 16000 x g, 4 °C. Wymieszać supernatant z 30 μl kulek przeciwciała Rho 1D4 i inkubować przez 1 godzinę w temperaturze 4 °C na platformie obrotowej.
- Za pomocą stojaka magnetycznego oddziel ściąganie za pomocą kulek, wyrzuć supernatant i umyj kulki buforem 20 mM bis-tris propan (BTP) pH 7,4, 500 mM NaCl i 2 mM DDM.
- Eluować białko rodopsyny przez inkubację przez 5-10 minut w temperaturze pokojowej z buforem 20 mM bis-tris propan (BTP) pH 7,4, 100 mM NaCl, 2 mM DDM zawierającym 0,2 mg/ml peptydu 1D4 (-TETSQVAPA) (Rysunek 4 i Rysunek 5).
- Analizuj elucję pod kątem absorbancji od 200 nm do 800 nm za pomocą prostokątnej, submikro, kwarcowej, apertury 2 mm, długości ścieżki 10 mm, 50 μl kuwety w szybkim skanowaniu za pomocą spektrofotometru.
UWAGA: Używaj tylko wysokiej jakości kuwet kwarcowych (Rysunek 4). - Aby zweryfikować i określić jakość, sprawdź i wystaw elucję na działanie jasnego światła przez 1 minutę, a następnie powtórz krok 3.8. Odejmij absorbancję ślepej próby i oblicz stosunek analizowanych widm absorbancji z absorbancją przy 500 nm dla opsyny związanej z siatkówką 11-cis, 380 nm dla wystawionej na światło opsyny związanej z siatkówką all-trans i 280 nm dla białka Apo-opsyny bez ligandu (Rysunek 6).
- Wolna opsyna bez liganda siatkówki daje wyjściową absorbancję przy 500 nm.
- Aby określić ilościowo stężenie rodopsyny, użyj prawa Beera-Lamberta:
A=ε·C·l lub C=A/ε·l
Gdzie A to absorbancja, ε molowy współczynnik ekstynkcji (rodopsyna ε500 = 40 600 M−1 cm−1 dla wolnej Apo Opsyny ε280 = 81 200 M−1 cm−1), C to stężenie, a l długość drogi. - Do ilościowego określenia ligandowej opsyny w procentach należy użyć stosunku A280/A500.
- Wykreślić widma absorbancji odjęte od ślepej próby i obliczyć wartość wolnej opsyny32.
- Oblicz stężenie rodopsyny, korzystając ze współczynnika ekstynkcji ε500 = 40600 M−1 cm−1. Stężenie opsyny wolnej od ligandów oblicza się za pomocą prawa Beera-Lamberta przy użyciu współczynnika ekstynkcji ε280 = 81 200 M−1 cm−1.
Wyniki
Opisano metody ilościowe służące do badania oddziaływań białko-ligand receptorów błonowych witaminy A oraz opsyny fotoreceptorów z ich odpowiednimi ligandami fizjologicznymi. Rekombinowane białko RBP4 mysie powinno zostać wyekspresowane w E. coli, a oczyszczone białko powinno być wykorzystane jako ligand sprzężony na chipie SPR. Chemicznie syntetyzowane białka RBPR2, STRA6 oraz mutant S294A RBPR2 „SYL motif RBP4 interacting extracellular site” w postaci peptydów o długości ok. 40 aminokwasów są wykorzystywane jako anality w różnych stężeniach do pomiaru kinetyki wiązania oraz równowagowej stałej dysocjacji Kd oddziaływania (Rycina 1 i Rycina 2).
Rekombinowane białko RBP4, jako ligand dla RBPR2 i STRA6, wykazało powinowactwo wiązania do miejsc oddziaływania w tych peptydach, mierzone jako Kd odpowiednio ~22,38 µM i ~26,73 µM. Motyw aminokwasowy „SYL” odgrywa kluczową rolę w stabilizacji tych oddziaływań zarówno w RBPR2, jak i w STRA6, a zgodnie z przewidywaniami, peptyd mutant S294A wykazał zwiększoną wartość Kd wynoszącą ~114,9 µM, co sugeruje zapotrzebowanie na większą liczbę kopii peptydu mutant-RBPR2 w celu osiągnięcia nasycenia wiązania (Rycina 3). Pobieranie retinolu do oka za pośrednictwem STRA6 i jego przekształcanie w różne retinoidy, aż do końcowej konwersji do 11-cis-retinalu jako chromoforu wiążącego się z resztą lizyny 296 rodopsyny, tworzy funkcjonalny receptor odpowiedzialny za detekcję fotonów i wzrok. Kowalencyjne wiązanie 11-cis-retinalu z białkiem opsyną w celu utworzenia rodopsyny wykazuje charakterystyczne cechy absorbancji. Absorbancja białka występuje przy 280 nm, a absorbancja wolnego retinolu przy ~325 nm. Jednak absorbancja holo-opsyny z 11-cis-retinalem, czyli rodopsyny, występuje przy długości fali 500 nm.
Wszelkie defekty w formowaniu tego kompleksu, wynikające z niskiego systemowego poziomu retinolu lub zaburzeń jego pobierania w wyniku mutacji w RBPR2 lub STRA6, prowadzą do gromadzenia się wolnej opsyny lub apoproteiny opsyny pozbawionej chromoforu 11-cis-retinalu, co zmienia charakterystyczne przesunięcia absorbancji na niską absorbancję przy 500 nm. Poprzez ilościowe oznaczenie absorbancji i zastosowanie stosunku absorbancji dla długości fal 280 nm i 500 nm, możliwe jest oszacowanie ilości opsyn z ligandem lub rodopsyny. Poprzez krótką ekspozycję na światło można zweryfikować przejście absorbancji opsyny związanej z 11-cis-retinalem przy 500 nm (fotowej izomeryzacji) do absorbancji opsyny związanej z all-trans-retinalem (rodopsyny Meta II) przy 380 nm (Rysunek 4, Rysunek 5 oraz Rysunek 6). W układzie eksperymentalnym istnieje wysokie ryzyko wystąpienia artefaktów i zanieczyszczeń; dwiema głównymi zidentyfikowanymi przyczynami artefaktów są niezamierzona ekspozycja na światło z urządzeń oraz płukanie roztworem soli o niskim stężeniu, które nie usunęło cząsteczek zanieczyszczeń z RPE lub soczewki (Rysunek 7).

Rysunek 1: Stanowisko do pomiarów powierzchniowego rezonansu plazmonowego (SPR). Potrzebne materiały i przegląd instrumentacji SPR. (A) Gniazdo ładowania chipa SPR. (A') Chip CM5 z powierzchnią złota, do której kowalencyjnie przyłączono karboksymetylowany dekstran, umożliwiający immobilizację poprzez grupy -NH2, -SH, -CHO, -OH lub -COOH. (B) Robotyczny wkład wkładający próbki. (B') Gumowe nakrętki typu 3. (B'') Plastikowe fiolki 7 mm na alikwoty próbek. (C,D) Zbiornik z buforem do równoważenia/prowadzenia i pojemnik na odpady. (E) Panel sterowania oprogramowaniem Biacore. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Schematyczny przegląd rezonansu plazmonów powierzchniowych oraz etapów pozyskiwania sensorgramów. Krok 1: Powierzchnia chipa CM5 z unieruchomionym białkiem RBP4 z wartością docelową 1 200 jednostek odpowiedzi. Krok 2: Różne stężenia peptydów RBPR2 są przepuszczane jako anality; ta oddziaływanie biomolekularne zmienia gęstość ładunku elektronowego na złotej powierzchni chipa, co prowadzi do zmiany/zredukowania odbicia światła pod konkretnym kątem lub kątem rezonansu. Krok 3: Płukanie odwraca zjawisko plazmonu powierzchniowego, co prowadzi do powrotu intensywności odbicia i spadku sensorgramu do linii bazowej. Kinetykę tych oddziaływań wykorzystano następnie do wyznaczenia stałych asocjacji i dysocjacji oraz siły oddziaływań. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rycina 3: Badania wiązania metodą powierzchniowego rezonansu plazmonowego poszczególnych peptydów domeny wiążącej receptora witaminy A z jego fizjologicznym ligandem RBP4. (A) Komunikat programu wskazujący na osiągniętą immobilizację RBP4 na powierzchni chipa CM5. (B,C,D) Sensogramy oddziaływań peptyd-ligand RBPR2-RBP4, STRA6-RBP4 oraz mutantu S294A RBPR2-RBP4 przy różnych stężeniach. (B',C',D') Kinetyka wiązania i wyznaczanie równowagowej Kd, ukazujące różnice i podobieństwa w schematach wiązania. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
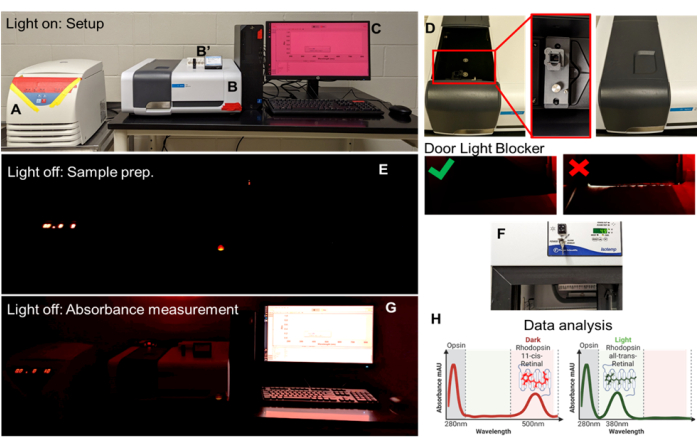
Rycina 4: Stanowisko do pomiaru absorbancji opsyny-11-retinalu cis oraz przegląd instrumentarium. (A) Chłodzona wirówka stołowa, wszystkie wskaźniki LED zaklejone czerwoną taśmą; (B) Spektrofotometr UV-Vis, jeden wskaźnik LED zaklejony czerwoną taśmą; (B') Prostokątna ultra-mikrokuweta, kuweta kwarcowa i uchwyt magnetyczny. (C) Oprogramowanie aplikacyjne do skanowania; (D) Otwarta pokrywa komory spektrofotometru, uchwyt kuwety do analizy oraz zamknięta pokrywa komory. (E) Układ przy wyłączonym świetle i wyłączonym monitorze do przygotowania próbek pod pojedynczym źródłem czerwonego światła. (F) Chłodzony rotator do przygotowania i solubilizacji próbek. (G) Układ przy wyłączonym świetle i włączonym monitorze do pomiaru absorbancji próbek. (H) Analiza absorbancji na wykresie XY. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
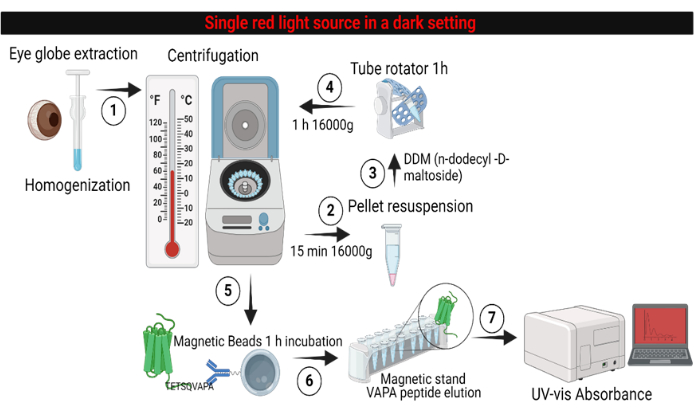
Rysunek 5: Przegląd schematu metodologii pomiaru absorbancji Opsin-11-cis retinalu. Krok 1: Siatkówki myszy zaadaptowanych do ciemności pod pojedynczym źródłem czerwonego światła są izolowane, homogenizowane i solubilizowane w celu uzyskania frakcji błonowych siatkówki. Kroki 2-4: W serii wirowań osad jest solubilizowany w obecności buforu z detergentem DDM i bez dodatku detergentu. Kroki 5-6: Solubilizowany osad zawierający fotoreceptory siatkówki oraz inne białka błonowe, gotowy do immunoprecypitacji (pulldown) i oczyszczania. Krok 7: Eluowany Opsin przy użyciu peptydów VAPA 1D4, gotowy do analizy absorbancji. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
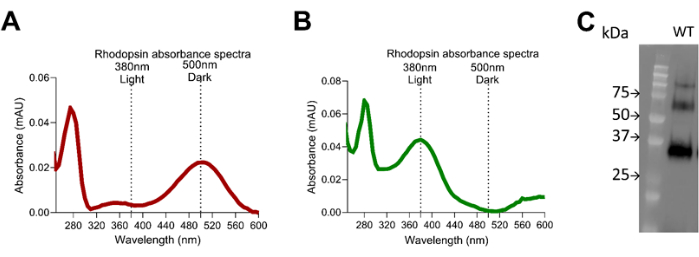
Rycina 6: Widma absorbancji rodopsyny. (A) Ekstrakt z siatkówki myszy zaadaptowanej do ciemności z oczyszczoną rodopsyną przy użyciu 1D4, wykazujący pik absorbancji przy 500 nm, oraz (B) ekstrakt z siatkówki wystawionej na działanie światła z oczyszczoną rodopsyną przy użyciu 1D4, wykazujący pik absorbancji przy 380 nm. (C) Western blot z użyciem przeciwciała 1D4 przeciwko rodopsynie, wykazujący jakość oczyszczania rodopsyny i rozkład wielkości cząsteczek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
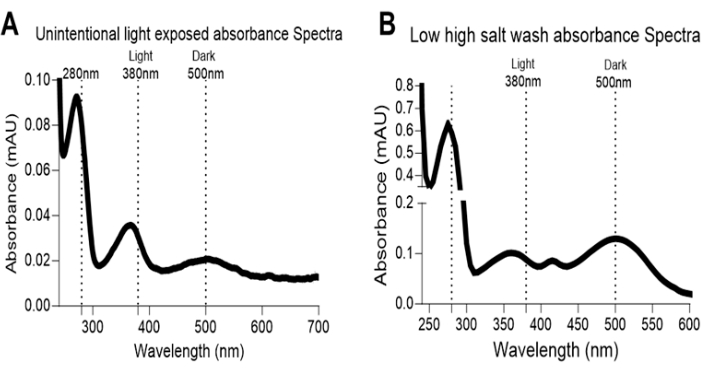
Rysunek 7: Artefakt widm absorbancji rodopsyny. (A) Przedstawiono artefakt w widmach absorbancji ekstraktu z oka zaadaptowanego do ciemności z pikiem absorbancji przy 380 nm; niezamierzone naświetlenie z wskaźników instrumentów lub nieszczelność blokady światła w drzwiach ciemni powoduje blaknięcie białka rodopsyny. (B) Niewystarczające płukanie buforem o wysokim stężeniu soli powoduje gromadzenie się zanieczyszczeń z RPE, soczewki lub innych źródeł z ekstraktu z oka, co prowadzi do dużego rozrzutu widma absorbancji i powstawania artefaktów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
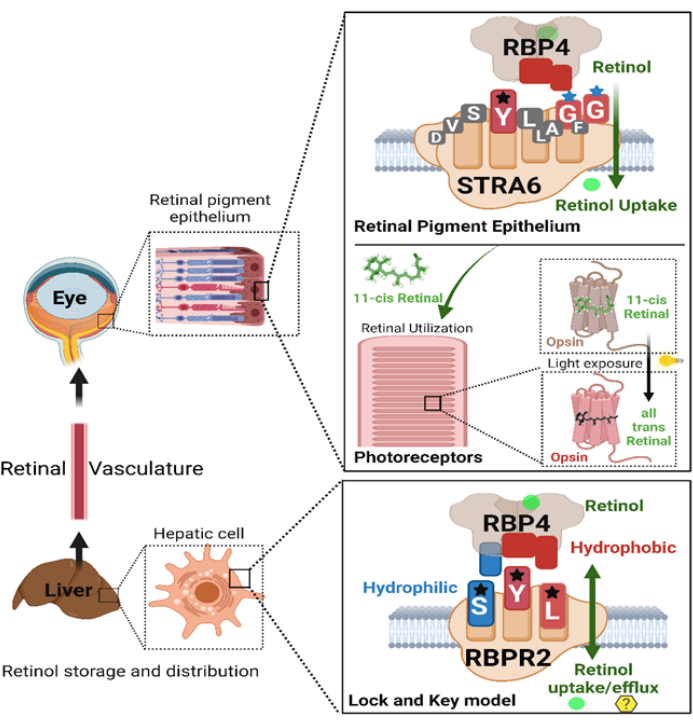
Rysunek 8: Schematyczne przedstawienie oddziaływań między receptorami błonowymi witaminy A (RBPR2 i STRA6) a białkiem opsyną z ich odpowiednimi ligandami (RBP4 i 11-cis retinalem), które są kluczowe dla generowania białka retinylidenowego w fotoreceptorach w celu zapewnienia funkcji wzrokowej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Rycina uzupełniająca S1: Intensywności wewnętrznej fluorescencji tryptofanu. Wstępne dowody na interakcję i zmianę orientacji wewnętrznych reszt tryptofanu RBP4 podczas oddziaływania z różnymi stężeniami peptydów RBPR2 i STRA6. Kliknij tutaj, aby pobrać ten plik.
Rycina dodatkowa S2: Dokowanie i interakcje białko-białko RBPR2 i RBP4. Residy interfejsu zostały zwizualizowane w programie PyMOL, a orientacja RBPR2 w błonie została zwizualizowana przy użyciu narzędzia serwerowego https://opm.phar.umich.edu/. Kliknij tutaj, aby pobrać ten plik.
Rycina dodatkowa S3: Schemat analizy in silico oddziakowań dokowania białko-białko i potencjalnych miejsc kontaktu.Schemat analizy przedstawia sekwencję uruchamianych skryptów Python oraz poleceń wiersza poleceń PyMOL od kroku 1 do 6, co zapewnia wiarygodność procesu wyznaczania miejsc oddziaływań. Kliknij tutaj, aby pobrać ten plik.
Rycina dodatkowa S4: Analiza struktur drugorzędowych metodą spektroskopii CD wykazująca skład peptydów RBP4, RBPR2 i STRA6. Wykres kołowy przedstawia udziały struktur drugorzędowych obecnych w cząsteczce. Analizę przewidywania fałdowania białek na podstawie spektroskopii dichroizmu kołowego przeprowadzono przy użyciu narzędzia BeStSel Secondary Structure (https://bestsel.elte.hu). Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Krytyczne kroki w protokole
Metodologia SPR
Modelowanie in silico i analiza dokowania:Do badania dokowania należy wykorzystać przewidywaną strukturę RBPR2 (https://alphafold.ebi.ac.uk/entry/Q9DBN1) i STRA6 oraz znaną strukturę bazy danych msRBP4 PDB (RSCB PDB ID: 2wqa). Dodatkowo należy zastosować metody in vitro (hodowla komórkowa) w celu potwierdzenia interakcji przypuszczalnych miejsc wiązania na receptorach witaminy A (RBPR2 i STRA6) z jej ligandem (RBP4)29,31 (rysunek uzupełniający S1, rysunek uzupełniający S2 i rysunek uzupełniający S3). Określ jakość peptydów za pomocą spektroskopii CD. Wcześniej, dla widma dalekiego UV CD, stosowano prostokątną komórkę 1 mm 0,1 μg / μL ~ 200 μL (3-4 μg białka RBP4, 32 μM peptydy RBPR2 i 32 μM STRA6)31 (rysunek uzupełniający S4). Przepływ gazowego azotu powinien być wykorzystany do zapobiegania tworzeniu się szkodliwego ozonu pod emitacją lamp ksenonowych i zmniejszenia absorbancji tła przy 200-300 nm. Korzystając z parametru domyślnego, widmo zostało zmierzone w zakresie od 185 nm do 300 nm. Linię bazową należy skorygować przez odejmowanie za pomocą ślepej próby. Zawartość helisy alfa i arkusza beta oblicza się na podstawie właściwości absorbancji, takiej jak ujemne piki helisy alfa przy 222 nm.
Przeanalizuj dane dotyczące białek RBPR2 i STRA6 oraz domen topologicznych w bazie danych (https://www.uniprot.org), potwierdź znane wcześniej możliwe miejsca interakcji z regionów zewnątrzkomórkowych i użyj sekwencji ~40-50 aminokwasów do chemicznej syntezy peptydów. Badanie wymaga oczyszczonego rekombinowanego mysiego białka RBP4 (msRBP4) oraz chemicznie syntetyzowanych peptydów RBPR2 i STRA6 obejmujących proponowane reszty wiążące RBP4 do badania interakcji receptor-ligand 18,19,29,31. Przed sporządzeniem krótkiej listy peptydów należy określić zewnątrzkomórkową sekwencję peptydową oddziałujących białek receptora witaminy A za pomocą analizy in silico (komputerowe dokowanie białko-ligand)31. Test SPR przeprowadza się w celu zrozumienia kinetyki oddziaływań receptor-ligand. Kluczowe znaczenie ma znajomość przewidywanych miejsc interakcji za pomocą testów komputerowych in silico lub analizy in vitro. W tym badaniu zaprojektowany peptyd odwołuje się do zewnątrzkomórkowego regionu białek błonowych RBPR2 i STRA6, o których wiadomo, że wchodzą w interakcje z RBP4. Aby zapewnić dokładne wyniki i zapobiec potencjalnym artefaktom i ujemnym sensorgramom SPR, kluczowa jest standaryzacja, stężeń peptydów i rozpuszczalności. W przypadku badań absorbancji rodopsyny izolacja lizatu siatkówki wymaga rygorystycznych warunków ciemnych i etapów płukania, aby uniknąć artefaktów i niepożądanych pików absorpcji (ryc. 7).
Aby zrozumieć znaczenie motywu SYL na transporterach witaminy A w wiązaniu RBP4, RBPR2, STRA6 i zmutowanego S294A-RBPR2, peptydy31 zostały chemicznie zsyntetyzowane przy użyciu reakcji kondensacji grup karboksylowych i aminowych między dwoma aminokwasami. Protokół podążał za precyzyjnym, stopniowym dodawaniem sekwencyjnych aminokwasów do żywicy kotwiącej. W procesie syntezy aminokwasów zachodzą chemiczne modyfikacje ochrony i deprotekcji jednostki aminokwasowej N-końca, co pozwala na syntezę i tworzenie polimeru peptydowego. Po zakończeniu peptyd jest odzyskiwany z żywicy i oczyszczany. Wstępna walidacja interakcji białka RBP4 i peptydów receptora witaminy A powinna zostać potwierdzona za pomocą wewnętrznego testu fluorescencji tryptofanu i sprawdzona za pomocą spektrometru CD (rysunek uzupełniający S1). Początkową jakość interakcji rekombinowanego białka RBP4 z mysim STRA6 (msSTRA6), mysim RBPR2 (msRBPR2) i peptydami kontrolnymi należy potwierdzić za pomocą wewnętrznego testu fluorescencji tryptofanu (rysunek uzupełniający S1). Test wewnętrznej fluorescencji tryptofanu jest krytyczną procedurą eksperymentalną służącą do oceny wygaszania lub wzmacniania reszt aminokwasowych tryptofanu w białkach do fluorescencji po związaniu receptora i ligandu. Zmierzona fluorescencja jest bezpośrednim wskazaniem zmiany w środowisku lokalnym w wyniku oddziaływania.
Modyfikacje i rozwiązywanie problemów z metodami
Zoptymalizuj SPR za pomocą uruchomionych: 1x sól fizjologiczna buforowana fosforanami (Tween 20) lub 1x HEPES (P20). Aby uniknąć wytrącania się, rozcieńczone peptydy należy odwirować i przefiltrować przed użyciem. Standaryzuj absorbancję rodopsyny za pomocą różnych o wysokiej zawartości soli (300-500 mM NaCl). Aby potwierdzić piki absorbancji rodopsyny w ciemności przy 500 nm, należy wystawić próbki na działanie światła przez 30 s i powtórzyć pomiar, aby zapewnić jakość poprzez przesunięcie piku absorbancji do 380 nm i skuteczność pulldown.
Ograniczenia metod
SPR może dostarczyć konkretnych informacji na temat interakcji dwóch białek; Jeśli jednak interakcja wymaga trzeciego nieznanego komponentu, dane mogą stać się trudne do zrozumienia. Zmiana w konformacji cząsteczki pozostanie niezidentyfikowana w interakcji. Ponieważ białko RBP4 jest wytwarzane pod nieobecność retinolu (apo-RBP4), mierzy się wiązanie apo-RBP4 z jego receptorami. Dlatego RBP4 obciążony retinolem (holo-RBP4) może mieć zmienione powinowactwo do receptorów RBPR2 i STRA6 w porównaniu do apo-RBP435,36. Co ciekawe, powinowactwo do apo i holo-RBP4 dla STRA6 wykazano wcześniej zarówno w zakresie mikromolowym, jak i nie zaobserwowano statystycznej różnicy między wiązaniami apo i holo-RBP4 z receptorem STRA635. Metodologia absorbancji rodopsyny może zidentyfikować obecność niezligandowanej opsyny (opsyny apoproteinowej) w oku, ale nie może zidentyfikować mechanizmu (mechanizmów) sprawczego.
Widma absorbancji rodopsyny
KRYTYCZNY PUNKT KONTROLNY: Fotoizomeryzacja siatkówki 11-cis do siatkówki all-trans jest bardzo czuła i natychmiastowa32. Oznaczanie ilościowe rodopsyny (holo-opsyny) powinno być prowadzone w ścisłych warunkach ciemnych w celu zmierzenia prawidłowej zawartości opsyny i 11-cis w siatkówce w ciemności (500 nm) lub w warunkach dostosowanych do światła, jak rodopsyna Meta II (380 nm)32. Myszy powinny być zatem przystosowane do ciemności w ciemnym pomieszczeniu przez 12-16 godzin, aby zmierzyć niebieloną rodopsynę32. W tym celu w ciemnym pomieszczeniu powinno być całkowicie ciemno, drzwi wejściowe powinny być pokryte tkaniną zaciemniającą, a zewnętrzne źródła światła LED na wszystkich urządzeniach powinny być zaklejone czerwoną taśmą. Przykryj ekran laptopa czerwoną foliową folią i trzymaj ją zamkniętą, aż będzie to wymagane. Wymagane jest również górne źródło światła czerwonego.
KROK KRYTYCZNY: Ustandaryzuj etapy mycia przy różnych wysokich stężeniach soli, aby usunąć białka soczewek lub RPE lub zanieczyszczenia molekularne, które mają absorbancję o długości fali 300-500 nm i mogą potencjalnie zakłócać pomiar absorbancji opsyny.
Znaczenie metod w odniesieniu do istniejących/alternatywnych metod
Nie ma wykonalnego podejścia do badania ogólnoustrojowego wykorzystania retinoidów, wkładu wielotkankowego i wpływu mutacji w receptorach białkowych wiążących retinol na mechanizmy dystrybucji retinolu. Protokół ten wykorzystuje dwie podstawowe techniki do zrozumienia i wypełnienia brakujących połączeń w wyczerpaniu retinolu w fotoreceptorach z Apo-Opsyną i wykorzystaniem magazynowania retinoidów w wątrobie poprzez interakcje receptor-ligand RBPR2-RBP4 (Figura 3, Figura 6 i Figura 8).
Znaczenie i potencjalne zastosowania metody w poszczególnych obszarach badawczych
SPR i testy spektroskopii rodopsyny oparte na absorbancji stanowią istotną strategię badania ogólnoustrojowych i ocznych mechanizmów homeostazy witaminy A w celu wytwarzania białka retinylidenu (rodopsyny). Podsumowując, te techniki i podejścia eksperymentalne mogą wyjaśnić kinetykę zależnego od receptora błonowego transportu retinoidów pokarmowych przez wątrobę i do oka, ułatwiając wytwarzanie rodopsyny (ryc. 8). Pomagają również w zrozumieniu mechanizmów i konsekwencji ocznych mutacji w receptorach witaminy A i białkach opsyny, w szczególności w wiązaniu się z odpowiednimi ligandami. Interakcje te mogą wpływać na wytwarzanie białka retinylidenu, które ma kluczowe znaczenie dla funkcji wzrokowych.
Oświadczenia
Autorzy deklarują brak konfliktu interesów. Fundatorzy nie odegrali żadnej roli w projektowaniu badania; w gromadzeniu, analizie lub interpretacji danych; w pisaniu manuskryptu lub w decyzji o publikacji wyników.
Podziękowania
Autorzy dziękują dr Beacie Jastrzębskiej, Ph.D. (Department of Pharmacology, Case Western Reserve University, OH) za jej porady dotyczące protokołu absorpcji rodopsyny. Praca ta była wspierana przez grant NIH-NEI (EY030889 i 3R01EY030889-03S1) oraz, częściowo, przez fundusze startowe University of Minnesota dla G.P.L.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-D Quant Kit | Cytiva | 80648356 | |
| Amine Coupling Kit | Cytiva | BR100050 | |
| Oprogramowanie ewaluacyjne Biacore Biacore | S200 | wersja 1.1 | |
| Biacore Układ czujnika CM5 | Cytiva | BR100530 | |
| Bis tris propan | Sigma | B6755-25G | 20 mM |
| BL21 DE3 kompetentne ogniwa | Thermo Naukowy | CD EC0114 | |
| Spektropolarymetr | Jasco | J-815 | |
| Glicyna HCL | Fisher Bioodczynniki | BP381-1 | |
| GraphPad Prism | Dopasowanie modelu, analiza danych | ||
| Bulion LB | Fisher Bioodczynniki | BP1426-500 | |
| n-dodecyl-β-d-maltozyd (DDM) | EMD Milipor | 324355-1GM | 2-20 mM |
| pET28a His-tag Wektor ekspresji odporny na kanamycynę | Addgene | 69864-3 | |
| Zestaw do oczyszczania plazmidu | Qiagen | 27106 | |
| Rho1D4 MagBeads | CubeBiotech | 33299 | |
| Kaseta dializacyjna Slide-A_Lyzer 10K | Thermo Scientific | 66810 | |
| Tween20 | Fisher Bioreagents | BP337-500 | 0,05% |
| UV vis Spektrofotometr | Agilent | Cary 60 UV-Vis | |
| Nazwa peptydu | Sekwencja peptydowa | HPLC-czystość | Mass Spec |
| Mouse Rbpr2 (42) | HVRDKLDMFEDKLESYLTHM NETGTLTPIILQVKELISVTKG | 92.14% | Pasuje do |
| myszy Stra6 (40) | SVVPTVQKVRAGINTDVSYL LAGFGIVLSEDRQEVVELVK | 90.84% | Zgadza się |
| z mutantem myszy Rbpr2 S294A (42) | HVRDKLDMFEDKLEAYLTHM NETGTLTPIILQVKELISVTKG | 0.92% | Zgadza się |
Bibliografia
- Dowling, J. E., Wald, G. Vitamin A deficiency and night blindness. Proc Natl Acad Sci U S A. 44 (7), 648-6618 (1958).
- Dowling, J. E., Wald, G. The biological function of vitamin A acid. Proc Natl Acad Sci U S A. 46 (5), 587-608 (1960).
- Kiser, P. D., Palczewski, K. Retinoids and retinal diseases. Annu Rev Vis Sci. 2 (1), 197-234 (2016).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: the long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- O'Byrne, S. M., Blaner, W. S. Retinol and retinyl esters: biochemistry and physiology. J Lipid Res. 54 (7), 1731-1743 (2013).
- Blomhoff, R. Transport and metabolism of vitamin A. Nutr Rev. 52 (2 Pt 2), S13-S23 (2009).
- Chelstowska, S., Widjaja-Adhi, M. A. K., Silvaroli, J. A., Golczak, M. Molecular basis for vitamin A uptake and Storage in Vertebrates. Nutrients. 8 (11), 676(2016).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Chen, C. C., Heller, J. Uptake of retinol and retinoic acid from serum retinol-binding protein by retinal pigment epithelial cells. J Biol Chem. 252 (15), 5216-5221 (1977).
- Gjøen, T., et al. Liver takes up retinol-binding protein from plasma. J Biol Chem. 262 (23), 10926-10930 (1987).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kanai, M., Raz, A., Goodman, D. S. Retinol-binding protein: The transport protein for vitamin A in human plasma. J Clin Invest. 47 (9), 2025-2044 (1968).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J Lipid Res. 45 (11), 1975-1982 (2004).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Kawaguchi, R., et al. Membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kawaguchi, R., Zhong, M., Kassai, M., Ter-Stepanian, M., Sun, H. STRA6-catalyzed vitamin A influx, Efflux, and Exchange. J. Membr. Biol. 245 (11), 731-745 (2012).
- Pasutto, F., et al. Mutations in STRA6 cause a broad spectrum of malformations including anophthalmia, congenital heart defects, diaphragmatic hernia, alveolar capillary dysplasia, lung hypoplasia, and mental retardation. Am J Hum Genet. 80 (3), 550-560 (2007).
- Golzi, C., et al. Matthew-Wood Syndrome is caused by truncating mutations in the retinol-binding protein receptor gene STRA6. Am J Hum Genet. 80 (14), 1179-1187 (2007).
- Isken, A., et al. RBP4 disrupts vitamin A uptake homeostasis in a STRA6-deficient animal model for Matthew-Wood Syndrome. Cell Metab. 7 (3), 258-268 (2008).
- Ruiz, A., et al. Retinoid content, visual responses, and ocular morphology are compromised in the retinas of mice lacking the retinol-binding protein receptor, STRA6. Investig Opthalmol Vis Sci. 53 (6), 3027-3039 (2012).
- Kelly, M., von Lintig, J. STRA6: Role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229(2015).
- Berry, D. C., et al. The STRA6 receptor is essential for retinol-binding protein-induced insulin resistance but not for maintaining vitamin A homeostasis in tissues other than the eye. J Biol Chem. 288 (34), 24528-24539 (2013).
- Amengual, J., et al. STRA6 is critical for cellular vitamin A uptake and homeostasis. Hum Mol Genet. 23 (20), 5402-5417 (2014).
- Steinhoff, J. S., Lass, A., Schupp, M. Retinoid homeostasis and beyond: How retinol binding protein 4 contributes to health and disease. Nutrients. 14 (6), 1236(2022).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Radhakrishnan, R., et al. Mice lacking the systemic vitamin A receptor RBPR2 show decreased ocular retinoids and loss of visual function. Nutrients. 14 (12), 2371(2022).
- Solanki, A. K., et al. A functional binding domain in the Rbpr2 receptor is required for vitamin A transport, ocular retinoid homeostasis, and photoreceptor cell survival in zebrafish. Cells. 9 (5), 1099(2020).
- Radhakrishnan, R., Leung, M., Solanki, A. K., Lobo, G. P. Mapping of the extracellular RBP4 ligand binding domain on the RBPR2 receptor for vitamin A transport. Front Cell Dev Biol. 11 (11), 1105657(2023).
- Ramkumar, S., et al. The vitamin A transporter STRA6 adjusts the stoichiometry of chromophore and opsins in visual pigment synthesis and recycling. Hum Mol Genet. 31 (4), 548-560 (2022).
- Tian, H., Sakmar, T. P., Huber, T. The energetics of chromophore binding in the visual photoreceptor rhodopsin. Biophys J. 113 (1), 60-72 (2017).
- Fan, J., Rohrer, B., Frederick, J. M., Baehr, W., Crouch, R. K. Rpe65-/- and Lrat-/- mice: comparable models of leber congenital amaurosis. Invest Ophthalmol Vis Sci. 49 (6), 2384-2389 (2008).
- Breen, C. J., et al. Production of functional human vitamin A transporter/RBP receptor (STRA6) for structure determination. PLoS One. 10 (3), e0122293(2015).
- Kawaguchi, R., Zhong, M., Sun, H. Real-time analyses of retinol transport by the membrane receptor of plasma retinol binding protein. J Vis Exp. 28 (71), e50169(2013).
- Shi, Y., Obert, E., Rahman, B., Rohrer, B., Lobo, G. P. The retinol binding protein receptor 2 (Rbpr2) is required for photoreceptor outer segment morphogenesis and visual function in zebrafish. Sci Rep. 7 (1), 16207(2017).
Przedruki i uprawnienia
