Wprowadzamy nowatorskie urządzenie do pomiaru wskaźników zużycia tlenu (OCR) w hodowlach nabłonka barwnikowego siatkówki (RPE). Urządzenie może mierzyć OCR przez wiele tygodni na RPE hodowanym na standardowych płytkach do hodowli komórkowych ze standardowymi pożywkami, podczas gdy płytki znajdują się w standardowym inkubatorze do hodowli komórkowych.
Artykuł metodologiczny
Długoterminowe monitorowanie wskaźników zużycia tlenu w wysoce zróżnicowanych i spolaryzowanych kulturach nabłonka barwnikowego siatkówki
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Metabolizm mitochondriów jest krytyczny dla prawidłowego funkcjonowania nabłonka barwnikowego siatkówki (RPE), monowarstwy komórek w siatkówce, ważnej dla przetrwania fotoreceptorów. Dysfunkcja mitochondriów RPE jest cechą charakterystyczną zwyrodnienia plamki żółtej związanego z wiekiem (AMD), głównej przyczyny nieodwracalnej ślepoty w krajach rozwiniętych, oraz proliferacyjnej witreoretinopatii (PVR), oślepiającego powikłania odwarstwienia siatkówki. Stany zwyrodnieniowe RPE zostały dobrze wymodelowane przez systemy hodowli RPE, które są wysoce zróżnicowane i spolaryzowane, aby naśladować RPE in vivo. Jednak monitorowanie wskaźników zużycia tlenu (OCR), wskaźnika funkcji mitochondriów, było trudne w takich systemach hodowli, ponieważ warunki sprzyjające idealnej polaryzacji i różnicowaniu RPE nie pozwalają na łatwe pomiary OCR.
Tutaj wprowadzamy nowatorski system, Resipher, do monitorowania OCR przez wiele tygodni w dobrze zróżnicowanych kulturach RPE, jednocześnie utrzymując RPE na optymalnych podłożach wzrostowych i fizjologicznych podłożach hodowlanych w standardowym inkubatorze do hodowli komórkowych. System ten oblicza OCR, mierząc gradient stężenia tlenu obecnego w pożywkach nad komórkami. Omawiamy zalety tego systemu w porównaniu z innymi metodami wykrywania OCR oraz sposób konfiguracji systemu pomiaru OCR w hodowlach RPE. Omówiono najważniejsze porady i wskazówki dotyczące korzystania z systemu, ostrzeżenia dotyczące interpretowania danych oraz wskazówki dotyczące rozwiązywania problemów z nieoczekiwanymi wynikami.
Udostępniamy również kalkulator online do ekstrapolacji poziomu doświadczenia z hodowlami RPE w hipoksji, normoksji lub hiperoksji na podstawie gradientu tlenu w pożywkach nad komórkami wykrytymi przez system. Na koniec dokonujemy przeglądu dwóch zastosowań systemu, mierząc stan metaboliczny komórek RPE w modelu PVR i rozumiejąc, w jaki sposób RPE metabolicznie dostosowuje się do niedotlenienia. Przewidujemy, że zastosowanie tego systemu w wysoce spolaryzowanych i zróżnicowanych kulturach RPE poprawi naszą wiedzę na temat metabolizmu mitochondrialnego RPE zarówno w stanach fizjologicznych, jak i chorobowych.
Wprowadzenie
Nabłonek barwnikowy siatkówki (RPE) to monowarstwa funkcjonalnie postmitotycznych, wysoce spolaryzowanych komórek nabłonkowych, które tworzą barierę między światłoczułymi fotoreceptorami w siatkówce a ich krążeniem krwi, łożyskiem włosowatym zwanym naczyniówką włosowatą. Podobnie jak neurony wspierające glej, RPE pełni niezliczone funkcje wspierające fotoreceptory, w tym fagocytozę zewnętrznych segmentów fotoreceptorów, transport składników odżywczych i wsparcie metaboliczne dla fotoreceptorów oraz wydzielanie niezbędnych czynników wzrostu, z których wszystkie mają kluczowe znaczenie dla utrzymania funkcji wzrokowych.
Zwyrodnienie RPE leży u podstaw kilku powszechnych zaburzeń zwyrodnieniowych wzroku. W zwyrodnieniu plamki żółtej związanym z wiekiem (AMD), jednej z najczęstszych przyczyn nieuleczalnej utraty wzroku na świecie, RPE umiera, a zatem leżące nad nim fotoreceptory cierpią na wtórne zwyrodnienie. W proliferacyjnej witreoretinopatii (PVR) RPE zamiast tego wychodzi ze swojego normalnie spokojnego stanu postmitotycznego, proliferując i odróżnicowując się w stan mezenchymalny (tak zwane przejście nabłonkowe do mezenchymalnego [EMT]) ze zmianami w jego metabolizmie. Dedyferencjacja RPE powoduje utratę wsparcia RPE dla fotoreceptorów, jednocześnie wywołując stan bardziej zwłóknienia. Powoduje to zarówno zwyrodnienie fotoreceptorów, jak i bliznowacenie wywołane przez RPE, które powodują utratę wzroku1,2.
Główna część wsparcia RPE dla fotoreceptorów ma charakter metaboliczny, a dysregulacja metaboliczna jest krytycznym czynnikiem w wielu chorobach siatkówki, w tym AMD i PVR. RPE służy jako bariera regulacyjna między fotoreceptorami a ich źródłem tlenu i składników odżywczych, naczyniówką włosowatą. Tak więc to, co RPE wybiera do metabolizowania, w porównaniu z tym, co RPE decyduje się przejść z naczynia włosowatego do fotoreceptorów, silnie reguluje metabolizm i przeżycie fotoreceptorów. Liczne badania wykazały, że RPE jest silnie zależny od metabolizmu mitochondrialnego dla swojego normalnego zdrowia, a fotoreceptory zamiast tego w dużym stopniu polegają na glikolizie3. W ten sposób wprowadzono koncepcję komplementarnych, splecionych stanów metabolicznych między fotoreceptorami a RPE. W szczególności RPE zmniejsza metabolizm preferowanych substratów metabolicznych fotoreceptorów i zamiast tego wykorzystuje produkty uboczne metabolizmu fotoreceptorów w połączeniu z metabolitami, których fotoreceptory nie zużywają. W chorobach takich jak PVR i AMD dowody silnie sugerują, że RPE staje się bardziej glikolityczny i mniej zależny od metabolizmu mitochondrialnego; to przesunięcie w kierunku glikolizy RPE może pozbawić fotoreceptory potrzebnych im metabolitów, wywołując degenerację4,5,6. Biorąc pod uwagę, jak współzależny jest metabolizm RPE i fotoreceptorów oraz jak bardzo zmieniony metabolizm leży u podstaw choroby siatkówki, istnieje duże zainteresowanie modelowaniem i manipulowaniem metabolizmem RPE w celach terapeutycznych.
Podczas gdy badanie metabolizmu mitochondriów RPE in vivo jest idealne, wiele aspektów metabolizmu mitochondriów RPE można praktycznie zbadać tylko w systemie hodowli in vitro. W ciągu ostatnich kilku dekad poczyniono znaczący postęp w kierunku kultur RPE o wysokiej wierności, do tego stopnia, że najbardziej starannie przygotowane kultury RPE są obecnie wykorzystywane do terapii zastępczej komórek w badaniach klinicznych na ludziach7. Aby utrzymać tak wierne hodowle, RPE musi być uprawiany na określonych podłożach w określonych podłożach przez wiele miesięcy przed eksperymentami. W tych warunkach kultury RPE są maksymalnie zróżnicowane i spolaryzowane, zbliżając się do RPE in vivo. Niestety, obecnie nie ma dostępnego sprzętu, który mógłby mierzyć metabolizm mitochondrialny konkretnie z RPE in vivo. Chociaż monitorowanie tlenu w sieci kapilarnej siatkówki zostało osiągnięte in vivo za pomocą oksymetrii elektronowego rezonansu paramagnetycznego (EPR) 8, nie jest to możliwe w przypadku analizy RPE. Różnice między metabolizmem RPE in vivo i in vitro nie są dobrze opisane, ale wykazano, że hodowle RPE mają wysoką aktywność mitochondrialną, podobną do RPE in vivo3,9, co sugeruje, że istotny wgląd w metabolizm mitochondriów RPE można uzyskać przy użyciu kultur RPE o wysokiej wierności.
Ponieważ cały metabolizm mitochondriów prowadzi do zużycia tlenu, pomiar wskaźników zużycia tlenu RPE (OCR) jest wiernym wskaźnikiem metabolizmu mitochondriów. Pomiar OCR w kulturach RPE był trudny, ponieważ warunki, które sprzyjają maksymalnej polaryzacji i różnicowaniu RPE, często uniemożliwiają długoterminowe dokładne pomiary OCR przy użyciu obecnie dostępnych technik, takich jak Seahorse Analyzer. W tym artykule przedstawiono nowatorskie urządzenie, nazwane Resipher (zwane dalej "systemem"), które umożliwia ciągły pomiar OCR przez tygodnie w RPE hodowanym w warunkach, które maksymalnie promują polaryzację i różnicowanie. Łatwość, z jaką OCR może być mierzony przez ten system w warunkach hodowli RPE, które maksymalnie promują różnicowanie i polaryzację RPE, jest wyjątkowa wśród istniejących urządzeń do pomiaru OCR.
Ten artykuł zawiera porady i wskazówki dotyczące korzystania z systemu z kulturami RPE, a następnie demonstrację dwóch konkretnych zastosowań. Po pierwsze, RPE EMT, naśladując PVR, jest wyzwalany przez ekspozycję na transformujący czynnik wzrostu-beta (TGFβ)1,10,11,12. System służy do monitorowania ewolucji metabolizmu RPE podczas procesu EMT. Po drugie, za pomocą tego systemu bada się rolę hipoksji w metabolizmie RPE. Niedotlenienie jest ważnym czynnikiem przyczyniającym się do patogenezy AMD, ponieważ naczyniówka włosowata rozrzedza się z wiekiem13,14. Połączenie tego systemu z komorami hipoksyjnymi pozwala na modelowanie zmienionego metabolizmu mitochondrialnego RPE z subtelnym niedotlenieniem, które towarzyszy starzeniu się. Na koniec wprowadzono kalkulator online wykorzystujący dane Resipher, który pozwala określić, czy hodowle RPE znajdują się w warunkach hipoksyjnych, normoksycznych czy hiperoksycznych. Takie informacje mają kluczowe znaczenie dla wyciągnięcia jakichkolwiek wniosków na temat metabolizmu RPE na podstawie badań in vitro hodowli RPE.
Protokół
Protokoły ustanawiające ludzkie kultury pierwotne lub iPSC-RPE można znaleźć w następujących odniesieniach15,16,17,18. Pozyskiwanie i wykorzystywanie tkanek ludzkich do tych protokołów zostało zweryfikowane i zatwierdzone przez Instytucjonalną Komisję Rewizyjną Uniwersytetu Michigan (HUM00105486).
1. Ogólne zastosowanie systemu do kultury RPE
- Płytki z ludzkich indukowanych pluripotencjalnych komórek macierzystych (iPSC) pochodzących z RPE lub pierwotnych ludzkich komórek RPE w kompatybilnych z systemem płytkach 96-dołkowych.
- Zakładając już istniejące dojrzałe kultury wyhodowane na 24-dołkowych płytkach do hodowli komórkowych, należy raz przemyć komórki solą fizjologiczną buforowaną fosforanami (PBS), a następnie dodać 500 μl 0,25% trypsyny-EDTA (tabela materiałów). Inkubować przez 10-40 minut w inkubatorze do hodowli komórkowych, sprawdzając co 5-10 minut, aż komórki będą zaokrąglone i prawie gotowe do odłączenia.
- Delikatnie naniec pipety na komórki, aby odłączyć je od plastiku hodowli komórkowej, a następnie przenieś do 3 razy większej objętości pożywki do hodowli komórkowych (1 500 μl na 24 dołki), wirując w wirówce o stężeniu 250 × g przez 5 minut w temperaturze pokojowej.
UWAGA: Przepis na pożywki do hodowli komórek RPE jest szczegółowo opisany w Tabeli 1 i dostępny we wcześniej opublikowanych źródłach9,15,16,17,18. - Ponownie zawiesić komórki w pożywce do hodowli komórek RPE za pomocą 15% płodowej surowicy bydlęcej (FBS) i policzyć komórki za pomocą hemocytometru.
- Wysiewaj 74 000 komórek na każdą studzienkę 96-dołkowej płytki (zwykle 225-300 × 105 komórek/cm2), po pokryciu wysoce wyspecjalizowanymi substratami do powlekania macierzy zewnątrzkomórkowej (Tabela materiałów) zgodnie z instrukcjami producenta.
UWAGA: Komórki nasienne należy umieszczać tylko na płytce kompatybilnej z Resipher (Tabela materiałów) i tylko w studzienkach odpowiadających układowi sond na pokrywie czujnika (kolumny 3, 4, 9 i 10 dla pokrywy 32-kanałowej; patrz Tabela materiałów). Pokrywa czujnika systemu jest dostępna z czujnikami 4-, 32- lub 96-kanałowymi (patrz lokalizacje czujników w Rysunek 1A-D), a szereg standardowych płytek do hodowli komórkowych jest kompatybilnych. - Ponieważ studzienki brzegowe są podatne na parowanie, co dramatycznie wpływa na dostępność tlenu, a tym samym na odczyty OCR, należy unikać wysiewania komórek we wszystkich dołkach krawędziowych (rzędy A i H płytki 96-dołkowej). Ponadto dodaj 200 μl sterylnej wody do każdej z pustych studzienek 96-dołkowej płytki, aby zmniejszyć efekt parowania.
- Trzymaj płytkę na stabilnej powierzchni stołu przez 10 minut, aby komórki mogły się uspokoić, a następnie włóż ją z powrotem do inkubatora. Zmień pożywkę po 24-72 godzinach, zastępując standardową pożywkę hodowlaną RPE o 5% FBS. Hodowla przez co najmniej 4 tygodnie, zmiana podłoża 2 razy w tygodniu.
UWAGA: Komórki są gotowe do eksperymentów, gdy są pigmentowane, brukowe i bardzo zwarte (Rysunek 1E).
- Konfiguracja i pobieranie danych za pomocą systemu
- Umieść pokrywę czujnika na pustej 96-dołkowej płytce odbiorczej, a następnie umieść ją z powrotem w inkubatorze do hodowli komórkowych. Wyrównaj i zamontuj urządzenie na pokrywie czujnika i podłącz je do koncentratora za pomocą dostarczonego USB. W ten sposób powstaje "kanapka" Resiphera. (Rysunek 2A).
- Przejdź do aplikacji internetowej Lucid lab (https://lab.lucidsci.com/) i kliknij przycisk Nowy eksperyment w prawym górnym rogu, aby utworzyć nowy eksperyment.
- Nazwij tytuł eksperymentu i wprowadź wszelkie istotne notatki eksperymentalne dotyczące konkretnego badania (np. numer przejścia używanego iPSC-RPE).
- Stwórz dobre warunki i grupy zabiegowe. Na przykład, jeśli testujesz wpływ różnych stężeń surowicy w pożywce na OCR, wybierz Surowicę w nazwie grupy, a następnie wprowadź stężenia pożywek w surowicy, które mają być używane, dodając więcej wartości procentowych surowicy, klikając przycisk +. Przypisz, które studzienki otrzymają określony procent surowicy i wybierz wzór kolorów dla tych studzienek. W razie potrzeby dodaj więcej grup (np. inną zmienną eksperymentalną do przetestowania), klikając przycisk Dodaj grupę.
- Zdefiniuj konfigurację blachy i wybierz odpowiedni styl urządzenia i blachy. Kliknij przycisk dodaj tablicę i wybierz Urządzenie; Wybierz Typ blachy. Wybierz zabieg i kliknij odpowiednią studnię.
- Kliknij przycisk Rozpocznij teraz, aby rozpocząć eksperyment. Sprawdź, czy wskaźnik na stronie internetowej i dioda LED na koncentratorze świecą na zielono.
- Pozwól systemowi działać przez 15-60 minut, aby upewnić się, że każdy czujnik jest prawidłowo skalibrowany i dokładnie wykrywa tlen atmosferyczny, który powinien mieć stężenie ~ 200 μM w całkowicie nawilżonym inkubatorze do hodowli komórkowych z 5% CO2 ( Rysunek 2Bi).
UWAGA: Jeśli którykolwiek z czujników różni się o więcej niż 20% od średniej innych czujników w standardowej konfiguracji inkubatora do hodowli komórkowych, rozważ wykluczenie tego dobrze w analizie danych, ponieważ czujnik jest uszkodzony (Rysunek 2Bii).
UWAGA: Jeśli wszystkie czujniki różnią się o więcej niż 20% od średniej innych czujników i od oczekiwanego atmosferycznegoO2 zgłoszonego jako 200 μM w standardowej konfiguracji inkubatora do hodowli komórkowych, oznacza to, że pokrywa czujnika była używana zbyt wiele razy; wymień go na nową pokrywę czujnikową (Rysunek 2Biii).
UWAGA: Uzyskanie odczytów O2 w powietrzu przed rozpoczęciem eksperymentu znacznie poprawia późniejsze rozwiązywanie problemów. Jeśli po przeprowadzeniu eksperymentu dana studnia wydaje się odstająca i ma ona czujnik, który nie był skalibrowany, problem może dotyczyć czujnika, a nie repliki biologicznej. - Zdejmij urządzenie z pokrywy czujnika (ale nie odłączaj USB od urządzenia). Umieść urządzenie do góry nogami w inkubatorze, aby umożliwić zresetowanie silnika urządzenia. Nie używaj ponownie urządzenia, dopóki wszystkie dźwięki silnika nie ustaną (około 20-30 s).
UWAGA: Ważne jest, aby urządzenie było podłączone do koncentratora za pomocą USB przez cały czas trwania eksperymentu, nawet gdy urządzenie jest zdjęte z pokrywy czujnika. Dzięki temu urządzenie może stale monitorować i raportować środowisko inkubatora kultur komórkowych. - Umieść płytkę z pokrywką czujnikową z powrotem w kapturze do hodowli komórkowych wraz z 96-dołkową płytką zawierającą kultury RPE. Zmień pożywkę na płytce z kulturami RPE z tą samą pożywką i tą samą objętością dla wszystkich studzienek, aby uzyskać podstawowe wartości OCR dla każdej studzienki. Pamiętaj, aby napełnić wszystkie studzienki bez RPE sterylną wodą, aby zapobiec parowaniu.
UWAGA: Ogólnie rzecz biorąc, zalecamy 60-100 μl pożywki hodowlanej RPE na 96 dołków, w oparciu o dane pokazujące, że mniejsze objętości pożywki prowadzą do szybkiego wyczerpania składników odżywczych, ale większe objętości pożywki prowadzą do niezamierzonego niedotlenienia9. - Przenieść pokrywkę czujnikową na płytkę zawierającą kultury komórkowe, a standardową (inną niż Resipher) pokrywkę na płytkę zawierającą kultury komórkowe na pustą 96-dołkową płytkę odbiorczą w celu utrzymania sterylności pokrywki wzorcowej, która będzie potrzebna w różnych momentach podczas eksperymentowania.
- Umieścić płytkę z kulturami komórkowymi i pokrywką czujnikową z powrotem w inkubatorze do hodowli komórkowych. Ponownie wyrównaj i zamontuj urządzenie na pokrywie czujnika i podłącz je do koncentratora za pomocą dostarczonego USB (montaż "kanapki"). Sprawdź, czy wskaźniki w interfejsie witryny i Hubie świecą na zielono.
UWAGA: Dane o stężeniuO2 pojawią się od razu, podczas gdy dane OCR pojawią się dopiero po zebraniu wystarczającej ilości danychO2, czyli po około 1 godzinie. - Pozwól urządzeniu mierzyć OCR na każdym dołku przez co najmniej 12-24 godziny, aby uchwycić podstawowy OCR.
UWAGA: Podstawowy OCR będzie się różnić w zależności od wielu czynników, w tym od rodzaju podłoża stosowanego do komórek. W Rysunek 2C, standardowe podłoża hodowlane RPE z różnymi ilościami FBS (0%, 5%, 15%) mają nieco inne wartości OCR. Co więcej, kultury z większą liczbą FBS mogą utrzymywać aktywność mitochondriów przez dłuższy czas po nałożeniu pożywki na komórki, zanim OCR spadnie z powodu wyczerpania metabolitów mitochondrialnych (prawa strona krzywej). - Po uzyskaniu wyjściowego OCR powtórz kroki 1.2.8-1.2.12, ale zmień pożywkę na płytce z kulturami RPE do własnych warunków eksperymentalnych (zazwyczaj ± leku lub porównania różnych warunków pożywki).
UWAGA: Rutynowe zmiany nośników można również obsługiwać w ten sam sposób. Za każdym razem, gdy inkubator do hodowli komórkowych jest otwierany, należy spodziewać się znacznych zakłóceń w odczytach OCR, ponieważ są one zależne od temperatury, wilgotności, stężenia CO2 i innych czynników, które są tymczasowo zakłócane przez otwarcie drzwi inkubatora. Podczas wyjmowania urządzenia z pokrywy czujnika nie ma potrzeby przerywania eksperymentu w trybie online. Po otwarciu drzwi inkubatora do hodowli komórkowych lub wymianie pożywki na sondowanej płytce, przywrócenie gradientu tlenu i rozpoczęcie dokładnego pomiaru OCR zajmuje zwykle 2-4 godziny. - Po uzyskaniu danych odejmij podstawowy OCR dla każdego dołka od OCR po zastosowaniu warunków eksperymentalnych, aby określić OCR Delta wyzwalany przez zabieg.
- Po zakończeniu eksperymentu wysterylizuj i ponownie użyj pokrywy czujnika (która może być ponownie użyta 3-5 razy, chociaż wydajność pogarsza się przy wielokrotnym użyciu). Aby wysterylizować pokrywę czujnika, zanurz całą pokrywkę w 70% etanolu na 10 minut w kapturze do hodowli komórkowych, a następnie wyjmij z zanurzenia i spoczywaj w głowicy do góry (unikaj dotykania delikatnych końcówek sondy) i pozwól, aby etanol i woda całkowicie odparowały przed umieszczeniem pokrywy czujnika na nowej 96-dołkowej płytce odbiorczej.
- Wykonaj zdjęcia w jasnym polu, aby znormalizować wartości OCR do numeru komórki.
UWAGA: Akumulacja melaniny w RPE ułatwia normalizację OCR na podstawie prostego liczenia liczby komórek w żywych kulturach przy użyciu mikroskopu jasnego pola.- Wyjmij urządzenie i umieść je do góry nogami, jak w kroku 1.2.8. W kapturze do hodowli komórkowej zamień pokrywę czujnika na płytce do hodowli RPE na standardową pokrywę z 96 dołkami.
- Używając standardowego mikroskopu odwróconego, wykonaj zdjęcia w jasnym polu każdej studzienki.
UWAGA: Utrzymuj spójność obrazów obszaru pierwszego między studzienkami (względne położenie w studni i powiększenie obiektywu). - W kapturze do hodowli komórkowej zastąp standardową 96-dołkową pokrywę płytki do hodowli RPE pokrywką czujnikową i umieść ją z powrotem w inkubatorze w celu dalszego monitorowania.
- Policz numer komórki w każdym dołku za pomocą ImageJ lub innego oprogramowania.
- Znormalizuj OCR do liczby komórek w różnych grupach eksperymentalnych. System raportuje OCR w jednostkach fmol∙(mm2)-1∙s-1-zużycie na jednostkę powierzchni przekroju. Dlatego, aby znormalizować OCR na komórkę, podziel OCR przez liczbę komórek na mm2 (a nie liczbę komórek na studzienkę). Równoważnie, pomnóż OCR zgłoszony przez system przez pole przekroju poprzecznego studni (około 31mm2 dla standardowej płytki 96-dołkowej), aby uzyskać OCR w jednostkach fmol∙s-1∙studiń-1.
- Kontrole do określania parametrów bioenergetycznych RPE.
UWAGA: Aby upewnić się, że system i hodowle RPE reagują na manipulacje mitochondrialne w przewidywalny sposób, można przetestować pewne małe cząsteczki, które są dobrze ugruntowane pod kątem określonych etapów mitochondrialnej fosforylacji oksydacyjnej. Testy te są analogiczne do etapów wykonywanych w Mitochondrialnym Teście Stresu przy użyciu Seahorse Analyzer10 i zapewniają profil bioenergetyczny dla kultur RPE.- Hoduj komórki RPE w 65 μl standardowej pożywki hodowlanej RPE z 5% FBS i mierz OCR przez 24 godziny, aby ustalić punkt odniesienia.
- Odessać pożywki hodowlane i dodać 65 μl standardowych pożywek hodowlanych RPE z 5% FBS i z rozprzęgaczami mitochondrialnymi (3 μM cyjanek karbonylu-p-trifluorometoksyfenylohydrazon [FCCP] lub 500 nM Bam15, tabela materiałów). Inkubować przez noc.
UWAGA: Rozprzęgacze mitochondrialne powinny znacznie zwiększyć OCR. Upewnij się, że zwiększony OCR nie jest równy ani bliski teoretycznego maksymalnego OCR ograniczonego dyfuzją wynoszącego około 275 fmol∙(mm2)-1∙s-1 dla 65 μl pożywki w standardowych warunkach hodowli. Maksymalny OCR dla różnych powszechnie używanych woluminów multimediów jest dostępny w sekcji Dyskusja. - Po całonocnej inkubacji odessać pożywkę za pomocą rozłączaczy mitochondrialnych i zastąpić 65 μl standardowych pożywek hodowlanych RPE z 5% FBS. Obserwować tabliczkę przez kolejne 24 godziny, aby określić regenerację OCR RPE po usunięciu leków.
- Oblicz wpływ rozsprzęgaczy na OCR, odejmując OCR uzyskany po leczeniu od OCR uzyskanego przed leczeniem (Rysunek 3).
UWAGA: Wzrost OCR z dodatkiem rozprzęgaczy mitochondrialnych oznacza rezerwową mitochondrialną pojemność oddechową komórki19. - Aby zmierzyć inne parametry mitochondrialne zwykle wychwytywane podczas testu stresu mitochondrialnego za pomocą analizatora konika morskiego, wykonaj te same kroki powyżej z następującymi związkami (Rysunek 4).
- Użyj oligomycyny w stężeniu 1 μM, aby ocenić oddychanie sprzężone z ATP.
- Użyj antymycyny A i rotenonu w stężeniu 1 μM, aby ocenić oddychanie niemitochondrialne.
UWAGA: FCCP, oligomycyna, antymycyna A i rotenon mogą być toksyczne dla RPE. Jeśli wywołują znaczną śmierć komórki, pomiary OCR nie będą dokładne. W związku z tym pomiary OCR powinny być wykonywane tylko w momencie, w którym nie ma oczywistej śmierci komórki, zazwyczaj w ciągu pierwszych kilku godzin po dodaniu leków (Rysunek 4).
2. Pomiar zmian w metabolizmie mitochondrialnym u RPE poddawanego EMT
- Postępuj zgodnie z tym samym protokołem, jak opisano w sekcji 1.2.
- Aby wywołać EMT po uzyskaniu wyjściowych pomiarów OCR, dodaj TGF-β2 (10 ng / ml) do kultur RPE i monitoruj OCR przez 3 tygodnie. Odświeżaj nośnik za pomocą nowego TGFβ2 co 2-3 dni (Rysunek 5).
- Co najmniej 2 razy w tygodniu uzyskuj obrazy w jasnym polu, jak w sekcji 1.3, aby upewnić się, że liczba komórek się nie zmienia. Jeśli liczba się zmieni, znormalizuj wartości OCR do numeru komórki w każdym dołku.
UWAGA: Ten sam protokół można zastosować w przypadku innych induktorów EMT do monitorowania długoterminowych zmian OCR przez cały okres hodowli, gdy komórki znajdują się w inkubatorze.
3. Pomiar zmian w metabolizmie mitochondriów w niedotlenionym RPE
UWAGA: Zastosowanie systemu w warunkach hipoksyjnych, normoksycznych lub hiperoksycznych jest takie samo jak w sekcji 1.2, z wyjątkiem trzymania "kanapki" w komorze hipoksyjnej (Tabela Materiałów) umieszczonej w standardowym inkubatorze do hodowli komórkowych.
- Wywierć otwór w pokrywie komory hipoksji, aby zamontować USB typu c i uszczelnić go silikonem lub kitem (Rysunek 6A).
- Zamontuj pokrywę czujnikową z płytką do hodowli komórkowej w kapturze i przenieś je do komory hipoksji.
- Ustaw "kanapkę" (płytkę, pokrywę czujnika, urządzenie) w komorze hipoksji. Umieść również w komorze hipoksji szalkę Petriego ze sterylną wodą, aby pomóc utrzymać wilgotność. Na koniec umieść przenośny czujnikO2 w komorze hipoksji (tabela materiałów). Konfiguracja jest wyświetlana w Rysunek 6A.
- Uszczelnić komorę i podłączyć ją do butli gazowej o stężeniu hipoksyjnym O2 i standardowym stężeniu CO2 w hodowli komórkowej (np. 1%O2 i 5% CO2 ).
- Powoli wymieniaj powietrze w komorze hipoksji na 1% O2/5% CO2 powietrze w butli, aż czujnik tlenu pokaże pożądane stężenie O2 , zwykle gdzieś między 1% a 10%.
UWAGA: Przenośny czujnikO2 potrzebuje czasu na zrównoważenie, dlatego gaz z butli należy powoli dodawać do komory hipoksji. - Zamknij zawory wlotowe i wylotowe komory hipoksji i przenieś całą komorę do inkubatora.
- Ustaw i rozpocznij eksperyment jak w sekcji 1.2.
UWAGA: Wstępne równoważenie pożywki w komorze hipoksji przed dodaniem do komórek może skrócić czas potrzebny monowarstwie komórki na prawdziwe niedotlenienie (Rysunek 6B).
4. Obliczanie stężenia O2 w monowarstwie RPE w celu określenia, czy komórki znajdują się w warunkach niedotlenienia, normoksyki czy hiperoksyki
UWAGA: System domyślnie mierzy stężenie O2 na wysokości około 1 do 1,5 mm nad dnem studzienki, zakładając, że używana jest standardowa płytka z odpowiednią zalecaną pokrywą czujnikową do hodowli jednowarstwowej (patrz https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf). Chociaż stężenieO2 w monowarstwie ogniwa nie jest mierzone bezpośrednio, dane z systemu można wykorzystać do oszacowania stężeniaO2 na poziomie RPE. W szczególności, wiedząc, że gradient tlenu istnieje między górną częścią kolumny pożywki, gdzie dostępny jestO2, a dolną częścią kolumny pożywki, gdzie O2 jest zużywane, prawa dyfuzji Ficka można połączyć ze zmierzoną szybkością OCR w celu ekstrapolacji poziomów O2 w monowarstwie komórki. Kalkulator do tego oszacowania jest dostępny online: https://lucidsci.com/notes?entry=oxygen_diffusion (oraz w formie interaktywnego notatnika o otwartym kodzie źródłowym na https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture, kod źródłowy tego kalkulatora można znaleźć pod adresem https://github.com/lucidsci/oxygen-diffusion-calculator).
- Po uzyskaniu dostępu do kalkulatora wprowadź objętość nośnika w mikrolitrach (np. 100 μL).
- Wprowadź stężenie nasyconego tlenu na granicy faz powietrze-ciecz (górna część kolumny pożywki nad komórkami). Wartość ta wynosi ~185 μM przy standardowym ciśnieniu atmosferycznym przy 5% O2 i wilgotności 95%.
UWAGA: Można to również określić na podstawie pomiarówO2 za pomocą sond systemowych w studzienkach zawierających tylko media (bez komórek na dnie studzienki). - W polu Flux input (Strumień wejściowy) wprowadź Flux/OCR zgłoszony przez system.
- Na podstawie tych wartości obliczane jest stężenie tlenu w stanie ustalonym na każdej wysokości w kolumnie pożywki i pokazane na wykresie (Rysunek 7). Oś x działki to wysokość w mm nad dnem studni. Oś y to obliczone stężenieO2 na tej wysokości (w μM).
- StężenieO2 na dnie studzienki (gdzie znajdują się komórki) podaje się w wierszu poniżej wykresu.
UWAGA: Ogólnie rzecz biorąc, szacuje się, że RPE in vivo widzi stężenie O2 na poziomie 4-9%. Każde 10 μMO2 w normalnych warunkach atmosferycznych odpowiada około 1%O2. Zatem normoksja na poziomie komórek wynosi około 40-90 μMO2. Im wyższa kolumna nośnika, tym niższy będzie O2 na poziomie RPE monolayer9. Tak więc, jeśli komórki wydają się być w warunkach niedotlenienia, objętość pożywki może zostać zmniejszona. Jeśli komórki wydają się być w warunkach hiperoksycznych, objętość pożywki może zostać zwiększona.
Wyniki
Konfiguracja typu „kanapka” dla eksperymentu Resipher została przedstawiona na Rysunku 2A. Pokrywy pomiarowe z 32 sondami, odpowiadające kolumnom 3, 4, 9 i 10 na płytce 96-dołkowej, znajdują się pomiędzy płytką z komórkami a Urządzeniem. Po podłączeniu do Hubu Urządzenie uruchamia silniki, które poruszają pokrywą pomiarową w górę i w dół, mierząc stężenie O2 w kolumnie medium na różnych wysokościach nad monowarstwą komórek (zazwyczaj 1-1,5 mm). Gradient O2 jest zatem mierzony w sposób ciągły poprzez rejestrację stężeń O2 na tych różnych wysokościach nad monowarstwą. Na podstawie pomiarów gradientu i z zastosowaniem praw dyfuzji Ficka Urządzenie automatycznie oblicza strumień tlenu z obszaru powyżej zakresu wysokości sondy do obszaru poniżej niej, co stanowi szybkość zużycia tlenu (OCR) monowarstwy komórek. Pokrywa pomiarowa wykrywa O2 niezależnie od tego, czy dołek jest pusty (tylko powietrze), wypełniony medium bez komórek (tylko medium), czy zawiera medium nad monowarstwą komórek (medium + komórki). W ramach kontroli jakości działania czujników w pokrywie pomiarowej można najpierw umieścić pokrywę nad pustą (tylko powietrze) płytką 96-dołkową. Jeśli każdy czujnik w każdym dołku działa poprawnie, raportowane wartości O2 powinny być ze sobą spójne i zbliżone do 200 µM, co odpowiada oczekiwanemu stężeniu O2 w atmosferze w standardowych warunkach inkubatora do hodowli komórek. Rysunek 2Bi przedstawia odczyty O2 z ośmiu sond w powietrzu atmosferycznym (raportowane jako stężenie w µM, ponieważ domyślna konwersja jednostek zakłada, że sondy znajdują się w cieczy o temperaturze 37 °C). Odczyty te są spójne (±5%) i zbliżone do 200 µM, co wskazuje, że wszystkie osiem czujników działa prawidłowo. Na Rysunku 2Bii zastosowano tę samą pokrywę pomiarową co na Rysunku 2Bi, lecz użyto innego Urządzenia. W tym przypadku wykryto dwa wadliwe czujniki Urządzenia na podstawie krzywych odstających (zaznaczonych na czerwono). Sugeruje to, że Urządzenie jest uszkodzone i wymaga wymiany (lub dołki odpowiadające wadliwym czujnikom powinny zostać wyłączone z eksperymentu). Na Rysunku 2Biii użyto tego samego Urządzenia co na Rysunku 2Bi, ale zastosowano dwie różne pokrywy pomiarowe. Pokrywa 1 (lewa strona) wykazuje wysoką zmienność między sondami, co sugeruje degradację materiału pomiarowego pokrywy, zazwyczaj w wyniku zbyt wielokrotnego użycia. Pokrywa 2 (prawa strona) jest nowa, a jej odczyty są spójne i skupione wokół 200 µM. Za pomocą tego systemu można analizować wpływ suplementacji medium surowicą na metabolizm mitochondrialny RPE. Jak widać na Rysunku 2C, zwiększenie poziomu suplementacji surowicą wywołało subtelnie wyższe poziomy OCR RPE. Co istotne, większa suplementacja surowicą pozwoliła również na dłuższe utrzymanie metabolizmu mitochondrialnego. Nawet bez suplementacji surowicą OCR utrzymuje się przez około 90 h, zanim wyczerpanie substratów metabolicznych mitochondriów spowoduje spadek OCR. Zatem wymiana medium w ilości 100 µL na dołek płytki 96-dołkowej co 3,5 dnia (dwukrotnie w tygodniu) jest wystarczająca, nawet w przypadku mediów bezsurowiczych, aby uniknąć wyczerpania składników odżywczych w dojrzałych, silnie zróżnicowanych i spolaryzowanych kulturach RPE.
Wartości OCR mogą znacząco różnić się między poszczególnymi studzienkami, nawet w kulturach, w których we wszystkich studzienkach wydaje się występować ta sama liczba komórek i morfologia. Dlatego, aby ustalić, czy wzrosty OCR wynikają z warunków eksperymentalnych, czy po prostu z różnic bazowych w OCR między studzienkami, niezbędna jest normalizacja. Pierwszym krokiem normalizacji jest upewnienie się, że liczba komórek w studzienkach jest spójna, zgodnie z opisem w sekcji 1.3 protokołu. Jeśli liczba komórek różni się między studzienkami, wartość OCR dla danej studzienki musi zostać znormalizowana do liczby komórek. W przypadku wysoce dojrzałych i spolaryzowanych kultur RPE liczba komórek między studzienkami jest zazwyczaj niezwykle spójna9. Nawet w takich przypadkach bazowy OCR między studzienkami może się różnić, co pokazano na Rysunku 3A. Tutaj bazowy OCR przed jakimkolwiek traktowaniem różni się między studzienkami o nawet 100 fmol/mm2/sec. Dzięki pomiarowi OCR przed traktowaniem można następnie wyznaczyć Delta OCR wywołany traktowaniem eksperymentalnym i oddzielić go od wszelkich różnic w bazowym OCR między studzienkami. W tym przypadku traktowania polegają na porównaniu dwóch odsprzęgaczy mitochondrialnych (FCCP vs BAM15) z kontrolą nośnika. Po wykorzystaniu bazowego OCR do normalizacji efekty traktowania specyficzne dla odsprzęgaczy w porównaniu z kontrolą stają się oczywiste (porównać Rysunek 3B z Rysunkiem 3C). Generalnie eksperymenty, które mogą zmieniać OCR, powinny zostać podzielone na co najmniej dwie fazy: początkowy pomiar OCR w celu ustalenia poziomu bazowego oraz fazę traktowania w celu wyznaczenia Delta OCR.
Aby potwierdzić, że hodowle RPE reagują w oczekiwany sposób na manipulacje mitochondrialne i opracować profil bioenergetyczny dla RPE, w systemie można zastosować klasyczne narzędzia w postaci małych cząsteczek używanych w Teście Stresu Mitochondrialnego (Mitochondrial Stress Test) na analizatorze Seahorse firmy Agilent. Po pierwsze, zapasową wydajność mitochondrialną można zmierzyć przy użyciu odsprzęgacza mitochondrialnego19. W hodowlach RPE odsprzęgacz mitochondrialny BAM15 wykazuje znacznie silniejszy i bardziej trwały wzrost OCR w porównaniu do FCCP (Rysunek 3C,D), nie wywołując przy tym toksyczności. Za pomocą systemu można obliczyć inne parametry dostępne w Teście Stresu Mitochondrialnego analizatora Seahorse, w tym respirację podstawową, respirację związaną z ATP, wyciek protonów oraz pozamitochondrialną wydajność oddechową. Podczas gdy analizator Seahorse opiera się na portach wtryskiwania w celu sekwencyjnego dostarczania toksyn hamujących konkretne kompleksy fosforylacji oksydacyjnej w celu wywnioskowania powyższych parametrów, Resipher nie posiada tej funkcji. Jednak każdą toksynę mitochondrialną można dodać do osobnych studni, a różne parametry oddechowe można obliczyć na podstawie krotności zmiany względem studni traktowanych nośnikiem. Na Rysunku 4A porównano różnice w OCR między studniami traktowanymi odsprzęgaczem mitochondrialnym BAM15, inhibitorem syntazy ATP oligomycyną, inhibitorami kompleksu I i III antymycyną/rotenonem a kontrolą z nośnikiem (DMSO). Ponieważ toksyny te mogą indukować śmierć komórek w dłuższym czasie, a śmierć komórek wpływa na OCR, odczyty OCR wykonano po zaledwie kilku godzinach traktowania. Rysunek 4B przedstawia w formie wykresu słupkowego różnice w OCR między nośnikiem a studniami traktowanymi każdą małą cząsteczką aktywną mitochondrialnie, wyekstrapolowane z ostatnich punktów czasowych na Rysunku 4A. Wartości OCR na Rysunku 4B mogą następnie posłużyć do obliczenia parametrów bioenergetycznych dla hodowli RPE, co przedstawiono na Rysunku 4C. Każda wartość oznaczona kolorowo w profilu bioenergetycznym na Rysunku 4C pochodzi z odpowiadającej jej wartości oznaczonej tym samym kolorem na Rysunku 4B. W ten sposób, przy użyciu systemu OCR, można oszacować parametry takie jak respiracja związana z ATP, wyciek protonów, maksymalna mitochondrialna wydajność oddechowa i pozamitochondrialna wydajność oddechowa. Podsumowanie mechanizmu działania każdej małej cząsteczki aktywnej mitochondrialnie przedstawiono na Rysunku 4D.
Po zademonstrowaniu protokołu dla tego systemu na kulturach RPE oraz przeprowadzeniu eksperymentów kontrolnych w celu oceny profilów bioenergetycznych RPE, można przejść do badania zastosowań eksperymentalnych tego systemu w biologii i patologii RPE. W przebiegu proliferacyjnej witreoretinopatii (PVR), schorzenia występującego po odwarstwieniu siatkówki lub urazie oka, komórki RPE przechodzą gwałtowną transformację znaną jako przejście nabłonkowo-mezenchymalne (EMT), w wyniku którego regularne, przypominające brukowaną nawierzchnię komórki RPE tracą adhezje międzykomórkowe i ulegają transdyferencjacji w wrzecionowate komórki mezenchymalne, które są kurczliwe i ruchliwe1,2. Wywołuje to styczne siły skurczowe na siatkówce, które mogą prowadzić do jej odwarstwienia. Klasycznymi induktorami EMT w RPE są czynnik wzrostu transformującego beta (TGFβ) oraz czynnik martwicy nowotworu alfa (TNFα)10,11,12. Spośród trzech ssaczych izoform TGFβ, TGFβ2 jest najważniejszym i najsilniejszym induktorem EMT w siatkówce1, powodując wyraźne wydłużenie charakterystycznych sześciokątnych komórek RPE oraz zwiększoną ekspresję markerów mezenchymalnych. Odpowiedź EMT indukowana przez TGFβ2 w RPE towarzyszy supresja oddychania mitochondrialnego i następczy wzrost zdolności glikolitycznej, co wykazano wcześniej przy użyciu Seahorse XFe9610. Choć Seahorse zapewnia profile bioenergetyczne w czasie rzeczywistym, nie pozwala on na długoterminowy monitoring OCR. Zatem w pierwszym zastosowaniu systemu OCR w niniejszym badaniu (Rysunek 5), oddychanie mitochondrialne śledzono przez trzy tygodnie podczas indukowania EMT za pomocą TGFβ2 w RPE, co umożliwiło modelowanie in vitro przeprogramowania metabolicznego zachodzącego podczas PVR. W przeciwieństwie do analizy EMT w RPE w pojedynczym punkcie czasowym z użyciem analizatora Seahorse, stan metaboliczny RPE przechodzących EMT można śledzić przez kilka tygodni. Jest widoczne, że powtarzalna ekspozycja RPE na TGFβ2 powoduje stały, progresywny spadek metabolizmu mitochondrialnego. Wcześniejsze dane uzyskane za pomocą analizatora Seahorse XF wskazywały, że TGFβ2 znacząco redukował maksymalną zdolność oddechową po 24 h i 72 h, ale nie wpływał na podstawowe poziomy OCR10. Niezmieniony podstawowy OCR przy TGFβ2 do 72 h został potwierdzony przez system OCR użyty w niniejszym badaniu (Rysunek 5). Jednakże dłuższe dane z systemu OCR w tym badaniu ujawniają, że po 5 dniach ekspozycji na TGFβ2 poziomy podstawowego OCR zaczynają spadać, a spadek ten staje się najbardziej widoczny w 20. dniu. Wyniki te podkreślają długoterminowe zmiany w podstawowym OCR, które nie zostały uchwycone w poprzednich punktach czasowych analizy Seahorse.
W drugim zastosowaniu system ten może być wykorzystany do monitorowania metabolizmu mitochondrialnego RPE w warunkach hipoksji. Ponieważ AMD jest powiązane z cieńczeniem choriocapillaris i hipoksją13,20, zrozumienie przystosowań RPE do hipoksji podtoksycznej powinno dostarczyć informacji na temat patogenezy AMD. Aby poddać hodowle RPE kontrolowanej hipoksji przy jednoczesnym monitorowaniu metabolizmu mitochondrialnego, system można umieścić w komorze hipoksycznej, która z kolei znajduje się w inkubatorze do hodowli komórkowych. Aby ułatwić taką konfigurację, w pokrywie komory hipoksycznej wierci się mały otwór, umożliwiając wprowadzenie kabla USB systemu do wnętrza komory. Otwór uszczelnia się szpachlą lub silikonem (Rysunek 6A). W komorze hipoksycznej można umieścić przenośny czujnik O2, aby monitorować poziom O2 w atmosferze i upewnić się, że uszczelnienie komory pozostaje nienaruszone. Przy użyciu tej konfiguracji można określić szybkość wyrównywania stężeń między O2 w atmosferze a O2 w medium. Na Rysunku 6B medium wyrównane z atmosferycznym stężeniem O2 umieszczono w poszczególnych studzienkach płytki 96-dołkowej, bez komórek, i wprowadzono do komory hipoksycznej zawierającej zaledwie 5% O2 (~50 µM O2). Z czasem medium w każdej studzience wyrównuje się z nowym stężeniem atmosferycznym. Im większa wysokość słupa medium (większa objętość), tym dłużej trwa wyrównywanie. Przy 65 µL medium w studzience płytki 96-dołkowej, wyrównanie z atmosferycznym O2 trwa około 5 h. Jednak czas wyrównania przekracza 10 h, gdy objętość medium wynosi 100-200 µL. Wyniki te podkreślają znaczenie uprzedniego wyrównania medium z pożądanym stężeniem atmosferycznym O2 przed dodaniem medium do komórek podczas eksperymentu z hipoksją.
W eksperymentach z hipoksją ważne jest zapewnienie stabilności poziomów O2 w komorze hipoksycznej. Pozostawienie jednego z brzegowych dołków na płytce 96-dołkowej bez komórek lub pożywki pozwoli jednemu z czujników w pokrywie pomiarowej na ciągłe monitorowanie atmosferycznego poziomu O2. Na Rysunku 6C taki monitoring z jednym dołkiem wystawionym na powietrze wykazuje, że komora hipoksyczna ma niewielki wyciek, przez co po 30 h komórki znajdują się w stężeniach O2 zbliżonych do atmosferycznych. Jako końcową kontrolę eksperymentów z hipoksją ważne jest ustalenie, czy rozpuszczalność O2 różni się pomiędzy pożywką „świeżą” a „warunkowaną”. Jeśli rozpuszczalność różni się między pożywką początkowo naniesioną na komórki a pożywką, która pozostawała na komórkach przez znaczną ilość czasu, gradient O2 w kolumnie pożywki nad komórkami będzie się zmieniał wraz z „warunkowaniem” pożywki w czasie nad komórkami. To z kolei wpływa na obliczanie OCR. Na Rysunku 6D płytka 96-dołkowa z pustymi dołkami („powietrze”), dołkami bez komórek, ale ze świeżą pożywką („nowa pożywka”) oraz dołkami bez komórek, ale z pożywką wcześniej inkubowaną nad kulturami RPE przez 48 h („pożywka warunkowana”), została najpierw umieszczona w atmosferycznym O2 w celu pełnego wyrównania. Następnie płytkę umieszczono w komorze hipoksycznej przy około 3-4% O2 (30-40 µM) i pozostawiono do wyrównania. Na koniec płytkę ponownie przeniesiono do atmosferycznych stężeń O2. Krzywe stężenia O2 dla nowej i warunkowanej pożywki są identyczne, co wykazuje, że rozpuszczalność O2 w nowej i warunkowanej pożywce jest taka sama, potwierdzając tym samym, że zmiany w składzie pożywki w czasie, wynikające z zużycia składników odżywczych i wydzielania produktów przemiany materii do pożywki, nie zmieniają znacząco rozpuszczalności O2, a tym samym nie wpływają nieumyślnie na OCR.
Ponieważ wysokość kolumny medium nad komórkami drastycznie wpływa na dostępność O2 w monowarstwie RPE9, ważne jest określenie, czy konkretna objętość medium indukuje w monowarstwie RPE hipoksję, normoksję czy hiperoksję. Wykorzystując pomiary z systemu w połączeniu z kalkulatorem online (https://lucidsci.com/notes?entry=oxygen_diffusion (oraz w formie interaktywnego notatnika open-source pod adresem https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture) - kod źródłowy tego kalkulatora znajduje się pod adresem https://github.com/lucidsci/oxygen-diffusion-calculator), można oszacować stężenie tlenu w monowarstwie RPE. Rycina 7 przedstawia zrzut ekranu z interaktywnego kalkulatora. W warunkach in vivo RPE zazwyczaj wykazuje stężenie O2 na poziomie 4-9%, co przekłada się na stężenie molowe O2 wynoszące ~40-90 µM.
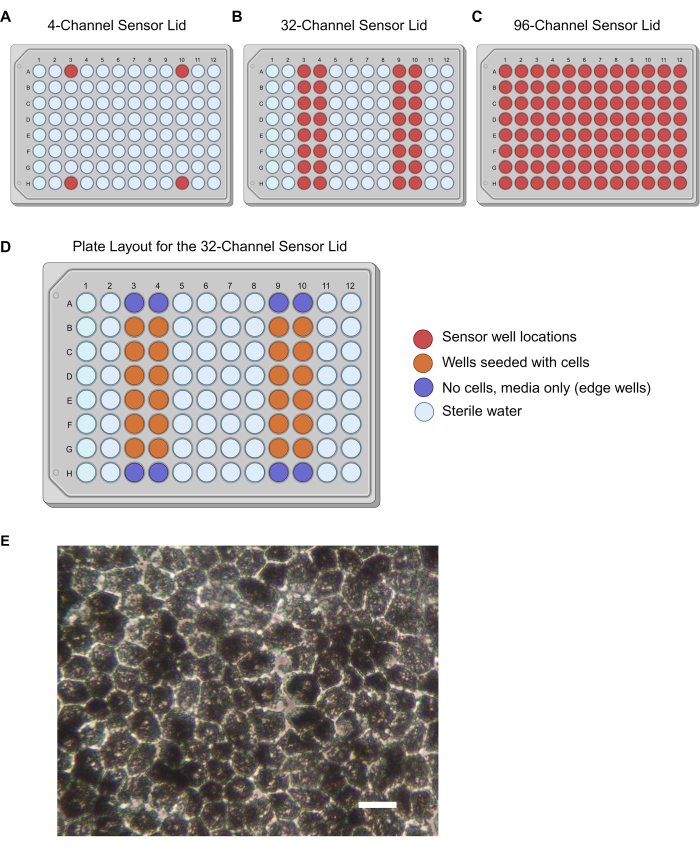
Rycina 1: Lokalizacja czujników na różnych pokrywach pomiarowych, układ płytki dla pokrywy z 32 kanałami oraz morfologia RPE. Studzienki odpowiadające lokalizacji czujników w różnych wariantach pokryw pomiarowych dla opcji (A) 4-kanałowej, (B) 32-kanałowej i (C) 96-kanałowej. (D) Zalecany układ płytki dla pokrywy z 32 czujnikami. Ze względu na efekty brzegowe komórek nie należy wysiewać do studzienek brzegowych; zamiast tego w tych czterech studzienkach (kolor fioletowy) należy umieścić medium. Komórki wysiewa się do studzienek pomarańczowych. Pozostałe studzienki należy wypełnić sterylną wodą (kolor niebieski), aby zapobiec efektom parowania. (E) Dojrzała hodowla RPE z heksagonalnymi, gęsto upakowanymi, pigmentowanymi komórkami. Pasek skali = 20 µm. Skróty: RPE = nabłonek barwnika siatkówki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2Konfiguracja układu „kanapkowego” systemu Resipher oraz kontrola jakości. (APokrywka pomiarowa zastępuje standardową pokrywkę płytki 96-dołkowej, a jej sondy są umieszczone w odpowiednich dołkach. Urządzenie w kolorze czarnym jest ściśle przymocowane do pokrywki pomiarowej za pomocą magnesów. Obrazy po lewej stronie rysunku przedstawiają Urządzenie i pokrywkę pomiarową w ich właściwej orientacji. Jednak na fotografiach po prawej stronie Urządzenie i pokrywka pomiarowa zostały obrócone na bok, aby lepiej zaprezentować ich profil dolny.B) Kontrola jakości pokrywek sensorycznych i urządzenia. (i,iiTę samą pokrywę pomiarową umieszcza się w pustej płytce odbiorczej z 96 dołkami (tylko powietrze), a następnie na pokrywie pomiarowej sukcesywnie umieszcza się dwa różne urządzenia.i) Pierwsze urządzenie prezentuje dane z ośmiu sond o niskiej zmienności i O2 odczyty200 µM, spodziewane dla atmosferycznego O2. (ii) Drugie urządzenie prezentuje dane z ośmiu sond, z których dwie wskazują wartości anomalne (czerwone kropki). (iiiJedno urządzenie wykorzystano z pustą płytką 96-dołkową (powietrze), testując sekwencyjnie dwie różne pokrywy pomiarowe. Wykreślono dane z 16 sond, co wykazało dużą zmienność dla Lid1 (lewa strona) oraz niską zmienność dla Lid2 (prawa strona).C) wykresy OCR dla hodowli RPE w 100 µL Pożywki z różnymi ilościami surowicy monitorowano przez 120 h. Komórki RPE w pożywce bezsurowiczej (kolor magenta) wykazują niższy OCR, przy czym spadek OCR następuje wcześniej niż w pożywkach z większymi ilościami surowicy. Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek barwowy siatkówki. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
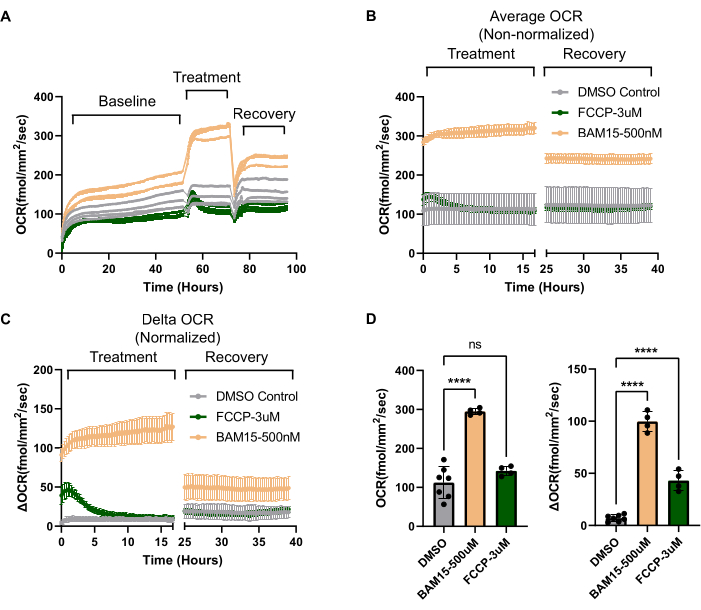
Rycina 3: Długofalowe efekty odsprzęgaczy mitochondrialnych wykazane wyłącznie za pomocą systemu OCR. (A) Surowe dane OCR w czasie (godziny), podkreślające początkowy OCR (ustalony w ciągu 50 h), fazę traktowania (~20 h po dodaniu leków) oraz fazę regeneracji (~20 h po wypłukaniu leków). RPE traktowano dwoma różnymi odsprzęgaczami mitochondrialnymi: FCCP (3 µM, N = 4) lub BAM15 (500 nM, N = 4) i porównano z kontrolą nośnika DMSO (0,6%, N = 7). Każda linia reprezentuje jedną studzienkę. (B) Średni OCR wszystkich studninek dla każdego stanu z punktu (A), wykreślony dla faz traktowania i regeneracji. Bez normalizacji (oś Y to bezwzględny OCR) trudno dostrzec skalę efektu traktowania FCCP. (C) Gdy od każdego przebiegu OCR odejmie się wartość OCR sprzed traktowania, można obliczyć Delta OCR (naniesioną na oś Y). Pozwala to wyizolować wpływ traktowania na OCR, pomimo zmienności bazowego OCR między studzienkami. Dzięki zastosowaniu Delta OCR efekt FCCP staje się widoczny. Staje się również jasne, jak krótko trwa efekt odsprzęgania mitochondrialnego indukowany przez FCCP w porównaniu z BAM15. Wreszcie widać, że w porównaniu z FCCP ekspozycja na BAM15, nawet po wypłukaniu leku, tworzy nowy „zaadaptowany” stan utrzymanego wyższego OCR. (D) Wykresy z punktów (B) i (C) przedstawiono w formie wykresów słupkowych, co pozwala na bezpośrednie porównanie danych nienormalizowanych (wykres lewy, z punktu (B)) i znormalizowanych (Delta OCR, wykres prawy, z punktu (C)). Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek barwnikowy siatkówki; FCCP = cyjanek karbonylowy-p-trifluorometoksyfenylohydrazona; DMSO = dimetylosulfoksyd. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 4: Wykorzystanie systemu OCR do obliczania parametrów bioenergetyki mitochondrialnej. (A) Z wykorzystaniem tych samych małych cząsteczek, które są częścią testu stresu mitochondrialnego Seahorse Analyzer Mitochondrial Stress Test, przedstawiono OCR w ciągu pierwszych 2,5 h fazy traktowania dla hodowli RPE. (Wykres lewy) Inhibitor syntazy ATP oligomycyna (N = 3), inhibitory kompleksu I i III antymycyna A/rotenon (N = 7) lub nośnik, DMSO 0,4% (N = 4). (Wykres prawy) Odsprzęgacz mitochondrialny BAM15 (N = 4) lub nośnik DMSO 0,6% (N = 4). (B) Średnia z trzech końcowych punktów czasowych dla każdej grupy traktowania (czerwone pola na (A)). (C) Przedstawienie symulowanego profilu bioenergetycznego testu Seahorse Analyzer Mitochondrial Stress Test na podstawie danych z Resipher. Kolorowe punkty danych na symulowanym wykresie odpowiadają kolorowym wykresom słupkowym w (B). Wszystkie parametry oddechowe można obliczyć, wykorzystując dane z Resipher i wybrane małe cząsteczki. (D) Schemat mechanizmu działania odczynników użytych na Rysunku 3 oraz Rysunku 4. Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek pigmentowy siatkówki; DMSO = dimetylosulfotlenek; AA = antymycyna A; Rot = rotenon. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 5: Długoterminowy monitoring OCR w komórkach RPE poddawanych przejściu epitelialno-mezenchymalnemu stymulowanemu przez TGFβ2. Dojrzałe pierwotne hodowle ludzkiego nabłonka pigmentowego siatkówki (RPE) traktowano 10 ng/mL TGFβ2 lub kontrolą nośnikiem co 2-3 dni. (A) Pomiary OCR w czasie rzeczywistym były monitorowane przez 3 tygodnie wraz z (B) ilościowym oznaczeniem Delta OCR w czasie (Dzień 19-Dzień 6). N = 6-7 studzienek na grupę, nieparzysty test t, * P < 0,05. Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek pigmentowy siatkówki; TGFβ2 = czynnik wzrostu transformującego beta-2. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
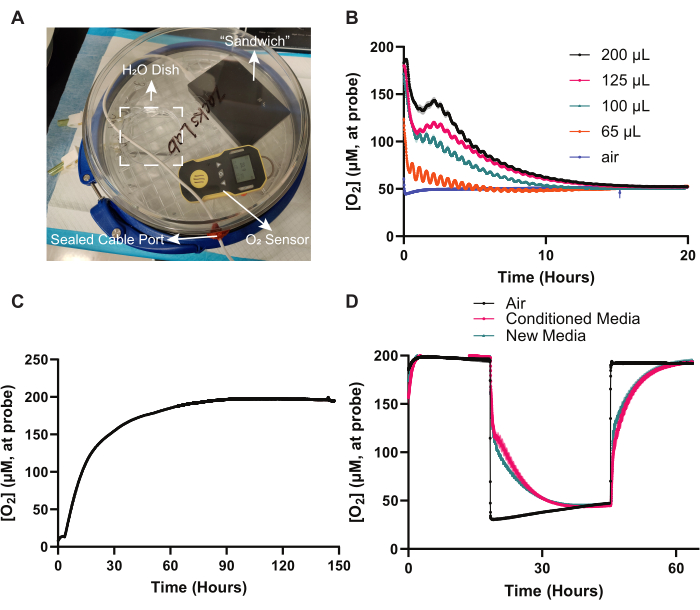
Rycina 6: Monitorowanie odpowiedzi mitochondrialnej RPE na hipoksję. (A) Układ OCR w formie „kanapki” został zmontowany w komorze hipoksji, a kabel USB podłączono do koncentratora przez otwór wywiercony w pokrywie i uszczelniony smarem silikonowym lub masą uszczelniającą. W komorze hipoksji znajduje się również szalka Petriego z wodą sterylną w celu utrzymania wilgotności oraz przenośny czujnik O2. Cały układ pozostawiono w inkubatorze do hodowli komórkowych po zastąpieniu atmosfery w komorze hipoksji gazem o niższym stężeniu O2. (B) Pożywka potrzebuje czasu, aby wyrównać stężenie O2 powyżej granicy fazy powietrze-ciecz. Do pustych dołków (bez komórek) płytki 96-dołkowej dodano różne objętości pożywki RPE wyrównanej do atmosferycznego poziomu O2. Następnie komorę hipoksji ustawiono na 5% (50 µM) O2. Stężenie O2 w pożywce w każdym dołku monitorowano przez 20 h. Dołki z większą objętością pożywki wyrównywały się do 5% O2 wolniej niż dołki z mniejszą objętością pożywki. N = 8. (C) Układ może być wykorzystany do wykrywania nieszczelności powietrznych w komorze hipoksji. Komorę hipoksji ustawiono na 1% O2, a pokrywę pomiarową umieszczono nad pustymi dołkami (tylko powietrze). Wloty i wyloty komory hipoksji pozostawiono otwarte, a atmosfera w komorze hipoksji ponownie wyrównała się do atmosferycznego poziomu O2 w ciągu ok. 90 h. (D) Nowa pożywka i nadsączniki („pożywka warunkowana”) mają podobną rozpuszczalność O2. Eliminuje to obawy dotyczące różnic w rozpuszczalności O2 w pożywce w miarę zmiany jej składu podczas hodowli, co mogłoby wpłynąć na spójność odczytów OCR w czasie. Do dołków płytki bez komórek dodano taką samą objętość (100 µL) świeżej pożywki („nowa pożywka”) lub pożywki inkubowanej przez 48 h z komórkami („pożywka warunkowana”). Układ OCR w formie „kanapki” poddano początkowo atmosferycznemu poziomowi O2, następnie przeniesiono do komory hipoksji (3-5% O2 lub 30-50 µM), a potem ponownie przeniesiono do atmosferycznego poziomu O2. Poziomy O2 w powietrzu monitorowano za pomocą sond w pustych dołkach (tylko powietrze). Zmiana stężenia O2 podczas każdego przejścia między dwoma typami pożywek była identyczna, co pokazuje, że rozpuszczalność O2 w obu typach pożywek jest taka sama. N = 6. Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek barwnikowy siatkówki. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 7O2 stężenia w monowarstwie RPE wyznaczone za pomocą kalkulatora online. Zrzut ekranu kalkulatora online (https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture). Szczegóły dotyczące sposobu wykorzystania kalkulatora do określenia ilości tlenu dostępnego w monowarstwie RPE znajdują się w tekście. Skróty: RPE = nabłonek barwnikowy siatkówki. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 8: Eksperymenty dotyczące rozwiązywania problemów: parowanie, niezdrowe komórki i nadmierne wahania OCR. (A) Nadmierne parowanie. W przypadku wystąpienia nieregularności w zapisie OCR dla danej studni, należy zacząć od kliknięcia karty Environment w interfejsie online systemu (po lewej). Tutaj można monitorować wilgotność, temperaturę i ciśnienie atmosferyczne. Otwarcie inkubatora do hodowli komórkowej tymczasowo zaburza wilgotność (patrz 2 h i 28 h na zapisie). Jednakże, począwszy od 30 h, zapis wilgotności konsekwentnie spada w czasie, nawet bez otwierania drzwi. Sugeruje to, że tacka z wodą w inkubatorze do hodowli komórkowej jest sucha. Jakiekolwiek zaburzenie wilgotności lub temperatury zmieni odczyty OCR. (Po prawej) Niska wilgotność potęguje parowanie. Na zapisie po prawej stronie studnia podlegająca szybkiemu parowaniu wykazuje sukcesywnie mniejsze różnice w stężeniu O2 między górną a dolną częścią zakresu ruchu sondy (1 mm do 1,5 mm nad monowarstwą RPE). Sugeruje to, że końcówka sondy znajduje się blisko granicy fazy powietrze-medium. Gdy odczyt stężenia O2 „spłaszcza się” do wartości zbliżonej do znanych stężeń O2 w atmosferze (~200 µM), wskazuje to, że końcówka sondy znajduje się całkowicie poza kolumną medium i pobiera próbkę tylko z powietrza. Odczyty OCR nie są już prawidłowe i takie studnie wymagają natychmiastowej wymiany medium. (B) Niezdrowe komórki. Wykreślenie zapisów O2 i OCR dla każdej poszczególnej studni umożliwia zidentyfikowanie studni odstającej, co zazwyczaj jest spowodowane niezdrowym stanem komórek. Tutaj studnia oznaczona niebieską linią jest niezdrowa. N = 6 studni. (C) Otwieranie drzwi inkubatora i wymiana medium. Zmiany wilgotności atmosferycznej, temperatury, ciśnienia i poziomu CO2 podczas otwierania drzwi inkubatora, wraz z jakąkolwiek wymianą medium, tymczasowo zaburzają ustanowiony w studni gradient równowagi O2, co powoduje pojawienie się anomalnych skoków O2 i OCR na początku i na końcu tych wykresów. N = 6 studni. Skróty: OCR = tempo zużycia tlenu. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 9: Eksperymenty diagnostyczne: objętość pożywki i normalizacja. (A) Objętość pożywki ogranicza maksymalną możliwą wartość OCR. Ponieważ większe objętości pożywek prowadzą do niższej dostępności O2 przy monowarstwie RPE, każda objętość pożywki w pojedynczej studzience płytki 96-dołkowej ma maksymalną wartość OCR. Powyżej tej wartości OCR poziom O2 na poziomie komórek wynosi w zasadzie 0% (anoksja). Zatem, jeśli wartość jest bliska maksymalnemu teoretycznemu OCR dla danej objętości pożywki, korzystne jest zmniejszenie objętości pożywki, aby w trakcie eksperymentu nie wystąpił „efekt sufitu” OCR. Przedstawiono maksymalny teoretyczny OCR osiągalny dla każdej objętości pożywki (w standardowej płytce 96-dołkowej). Wszystkie wartości zostały obliczone za pomocą kalkulatora online omówionego w sekcji 4 protokołu i przedstawionego na Rycinie 7. (B) Odpowiednia normalizacja. W eksperymentach, w których bada się wpływ jednej zmiennej na zdolność drugiej zmiennej do indukowania metabolizmu mitochondrialnego, idealny jest układ eksperymentalny Delta-Delta OCR. W układzie przedstawionym na (B) badana jest zdolność dwóch różnych pożywek do promowania β-oksydacji palmitynianu. Jeśli zachodzi β-oksydacja kwasu tłuszczowego, powinien nastąpić znaczący wzrost mitochondrialnego OCR. Niektóre pożywki mogą promować β-oksydację palmitynianu lepiej niż inne. Po lewej stronie wykresu OCR do równoległych studzienek z kulturami RPE wprowadzono dwie różne pożywki (Pożywka 1 vs. Pożywka 2). Uzyskano podstawowy OCR (Baseline OCR). Następnie do połowy studzienek zawierających każdy typ pożywki dodano palmitynian. Tworzy to cztery warunki: Pożywka 1 - palmitynian, Pożywka 1 + palmitynian, Pożywka 2 - palmitynian, Pożywka 2 + palmitynian. Zarejestrowano odpowiedź OCR dla każdego z tych nowych warunków pożywek. Następnie wartości OCR po traktowaniu eksperymentalnym (średnia z czerwonego przerywanego prostokąta w fazie Traktowania/Treatment) odjęto od wartości podstawowych OCR przed traktowaniem (średnia z czerwonego przerywanego prostokąta w fazie Podstawowej/Baseline), tworząc wykresy słupkowe Delta OCR (lewy dół). Na koniec zdolność Pożywki 1 vs. Pożywki 2 do promowania β-oksydacji określono na wykresie słupkowym Delta-Delta OCR (prawy dół). Tutaj obliczono różnicę między „Delta OCR Pożywki 1 + palmitynian” a „Delta OCR Pożywki 1 - palmitynian” i porównano ją z różnicą między „Delta OCR Pożywki 2 + palmitynian” a „Delta OCR Pożywki 2 - palmitynian”. Tego rodzaju układ eksperymentalny i normalizacja izolują wpływ Pożywki 1 vs. Pożywki 2 na promowanie β-oksydacji; ogólna struktura tej normalizacji jest możliwa do zastosowania w każdym eksperymencie, w którym mierzy się wpływ jednej zmiennej na zdolność drugiej zmiennej do zmiany OCR. Skróty: OCR = szybkość zużycia tlenu; RPE = nabłonek pigmentowy siatkówki. Proszę kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Tabela 1: Skład pożywki do hodowli komórek RPE. Kliknij tutaj, aby pobrać tę tabelę.
Dyskusja
Mitochondrialny metabolizm RPE odgrywa kluczową rolę w patogenezie powszechnych chorób siatkówki powodujących ślepotę, w tym AMD i PVR. Modelowanie metabolizmu mitochondrialnego RPE in vitro pozwala na odizolowanie jego stanu metabolicznego od stanu metabolicznego otaczających tkanek, a także poddanie tkanki różnym obrażeniom symulującym chorobę w kontrolowany sposób. Takie modelowanie in vitro metabolizmu mitochondrialnego RPE zostało ułatwione dzięki pojawieniu się kultur pierwotnych i iPSC-RPE o wysokiej wierności, które osiągają właściwy stan różnicowania i polarność niezbędne do ścisłego zbliżenia RPE in vivo. Podczas gdy monitorowanie wskaźnika zużycia tlenu (OCR) w takich kulturach jest idealną metodą monitorowania metabolizmu mitochondrialnego, konfiguracja monitorowania OCR często wyklucza hodowlę kultur w warunkach niezbędnych do uzyskania wysoce spolaryzowany i w pełni zróżnicowany RPE. W tym miejscu opisujemy Resipher jako nowatorski system do monitorowania metabolizmu mitochondriów RPE poprzez długoterminową ocenę OCR w czasie rzeczywistym w wysoce zróżnicowanych i spolaryzowanych kulturach RPE.
Do monitorowania OCR w RPE zastosowano inne metody. Analizator Seahorse XF jest przeznaczony do monitorowania OCR w krótkich okresach czasu z ostrymi manipulacjami funkcji mitochondriów. Jednak testy konika morskiego wymagają, aby komórki były hodowane na niestandardowych płytkach, co nie sprzyja wspieraniu wysokiej polaryzacji i różnicowania RPE21. Calton, Vollrath i współpracownicy dostosowali Seahorse do oceny wysoce zróżnicowanych kultur RPE hodowanych na mikroporowatych podłożach poprzez cięcie mikroporowatej membrany na kawałki i umieszczanie ich na płytce Seahorse, ale ta metoda nadal działa tylko w przypadku krótkoterminowego monitorowania kultur w punkcie końcowym, ponieważ komórki nie mają dostępu do CO2 Podczas testu test można wykonać tylko w warunkach niesterylnych, a przecięcie mikroporowatego nośnika spowoduje śmierć i dysfunkcję krawędziowej części mikroporowatego nośnikaw czasie 22. Barofuse to bezpompowy system perfuzyjny, w którym paski RPE wyhodowane na mikroporowatych podłożach mogą być ładowane do systemu perfuzyjnego, co pozwala na monitorowanie OCR w czasie rzeczywistym23. Podobnie jak w przypadku zmodyfikowanej konfiguracji dla Seahorse przez Caltona, Vollratha i współpracowników, głównymi ograniczeniami oceny RPE za pomocą Barofuse są konieczność cięcia mikroporowatych podpór i krótkoterminowy, końcowy charakter testu. Oxygraph jest również przeznaczony do szybkich zmian kinetycznych w OCR w odpowiedzi na manipulacje metaboliczne24. Nie był on stosowany w przypadku kultur RPE i miałby takie same ograniczenia w ocenie wysoce spolaryzowanych i zróżnicowanych kultur RPE, jak konik morski i Barofuse.
W przeciwieństwie do tych innych metod, opisany tutaj system OCR pozwala na monitorowanie OCR, podczas gdy RPE jest hodowany na standardowych płytkach/podłożach do hodowli komórkowych w standardowych warunkach przy użyciu standardowych pożywek RPE w standardowym inkubatorze do hodowli komórkowychCO 2 , zapewniając łatwe i wygodne sondowanie wysoce zróżnicowanych i spolaryzowanych kultur RPE. Oprócz generowania przez system danych o zmianach OCR w czasie rzeczywistym, te same komórki mogą być wykorzystywane do dodatkowych testów pod koniec okresu monitorowania OCR. Pozwala to na bardzo elastyczne eksperymenty, w których wpływ interwencji na OCR jest wielokrotnie testowany przez okres tygodni (np. - indukcja RPE EMT na rysunku 5) lub w których można przetestować długoterminową regenerację po interwencji (np. - powrót do zdrowia po rozprzęgnięciu mitochondriów na rysunku 3) lub gdzie można monitorować kaskadowe zmiany metaboliczne w odpowiedzi na początkową interwencję (np. - wpływ surowicy na OCR po wyczerpaniu składników odżywczych pożywki na rysunku 2). System OCR opisany w tym artykule jest szczególnie wygodny do pomiaru OCR w wysoce spolaryzowanych i zróżnicowanych kulturach RPE. Takie kultury są funkcjonalnie postmitottyczne, ze szczelnym upakowaniem i ciężką pigmentacją. Oznacza to, że każda studzienka zawiera prawie identyczne komórki o numerze9, eliminując w ten sposób potrzebę normalizacji OCR do liczby komórek w większości eksperymentów. Nawet gdy wymagana jest normalizacja do liczby komórek, silna pigmentacja RPE i dobrze odgraniczone granice komórek pozwalają na normalizację przy nieinwazyjnej prostej liczbie komórek opartej na obrazowaniu w jasnym polu. W przypadku eksperymentów obejmujących niezróżnicowane RPE i proliferację RPE, takich jak eksperymenty EMT na rysunku 5, normalizacja OCR na studnię do liczby komórek staje się konieczna, aby wiedzieć, czym jest OCR "na komórkę".
Poza polem siatkówkowym system został wykorzystany do badania oddychania komórkowego i aktywności metabolicznej w różnych typach komórek, w tym w komórkach wysp trzustkowych25, mięśniach szkieletowych26, raku jajnika27, kardiomiocytach28, a nawet całych organizmach, takich jak C. elegans29. Długoterminowe monitorowanie OCR w czasie rzeczywistym za pomocą opisanego tutaj systemu OCR ujawniło kluczowe informacje na temat zmian bioenergetycznych i dysfunkcji mitochondriów w tych różnych modelach chorób.
System Resipher ma jednak pewne ograniczenia. Metoda określania OCR zasadniczo różni się od metody Seahorse Analyzer, BaroFuse lub Oxygraph. Wymaga ustanowienia gradientu O2 w celu obliczenia OCR, a ustalenie gradientu może zająć wiele godzin. Tak więc szybkie eksperymenty kinetyczne, możliwe w innych systemach, nie są możliwe w tym systemie. Ponadto, w przeciwieństwie do innych systemów, Resipher nie posiada żadnych portów iniekcyjnych do szybkiego dostarczania małych cząsteczek lub zbierania metabolitów. Zamiast tego należy zdjąć pokrywę czujnika z okapu do hodowli komórkowej, a następnie dodać do niego leki lub wymienić pożywkę, a także ręcznie pobrać metabolity do analizy.
Aby ustanowić eksperyment i rozwiązać związane z nim problemy przy użyciu systemu OCR opisanego w tym dokumencie, zaleca się wykonanie następujących czynności. Po pierwsze, zminimalizuj parowanie. Przypomnijmy, że gradientO2 w kolumnie nośnika powyżej monowarstwy RPE jest w dużym stopniu zależny od wysokości kolumny9, a system oblicza OCR na podstawie gradientuO2 . Tak więc, jeśli podczas eksperymentu nastąpi wyraźne obniżenie kolumny pożywki z powodu parowania, gradientO2 zmieni się, wpływając na odczyty OCR. Utrzymanie pełnej tacki na wodę w inkubatorze ma kluczowe znaczenie, ale sugeruje się również, aby woda była umieszczana we wszystkich nieużywanych studzienkach na 96-dołkowej płycie. Co więcej, studzienki na krawędzi płyty mają wyższe szybkości parowania, więc studzienki te pozostają puste z komórek w typowych eksperymentach przedstawionych powyżej. Czujnik wilgotności w systemie OCR może pomóc w monitorowaniu wilgotności w inkubatorze. Na rysunku 8A spadek wilgotności podczas eksperymentu sugeruje, że taca na wodę w inkubatorze jest pusta. W miarę przyspieszania parowania w studni, odczyty stężenia O2 dla odwiertu będą rosły wyżej i ostatecznie "spłaszczą się" przy stężeniu atmosferycznym O2 (~ 200 μM) (rysunek 8A).
Po drugie, upewnij się, że "kanapka" systemu OCR jest odpowiednio zmontowana. Metalowe miejsca styku na spodzie urządzenia i górnej części pokrywy czujnika powinny być czyste, bez zanieczyszczeń utrudniających pełny kontakt. Urządzenie i pokrywa czujnika powinny być przymocowane całkowicie równo i równomiernie wyrównane na 96-dołkowej płytce bez przechylania. Kabel USB łączący Urządzenie z Hubem nie powinien być napięty, co może skutkować momentem obrotowym "kanapki" i ograniczeniem prawidłowego ruchu Urządzenia.
Po trzecie, upewnij się, że urządzenie i czujniki pokrywy są skalibrowane. Rysunek 2B szczegółowo opisuje, jak szybko sprawdzić prawidłowe działanie czujnika na początku każdego eksperymentu. Po czwarte, upewnij się, że dany odwiert nie wykazuje odstającego OCR przed manipulacją eksperymentalną. Po upewnieniu się, że czujniki działają, określenie podstawowych wartości OCR dla wszystkich studzienek z komórkami może pomóc w ustaleniu, czy niektóre studzienki zawierają komórki w złym stanie. Rysunek 8B przedstawia kilka studzienek poddawanych podstawowej ocenie OCR, w których studzienka w kolorze niebieskim wyraźnie wykazuje niższy OCR (a zatem wysokie stężenieO2 ). Ten odwiert jest wartością odstającą i powinien być wyłączony z manipulacji eksperymentalnej.
Po piąte, zminimalizuj manipulacje środowiskowe podczas aktywnych odczytów OCR. GradientO2 jest bardzo wrażliwy na zmiany temperatury, wilgotności, poziomu CO2 w inkubatorze i ciśnienia atmosferycznego. Otwarcie drzwi inkubatora znacząco wpływa na te czynniki, powodując tymczasowe zakłócenia w odczytach OCR, dopóki gradient O2 kolumny pożywki nie powróci do równowagi (rysunek 8C). Parametry wpływające na OCR można monitorować w interfejsie online systemu w zakładce "Środowisko" (Rysunek 8A).
Po szóste, określ optymalną objętość nośnika dla eksperymentu. Podczas gdy niewystarczająca objętość podłoża może powodować artefakty spowodowane nadmiernym parowaniem (patrz pierwszy środek rozwiązywania problemów powyżej) lub przedwczesnym wyczerpaniem składników odżywczych w pożywce, nadmierna objętość pożywki ogranicza dostępność O2 dla monowarstwy RPE, wywołując niedotlenienie9. Rysunek 7 jest zrzutem ekranu kalkulatora online dostępnego do określania wpływu objętości pożywki na stężenieO2 w monowarstwie RPE. Maksymalny OCR możliwy do rozpoznania dla danego woluminu nośnika jest wyświetlany na rysunku 9A. Jeśli szybkość OCR dla danego eksperymentu przy użyciu danej objętości jest zbliżona do szybkości przedstawionej na rysunku 9A, wówczas stężenieO2 w monowarstwie RPE zbliża się do anoksyjności (0%) i potrzebna jest mniejsza objętość pożywki. Ogólnie rzecz biorąc, eksperymenty obejmujące intensywne procesy mitochondrialne w hodowli RPE powinny mieć objętość pożywki nie większą niż 75 μl na 96 dołków.
Po siódme, wykonaj odpowiednią normalizację, aby wyizolować wpływ eksperymentalnej interwencji na OCR. Ponieważ różne studzienki mogą mieć różne wyjściowe OCR, kluczowe znaczenie ma uzyskanie podstawowych odczytów OCR dla każdego dołka przed interwencją eksperymentalną. Odejmij podstawowy OCR od OCR po interwencji eksperymentalnej, aby uzyskać "Delta OCR", który pokazuje wpływ interwencji eksperymentalnej na OCR. Metodę otrzymywania "Delta OCR" przedstawiono na rys. 3 i rys. 9B. Jeśli ktoś jest zainteresowany wpływem jednej interwencji eksperymentalnej na zdolność innej interwencji eksperymentalnej do indukowania OCR, potrzebny jest dodatkowy etap normalizacji, "OCR Delta-Delta". Taki przykład zilustrowano na rysunku 9B, gdzie zdolność palmitynianu (jedna interwencja eksperymentalna) do indukowania zwiększonego OCR (poprzez indukcję β-utleniania) zależy od rodzaju pożywki do hodowli RPE (druga interwencja eksperymentalna).
Wreszcie, zminimalizuj ryzyko zanieczyszczenia. System monitoruje OCR poprzez wprowadzenie czujnika tlenu do mediów nad komórkami. Zwiększa to ryzyko infekcji. Nieoczekiwane spadki OCR podczas eksperymentu lub nieoczekiwanie niski OCR na początku eksperymentu mogą być oznakami infekcji. Płytki muszą być aktywnie monitorowane pod kątem infekcji pod mikroskopem hodowli komórkowych. Zanieczyszczenie krzyżowe między płytkami 96-dołkowymi może wystąpić, jeśli pokrywka czujnikowa zostanie ponownie użyta. Aby zminimalizować takie zanieczyszczenie krzyżowe, należy zanurzyć całą pokrywę w 70% etanolu na 20 minut w celu odkażenia po zakończeniu eksperymentu, przed ponownym użyciem pokrywy czujnika w nowym eksperymencie (patrz sekcja protokołu 1.2.15).
Podsumowując, przedstawiono protokół długoterminowego monitorowania metabolizmu mitochondriów w czasie rzeczywistym w kulturach RPE o wysokiej wierności poprzez ocenę OCR przy użyciu nowatorskiego systemu o nazwie Resipher. Może być stosowany do wielu zastosowań w wysoce spolaryzowanych i zróżnicowanych kulturach RPE, w szczególności do badania fizjologicznych właściwości metabolicznych izolowanego RPE, a także zmienionego metabolizmu RPE w modelach in vitro chorób siatkówki, w tym AMD i PVR.
Oświadczenia
Richard A. Bryan i Kin Lo są pracownikami firmy Lucid Scientific, która produkuje system Resipher.
Podziękowania
Dziękujemy doktorom Danielowi Hassowi i Jimowi Hurleyowi za pomysł przetestowania rozpuszczalności O2 w nowych pożywkach w porównaniu z kondycjonowanymi jako kontrolą. Dziękujemy dr Magali Saint-Geniez za wkład redakcyjny w powstanie manuskryptu. Dziękujemy Scottowi Szalayowi z Instrument and Electronic Services Core, Kellogg Eye Center, za doposażenie komory hipoksyjnej w USB Resipher. Na badania nad HFT nie wykorzystano żadnych funduszy federalnych. Rdzeń usług elektronicznych jest wspierany przez P30 EY007003 z National Eye Institute. Praca ta jest wspierana przez nieograniczony grant wydziałowy z Research to Prevent Blindness (RPB). J.M.L.M. jest wspierany przez James Grosfeld Initiative for Dry Age-Related Macular Degeneration, Fundację E. Matildy Ziegler dla Niewidomych, grant Eversight-eye-bank, grant na K08EY033420 z National Eye Institute oraz wsparcie od Dee i Dickson Brown, a także David and Lisa Drews Discovering Hope Foundation. D.Y.S. jest wspierany przez UNSW Scientia Program. L.A.K. jest wspierany przez Iraty Award, Monte J. Wallace, Michel Plantevin, grant R01EY027739 z National Eye Institute oraz Departament Obrony Army Medical Research Acquisition Activity VR220059.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,25% Trypsyna-EDTA | Gibco | #25-200-056 | |
| 3,3',5-trijodo-L-tyronina sól sodowa | Sigma | T5516 | |
| 32-kanałowa pokrywka Resipher | Lucid Scientific | NS32-101A dla Falcon | |
| Antimycin A ze streptomyces sp. | Sigma | A8674-25MG | Inhibitor kompleksu III łańcucha transportu elektronów |
| BAM15 | Sigma | SML1760-5MG | Środek rozprzęgający zwiększający oddychanie mitochondrialne |
| DMSO, klasa hodowli komórkowej | Sigma-aldrich | D4540-100ML | Nośnik do odtwarzania leków mitochondrialnych |
| Podłoża powlekające macierz zewnątrzkomórkową: Synthemax II-SC | Corning | #3535 | Macierz zewnątrzkomórkowa dla hfRPE |
| Substraty powlekające macierz zewnątrzkomórkową: Vitronectin | Gibco | A14700 | Macierz zewnątrzkomórkowa do iPSC-RPE |
| FCCP | Sigma | C2920-10MG | Środek rozprzęgający zwiększający oddychanie mitochondrialne |
| Surowica bydlęca płodu (Bio-Techne S11550H) | Bio-Techne | S11550H | |
| Hydrokortyzon-cyklodekstryna | Sigma | H0396 | |
| Komora do hipoksyji | Embrient Inc. | MIC-101 | |
| N1 Suplement mediów | Sigma | N6530 | |
| Roztwór aminokwasów endogennych | Gibco | 11140050 | |
| Czujnik O2 | Technologia Sensit lub detektory kryminalistyczne | P100 lub FD-90A-O2 | |
| Penicylina-Streptomycyna | Gibco | 15140-122 | |
| Rekombinowany ludzki TGF i beta; 2 | Peprotech | 100-35B | Transformujący czynnik wzrostu beta-2 w celu indukowania przejścia nabłonkowo-mezenchymalnego |
| Rotenon | Sigma | R8875-1G | Inhibitor kompleksu I łańcucha transportu elektronów |
| Płytka kompatybilna z systemem | Corning | #353072 | |
| Taurine | Sigma | T8691 | |
| α MEM (Modyfikacja Alfa Pożywki Orła) | Corning | 15-012-CV |
Bibliografia
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
Przedruki i uprawnienia
