Ten protokół bada zależność między mózgiem a zachowaniem w hipokampie CA1 u myszy poruszających się po smugach zapachu. Zapewniamy protokół krok po kroku, w tym operację w celu uzyskania dostępu do obrazowania hipokampa, trening behawioralny, rejestrację i przetwarzanie mózgu w miniskopie GCaMP6f oraz dane behawioralne w celu dekodowania pozycji myszy na podstawie aktywności neuronalnej ROI.
Artykuł metodologiczny
Miniskop rejestrujący sygnały wapnia w hipokampie myszy poruszających się po pióropuszu zapachowym
W tym artykule
Podsumowanie
Streszczenie
Myszy poruszają się po pióropuszu zapachu o złożonej strukturze czasoprzestrzennej w ciemności, aby znaleźć źródło odorantów. W tym artykule opisano protokół monitorowania zachowania i rejestrowania stanów przejściowych Ca2 + w neuronach grzbietowej warstwy piramidalnej CA1 w hipokampie (dCA1) u myszy poruszających się po pióropuszu zapachu na arenie zapachowej o wymiarach 50 cm x 50 cm x 25 cm. Miniskop epifluorescencyjny zogniskowany przez soczewkę o indeksie gradientu (GRIN) obrazował stany przejściowe Ca2 + w neuronach dCA1 wyrażających czujnik wapnia GCaMP6f u myszy Thy1-GCaMP6f. W artykule opisano protokół behawioralny mający na celu wyszkolenie myszy do wykonywania tego zadania nawigacji po pióropuszach zapachowych na zautomatyzowanej arenie zapachowej. Metody obejmują procedurę krok po kroku do operacji implantacji soczewki GRIN oraz umieszczenie płytki bazowej do obrazowania GCaMP6f w CA1. Artykuł zawiera informacje na temat śledzenia pozycji myszy w czasie rzeczywistym w celu zautomatyzowania rozpoczęcia prób i dostarczenia nagrody w postaci wody. Ponadto protokół zawiera informacje na temat wykorzystania karty interfejsu do synchronizacji metadanych opisujących automatyzację zadania nawigacji zapachowej i czasy wyświetlania klatek dla miniskopu oraz kamery cyfrowej śledzącej pozycję myszy. Ponadto metody te wyznaczają potok używany do przetwarzania filmów fluorescencyjnych GCaMP6f poprzez korekcję ruchu przy użyciu algorytmu NorMCorre, a następnie identyfikację obszarów zainteresowania za pomocą EXTRACT. Wreszcie, artykuł opisuje podejście sztucznej sieci neuronowej do dekodowania ścieżek przestrzennych na podstawie aktywności zespołu neuronowego CA1 w celu przewidywania nawigacji myszy po pióropuszu zapachu.
Wprowadzenie
Chociaż poczyniono znaczne postępy w zrozumieniu obwodów neuronowych zaangażowanych w nawigację węchową u myszy z głową skupioną na głowie1,2,3 i strategie nawigacji w swobodnie poruszających się myszach4,5,6,7,8, rola obwodów neuronalnych w etologicznie istotnej, swobodnie poruszającej się nawigacji w turbulentnych pióropuszach zapachowych jest nadal nieznana. W tym artykule opisano monitorowanie aktywności neuronalnej poprzez obrazowanie stanów przejściowych Ca2+ w komórkach wyrażających genetycznie kodowany czujnik wapnia GCaMP6f u myszy Thy1-GCaMP6f 9 w celu zbadania, czy sekwencyjna dynamika neuronalna grzbietowej warstwy CA1 w warstwie piramidalnej neuronów w hipokampie (dCA1) odgrywa rolę w nawigacji pióropusza zapachowego. Metody dostarczają informacji na temat obrazowanej fluorescencji GCaMP6f za pomocą miniaturowego mikroskopu epifluorescencyjnego zogniskowanego przez soczewkę GRIN na dCA110,11,12. Metody wyjaśniają, jak jednocześnie monitorować nawigację przestrzenną i stany przejściowe wapnia GCaMP6f neuronu dCA1 u myszy wykonujących zadanie nawigacji zapachowo-pióropuszowej, w której otrzymywały nagrodę wodną, gdy dotarły do wylewki, dostarczając środek zapachowy na arenę zapachową z laminarnym przepływem powietrza w tle13,14. W tym artykule opisano metody wymagane do osiągnięcia tego zadania (Rysunek 1), w tym stereotaktyczną operację wszczepienia soczewek o wskaźniku gradientu (GRIN), umieszczenie płytki bazowej w celu przymocowania miniskopu do czaszki w swobodnie poruszającej się myszy, obrazowanie za pomocą mikroskopu miniaturowego i monitorowanie ruchu myszy za pomocą szybkiej kamery cyfrowej, wstępne przetwarzanie danych w celu usunięcia artefaktów ruchu i znalezienia obszarów zainteresowania (ROI), oraz przygotowanie zestawów danych oraz trenowania i przewidywania sztucznej sieci neuronowej do dekodowania pozycji X i Y myszy na arenie zapachowej na podstawie zmian fluorescencji w dCA1 ROIs7.
Miniskopowy zapis sygnałów wapniowych w regionie CA1 hipokampa myszy poruszających się po smugu zapachu jest istotny dla zrozumienia obliczeń obwodów neuronowych związanych z węchem i informacją przestrzenną w złożonym zadaniu zachowania nawigacji po smugach zapachu2,14,15,16. Region CA1 hipokampa odgrywa rolę w nawigacji przestrzennej i ma kluczowe znaczenie dla tworzenia kognitywnej mapy środowiska dla efektywnej nawigacji17,18. Rejestrowanie sygnałów wapniowych za pomocą miniskopu jest cennym sposobem badania neuronów CA1, które kodują informacje przestrzenne podczas nawigacji w smugach zapachów.
Ta technika łączy zalety technologii miniskopowej do rejestrowania sygnałów wapniowych GCaMP z dobrze ugruntowaną rolą hipokampa CA1 w nawigacji przestrzennej, aby lepiej zrozumieć, jak obwody neuronowe kierują złożonymi zachowaniami19. Alternatywnie, podejścia wykorzystujące mikroskopię 2-fotonową mogą rejestrować neurony CA19,20, co wymaga myszy z głową i ogranicza możliwość swobodnego poruszania się w celu poruszania się po pióropuszu zapachu21. Zapisy elektrofizjologiczne neuronów CA1 w polu lokalnym pozwalają na badanie swobodnie poruszających się myszy poruszających się po pióropuszach zapachowych22. Mimo to sygnały elektryczne pola lokalnego nakładają ograniczenia na szacowanie wypalania wewnątrzkomórkowego poprzez izolowanie sygnałów pojedynczych jednostek za pomocą technik sortowania spajków. Sygnały miniskopowe pozwalają w niezawodny sposób zidentyfikować ROI związane bezpośrednio z wewnątrzkomórkowymi sygnałami wapniowymi10,11, aby precyzyjnie badać obliczenia neuronowe w rozdzielczości pojedynczej komórki. Technologia Miniscope daje wyjątkową możliwość lepszego zrozumienia, w jaki sposób region CA1 koduje informacje przestrzenne na podstawie sygnałów zapachowych.
Ponadto, ta technika bada, jak określone populacje neuronów przetwarzają informacje o zapachu do nawigacji i związku między wzorcami aktywności neuronów a podejmowaniem decyzji podczas śledzenia smug zapachu. Metoda ta może przyczynić się do lepszego zrozumienia, w jaki sposób mózg przetwarza zapach i informacje przestrzenne. Chociaż miniskopy oferują rozdzielczość pojedynczej komórki do nagrywania swobodnie poruszającego się mózgu myszy, wymagają specjalistycznej wiedzy z zakresu chirurgii i analizy danych. W tym artykule przedstawiamy kompleksowy protokół, który pomaga naukowcom przejść przez każdy krok w celu zbadania mechanizmów neuronalnych nawigacji w smugach zapachowych.
Zadanie nawigacji zapachowej jest obiecującym narzędziem do badania kodowania neuronowego i przestrzennej pamięci sygnałów zapachowych u myszy. Wyniki artykułu wskazują, że możliwe jest rozszyfrowanie trajektorii myszy poruszającej się po pióropuszu zapachu na podstawie sygnałów wapnia zespołu neuronalnego w dCA1. Zrozumienie roli sygnałów wapniowych dCA1 w nawigacji po pióropuszach zapachowych jest kluczowym krokiem do złamania podstaw obwodu neuronowego do nawigacji sterowanej zapachem w realistycznych środowiskach13,14.
Protokół
Badania przeprowadzono na 3-6-miesięcznych myszach transgenicznych płci męskiej i żeńskiejThy1-GCaMP6f23. Wszystkie protokoły eksperymentalne zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Wykorzystania Zwierząt Kampusu Medycznego Anschutz Uniwersytetu Kolorado zgodnie z wytycznymi National Institutes of Health. Zabiegi chirurgiczne związane z wszczepieniem soczewki GRIN (sekcja 1) i umieszczeniem płytki bazowej (sekcja 2) zostały zaadaptowane z poprzednich prac9,24,25,26,27,28,29.
1. Stereotaktyczny zabieg chirurgiczny polegający na wszczepieniu soczewki GRIN do hipokampa
- Noś sterylne rękawiczki, nakrycie głowy, maskę chirurgiczną i fartuch laboratoryjny.
- Stosuj sterylne warunki podczas wszystkich operacji przetrwania. Wysterylizuj cały sprzęt chirurgiczny przez autoklawowanie.
- Umieść sterylne zasłony wokół pola operacyjnego.
- Znieczulić mysz, umieszczając ją w komorze indukcyjnej z 3% izofluranem na 10 minut. Wstrzyknąć zasadę buprenorfiny w polimerze w dawce 0,001 mg/g podskórnie w czasie indukcji znieczulenia.
- Sprawdź, czy mysz przestaje się poruszać i jest pod głęboką narkozą, potwierdzoną uszczypnięciem tylnej łapy w celu przetestowania odruchu tylnej łapy.
- Przełączyć przepływ izofluranu na stożek nosowy (plik uzupełniający 1).
- Upewnij się, że system znieczulenia izofluranem o niskim przepływie dla myszy (tabela materiałów) ma podkładkę temperaturową ustawioną na ustawienia homeotermiczne i upewnij się, że źródło pary jest ustawione na zewnętrznie sprężone.
- Umieść znieczuloną mysz w cyfrowym przyrządzie stereotaktycznym (tabela materiałów). Umieść przednie zęby myszy w belce gryzowej i umieść stożek nosowy przed nosem, aby zapewnić przepływ izofluranu i zablokować głowę na miejscu. Dostosuj poziom znieczulenia do poziomu od 2% do 3% w zależności od odruchu łapy po uszczypnięciu (Rysunek 2A).
- Umieść nauszniki myszy w uszach i dokręć je. Upewnij się, że głowica myszy jest pozioma i nie porusza się na boki ani w górę iw dół. Gdy głowa jest zabezpieczona, upewnij się, że lekkie naciśnięcie czaszki w dół nie spowoduje wysunięcia się czaszki spod prętów.
- Umieść sondę temperatury w odbytnicy i przyklej drut do ogona myszy, aby uniknąć ruchu. Ustaw temperaturę wkładki, aby utrzymać temperaturę w odbycie na poziomie 37 °C.
- Dodaj maść okulistyczną do oczu, aby zapobiec szkodliwemu wysuszaniu powietrza.
- Golenie włosów jest nieruchome i pod przepływem izofluranu zapewnianym przez stożek nosowy, aby zapobiec ruchom. Ogol włosy nad głową golarką elektryczną, a następnie usuń pozostałe włoski za pomocą depilatora i sterylnych aplikatorów z bawełnianej końcówki (Rysunek 2B).
- Spraw, aby pole operacyjne było sterylne, pobierając wymaz ze skóry głowy sterylnym aplikatorem z drewna z bawełnianą końcówką z etanolem i betadyną trzy razy każdy.
- Wstrzyknąć 0,1 ml lidokainy znieczulenia miejscowego podskórnie (S.Q.) pod skórę między oczami i uszami za pomocą igły 29 G. To sprawi, że powstanie bańka. Odczekaj kilka minut przed przecięciem skóry nożyczkami.
- Stosując technikę opartą tylko na końcówkach, ostrożnie pociągnij skórę za pomocą kleszczy i użyj małych nożyczek, aby usunąć okrągłą część skóry. Wchłoń krew sterylnym wacikiem.
- Gdy krwawienie ustanie, oczyść czaszkę wodą utlenioną (5%) za pomocą sterylnego bawełnianego wacika. Upewnij się, że punkty orientacyjne kości, w tym szew strzałkowy i przecięcie szwu bregmatycznego w celu oznaczenia bregmy, są łatwe do zidentyfikowania po tej procedurze.
- Upewnij się, że czaszka jest płaska w stosunku do aparatu stereotaktycznego, upewniając się, że szwy bregma i lambda są dokładnie na tej samej współrzędnej Z. Wykonaj to, umieszczając igłę w ramieniu manipulatora i sprawdzając, czy końcówka igły znajduje się na tej samej współrzędnej Z podczas dotykania obu szwów. W przeciwnym razie wyreguluj kąt nachylenia głowy, przesuwając drążek zgryzowy w płytce Z i powtarzając procedurę, aż umiejętność znajdzie się w płaskiej pozycji.
- Przymocuj pipetę do mikromanipulatora trzymającą igłę, aby nałożyć tusz do tatuażu. Zrób znak na górze bregmy.
- Wyzeruj współrzędne mikromanipulatora na bregma i przejdź do współrzędnej powyżej CA1 w prawym hipokampie (średnio-bocznie +1,8 mm od bregmy, przednio-tylnie -2,4 mm od bregmy)2. Jest to lokalizacja wybrana przez Radvansky'ego i Dombecka do badania wirtualnej nawigacji gradientu zapachów w myszach18,30. Ostrożnie wywierć małe trwałe wgniecenie o średnicy 1 mm wiertłem (Tabela materiałów) przy 10000 obrotach, aby wykonać trwałe wgniecenie na górze miejsca docelowego (Rysunek 2C).
- Użyj wiertła dentystycznego, aby otworzyć okrągłą perforację o średnicy 1,5 mm, aby umożliwić wszczepienie soczewki GRIN o średnicy 1 mm i długości 4 mm do mózgu (tabela materiałów) (Rysunek 2D).
- Nakłuj oponę twardą i korę, wkładając igłę 23 G w środek otworu i powoli przesuwając igłę do mózgu (~0,1 mm / min), aż osiągnie głębokość 1,25 mm poniżej opony twardej. Powoli wyjmij igłę z mózgu (~0,1 mm/min). Użyj sterylnych wacików bawełnianych i soli fizjologicznej, aby oczyścić krew.
- Użyj specjalnie wykonanego uchwytu na soczewki GRIN UCLA zbudowanego z dwóch końcówek do mikropipet o pojemności 1 ml przyciętych tak, aby pasowały do siebie (uchwyt na soczewkę GRIN, tabela materiałów) (Rysunek 2E, F).
- Podłącz uchwyt soczewki GRIN do mikromanipulatora i włącz aspirator podłączony do pipety, aby przytrzymać soczewkę GRIN. Ciśnienie powietrza wytwarzane przez zasysanie powietrza utrzymuje soczewkę GRIN na miejscu.
- Użyj soczewki GRIN o długości 4 mm i średnicy 1 mm. Powoli wszczepiaj soczewkę GRIN do kory mózgowej, aż osiągnie głębokość -1,25 mm poniżej opony twardej.
- Umieść kroplę płynnego kleju tkankowego (tabela materiałów) w okrągłej perforacji czaszki, aby uszczelnić otwór. Poczekaj kilka minut do wyschnięcia.
- Przygotuj szybko klejący cement - biokompatybilną żywicę metakrylanową - (tabela materiałów) na podstawie soczewki GRIN, aby trwale uszczelnić ją na czaszce. Odczekaj kilka minut i pozostaw do wyschnięcia.
- Wyłącz aspirator, aby zwolnić i powoli wyjmij uchwyt soczewki GRIN z górnej części soczewki GRIN, która w tym momencie jest na stałe przymocowana do czaszki.
- Umieść pasek na głowę na szczycie czaszki, centrując otwór w soczewce GRIN (Rysunek 2G-I) (Plik uzupełniający 2 i plik uzupełniający 3).
- Ostrożnie umieść szybkoschnący cement adhezyjny (Tabela materiałów) wokół podstawy soczewki GRIN, aby uszczelnić okno czaszki i przymocować pręt na głowę do czaszki. Umieść schnący cement adhezyjny (tabela materiałów) na środku pręta na głowę i po bokach, aby był mocno przymocowany do czaszki. Upewnij się, że jest całkowicie suchy. Upewnij się, że na soczewce GRIN nie znajduje się cement klejący; W przeciwnym razie trwale zdegraduje ścieżkę optyczną i zablokuje obraz.
- Umieść kroplę kleju silikonowego o niskiej toksyczności (tabela materiałów) na wierzchu soczewki GRIN, aby chronić ją przed uszkodzeniami fizycznymi.
- Wyłączyć wstrzykiwacz Isoflurane
- Podejmij natychmiastowe monitorowanie opieki pooperacyjnej, dopóki zwierzę nie wybudzi się ze znieczulenia.
- Podejmij opiekę pooperacyjną aż do pełnego wyzdrowienia po operacji, monitorując myszy pod kątem oznak bólu. Nie należy zwracać zwierzęcia, które przeszło operację, do towarzystwa innych zwierząt.
- Krótko obserwuj ruchy w klatce, jedzenie i picie oraz normalne reakcje na dotykanie, aby upewnić się, że nie odczuwają bólu ani stresu.
- Jeśli zwierzęta wykazują oznaki poważnego uszkodzenia neurologicznego lub tkankowego, należy je natychmiast humanitarnie poddać eutanazji.
2. Umiejscowienie płytki bazowej dla miniskopu
UWAGA: Procedury naprawiania głowy myszy rozpoczynają się 2 tygodnie po tym, jak zwierzę w pełni wyzdrowieje po operacji. Procedura obrazowania dCA1 rozpoczyna się 3 tygodnie po operacji, po tym jak zwierzę w pełni wyzdrowieje, a sygnał GCaMP6f stanie się silnie widoczny. Płyta bazowa jest zamocowana na górze soczewki GRIN w celu optycznego dostępu do fluorescencji dCA1 GCaMP6f przez soczewkę GRIN za pomocą miniskopu. Protokół ten wykorzystywał miniskop w wersji 4 -V4 (Miniscope V4; Tabela materiałów).
- Rozpocznij mocowanie myszy głową przez 10 minut, zabezpieczając pałąk na głowę za pomocą zacisków zaciskowych, aby przyzwyczaić mysz do mocowania głowy 2 tygodnie po zabiegu.
- Napraw głowę myszy 3 tygodnie po operacji w celu umieszczenia płytki podstawy.
- Przymocuj miniskop do wydrukowanego w 3D uchwytu przymocowanego do mikromanipulatora (Tabela materiałów) przymocowanego do mikromanipulatora (Rysunek 3A, B).
- Ostrożnie usuń klej silikonowy (tabela materiałów) z górnej części soczewki za pomocą cienkiej pęsety i wyczyść powierzchnię soczewki GRIN za pomocą ściereczki do soczewek.
- Zamocuj płytkę podstawy przymocowaną do miniskopu, dokręcając dociskową z boku płyty podstawy (tabela materiałów) (Rysunek 3C, D).
- Przesuń koniec miniskopu, aż osiągnie 100 μm powyżej soczewki GRIN.
- Użyj suwaków, aby skonfigurować ustawienia miniskopu w oprogramowaniu miniskopu (Tabela materiałów), wykonując kroki od 2.8 do 2.10.
- Kliknij suwak Moc w oprogramowaniu, aby kontrolować moc i utrzymywać ją na poziomie około 10%.
- Kliknij suwak Szybkość akwizycji i utrzymuj ją w okolicach 10 Hz.
- Miniskop v4 jest wyposażony w soczewkę elektrozwilżalną, która może być używana do precyzyjnego ustawiania ostrości. Kliknij suwak Ostrość, aby ustawić go na 50%, aby utrzymać soczewkę elektrozwilżającą w środku zakresu ogniskowych.
- Użyj oprogramowania, aby view górna część soczewki GRIN. Na ekranie można zobaczyć okrągły kształt soczewki GRIN.
- Zbliż miniskop do obiektywu GRIN, regulując położenie osiowe za pomocą mikromanipulatora i monitoruj obraz za pomocą komputera.
- Gdy górna część soczewki GRIN jest widoczna, użyj precyzyjnego ustawiania ostrości w górę iw dół na mikromanipulatorze, aby dotrzeć do najlepszej płaszczyzny ogniskowej do wizualizacji błysków komórek. Użyj ustawienia pseudo δF/F0 w oprogramowaniu, aby dwukrotnie sprawdzić jakość błysków komórek.
- Ustaw ostrość tak, aby umożliwić maksymalną liczbę komórek w polu widzenia o najwyższej osiągalnej intensywności fluorescencji. W tym momencie upewnij się, że naczynia krwionośne są w centrum uwagi.
- Może się zdarzyć, że mysz nie ma przejściowych sygnałów wapniowych -błysków. W takim przypadku unikaj kolejnych kroków (14-16) i ponownie zweryfikuj mysz w ciągu najbliższych tygodni, aby dokładnie sprawdzić, czy występują przejściowe sygnały wapniowe.
UWAGA: Można podjąć decyzję o eutanazji myszy, jeśli przejściowe sygnały wapniowe nigdy nie wystąpią 2 miesiące po operacji. - Po zoptymalizowaniu ostrości ostrożnie zbuduj ścianę z szybko przylegającego cementu między czaszką a dolną częścią płytki podstawowej. Uważaj, aby nie przykleić miniskopu do płyty podstawy i bardzo uważaj, aby nie dostać cementu na wierzch soczewki GRIN.
- Gdy cement wyschnie, odkręć dociskową i ostrożnie wyjmij miniskop z płyty podstawy za pomocą mikromanipulatora.
- Użyj pokrywy płyty podstawy, aby chronić soczewkę GRIN.
3. Budowa areny zapachowej
UWAGA: Ta metoda wyznacza zautomatyzowaną arenę zapachową na podstawie projektu Connor et al.13 i Gumaste et al.14. Kompletny zespół można znaleźć pod linkiem znajdującym się w Tabeli Materiałów (Plik Uzupełniający 4).
- Zbuduj komorę o wymiarach 50 cm (dł.) x 50 cm (szer.) x 25 cm (wys.) z 2 akrylowymi ścianami, akrylowym sufitem, białą podłogą z ekspandowanego polichlorku winylu (PVC) i 2 unikalnymi ścianami z przodu i z tyłu, które ułatwiają przepływ powietrza (Rysunek 4A).
- Zainstaluj końcówkę ssącą powietrze z tyłu areny o zwężającej się konstrukcji i podłączonym wentylatorem komputerowym, aby wyciągnąć powietrze z komory. Użyj fizycznego pokrętła, aby ustawić modulację szerokości impulsu wentylatora (PWM) w celu regulacji natężenia przepływu powietrza.
UWAGA: Wydrukowana w 3D struktura plastra miodu składa się ze ścian z przodu i z tyłu areny zapachowej, aby ułatwić laminarny przepływ powietrza, jednocześnie utrzymując mysz w środku10. Ściana o strukturze plastra miodu z przodu areny ma zewnętrzny rozbłysk, który odbiera duże ilości powietrza w sposób niezakłócający pracy. - Skonfiguruj system dostarczania wody, aby dostarczać nagrodę w postaci wody za pomocą prostych urządzeń z silnikiem krokowym Nema 17 sprzężonym ze strzykawką. Sterownik mikrokrokowy A4988 umożliwia precyzyjną kontrolę dozowanej objętości (https://github.com/dougollerenshaw/syringe_pump, Rysunek 4B).
- Ustaw końcówkę wlotu powietrza z 4 zestawami źródeł zapachów w połączeniu z wylewkami doprowadzającymi wodę, przy czym każdy zestaw jest umieszczony w odległości 10 cm od siebie wzdłuż osi x, aby zdefiniować "pasy", po których zwierzę będzie się poruszać, aby otrzymać nagrodę w postaci wody (Rysunek 4C, D).
- Zainstaluj system dostarczania zapachów zarządzany przez zawory elektromagnetyczne podłączone do rurek i butelek z nawaniaczem (Rysunek 4D).
UWAGA: Zawory są zasilane za pomocą płytki przekaźników w układzie gwarantującym, że przez cały czas przepływa czyste powietrze lub powietrze nawaniane, a jeden pojedynczy pas lub pas zerowy może w dowolnym momencie odbierać nawaniane powietrze. Zestaw pięciu zaworów elektromagnetycznych 12 V jest zarządzany za pomocą płytki przekaźników zawierającej 4 przekaźniki. Gdy wszystkie 4 przekaźniki są ustawione w pozycji "wyłączone", zawór czystego powietrza jest domyślnie otwarty. Po otwarciu dowolnego pojedynczego zaworu zapachowego zawór czystego powietrza jest automatycznie zamykany. Stan płytki przekaźnikowej jest zarządzany za pomocą wyjść cyfrowych z głównego kontrolera arduino. Pompa powietrza akwariowego klasy konsumenckiej dostarcza powietrze, które jest ograniczone do 20 ml/min za pomocą ręcznego regulatora przepływu powietrza. Wykorzystując szereg rurek i rozgałęźników o średnicy wewnętrznej 1/16 cala, przewód zasilający dostarcza czyste powietrze do każdego z zaworów elektromagnetycznych. Zawory zwrotne przed i za nawaniaczem gwarantują kierunek przepływu powietrza. Przewód czystego powietrza łączy się z przewodami nawaniającymi przed wejściem na arenę, aby zagwarantować, że nawaniane powietrze jest oczyszczane, gdy linie zapachowe są zamknięte. - Zainstaluj szybką kamerę cyfrową nad areną, aby monitorować zachowanie zwierząt (Tabela materiałów).
UWAGA: Zachowanie zwierząt jest monitorowane z częstotliwością 60 Hz za pomocą pojedynczej szybkiej kamery cyfrowej zamontowanej nad areną (Tabela Materiałów). Obiektyw stałoogniskowy 3,5 mm z serii C został zamontowany za pomocą adaptera mocowania C/CS, który jest w stanie uchwycić całą arenę (Focal Lens, Table of Materials). - Użyj niestandardowego kodu Pythona, aby zarządzać sprzętem areny zapachowej (tabela materiałów). Oprogramowanie integruje kamerę i cały sprzęt niezbędny do ustawiania parametrów eksperymentalnych i pozyskiwania danych eksperymentalnych (Tabela materiałów).
- Skonfiguruj komputer podłączony do płytki rozwojowej Teensy 4.0, aby zapewnić środki do komputerowego dostarczania zapachów i wody (sprzęt i oprogramowanie Odor Arena, tabela materiałów).
- Skonfiguruj aparat cyfrowy tak, aby eksportował sygnał zegara podczas nagrywania klatek wideo. Sygnał jest używany do synchronizacji post-hoc z miniskopem za pomocą karty interfejsu USB (Tabela materiałów), która rejestruje sygnały synchronizacji z obu systemów.
UWAGA: Podczas eksperymentu niestandardowe oprogramowanie do akwizycji tworzy również plik zdarzeń, który zawiera ważne zdarzenia eksperymentalne oraz klatkę kamery, na której zdarzenie miało miejsce. Tworzony jest również plik znaczników czasu w celu identyfikacji wszelkich upuszczonych klatek, rzadkiego zdarzenia (Odor Arena Software, Table of Materials).
4. Pomiar prędkości powietrza pióropusza za pomocą detektora fotojonizacji (PID) ( Rysunek 5)
UWAGA: Ta metoda wykrywa przebieg czasowy pióropusza zapachu za pomocą PID, który wystawia gazowy środek zapachowy na działanie światła ultrafioletowego o wysokiej intensywności, które jonizuje cząsteczki odorantu. Wyjście urządzenia wykrywa cząsteczki nawaniacza w pióropuszu zapachu. Technika ta pozwala na oszacowanie prędkości powietrza na arenie zapachowej poprzez porównanie opóźnienia w celu wykrycia obecności substancji zapachowych przemieszczających się przez dwie lokalizacje za pomocą PID.
- Umieść miniaturowy PID o szybkiej odpowiedzi w dwóch różnych odległościach. Jedno miejsce jest blisko, a drugie daleko -10 cm od źródła zapachu.
- Zmień przełącznik GAIN na panelu przednim regulatora PID na pozycję x5.
- Zmień przełącznik PUMP na panelu przednim regulatora PID na pozycję High.
- Sprawdź lampkę stanu diody elektroluminescencyjnej (LED) pokazującą wyjście czujnika (napięcia) na panelu przednim sterownika w przypadku braku substancji zapachowych.
- Przełącz potencjometr OFFSET na zerowanie napięcia wyjściowego w przypadku braku substancji zapachowych.
- Włącz zawór zapachowy na arenie zapachowej.
- Zmierz opóźnienie w wykrywaniu smugi zapachu za pomocą PID w każdym miejscu po otwarciu zaworu. Procedurę tę można wykonać w trybie offline, rejestrując jednocześnie wyjście PID i wyjście zaworu zarejestrowane przez arenę zapachową (odor on) za pomocą płytki interfejsu (tabela materiałów).
- Podziel różnicę opóźnień w każdej lokalizacji przez różnicę w odległości między dwoma PID, aby obliczyć prędkość powietrza pióropusza.
5. Mysz do treningu behawioralnego na arenie zapachowej ( Rysunek 6)
UWAGA: Ta sekcja opisuje zadanie behawioralne zaadaptowane z Findley et al.4. Mysz ma ograniczony dostęp do wody dzień wcześniej, aby zmotywować ją do szukania nagrody w postaci wody. Mysz porusza się po pióropuszu zapachu (Rysunek 6B) w kierunku wylotu wody znajdującego się u źródła uwalniania zapachu, aby uzyskać wzmocnienie wodne (3 krople po 10 μL dostarczane z częstotliwością 1 Hz). W okresie treningu mysz jest utrzymywana w warunkach ograniczenia wody, mając dostęp do 2 ml dziennie. Masa ciała myszy jest monitorowana w okresie ograniczenia wody i nie powinna być niższa niż 85% pierwotnej masy ciała. Mysz otrzymuje około 1 ml wody dziennie podczas treningu na arenie zapachowej i jest uzupełniana dodatkowym 1 ml wody dziennie w klatce po treningu. Mysz pozostaje pod ograniczeniem wody przez maksymalny okres 72 godzin. Niestandardowe oprogramowanie (Tabela materiałów) wykrywa lokalizację myszy w czasie rzeczywistym (60 Hz) za pomocą prostej techniki odejmowania tła i lokalizacji blob. Użytkownik ręcznie ustawia granice pasa ruchu, granicę domu (początkową lokalizację myszy z tyłu areny) i granicę celu (w pobliżu źródła zapachu z przodu). Dodatkowo użytkownik może zdecydować, w jaki sposób oprogramowanie wykorzystuje te granice. Na przykład użytkownik może dostarczać zapachy tylko wtedy, gdy mysz znajduje się za granicą domu. Aby mysz otrzymała nagrodę, użytkownik może wymagać, aby pozostała w obrębie nawanianego pasa podczas nawigacji do celu (źródła zapachu). Gdy mysz przekroczy granicę celu, może otrzymać nagrodę. Jednak podczas szkolenia każde z tych wymagań można dostosować, po prostu edytując plik "yaml", który jest zrozumiały i przyjazny dla użytkownika.
- Najpierw wytrenuj mysz, aby rozpoczynała próby, przesuwając się na tył areny (zdefiniowanej jako część areny, która jest oddalona o 40 cm od strony, po której powietrze wpływa do komory). Poczekaj, aż mysz przejdzie na tył areny, a następnie ręcznie dostarcz zapach i wodę na jednym losowym pasie. Pozwól myszy znaleźć źródło i napić się wody.
- Powtórz procedurę wiele razy, aby stworzyć powiązanie między zapachem a wodą (Rysunek 6A, B). Gdy mysz nauczy się rozpoczynać próby, użyj zautomatyzowanego oprogramowania do dostarczania zapachów.
- Wytrenuj mysz, aby wykonywała zadanie nawigacji po zapachach na dwóch pasach za pomocą zautomatyzowanego oprogramowania niestandardowego. W tym zadaniu losowo wybierz jeden z dwóch portów zapachowych, aby dostarczyć zapach i wzmocnić mysz wodą, gdy dotrze do wylewki wody, do której dostarczany jest środek zapachowy. W protokole tym wykorzystano środek zapachowy octan izoamylu rozcieńczony w stężeniu 1% w oleju mineralnym.
UWAGA: Mysz wykonuje sesję około 20 prób nawigacji w smugach zapachów w ciągu około 40 minut. Mysz wykonuje jedną sesję dziennie. Wytrenowana mysz osiąga procent poprawnej nawigacji powyżej losowego wyboru na koniec sesji (> 65% poprawnych wyborów). Mysz powinna osiągnąć kryterium > 65% poprawnych wyborów w zadaniu dwupasmowej nawigacji zapachowej po 3 do 5 sesjach treningowych.
6. Zapis epifluorescencji swobodnie poruszającej się myszy na arenie zapachowej
UWAGA: Metoda opisuje rejestrowanie aktywności neuronalnej komórek warstwy piramidalnej (SP) w grzbietowej części CA1 poprzez obrazowanie genetycznie kodowanego czujnika wapnia GCaMP6f wyrażonego u myszy Thy19 za pomocą obrazowania miniskopowego o szerokim polu podczas zadania nawigacji po smugach zapachu z dwoma wylewkami (Dodatkowy Film 1 i Dodatkowy Film 2). Typowa sesja obrazowania trwa 40 minut, co pozwala myszy na wykonanie około 20 prób nawigacji zapachowej. Ta technika nagrywa mysz przez kilka miesięcy.
- Zamocuj głowę myszy, umieść miniskop na górze płyty bazowej za pomocą mikromanipulatora i dokręć dociskową.
- Dostosuj soczewkę elektrozwilżającą, aby znaleźć optymalną płaszczyznę ogniskową z największą liczbą komórek o największej intensywności fluorescencji.
- Dostosuj moc miniskopu, aby uzyskać optymalny zakres dynamiki z wysokim stosunkiem sygnału do szumu bez nasycenia. Osiągnij to, obrazując grzbietowy CA1 u myszy Thy1-GCaMP6f z mocą miniskopu ustawioną na około 30% przy szybkości akwizycji 30 Hz.
- Zwolnij mysz wewnątrz areny zapachowej za pomocą miniskopu przymocowanego do płytki podstawy.
- Rozpocznij akwizycję za pomocą płytki interfejsu, aby nagrać wyjście logiki tranzystor-tranzystor (TTL) kamery cyfrowej znajdującej się w górnej części areny oraz sygnał TTL z miniskopu w celu późniejszej synchronizacji między klatkami wideo behawioralnymi i GCaMP6f. Kamera cyfrowa nagrywa z częstotliwością 60 Hz, a miniskop z częstotliwością 30 Hz.
- Rozpocznij nagrywanie miniskopu i filmów behawioralnych i włącz zautomatyzowane oprogramowanie do dwóch zadań nawigacji po zapachu wylewki.
7. Wstępne przetwarzanie danych
UWAGA: Ta metoda wykorzystuje potok MATLAB do przetwarzania danych. Kod jest dostępny na GitHub (Oprogramowanie do synchronizacji, Tabela materiałów). NoRMCorre31 służy do korekcji ruchu, a EXTRACT32 służy do znajdowania ROI ze zmiennymi w czasie sygnałami fluorescencji zgłaszanymi jako zmiany fluorescencji znormalizowane przez fluorescencję między stanami przejściowymi wapnia (δF/F0).
- Zsynchronizuj metadane areny zapachowej, ramki kamery cyfrowej i ramki miniskopu, korzystając z sygnałów synchronizacji zarejestrowanych przez płytę interfejsu, uruchamiając kod MATLAB Synchronize_Files_JOVE.m, dostępny na GitHub.
- Wykonaj korekcję ruchu zsynchronizowanych ramek miniskopu za pomocą NoRMCorre (Motion Correction Software, Table of Materials).
- Znajdź ROI ze zmiennymi w czasie sygnałami δF/F0 za pomocą EXTRACT (ROI Extraction Software, Table of Materials).
- Podziel dane na wersje próbne (oprogramowanie do synchronizacji, tabela materiałów).
- Oznacz każdą próbę jako trafienie lub chybienie w oparciu odpowiednio o prawidłowe lub nieprawidłowe zachowanie myszy podczas nawigacji.
- Użyj Behavior Ensemble and Neural Trajectory Observatory (BENTO)33, aby zobrazować zachowanie i ROI każdej oddzielnej próby (Rysunek 7A, B i film uzupełniający 3).
8. Analiza danych - Dekodowanie pozycji przestrzennej na podstawie sygnałów mózgowych
UWAGA: Ta metoda wykorzystuje uczenie maszynowe do dekodowania pozycji X i Y myszy na arenie z dCA1 ROIs7. Kod MATLAB jest dostępny (Decoding Brain Signals Software, Table of Materials) pod adresem https://github.com/restrepd/drgMiniscope.
- Wprowadź plik wyjściowy EXTRACT.mat i plik metadanych areny zapachowej do oprogramowania drgDecodeOdorArenav2.m. Repozytorium GitHub udostępnia te dwa pliki jako przykład (Oprogramowanie do synchronizacji, Tabela materiałów):
dFF_file='20220804_FCM22_withodor_miniscope_sync
_L1andL4_ncorre_ext.mat';
arena_file='20220804_FCM22withodor_odorarena_L1
andL4_sync. mata";
UWAGA: drgDecodeOdorArenav2.m tworzy zestaw danych podzielony przez dane wewnątrzpróbne zawierające sygnały ROI i metadane (pozycje X i Y myszy, lokalizacja wylewu zapachu, dostarczanie wody itp.) dla każdej próby. Kod analizuje również dekodowanie danych między próbami. Kod wykorzystuje fitrnet do trenowania sztucznej sieci neuronowej z danymi δF/F0 dla wszystkich ROI dla wszystkich prób z wyjątkiem jednej, do przewidywania pozycji X i Y oraz przewidywania pozycji pominiętej próby przy użyciu procedury leave one out. - Sieć neuronowa zwraca pozycje X i Y jako dane wyjściowe. Użyj wytrenowanej sieci neuronowej do tworzenia prognoz. Dane wejściowe pominięte w próbach, które nie są wykorzystywane do trenowania sieci w celu przewidywania pozycji X i Y myszy na arenie na podstawie ROI (Rysunek 8A, B).
Wyniki
Zastosowanie tej procedury pozwala na wizualizację i rejestrację przejściowych sygnałów fluorescencji dCA1 GCaMP6f u myszy nawigujących w arenie zapachowej w celu odnalezienia źródła substancji zapachowych (Rysunek 6A,B, Dodatkowy Film 1 oraz Dodatkowy Film 2). Obrazy fluorescencji są korygowane pod kątem ruchu za pomocą NoRMCorre, a do wyodrębnienia ROI wykorzystywany jest program EXTRACT. Ponadto rejestracja z użyciem płyty interfejsu umożliwia synchronizację sygnałów δF/F0 z ROI z momentami podawania zapachu i wody w arenie zapachowej (Rysunek 7A), a także z ruchem myszy w arenie zapachowej (Rysunek 7B oraz Dodatkowy Film 3). Reprezentatywny wynik nawigacji myszy w pióropuszu zapachowym obejmuje dużą liczbę przejściowych sygnałów wapniowych podczas wykonywania zadania (Rysunek 7A,B). Dodatkowo możliwe jest sprawdzenie, w jaki sposób odpowiedzi wapniowe korelują z obecnością zapachu i nagrody w postaci wody (Rysunek 7A). Wizualizacja pojedynczych prób za pomocą BENTO dostarcza informacji o odpowiedziach wapniowych na różnych etapach próby, w tym podczas rozpoczęcia próby, podejmowania decyzji, nawigacji, picia oraz powrotu do tylnej części areny (Rysunek 7B). Przedstawiona metoda dostarczyła cennych informacji na temat związku między odpowiedziami wapniowymi w CA1 a zachowaniem myszy podczas zadania nawigacyjnego zorientowanego na zapach.
Rejestracje z detektora PID mogą dostarczyć kluczowych informacji na temat pióropusza zapachowego oraz prędkości powietrza w obrębie tego pióropusza. Reprezentatywny wynik pokazuje wzrost odpowiedzi PID po otwarciu zaworu i uwolnieniu pióropusza zapachowego wewnątrz areny zapachowej (Rycina 5A). Ponadto protokół umożliwia dekodowanie pozycji X i Y myszy na podstawie sygnałów δF/F0 z obszarów ROI w dCA1 (Rycina 8). Technika ta pozwala przewidzieć lokalizację przestrzenną myszy podczas zadania nawigacji w pióropuszu zapachowym na podstawie odpowiedzi CA1, co jest istotne dla lepszego zrozumienia sposobu, w jaki neurony CA1 przetwarzają informacje zapachowe i przestrzenne. Dekodowanie trajektorii myszy z sygnałów wapniowych zespołów neuronowych w dCA1 ma duże znaczenie, ponieważ ujawnia, jak neurony w grzbietowej części CA1 reprezentują mapę poznawczą substancji zapachowej i informacji przestrzennych w celu wykonania złożonego zadania nawigacji w pióropuszu zapachowym. Metodę tę rozszerzono na różne obszary ROI, które zachowują się wyłącznie jako komórki miejsca (place cells), oraz inne komórki reagujące na bodziec zapachowy. Prawidłowość dekodowania trajektorii myszy z sygnałów zespołów neuronowych można potwierdzić poprzez silną korelację między przewidywaniem z dekodowania a rzeczywistymi pozycjami X i Y myszy.

Rysunek 1: Schemat badania. (A) Operacja stereotaktyczna polega na implantacji soczewki GRIN w warstwie CA1 hipokampa oraz płytki mocującej na czaszce w celu unieruchomienia głowy myszy. (B) Na górze soczewki GRIN umieszcza się płytkę bazową, aby umożliwić optyczny dostęp do fluorescencji neuronów CA1 za pomocą miniskopu. (C) Mysz jest trenowana w zadaniu nawigacji w smudze zapachowej. (D) Rejestracja zachowania myszy oraz aktywności neuronów CA1 podczas swobodnej nawigacji w smudze zapachowej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 2: Chirurgia stereotaktyczna. (A) Umieść znieczuloną mysz w aparacie stereotaktycznym. Dostosuj poziom znieczulenia w zakresie od 2 do 3% w zależności od odpowiedzi odruchowej na uciśnięcie łapy (B) Wygol sierść nad głową. (C) Za pomocą wiertła ostrożnie wykonaj mały, trwały wgłębienie w górnej części docelowej lokalizacji. (D) Użyj wiertła stomatologicznego, aby wykonać okrągłą perforację o średnicy 1.5 mm, umożliwiającą implantację do mózgu soczewki GRIN o średnicy 1 mm i długości 4 mm. (E) Podłącz uchwyt soczewki GRIN do mikromanipulatora i włącz aspirator podłączony do pipety, aby utrzymać soczewkę GRIN. (F) Powoli implantuj soczewkę GRIN do kory, aż osiągnie głębokość -1.25 mm poniżej opony twardej. (G) Ilustracja utrwalonej po śmierci głowy, pokazująca płytkę głowową i płytkę podstawową przycementowane do czaszki wraz z implantowaną soczewką GRIN. (H) Pośmiertny skan CT głowy ilustrujący pasek głowowy na szczycie czaszki oraz soczewkę GRIN implantowaną wewnątrz czaszki. (I) Konstrukcja płytki głowowej zapewniająca unieruchomienie głowy myszy. Zwierzę na tym przedstawieniu jest odsłonięte, aby ułatwić wizualizację anatomiczną. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
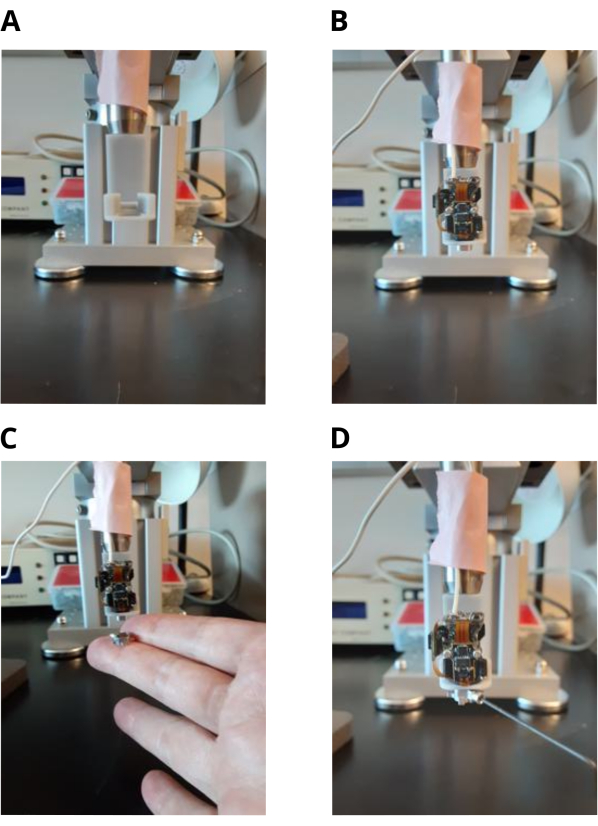
Rysunek 3: Mocowanie płytki podstawy miniskopu. (A) Wydrukowany w technologii 3D uchwyt miniskopu połączony z mikromanipulatorem. (B) Miniskop zamocowany w uchwycie. (C) Mocowanie płytki podstawy do miniskopu. (D) Dokręcanie śruby mocującej w celu utrwalenia płytki podstawy w miniskopie. Śrubę mocującą luzuje się po przyklejeniu płytki podstawy do czaszki myszy. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 4Konstrukcja areny zapachowej. (APrzezroczysta komora areny zapachowej. Na górze znajduje się kamera cyfrowa do rejestrowania zachowania myszy.BSilniki krokowe połączone ze strzykawkami kontrolują podawanie wody w celu nagrodzenia myszy.C) Widok z wnętrza areny zapachowej pokazujący strukturę plastra miodu, która służy do uzyskania przepływu laminarnego, oraz cztery linie doprowadzające zapach. (D) System podawania zapachów, obejmujący rurki, zawory i butelki z zapachami, widziany z zewnątrz areny zapachowej. Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.

Rysunek 5: Rejestracja pióropusza zapachowego. (A) Pióropusz zapachowy zarejestrowany za pomocą detektora fotojonizacyjnego (PID). Średnia (ciemnoniebieski)±odchylenie standardowe (jasnoniebieski) z pięciu przebiegów PID dla pióropusza zapachowego rozprzestrzeniającego się z prędkością 4,23 cm/s w arenie zapachowej. Źródło substancji zapachowej znajduje się 2 cm nad dnem areny zapachowej. Głowica czujnika PID generuje sygnał napięciowy odpowiadający stężeniu gazu w pióropuszu zapachowym. (B) Laserowa rejestracja pióropusza zapachowego przy swobodnym przepływie z prędkością 20 cm/s. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 6: Trening behawioralny myszy. (A) Mysz ucząca się nawigowania w kierunku pióropusza zapachowego uwalnianego w prawym kanale. Mysz uczy się rozpoczynać próbę, udając się do tylnej części areny zapachowej, wybierając stronę, w którą ma nawigować w stronę pióropusza zapachowego, a następnie wypijając wodną nagrodę. (B) Mysz ucząca się nawigowania w kierunku pióropusza zapachowego uwalnianego w lewym kanale. Mysz jest nagradzana za nawigowanie do właściwego kanału. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 7: Przetwarzanie wstępne danych. (A) Przebiegi wapnia zsynchronizowane z zdarzeniami w arenie zapachowej dla wielu prób. Każda pojedyncza próba rozpoczyna się od podania zapachu (kolor czerwony), a próby nagrodzone kończą się impulsem podania wody (kolor niebieski). Przebiegi wapnia δF/F0 (bezwymiarowe) dla każdego ROI przedstawiono kolorem czarnym. Każda linia oznacza jeden ROI. Do rejestracji wyjść TTL górnej kamery w arenie zapachowej oraz kamery miniscope w celu synchronizacji klatek wykorzystano płytkę interfejsową. Do korekcji szumów ruchowych z klatek miniscope użyto programu NorMCorre, a do wyznaczania ROI i ekstrakcji przebiegów wapnia δF/F0 programu EXTRACT. (B) Reprezentatywna pojedyncza próba myszy nawigującej w pióropuszu zapachowym. Symultaniczna wizualizacja zsynchronizowanego zachowania (lewy panel) oraz przebiegów wapnia δF/F0 (prawy panel) z każdego ROI z pojedynczej próby została przeprowadzona za pomocą BENTO. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
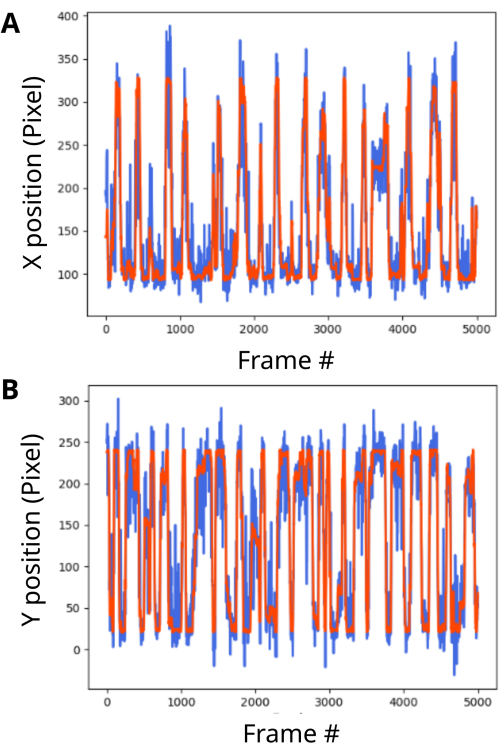
Rysunek 8. Dekodowanie pozycji myszy na podstawie sygnałów z obszaru CA1. Dekodowanie pozycji X i Y myszy z ROI obszaru CA1. Przewidywana pozycja została zaznaczona kolorem niebieskim, a rzeczywista pozycja myszy kolorem czerwonym. Przewidywane ślady są silnie skorelowane z wartościami rzeczywistymi. (A) Dekodowanie pozycji X z ROI (współczynnik korelacji Pearsona = 0,88). (B) Dekodowanie pozycji Y z ROI (współczynnik korelacji Pearsona = 0,88). Aby zobaczyć powiększoną wersję tego rysunku, kliknij tutaj.
Film uzupełniający 1: Reprezentatywny przykład zsynchronizowanych klatek z nagrania behawioralnego i miniskopu, przedstawiający mysz poruszającą się w kierunku pióropusza zapachowego w lewym pasie. (A) Klatki z nagrania behawioralnego myszy z założonym miniskopem, poruszającej się wewnątrz areny zapachowej. (B) Klatki z miniskopu myszy pokazujące surowe przejściowe stężenia wapnia zarejestrowane przez soczewkę GRIN. Kliknij tutaj, aby pobrać ten film.
Uzupełniający film 2: Reprezentatywny przykład zsynchronizowanych klatek behawioralnych i z miniskopu przedstawiający mysz poruszającą się w stronę pióropusza zapachowego w prawym pasie. (A) Klatki behawioralne myszy z założonym miniskopem, poruszającej się wewnątrz areny zapachowej. (B) Klatki z miniskopu myszy ukazujące surowe przejściowe stężenia wapnia zarejestrowane przez soczewkę GRIN. Kliknij tutaj, aby pobrać ten film.
Dodatkowy film 3: Prezentacja przetworzonych danych dotyczących zachowania myszy i sygnałów mózgowych w programie BENTO. Panel lewy: mysz porusza się w stronę prawego toru w arenie. Adnotacje behawioralne są przedstawione w różnych kolorach. Panel prawy: sygnały wapniowe δF/F0 myszy podczas nawigacji. Kliknij tutaj, aby pobrać ten film.
Plik uzupełniający 1: NoseconeRender.png. Plik dla wydrukowanego w 3D stożka nosowego do przeprowadzania anestezji izofluranem. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: HeadbarRender.png. Plik paska głowowego do unieruchamiania głowy myszy. Prosimy kliknąć tutaj, aby pobrać ten plik.
Plik uzupełniający 3: HeadbarTechnicalDrawing.png. Plik rysunku technicznego poprzeczki głowowej do unieruchomienia głowy myszy. Prosimy kliknąć tutaj, aby pobrać ten plik.
Plik uzupełniający 4: ArenaFig_Draft2.tiff. Szczegółowy układ areny zapachowej. Proszę kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Protokół ten skrupulatnie określa kroki rejestrowania komórek miejsca i komórek reagujących na zapach w obszarze dCA1 hipokampa myszy poruszających się po pióropuszu zapachu. Krytyczne kroki w protokole obejmują chirurgię stereotaktyczną, umieszczenie płytki bazowej miniskopu, budowę obszaru zapachowego, sprawdzenie pióropusza na arenie zapachowej, trening behawioralny, miniskopowe nagrywanie swobodnie poruszającej się myszy, wstępne przetwarzanie danych i analizę danych. Dodatkowo protokół wyjaśnia proces dekodowania trajektorii myszy na podstawie nagrań dCA1.
Kluczowym krokiem w chirurgii stereotaktycznej jest podążanie za współrzędnymi względem bregma, aby umieścić soczewkę GRIN we właściwym miejscu. Ograniczeniem metody jest opóźnienie między operacją a czasem rozpoczęcia obserwacji sygnałów GCaMP6f, które może trwać od 2 do 4 tygodni. Mysz powinna być gotowa do użycia po tym krytycznym okresie. Różnica między obecnym protokołem a poprzednimi protokołami 24,25,26,27 polega na użyciu myszy Thy1-GCaMP6f, które już wykazują ekspresję GCaMP6f w CA1, zamiast wstrzykiwania wirusa AAV-GCaMP6f do hipokampa. Oszczędza czas podczas operacji i nie wymaga czasu oczekiwania na ekspresję wirusa AAV w mózgu. Ponadto protokół ten nie aspiruje mózgu i wykorzystuje izofluran zamiast ketaminy/ksylazyny, co zapewnia lepszą kontrolę dawki, aby zapobiec przedawkowaniu. Ograniczeniem metody jest aberracja optyczna soczewki GRIN, która ogranicza pole widzenia. Kluczowym krokiem przy umieszczeniu płytki bazowej jest utrzymanie soczewki elektrozwilżającej na środku, aby zapobiec ograniczeniu w regulacji płytki Z po zacementowaniu płytki bazowej na głowicy. Ograniczeniem budowy areny zapachowej jest złożoność systemu, która może trwać kilka miesięcy i może wymagać pomocy inżyniera. Ograniczeniem treningu behawioralnego jest to, że myszy mogą preferować jedną stronę areny zapachowej przeciwko drugiej. Jednym ze sposobów na pokonanie tego problemu jest naprzemienne próby, nagradzające mysz za nawigację w kierunku lewego i prawego pasa.
Krytycznym krokiem do sprawdzenia pióropusza jest utrzymanie igły PID w jednej linii ze źródłem zapachu w celu wykrycia ścieżki pióropusza. Kluczowym krokiem w nagrywaniu swobodnie poruszającej się myszy w miniskopie jest upewnienie się, że przewód mini-koncentryczny nie plącze się podczas zadania, czemu można zapobiec za pomocą komutatora. Balony z helem mogą być używane, aby zapobiec przedostawaniu się przewodu koncentrycznego mini-przed mysz. Dla wstępnego przetwarzania danych kluczowe znaczenie ma synchronizacja impulsów TTL górnej kamery cyfrowej areny zapachowej i kamery miniskopowej. W przypadku procedury EXTRACT zaleca się stosowanie przetwarzania nieujemnego w celu lepszej ekstrakcji sygnałów ROI i δF/F0. EXTRACT zapewnia wizualną kontrolę śladów dla każdego zwrotu z inwestycji, aby wykluczyć złe. Bardzo ważne jest, aby zdekodować pozycje X i Y myszy na podstawie ROI, aby mieć duży zestaw danych z setkami epok w celu lepszego trenowania sztucznej sieci neuronowej.
Znaczenie tej swobodnie poruszającej się metody nagrywania w odniesieniu do istniejących metod unieruchomionych na głowie polega na badaniu zachowania myszy w etologicznie istotnym kontekście z prawidłowym ruchem głowy do poruszania się po złożonym pióropuszu zapachowym. Metoda ta ma zastosowanie do badania dynamicznej roli neuronów dCA1 w złożonej nawigacji po nazapachach. Co więcej, procedura nie ogranicza się do hipokampa lub węchu. Inne potencjalne zastosowania tej techniki obejmują badanie roli różnych obszarów mózgu i modalności sensorycznych, w tym możliwych zastosowań w nawigacji wizualnej za pomocą diod LED do wskazywania nagradzanych pasów. Ponadto metoda ta może być potencjalnie zastosowana w eksperymentach w pętli zamkniętej w czasie rzeczywistym, w których dekodowanie wapnia nerwowego z populacji wyzwala neurostymulację lub sensoryczne sprzężenie zwrotne 20,34,35,36.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
To badanie było wspierane przez amerykańskie Narodowe Instytuty Zdrowia (NIH UF1 NS116241 i NIH R01 DC000566) oraz Narodową Fundację Nauki (NSF BCS-1926676). Autorzy dziękują Andrew Scallonowi za pomoc w ustawieniu komory Odor Arena.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Arduino Micro | Arduino | Micro | |
| Biokompatybilna żywica metakrylanowa | Parkell | S380 | C& B-Metabond Klej Cement |
| Dekodowanie Sygnały mózgowe Oprogramowanie | CU Anschutz | https://github.com/restrepd/drgMiniscope | |
| Wiertło dentystyczne | Osada | LHP-6 | AZ210015 |
| Wiertło dentystyczne | Osada | XL-230 | 30000 obrotów na minutę |
| Cyfrowy instrument stereotaktyczny | Stoelting | 51730D | Stereotaktyczny przyrząd myszy, #51904 Ramię manipulatora cyfrowego, 3-osie, Dodatek, LEWY |
| Wiertło | FST Fine Science Tools | 19007-05 | Średnica końcówki 0,5 mm |
| Szybki aparat cyfrowy | Edmund Optics | BFS-U3-63S4C | FLIR Blackfly |
| S Focal Lens | Edmund Optics | C-Series | 3,5 mm |
| Soczewka GRIN | Inscopix | 1050-004595 | Średnica 1 mm i długość 4 mm |
| Uchwyt na soczewkę GRIN | UCLA | http://miniscope.org/index.php/Surgery_Protocol | |
| Płynny klej tkankowy | 3M | 1469C | Vetbond Klej tkankowy |
| System znieczulenia o niskim przepływie dla myszy | Kent Scientific Corporation | SomnoSuite | https://www.kentscientific.com/products/somnosuite/ |
| Klej silikonowy o niskiej toksyczności | WPI – World Precision Instruments | Kwik-sil | |
| miniPID Kontroler | ASI – Aurora Scientific Inc. | Model 200B | Szybko reagujący miniaturowy detektor fotojonizacyjny |
| Miniskop V4 Uchwyt | UCLA | NA | https://github.com/Aharoni-Lab/Miniscope-v4/tree/master/Miniscope-v4-Holder |
| Miniskop V4 | Labmaker | NA | https://www.labmaker.org/products/miniscope-v4 |
| Płyta podstawy miniskopu V2 | Labmaker | NA | https://www.labmaker.org/products/miniscope-v4-base-plates-variant-2-pack-of-10 |
| Oprogramowanie Miniscope DAQ-QT | do | ||
| CU Anschutz | https://github.com/restrepd/drgMiniscope | ||
| Odor Arena Hardware | Niestandardowy | model | 3Dhttps://www.dropbox.com/scl/fo/lwtpqysnpzis32mhrx3cd/ADomsxyhxu42sqDmTBl2O6k?rlkey=b3l4809eradundt5l3iz0gq74& dl=0 |
| Odor Arena Software | CUAnschutz | https://github.com/wryanw/odorarena | |
| Środek zapachowy Octan izoamylu | Aldrich Chemical Co | 06422AX | Rozcieńczony w 1% w bezwonnym oleju mineralnym |
| Płytka interfejsu USB RHD | Intan Technologies | C3100 | Produkt wycofany z rynku. Alternatywnie użyj innej równoważnej płyty. |
| Oprogramowanie do ekstrakcji ROI | CU Anschutz | https://github.com/restrepd/drgMiniscope | |
| Sutter Micromanipulator | Sutter Instrument Company | MP-285 | |
| Oprogramowanie do synchronizacji | CU Anschutz | https://github.com/fsimoesdesouza/Synchronization | |
| Thy1-GCaMP6f myszy | Jackson Laboratory | IMSR_JAX 028281 | C57BL/6J-TG(Thy1-GCaMP6f)GP5.12Dkim/J) |
Bibliografia
- Adoff, M. D., Climer, J. R., Davoudi, H., Marvin, J. S., Looger, L. L., Dombeck, D. A. The functional organization of excitatory synaptic input to place cells. Nat Commun. 12 (1), 3558(2021).
- Radvansky, B. A., Oh, J. Y., Climer, J. R., Dombeck, D. A. Behavior determines the hippocampal spatial mapping of a multisensory environment. Cell Rep. 36 (5), 109444(2021).
- Lewis, S. M., et al. Plume dynamics structure the spatiotemporal activity of mitral/tufted cell networks in the mouse olfactory bulb. Front Cell Neurosci. 15, 633757(2021).
- Findley, T. M., et al. Sniff-synchronized, gradient-guided olfactory search by freely moving mice. ELife. 10, e58523(2021).
- Gire, D. H., Kapoor, V., Arrighi-Allisan, A., Seminara, A., Murthy, V. N. Mice develop efficient strategies for foraging and navigation using complex natural stimuli. Curr Biol. 26 (10), 1261-1273 (2016).
- Liu, A., Papale, A. E., Hengenius, J., Patel, K., Ermentrout, B., Urban, N. N. Mouse navigation strategies for odor source localization. Front Neurosci. 14, 218(2020).
- Tariq, M. F., et al. Using head-mounted ethanol sensors to monitor olfactory information and determine behavioral changes associated with ethanol-plume contact during mouse odor-guided navigation. eNeuro. 8 (1), (2021).
- Rigolli, N., Reddy, G., Seminara, A., Vergassola, M. Alternation emerges as a multi-modal strategy for turbulent odor navigation. ELife. (11), e76989(2022).
- Ma, M., et al. Sequential activity of CA1 hippocampal cells constitutes a temporal memory map for associative learning in mice. Curr Biol. 34 (4), 841-854 (2024).
- Aharoni, D., Khakh, B. S., Silva, A. J., Golshani, P. All the light that we can see: a new era in miniaturized microscopy. Nat Methods. 16 (1), 11-13 (2019).
- Aharoni, D., Hoogland, T. M. Circuit investigations with open-source miniaturized microscopes: Past, present and future. Front Cell Neurosci. 13, 141(2019).
- Flusberg, B. A., et al. High-speed, miniaturized fluorescence microscopy in freely moving mice. Nat Methods. 5 (11), 935-938 (2008).
- Connor, E. G., McHugh, M. K., Crimaldi, J. P. Quantification of airborne odor plumes using planar laser-induced fluorescence. Exp Fluids. 59 (9), 137(2018).
- Gumaste, A., et al. A Comparison between mouse, in silico, and robot odor plume navigation reveals advantages of mouse odor tracking. eNeuro. 7 (1), (2020).
- Gumaste, A., et al. Behavioral discrimination and olfactory bulb encoding of odor plume intermittency. ELife. 13, e85303(2024).
- Marin, A. C., Schaefer, A. T., Ackels, T. Spatial information from the odour environment in mammalian olfaction. Cell Tissue Res. 383 (1), 473-483 (2021).
- Eichenbaum, H. The role of the hippocampus in navigation is memory. J Neurophysiol. 117 (4), 1785-1796 (2017).
- Dombeck, D. A., Harvey, C. D., Tian, L., Looger, L. L., Tank, D. W. Functional imaging of hippocampal place cells at cellular resolution during virtual navigation. Nat Neurosci. 13 (11), 1433-1440 (2010).
- Wirtshafter, H. S., Disterhoft, J. F. In vivo multi-day calcium imaging of CA1 hippocampus in freely moving rats reveals a high preponderance of place cells with consistent place fields. J Neurosci. 42 (22), 4538-4554 (2022).
- Mizuta, K., Sato, M. Multiphoton imaging of hippocampal neural circuits: techniques and biological insights into region-, cell-type-, and pathway-specific functions. Neurophotonics. 11 (3), 033406(2024).
- Radvansky, B. A., Dombeck, D. A. An olfactory virtual reality system for mice. Nat Commun. 9 (1), 839(2018).
- Almeida-Santos, A. F., et al. Social isolation impairs the persistence of social recognition memory by disturbing the glutamatergic tonus and the olfactory bulb-dorsal hippocampus coupling. Sci Rep. 9 (1), 473(2019).
- Dana, H., et al. Thy1-GCaMP6 transgenic mice for neuronal population imaging in vivo. PLoS One. 9 (9), e108697(2014).
- Thapa, R., Liang, B., Liu, R., Li, Y. Stereotaxic viral injection and gradient-index lens implantation for deep brain in vivo calcium imaging. J Vis Exp. (176), e63049(2021).
- Hsiao, Y. -T., Wang, A. Y. -C., Lee, T. -Y., Chang, C. -Y. Using baseplating and a miniscope preanchored with an objective lens for calcium transient research in mice. J Vis Exp. (172), e62611(2021).
- Zhang, L., et al. Miniscope GRIN lens system for calcium imaging of neuronal activity from deep brain structures in behaving animals. Curr Protoc Neurosci. 86 (1), e56(2019).
- Guo, D., Gürkan Özer, A., Uusisaari, M. Y. In vivo calcium imaging in mouse inferior olive. J Vis Exp. (172), e62222(2021).
- Yun, M., Shin, J., Jung, M. W. Protocol for calcium imaging of dorsal and ventral CA1 neurons in head-fixed mice. STAR Protoc. 4 (3), 102439(2023).
- Yun, M., Hwang, J. Y., Jung, M. W. Septotemporal variations in hippocampal value and outcome processing. Cell Rep. 42 (2), 112094(2023).
- Sheffield, M. E. J., Dombeck, D. A. Calcium transient prevalence across the dendritic arbour predicts place field properties. Nature. 517 (7533), 200-204 (2015).
- Pnevmatikakis, E. A., Giovannucci, A. NoRMCorre: An online algorithm for piecewise rigid motion correction of calcium imaging data. J Neurosci Methods. 291, 83-94 (2017).
- Inan, H., et al. Fast and statistically robust cell extraction from large-scale neural calcium imaging datasets. bioRxiv. , (2021).
- Segalin, C., et al. The mouse action recognition system (MARS) software pipeline for automated analysis of social behaviors in mice. ELife. 10, e63720(2021).
- Chen, Z., et al. A hardware system for real-time decoding of in vivo calcium imaging data. ELife. (12), e78344(2023).
- Xue, F., et al. Multi-region calcium imaging in freely behaving mice with ultra-compact head-mounted fluorescence microscopes. Natl Sci Rev. 11 (1), nwad294(2024).
- Tabourin, L., Bretzner, F., Galstian, T. Towards a mini-endoscope design with spatially selective excitation and imaging. Biomed Opt Express. 15 (3), 1750-1760 (2024).
Przedruki i uprawnienia
