Tutaj opisujemy model in vitro do izolowania i różnicowania mysich komórek nabłonka dróg oddechowych, skupiając się na ich aklimatyzacji do przewlekłego ekstraktu z dymu papierosowego (CSE). Model może zostać wykorzystany do kompleksowego scharakteryzowania multiomicznego wpływu CSE, co może dostarczyć informacji na temat reakcji komórkowych na przewlekłe narażenie na dym tytoniowy.
Artykuł metodologiczny
Model in vitro do badania różnicowania i zmian multiomiki na mysich komórkach nabłonka dróg oddechowych stymulowanych ekstraktem z dymu papierosowego
W tym artykule
Podsumowanie
Streszczenie
Przewlekła obturacyjna choroba płuc (POChP) jest w dużej mierze przypisywana ekspozycji na dym tytoniowy. Zbadanie, w jaki sposób komórki nabłonka dróg oddechowych funkcjonalnie przystosowują się do dymu tytoniowego, ma kluczowe znaczenie dla zrozumienia patogenezy POChP. Niniejsze badanie miało na celu stworzenie modelu in vitro z wykorzystaniem pierwotnych mysich komórek nabłonka dróg oddechowych w celu naśladowania rzeczywistego wpływu dymu tytoniowego. W przeciwieństwie do ustalonych linii komórkowych, komórki pierwotne zachowują więcej właściwości podobnych do in vivo, w tym wzorce wzrostu, starzenie się i różnicowanie. Komórki te wykazują wrażliwą reakcję zapalną i skuteczne różnicowanie, dzięki czemu ściśle reprezentują warunki fizjologiczne. W tym modelu pierwotne mysie komórki nabłonka dróg oddechowych hodowano przez 28 dni na granicy faz powietrze-ciecz z optymalnym stężeniem ekstraktu dymu papierosowego (CSE), co doprowadziło do przekształcenia monowarstwy niezróżnicowanych komórek w pseudostratyfikowany nabłonek walcowaty, wskazujący na aklimatyzację CSE. Następnie zastosowano kompleksowe analizy multiomiczne w celu wyjaśnienia mechanizmów, za pomocą których CSE wpływa na różnicowanie komórek podstawnych dróg oddechowych. Te spostrzeżenia pozwalają lepiej zrozumieć procesy komórkowe leżące u podstaw progresji POChP w odpowiedzi na dym tytoniowy.
Wprowadzenie
Przewlekła obturacyjna choroba płuc (POChP) to niejednorodna choroba płuc o złożonej charakterystyce, podczas gdy pacjenci z POChP stopniowo stają się młodsi1. Palenie tytoniu, główny czynnik ryzyka POChP2, ma ogromny wpływ na komórki nabłonka dróg oddechowych, które służą jako początkowa bariera przed dymem tytoniowym. Pomimo tego znanego związku, szczegółowe mechanizmy, za pomocą których dym tytoniowy indukuje zmiany w komórkach nabłonka dróg oddechowych, pozostają niewystarczająco zbadane. Dokładne zrozumienie tych zmian molekularnych jest niezbędne do identyfikacji wczesnych markerów diagnostycznych i celów terapeutycznych POChP.
Aby wypełnić tę lukę, opracowaliśmy nowy model in vitro wykorzystujący mysie komórki nabłonka dróg oddechowych. Komórki te poddano długotrwałej stymulacji ekstraktem z dymu papierosowego (CSE), co umożliwiło nam monitorowanie dynamicznych zmian komórkowych i badanie zmian w komórkach nabłonka dróg oddechowych pod wpływem długotrwałej stymulacji tytoniem oraz mechanizmu leżącego u ich podstaw. W tym modelu transwell zastosowano w celu zapewnienia granicy faz powietrze-ciecz komórek nabłonka dróg oddechowych, a ekstrakt z dymu papierosowego był stymulowany we wczesnym etapie różnicowania komórek nabłonka aż do końca różnicowania po 28 dniach. Wcześniejsze badania dotyczyły jedynie różnicowania i krótkotrwałej stymulacji komórek nabłonka dróg oddechowych (dominacja linii komórkowej). Były one ograniczone do jednej ścieżki regulacyjnej3,4,5,6. Jednak przedstawiony tutaj protokół wykorzystuje pierwotne komórki nabłonka dróg oddechowych myszy i optymalizuje proces ekstrakcji komórek w celu uzyskania lepszej aktywności komórek niż poprzednie metody hodowli komórek nabłonka dróg oddechowych. Model ten koncentruje się na zmianach w różnicowaniu komórkowym wraz z kompleksowymi analizami transkryptomicznymi, proteomicznymi, metabolomicznymi i epigenomicznymi. Wykorzystując immunofluorescencję i zaawansowane techniki multiomiczne, naszym celem było wyjaśnienie odpowiedzi komórkowych komórek nabłonka dróg oddechowych na przewlekłą ekspozycję na dym tytoniowy, przyczyniając się w ten sposób do głębszego zrozumienia patogenezy POChP. Model ten może być wykorzystany do zbadania zmian we wzorcu różnicowania komórek nabłonka dróg oddechowych i jego mechanizmu spowodowanego długotrwałą stymulacją różnych zanieczyszczeń.
Protokół
Ogólny protokół wymaga 44 dni, w tym 1 dzień na przygotowanie komórek nabłonka dróg oddechowych wyizolowanych z mysich tchawic, 15 dni na proliferację komórek i 28 dni na stymulację CSE na granicy powietrze-ciecz. Wszystkie zwierzęta doświadczalne są trzymane w pomieszczeniu dla zwierząt barierowych SPF w Centrum Doświadczeń na Zwierzętach Stołecznego Uniwersytetu Medycznego i zostały sprawdzone i zatwierdzone przez Komisję Etyki Zwierząt Doświadczalnych i Laboratoryjnych Stołecznego Uniwersytetu Medycznego (AEEI-2020-100) w celu spełnienia wymagań wytycznych ARRIVE7.
1. Izolacja pierwotnych komórek nabłonka mysich dróg oddechowych od mysich tchawic
- preparat
- Przygotuj kompletną pożywkę ekspandacyjną, łącząc 1 ml 50-krotnego suplementu i 0,05 ml bulionu hydrokortyzonu z 48,95 ml podłoża podstawowego do ekspandacji. Przechowywać w temperaturze 4 °C i zużyć w ciągu 4 tygodni.
- Rozpuścić 7,5 mg proteinazy i 5 mg dezoksyrybonukleazy I w 5 ml Ham's F-12, aby przygotować roztwór proteinazy. Przefiltrować go do sterylizacji i przechowywać w temperaturze 4 °C i zużyć w ciągu 4 tygodni.
- Przygotuj roztwory antybiotyków, dodając 0,05 ml 100x penicyliny/streptomycyny i 0,01 ml 500x gentamycyny/amfoterycyny do 5 ml pożywki o pełnej ekspandacji, PBS i roztworu proteinazy (100 j./ml penicyliny, 100 μg/ml streptomycyny, 10 μg/ml gentamycyny i 0,25 μg/ml amfoterycyny B). Przechowywać w temperaturze 4 °C i zużyć w ciągu 4 tygodni.
- Wysterylizuj narzędzia chirurgiczne i przygotuj komorę bezpieczeństwa biologicznego do izolacji komórek. Jednocześnie upewnij się, że standardowy sprzęt do hodowli komórkowych jest gotowy do użycia.
- Przygotuj naczynia pokryte kolagenem ze szczurzego ogona, dodając kolagen z ogona szczura (100 μg/ml w 0,02 N kwasu octowego) do naczyń hodowlanych o średnicy 100 mm i transwelli o średnicy 24 mm (0,05 ml/cm2). Pozostaw otwarte na noc w świetle UV do sterylizacji.
- Izolacja pierwotnych komórek nabłonka mysich dróg oddechowych
- Użyj myszy C57BL/6 (6-8 tygodni, samce, hodowane z SPF) do izolacji komórek nabłonka tchawicy. Eutanazja z użyciem 1% roztworu pentobarbitalu sodu (około 200 mg/kg). Użyj pięciu myszy, aby uzyskać wystarczającą wydajność komórek.
- Wysterylizuj mysz przez zanurzenie w 75% roztworze etanolu, nie zanurzając nosa i ust w alkoholu, aby zapobiec przedostawaniu się alkoholu do tchawicy.
- Przeanalizuj mysz.
- Użyj ostrzy chirurgicznych i kleszczy, jednego zestawu urządzeń do cięcia i otwierania naskórka od dolnej szczęki do jamy brzusznej myszy.
- Użyj innego zestawu narzędzi chirurgicznych, aby rozerwać tarczycę po obu stronach i usunąć połączenia między tchawicą, otaczającą tkanką mięśniową i przełykiem.
- Następnie ostrożnie wciąć klatkę piersiową, za pomocą kleszczy zagłębić się głębiej w jamę klatki piersiowej, wyjąć całe płuco i znaleźć koniec tchawicy.
- Przetwórz tchawicę.
- Wytnij tchawicę od chrząstki tarczycy do gałęzi tchawiczo-oskrzelowej i umieść ją w pożywce do rozprężania przed zimnem zawierającej cztery antybiotyki.
- Potrząśnij rurką, aby spłukać jak najwięcej krwi z powierzchni tchawicy, trzymaj ją na lodzie, a następnie rozpocznij operację dla następnej myszy.
- Przenieś wszystkie zebrane tchawice do wstępnie zimnego buforu PBS zawierającego cztery antybiotyki (200 U/ml penicyliny, 200 U/ml streptomycyny, 20 μg/ml gentamycyny i 0,5 μg/ml amfoterycyny B) w celu wstępnego leczenia przed trawieniem.
- Użyj zestawu narzędzi chirurgicznych, aby usunąć skrzepy i inne tkanki z powierzchni tchawicy, a następnie pokrój je na rozmiar 1cm2.
- Inkubować tkankę tchawicy w roztworze proteinazy w temperaturze 37 °C przez 40 minut.
- Po 40 minutach kilkakrotnie rozkołysz probówkę i użyj sitka do komórek o wielkości 40 μm, aby usunąć pozostałe tkanki. Rozdrobnione tchawice przepłukać na sitku z 5 ml pożywki ekspandującej, odwirować zawiesinę komórkową o sile 400 x g przez 5 minut w temperaturze 4 °C i odrzucić sklarowany nad osadem.
- Otrzymane komórki zawiesić ponownie w 8 ml pożywki ekspandcyjnej.
- Policz żywe komórki za pomocą błękitu trypanowego i hemocytometru.
- Zawiesinę komórek P0 na płytce P0 na szalkach o średnicy 100 mm (1 x 10⁴ żywe komórki/cm2) wstępnie pokrytą kolagenem z ogona szczura, a następnie wyhodować komórki w inkubatorze w temperaturze 37 °C, 5% CO2 .
2. Hodowla ekspansywna i pasaż pierwotnych komórek nabłonka mysich dróg oddechowych
- Wymieniaj pożywkę do hodowli komórek P0 co 3 dni, aż komórki osiągną zbieżność 70%-80%, zwykle w ciągu 6 dni. W tym momencie mysie komórki nabłonka tchawicy mogą tworzyć nienaruszoną monowarstwę o wyglądzie kostki brukowej (Rysunek 1A-D).
- Wstępnie podgrzej do temperatury 37 °C wystarczające ilości PBS, pożywki do pełnej dylatacji i zestawu do dysocjacji komórek bez składników zwierzęcych (ACF).
- Delikatnie przepłucz komórki 3 ml PBS.
- Wykonaj dysocjację enzymatyczną.
- Dodać 3 ml roztworu dysocjacji enzymatycznej ACF do naczynia i inkubować w temperaturze 37 °C przez 5 minut. Po pipetowaniu delikatnie usunąć komórki i przenieść zawiesinę komórek do 3 ml roztworu hamującego enzymy ACF.
- Powtórzyć dodawanie 3 ml roztworu dysocjacji enzymatycznej ACF i ponownie inkubować przez 5 minut, aby zapewnić maksymalne oderwanie komórek.
- Wirować zawiesinę komórek w temperaturze 400 x g przez 5 minut w temperaturze 4 °C. Odrzucić supernatant.
- Ponownie zawiesić komórki w 1 ml pożywki ekspandatoryjnej.
- Policz żywe komórki za pomocą błękitu trypanowego i hemocytometru.
- Zawiesina komórek P1 na kilku szalkach o średnicy 100 mm (5 x 10⁴ żywe komórki/cm2) wstępnie pokryta kolagenem z ogona szczura, a następnie hodować komórki w inkubatorze w temperaturze 37 °C, 5% CO2 .
3. Różnicowanie i stymulacja CSE pierwotnych komórek nabłonka mysich dróg oddechowych na granicy powietrze-ciecz
- Potwierdź typ komórki.
- Sprawdź pochodzenie nabłonkowe izolowanych komórek za pomocą testu immunofluorescencyjnego (IFA) z przeciwciałami przeciwko cytokeratynom. Komórki nasienne na szkiełkach pokrytych kolagenem z ogona szczura i użyj paraformaldehydu, aby je utrwalić przez co najmniej 12 godzin po tym, jak komórki osiągną 80% zbieżności.
- Myć szkiełka 3 razy roztworem PBS przez 5 minut i inkubować je z 3% BSA i 0,1% trytonem X-100 w roztworze PBS w temperaturze pokojowej (RT) przez 1 godzinę.
- Inkubować szkiełka podstawowe przez noc w temperaturze 4 °C z dostępnym w handlu przeciwciałem anty-cytokeratynowym w rozcieńczeniu 1:500.
- Następnego dnia przemyć szkiełka 3 razy roztworem PBS przez 5 minut i inkubować je z drugorzędowym buforem przeciwciał w rozcieńczeniu 1:1000 w temperaturze słonecznej przez 2 godziny w ciemności.
- Po inkubacji przemyj szkiełka 3 razy PBS (5 minut na pranie) i dodaj do nich DAPI w rozcieńczeniu 1:1000. Po inkubacji w temperaturze pokojowej przez 15 minut, przemywać szkiełka jednorazowo PBS przez 5 minut.
- Obserwuj preparaty pod mikroskopem fluorescencyjnym i porównaj wzorce ekspresji z kontrolą pozytywną (linia komórkowa A549) i kontrolą negatywną (linia komórkowa Raw264.7) (Rysunek 2).
- Zasiej komórki do różnicowania.
- Odłączyć i odwirować komórki P2 zgodnie z poprzednim opisem, a następnie ponownie zawiesić osad komórkowy w odpowiedniej objętości podłoża ekspandacyjnego, aby ułatwić posiew 1 x 10⁴ żywe komórki/cm2.
- Odpipetować 1 ml zawiesiny komórek na komorę wierzchołkową wkładu membrany poliwęglanowej transwell. Do komory podstawowej transwella dodać 1,5 ml pożywki proliferacyjnej.
- Inkubować komórki w temperaturze 37 °C i całkowicie zmieniać całe podłoże w komorze podstawowej i wierzchołkowej co 3 dni za pomocą pożywki ekspansywnej, aż do osiągnięcia konfluencji. Zwykle trwa to od 3 do 6 dni.
- Przygotuj 50 ml pożywki do całkowitego różnicowania, dodając 5 ml suplementu ALI 10x, 500 μl suplementu podtrzymującego ALI, 100 μl roztworu heparyny i 250 μl roztworu podstawowego hydrokortyzonu do 44,15 ml podłoża podstawowego ALI.
- Przygotuj szyfranta po stronie.
- Przetrzyj jednego papierosa przez 12,5 ml pożywki różnicującej, a następnie przefiltruj go przez filtr porowy 0,22 μm, aby przygotować CSE. Aby zapewnić standaryzację między eksperymentami i partiami CSE, zmierz absorbancję przy 320 nm na spektrofotometrze i zdefiniuj gęstość optyczną (OD) 1 jako 100%8.
- Użyć pożywki różnicującej zawierającej CSE o odpowiednim stężeniu w celu stymulacji pierwotnych komórek nabłonka mysich dróg oddechowych w celu wykrycia wpływu na różnicowanie komórek.
- Pozwól komórkom różnicować się przez 28 dni, podczas których zmienia się podłoże komory podstawnej, a stronę wierzchołkową przemuje się dwa razy w tygodniu poprzez usunięcie pożywki komory wierzchołkowej i zastąpienie pożywki komory podstawowej pożywką różnicującą zawierającą odpowiednie stężenie CSE.
- Przeanalizuj komórki po ekspozycji.
- Po wystawieniu na działanie pożywki różnicującej zawierającej CSE, należy pobrać komórki i supernatanty hodowlane w dowolnym momencie (tj. 0-28 dni) w celu wykrycia zmian morfologicznych (tj. test immunofluorescencyjny (IFA) lub barwienie hematoksyliną-eozyną (HE) lub w bioinformatycznych procedurach analitycznych (tj. transkryptomika, proteomika, metabolomika itp.).
Wyniki
Różnicowanie
Mysie komórki nabłonka dróg oddechowych uległy pomyślnemu różnicowaniu po hodowli na granicy faz powietrze-ciecz w medium do różnicowania przez 28 dni. Obecność komórek rzęskowych i kubkowych wykazano odpowiednio za pomocą testu immunofluorescencyjnego z użyciem markera rzęsek acetylowanej α-Tubuliny (kolor zielony; Rysunek 3A) oraz markera komórek kubkowych Mucin5AC6 (kolor czerwony; Rysunek 3B).
Wyznaczenie stężenia CSE dla różnicowania komórek
Stymulowano wyizolowane komórki nabłonkowe różnymi stężeniami CSE przez 24 h. Wyniki wykazały, że żywotność komórek nabłonkowych spadła, gdy stężenie CSE było wyższe niż 6% (p <0,05, Rysunek 4A). Aby zachować aktywność komórek podczas długotrwałej stymulacji, do stymulowania różnicowania komórek nabłonkowych przez 28 dni wykorzystano pożywki hodowlane zawierające 2%, 4% i 6% CSE. Ponadto wyniki wykazały, że wraz ze wzrostem stężenia CSE nie odnotowano istotnej śmierci komórek nabłonkowych (Rysunek 4B), ale nastąpiła stopniowa zmiana wartości oporu przezbłonowego (TEER) (Rysunek 4C) oraz liczby złuszczonych komórek (Rysunek 4D). Dodatkowo odnotowano ogólną redukcję liczby komórek zróżnicowanych i komórek rzęsatych w przypadku przewlekłej ekspozycji kultur komórek nabłonkowych dróg oddechowych myszy na CSE (Rysunek 4E-H). W związku z tym, do dysregulacji funkcji bariery nabłonkowej i zmniejszenia liczby komórek rzęsatych bez obniżenia żywotności komórek podczas 28-dniowego różnicowania komórek nabłonkowych, wybrano pożywkę do różnicowania zawierającą 6% CSE.
Analiza multiomiczna
Zabrano dwie grupy komórek stymulowanych różnymi mediami zawierającymi 0% lub 6% CSE przez 28 dni. Do analizy transkryptomicznej wyekstrahowano całkowite mRNA. Po przygotowaniu biblioteki, sekwencjonowaniu, kontroli jakości, mapowaniu odczytów do genomu referencyjnego i kwantyfikacji ekspresji genów przeanalizowano różnicową ekspresję genów pomiędzy dwiema grupami. Do przeprowadzenia analizy wzbogacenia Gene Ontology (GO) dla genów wykazujących różnicową ekspresję wykorzystano pakiet R clusterProfiler, wprowadzając korekty w celu uwzględnienia rozbieżności w długości genów (Ryc. 5A). Kyoto Encyclopedia of Genes and Genomes (KEGG) służy jako kompleksowa baza danych ułatwiająca zrozumienie funkcjonalności i ról złożonych systemów biologicznych na różnych poziomach, w tym komórkowym, organizmalnym i ekologicznym, poprzez integrację danych na poziomie molekularnym pochodzących z rozległych zbiorów danych, takich jak te wytworzone w drodze sekwencjonowania genomicznego i wysokoprzepustowych metod eksperymentalnych (Ryc. 5B). W przypadku proteomiki, całkowite białka wyekstrahowano z dwóch grup komórek w 28. dniu po hodowli w różnych mediach zawierających 0% lub 6% CSE. Po teście jakości białek, usunięciu soli, enzymatycznej hydrolizie białek, znakowaniu peptydów za pomocą Tandem Mass Tags (TMT), rozdzieleniu frakcji, analizie LC-MS, identyfikacji białek i kwantyfikacji białek, zdefiniowano białka o różnicowej ekspresji pomiędzy dwiema grupami. Analizę GO przeprowadzono przy użyciu programu interproscan w odniesieniu do nieredundantnej bazy danych białek (Ryc. 6A), a KEGG wykorzystano do analizy szlaków (Ryc. 6B). W przypadku metabolomiki, nadnadrobia hodowlane zebrano z dwóch grup nabłonkowych komórek dróg oddechowych w 28. dniu po hodowli w medium różnicującym zawierającym 0% lub 6% CSE. Po analizie HPLC-MS/MS, identyfikacji i kwantyfikacji metabolitów, zdefiniowano metabolity różnicowe pomiędzy dwiema grupami. Do adnotacji wszystkich metabolitów wykorzystano bazę danych KEGG (Ryc. 7A), Human Metabolome Database (Ryc. 7B) oraz bazę danych Lipidmaps (Ryc. 7C). Bazę danych KEGG wykorzystano do analizy funkcji tych różnicowych metabolitów oraz szlaków metabolicznych (Ryc. 7D). W przypadku epigenomiki, przeprowadzono ATAC-seq zgodnie z wcześniejszymi doniesieniami9. Jądra komórkowe wyekstrahowano z dwóch grup komórek w 28. dniu po hodowli w medium różnicującym zawierającym 0% lub 6% CSE, a osad z jąder resuspenderowano w mieszaninie reakcyjnej transpozazy Tn5. Reakcję transpozycji inkubowano w 37 °C przez 30 min. Po dodaniu adaptera, przygotowaniu biblioteki, ocenie jakości, klastrowaniu i sekwencjonowaniu, zdefiniowano różnicową epigenomikę pomiędzy dwiema grupami. Analiza wzbogacenia GO genów powiązanych z różnicowymi pikami bezpośrednio odzwierciedla rozkład liczby genów powiązanych z różnicowymi pikami w elementach GO wzbogaconych w procesy biologiczne, komponenty komórkowe i funkcje molekularne (Ryc. 8A). Bazy danych KEGG użyto do analizy funkcji tych różnicowych genów i szlaków (Ryc. 8B).
Geny kodujące białka połączeń ścisłych
Dane transkrypcyjne wykazały, że po długotrwałej stymulacji CSE nastąpił spadek ekspresji licznych genów kodujących białka połączeń ścisłych, w tym Cgn, Cldn2, Cldn3, Cldn8, Cldn10, Cldn20, Cldn23, Jam2 i Ocln (Rysunek 9A), przy czym obniżona ekspresja Cldn3 i Ocln została dodatkowo potwierdzona za pomocą Western-Blot oraz immunohistochemii (IHC) (Rysunki 9B-E). Dane te sugerują, że ekspozycja na CSE znacznie zmniejsza ekspresję białek połączeń ścisłych w komórkach nabłonkowych dróg oddechowych.
Ekspresja cytokin i chemokin
Oprócz rozpadu połączeń ścisłych, analiza transkryptomiczna wykazała również, że po długotrwałej stymulacji CSE ekspresja niektórych cytokin i chemokin, w tym Cxcl5, Csf3, Il1a, Il34, Ccl20 oraz Il33, wzrosła, natomiast ekspresja Ccl5 uległa zmniejszeniu (Rysunek 10A). Test Luminex dodatkowo potwierdził zwiększone stężenia CXCL-5, CSF-3 i IL-1α (Rysunek 10B-D) oraz zmniejszone stężenie CCL-5 (Rysunek 10E) w supernatancie mysich komórek nabłonka dróg oddechowych. Wyniki te sugerują, że ekspozycja na CSE selektywnie wpływa na ekspresję cytokin i chemokin.
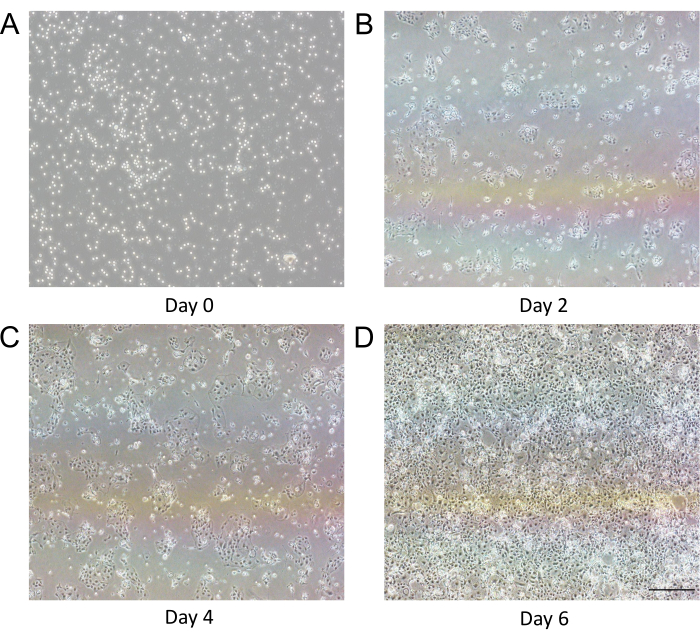
Rysunek 1: Wzrost pierwotnych komórek nabłonka dróg oddechowych myszy. (A) Nowo wyizolowane komórki mają okrągły kształt i są przezroczyste. (B) W 2. dniu po izolacji namnożone komórki tworzą małe wyspy komórkowe. (C) W 4. dniu obserwuje się tworzenie większych wysp komórkowych. (D) W 6. dniu następuje fuzja powyżej 90% komórek z morfologią brukową (4x powiększenie; paski skali: 250 µm). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Analiza immunofluorescencyjna markerów komórek nabłonkowych. Ekspresja cytokeratyny w pierwotnych komórkach nabłonkowych dróg oddechowych myszy, A549 (kontrola pozytywna) oraz Raw264.7 (kontrola negatywna). Jądra komórkowe zabarwione DAPI (powiększenie 63x; paski skali: 40 µm). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 3: Analiza immunofluorescencyjna markerów komórek rzęskowych i kubkowych. Wykorzystane markery to acetylowana (A) α-Tubulina oraz (B) Mucyna 5AC w celu potwierdzenia obecności odpowiednio komórek rzęskowych i komórek kubkowych (powiększenie 100; paski skali: 10 µm na panelu A i 50 µm na panelu B). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
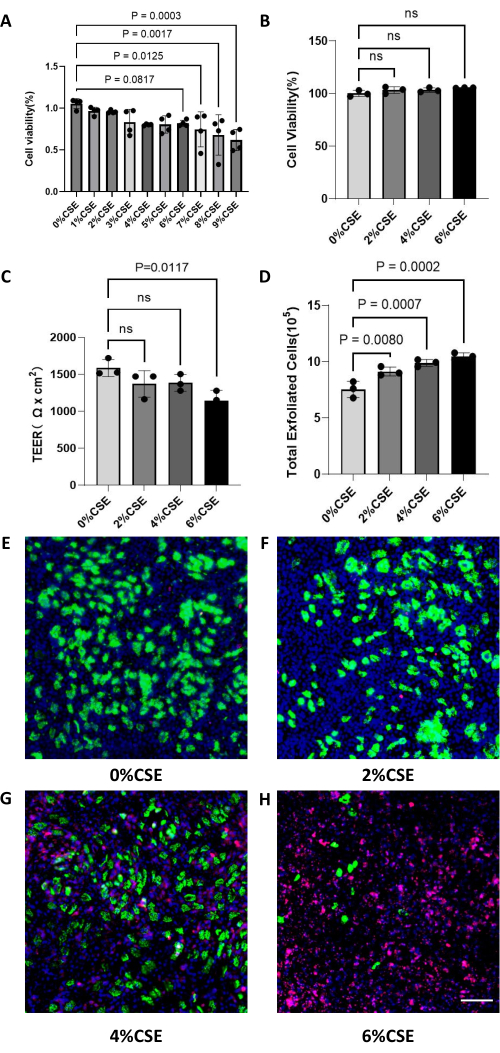
Rycina 4: Wpływ stężeń CSE na komórki nabłonkowe. (A) Żywotność komórek po 24 h przy różnych stężeniach CSE. (B) Żywotność komórek po 28 dniach. (C) Pomiar TEER. (D) Liczba złuszczonych komórek. (E-H) Immunofluorescencja dla komórek rzęsatych (zielone) i komórek kubkowych (fioletowe) przy stężeniach CSE 0%, 2%, 4% i 6% (powiększenie 20x; paski skali: 50 µm). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
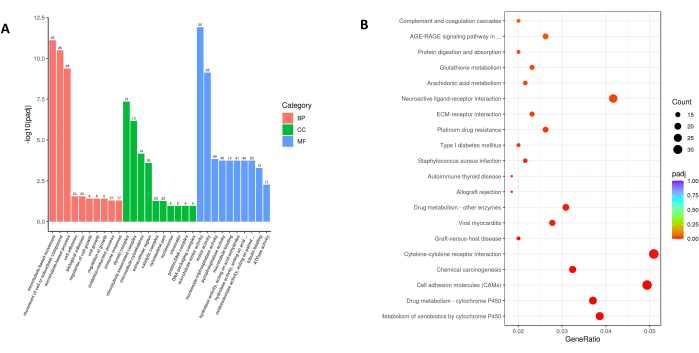
Rycina 5: Analizy wzbogacenia GO i KEGG dla ekspresji genów. (A) Istotność terminów GO we wzbogaconych procesach biologicznych, komponentach komórkowych i funkcjach molekularnych. (B) Proporcja genów różnicowo wyrażonych w szlakach KEGG. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
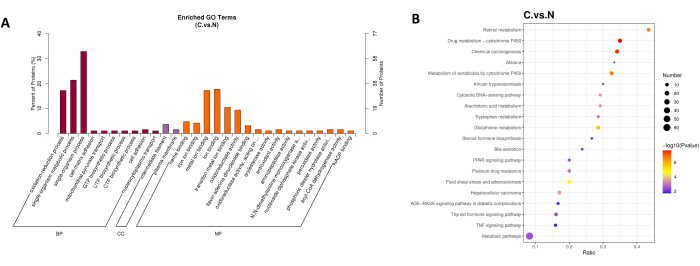
Rysunek 6: Analiza ekspresji białek. (A) Wykres słupkowy wzbogacenia GO przedstawiający różnicową ekspresję białek. (B) Analiza ścieżek KEGG na podstawie różnicowo eksponowanych białek. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
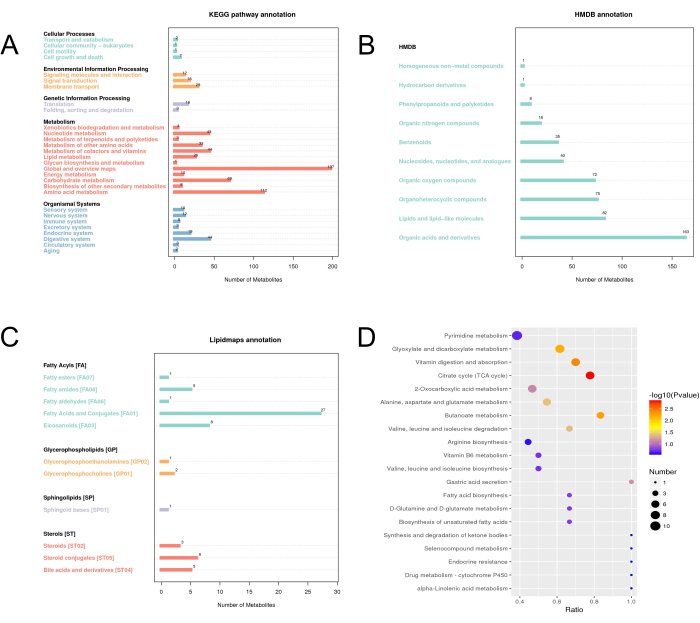
Rycina 7: Analiza szlaków metabolicznych KEGG dla metabolitów. (A) Adnotowanie wszystkich metabolitów przy użyciu bazy danych KEGG. (B) Adnotowanie wszystkich metabolitów przy użyciu Human Metabolome Database. (C) Adnotowanie wszystkich metabolitów przy użyciu bazy danych Lipidmaps. (D) Rozkład różnicowo wyrażonych metabolitów w różnych szlakach KEGG. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
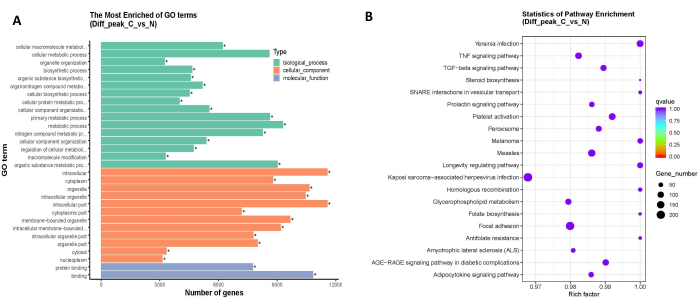
Rycina 8: Analiza ekspresji genów związanych z różnicami w peakach. (A) Wykres słupkowy wzbogacenia GO przedstawiający różnicową ekspresję białek. (B) Analiza szlaków KEGG oparta na różnicowo eksponowanych białkach. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
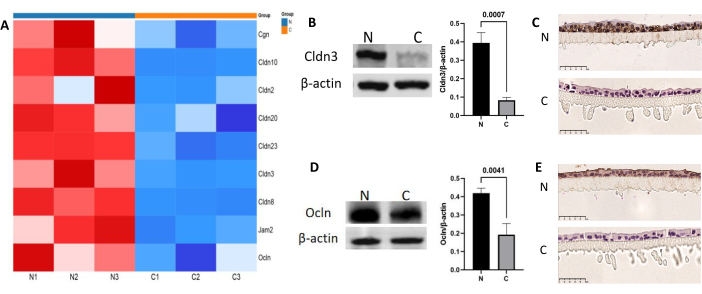
Rycina 9: Ekspresja białek połączeń ścisłych w komórkach nabłonka dróg oddechowych myszy z lub bez stymulacją CSE. (A) Mapa cieplna ekspresji białek połączeń ścisłych w transkryptomie. (B-E) Poziomy ekspresji (B,C) Cldn3 oraz (D,E) Ocln w komórkach nabłonka dróg oddechowych myszy zostały określone metodą Western Blot oraz immunohistochemii dla Cldn3 i Ocln (powiększenie 80x; paski skali: 50 µm). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
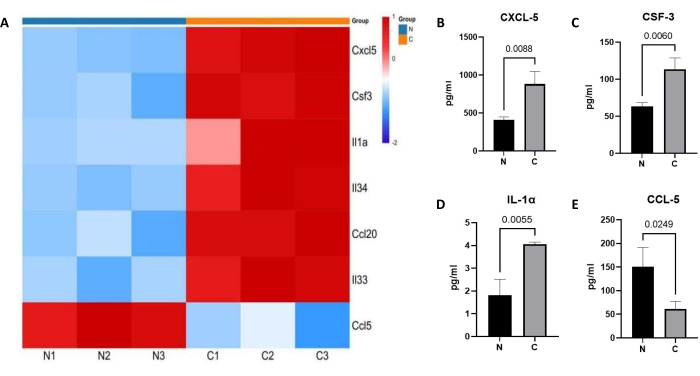
Rysunek 10: Analiza ekspresji cytokin. (A) Mapa ciepła transkryptomu ekspresji cytokin. (B-E) Analiza Luminex dla poziomów CXCL-5, CSF-3, IL-1α oraz CCL-5 w komórkach ze stymulacją CSE i bez niej. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
POChP jest powszechną przewlekłą chorobą zapalną dróg oddechowych. Narażenie na dym tytoniowy prowadzi do przewlekłego zapalenia dróg oddechowych, przebudowy dróg oddechowych i zniszczenia strukturalnego płuc, co jest wynikiem interakcji różnych komórek strukturalnych i komórek odpornościowych10. Komórki nabłonka dróg oddechowych, jako pierwsza linia wrodzonego układu odpornościowego w płucach, odgrywają bardzo ważną rolę podczas rozwoju choroby11. Z tego punktu widzenia wyjaśnienie, w jaki sposób komórki nabłonkowe zmieniają się i regulują dalsze komórki pod wpływem stymulacji szkodliwych substancji, jest problemem naukowym, który należy pilnie rozwiązać.
Ostatnio opisano kilka zwierzęcych modeli POChP, które pokonały pewneograniczenia12. W tych modelach można zaobserwować umiarkowane poziomy neutrofilowego zapalenia dróg oddechowych, sygnaturę zapalną Th1/Th17, wyraźną nadprodukcję śluzu, zwiększoną przebudowę dróg oddechowych, pogorszoną czynność płuc i powiększone przestrzenie powietrzne. Chociaż modele te potrzebują tylko 1 miesiąca, aby ustalić zmiany podobne do POChP, to, co stało się u myszy wystawionych na dym papierosowy w ciągu 1 miesiąca, jest nadal niejasne. Stosowanie długotrwałej stymulacji CSE ma tę zaletę, że jest łatwiejsze do skalibrowania, co oznacza, że komórki nabłonka dróg oddechowych mogą być narażone na jak najcięższy bodziec papierosowy bez śmierci, podobnie jak komórki nabłonka dróg oddechowych u palaczy. W tym przypadku monitorowanie dynamicznych zmian patologicznych prowadzących do zapalenia dróg oddechowych i powstawania rozedmy płuc ma kluczowe znaczenie dla dalszego zrozumienia patogenezy POChP związanej z paleniem tytoniu. W związku z tym stworzyliśmy model in vitro , aby naśladować stan dymu i staraliśmy się monitorować dynamiczne zmiany podczas ekspozycji CSE na komórki nabłonka dróg oddechowych. Co więcej, stosunkowo oczyszczone komórki nabłonka dróg oddechowych sprawiają, że badanie multiomiczne jest łatwiejsze niż badanie całych tkanek, co może pomóc nam znaleźć odpowiedzi molekularne i komórkowe w ekspozycji komórek nabłonka dróg oddechowych na CSE oraz zidentyfikować kluczowe szlaki i cele terapeutyczne POChP w wysokiej przepustowości.
W tym przypadku protokół opisujący izolację mysich komórek nabłonka tchawicy jest zaadaptowany z protokołów Hilaire i wsp.13 oraz You i wsp.14 z pewnymi modyfikacjami. W protokole zastosowanym w tym badaniu mysie komórki nabłonka dróg oddechowych rozmnożono i różnicowano w pseudostratyfikowaną strukturę zawierającą komórki rzęskowe i kubkowe przy użyciu granicy faz powietrze-ciecz i pożywki zawierającej CSE, ustanawiając w ten sposób model aklimatyzacji przewlekłej CSE. Następujące zdarzenia są kluczowymi punktami obecnego modelu.
Biorąc pod uwagę, że zwichnięcie szyjki macicy może mechanicznie nadwyrężyć szyję i fizycznie uszkodzić komórki nabłonka, a znieczulenie wodzianem chloralu może również wpływać na drogi oddechowe, pentobarbital sodu zastosowano do eutanazji15. Podczas zabiegów chirurgicznych na myszach zanurzenie tylko szyi i dolnych obszarów, aby zapobiec przedostawaniu się alkoholu do nosa, może zwiększyć żywotność komórek nabłonka dróg oddechowych16. Wstępne dane z niniejszego badania wykazały, że komórki nabłonka dróg oddechowych poddane intubacji tchawicy lub zanurzeniu w alkoholu miały niską żywotność i nie rozszerzały się. Ponadto, aby uzyskać komórki nabłonka dróg oddechowych bez erytrocytów, należy zachować ostrożność podczas zabiegów chirurgicznych, aby uniknąć zanieczyszczenia krwi podczas izolowania głównych dróg oddechowych.
Nawet u myszy wolnych od specyficznych patogenów drogi oddechowe skolonizowały znaczące drobnoustroje. Dodanie odpowiednich antybiotyków do pożywki ekspansyjnej pierwotnych mysich komórek nabłonka dróg oddechowych P0 jest niezbędne do uniknięcia zanieczyszczenia patogenami bakteryjnymi lub grzybiczymi. Roztwór koktajlowy penicyliny, streptomycyny, amfoterycyny B i gentamycyny17 skutecznie zapewnia ekspansję mysich komórek nabłonka dróg oddechowych P0 w sterylnym środowisku in vitro . Wstępne eksperymenty wykazały, że jeśli nie ma skutecznego hamowania zanieczyszczenia bakteryjnego, mysie komórki nabłonka dróg oddechowych P0 umrą przed pierwszym pasażem.
W metodach trawienia badano zarówno 4 °C, jak i 37 °C. Wyniki wstępnych eksperymentów wykazały, że trawienie w temperaturze 37 °C przewyższało 4 °C pod względem efektywności czasowej, żywotności komórek i wydajności komórek.
Przed wysiewem komórek nabłonkowych kolagen z ogona szczura rozpuszczono w kwasie octowym i użyto do pokrycia naczynia hodowlanego w celu poprawy adhezji komórek nabłonka18. Jednak gęstość powłoki kolagenowej nie powinna być ani zbyt wysoka, ani zbyt niska; Niewystarczająca gęstość nie zapewnia odpowiednich warunków adhezji, podczas gdy nadmierna gęstość powoduje powstawanie krystalicznej pozostałości na powierzchni hodowli.
Kluczowym krokiem jest utrzymanie przy życiu większej liczby komórek nabłonka i uniknięcie zanieczyszczenia fibroblastami. Aby to osiągnąć, zalecamy, aby 1) użycie zestawu do dysocjacji komórek bez składników zwierzęcych mogło delikatnie wyizolować komórki nabłonkowe i zmniejszyć niepotrzebne uszkodzenia komórek oraz 2) użycie pożywki różnicowej zawierającej hydrokortyzon może hamować wzrost fibroblastów i promować proliferację komórek nabłonkowych.
Tradycyjne zanurzone monowarstwowe hodowle komórek nabłonka dróg oddechowych są podstawą badań oddechowych i badań toksykologicznych. Jednak metody te nie są w stanie dokładnie odtworzyć zróżnicowanych cech tkanek nabłonka dróg oddechowych, które stwierdzono in vivo. Aby rozwiązać ten problem, zdecydowaliśmy się na alternatywny model nabłonka dróg oddechowych. Model ten opiera się na hodowli pierwotnych komórek dróg oddechowych na mikroporowatych rusztowaniach błonowych, takich jak te dostarczane przez systemy transwell, na granicy faz powietrze-ciecz19. Wystawienie powierzchni wierzchołkowej na otaczające powietrze w tej konfiguracji hodowli ALI odgrywa zasadniczą rolę we wspieraniu różnicowania komórkowego, a tym samym ściślej naśladuje warunki in vivo 20.
Jeśli różnicowanie nie jest skuteczne, kluczowe jest oszacowanie potencjalnych przyczyn. Obejmuje to możliwość, że komórki nabłonka dróg oddechowych mogły ulec nadmiernemu pasażowaniu, co może upośledzać ich zdolność różnicowania. Ponadto konieczne jest zapewnienie, że nagromadzenie śluzu i płynu w komorze wierzchołkowej zostanie całkowicie wyeliminowane podczas dwutygodniowego procesu wymiany pożywki, ponieważ zawartość resztkowa może utrudniać proces różnicowania.
Chociaż model ten ma pewne ograniczenia, pozostaje cennym narzędziem badawczym. Jednym z ograniczeń jest to, że zastosowanie pożywki zawierającej CSE do stymulacji komórek nabłonka dróg oddechowych może nie w pełni odtworzyć warunków in vivo , których doświadczają komórki nabłonka dróg oddechowych u palaczy. Ponadto żywotność zróżnicowanych komórek nabłonka rzęsek in vitro jest zwykle ograniczona do miesiąca. Pomimo tych ograniczeń model skutecznie integruje kilka kluczowych aspektów: ułatwia badanie różnicowania komórek nabłonka dróg oddechowych na granicy faz powietrze-ciecz, długoterminową aklimatyzację do CSE oraz zastosowanie analizy multiomicznej w określonych ramach czasowych. To kompleksowe podejście oferuje wyrafinowane i holistyczne ramy dla przyszłych badań nad fizjologicznymi i patologicznymi mechanizmami komórek nabłonka dróg oddechowych. Ponadto pomaga w identyfikacji potencjalnych biomarkerów i celów terapeutycznych w chorobach dróg oddechowych. Mamy nadzieję, że nasze doświadczenia dostarczą przydatnych informacji dla tych, którzy chcieliby wykorzystać ten model do odpowiednich badań.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez Narodową Fundację Nauk Przyrodniczych Chin (82090013).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 100x roztwór penicyliny/streptomycyny | Gibco | 15140122 | |
| 24 mm Transwell z 0,4 &mikro; m Wkład membrany poliestrowej porowej, sterylny | BIOFIL | TCS016012 | |
| 40 µ m Sitko komórkowe | Falcon | 352340 | |
| 500x Roztwór gentamycyny/amfoterycyny | Gibco | R01510 | |
| acetylowana &alfa;-tubulina | CST | #5335 | |
| Acetylo-&alfa;-tubulina (Lys40) (D20G3)XP Królik mAb | cellsignal | #5335 | |
| Zestaw do dysocjacji komórek wolnych od składników zwierzęcych | Stemcell | 05426 | |
| Przeciwciało anty-pan Cytokeratyna | abcam | ab7753 | |
| Papieros | Marlboro | ||
| Claudin3 | immunoway | YT0949 | |
| Deoksyrybonuklaza I z trzustki bydlęcej | Sigma-Aldrich | DN25 | |
| Deoksyrybonuklaza I z trzustki bydlęcej | Sigma | DN25 | |
| Ham" s F-12 | Sigma-Aldrich | N6658 | |
| Roztwór heparyny | Stemcell | 07980 | |
| Roztwór podstawowy hydrokortyzonu | Stemcell | 07925 | |
| Mucyna 5AC | abcam | ab212636 | |
| Occludin | proteintech | 27260-1-AP | |
| PBS | Cytosci | CBS004S-BR500 | |
| Roztwór penicyliny i streptomycyny | Gibco | 15140122 | |
| PneumaCult-ALI Podstawowa średnia | komórka macierzysta | 05002 | |
| PneumaCult-ALI 10x Suplement | Stemcell | 05003 | |
| PneumaCult-ALI Suplement pielęgnacyjny | Stemcell | 05006 | |
| PneumaCult-Ex Plus 50x Suplement | Stemcell | 05042 | |
| PneumaCult-Ex Plus Basal Medium | Stemcell | 05041 | |
| Pronase E | Sigma-Aldrich | P5147 | |
| Kolagen z ogona szczura | Corning | 354236 | |
| Trypan Blue | Komórka macierzysta | 07050 |
Bibliografia
- Ritchie, A. I., Martinez, F. J. The challenges of defining early chronic obstructive pulmonary disease in the general population. Am J Respir Crit Care Med. 203 (10), 1209-1210 (2021).
- Caramori, G., Kirkham, P., Barczyk, A., Di Stefano, A., Adcock, I. Molecular pathogenesis of cigarette smoking-induced stable COPD. Ann N Y Acad Sci. 1340, 55-64 (2015).
- Leino, M. S., et al. Barrier disrupting effects of alternaria alternata extract on bronchial epithelium from asthmatic donors. PLoS One. 8 (8), e71278(2013).
- Benediktsdóttir, B. E., Arason, A. J., Halldórsson, S., Gudjónsson, T., Másson, M., Baldursson, Ó Drug delivery characteristics of the progenitor bronchial epithelial cell line VA10. Pharm Res. 30 (3), 781-791 (2013).
- Walters, M. S., et al. Generation of a human airway epithelium derived basal cell line with multipotent differentiation capacity. Respir Res. 14 (1), 135(2013).
- Prytherch, Z., Job, C., Marshall, H., Oreffo, V., Foster, M., BéruBé, K. Tissue-specific stem cell differentiation in an in vitro airway model. Macromol Biosc. 11 (11), 1467-1477 (2011).
- Kilkenny, C., Browne, W., Cuthill, I. C., Emerson, M., Altman, D. G. Animal research: Reporting in vivo experiments: The ARRIVE guidelines. Br J Pharmacol. 160 (7), 1577-1579 (2010).
- Brekman, A., Walters, M. S., Tilley, A. E., Crystal, R. G. FOXJ1 prevents cilia growth inhibition by cigarette smoke in human airway epithelium in vitro. Am J Respir Cell Mol Biol. 51 (5), 688-700 (2014).
- Bajic, M., Maher, K. A., Deal, R. B. Identification of open chromatin regions in plant genomes using ATAC-seq. Methods Mol Biol. 1675, 183-201 (2018).
- Shaykhiev, R., Crystal, R. G. Early events in the pathogenesis of chronic obstructive pulmonary disease. Smoking-induced reprogramming of airway epithelial basal progenitor cells. Ann Am Thorac Soc. 11, Suppl 5 (Suppl 5) S252-S258 (2014).
- Raby, K. L., Michaeloudes, C., Tonkin, J., Chung, K. F., Bhavsar, P. K. Mechanisms of airway epithelial injury and abnormal repair in asthma and COPD. Front Immunol. 14, 1201658(2023).
- Zhou, J. -S., et al. Cigarette smoke-initiated autoimmunity facilitates sensitisation to elastin-induced COPD-like pathologies in mice. Eur Respir J. 56 (3), 2000404(2020).
- Lam, H. C., Choi, A. M. K., Ryter, S. W. Isolation of mouse respiratory epithelial cells and exposure to experimental cigarette smoke at air-liquid interface. J Vis Exp. (48), e2513(2011).
- You, Y., Brody, S. L. Culture and differentiation of mouse tracheal epithelial cells. Methods Mol Biol. 945, 123-143 (2012).
- Wandalsen, G. F., Lanza, F. deC., Nogueira, M. C. P., Solé, D. Efficacy and safety of chloral hydrate sedation in infants for pulmonary function tests. Rev Paul Pediatr. 34 (4), 408-411 (2016).
- Jiang, D., Schaefer, N., Chu, H. W. Air-liquid interface culture of human and mouse airway epithelial cells. Methods Mol Biol. 1809, 91-109 (2018).
- Takagi, R., et al. How to prevent contamination with Candida albicans during the fabrication of transplantable oral mucosal epithelial cell sheets. Regen Ther. 1, 1-4 (2015).
- Culp, D. J., Latchney, L. R. Mucinlike glycoproteins from cat tracheal gland cells in primary culture. Am J Physiol. 265 (3), Pt 1 L260-L269 (1993).
- Cao, X., et al. Invited review: human air-liquid-interface organotypic airway tissue models derived from primary tracheobronchial epithelial cells-overview and perspectives. In Vitro Cell Dev Biol Anim. 57 (2), 104-132 (2021).
- Bebök, Z., Tousson, A., Schwiebert, L. M., Venglarik, C. J. Improved oxygenation promotes CFTR maturation and trafficking in MDCK monolayers. Am J Physiol Cell Physiol. 280 (1), C135-C145 (2001).
Przedruki i uprawnienia
