Prezentowany tutaj jest potok analizy wideo, który pokonuje wyzwania związane z monitorowaniem zachowań w środowiskach MRI, pozwalając na wykrywanie nieinstruowanych reakcji behawioralnych na zewnętrzne sygnały. Analiza ta ułatwi bardziej kompleksowe zrozumienie wywołanych zmian stanu wewnętrznego i aktywności całego mózgu.
Artykuł metodologiczny
Profilowanie reakcji na zachowanie matki podczas obrazowania całego mózgu
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Ostatnie osiągnięcia w narzędziach do obrazowania całego mózgu umożliwiły neurobiologom zbadanie, w jaki sposób skoordynowana aktywność mózgu przetwarza zewnętrzne sygnały, wpływając na zmiany stanu wewnętrznego i wywołując reakcje behawioralne. Na przykład funkcjonalny rezonans magnetyczny (fMRI) jest nieinwazyjną techniką, która pozwala na pomiar aktywności całego mózgu u obudzonych, zachowujących się myszy przy użyciu odpowiedzi zależnej od poziomu natlenienia krwi (BOLD). Jednak, aby w pełni zrozumieć reakcje BOLD wywoływane przez bodźce zewnętrzne, ważne jest, aby eksperymentatorzy oceniali również reakcje behawioralne podczas skanowania. Środowisko MRI stanowi wyzwanie dla osiągnięcia tego celu, sprawiając, że powszechnie stosowane metody monitorowania behawioralnego są niekompatybilne. Wyzwania te obejmują (1) ograniczone pole widzenia oraz (2) ograniczoną dostępność urządzeń bez komponentów ferromagnetycznych. Przedstawiono tutaj behawioralną analizę wideo, która pokonuje te ograniczenia, wydobywając cenne informacje z filmów uzyskanych w tych ograniczeniach środowiskowych, umożliwiając ocenę zachowania podczas pozyskiwania danych neuronowych całego mózgu. Wykorzystując takie metody, jak optyczne szacowanie przepływu i redukcja wymiarów, można wykryć znaczne różnice w reakcjach behawioralnych na bodźce prezentowane podczas skanów fMRI. Na przykład reprezentatywne wyniki sugerują, że wokalizacje młodych myszy , ale nie czyste tony, wywołują znacząco różne reakcje behawioralne u matczynych i dziewiczych samic myszy. Idąc dalej, ten potok analizy behawioralnej, początkowo dostosowany do pokonywania wyzwań w eksperymentach fMRI, może zostać rozszerzony na różne metody rejestracji neuronowej, zapewniając wszechstronne monitorowanie behawioralne w ograniczonych środowiskach. Skoordynowana ocena reakcji behawioralnych i neuronalnych zapewni bardziej kompleksowe zrozumienie, w jaki sposób percepcja bodźców prowadzi do koordynacji złożonych wyników behawioralnych.
Wprowadzenie
Monitorowanie reakcji behawioralnych podczas nagrań neuronowych jest niezbędne do zrozumienia skoordynowanej aktywności wywołanej bodźcem w mózgu. W przypadku, gdy nie przewiduje się, że zwierzęta będą reagować na bodźce w określony i zorientowany na cel sposób, obserwacja nieinstruowanych zachowań może dać wgląd w to, w jaki sposób zewnętrzne sygnały informują o ich wewnętrznych stanach1,2. Niedawne postępy w narzędziach do neuroobrazowania, takie jak obrazowanie wapnia w szerokim polu widzenia i funkcjonalne obrazowanie metodą rezonansu magnetycznego (fMRI), umożliwiły neuronaukowcom rozszerzenie badań poza pojedyncze obszary mózgu. Jednak, aby osiągnąć bardziej wszechstronne zrozumienie takich wielowymiarowych danych neuronowych, zdolność do oceny wyników behawioralnych tych złożonych wzorców musi również odpowiednio się rozwijać.
Najnowocześniejsze metody charakteryzowania zachowań związanych z wykonywaniem zadań są szeroko stosowane w badaniach neurobiologicznych, w tym czujniki temperatury i ciśnienia do wykrywania wąchania3,4, promienie światła do wykrywania lizaw5, oraz szacowanie pozycji bez znaczników do śledzenia wcześniej określonych części ciała6. Jednak oparta na danych ocena niepoinstruowanych wzorców zachowań pozostaje wyzwaniem w polu7. Podczas gdy metody analizy behawioralnej opartej na danych szybko się rozwijają, istniejące metody zazwyczaj wymagają znacznej mocy obliczeniowej, specjalistycznego sprzętu lub szczególnie wyraźnego obrazu zwierzęcia2,6,8,9. Przedstawiono tutaj potok behawioralnej analizy wideo, który jest łatwo podatny na dowolne dane wideograficzne i pozwala na wydobycie cennych danych Pomiary behawioralne z filmów uzyskanych podczas stymulacji pasywnej.
Ten potok analizy behawioralnej został zaprojektowany tak, aby był kompatybilny ze skoordynowanym pozyskiwaniem danych neuronowych i wideo u zwierząt z głową narażonych na szeroki zakres bodźców zewnętrznych i wiele środowisk nagrywania, nawet tych ze znacznymi ograniczeniami. Na przykład środowisko MRI stwarza szczególne wyzwania dla monitorowania behawioralnego, w tym ograniczone pole widzenia i ograniczoną dostępność sprzętu bez komponentów ferromagnetycznych. Ograniczenia te sprawiają, że powszechnie stosowane metody są niekompatybilne, co sprawia, że miary takie jak ruch głowy (tj. sposób, w jaki mózg porusza się między akwizycjami objętości) są jednymi z najbardziej dostępnych, ale ograniczonych sposobów oceny reakcji organizmu podczas skanowania10. Pokonując te ograniczenia, protokół ten ułatwił analizę danych wideograficznych zgodnych z MR, pokazując, że samice myszy z różnymi doświadczeniami matczynymi wykazują różne reakcje behawioralne na bodźce słuchowe. Matkom i dziewicom prezentowano bodźce słuchowe podczas skanów fMRI, w tym wokalizacje zestresowanych szczeniąt ("nawoływania szczeniąt") i czyste tony. Bodźce te były prezentowane pasywnie, a więc bez żadnych instrukcji behawioralnych. Podczas gdy przewidywano, że matki będą wykazywać zwiększone reakcje na nawoływania szczeniąt w porównaniu z dziewicami, istnieje niewiele literatury na temat tego, jak samice myszy reagują na sygnały niemowlęcia w środowisku skupionym na głowie. W związku z tym nie było konkretnych wyników behawioralnych do śledzenia a priori, co czyni ten eksperyment idealnym testem dla proponowanych analiz behawioralnych opartych na danych. Stosując takie metody, jak optyczne szacowanie przepływu i redukcja wymiarowości, wykryto grupowe różnice w reakcjach behawioralnych, zarówno pod względem wielkości, jak i manifestacji przestrzennej.
Idąc dalej, skoordynowana ocena reakcji behawioralnych i neuronalnych może być wykorzystana do osiągnięcia bardziej wszechstronnego zrozumienia, w jaki sposób bodźce zewnętrzne zmieniają stany wewnętrzne i informują o złożonych wynikach behawioralnych. To zrozumienie powinno rozciągać się na bodźce prezentowane przy braku narzuconych zadań i poinstruowanych zachowań. Przedstawiony tutaj potok analizy można rozszerzyć o różne techniki rejestracji neuronowej, zapewniając wszechstronne monitorowanie behawioralne nawet w ograniczonych środowiskach.
Protokół
Wszystkie eksperymenty na zwierzętach zostały przeprowadzone zgodnie z protokołami zatwierdzonymi przez Columbia University Institutional Animal Care and Use Committee (IACUC), a wszystkie metody zostały przeprowadzone zgodnie z odpowiednimi wytycznymi, przepisami i zaleceniami. Szczegóły dotyczące używanego sprzętu i oprogramowania są wymienione w Tabeli Materiałów.
1. Oprogramowanie
- Pobierz MATLAB ze strony internetowej Mathworks.
UWAGA: Kod, który składa się na ten potok analizy, jest wykonywalny wyłącznie przez MATLAB i został specjalnie napisany tak, aby był zgodny z MATLAB 2023a. - Ten potok wymaga zestawu narzędzi przetwarzania obrazów i zestawu narzędzi do przetwarzania obrazów w programie MATLAB. Dodaj przyborniki do dodatków MATLAB, klikając Zarządzaj dodatkami, Pobierz dodatki, a następnie wyszukaj i dodaj je.
UWAGA: Pięć skryptów MATLAB jest dostarczanych jako pliki uzupełniające, zatytułowane w następujący sposób: script1_videocoreg.m (Dodatkowy plik kodowania 1), script2_optflow_roiselect.m (Uzupełniający plik kodowania 2), script3_optflow_analysis.m (Uzupełniający plik kodowania 3), script4_optflow_pca.m (Uzupełniający plik kodowania 4) i script5_optflow_pca_analysis.m (Uzupełniający plik kodowania 5). Dostępne są również dwa przykładowe filmy (Wideo 1 i Wideo 2) oraz odpowiadające im pliki z chronometrażem zdarzeń (Plik uzupełniający 1 i Plik uzupełniający 2). Zaleca się, aby najpierw uruchomić potok z przykładowym data.
UWAGA: Uważaj na wszelkie komentarze w kodzie, które zawierają wykrzyknik, ponieważ są to obszary, które wymagają działania przed wykonaniem. Na przykład znajdują się tam komentarze, takie jak "edytuj blok kodu poniżej!", aby wskazać, gdzie należy wprowadzić zmiany, aby dopasować je do struktur plików, szczegółów eksperymentu lub potrzeb analizy. Te opcje są domyślnie ustawione tak, aby pasowały do dwóch podanych przykładowych filmów wideo, ale będą wymagały dostosowania, gdy jeden zacznie uruchamiać potok z własnymi danymi. - Aby uruchomić każdą sekcję każdego skryptu, kliknij Uruchom i Przejdź w menu Edytora.
2. Rejestracja wideo
UWAGA: Pierwszym dostarczonym skryptem w tym procesie analizy jest script1_videocoreg.m (Uzupełniający Plik Kodowania 1), który przestrzennie wyrównuje wszystkie filmy do siebie poprzez korejestrację. Danymi wejściowymi dla tego skryptu są nieprzetworzone filmy, a głównymi danymi wyjściowymi są przekształcone filmy.
- Edytuj sekcje 1, 2, 3, 4, 5 i 6 skryptu, jeśli są wskazane, aby pasowały do struktur danych.
- Uruchom sekcję 1.
- Wybierz trzy punkty w każdym filmie do oznaczenia, tak jak w Rysunek 1A. Te trzy punkty zostaną użyte do współzarejestrowania wszystkich ramek względem siebie. Uruchom sekcję 2 skryptu, aby wyświetlić pierwszą klatkę każdego filmu i użyj myszy, aby kliknąć raz pierwsze dwa punkty, a następnie kliknij dwukrotnie trzeci punkt. Po wybraniu punktów z ostatniego filmu naciśnij Enter.
- Uruchom sekcję 3 i sekcję 4.
- Ustaw flagę wyrównaną do 0 i uruchom Sekcja 5. Następnie ustaw flagę wyrównaną do 1 i ponownie uruchom Sekcję 5.
- Uruchom sekcję 6 i porównaj wynikową figurę obok siebie z Rysunek 1B. Wszelkie aberracje zaobserwowane na niewyrównanym obrazie średnim po lewej stronie powinny zostać zmniejszone na wyrównanym obrazie uśrednionym po prawej.
3. Oszacowanie przepływu optycznego: Pełne pole widzenia
UWAGA: Aby ocenić ruch podczas skanowania filmów, należy oszacować przepływ optyczny dla każdego przekształconego wideo. Można to zrobić dla pełnego pola widzenia (FOV) każdego filmu za pomocą dostarczonego skryptu script2_optflow_roiselect.m (Supplementary Coding File 2). Danymi wejściowymi dla tego skryptu są przekształcone filmy, a danymi wyjściowymi są matryce 3D wskazujące wielkość przepływu optycznego każdego piksela w czasie dla każdego wideo. Rysunek 2A pokazuje przykładową ramkę z wektorami przepływu optycznego nałożonymi na niebiesko, gdzie długość każdego wektora reprezentuje względną wielkość przepływu optycznego tego piksela. Okazało się, że zapisywanie wyników jako filmów jest bardziej wydajne niż zapisywanie ich jako matryc 3D.
- Edytuj sekcję 1 skryptu, jeśli jest to wskazane, aby dopasować ją do struktur danych.
- Uruchom sekcję 1.
4. Wybór ROI
UWAGA: Następujące kroki analizy są znacznie łatwiejsze do opanowania pod względem obciążenia obliczeniowego i potrzeb przechowywania danych, wybierając obszar zainteresowania (ROI) w pełnym polu widzenia, na którym skupi się analiza. Zwrot z inwestycji można wybrać zgodnie z eksperymentem i zachowaniami, które Cię interesują lub za pomocą podejścia bardziej opartego na danych. Aby uzyskać reprezentatywne wyniki przedstawione tutaj, odchylenie standardowe wielkości przepływu optycznego każdego piksela w pełnym polu widzenia zostało obliczone za pomocą skryptu script2_optflow_roiselect.m, sekcja 2 (Dodatkowy plik kodowania 2). Dane wejściowe dla tej części skryptu są danymi wyjściowymi sekcji 1, a głównym wyjściem jest wizualizacja odchylenia standardowego wielkości przepływu optycznego we wszystkich pikselach we wszystkich filmach. W przedstawionych reprezentatywnych wynikach pole widzenia lustra wykazało stosunkowo wysokie odchylenie standardowe przepływu optycznego, co kierowało demonstrowanym wyborem ROI.
- Edytuj sekcję 2 skryptu, jeśli jest to wskazane, aby dopasować ją do struktur danych.
- Uruchom sekcję 2 i użyj wynikowego obrazu, aby zobaczyć, gdzie przepływ optyczny zmienia się najbardziej dramatycznie w analizowanych filmach. Przykład tego obrazu jest pokazany w Rysunek 2B.
5. Kwantyfikacja przepływu optycznego: ROI
UWAGA: Sekcja 3 skryptu script2_optflow_roiselect.m (Uzupełniający plik kodowania 2) pozwala użytkownikowi wybrać ROI za pomocą narzędzia do rysowania i zapisać współrzędne granic. Dane wejściowe dla tej części skryptu są danymi wyjściowymi sekcji 1, a danymi wyjściowymi są wektory 1D wskazujące średnią wielkość przepływu optycznego zwrotu z inwestycji w czasie dla każdego filmu.
- Edytuj sekcję 3 skryptu tam, gdzie jest to wskazane, aby dopasować ją do struktur danych i potrzeb analizy.
UWAGA: Istnieje kilka opcji dotyczących sposobu postępowania z wyborem ROI. Wybierz jedną opcję:- Opcja 1: Przeanalizuj pełne pole widzenia wideo.
- Ustaw flagę selectROI na 0 i ustaw provideROI na 0.
- Opcja 2: Przeanalizuj nowy zwrot z inwestycji.
- Ustaw flagę selectROI na 1 i ustaw provideROI na 0. Następnie edytuj newCoordsName.
- Opcja 3: Przeanalizuj wcześniej narysowany ROI.
UWAGA: Wybierz tę opcję tylko wtedy, gdy wcześniej uruchomiono ten kod i utworzono zwrot z inwestycji.- Ustaw flagę selectROI na 0 i ustaw provideROI na 1. Następnie edytuj inputCoords, aby zapewnić wstępnie określony zestaw współrzędnych.
- Opcja 1: Przeanalizuj pełne pole widzenia wideo.
- Uruchom sekcję 3.
6. Porównanie wielkości przepływu optycznego
UWAGA: Dostarczony skrypt script3_optflow_analysis.m (Uzupełniający Plik Kodowania 3) wymaga największej specjalizacji, aby dopasować dane użytkownika. Głównymi danymi wejściowymi są wektory 1D wskazujące średnią wielkość przepływu optycznego zwrotu z inwestycji w czasie dla każdego filmu, a po odpowiednim połączeniu z początkami zdarzeń i informacjami o grupach/warunkach, głównymi wynikami są porównania statystyczne, które można dostosować do zainteresowań analizy.
- Edytuj sekcje 1-3 skryptu, aby dopasować je do struktur danych i potrzeb analizy.
- Ustaw flagi opcji analizy zsc, blrm, blzsc, demeanPerTrial i applyLPfilter na 0 lub 1 zgodnie z potrzebami w sekcji 1. W przedstawionych reprezentatywnych wynikach zsc, blrm i applyLPfilter zostały ustawione na 1, a wszystkie inne opcje zostały ustawione na 0.
- Ustaw LPfilter na liczbę reprezentującą żądany filtr dolnoprzepustowy w hercach (Hz). W przedstawionych reprezentatywnych wynikach zastosowano filtr dolnoprzepustowy 5 Hz, ponieważ nie spodziewano się, że reakcje behawioralne będą się wahać w tempie szybszym niż 5 Hz.
- Uruchom sekcje 1-3. Sekcja 3 powinna zawierać wykresy dla grupowych średnich szeregów czasowych przepływu optycznego, grupowego średniego skumulowanego przepływu optycznego i sumarycznego skumulowanego przepływu optycznego, w tym wykresów takich jak te pokazane na Rysunek 3. Sekcja 3 może być uruchomiona dla dowolnej kombinacji porównań grup/warunków.
7. Przepływ optyczny PCA
UWAGA: Opierając się na oszacowaniu wielkości przepływu optycznego, dane wyjściowe script2_optflow_roiselect.m (Supplementary Coding File 2) zawierają również informacje o przestrzennym rozkładzie przepływu optycznego klatka po klatce na wideo. W celu zmniejszenia wymiarowości tej informacji przestrzennej, dostarczony skrypt script4_optflow_pca.m (Supplementary Coding File 4) przeprowadza analizę głównych składowych (PCA) na szacowanym przepływie optycznym. Głównymi danymi wejściowymi są optyczne matryce przepływu 3D, wcześniej zapisane jako filmy dla każdego filmu behawioralnego, a głównym wyjściem jest jeden plik .mat na film zawierający informacje o wariancji komputera i wyjaśnione.
- Edytuj sekcję 1 skryptu, aby dopasować ją do struktur danych i potrzeb analizy.
- Ustaw opcje analizy flagi stimnum, dsfactor i fnfactor zgodnie z potrzebami w sekcji 1. W przedstawionych reprezentatywnych wynikach każdy typ bodźca był analizowany oddzielnie, a domyślna wartość 1 została utrzymana dla dsfactor i fnfactor, co skutkowało brakiem downsamplingu w przestrzeni lub czasie.
- Uruchom sekcję 1.
8. Porównanie przepływu optycznego PCA
UWAGA: Dostarczony skrypt script5_optflow_pca_analysis.m (Uzupełniający Plik Kodowania 5) przeprowadzi eksploracyjne porównania wyników PCA między grupami. Głównymi danymi wejściowymi są specyficzne dla bodźca PC i informacje o wyjaśnionej wariancji uzyskane z script4_optflow_pca.m (Supplementary Coding File 4), a głównymi danymi wyjściowymi są statystycznie progowe mapy cieplne przedstawiające obciążenia pierwszego komputera, chociaż inne komputery PC mogą być również analizowane za pomocą tego skryptu.
- Edytuj sekcję 1 skryptu, aby dopasować ją do struktur danych i analizy.
- Uruchom sekcję 1 i sekcję 2.
- Edytuj dane wejściowe sekcji 3, w szczególności zmienne group i myTitle, aby odzwierciedlić żądaną analizę grupy, a także threshT. threshT reprezentuje próg statystyki T, powyżej którego wyniki zostaną uznane za istotne, który można obliczyć na podstawie publicznie dostępnych tabel statystyk T do wartości p i stopni swobody.
- Uruchom sekcję 3 dla każdej grupy zainteresowania. Kod powinien wygenerować mapę statystyk podsumowujących grupę, taką jak te pokazane w lewym i środkowym panelu Rysunek 4. Dostosuj zakres wkrętu, a tym samym limity paska kolorów, zgodnie z potrzebami wizualizacji.
- Edytuj dane wejściowe sekcji 4, w szczególności zmienne mag i myTitle, aby odzwierciedlić pożądane porównanie grup, a także threshT. threshT reprezentuje próg statystyki T, powyżej którego wyniki zostaną uznane za istotne, który można obliczyć na podstawie publicznie dostępnych tabel statystyk T do wartości p i stopni swobody.
- Uruchom sekcję 4 dla każdego porównania grup będących przedmiotem zainteresowania. Kod powinien wygenerować mapę statystyk porównania grup, jak pokazano w prawym panelu Rysunek 4. Dostosuj zakres wkrętu, a tym samym limity paska kolorów, zgodnie z potrzebami wizualizacji.
Wyniki
Aby zademonstrować potencjał tego potoku analizy, pozyskano nagrania wideo zachowań samic myszy z unieruchomioną głową — konkretnie matek oraz osobników dziewiczych — podczas prezentowania im bodźców słuchowych w trakcie funkcjonalnego obrazowania rezonansem magnetycznym (fMRI). Bodźce składały się z głosów piskląt oraz tonów czystych prezentowanych pasywnie, czyli bez żadnych instruowanych reakcji behawioralnych. Głosy piskląt stanowiły nagrania wokalizacji ultradźwiękowych emitowanych przez 6-dniowe pisklęta myszy tymczasowo odizolowane od gniazda. Głosy te zazwyczaj wywołują macierzyński odruch odzyskiwania pisklęcia, w którym matka lokalizuje, kieruje się w stronę, bada, a następnie podnosi pisklę i przenosi je z powrotem w bezpieczne miejsce w gnieździe — zachowanie to zazwyczaj nie występuje u samic dziewiczych11. Wcześniejsze badania wykazały, że głosy piskląt wywołują silną aktywność w pierwotnej korze słuchowej matek, ale nie samic dziewiczych, podczas gdy odpowiedzi na tony czyste nie wykazują różnic między grupami12. Przypuszczano zatem, że zidentyfikowane zostaną różnice grupowe w reakcjach behawioralnych na głosy piskląt, ale nie na tony czyste. Niemniej jednak w literaturze istnieje niewiele informacji na temat specyficznych zachowań samic myszy w odpowiedzi na sygnały piskląt w środowisku z unieruchomioną głową. W związku z tym nie oczekiwano żadnych konkretnych wyników behawioralnych, co czyni ten eksperyment idealnym testem dla proponowanych analiz behawioralnych opartych na danych.
W ciągu ośmiu dni wszystkie zwierzęta były stopniowo habituowane do obchodzenia przez eksperymentatora, stabilizacji głowy oraz środowiska MRI. Habituacja do stabilizacji głowy i warunków eksperymentalnych jest kluczowa dla oceny reakcji behawioralnych na prezentowane bodźce. W przypadku braku właściwej habituacji do środowiska, zwierzęta mogą wykazywać jedynie reakcje stresowe, co zniosłoby wszelkie efekty wywołane bodźcami, które w przeciwnym razie można by wyodrębnić poprzez wideonagrania.
Choć konfiguracja aparatury behawioralnej była zazwyczaj taka sama dla każdej sesji pozyskiwania danych, możliwe jest, że pole widzenia (FOV) kamery ulegało niewielkim przesunięciom przy każdym unieruchomieniu głowy zwierzęcia do skanów fMRI (patrz przykładowe FOV na Rysunku 1A). Wynikało to prawdopodobnie z niewielkich zmian w rozmieszczeniu uchwytu kamery, a także z indywidualnych różnic w mocowaniu trzpienia do czaszki każdego zwierzęcia. W związku z tym nagrania wideo ze skanów musiały zostać wyrównane względem siebie poprzez liniową korejestrację, aby umożliwić porównanie zawartych w nich informacji przestrzennych pomiędzy skanami i zwierzętami. Korejestrację dostosowano do reprezentatywnych danych. Na przykład w standardowym dniu skanowania u każdego zwierzęcia wykonywano 3–4 skany, co skutkowało uzyskaniem 3–4 filmów na zwierzę na dzień. Pomiędzy poszczególnymi skanami nie następowało przemieszczenie elementów podstawy, w tym kamery oraz komponentów do unieruchamiania głowy. Zatem po wyznaczeniu transformacji korejestracji dla jednego filmu na zwierzę na dzień, można ją było zastosować do pozostałych 2–3 filmów tego zwierzęcia z tego samego dnia. Choć pozwoliło to zaoszczędzić czas na etapie korejestracji w tym schemacie analizy, transformacje przestrzenne można również obliczać indywidualnie dla każdego filmu, jeśli jest to konieczne. Jako punkty do etykietowania i obliczania transformacji przestrzennej wybrano trzy cechy obecne na każdym filmie. W prezentowanych reprezentatywnych danych trzema tymi punktami były: środek trzpienia głownego, widok frontalny prawego oka zwierzęcia oraz widok profilowy prawego oka zwierzęcia (widoczny w lustrze ustawionym pod kątem 45 stopni). Przykłady korejestracji wideo przedstawiono na Rysunku 1A,B, gdzie pokazano średnią klatkę obliczoną ze wszystkich filmów nagranych podczas tego eksperymentu, zarówno przed, jak i po korejestracji, aby zademonstrować efekt tego etapu.
Ten proces opiera się w dużej mierze na przepływie optycznym (optical flow), metodzie wizji komputerowej stosowanej do szacowania ruchu obiektów w wideo poprzez wyznaczanie ich pozornych prędkości pomiędzy kolejnymi klatkami13. Wybrano przepływ optyczny, ponieważ pozwala on na kwantyfikację ruchu — będącego wskaźnikiem reakcji behawioralnych — bez konieczności uprzedniego definiowania interesujących nas części ciała lub konkretnych czynności. Ponadto metoda ta była odpowiednia przy ograniczonej jakości obrazu w reprezentatywnych nagraniach, które zostały zarejestrowane jedyną dostępną w czasie eksperymentu kamerą kompatybilną z MR. W tym procesie zastosowano algorytm Horna-Schuncka do globalnej, gęstej estymacji przepływu optycznego; jednak inne algorytmy, takie jak algorytm Lucasa-Kanade, mogą zostać łatwo wdrożone po wprowadzeniu niewielkich zmian w dostarczonych skryptach MATLAB14,15,16. Rysunek 2A przedstawia przykładową klatkę wideo z nałożonymi wektorami względnej prędkości przepływu optycznego dla każdego piksela. Należy zauważyć, że większe wektory pojawiają się w obszarach, w których oczekiwany jest ruch, takich jak pysk i łapy zwierzęcia.
Podczas gdy potok przetwarzania szacował przepływ optyczny dla wszystkich filmów w całym polu widzenia (FOV), pozostałe kroki analizy stały się znacznie bardziej przystępne pod kątem obciążenia obliczeniowego i zapotrzebowania na przechowywanie danych dzięki wyborowi obszaru zainteresowania (ROI) w obrębie FOV. ROI można wybrać zgodnie z eksperymentem i wcześniej określonymi interesującymi zachowaniami lub poprzez podejście bardziej oparte na danych. Biorąc pod uwagę, że reprezentatywne dane nie zawierały konkretnych wyników behawioralnych do śledzenia a priori, zastosowano podejście oparte na danych. Odchylenie standardowe wielkości przepływu optycznego obliczono dla wszystkich filmów w każdym pikselu, co przedstawiono na Ryc. 2B. Obszary najwyższego odchylenia standardowego obejmowały kontury zwierzęcia, takie jak okolice oka i pyska, co daje pewność, że obserwowane fluktuacje przepływu optycznego były wywołane ruchem zwierzęcia, a nie szumem w filmach. Obszary o mniejszym odchyleniu standardowym obejmowały kontury podstawki, co mogło być wynikiem niewielkich wibracji kamery i podstawki występujących podczas skanowania. Środowisko MRI jest nieuchronnie obciążone wibracjami podczas akwizycji danych ze względu na przełączanie gradientów, co może objawiać się fluktuacjami przepływu optycznego obserwowanymi w refleksyjnych elementach podstawki. Na szczęście wibracje te są stałe w trakcie całej akwizycji danych, a zatem niezależne od warunków stymulacji i nie powinny wpływać na wyniki analizy behawioralnej. Szczególnie wysokie odchylenia standardowe przepływu optycznego zaobserwowano w pikselach lustra, odpowiadających widokowi profilowemu pyska zwierzęcia, co pokierowało wyborem ROI dla danych reprezentatywnych. Był to również obszar, w którym można było spodziewać się reakcji behawioralnych, takich jak ruchy wibrysami i węszenie, jako części typowego repertuaru behawioralnego samic myszy szukających odizolowanego młodego emitującego głosy17.
Po wybraniu ROI i wyodrębnieniu średniej klatkowej wielkości przepływu optycznego dla wszystkich filmów, przepływ optyczny podczas istotnych epok mógł zostać porównany między grupami i warunkami. Należy zauważyć, że pierwsze 20 sekund (s) wektora przepływu optycznego każdego filmu zostało zamaskowane w celu stabilizacji jasności; można to jednak dostosować do potrzeb eksperymentalnych. Dla każdego filmu klatkowy wektor przepływu optycznego dla wybranego ROI został znormalizowany za pomocą wyniku Z, a następnie, zgodnie z wcześniejszymi pracami w zakresie klasyfikacji ekspresji twarzy, poddano go filtrowaniu dolnoprzepustowemu przy 5 hercach (Hz), aby uwzględnić fakt, że częstotliwość klatek kamery wynosząca 30 Hz jest szybsza niż jakiekolwiek oczekiwane fluktuacje behawioralne2. Ostatecznie wektory z wynikiem Z i przefiltrowane zostały podzielone na epoki prezentacji bodźca, aby ocenić wpływ prezentacji bodźca na przepływ optyczny. Dla każdej epoki odjęto średni sygnał bazowy przed bodźcem, aby znormalizować przepływ optyczny względem okresu przed bodźcem. Rysunek 3A przedstawia przykładowe serie czasowe przepływu optycznego dla dwóch filmów, jednego z matką i jednego z dziewiczą samicą, natomiast zbiorcze dane grupowe znajdują się na Rysunku 3B-E. Rysunek 3B i Rysunek 3D pokazują skumulowany przepływ optyczny w czasie podczas prezentacji bodźca w stosunku do linii bazowej, podczas gdy Rysunek 3C i Rysunek 3E podsumowują skumulowany przepływ optyczny 2,5 s po wystąpieniu bodźca. Skumulowany przepływ optyczny obliczono, aby uchwycić ogólny ruch w czasie, nie zakładając, że spontaniczne reakcje behawioralne wystąpią w sposób zablokowany czasowo. Ogólnie rzecz biorąc, te reprezentatywne wyniki pokazują, że wołania młodych, a nie tony czyste, wywołały znacząco różne reakcje behawioralne u myszy matek w porównaniu z myszami dziewiczymi, zgodnie z przewidywaniami (test U Manna-Whitneya między grupami: wołania młodych: p = 0,026; tony czyste: p = 0,093). Jednak efekt bodźca nie utrzymał się w dwuczynnikowej analizie ANOVA, podczas gdy efekt grupy tak (bodziec: F(1,10) = 0,19, p = 0,67; grupa: F(1,10) = 8,61, p = 0,015). Ogólnie wyniki te sugerują, że matki wykazywały większy ruch wywołany bodźcem w porównaniu z dziewiczymi samicami, przy czym reakcja matek na wołania młodych była bardziej spójna niż na tony czyste. Może to odzwierciedlać zwiększoną uważność lub stres u matek, a także behawioralną istotność wołań młodych, które, w przeciwieństwie do tonów czystych, wywołują u matek w warunkach naturalnych reakcję wydobywania młodych. Podsumowując, te reprezentatywne wyniki sugerują, że szacowanie przepływu optycznego podczas prezentacji bodźca zewnętrznego może pozwolić na wyodrębnienie informacji dotyczących subtelnych, spontanicznych reakcji behawioralnych.
Na koniec przeprowadzono analizę eksploracyjną w celu ujawnienia charakterystyki przestrzennej zachowań zarejestrowanych w reprezentatywnych danych. Aby zbadać, które piksele w ROI wykazywały skoordynowane fluktuacje podczas prezentacji bodźca, przeprowadzono analizę głównych składowych (PCA) czasowych informacji o przestrzennym przepływie optycznym. Analiza ta ujawniła piksele, które miały największy wkład w pierwszą składową główną (PC), a także piksele wykazujące różnice między grupami dla każdego rodzaju bodźca, co przedstawiono na Rysunku 4. Panele po prawej stronie Rysunku 4A,B sugerują, że matki wykazywały większy ruch w obrębie nosa w porównaniu z osobnikami dziewiczymi podczas prezentacji obu rodzajów bodźców. W obu grupach i obu warunkach bodźcowych pierwsza PC wyjaśniała 5,41% ± 0,59% całkowitej wariancji w analizie przepływu optycznego. Choć w tej części analizy utrzymano ROI lustra, przyszłe badania mogłyby objąć szerszą część pola widzenia (FOV), aby scharakteryzować skoordynowane ruchy poza obszarem twarzy w odpowiedzi na bodźce. Na przykład porównanie ruchów łap może ujawnić bardziej znaczące różnice między grupami, biorąc pod uwagę, że wołania młodych zazwyczaj inicjują zachowanie odzyskiwania potomstwa u matek, a nie u osobników dziewiczych, oraz że łapy mogą poruszać się swobodniej niż głowa zwierzęcia.
Choć reprezentatywne wyniki uzyskane do tej pory sugerowały, że ten potok przetwarzania pozwala ocenić nieinstruowane reakcje behawioralne na bodźce zewnętrzne w ograniczonych środowiskach wideograficznych, pozostało pytanie, czy obserwowane fluktuacje przepływu optycznego rzeczywiście odzwierciedlały istotne zachowania zwierząt. Aby odpowiedzieć na to pytanie, przeanalizowano osobny zestaw danych walidacyjnych przy użyciu tego samego potoku. W oddzielnym eksperymencie samce myszy z ograniczonym dostępem do wody przeszkolono w kojarzeniu sygnału świetlnego z podaniem nagrody wodnej w ilości 6 μL („wysoka nagroda”) lub 1 μL („niska nagroda”). Co istotne, w przeciwieństwie do eksperymentu ze stymulacją słuchową, ten eksperyment posiadał behawioralny odczyt a priori: częstotliwość lizania. Lickometr skonstruowano via detekcję lizania opartą na wideo, co ułatwiła analiza jasności pikseli w pobliżu dyszy z wodą. Odczyt behawioralny dostarczony przez lickometr mógł zatem posłużyć do porównania odczytu behawioralnego z tego potoku przetwarzania, uzyskanego poprzez estymację przepływu optycznego, co potwierdziło jego zasadność w wykrywaniu spontanicznych zachowań. Po korejestracji wideo, estymacji przepływu optycznego, wyborze ROI (ponownie obejmującego FOV lustra) oraz kwantyfikacji przepływu optycznego, porównanie wielkości przepływu optycznego ujawniło istotną różnicę między reakcjami behawioralnymi na wysokie a niskie nagrody. Wyniki tej analizy przedstawiono na Rysunku 5A,B, gdzie Rysunek 5A przedstawia uśrednione dla grupy szeregi czasowe, a Rysunek 5B podsumowuje skumulowany przepływ optyczny 2,5 s po wystąpieniu bodźca (parzysty test znaków Wilcoxona między warunkami: p = 0,031). Należy zauważyć, że wartości przepływu optycznego były większe w porównaniu do zachowań spontanicznych zarejestrowanych w danych reprezentatywnych, co dodatkowo podkreśla trudność w ocenie nieinstruowanych, subtelnych reakcji behawioralnych. Rysunek 5C przedstawia rzeczywistą częstotliwość lizania zarejestrowaną przez lickometr dla każdego z dwóch warunków nagrody, natomiast Rysunek 5D pokazuje, że w ciągu 2,5 s po podaniu nagrody zarejestrowano więcej liznięć w warunku wysokiej nagrody w porównaniu do warunku niskiej nagrody (parzysty test znaków Wilcoxona między warunkami: p = 0,031). Łącznie obie analizy ujawniły podobną tendencję w porównaniu reakcji na wysoką i niską nagrodę, co waliduje zaprezentowany potok analizy wideo w zakresie wychwytywania istotnych różnic w zachowaniu zwierząt pomiędzy warunkami.
Wzięte razem, przedstawione tutaj reprezentatywne wyniki sugerują, że prezentacja głosów piskląt wywołała znacząco odmienne reakcje u samic myszy będących matkami w porównaniu z samicami dziewiczymi, podczas gdy czyste tony nie wywołały takich różnic. Analiza zbioru danych walidacyjnych potwierdza, że zaobserwowane różnice w przepływie optycznym odzwierciedlają istotne różnice w odpowiedziach behawioralnych na bodźce zewnętrzne.

Rycina 1: Korejestracja wideo. (A) Przykłady korejestracji wideo przedstawiające określone wcześniej cechy (środek uchwytu głowy, widok przedni prawego oka, widok boczny prawego oka) oznaczone na trzech klatkach, z których każda pochodzi z innego nagrania różnych zwierząt. Zauważ na nałożeniu, że trzy punkty nie były wyrównane, co pokazuje, jak układ behawioralny nieznacznie zmieniał się pomiędzy sesjami pozyskiwania danych. (B) Średnia klatka z ostatnich 10 s każdego filmu przed (lewo) i po (prawo) wykonaniu korejestracji wideo. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rysunek 2: Szacowanie przepływu optycznego. (A) Przykładowa klatka z naniesionymi na niebiesko wektorami względnego przepływu optycznego. (B) Średnie odchylenie standardowe przepływu optycznego dla poszczególnych pikseli we wszystkich filmach. Wybrany obszar ROI wokół widoku profilowego pyska zwierzęcia poprzez lustro został obramowany kolorem purpurowym. Pasek kolorów odpowiada odchyleniu standardowemu. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
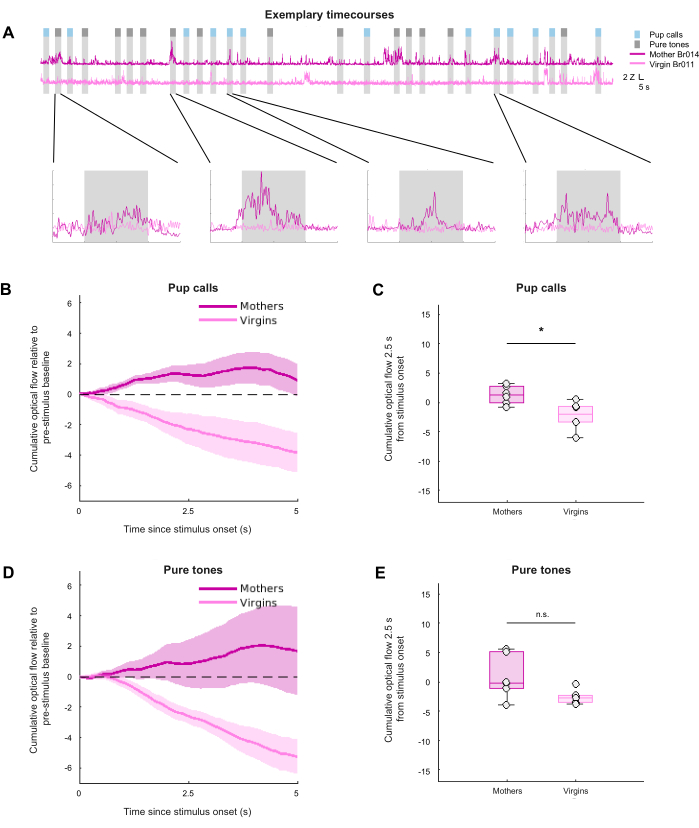
Rysunek 3: Wizualizacja i porównanie przepływu optycznego w różnych grupach i warunkach. (A) Przykładowe serie czasowe przepływu optycznego poddane standaryzacji Z-score i filtrowaniu dolnoprzepustowemu 5 Hz dla jednego nagrania wideo matki i jednego nagrania wideo dziewicy. (B) i (D) Skumulowany przepływ optyczny mierzony podczas okresu stymulacji wołaniami szczeniąt (B) oraz tonami czystymi (D). Zacieniowanie reprezentuje błąd standardowy średniej (SEM). (C) i (E) Skumulowany przepływ optyczny podczas pierwszych 2,5 s prezentacji bodźca dla wołań szczeniąt (C) i tonów czystych (E). * Oznacza p < 0,05, międzygrupowy test U Manna-Whitneya (wołania szczeniąt: p = 0,026; tony czyste: p = 0,093), N = 6 na grupę. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
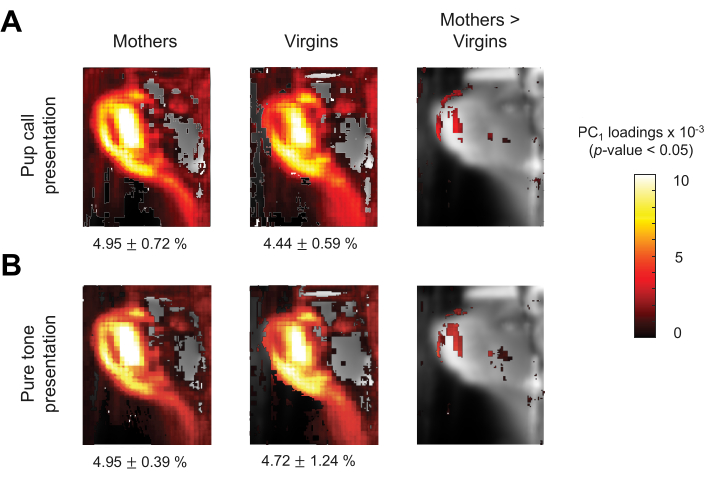
Rycina 4: Porównanie PC1 między grupami. (A,B) Mapy przedstawiające ładunki pierwszej głównej składowej (PC1) przepływu optycznego podczas wołań szczeniąt (A) oraz tonów czystych (B) w różnych grupach, z progiem statystycznym p < 0,05 bez korekty na wielokrotne porównania. Mapa ciepła wskazuje stopień, w jakim fluktuacja przepływu optycznego każdego piksela przyczyniła się do PC1 w stosunku do innych pikseli. Mały czarny tekst wskazuje procent wariancji wyjaśnionej przez PC1 (matki, wołania szczeniąt: 4,95% ± 0,72%; dziewice, wołania szczeniąt: 4,44% ± 0,59%; matki, tony czyste: 4,95% ± 0,39%; dziewice, tony czyste: 4,72% ± 1,24% (średnia ± odchylenie standardowe)). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
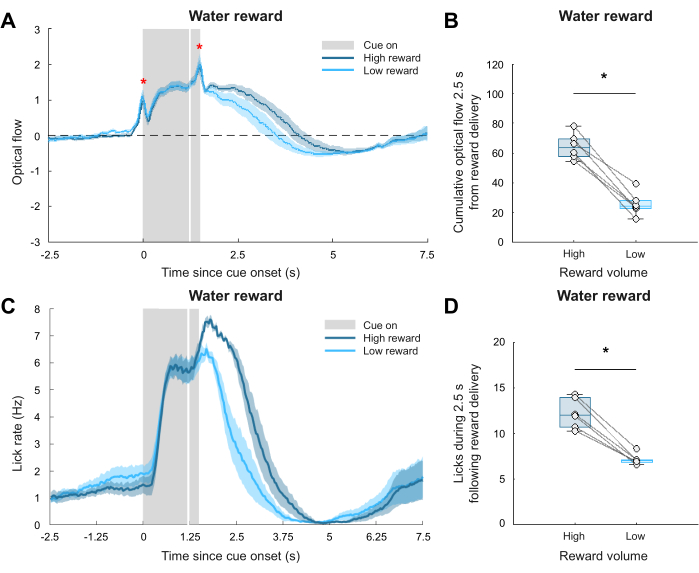
Rycina 5: Walidacja potoku analizy behawioralnej. (A) Średnie serie czasowe przepływu optycznego podczas dostarczania wysokiej i niskiej nagrody, znormalizowane za pomocą Z-score, z odjętą linią bazową przed bodźcem i przefiltrowane filtrem dolnoprzepustowym 5 Hz. Zacieniowanie reprezentuje SEM, biała pionowa linia oznacza moment dostarczenia nagrody, a czerwone gwiazdki wskazują tymczasowe artefakty przepływu optycznego wynikające z rozpoczęcia i zakończenia sygnału świetlnego. (B) Podsumowanie skumulowanego przepływu optycznego podczas pierwszych 2,5 s po dostarczeniu nagrody. * Oznacza p < 0.05, parowy test znaków rang Wilcoxona między warunkami (p = 0.031). (C) Średnia częstotliwość lizania, uzyskana za pomocą likometru, podczas dostarczania wysokiej i niskiej nagrody. Zacieniowanie reprezentuje SEM, a biała pionowa linia oznacza moment dostarczenia nagrody. (D) Liczba liznięć zarejestrowanych podczas pierwszych 2,5 s po dostarczeniu nagrody. * Oznacza p < 0.05, parowy test znaków rang Wilcoxona między warunkami (p = 0.031), N = 6. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wideo 1: Przykładowe wideo 1. PCR_Br011_20231015_1842_output.avi. Kliknij tutaj, aby pobrać to wideo.
Wideo 2: Przykładowe wideo 2. PCR_Br014_20231015_1722_output.avi. Kliknij tutaj, aby pobrać to wideo.
Plik uzupełniający 1: Plik z czasem zdarzeń dla filmu 1. PCR_Br011_20231015_1842_output_videoTimestamps.mat. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Plik z czasem zdarzeń dla filmu 2. PCR_Br014_20231015_1722_output_videoTimestamps.mat. Kliknij tutaj, aby pobrać ten plik.
Uzupełniający plik z kodem 1: script1_videocoreg.m. Ten skrypt wyrównuje przestrzennie wszystkie filmy względem siebie poprzez korejestrację. Kliknij tutaj, aby pobrać ten plik.
Dodatkowy plik z kodem 2: script2_optflow_roiselect.m. Ten skrypt szacuje przepływ optyczny dla pełnego pola widzenia (FOV) każdego przetransformowanego filmu i umożliwia wybór obszaru zainteresowania (ROI) dla pozostałych etapów procedury. Kliknij tutaj, aby pobrać ten plik.
Uzupełniający plik z kodem 3: script3_optflow_analysis.m. Ten skrypt porównuje wielkość przepływu optycznego w różnych grupach/warunkach dla wybranego ROI. Prosimy kliknąć tutaj, aby pobrać ten plik.
Uzupełniający plik z kodem 4: script4_optflow_pca.m. Ten skrypt wykonuje analizę PCA na oszacowanym przepływie optycznym wybranego ROI. Kliknij tutaj, aby pobrać ten plik.
Uzupełniający plik z kodem 5: script5_optflow_pca_analysis.m. Ten skrypt porównuje wyniki analizy PCA pomiędzy grupami/warunkami dla wybranego ROI. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Prezentowany pipeline analizy behawioralnej pozwala na wydobycie cennych informacji z filmów przedstawiających zwierzęta wykazujące niewyuczone zachowania w odpowiedzi na biernie prezentowane bodźce. Te reprezentatywne filmy behawioralne zostały uzyskane w połączeniu z danymi z funkcjonalnego rezonansu magnetycznego całego mózgu (fMRI), dla których pokonano wiele ograniczeń, aby uchwycić reakcje behawioralne w środowisku MRI. Stosując metodę optycznego szacowania przepływu, ujawniono różnice w tym, jak matki i dziewice reagują na nawoływania szczeniąt - ale nie czyste tony - potwierdzając początkową hipotezę 13,14,15,16. Wykorzystując redukcję wymiarowości informacji o przepływie optycznym, odkrycie to zostało rozszerzone o eksploracyjną analizę rozkładu przestrzennego tych zachowań.
Ten potok analizy jest szeroko podatny na różne paradygmaty eksperymentalne. Jest całkowicie niezależny od rodzaju pozyskiwanych danych neuronowych i nie wymaga nadmiernej mocy obliczeniowej ani specjalistycznego sprzętu. Głównym wymogiem eksperymentalnym jest to, aby dane wideograficzne były rejestrowane z odpowiednimi znacznikami czasu rozpoczęcia prezentacji bodźców. Co więcej, dzięki udostępnieniu skryptów MATLAB używanych do wykonywania demonstrowanych analiz, implementacja tego potoku powinna być dość prosta, nawet dla osób z minimalnym doświadczeniem w MATLAB. Ogólne kroki, opisane w protokole, obejmują korejestrację wideo, oszacowanie przepływu optycznego, wybór regionu zainteresowania (ROI), kwantyfikację przepływu optycznego specyficzną dla ROI, porównanie wielkości przepływu optycznego, analizę głównych składowych (PCA) i porównanie PCA. Na każdym kroku potok może być modyfikowany w celu dopasowania do potrzeb eksperymentalnych i analitycznych, zgodnie z opisem w protokole i wyróżniony komentarzami w całym kodzie.
Istnieje kilka ograniczeń, o których należy pamiętać podczas korzystania z prezentowanego potoku analizy wideo. Po pierwsze, należy dokładnie przemyśleć projekt aparatu behawioralnego. Jeśli nie jest jasne, jakich reakcji behawioralnych można się spodziewać, korzystne może być zebranie jak największej liczby punktów widzenia zwierzęcia w przyszłych analizach. W związku z tym zaleca się zainstalowanie jednego lub wielu lusterek w celu jednoczesnego rejestrowania widoku z przodu i profilu zwierzęcia, jak pokazano na przykładowych klatkach wideo na rysunku 1A. Po drugie, zaleca się, aby oświetlenie przewidziane do akwizycji wideo było wystarczająco jasne, aby zobaczyć wszystkie istotne cechy pola widzenia (FOV), ale nie tak jasne, aby osiągnąć nasycenie. Na rysunku 1A można zaobserwować, że widok z przodu nosa myszy znajduje się w punkcie bliskim nasycenia, co utrudnia uchwycenie jakichkolwiek wahań jasności, które wskazywałyby na ruch. Mogło to przyczynić się do braku zmienności przepływu optycznego obserwowanej w tej części pola widzenia, jak pokazano na rysunku 2B. Na szczęście widok nosa z profilu nie napotkał tego problemu, co pozwoliło na analizę ROI lustra. Dodatkowo należy wziąć pod uwagę możliwość saturacji, jeśli w eksperymencie zaangażowane są bodźce wzrokowe. W eksperymencie z zestawem danych walidacyjnych sygnał świetlny używany do sygnalizowania dostarczenia nagrody wodnej wprowadzał tymczasowe nasycenie w pozyskanych filmach, stanowiąc tymczasowy artefakt w oszacowaniu przepływu optycznego. Artefakt ten można zaobserwować na rysunku 5A, gdzie dwa ostre piki w śladach przepływu optycznego dla obu warunków nagrody pokrywają się dokładnie z momentem, w którym sygnał świetlny był włączany i wyłączany. Artefakt ten sprawił, że te krótkie okna czasowe były trudne do analizy za pomocą przedstawionego potoku, a gdyby go nie było, wyniki przedstawione na rysunku 5B mogłyby być jeszcze bardziej znaczące. Stałe oświetlenie sceny jest koniecznym założeniem dla większości algorytmów przepływu optycznego14,16. W związku z tym ten potok analizy wideo nie jest zalecany w przypadku eksperymentów, w których oświetlenie otoczenia zmienia się drastycznie, zarówno w obrębie prób, jak i między nimi. Po trzecie wreszcie, wystarczające przyzwyczajenie zwierząt do środowiska rejestrowania jest kluczowym elementem każdego eksperymentu, który będzie wykorzystywał ten potok. Jeśli nie zostaną odpowiednio przyzwyczajone, zwierzęta mogą wykazywać znaczące reakcje na stres, wypłukując wszelkie subtelne efekty napędzane bodźcami, które w przeciwnym razie można by przeanalizować za pomocą analizy wideo.
Idąc dalej, ten potok analizy behawioralnej może być wykorzystany do ułatwienia skoordynowanej oceny jednocześnie rejestrowanych reakcji behawioralnych i neuronalnych. Jak pokazano, ilościowa ocena nieinstruowanych zachowań pozwala na ocenę istotności bodźców w złożonym środowisku rejestrowania, a także testowanie różnych reakcji behawioralnych w grupach eksperymentalnych i warunkach. Można przeprowadzić dalsze analizy w celu zbadania indywidualnych różnic lub trendów w reakcjach behawioralnych próba po próbie, tak aby można było zbadać odpowiadającą im aktywność neuronalną. Dodatkowo, włączenie PCA w celu uzyskania informacji przestrzennych o ruchu wywołanym bodźcem może być wykorzystane do dalszego zbadania, czy określone typy sekwencji behawioralnych obserwowanych podczas prezentacji bodźca różnią się w zależności od grupy i warunków. Ten potok analizy można łatwo rozszerzyć na różne metody rejestracji neuronowej, zapewniając wszechstronne monitorowanie behawioralne w ograniczonych środowiskach. Badając, w jaki sposób bodźce zewnętrzne są reprezentowane zarówno w mózgu, jak i w zachowaniu, naukowcy są przygotowani do uzyskania bardziej wszechstronnego zrozumienia, w jaki sposób percepcja bodźców wpływa na stany wewnętrzne i ich zewnętrzne przejawy.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować laboratoriom Marlin i Kahn za wsparcie tych badań. Chcielibyśmy również podziękować dr Kevinowi Cury'emu za jego wnikliwą dyskusję na temat naszych danych wideograficznych. Badania opisane w tej publikacji były wspierane przez Narodowy Instytut Zdrowia Dziecka i Rozwoju Człowieka im. Eunice Kennedy Shriver w ramach Narodowego Instytutu Zdrowia w ramach Nagrody Numer F31HD114466 (BRM), Instytut Medyczny Howarda Hughesa (BJM), UNCF E.E. Just Fellowship CU20-1071 (BJM), BBRF NARSAD Young Investigator Grant 30380 (BJM) oraz The Whitehall Foundation (BJM). Wyłączną odpowiedzialność za treść ponoszą autorzy i nie muszą one reprezentować oficjalnych poglądów National Institutes of Health.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| MATLAB Computer Vision Toolbox | MathWorks | https://www.mathworks.com/products/computer-vision.html | |
| MATLAB Image Processing Toolbox | MathWorks | https://www.mathworks.com/products/image-processing.html | |
| Oprogramowanie MATLAB | MathWorks | https://www.mathworks.com/products/matlab.html | |
| Kamera kompatybilna z MR " 12M-i" ze zintegrowanym oświetleniem LED | MRC Systems GmbH | 12M-i | https://www.mrc-systems.de/downloads/en/mri-compatible-cameras/manual_mrcam_12m-i.pdf |
Bibliografia
- Musall, S., Kaufman, M. T., Juavinett, A. L., Gluf, S., Churchland, A. K. Single-trial neural dynamics are dominated by richly varied movements. Nat Neurosci. 22 (10), 1677-1686 (2019).
- Dolensek, N., Gehrlach, D. A., Klein, A. S., Gogolla, N. Facial expressions of emotion states and their neuronal correlates in mice. Science. 368 (6486), 89-94 (2020).
- Kepecs, A., Uchida, N., Mainen, Z. F. The sniff as a unit of olfactory processing. Chemical Senses. 31 (2), 167-179 (2006).
- Shusterman, R., Smear, M. C., Koulakov, A. A., Rinberg, D. Precise olfactory responses tile the sniff cycle. Nat Neurosci. 14 (8), 1039-1044 (2011).
- Han, Z., et al. Awake and behaving mouse fMRI during Go/No-Go task. NeuroImage. 188, 733-742 (2019).
- Mathis, A., Mamidanna, P., Cury, K. M. DeepLabCut: Markerless pose estimation of user-defined body parts with deep learning. Nature Neurosci. 21 (9), 1281-1289 (2018).
- Krakauer, J. W., Ghazanfar, A. A., Gomez-Marin, A., MacIver, M. A., Poeppel, D. Neuroscience needs behavior: Correcting a reductionist bias. Neuron. 93 (3), 480-490 (2017).
- Wiltschko, A. B., Tsukahara, T., Zeine, A. Revealing the structure of pharmacobehavioral space through motion sequencing. Nat Neurosci. 23 (11), 1433-1443 (2020).
- Moëne, O. L., Larsson, M. A new tool for quantifying mouse facial expressions. eNeuro. 10 (2), (2023).
- Paasonen, J., Stenroos, P., Laakso, H. Whole-brain studies of spontaneous behavior in head-fixed rats enabled by zero echo time MB-SWIFT fMRI. NeuroImage. 250, 118924(2022).
- Ehret, G. Infant rodent ultrasounds: A Gate to the understanding of sound communication. Behav Genet. 35 (1), 19-29 (2005).
- Marlin, B. J., Mitre, M., D'amour, J. A., Chao, M. V., Froemke, R. C. Oxytocin enables maternal behavior by balancing cortical inhibition. Nature. 520 (7548), 499-504 (2015).
- Optical Flow. , https://www.mathworks.com/discovery/optical-flow.html (2024).
- Horn, B. K. P., Schunck, B. G. Determining optical flow. Artif Intell. 17 (1), 185-203 (1981).
- Szeliski, R. Dense motion estimation. Computer Vision: Algorithms and Applications. Szeliski, R. , Springer. 335-374 (2011).
- Beauchemin, S. S., Barron, J. L. The computation of optical flow. ACM Comput Surv. 27 (3), 433-466 (1995).
- McRae, B. R., Andreu, V., Marlin, B. J. Integration of olfactory and auditory cues eliciting parental behavior. J Neuroendocrin. 35 (7), e13307(2023).
Przedruki i uprawnienia
