Ten protokół opisuje projektowanie, tworzenie i stosowanie fosfataz regulowanych rapamycyną. Metoda ta zapewnia wysoką swoistość i ścisłą kontrolę czasową aktywacji fosfatazy w żywych komórkach.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Rozwój i zastosowanie fosfataz tyrozynowych regulowanych rapamycyną
W tym artykule
Podsumowanie
Streszczenie
Fosfatazy tyrozynowe to ważna rodzina enzymów, które regulują kluczowe funkcje fizjologiczne. Są one często rozregulowane w chorobach ludzkich, co czyni je kluczowymi celami badań biologicznych. Narzędzia, które umożliwiają regulację aktywności fosfatazy, odgrywają zasadniczą rolę w analizie ich funkcji. Tradycyjne podejścia, takie jak nadekspresja konstytutywnie aktywnych lub dominujących mutantów ujemnych lub regulacja w dół za pomocą siRNA, nie mają kontroli czasowej. Inhibitory fosfatazy często mają słabą swoistość i pozwalają badaczom jedynie określić, na jakie procesy wpływa hamowanie fosfatazy.
Opracowaliśmy podejście chemogenetyczne, system regulowany przez Rapamycynę (RapR), który pozwala na allosteryczne regulowanie domeny katalitycznej fosfatazy, co umożliwia ścisłą kontrolę czasową aktywacji fosfatazy. System RapR składa się z domeny iFKBP wprowadzonej do miejsca allosterycznego w fosfatazie. Wewnętrzna dynamika strukturalna domeny RapR zakłóca domenę katalityczną, prowadząc do inaktywacji enzymu. Dodatek rapamycyny pośredniczy w tworzeniu kompleksu między iFKBP a koeksprymowanym białkiem FRB, który stabilizuje iFKBP i przywraca aktywność domenie katalitycznej fosfatazy.
Ten system zapewnia wysoką specyficzność i ścisłą kontrolę czasową aktywacji fosfatazy w żywych komórkach. Unikalne możliwości tego systemu umożliwiają identyfikację zdarzeń przejściowych i badanie poszczególnych szlaków sygnałowych za fosfatazą. Protokół ten opisuje wytyczne dotyczące rozwoju fosfatazy RapR, jej charakterystyki biochemicznej oraz analizy jej wpływu na dalszą sygnalizację i regulację morfodynamiki komórki. Zawiera również szczegółowy opis strategii inżynierii białek, testów in vitro analizujących aktywność fosfatazy oraz eksperymentów obrazowania żywych komórek identyfikujących zmiany w morfologii komórek.
Wprowadzenie
Proteinowe fosfatazy tyrozynowe stanowią krytyczną rodzinę białek uczestniczących w licznych zdarzeniach sygnalizacyjnych komórek. Wykazano, że odgrywają one kluczową rolę w regulacji proliferacji, migracji i apoptozy komórek1,2,3. W konsekwencji dysregulacja proteinowych fosfataz tyrozynowych prowadzi do szeregu wyniszczających chorób i zaburzeń4,5,6,7. Badanie funkcji fizjologicznych fosfataz tyrozynowych oraz ich roli w rozwoju tych patologii było historycznie utrudnione z powodu braku narzędzi niezbędnych do badania zawiłości sygnalizacji fosfataz8.
Tradycyjnie fosfatazy bada się za pomocą metod, które nie posiadają pożądanej swoistości i/lub nie zapewniają kontroli czasowej nad ich aktywnością. Te krytyczne ograniczenia dostępnych narzędzi utrudniają analizę specyficznych ról fosfataz w szlakach sygnałowych. Nadekspresja mutantów konstytutywnie aktywnych i dominująco negatywnych lub obniżenie ekspresji fosfatazy zapewniają swoistość, lecz brakuje im kontroli czasowej, a ponadto często mogą one wywołać mechanizmy kompensacyjne, które zamaskują rzeczywistą funkcję enzymu.
Inhibitory farmakologiczne umożliwiają czasową regulację fosfataz. Jednakże wiele inhibitorów fosfataz wykazuje znaczną niespecyficzność ze względu na silnie konserwatywny skład centrum aktywnego w fosfatazach tyrozynowych9. Ponadto, z powodu ograniczeń konstrukcyjnych, inhibitory celujące w centrum katalityczne wykazują słabą przepuszczalność przez błony komórkowe10. Kolejnym ograniczeniem inhibitorów jest fakt, że pozwalają one jedynie na badanie efektów inaktywacji fosfataz11. Istnieje zatem potrzeba opracowania narzędzi umożliwiających specyficzną, regulowaną czasowo aktywację fosfataz. Narzędzia te pozwolą badaczom zidentyfikować bezpośrednie efekty aktywacji fosfataz, oddzielając je od wielu równoległych kaskad sygnalizacyjnych, często aktywowanych przez bodźce biologiczne. Co istotne, ścisła czasowa kontrola aktywności umożliwia identyfikację przejściowych zdarzeń indukowanych przez fosfatazę oraz pozwala odróżnić efekty ostrej od przedłużonej aktywności fosfatazy. Połączenie regulacji czasowej z analizą mutacyjną pozwoli na szczegółowe przeanalizowanie specyficznych ról poszczególnych domen fosfatazy oraz zbadanie jej sygnalizacji w dół kaskady12.
Aby zniwelować brak pożądanych właściwości w istniejących narzędziach, grupa Karginova opracowała system regulowany rapamycyną (RapR)13,14,15. System RapR wykorzystuje zmodyfikowaną domenę przełączającą, iFKBP, która umożliwia allosteryczną regulację białka docelowego (POI). Wstawienie domeny iFKBP w pozycji allosterycznie sprzężonej z centrum katalitycznym POI sprawia, że staje się ono podatne na regulację za pomocą rapamycyny. Wobec braku rapamycyny domena iFKBP zaburza centrum katalityczne ze względu na immanentnie wysoką dynamikę strukturalną iFKBP, co prowadzi do inaktywacji POI. Dodanie rapamycyny indukuje oddziaływanie iFKBP z współwyrażanym białkiem FRB (Rysunek 1). Powoduje to stabilizację domeny przełączającej, co w konsekwencji przywraca strukturę i funkcję domeny katalitycznej POI. W ten sposób narzędzie to umożliwia specyficzną i regulowaną czasowo aktywację POI.
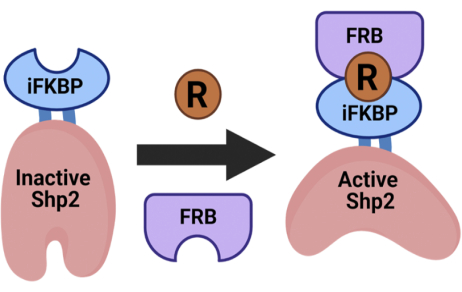
Rycina 1: Schemat systemu RapR-Shp2 regulowanego rapamycyną. RapR umożliwia allosteryczną aktywację białka docelowego po dodaniu rapamycyny. Rycina została zmodyfikowana na podstawie pracy Fauser i wsp.12. Skróty: iFKBP = wstawialne FKBP12; FRB = domena wiążąca FKBP-rapamycynę; R = rapamycyna; Shp2 = fosfataza tyrosynowa białka zawierająca domenę homologii Src-2. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
Narzędzie RapR można zastosować do różnych rodzin białek. Może ono służyć do regulacji kinaz białkowych, jak i fosfataz12,14. Niniejszy protokół skupia się na zastosowaniu narzędzia RapR do kontroli fosfatazy Shp2. Shp2 jest powszechnie ekspresowaną białkową fosfatazą tyrozynową, która bierze udział w procesach sygnalizacyjnych, takich jak proliferacja, migracja, immunomodulacja i różnicowanie1,16,17,18. Dysregulację Shp2 powiązano z licznymi nowotworami litego narządu, białaczką szpikową oraz zaburzeniami rozwojowymi5,7. Jednakże Shp2 stała się obiektem tych samych niedoskonałości narzędziowych, które opisano powyżej. Aby przeciwdziałać tym ograniczeniom, opracowano i scharakteryzowano RapR-Shp2, czyli konstrukt Shp2 podlegający specyficznej i czasowej regulacji12.
Przed opracowaniem RapR-Shp2 wiadomo było, że Shp2 bierze udział w migracji komórek19,20,21. Jednak jego konkretna rola w sygnalizacji zaangażowanej w ten proces nie była znana. Nie wiadomo było również, w jakiej skali czasowej Shp2 reguluje migrację komórek oraz jakie konkretne zmiany morfodynamiczne wywołuje w różnych punktach czasowych swojej aktywacji. Ponadto nie było jasne, czy ostra i przedłużona aktywacja Shp2 wywoła różne efekty. Dzięki zastosowaniu RapR-Shp2 odkryto, że ostra aktywacja Shp2 indukuje przejściowe rozprzestrzenianie się komórek, zwiększenie liczby wypustek, polaryzację komórek oraz migrację. Zidentyfikowano również specyficzne szlaki sygnałowe poniżej Shp2, które regulują odrębne zmiany morfodynamiczne12. Niniejszy protokół zawiera szczegółowe informacje na temat projektu i charakterystyki RapR-Shp2, które mogą posłużyć jako wytyczne przy opracowywaniu i stosowaniu innych fosfataz RapR.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Projekt fosfataz RapR
- Planowanie
UWAGA: Na przykładzie RapR-Shp2 niniejszy protokół szczegółowo opisuje istotne kroki tworzenia fosfatazy tyrozynowej regulowanej rapamycyną. Opisany protokół został zoptymalizowany dla Shp2; w przypadku innych fosfataz mogą być wymagane dodatkowe modyfikacje w celu dostosowania do ich specyficznych właściwości.- Aby zapewnić, że aktywność katalityczna Shp2 jest kontrolowana wyłącznie przez rapamycynę, a nie przez mechanizmy endogenne, należy wprowadzić do fosfatazy mutację utrzymującą ją w konformacji konstytutywnie aktywnej. W przypadku Shp2 należy wprowadzić mutację D61A.
UWAGA: Jeśli dla konkretnej PTPazy nie wprowadzono mutacji aktywującej, wariant RapR będzie funkcjonował jako system z bramką logiczną AND, regulowany przez sygnały endogenne oraz rapamycynę. - Zidentyfikuj miejsca insercji iFKBP w domenie katalitycznej fosfatazy, wykorzystując strukturę krystaliczną do przeprowadzenia selekcji, zgodnie z wcześniejszym opisem13. Jeśli struktura nie jest dostępna, przeprowadź dopasowanie sekwencji aminokwasowej do domeny katalitycznej fosfatazy Shp2, aby zidentyfikować miejsca insercji (Rysunek 2A). Upewnij się, że miejsce insercji znajduje się w elastycznej pętli, która jest strukturalnie powiązana z kieszenią katalityczną, ale oddalona od niej, aby zapobiec zawadzie sterycznej wiązania substratu przez iFKBP.
UWAGA: Dalsze szczegóły dotyczące insercji omówiono w sekcji Dyskusja. - Rozważ rodzaj sekwencji łącznika (linkera), który zostanie zastosowany pomiędzy wstawioną domeną iFKBP a badaną fosfatazą. Wybór optymalnej sekwencji łącznika jest niezwykle istotny dla sukcesu narzędzia RapR i zostanie omówiony szerzej w sekcji Dyskusja (Rysunek 2B).
- Aby zapewnić, że aktywność katalityczna Shp2 jest kontrolowana wyłącznie przez rapamycynę, a nie przez mechanizmy endogenne, należy wprowadzić do fosfatazy mutację utrzymującą ją w konformacji konstytutywnie aktywnej. W przypadku Shp2 należy wprowadzić mutację D61A.
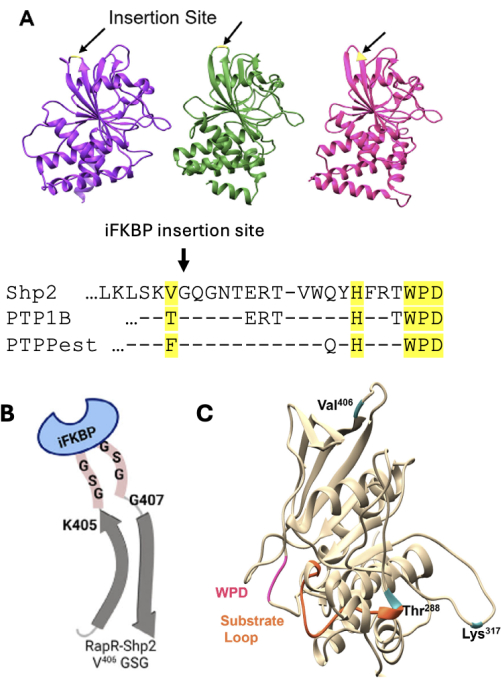
Rysunek 2: Schemat zagadnień przy projektowaniu RapR-fosfatazy. (A) Dopasowanie Shp2 (fioletowy), PTP1B (zielony) i PTP-PEST (różowy) z zaznaczonymi konserwowanymi miejscami insercji. (B) Przedstawienie insercji łącznika między Shp2 a iFKBP. (C) Domena fosfatazowa Shp2 w kolorze beżowym z zaznaczonymi na niebiesko miejscami insercji. Rysunek zmodyfikowano na podstawie publikacji Fauser et al.12. Skróty: Shp2 = kinaza tyrozynowa białek zawierająca domenę homologii Src-2; iFKBP = inserowalne FKBP12; PTP = tyrozynowa fosfataza białkowa; RapR = regulowane rapamycyną. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
2. Utworzenie fosfatazy RapR
- Wprowadzenie iFKBP do badanej fosfatazy za pomocą zmodyfikowanej mutagenezy celowanej
- Wytworzenie „megaprimeru” kodującego iFKBP za pomocą PCR.
- Zaprojektować primery do syntezy „megaprimeru”, które zawierają 20-25 nukleotydów hybrydyzujących z końcem 5' lub 3' iFKPB, sekwencję łącznikową (linker), która połączy iFKPB z badaną fosfatazą, oraz 28-32 nukleotydy odpowiadające miejscu wstawienia (Rycina 3). Potwierdzić, że otrzymany produkt zawiera iFKPB flankowany przez fragmenty hybrydyzujące przed i po miejscu wstawienia w badanej fosfatazie.
- Zsyntetyzować „megaprimer” zawierający iFKBP za pomocą PCR (10 µL buforu polimerazy 5x, 1 µL matrycy DNA o stężeniu 50 ng/µL zawierającej iFKBP, 2 µL dNTP 10 mM, 0,5 µL roztwoku każdego z primerów „megaprimeru” [forward i reverse] o stężeniu 100 µM, 35 µL wody, 1 µL polimerazy DNA). Przed rozpoczęciem PCR podzielić tę reakcję PCR na 2 oddzielne reakcje o objętości 25 µL. Przeprowadzić cykl PCR zgodnie z zaleceniami producenta polimerazy DNA lub według następującego standardowego cyklu PCR: (i) 98 °C przez 2 min, (ii) 98 °C przez 30 s, (iii) 55-70 °C przez 30 s, (iv) 72 °C przez 30 s, (v) powtórzyć kroki ii-iv 25x, (vi) 72 °C przez 2 min.
- Oczyścić „megaprimer” za pomocą elektroforezy w żelu agarozowym. Nałożyć zawartość PCR z poprzedniego kroku na 1% żel agarozowy i przyłożyć napięcie 120 V przez około 30 min. Odnaleźć w żelu „megaprimer” o długości 400 nukleotydów, wyciąć fragment i oczyścić go za pomocą zestawu do ekstrakcji z żelu (patrz Tabela materiałów).
UWAGA: W tym miejscu można przerwać protokół.
- Zmodyfikowana mutageneza celowana
- Przygotować reakcję zmodyfikowanej mutagenezy celowanej, używając jako matrycy plazmidu zawierającego gen badanej fosfatazy (5 µL buforu polimerazy 5x, 2 µL matrycy 50 ng/µL, 2 µL dNTP 10 mM, 10 µL wyekstrahowanego „megaprimeru”, 2,5 µL wody, 2,5 µL DMSO, 1 µL polimerazy DNA).
UWAGA: Dodanie DMSO do mieszaniny reakcyjnej obniża temperaturę hybrydyzacji22. - Przeprowadzić następujący cykl PCR: początkowy etap denaturacji w 98 °C przez 3 min, a następnie 18 cykli składających się z następujących kroków inkubacji: 98 °C przez 30 s, 65 °C przez 20 s, 60 °C przez 20 s, 55 °C przez 20 s, 50 °C przez 20 s, 72 °C przez 18 min. Cykl przeprowadzić przez noc (czas cyklu wynosi 7 h). Po zakończeniu cyklu przechowywać reakcję PCR w 4 °C.
UWAGA: W tym miejscu można przerwać protokół. - Po zakończeniu cyklu dodać 1 µL enzymu DpnI i inkubować w 37 °C przez 1 h.
UWAGA: DpnI strawi pozostałą matrycę, zwiększając wydajność nowo zsyntetyzowanego produktu. - Przenieść strawiony produkt do kompetentnych komórek DH5α zgodnie z instrukcjami producenta. Wysiać transformaty na płytkach z agarem LB z odpowiednim antybiotykiem do selekcji (karbenycylina dla konstruktu pcDNA RapR-Shp2). Inkubować w 37 °C przez noc. Po wyrośnięciu kolonii przechowywać płytki LB w 4 °C do 1 miesiąca.
UWAGA: W tym miejscu można przerwać protokół.
- Przygotować reakcję zmodyfikowanej mutagenezy celowanej, używając jako matrycy plazmidu zawierającego gen badanej fosfatazy (5 µL buforu polimerazy 5x, 2 µL matrycy 50 ng/µL, 2 µL dNTP 10 mM, 10 µL wyekstrahowanego „megaprimeru”, 2,5 µL wody, 2,5 µL DMSO, 1 µL polimerazy DNA).
- Wytworzenie „megaprimeru” kodującego iFKBP za pomocą PCR.
- Izolacja pożądanego konstruktu DNA zawierającego RapR-fosfatazę
- Przeprowadzić przesiew PCR kolonii bakteryjnych23. Ponieważ nie wszystkie kolonie wyrosłe na płytce LB będą zawierać pożądany plazmid, należy pamiętać o wykonaniu przesiewu przed izolacją plazmidowego DNA.
UWAGA: Do przesiewu użyć primerów, które będą hybrydyzować z matrycą oraz w genie iFKBP. Przesiew można przeprowadzić z użyciem mastermixu polimerazy Taq (patrz Tabela materiałów). - Po zidentyfikowaniu pozytywnych kolonii, zaszczepić jedną pozytywną kolonię do 3 mL pożywki LB z odpowiednim antybiotykiem, inkubować i mieszać w 37 °C przez noc.
- Wyekstrahować plazmidowe DNA z hodowli płynnej zgodnie z instrukcjami producenta zestawu do ekstrakcji plazmidowego DNA (patrz Tabela materiałów).
UWAGA: Zaleca się zsekwencjonowanie nowo utworzonego konstruktu RapR PTPase przed przejściem do oceny in vitro.
- Przeprowadzić przesiew PCR kolonii bakteryjnych23. Ponieważ nie wszystkie kolonie wyrosłe na płytce LB będą zawierać pożądany plazmid, należy pamiętać o wykonaniu przesiewu przed izolacją plazmidowego DNA.
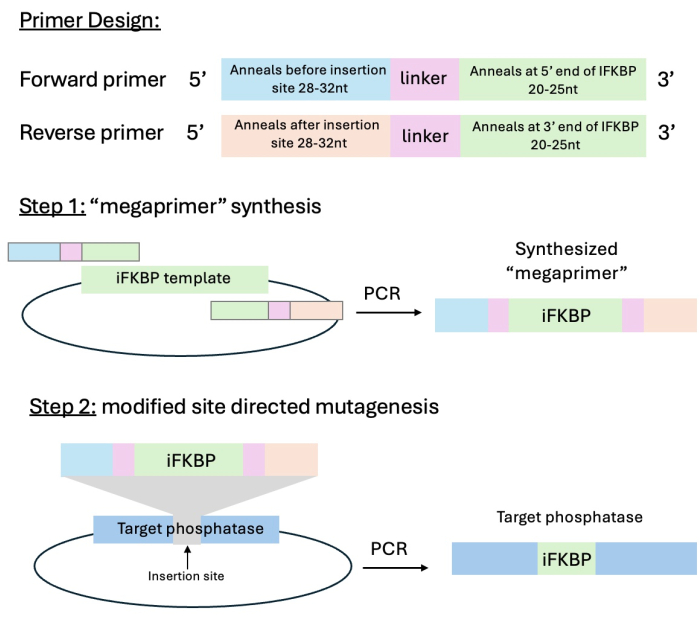
Rysunek 3: Schemat projektowania starterów i zmodyfikowanej strategii klonowania z mutagenezą celowaną. Krok 1 obejmuje syntezę „megastartera” zawierającego iFKBP z „lepkimi końcami” hybrydyzującymi z miejscem insercji interesującej fosfatazy, a krok 2 polega na insercji „megastartera” do interesującej fosfatazy. Rysunek zmodyfikowano na podstawie pracy Karginov et al.13. Skrót: iFKBP = insertable FKBP12. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
3. Ocena RapR-PTPase za pomocą testu aktywności in vitro
UWAGA: Niniejszy protokół służy do oceny regulacji aktywności zmodyfikowanej enzymatycznie RapR-PTPazy. Poniżej opisano analizę immunoprecypitatowanej Shp2 z wykorzystaniem fosforylowanego fragmentu N-końcowego paksylliny jako substratu. W zależności od analizowanej PTPazy może być konieczny wybór innego substratu.
- Dzień 1
- Wysiać 800 000 komórek HEK293T na dołek w 6-dołkowej płytce do hodowli tkanek w pożywce DMEM z dodatkiem suplementu L-glutaminy (stężenie końcowe 2 mM) i 10% FBS (v/v). Inkubować przez noc w inkubatorze przy 37 °C i 5% CO2.
- Dzień 2
- Gdy komórki osiągną ok. 60–80% konfluencji, przeprowadzić transfekcję zgodnie z protokołem producenta wybranego odczynnika do transfekcji (patrz Tabela Materiałów).
- Przykład protokołu transfekcji: dodać 1 µg plazmidowego DNA (po tyle samo pcDNA-mCherry-FRB oraz pcDNA-flag-RapR-Shp2) do 200 µL DMEM bez surowicy oraz 6 µL odczynnika do transfekcji i inkubować mieszaninę w temperaturze pokojowej przez 15 min. Dodać 100 µL mieszaniny do transfekcji na każdy dołek z komórkami. Jako kontrole uwzględnić próbki transfektowane konstruktami Shp2 konstytutywnie aktywnymi i dominująco negatywnymi. Inkubować przez noc w inkubatorze przy 37 °C i 5% CO2 .
- Gdy komórki osiągną ok. 60–80% konfluencji, przeprowadzić transfekcję zgodnie z protokołem producenta wybranego odczynnika do transfekcji (patrz Tabela Materiałów).
- Dzień 3
- Przygotowanie Sepharose Protein-G
UWAGA: Przed kontaktem z Sepharose przygotować przycięte końcówki pipet. Przyciętych końcówek należy używać na każdym etapie manipulacji z Sepharose. Sepharose musi być dokładnie resuspendTime na każdym etapie przed pipetowaniem.- ZresuspendTime i przenieść odpowiednią ilość Sepharose Protein-G do probówki 1,5 mL. Na każdy dołek w płytce 6-dołkowej należy użyć 10 µL Sepharose Protein-G. Dla całej płytki 6-dołkowej użyć 60 µL Sepharose.
- Przemyć Sepharose 1 mL buforu do lizy (patrz Tabela Materiałów). Wirować w mikrocentryfudze przez 1 min przy 2 000 × g i ostrożnie usunąć bufor do lizy. Powtórzyć 2x.
- ZresuspendTime Sepharose w 380 µL buforu do lizy. Dodać BSA do stężenia końcowego 1 mg/mL oraz przeciwciało (0,5 µL na każdą próbkę IP, przeciwciało anty-Flag [patrz Tabela Materiałów]). Inkubować na rotatorze przy 4 °C przez 1,5 h.
UWAGA: Optymalną ilość przeciwciała należy wyznaczyć doświadczalnie dla każdego użytego przeciwciała.
- Przygotowanie komórek do immunoprecypitacji.
- Dodać odpowiednią ilość rapamycyny (roztwór stokowy 1 mM w etanolu) do stężenia końcowego 1 µM lub dodać taką samą objętość etanolu (kontrola negatywna) do próbek. Inkubować przez 1 h w inkubatorze przy 37 °C i 5% CO2 .
- Umieścić płytkę 6-dołkową z komórkami na lodzie i delikatnie przemyć komórki 3 mL zimnego PBS. Odssać PBS, dodać 300 µL buforu do lizy (z 1 µM rapamycyny dla próbki z aktywowaną fosfatazą lub równoważną objętość etanolu w próbce kontrolnej negatywnej) i zebrać komórki skrobakiem. Przenieść próbki do probówek 1,5 mL i wirować w mikrocentryfudze przez 10 min przy 1 000 × g w 4 °C.
- Przenieść 20 µL supernatantu do nowej probówki 1,5 mL w celu sprawdzenia poziomu ekspresji. Do każdej probówki przeznaczonej do kontroli ekspresji dodać 20 µL 2x buforu Laemmli z 5% β-merkaptoetanolem i inkubować w temperaturze 95–100 °C przez 5 min. Pozostały supernatant wykorzystać do immunoprecypitacji w kroku 3.3.3.3.
- Immunoprecypitacja RapR-Shp2
- Przemyć Sepharose Protein-G z kroku 3.3.1.3 1 mL buforu do lizy. Za każdym razem wirować w mikrocentryfudze przez 1 min przy 2 000 × g w 4 °C i ostrożnie odessać bufor do lizy. Powtórzyć ten krok 2x.
- Używając przyciętych końcówek, zresuspendTime Sepharose w buforze do lizy (50 µL na próbkę, zatem dla płytki 6-dołkowej zresuspendTime w 300 µL buforu do lizy). Pipetować 50 µL zawiesiny Sepharose do oddzielnej nowej probówki 1,5 mL dla każdej próbki.
UWAGA: Ze względu na objętość Sepharose w roztworze buforu do lizy pozostanie nadmiar resuspendTime Sepharose. - Dodać pozostały supernatant z przygotowanych komórek z kroku 3.3.2.3 do każdej probówki z Sepharose. Rotować przy 4 °C przez 1,5–2 h.
- Analiza aktywności fosfatazy
UWAGA: Podłoże dla Shp2 należy przygotować poprzez fosforylację oczyszczonego fragmentu N-końcowego paksylliny przy użyciu konstytutywnie aktywnej kinazy Src zgodnie z wcześniej opisanym protokołem reakcji kinazowej12.- Pod koniec kroku 3.3.3.3 przygotować roztwór fosfo-paksylliny. Na każdą próbkę dodać roztwór fosfo-paksylliny (stężenie końcowe 3 µg/mL) do 40 µL całkowitego buforu imidazolowego (patrz Tabela Materiałów). Do alikwoty roztworu fosfo-paksylliny dla próbek z aktywowanym RapR-Shp2 dodać rapamycynę do stężenia końcowego 1 µM, a do roztworu dla próbek nieaktywowanych dodać równoważną objętość etanolu.
- Ustawić ogrzewany wytrząsarkę na 32 °C.
UWAGA: Inne fosfatazy mogą wymagać innej temperatury dla optymalnej aktywności. - Przemyć Sepharose z próbkami z kroku 3.3.3.3 2x przy użyciu 0,5 mL buforu do lizy (patrz Tabela Materiałów). Przemyć próbki 2x przy użyciu 0,5 mL buforu do płukania. Każdy bufor powinien zawierać rapamycynę w stężeniu 1 µM dla próbek aktywowanych lub równoważną objętość etanolu dla próbek nieaktywowanych. Po ostatnim płukaniu usunąć jak najwięcej buforu.
UWAGA: Po dotarciu do tego etapu pomocne może być użycie pipety do powolnego i ostrożnego usuwania końcowych ilości buforu, aby upewnić się, że Sepharose nie zostanie odessany. Jakikolwiek pozostały bufor wpłynie na stężenie fosfo-paksylliny i doprowadzi do niedokładnego odczytu. - Dodać 40 µL przygotowanej mieszaniny fosfo-paksylliny w buforze imidazolowym do każdej próbki, z rapamycyną lub bez niej (zależnie od próbki). Bardzo delikatnie wymieszać poprzez potrząśnięcie, natychmiast umieścić w ogrzewanej wytrząsarce i inkubować przez 40 min przy 32 °C. Ustawić wytrząsarkę na minimum 1 000 rpm, aby zapewnić pełne mieszanie próbki przez cały czas inkubacji.
- Zatrzymać reakcję, dodając 40 µL 2x buforu Laemmli do każdej próbki. Inkubować próbki w temperaturze 95–100 °C przez 5 min. Schłodzić próbki.
- Nanieść 15 µL każdej próbki (w tym próbki lizatu z kroku 3.3.2.3) na żel SDS-poliakrylamidowy z gradientem 4–15% i przeprowadzić standardowy protokół western blot przy użyciu membran PVDF.
- Przeprowadzić detekcję przeciwciałem anty-Flag w celu wykrycia konstruktu RapR-Shp2, anty-mCherry w celu wykrycia mCherry-FRB oraz anty-pY118 lub anty-pY31 paksylliny w celu wykrycia fosforylacji paksylliny.
UWAGA: Uzyskane wyniki western blot powinny być zbliżone do Rysunku 4.
- Przygotowanie Sepharose Protein-G
4. Analiza aktywności RapR-Shp2 w żywych komórkach
UWAGA: Niniejszy protokół jest stosowany w celu określenia zdolności RapR-Shp2 do defosforylacji endogennych substratów i indukowania sygnalizacji w dół szlaku. W przypadku innych RapR-PTPaz konieczna będzie analiza ich specyficznych substratów i szlaków.
- Dzień 1
- Wysiać 198 000 komórek A431 na studnię w 6-dołkowej płytce do hodowli tkankowej w medium DMEM uzupełnionym o 10% FBS i L-glutaminę (stężenie końcowe 2 mM). Umieścić w 37 °C i 5% CO22 inkubator przez noc.
- Dzień 2
- Zainfekuj komórki konstruktami adenowirusowymi wykazującymi ekspresję RapR-Shp2 oraz FRB, dodając adenowirusa bezpośrednio do pożywki znajdującej się w naczyniu. Pozostaw adenowirusa na komórkach w 37 °C oraz 5% CO22 inkubator przez noc. Jako kontrolę negatywną należy wykorzystać wyłącznie komórki zainfekowane samym FRB.
UWAGA: Ilość adenowirusa zostanie określona indywidualnie, w zależności od miana.
- Zainfekuj komórki konstruktami adenowirusowymi wykazującymi ekspresję RapR-Shp2 oraz FRB, dodając adenowirusa bezpośrednio do pożywki znajdującej się w naczyniu. Pozostaw adenowirusa na komórkach w 37 °C oraz 5% CO22 inkubator przez noc. Jako kontrolę negatywną należy wykorzystać wyłącznie komórki zainfekowane samym FRB.
- Dzień 3
- Przed eksperymentem należy poddać komórki A431 głodzeniu poprzez inkubację w medium DMEM z 0,5% FBS przez 4 h.
- Dodać rapamycynę do stężenia końcowego wynoszącego 1 µM lub taką samą objętość etanolu (kontrola negatywna) do komórek na 2–4 h.
UWAGA: Inkubacja może być inna w przypadku pozostałych fosfataz. - Umieść płytkę 6-dołkową z komórkami na lodzie i delikatnie przemyj komórki 3 ml zimnego PBS. Odessij PBS, dodaj 300 µL buforu lizującego (patrz Tabela materiałów), a następnie energicznie zebrać komórki za pomocą skrobaka do komórek. Przenieść próbki do probówek 1,5 ml i wirować w mikrocentryfużce przez 5 min przy 2 000 × g w 4 °C.
- Transfer 250 µL każdej próbki do nowej probówki o pojemności 1,5 ml. Dodać 250 µL buforu Laemmliego 2x z 5% β-merkaptoetanolem i inkubować w temperaturze 95–100 °C przez 5 min.
- Obciążenie 25 µL każdej próbki na żel SDS-PAGE z gradientem 4–15% i przeprowadzić standardowy protokół western blot z użyciem membran PVDF.
- Oceń zapośrednicowaną przez RapR-Shp2 defosforylację EGFR i PLCγ przy użyciu przeciwciał anty-pY992 EGFR oraz anty-pY783 PLCγ. Oceń aktywację kinazy MAP Erk1/2 w szlaku sygnałowym poprzez analizę jej fosforylacji w obrębie reszt pT202/pY204.
UWAGA: Wynikowe analizy western blot powinny wyglądać podobnie do Rycina 5.
5. Analiza zmian morfodynamicznych indukowanych przez aktywację RapR-Shp2 w komórkach HeLa z wykorzystaniem obrazowania żywych komórek
UWAGA: Niniejszy protokół służy do określenia wpływu aktywacji RapR-Shp2 na tworzenie wypustek komórkowych, rozprzestrzenianie się komórek oraz ich migrację.
- Dzień 1
- Wysiać 700 000 komórek HeLa do 35 mm szalki do hodowli komórek i umieścić w inkubatorze w temperaturze 37 °C i przy 5% CO2. Pozostawić komórki do przywarcia do szalki (~2–3 h).
- Przeprowadzić transfekcję komórek zgodnie z protokołem producenta preferowanego odczynnika do transfekcji (patrz Tabela Materiałów).
- Przykładowy protokół transfekcji: dodać 0,5 µg DNA (plazmidy pcDNA-mCherry-FRB oraz pcDNA-Venus-RapR-Shp2, po tyle samo z każdego) do 100 µL bezserowkowego DMEM i 6 µL odczynnika do transfekcji. Inkubować w temperaturze pokojowej przez 15 min. Dodać mieszaninę do transfekcji do komórek i inkubować przez noc w inkubatorze w temperaturze 37 °C i przy 5% CO2. Komórki transfekowane wyłącznie pcDNA-mCherry-FRB stosować jako kontrolę negatywną.
- Pokryć okrągłe szkiełko nakrywkę 25 mm nr 1,5 do obrazowania na żywo fibronektyną (5 mg/L), inkubując przez 1 h w 37 °C.
- Dzień 2
- Przemyć pokryte szkiełko nakrywkę buforem PBS.
- Wysiać transfekowane komórki HeLa na pokryte szkiełko nakrywkę w pożywce DMEM uzupełnionej o 10% FBS i L-glutaminę (stężenie końcowe 2 mM), aby uzyskać 30% konfluencji na 4 h przed obrazowaniem.
- Dwie godziny po wysianiu, ostrożnie wymienić pożywkę w szalce na uprzednio ogrzaną bezserowkową pożywkę Leibovitz L-15 na 2 h.
- Przebarwić komórki barwnikiem do błony komórkowej CellMask Deep Red zgodnie z protokołem producenta.
- Umieścić szkiełko nakrywkę w czystej komorze do obrazowania (patrz Tabela Materiałów). Dodać 1 mL uprzednio ogrzanej pożywki L-15 i przykryć 1 mL uprzednio ogrzanego oleju mineralnego, aby zapobiec odparowaniu. Przechowywać komorę w temperaturze 37 °C do czasu obrazowania.
- Obrazować komórki w 37 °C, korzystając z grzanego stolika.
- Wybrać odpowiednie kanały do obrazowania konstruktu RapR oraz CellMask w trybie epifluorescencji. W celu realizacji niniejszego protokołu należy użyć wskazanego obiektywu 40x (patrz Tabela Materiałów) oraz następujących zestawów filtrów: filtrów wzbudzenia 514/10 i emisji 540/21 dla obrazowania Venus-RapR-Shp2, filtrów wzbudzenia 561/10 i emisji 595/40 dla obrazowania mCherry-FRB oraz filtrów wzbudzenia 640/20 i emisji 655LP dla obrazowania CellMask Deep Red. Dla wszystkich kanałów fluorescencyjnych należy zastosować wielopasmowe lustro polichromatyczne (patrz Tabela Materiałów).
- Przechwytywać obrazy co 2 min przez 4–4,5 h.
UWAGA: Szybsze zmiany morfodynamiczne będą wymagały częstszego przejmowania obrazów. - Po 1 godzinie obrazowania dodać rapamycynę do stężenia końcowego 1 µM w celu stymulacji RapR-Shp2.
6. Analiza obrazu
UWAGA: Niniejszy protokół opisuje tworzenie masek komórkowych na podstawie plików stosów .TIF zebranych podczas eksperymentów obrazowania żywych komórek. Następnie opisano sposób tworzenia makra w programie ImageJ do analizy masek, co pozwoli na uzyskanie arkusza kalkulacyjnego z powierzchnią komórek, która zostanie następnie przeanalizowana pod kątem zmian w czasie. Na koniec, za pomocą programu Metamorph, przeanalizowana zostanie aktywność protrusyjna i retrakcyjna komórek.
- Wygeneruj binarną maskę obrazów CellMask, używając funkcji MovThresh z pakietu oprogramowania CellGeo24.
- Skopiuj folder MovThresh do folderu analizy obrazów.
- Skopiuj obrazy z kanału CellMask lub innego znacznika błony do folderu MovThresh.
- Jeśli w jednej pozycji obrazowano wiele komórek, przytnij obrazy tak, aby wygenerować pliki zawierające tylko jedną komórkę przed stworzeniem maski w programie MatLab.
- Upewnij się, że w programie MatLab katalog jest poprawnie ustawiony na folder MovThresh.
- Uruchom funkcję MovThresh.
- Importuj stosy obrazów pojedynczo.
- Wybierz opcję Smoothed Curve, a następnie uruchom funkcję Rethreshold.
- Zapisz jako Mask_NumerObrazu w nowym folderze o nazwie Masks.
- Po przekonwertowaniu wszystkich stosów obrazów na Maski, otwórz stosy obrazów w oprogramowaniu ImageJ25.
- Analiza powierzchni komórek w programie ImageJ
- Otwórz wszystkie stosy obrazów Mask w programie ImageJ.
- W ustawieniach Set Measurements wybierz Area.
- Kliknij Plugins | Macros | Record.
- Kliknij Process | Binary | Make Binary.
- Wybierz opcję default.
UWAGA: Podczas nagrywania Makra nie klikaj żadnych dodatkowych elementów. Jeśli do nagrania trafią dodatkowe kroki, zaleca się ponowne rozpoczęcie od punktu 6.9.1.3.
- Wybierz opcję default.
- Kliknij Analyze | Analyze Particles.
- Odznacz wszystkie pola poza Summary.
- Zakończ nagrywanie i kliknij Create, aby stworzyć Makro.
- Kliknij Run dla każdego stosu obrazów po jego wybraniu i zapisz tabelę wyników dla każdego stosu. Opcja domyślna zapisze dane jako plik csv.
- Zapisz Makro i wykorzystaj je ponownie w przyszłych analizach (opcjonalnie).
- Przetwarzanie danych powierzchniowych w arkuszu kalkulacyjnym
- Dla każdej analizowanej komórki oblicz średnią powierzchnię komórki z obrazów wykonanych przed aktywacją rapamycyną.
- Podziel wszystkie wartości powierzchni przez średnią powierzchnię komórki przed dodaniem rapamycyny.
- Oblicz średnią wartość dla każdego punktu czasowego dla wszystkich obrazowanych komórek i wyznacz 90% przedziały ufności. Przedstaw dane na wykresie.
- Analiza aktywności protruzyjnej komórek
- Skopiuj folder ProActive do folderu analizy obrazów.
- Skopiuj maskowane stosy obrazów z MovThresh do nowo utworzonego folderu ProActive.
- Otwórz program MatLab i ustaw katalog na folder ProActive.
- Uruchom funkcję ProActive.
- Zaimportuj pliki maskowanych stosów obrazów komórek do interfejsu ProActive GUI.
- Zdefiniuj rodzaj aktywności. Analiza aktywności protruzyjnej wygeneruje dane o powierzchni przybytej (area gained); analiza aktywności retrakcyjnej wygeneruje dane o powierzchni utraconej (area lost); a całkowita aktywność wygeneruje dane o ogólnej zmianie powierzchni (overall area change) (zarówno utraconej, jak i przybytej).
- Ustaw obszar na Define Normalization.
- Wygładź krzywą, korzystając z sugerowanych wartości progowych lub używając średniej do ponownego ustalenia progu (rethreshold) dla każdego punktu czasowego. Pozwala to na uśrednienie progów w określonym oknie, minimalizując niespójności w progowaniu między punktami czasowymi.
- Kliknij File | Save As | Results (.mat)
- W przypadku przetwarzania wszystkich trzech rodzajów aktywności powierzchniowej, nazwij przetworzone pliki danych w następujący sposób: ProResultData #, RetResultData # lub ResultData #.
UWAGA: Uwzględnij spację przed numerem i numeruj dane począwszy od 1.
- W przypadku przetwarzania wszystkich trzech rodzajów aktywności powierzchniowej, nazwij przetworzone pliki danych w następujący sposób: ProResultData #, RetResultData # lub ResultData #.
- Powtórz kroki od 6.9.3.6 dla wszystkich zaimportowanych maskowanych stosów obrazów.
- Po przetworzeniu wszystkich komórek zamknij interfejs ProActive GUI.
- Otwórz plik DataToFileTotalArea w edytorze Matlab, aby przetworzyć pliki „ResultData” całkowitej aktywności.
- Zmień liczbę komórek tak, aby odpowiadała liczbie wygenerowanych plików z wynikami. Jeśli w krokach 6.9.3.5–6.9.3.10 przetworzono 7 komórek, upewnij się, że pierwsze trzy linie skryptu wyglądają następująco:
filename=’Result Data ‘;
cells=1:7;
lag=1; - Kliknij Run i powtórz tę czynność dla DataToFileProtArea oraz DataToFileRetArea, aby przetworzyć odpowiednio dane protruzyjne i retrakcyjne. Analiza ta wygeneruje trzy pliki tekstowe: „AllCells.txt”, „AllCellsPro.txt” i „AllCellsRet.txt”
- Otwórz pliki .txt w arkuszu kalkulacyjnym i dokonaj normalizacji zgodnie z sekcją 6.9.2. Oblicz średnią wartość dla każdego punktu czasowego dla wszystkich obrazowanych komórek i wyznacz 90% przedziały ufności. Przedstaw dane na wykresie.
UWAGA: Wykresy uzyskane z powyższych kroków powinny być podobne do Rysunku 6.
- Analiza powierzchni komórek w programie ImageJ
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rycina 4 przedstawia wyniki, jakich można spodziewać się w teście aktywności fosfatazy opartej na paksyllinie. W tym doświadczeniu aktywność konstytutywnie aktywnej i dominująco negatywnej fosfatazy Shp2 porównano z aktywnością aktywnego i nieaktywnego RapR-Shp2, wykorzystując poziom fosfo-paksylliny jako parametr odczytu. Konstrukty Shp2 poddano immunoprecypitacji, a następnie testowi aktywności zgodnie z opisem w protokole. Odczyty fosfo-paksylliny dla konstytutywnie aktywnego Shp2 oraz ak...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokół ten zawiera szczegółowe kroki w zakresie opracowywania, charakterystyki i stosowania fosfataz kontrolowanych chemicznie. Narzędzie RapR-Shp2 opiera się na przełączniku regulowanym rapamycyną umieszczonym w domenie katalitycznej Shp2. Mocną stroną tego narzędzia jest specyficzność i ścisła kontrola czasowa aktywności fosfatazy. Narzędzie ma zastosowanie do innych fosfataz i w połączeniu z wcześniej opisaną technologią RapR-TAP pozwala na rekonstrukcję poszczególnych dalszych szlaków sygnałowych2...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Autorzy dziękują dr Jordan Fauser za jej wkład w rozwój RapR-Shp2 i związanych z nim protokołów. Prace zostały wsparte nagrodą 5R35GM145318 przyznaną przez NIGMS, nagrodą R33CA258012 przyznaną przez NCI oraz nagrodą P01HL151327 przyznaną przez NHLBI.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| #1.5 Szkiełka nakrywkowe 25 mm okrągłe | Warner Instruments | 64-0715 | |
| Probówki 1,5 ml | USA Scientific | cc7682-3394 | |
| 2x Bufor | Na 500 ml: 5,18 g Tris-HCL, 131,5 ml glicerolu, 52,5 ml 20% SDS, 0,5 g błękitu bromofenolowego, końcowe pH 6,8 | ||
| 4-20% Mini-PROTEAN TGX Prefabrykowany żel | Biorad | 4561096 | |
| 5x Phusion Plus Buffer | Thermo Scientific | F538L | |
| A431 Komórki | ATCC | CRL-1555 | |
| Agarsos | GoldBiotech | A-201 | |
| Komora komórkowa attofluoru | invitrogen | A7816 | |
| Benchmark Płodowa surowica bydlęca (FBS) | Gemini Bio-products | 100-106 | Potrójna inaktywowana termicznie 0,1 i mikro; m sterylnie filtrowany |
| Brig 35,30 w/v % | Acros | 329581000 | |
| BSA | GoldBiotech | A-420 | |
| CellGeo | N/A | N/A | Opublikowano w 10.1083/jcb.201306067 |
| CellMask Deep Red barwnik błonowy plazmatyczny | invitrogen | c10046 | |
| Colony Screen MasterMix | Genesee | 42-138 | |
| DH5a kompetentny komórki | NEB | C2987H | |
| DMEM | Corning | 15-013-CV | |
| DMSO | Thermo Scientific | F-515 | |
| Drabinka DNA | GoldBio | D010-500 | |
| dNTPs | NEB | N04475 | |
| DpnI Enzym | NEB | R01765 | |
| DTT | GoldBio | DTT10 | DL-Ditiothreitol, Odczynniki Clelanda |
| EGTA | Acros | 409910250 | |
| Fibronektyna z osocza bydlęcego | Sigma | F1141 | |
| Odczynnik do transfekcji FuGENE(R) 6 | Odczynnik do transfekcji | Promega | E2692 |
| Zestaw do ekstrakcji żelu | Thermo Scientific | K0692 | GeneJET Gel |
| Gel Zielony Kwas nukleinowy Barwnik | GoldBio | G-740-500 | |
| Żel ładujący Barwnik fioletowy 6x | NEB | B7024A | |
| Glutamax | Gibco | 35050-061 | GlutaMAX-l (100x) 100 mL |
| HEK 293T Cells | ATCC | CRL-11268 | |
| HeLa Cells | ATCC | CRM-CCL-2 | |
| HEPES | Fischer | BP310-500 | |
| Oprogramowanie do przetwarzania ImageJ | N/A | /A | |
| Igepal CA-630 (NP40) | Sigma | I3021 | |
| Bufor | 25 mM Imidazol pH 7,2, 2,5 mM EDTA, 50 mM NaCl, 5 mM DTT | ||
| KCl | Sigma | P-4504 | |
| L-15 1x | Corning | 10-045-CV | |
| LB Agar | Fisher | BP1425-2 | |
| Bufor | do lizy20 mM Hepes-KOH, pH 7,8, 50 mM KCl, 1 mM EGTA, 1% NP40 | ||
| Do | CellGeo MathWorks | N/A | 2022b |
| automatyzacji mikroskopii metamorficznej i analizy obrazu | NIE | DOTYCZY | |
| NIE DOTYCZY MgCl2 | Fisher Chemical | M33-500 | |
| Olej mineralny | Sigma | M5310 | |
| MiniPrep Kit | Gene Choice | 96-308 | |
| Mini-PROTEAN TGX Prefabrykowane żele 12 dołków | Bio-Rad | 4561085 | |
| Biologia molekularna Klasa wodna | Corning | 46-000-CV | |
| Wielopasmowe lustro polichroiczne | Technologia Chroma | 89903BS | |
| NaCl | Fisher Chemical | S271-3 | |
| Olympus UPlanObiektyw SAPO 40x | Olympus | N/A | |
| PBS bez Ca i Mg | Corning | 21-031-CV | |
| Probówki do PCR | labForce | 1149Z65 | 0,2 ml 8-paskowe probówki i nakrętki, sztywne paski Indywidualnie mocowane kołpaki |
| Polimeraza DNA Phusion Plus Thermo | Scientific | F630S | |
| Startery | IDT | ||
| Protein-G Sepharose | Millipore | 16-266 | |
| Membrany PVDF | BioRad | 1620219 | Immun-Blot PVDF/Bibuła filtracyjna Kanapki |
| Rapamycin | Fisher | AAJ62473MF | |
| 0,25% Trypsyna, 2,21 mM EDTA, 1x [-] sód | Corning | 25-053-CI | |
| Tris-Acetate-EDTA (TAE) 50x | Fischer | BP1332-1 | do elektroforezy |
| Bufor | 20 mM Hepes-KOH, pH 7,8, 50 mM KCl, 100 mM NaCl, 1 mM EGTA, 1% NP40 | ||
| β-merkaptoetanol | Fisher Chemical | O3446I-100 | |
| przeciwciała | |||
| Anty-EGFR | Sygnalizacja komórkowa | przeciwciała 2232 | |
| Przeciwciało anty-ERK 1/2 | Sygnalizacja komórkowa | 9102 | |
| Przeciwciało antyflagowe | Millipore-Sigma | F3165 | |
| Przeciwciało anty-GAPDH | invitrogen | AM4300 | |
| Przeciwciało anty-GFP | Clontech | 632380 | |
| Przeciwciało anty-mCherry | invitrogen | M11217 | |
| Przeciwciało anty-paxillin | Thermo Fischer | BDB612405 | |
| Przeciwciało anty-fosfo-EGFR Y992 | Sygnalizacja komórkowa | przeciwciała 2235 | |
| Anty-fosfo-erk 1/2 T202/Y204 Sygnalizacja | komórkowa | 9101 | |
| Przeciwciało anty-fosfo-paksyliny Y31 | Millipore-Sigma | 05-1143 | |
| Anty-fosfo-PLCγ Y783 | Sygnalizacja komórkowa przeciwciała | 14008 | |
| Anty-PLCγ | Sygnalizacja komórkowa | 5690 |
Bibliografia
- Amin, A. R. M. R., et al. SHP-2 tyrosine phosphatase inhibits p73-dependent apoptosis and expression of a subset of p53 target genes induced by EGCG. Proc Natl Acad Sci U S A. 104 (13), 5419-5424 (2007).
- Niogret, C., et al. Shp-2 is critical for ERK and metabolic engagement downstream of IL-15 receptor in NK cells. Nat Commun. 10, 1-14 (2019).
- Wang, Y. -C., et al. Helicobacter pylori infection activates Src homology-2 domain-containing phosphatase 2 to suppress IFN-γ signaling. J Immunol. 193 (8), 4149-4158 (2014).
- Yu, M., et al. The tyrosine phosphatase SHP2 promotes proliferation and oxaliplatin resistance of colon cancer cells through AKT and ERK. Biochem Biophys Res Commun. 563, 1-7 (2021).
- Lauriol, J., et al. Developmental SHP2 dysfunction underlies cardiac hypertrophy in Noonan syndrome with multiple lentigines. J Clin Invest. 126 (8), 2989-3005 (2016).
- Tartaglia, M., et al. Mutations in PTPN11, encoding the protein tyrosine phosphatase SHP-2, cause Noonan syndrome. Nat Genet. 29, 465-468 (2001).
- Xu, R., et al. Overexpression of Shp2 tyrosine phosphatase is implicated in leukemogenesis in adult human leukemia. Blood. 106 (9), 3142-3149 (2005).
- Mustelin, T., et al. Protein tyrosine phosphatases. Front Biosci. 7 (4), d85-d142 (2002).
- Stanford, S. M., Bottini, N. Targeting tyrosine phosphatases: time to end the stigma. Trends Pharmacol Sci. 38 (6), 524-540 (2017).
- Guo, M., et al. Targeting phosphatases: From molecule design to clinical trials. Eur J Med Chem. 264, 116031(2024).
- Weiser, D. C., Shenolikar, S. Use of protein phosphatase inhibitors. Curr Protoc Mol Biol. 62, 1-18 (2003).
- Fauser, J., et al. Dissecting protein tyrosine phosphatase signaling by engineered chemogenetic control of its activity. J Cell Biol. 221 (8), e202111066(2022).
- Karginov, A. V., Hahn, K. M. Allosteric activation of kinases: design and application of RapR kinases. Curr Protoc Cell Biol. , Chapter 14, Unit 14.13 (2011).
- Karginov, A. V., Ding, F., Kota, P., Dokholyan, N. V., Hahn, K. M. Engineered allosteric activation of kinases in living cells. Nat Biotechnol. 28, 743-747 (2010).
- Dagliyan, O., Dokholyan, N. V., Hahn, K. M. Engineering proteins for allosteric control by light or ligands. Nat Protoc. 14, 1863-1883 (2019).
- Wang, Y., et al. Targeting the SHP2 phosphatase promotes vascular damage and inhibition of tumor growth. EMBO Mol Med. 13, e14089(2021).
- Wang, L., et al. SHP2 regulates the development of intestinal epithelium by modifying OSTERIX+ crypt stem cell self-renewal and proliferation. FASEB J. 35, e21106(2021).
- Zhang, E. E., Chapeau, E., Hagihara, K., Feng, G. -S. Neuronal Shp2 tyrosine phosphatase controls energy balance and metabolism. Proc Natl Acad Sci U S A. 101 (45), 16064-16069 (2004).
- Song, Y., Zhao, M., Zhang, H., Yu, B. Double-edged roles of protein tyrosine phosphatase SHP2 in cancer and its inhibitors in clinical trials. Pharmacol Ther. 230, 107966(2022).
- Hartman, Z. R., Schaller, M. D., Agazie, Y. M. The tyrosine phosphatase SHP2 regulates focal adhesion kinase to promote EGF-induced lamellipodia persistence and cell migration. Mol Cancer Res. 11 (6), 651-664 (2013).
- Yu, D. H., Qu, C. K., Henegariu, O., Lu, X., Feng, G. S. Protein-tyrosine phosphatase Shp-2 regulates cell spreading, migration, and focal adhesion. J Biol Chem. 273 (33), 21125-21131 (1998).
- Kramer, M. F., Coen, D. M. Enzymatic amplification of DNA by PCR: standard procedures and optimization. Curr Protoc Cell Biol. 10, 1-14 (2001).
- Sandhu, G. S., Precup, J. W., Kline, B. C. Rapid one-step characterization of recombinant vectors by direct analysis of transformed Escherichia coli colonies. Biotechniques. 7, 689-690 (1989).
- Tsygankov, D., et al. CellGeo: A computational platform for the analysis of shape changes in cells with complex geometries. J Cell Biol. 204 (3), 443-460 (2014).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9, 671-675 (2012).
- Ray, A. -M., Klomp, J. E., Collins, K. B., Karginov, A. V. Dissecting kinase effector signaling using the RapRTAP methodology. Kinase Signaling Networks. Tan, A. -C., Huang, P. H. , Springer. New York, NY. 21-33 (2017).
- Mercan, F., Bennett, A. M. Analysis of protein tyrosine phosphatases and substrates. Curr Protoc Mol Biol. 18, Unit 18.16 (2010).
- Karginov, A. V., et al. Light regulation of protein dimerization and kinase activity in living cells using photocaged rapamycin and engineered FKBP. J Am Chem Soc. 133 (3), 420-423 (2011).
- Karginov, A. V., Hahn, K. M., Deiters, A. Optochemical activation of kinase function in live cells. Methods Mol Biol. 1148, 31-43 (2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
