Testy wzrostu neurytów dostarczają ilościowej wartości na temat regeneracyjnych procesów neuronalnych. Zaletą tego półautomatycznego oprogramowania jest to, że segmentuje ciała komórek i neuryty oddzielnie, tworząc maskę i mierzy różne parametry, takie jak długość neurytów, liczba punktów rozgałęzień, obszar klastra komórka-ciało i liczba klastrów komórek.
Artykuł metodologiczny
Standaryzacja nowatorskiego półautomatycznego oprogramowania do pomiaru przyrostu neurytów
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Skuteczne techniki obrazowania na żywo są kluczowe do oceny morfologii neuronów w celu zmierzenia wzrostu neurytów w czasie rzeczywistym. Prawidłowy pomiar wzrostu neurytów od lat stanowi wyzwanie w dziedzinie badań neurobiologicznych. Parametr ten służy jako kamień węgielny w wielu konfiguracjach eksperymentalnych in vitro, począwszy od kultur zdysocjowanych i kultur organotypowych, a skończywszy na liniach komórkowych. Określając ilościowo długość neurytów, można określić, czy określone leczenie zadziałało, czy też regeneracja aksonów jest wzmocniona w różnych grupach eksperymentalnych. Celem tego badania jest wykazanie solidności i dokładności oprogramowania do analizy wzrostu neurytów Incucyte Neurotrack. To półautomatyczne oprogramowanie jest dostępne w systemie mikroskopii poklatkowej, który oferuje kilka zalet w porównaniu z powszechnie stosowanymi metodologiami w zakresie ilościowego określania długości neurytów w obrazach z kontrastem fazowym. Algorytm maskuje i określa ilościowo kilka parametrów na każdym obrazie i zwraca metryki komórek neuronalnych, w tym długość neurytów, punkty rozgałęzień, klastry komórka-ciało i obszary klastrów komórka-ciało. Po pierwsze, sprawdziliśmy solidność i dokładność oprogramowania, korelując jego wartości z wartościami manualnej wtyczki NeuronJ, która została zainstalowana na Fidżi. Po drugie, zastosowaliśmy algorytm, który jest w stanie pracować zarówno na obrazach z kontrastem fazowym, jak i na obrazach immunocytochemicznych. Korzystając z określonych markerów neuronalnych, zweryfikowaliśmy wykonalność analizy wzrostu neurytów opartej na fluorescencji na neuronach czuciowych w kulturach in vitro. Dodatkowo oprogramowanie to może mierzyć długość neurytów w różnych warunkach wysiewu, od pojedynczych komórek po złożone sieci neuronowe. Podsumowując, oprogramowanie stanowi innowacyjną i efektywną czasowo platformę do oznaczania wzrostu neurytów, torując drogę do szybszych i bardziej wiarygodnych pomiarów ilościowych.
Wprowadzenie
W nerwach kulszowych można zmierzyć regenerację aksonów1. Ponadto badania in vitro wykazały możliwość monitorowania wyrostka aksonalnego2,3 w celu zrozumienia jego różnych faz, od kiełkowania aksonów po zwyrodnienie aksonów, zarówno w zdrowych, jak i uszkodzonych neuronach. Śledząc te procesy, można mierzyć takie parametry, jak polaryzacja aksonów, inicjacja, stabilność i rozgałęzienie. Ostatni parametr jest kluczowy dla zrozumienia percepcji bólu neuropatycznego4,5,6. Podobnie, zwyrodnienie aksonów może być monitorowane in vivo7 lub in vitro8,9. Podczas rozrostu neurytów sieci cytoszkieletu aktyny i mikrotubul stabilizują się lub zmieniają zgodnie z potrzebami komórki10. Cytoszkielet aktynowy reorganizuje się, aby umożliwić tworzenie aksonalnego stożka wzrostu, a mikrotubule ponownie ustawiają się w wiązki, aby ustabilizować rosnący neurite11. W celu zbadania wzrostu neurytów neuronów centralnych i obwodowych in vitro określa się ilościowo trzy wspólne parametry: całkowitą długość aksonów, maksymalną odległość i punkty rozgałęzień. Parametry te są wykorzystywane do badania odpowiedzi neuronalnej na leczenie (tj. neurotrofiny, związki, inhibitory, kwas retinowy, siRNA, shRNA) lub u zwierząt modyfikowanych genetycznie12,13,14. Aby ocenić, czy neurony mają bardziej wydłużone neuryty i/lub więcej rozgałęzień, te trzy parametry pozwalają nam ocenić morfologię neuronu. Pomiar długości neurytów jest parametrem o największym zainteresowaniu w kilku konfiguracjach eksperymentalnych in vitro. Ze zwojów korzenia grzbietowego wykonuje się głównie dwa rodzaje hodowli: zdysocjowaną hodowlę in vitro lub organotypową hodowlę całych eksplantatów DRG. W obu przypadkach długość neurytów jest złotym parametrem do oceny wyniku eksperymentu. W linii komórkowej podobnej do neuronu ruchowego (NSC-34) wzrost i rozgałęzienie aksonów są mierzone po różnicowaniu indukowanym przez kwas retinowy15,16. W rzeczywistości, mierząc przerost neurytów, można określić, czy określone leczenie zadziałało17, tempo wzrostu18, czy zdolność regeneracji po zabiegu urazu19.
Jak prawidłowo ocenić wzrost neurytów, na przestrzeni lat postawiło przed nami wiele wyzwań w dziedzinie badań. Nie ma jednak standaryzacji pomiarów długości neurytów. Niektóre z najczęściej stosowanych metod hodowli komórkowych in vitro to na przykład ręczna wtyczka NeuronJ na Fiji18,20 lub MetaMorph21,23 i półautomatyczna Neurolucida23,24. Oprócz metodologii manualnych istnieją również metody automatyczne, takie jak wtyczka NeuriteTracer na Fiji25, oprogramowanie HCA Vision26,27 lub WIS-NeuroMath2,28. Inne, mniej dokładne metodologie opierają się na pomiarze całkowitego wymiaru neuronów. Metody te obejmują pomiar odległości wektora od ciała komórki do wierzchołka najdłuższego aksonu29 lub analizę Sholla30. Jednak te metody pomiaru są odpowiednie dla kultur o bardzo niskiej gęstości lub pojedynczych neuronów. Co więcej, wszystkie te metodologie są stosowane głównie na barwionych neuronach lub neuronach, które wyrażają genetycznie kodowane fluorofory (tj. GFP, Venus, mCherry). Rodzaj neuronu i gęstość hodowli komórkowej mają duży wpływ na wybór metodologii pomiaru. Na przykład ręczna segmentacja neuronów o bardzo zawiłych i skomplikowanych morfologiach, takich jak neurony DRG, może łatwo stać się zadaniem niemożliwym. O ile splątane neurony są już wyzwaniem do segmentacji, o tyle sieci neuronowe są całkowicie poza zasięgiem metod manualnych ze względu na ich bardzo złożoną organizację.
Z jednej strony, ręczna segmentacja jest bardzo precyzyjna, ponieważ jest wykonywana przez ludzkie oko i inteligencję; z drugiej strony, jest naprawdę czasochłonna. Główną wadą jest zwiększony nakład czasu wymagany metodami ręcznymi. Z tego powodu tylko kilka neuronów jest pozyskiwanych do analizy, co czyni ją mniej dokładną i kosztowną pod względem czasu. Z drugiej strony podejścia automatyczne lub półautomatyczne częściowo zmniejszają nakład czasu. Mają jednak również pewne wady. Metody automatyczne muszą zostać przeszkolone, aby działały poprawnie, a jeśli oprogramowanie nie jest wystarczająco interaktywne z użytkownikiem, segmentacja może być błędna.
Oprócz pomiaru rozrostu neurytów, liczba punktów rozgałęzień jest również cenną informacją. Przy ręcznej segmentacji można obliczyć liczbę punktów rozgałęzienia, podczas gdy nie jest to możliwe w przypadku odległości wektorowej. W przypadku metod automatycznych zwykle podaje się liczbę punktów rozgałęzienia, podczas gdy w przypadku analizy Sholla należy ją obliczyć za pomocą wzoru matematycznego.
W tym artykule metodycznym staramy się opisać funkcjonalność i skuteczność tego półautomatycznego oprogramowania do pomiaru całkowitej długości aksonów i innych parametrów. Maszyna pozwala na automatyczną akwizycję obrazów w zdefiniowanych punktach czasowych lub na prowadzenie długotrwałych badań (dni, tygodnie, miesiące), z zachowaniem fizjologicznego środowiska dla żywych komórek. Pomiar wzrostu neurytów za pomocą obrazowania poklatkowego z kontrastem fazowym ma tę zaletę, że umożliwia ciągłe monitorowanie kinetyki i wzrostu neurytów. Dodatkowo możliwe jest również monitorowanie śmierci komórki poprzez dodanie do pożywki określonych barwników, które celują w martwe komórki31,32,33. Chociaż oprogramowanie zostało wydane w 2012 roku, jesteśmy pierwszymi, którzy ustandaryzowali tę metodologię w powtarzalny i bezstronny sposób w celu dokładnej kwantyfikacji wzrostu neurytów. Należy jednak pamiętać, że oprogramowanie nie jest dołączone do zakupu maszyny. Pomimo tych dodatkowych kosztów, jego zastosowanie oferuje znaczące korzyści w pomiarze całkowitej długości aksonów i innych parametrów, przyczyniając się tym samym do badań w dziedzinie neuronauki.
Protokół
1. Skanowanie naczynia na maszynie
UWAGA: Wykrywanie odbywa się za pomocą wbudowanej kamery Basler Ace 1920-155 μm.
- Otwórz program, klikając Połącz z urządzeniem i wybierając Harmonogram - Do pobrania. Następnie kliknij znak +.
- Określ, czy statek będzie skanowany wielokrotnie, czy tylko 1 raz, wybierając odpowiednio opcję Skanuj zgodnie z harmonogramem lub Skanuj raz teraz.
- Wybierz opcję Nowy, aby utworzyć zupełnie nowe naczynie do skanowania. Jeśli nowy statek nie zostanie dodany, utwórz nowy skan, korzystając z jednej z opcji opisanych poniżej.
- Wybierz opcję Kopiuj bieżący, aby utworzyć nowy statek, kopiując statek z bieżącego harmonogramu. Wybierz opcję Kopiuj poprzednio, aby utworzyć nowe naczynie, kopiując poprzednio zeskanowane naczynie.
- Wybierz opcję Dodaj skanowanie, aby przywrócić poprzednio zeskanowane naczynie w celu uzyskania dodatkowych skanów.
- Wybierz typ skanowania w zależności od testu i aplikacji. Na potrzeby analizy wybierz opcję Standardowa.
- Określ ustawienia skanowania. Wybierz jedną z opcji Komórka po komórce, Brak, Przylegająca komórka po komórce lub Nieprzylegająca komórka po komórce, i określ kanały obrazu w zależności od użytych cząsteczek fluorescencyjnych. Wybierz opcję Brak dla hodowli dorosłych i embrionalnych neuronów czuciowych. W przypadku linii komórkowych wybierz opcję Brak lub Przylegająca komórka po komórce.
- Wybierz obiektyw mikroskopu (4x, 10x, 20x). Nabywaj przy większym powiększeniu (20x) w hodowlach pierwotnych, podczas gdy w liniach komórkowych wystarczy 10x.
- Wybierz typ naczynia do skanowania z dostępnych opcji. Wskaż położenie naczynia w szufladzie, wybierając jego położenie na wirtualnej mapie szuflady.
- Określ wzorzec skanowania dla akwizycji obrazu, wybierając dołki do skanowania. Wybierz żądaną liczbę obrazów na dołek. Pojawi się szacunkowy czas trwania skanowania.
- Podaj informacje o statku, wpisując nazwę i określ tablicę rejestracyjną, klikając znak +.
- Kliknij Dalej. Wybierz Typ analizy i kliknij przycisk Dalej. Pojawi się ekran podsumowania wybranych opcji. Jeśli to prawda, kliknij Skanuj teraz, a skanowanie się rozpocznie.
2. Konfiguracja do analizy obrazu z kontrastem fazowym
UWAGA: Analiza Neurotrack może być wykonywana tylko na obrazach wcześniej pozyskanych przez maszynę.
- Wybierz zeskanowane naczynie do analizy. Wybierz pozycję Launch Analysis (Uruchom analizę). Wybierz opcję Utwórz nową definicję analizy.
- Wybierz Neurotrack. Wybierz opcję Image Channels (Kanały obrazów). Wybierz reprezentatywny zestaw obrazów, na których chcesz przeprowadzić analizę. Wybierz wszystkie obrazy dla każdej studzienki, aby wytrenować algorytm.
- Uściślij ustawienia definicji analizy, dostosowując następujące parametry.
UWAGA: Domyślnie neuryty są podzielone na segmenty w kolorze karmazynowym, podczas gdy ciała komórek są w kolorze żółtym. Możliwa jest dowolna modyfikacja kolorów.- W przypadku segmentacji klastrów komórka-ciało dostosuj następujące elementy, jak opisano poniżej.
- Tryb segmentacji: Segmentacja obrazów odbywa się w celu odróżnienia ciał komórek od tła i neurytów. Wybierz pomiędzy Jasnością a Teksturą. W przypadku kultur podstawowych i linii komórkowych wybierz tryb jasności.
- Regulacja segmentacji: Użyj suwaka, aby dostosować czułość segmentacji w kierunku większej ilości tła lub większej liczby komórek. Mieści się w zakresie od 0 (tło) do 2 (komórki). Zwiększa lub zmniejsza rozmiar żółtej maski. Przesuń suwak w kierunku 0 (Tło), aby rozmiar żółtej maski stopniowo się zmniejszał, pozostawiając miejsce na maskę magenta. Odwrotna sytuacja ma miejsce, gdy suwak zostanie przesunięty w kierunku 2 (Komórki).
- W celu oczyszczenia dostosuj następujące czynności zgodnie z poniższym opisem.
- Wypełnienie otworu (μm2): Dostosuj to, aby usunąć wszelkie otwory w masce ciała komórki mniejsze niż obszar określony przez użytkownika.
- Dostosuj rozmiar (piksele): Zwiększ (jeśli jest dodatnia) lub zmniejszona (jeśli jest ujemna) żółtą maskę o określoną liczbę pikseli. Waha się od -10 do +10. Dostosuj to, aby dodać lub usunąć żółtą segmentację na obiektach o wysokim kontraście, takich jak martwe komórki i szczątki komórkowe.
- Minimalna szerokość komórki (μm): Wybierz wartość, aby określić rozmiar, przy którym ciała komórek będą uważane za neuryty.
- W przypadku filtrów klastrów ciała komórki dostosuj następujące elementy zgodnie z poniższym opisem.
- Obszar (μm2): Ustaw minimalną i maksymalną wartość obszaru ciała komórki. Wartości powyżej i poniżej ustawionych wartości nie będą traktowane jako obiekty komórek.
- W przypadku parametrów neurytów dostosuj następujące elementy, jak opisano poniżej.
- Filtrowanie: Zmniejsza maskowanie drobnych niedoskonałości naczyń i zanieczyszczeń. Wybierz jedną z opcji Brak, Lepsza i Lepsza. Wybierz Brak tylko dla bardzo czystych kultur i naczyń. Wybierz opcję Lepsza, aby uzyskać szybsze przetwarzanie kosztem utraty wykrywania bardzo drobnych neurytów. Może to być wystarczające dla komórek z grubymi lub wysoce kontrastowymi neurytami; Może być również przydatny w przypadku naczyń z wieloma niedoskonałościami lub zanieczyszczeniami. Wybierz opcję Najlepszy dla dłuższego czasu przetwarzania, ale jest to najbardziej czułe ustawienie filtra, aby zapewnić wykrywanie bardzo drobnych neurytów.
- Czułość neurytu: Służy do regulacji czułości wykrywania. Zwiększ czułość wykrywania drobniejszych neurytów. Waha się od 0,25 (mniej) do 0,75 (więcej).
UWAGA: Zwiększa lub zmniejsza czułość oprogramowania na rozpoznawanie neurytów. Jeśli suwak zostanie przesunięty w kierunku 0,25 (mniej), oprogramowanie będzie bardziej rygorystyczne w rozpoznawaniu neurytów. Zamiast tego, jeśli suwak zostanie przesunięty w kierunku 0,75 (więcej), oprogramowanie będzie mniej rygorystyczne w tym wykrywaniu, a zatem więcej niedoskonałości (tj. Szczątki komórek, brud) zostanie uznanych za neuryty. - Szerokość neurytu (μm): Użyj go, aby dostroić detekcję do rozmiaru neuronów. Może to być 1, 2 lub 4. Zwiększając go, cieńsze neuryty nie będą brane pod uwagę. Ustaw wartość 1 dla pierwotnych hodowli dorosłych neuronów czuciowych i 2 dla linii komórkowych i embrionalnych kultur neuronów czuciowych.
- W przypadku segmentacji klastrów komórka-ciało dostosuj następujące elementy, jak opisano poniżej.
- Kliknij opcję Podgląd bieżący, aby wyświetlić obraz podzielony na segmenty. Dla każdego obrazu zostaną podane następujące pomiary: długość neurytu (mm/mm2), punkty rozgałęzień neurytów (na mm2), klastry komórka-ciało (na mm2) i obszar klastra komórka-ciało (mm2 / mm2).
- Powtórz kroki 2.3 i 2.4 dla wszystkich wybranych obrazów. Kliknij Dalej.
- Wybierz Czas skanowania i dobrze do analizy. Przypisz nazwę definicji i, w razie potrzeby, uwagi do analizy. Kliknij przycisk Dalej> zakończ.
3. Konfiguracja do analizy obrazu immunocytochemii (ICC)
- Wykonaj te same kroki, które zostały zilustrowane od 2.1 do 2.4. Wybierz kanały obrazu dla neurytów i jąder. Wybierz zestaw obrazów; wybierz Wszystkie obrazy dla każdej studni, aby wytrenować algorytm.
- Uściślij ustawienia definicji analizy, dostosowując następujące parametry zgodnie z poniższym opisem.
UWAGA: Domyślnie neuryty są podzielone na segmenty na niebiesko, podczas gdy ciała komórek są fioletowe. Kolory można jednak dowolnie modyfikować.- Segmentacja klastrów komórka-ciało: Użyj tej opcji, aby podzielić obraz na interesujące obiekty. Oszacuj jasność tła w każdym pikselu obrazu. Po znalezieniu tła wykonaj jedną z następujących opcji.
- Brak odejmowania tła: Użyj tej opcji, aby podzielić na segmenty bez zmieniania oryginalnego obrazu. Wybierz opcję Próg adaptacyjny lub Stały. Adaptacyjne: tło służy do znajdowania obiektów, ale nie jest jawnie odejmowane; Dzięki tej opcji możliwe jest ustawienie korekty progu (GCU). Stały próg: obiekty, które są jaśniejsze niż ten próg, są wykrywane na oryginalnym obrazie; dzięki tej opcji możliwe jest ustawienie progu (GCU).
- Odejmowanie tła: Użyj tej opcji, aby odjąć tło od obrazu za pomocą transformacji Top-Hat, a następnie zastosować do niego próg. Za pomocą tej opcji ustaw Promień i Próg. Promień: używany jest dysk o tym promieniu; Dysk powinien być na tyle duży, aby nie mieścił się całkowicie w żadnym obiekcie na obrazie. Próg: obiekty, które są jaśniejsze niż ten próg, są wykrywane na obrazie odejmowanym od tła.
- Oczyszczanie: Użyj następującej opcji, aby to zrobić.
- Wypełnienie otworu (μm2): Użyj tego, aby usunąć wszelkie otwory w masce ciała komórki, które są mniejsze niż określony obszar.
- Dostosuj rozmiar (piksele): Użyj tej opcji, aby zwiększyć (jeśli jest dodatnia) lub zmniejszyć (jeśli jest ujemna) fioletową maskę o określoną liczbę pikseli. Zakres wynosi od -10 do +10. Dodaje lub usuwa kolor fioletowy na obiektach o wysokim kontraście, takich jak martwe komórki i szczątki komórkowe.
- Minimalna szerokość komórki (μm): Użyj tego, aby określić rozmiar, przy którym ciała komórek będą uważane za neuryty.
- Filtry klastrów komórka-treść: Użyj następującej opcji, aby zastosować filtry.
- Obszar (μm2): Ustaw minimalną i maksymalną wartość obszaru ciała komórki. Wartości powyżej i poniżej ustawionych wartości nie będą traktowane jako obiekty komórek.
- Parametry neurytu: Użyj następującej opcji, aby je ustawić.
- Czułość zgrubna neurytu: Użyj tego, aby dostosować jasność neurytu. Czułość powinna być zwiększona, jeśli intensywność fluorescencji neurytów jest niska. Waha się od 0 (mniej) do 10 (więcej). Zwiększa lub zmniejsza czułość oprogramowania na rozpoznawanie mniej jasnych neurytów. Optymalne wartości mieszczą się w zakresie od 7 do 10; Zauważ, że jeśli jest ustawiony na 10, jest bardzo prawdopodobne, że w pomiarze neurytów zostanie uwzględnione również tło.
- Czułość Neurite fine: Użyj tego, aby dostosować czułość wykrywania. Należy zwiększyć czułość, aby wykryć drobniejsze neuryty. Waha się od 0,25 (mniej) do 0,75 (więcej). Zwiększa lub zmniejsza czułość oprogramowania do rozpoznawania drobnych i mniej jasnych neurytów. Jeśli suwak zostanie przesunięty w kierunku 0,25 (mniej), oprogramowanie nie uwzględni słabych neurytów. Zamiast tego, jeśli suwak zostanie przesunięty w kierunku 0,75 (więcej), oprogramowanie wykryje również bardzo słabe (prawie tło) neuryty.
- Szerokość neurytu (μm): Użyj tego, aby dostroić detekcję do rozmiaru neuronów. Może to być 1, 2 lub 4. Zwiększając go, cieńsze neuryty nie będą brane pod uwagę. Ustaw go na 1 dla pierwotnych hodowli dorosłych neuronów czuciowych, na 2 dla linii komórkowych i embrionalnych neuronów czuciowych.
- Segmentacja klastrów komórka-ciało: Użyj tej opcji, aby podzielić obraz na interesujące obiekty. Oszacuj jasność tła w każdym pikselu obrazu. Po znalezieniu tła wykonaj jedną z następujących opcji.
4. Eksport danych
- Otwórz analizę. Kliknij Metryki wykresu.
- Wybierz metrykę, punkty czasowe i studnie, które Cię interesują.
- Wybierz opcję grupowania między kolumnami, Brak, Kolumny, wiersze i Replikaty mapy tablic .
- Kliknij Eksportuj dane i wybierz folder docelowy oraz, jeśli to konieczne, inne opcje. Zostanie utworzony plik .txt.
UWAGA: Maszyna poda pojedynczą średnią wartość wybranej metryki dla każdego dołka. Podczas analizy wymagana jest ręczna adnotacja w celu pobrania pojedynczych wartości obrazu.
5. Eksport obrazu
- Otwórz naczynie. Kliknij Eksportuj obrazy i filmy.
- Wybierz typ eksportu obrazów.
- Wybierz opcję As Displayed (Wyświetlano), aby eksportować obrazy w takiej postaci, w jakiej są wyświetlane. Kliknij przycisk Dalej i wybierz interesujące obrazy do eksportu. Kliknij Dalej.
- Wybierz typ sekwencji między pojedynczym filmem lub serią obrazów a interesującymi punktami w czasie. Kliknij Dalej.
- Dostosuj opcje eksportu zgodnie z potrzebami i kliknij przycisk Dalej. Ustaw folder wyjściowy, format pliku i nazwę pliku, a następnie kliknij przycisk Eksportuj.
- Wybierz opcję As Stored (Jako przechowywane), aby wyeksportować obrazy w formacie raw. Wybierz typ obrazu.
- Wybierz interesujące Cię punkty czasowe i studnie. Kliknij Dalej. Ustaw folder wyjściowy, format pliku i nazwę pliku, a następnie kliknij przycisk Eksportuj.
- Wybierz opcję As Displayed (Wyświetlano), aby eksportować obrazy w takiej postaci, w jakiej są wyświetlane. Kliknij przycisk Dalej i wybierz interesujące obrazy do eksportu. Kliknij Dalej.
- Eksport obrazów z maskami segmentacji
- Otwórz analizę. Kliknij ikonę warstw obrazu. Wybierz żądane maski kanałów (faza neurytu i faza komórka-ciało klaster ). Wykonaj czynności opisane w kroku 5.2.
Wyniki
Algorytm pomiaru wzrostu neurytów wykazuje wysoką skuteczność w wykrywaniu neurytów zarówno w sieciach neuronowych, jak i w pojedynczych neuronach. Generuje on żółtą maskę, która segmentuje obiekty o wysokim kontraście, takie jak ciała komórkowe, szczątki komórkowe, martwe komórki, eksplanty tkankowe oraz cienie. Dodatkowo na neurytach o różnej grubości pojawia się maska w kolorze magenta. Wartości długości neurytów są podawane w mm/mm2, co oznacza, że długość aksonów została podzielona przez pole powierzchni obrazu, które wynosi 0,282739 mm2 i jest stałe dla każdego warunku skanowania. W związku z tym, aby uzyskać rzeczywiste wartości długości neurytów w mm, liczby podane przez oprogramowanie należy pomnożyć przez pole powierzchni obrazu.
Metoda półautomatyczna a metoda manualna
Zastosowane oprogramowanie wykorzystuje metodologię półautomatyczną do pomiaru całkowitej długości aksonów. Aby ocenić dokładność oprogramowania, przeprowadziliśmy pomiary tych samych neuronów, stosując również metodę manualną z wykorzystaniem wtyczki NeuronJ. Jak pokazano na Rysunku 1, maska segmentacji neuronów jest bardzo podobna w obu metodach (Rysunek 1A).
Dodatkowo przeprowadziliśmy analizę statystyczną uzyskanych wartości w celu zbadania ich korelacji. Analiza korelacji Spearmana wykazała wysoki współczynnik r wynoszący 0,8526, co stanowi silny dowód na dokładność i precyzję algorytmu (Rysunek 1B). Automatyczny pomiar wymaga wysokich standardów jakości hodowli pod kątem czystości, gęstości i homogeniczności. Wyniki uzyskane za pomocą półautomatycznej segmentacji są powtarzalne i nie zależą od indywidualnej oceny. Brak obiektywnej powtarzalności jest problemem w przypadku metodologii manualnych.
Niekiedy mogą wystąpić błędy w segmentacji półautomatycznej, wynikające z różnych przyczyn. W obrazach w kontraście fazowym zanieczyszczenia w hodowli mogą zostać zidentyfikowane przez segmentację półautomatyczną jako neuryty. Ponadto obecność różnych typów komórek może zakłócać proces segmentacji. Takie problemy nie pojawiają się podczas segmentacji ręcznej, ponieważ jest ona wykonywana przez człowieka. Niemniej jednak, jeśli wystąpią takie problemy, można je rozwiązać, wykorzystując obrazy z immunocytochemii jako kontrolę.
Segmentacja neurytów
W przypadku pierwotnych kultur neuronów z zwojów korzeniowych tylnych (DRG) dorosłych osobników, optymalnym punktem wyjścia dla wiarygodnej analizy fazowej jest równomierne rozmieszczenie neuronów w studzience oraz czystość kultury. Jeśli podczas wysiewania wystąpią błędy i komórki skupią się w jednym miejscu, jak zilustrowano na Rysunku 2A-B, uzyskane wartości będą raczej szacunkowe niż precyzyjnym odzwierciedleniem rzeczywistości. W takich sytuacjach żółta maska pokryje większość neurytów znajdujących się między komórkami (Rysunek 2A-B), co doprowadzi do utraty pomiaru długości neurytów. Co więcej, oprogramowanie będzie wykazywać znaczące błędy w rozpoznawaniu neurytów i istnieje duże prawdopodobieństwo, że magenta maska pojawi się na obiektach, które nie są neurytami (Rysunek 2D). Na optymalnym obrazie przy powiększeniu 20x powinno znajdować się maksymalnie 15 neuronów.
Gdy neurony są prawidłowo wysiane, a hodowla jest czysta, co zilustrowano na Rysunku 3A-B, zaleca się przesunięcie suwaka segmentacji w stronę tła (0.5 - 0.7; Rysunek 3C). Pomaga to zredukować żółty komponent, który pojawia się na obiektach o wysokim kontraście na obrazie, takich jak punkty rozgałęzień, które powinny być w kolorze magenta. Ponadto, jeśli neuryty są wyraźne, czułość neurytów w zakresie od 0.4 do 0.5 powinna być wystarczająca, aby objąć większość z nich (Rysunek 3C-D).
Inną powszechną sytuacją, która może wystąpić, jest zanieczyszczona hodowla z licznymi fragmentami debris komórkowego i martwymi komórkami, co pokazano na Rysunku 4A-B. W takich warunkach występuje wiele obiektów o wysokim kontraście. Dlatego zaleca się zwiększenie rozmiaru żółtej maski poprzez przesunięcie suwaka segmentacji w stronę komórki lub zwiększenie parametru adjust size (+1, +2 itd.; Rysunek 4C). Niemniej jednak, warto również nieco zmniejszyć czułość neuritów (neurite sensitivity), aby zapobiec błędnemu identyfikowaniu przez oprogramowanie obiektów, które nie są neurytami, jako takich (Rysunek 4C-D).
Niekiedy neuryty mogą wydawać się bardzo cienkie i blade, jak pokazano na Ryc. 5A-B, co stanowi wyzwanie dla oprogramowania w zakresie ich dokładnej segmentacji (Ryc. 5D). W takim przypadku zaleca się zwiększenie czułości neurytów do wartości co najmniej 0,6 (Ryc. 5C). Należy jednak pamiętać, że im wyższa czułość, tym większa jest prawdopodobieństwo, że oprogramowanie błędnie oznaczy obiekty niebędące neurytami jako takie (Ryc. 5D). Można podjąć pewne środki ostrożności, aby zapobiec zbyt dużemu wzrostowi błędu czułości, na przykład poprzez przesunięcie suwaka segmentacji w stronę komórek. Jeśli jednak neuryty są zbyt cienkie, aby oprogramowanie mogło je wykryć, wartości długości neurytów i tak będą obarczone błędem.
W przypadku obrazów z immunocytochemii głównym problemem jest tło. Poza warunkami wysiewania, do których stosują się wspomniane wcześniej zasady, podstawowym źródłem błędu jest sama fluorescencja. Oprogramowanie skutecznie rozpoznaje bardzo jasne neuryty, podczas gdy cieńsze neuryty o mniejszym natężeniu są pomijane (Rycina 6A-B). Aby zapobiec utracie długości neurytów, można zwiększyć czułość dokładną (fine sensitivity) neurytów do poziomu 0,75 (Rycina 6C). Zaleca się jednak zdecydowanie zmniejszenie czułości wstępnej (coarse sensitivity) neurytów do wartości co najmniej 8-9, aby zapobiec nadmiernemu błędowi detekcji wynikającemu z uwzględniania neurytów w tle (Rycina 6C-D). Jeśli ta druga wartość nie zostanie zmniejszona, całe tło zostanie poddane segmentacji, co przedstawiono na Rycinie 7.
Powszechnym problemem podczas akwizycji fluorescencji jest rozproszenie światła. Często obrazy z immunocytochemii wykazują odblaski, które znacząco wpływają na jakość i precyzję analizy (Rycina 8A-B). W takiej sytuacji możliwości poprawy analizy są ograniczone, a uzyskane wartości będą w większym stopniu jedynie szacunkowe. Rozproszenie światła zakłóca rozpoznawanie neurytów, przez co wykrywane są tylko bardzo jasne neuryty (Rycina 8C-D). Kolejnym problemem w obrazach immunocytochemicznych jest sama jakość barwienia. Często w wyniku błędów ludzkich aksony mogą zostać przerwane (Rycina 9A), a ciała komórek mogą zostać oderwane podczas płukania (Rycina 9B). Błędy te stanowią krytyczny problem, ponieważ wartości długości neurytów tracą na precyzji i dokładności. W konsekwencji interpretacja danych biologicznych ulega zmianie, co prowadzi do błędnych wniosków.
W przypadku kultur embrionalnych sytuacja wygląda inaczej. W tym typie hodowli przeważa obecność komórek glejowych. W konsekwencji liczba błędów znacznie wzrasta, ponieważ oprogramowanie wykrywa również obrysy komórek glejowych (Rycina 10A-B). Aby zminimalizować ten problem, suwak segmentacji należy przesunąć w stronę komórek, zazwyczaj do wartości około 1,7-2 (Rycina 10C-D). Takie podejście zapewnia, że większość komórek glejowych zostanie pokryta żółtą maską, a tym samym nie zostanie uwzględniona w pomiarze długości neurytów. Inną przydatną wskazówką jest utrzymanie szerokości neurytów na poziomie 2, ponieważ neurony embrionalne w kulturze zazwyczaj wykazują kształty bipolarne lub unipolarne z grubymi neurytami (Rycina 10C-D). Środek ostrożności ten pozwala odfiltrować większość obrysów komórek glejowych, które zazwyczaj są bardzo cienkie. Na koniec należy uważać, aby nie zwiększać zbyt mocno czułości neurytów; w przeciwnym razie to, co zostało odfiltrowane przez parametr szerokości neurytów, zostanie ponownie uwzględnione w pomiarze długości neurytów.
W przypadku kultur embrionalnych, w których przeważa komponent komórek glejowych, lepszą opcją może być immunocytochemia. Dzięki specyficznemu barwieniu neuronów problem segmentacji gleju zostaje rozwiązany, ponieważ glej nie zostanie zabarwiony, co czyni analizę znacznie łatwiejszą i dokładniejszą (Rycina 11).
Wreszcie, oprogramowanie to może być wykorzystane do oceny programu różnicowania linii komórkowych i/lub iPSC w celu oceny stanu ich wzrostu. Zatem zastosowanie podobnych parametrów i środków ostrożności może służyć różnym celom.
W odniesieniu do procesu różnicowania, odporność oprogramowania została potwierdzona w linii komórkowej NSC-34 (hybrydowej linii komórkowej składającej się z komórek neuroblastoma myszy i motoneuronów pochodzących z rdzenia kręgowego embrionów myszy) podczas dojrzewania do komórek przypominających motoneurony. W przypadku pierwotnych kultur z zwojów korzeni grzbietowych (DRG), optymalnym punktem wyjścia dla rzetelnej analizy jest jednorodne wysiewanie komórek. Komórki nieróżnicowane oraz różnicowane, poddane działaniu kwasu retinowego, mogą być śledzone poprzez akwizycje obrazów przez cały okres hodowli lub, jak pokazano na Rysunku 12, w ostatnim punkcie czasowym.
W rzeczywistości, oprócz długości neurytów, algorytm dostarcza również parametru punktów rozgałęzień. Należy jednak zauważyć, że parametr punktów rozgałęzień nie reprezentuje dokładnej liczby punktów rozgałęzień; wskazuje on raczej gęstość rozgałęzień na obrazie, wyrażoną w mm/mm2. Pomiar ten jest w znacznym stopniu zależny od obecności zanieczyszczeń w hodowli oraz stężenia wysiewu. Z tego powodu gęstość neuronów na obrazie i czystość hodowli są kluczowymi czynnikami pozwalającymi na uzyskanie wiarygodnych wartości. Jeśli w hodowli znajduje się wiele szczątków komórkowych, których nie odfiltrowano za pomocą żółtej maski, zostaną one uwzględnione zarówno w pomiarze długości neurytów, jak i w pomiarze punktów rozgałęzień.
W związku z tym zaleca się normalizację tych wartości względem liczby komórek, ponieważ liczba neuronów na obrazie wpływa na pomiary długości neurytów i punktów rozgałęzień.
Segmentacja ciał komórkowych
Wśród wszystkich parametrów dostarczanych przez system znajdują się klastry ciał komórkowych oraz obszar klastrów ciał komórkowych. Jednak te dwa parametry nie są wiarygodne jako wartości do liczenia komórek. Jak pokazano na Rysunku 4, oprogramowanie segmentuje obiekty o wysokim kontraście w żółtej masce, w tym cienie spowodowane ruchem medium w studzience. Ponadto segmentuje ono również martwe komórki i szczątki komórkowe (Rysunek 4). Aby uzyskać wiarygodną liczbę rosnących neuronów, można zastosować metodę ręczną, taką jak narzędzie Cell Counter w programie Fiji (Rysunek 13).
Podsumowanie sugerowanych parametrów analizy w zależności od rodzaju hodowli przedstawiono w Tabeli 1 dla obrazów w kontraście fazowym oraz w Tabeli 2 dla obrazów immunocytochemicznych. Ponadto, w Tabeli 3 znajduje się zestawienie sugerowanych parametrów analizy w celu rozwiązania konkretnych problemów.

Rysunek 1Analiza korelacji między manualną a półautomatyczną segmentacją neurytów. (A) Po lewej stronie znajduje się reprezentatywny obraz fazowy neuronu poddanego segmentacji za pomocą wtyczki NeuronJ w programie Fiji. Po prawej stronie znajduje się reprezentatywny obraz fazowy neuronu poddanego segmentacji przy użyciu oprogramowania półautomatycznego. (B) Prostą regresję liniową przeprowadzoną na 20 neuronach przeanalizowano przy użyciu metod manualnych i półautomatycznych. Współczynnik korelacji Spearmana r = 0,8526, p**** < 0,0001. Obrazy uzyskano 48 h po wysianiu. Powiększenie 20x. Pasek skali, 50 µmRysunek został wykonany w programie BioRender. Prosimy kliknąć tutaj, aby wyświetlić większą wersję tej figury.
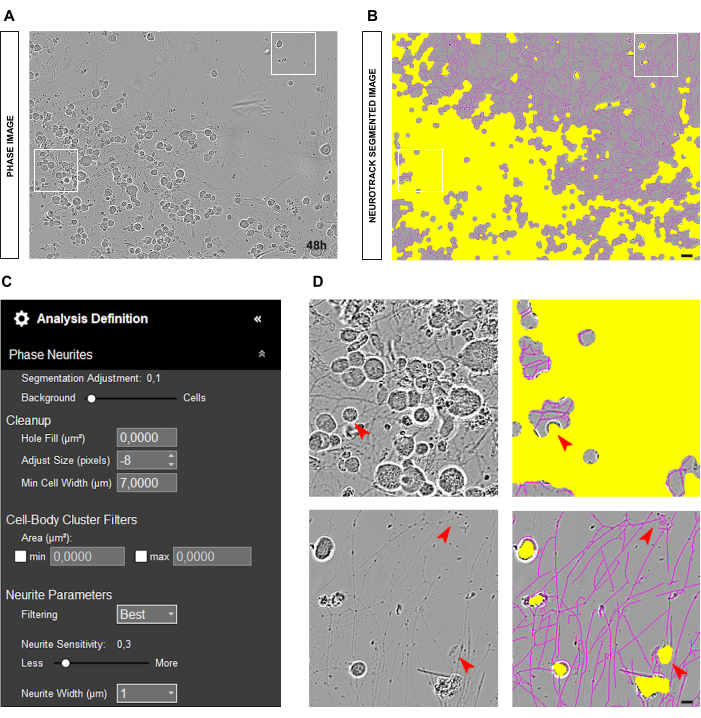
Rysunek 2: Błąd wysiewu w kulturze dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz w kontraście fazowym przedstawiający błąd wysiewu. (B) Reprezentatywny obraz po automatycznej segmentacji. Żółta maska segmentuje ciała komórek, a purpurowa maska segmentuje neuryty. (C) Ilustracyjne parametry definicyjne analizy wzrostu neurytów. (D) Górny panel: powiększenie błędu segmentacji ciał komórek (żółta maska) wynikającego z agregacji ciał komórkowych. Dolny panel: powiększenie błędu segmentacji neurytów (purpurowa maska) spowodowanego obecnością debris komórkowego. Obrazy zarejestrowano 48 h po wysiewie. Powiększenie 20x. Pasek skali, 50 µm. Rysunek został przygotowany w programie BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 3: Optymalna hodowla dorosłych neuronów sensorycznych do analizy wzrostu neurytów. (A) Reprezentatywny obraz w kontraście fazowym przedstawiający optymalne warunki wysiewu do analizy wzrostu neurytów. (B) Reprezentatywny obraz po automatycznej segmentacji. Żółta maska segmentuje ciała komórkowe, a magenta maska segmentuje neuryty. (C) Ilustracyjne parametry definicyjne analizy wzrostu neurytów. (D) Powiększenie segmentacji ciała komórkowego (żółta maska) i segmentacji neurytów (magenta maska). Obrazy sfilmowano 48 h po wysiewie. Powiększenie 20x. Pasek skali, 50 µm. Rycina została stworzona za pomocą BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
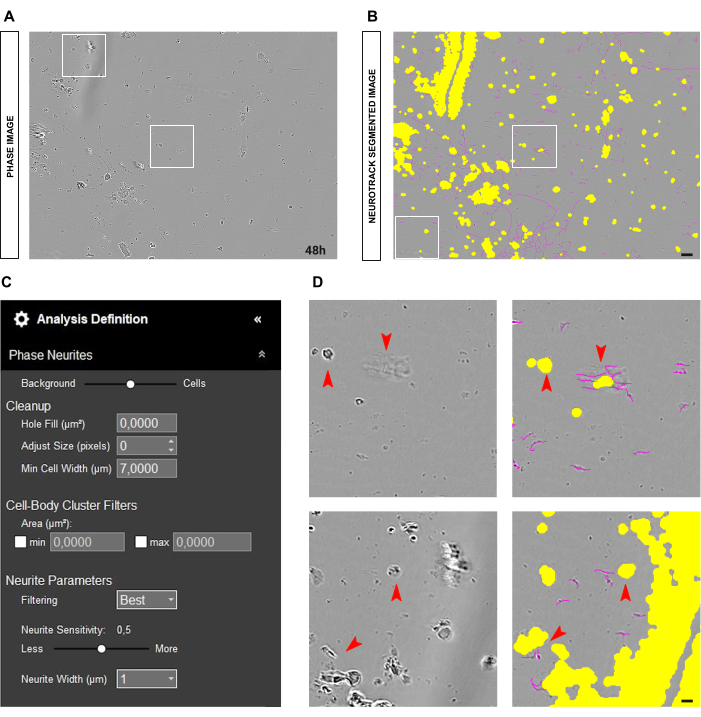
Rycina 4: Elementy zakłócające analizę wzrostu neurytów w hodowli dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz w fazokontraście przedstawiający debris komórkowy oraz cienie powstałe w wyniku ruchów medium. (B) Reprezentatywny obraz po automatycznej segmentacji. Żółta maska segmentuje ciała komórek, magenta maska segmentuje neuryty. (C) Ilustracja parametrów definiujących analizę wzrostu neurytów. (D) Powiększenie błędu segmentacji ciała komórki (żółta maska) i segmentacji neurytów (magenta maska) spowodowanego debris komórkowym i cieniami ruchomego medium. Obrazy wykonano 48 h po wysiewaniu. Powiększenie 20x. Pasek skali, 50 µm. Rycina została stworzona w programie BioRender. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rycina 5: Cienkie neuryty w analizie wzrostu neurytów w hodowli dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz w kontraście fazowym neuronów charakteryzujących się bardzo cienkimi neurytami. (B) Reprezentatywny automatycznie segmentowany obraz. Żółta maska segmentuje ciała komórek, magenta maska segmentuje neuryty. (C) Ilustracyjne parametry definicji analizy wzrostu neurytów. (D) Górny panel: powiększenie ukazujące utratę długości neurytów wynikającą z ograniczeń detekcji w segmentacji neurytów (maska magenta). Dolny panel: powiększenie ukazujące błąd segmentacji neurytów (maska magenta) na obiektach obcych. Obrazy wykonano 48 h po wysianiu komórek. Powiększenie 20x. Pasek skali, 50 µm. Rycina została stworzona za pomocą BioRender. Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.

Rysunek 6: Jasność neurytów w analizie wzrostu neurytów w kulturze dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz immunocytochemiczny (marker neuronalny Tuj1) neuronów charakteryzujących się bardzo jasnymi i grubymi neurytami. (B) Reprezentatywny automatycznie segmentowany obraz. Fioletowa maska segmentuje ciała komórek, niebieska maska segmentuje neuryty. (C) Ilustracyjne parametry definicyjne analizy wzrostu neurytów. (D) Górny panel: powiększenie błędu segmentacji ciała komórki (fioletowa maska) wynikającego z grubości neurytów. Dolny panel: powiększenie utraty długości neurytów spowodowanej intensywną jasnością fluorescencji grubych neurytów. Obrazy wykonano 48 h po wysianiu. Powiększenie 20x. Pasek skali, 50 µm. Rysunek został wykonany w programie BioRender. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rysunek 7: Autofluorescencja tła w analizie wypustek neurytów w hodowli dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz immunocytochemiczny (marker neuronalny Tuj1) z wysokim poziomem szumu fluorescencji tła. (B) Reprezentatywny obraz poddany automatycznej segmentacji. Fioletowa maska oznacza ciała komórek, a niebieska maska segmentuje neuryty. (C) Ilustracyjne parametry definicyjne analizy wypustek neurytów. (D) Powiększenie błędu segmentacji neurytów (niebieska maska) wynikającego z interferencji fluorescencji tła. Obrazy pozyskano 48 h po wysianiu. Powiększenie 20x. Pasek skali, 50 µm. Rysunek przygotowano za pomocą BioRender. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
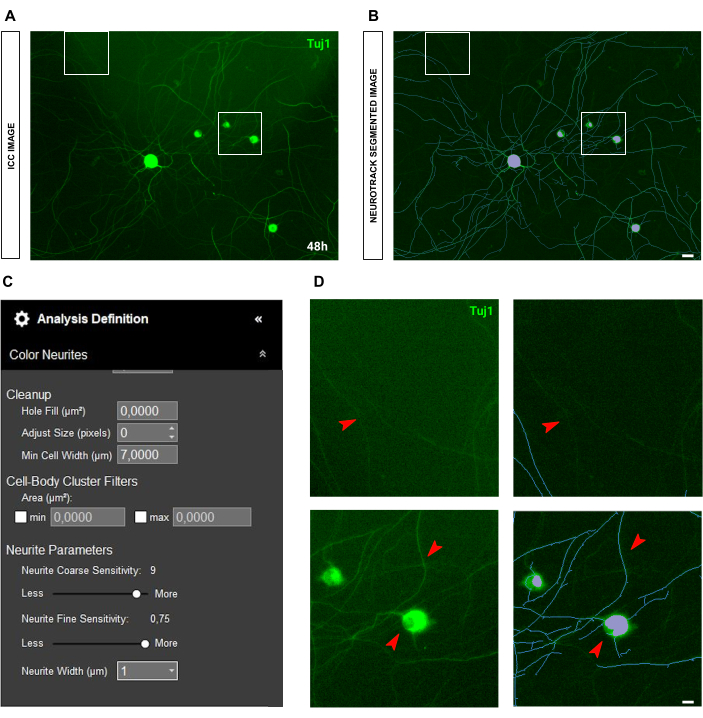
Rysunek 8: Rozproszenie światła w analizie wypustek neurytów w hodowli dorosłych neuronów sensorycznych. (A) Reprezentatywny obraz immunocytochemiczny (marker neuronalny Tuj1) ukazujący rozproszenie światła. (B) Reprezentatywny automatycznie przesegmentowany obraz. Fioletowa maska wyznacza ciała komórek, niebieska maska wyznacza neuryty. (C) Ilustracja parametrów definicyjnych analizy wypustek neurytów. (D) Panel górny: powiększenie ukazujące utratę długości neurytu z powodu interferencji rozproszenia światła. Panel dolny: powiększenie ukazujące błąd segmentacji ciała komórki (fioletowa maska). Obrazy wykonano 48 h po wysiewaniu. Powiększenie 20x. Pasek skali, 50 µm. Rysunek przygotowano za pomocą BioRender. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 9: Błędy w procedurze barwienia wpływające na jakość i utrudniające analizę wypustek neurytów w hodowli dorosłych neuronów sensorycznych. (A) Po lewej reprezentatywny obraz w kontraście fazowym dorosłych neuronów sensorycznych. Po prawej reprezentatywny obraz immunocytochemiczny (marker neuronalny Tuj1) przedstawiający przerwane neuryty w wyniku płukania podczas procedury barwienia. (B) Po lewej reprezentatywny obraz w kontraście fazowym dorosłych neuronów sensorycznych. Po prawej reprezentatywny obraz immunocytochemiczny (marker neuronalny Tuj1) przedstawiający utratę ciał komórkowych w wyniku płukania podczas procedury barwienia. Obrazy wykonano 48 h po wysiewaniu. Powiększenie 20x. Pasek skali, 50 µm. Rysunek został stworzony w programie BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 10: Idealna hodowla embrionalnych (E13.5) neuronów sensorycznych do analizy wzrostu neurytów. (A) Reprezentatywny obraz w kontraście fazowym przedstawiający idealne warunki wysiewu do analizy wzrostu neurytów w hodowli embrionalnych neuronów sensorycznych. (B) Reprezentatywny automatycznie segmentowany obraz. Żółta maska segmentuje ciała komórkowe, magenta maska segmentuje neuryty. (C) Ilustracyjne parametry definicji analizy wzrostu neurytów. (D) Powiększenie segmentacji ciała komórkowego (żółta maska) oraz segmentacji neurytów (magenta maska). Obrazy wykonano 24 h po wysiewie. Powiększenie 20x. Pasek skali, 50 µm. Rysunek został przygotowany w programie BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 11: Idealna hodowla embrionalnych (E13,5) neuronów sensorycznych do analizy wzrostu neurytów. (A) Reprezentacyjny obraz immunocytochemiczny (marker neuronalny Tuj1) idealnej hodowli embrionalnych neuronów sensorycznych do analizy wzrostu neurytów. (B) Reprezentacyjny obraz po automatycznej segmentacji. Fioletowa maska oznacza ciała komórkowe, niebieska maska oznacza neuryty. (C) Ilustracyjne parametry definicyjne analizy wzrostu neurytów. (D) Powiększenie segmentacji ciał komórkowych (fioletowa maska) oraz segmentacji neurytów (niebieska maska). Obrazy pozyskano 24 h po wysiewaniu. Powiększenie 20x. Pasek skali, 50 µm. Rycina została stworzona za pomocą BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
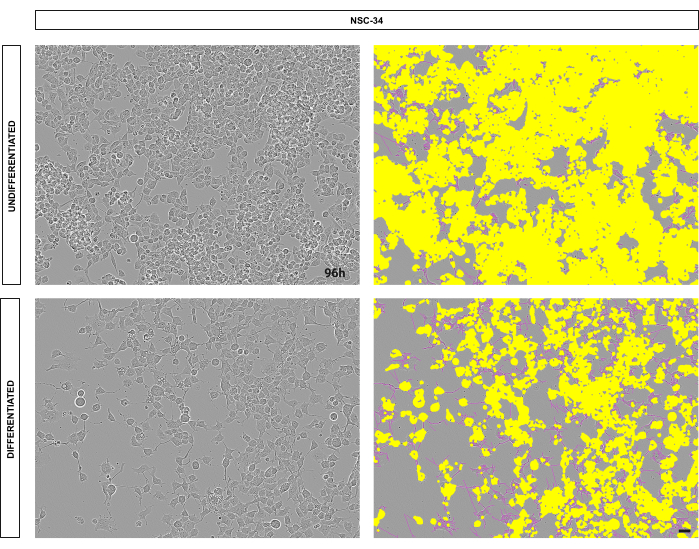
Rycina 12: Zróżnicowane komórki NSC-34 wykazują zwiększoną liczbę neurytów i rozgałęzień w porównaniu z nieróżnicowanymi kontrolami. Reprezentatywne obrazy komórek NSC-34. Panel górny: nieróżnicowane komórki NSC-34 (kontrola). Panel dolny: zróżnicowane komórki NSC-34 po 96 godzinach inkubacji z kwasem retinowym. Po lewej stronie obu paneli znajdują się obrazy w kontraście fazowym, a po prawej stronie obu paneli obrazy automatycznie segmentowane (ciała komórek na żółto, neuryty na magenta). Obrazy wykonano 96 h po wysianiu komórek. Powiększenie 10x. Pasek skali, 50 µm. Rycina została przygotowana w programie BioRender. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
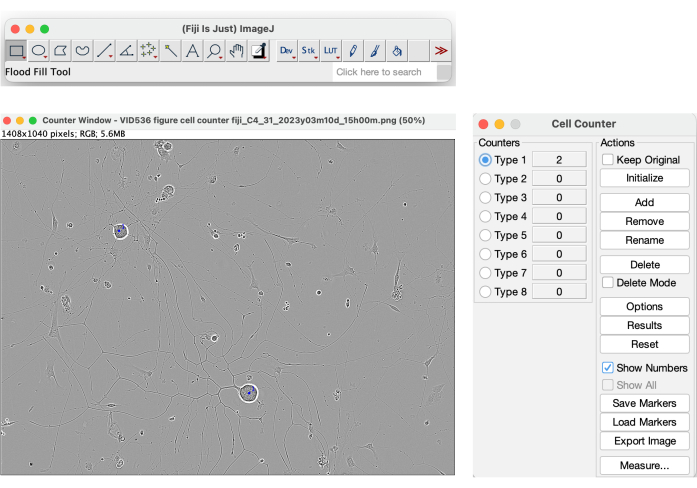
Rycina 13: Narzędzie Cell Counter w programie Fiji. Ręczne liczenie komórek wykonane na obrazie w kontraście fazowym dla optymalnego zagęszczenia wysiewu do analizy wzrostu neurytów. Powiększenie 20x. Rycina została przygotowana w programie BioRender. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Rodzaj hodowli | Kultura dorosłych zwojów korzeniowych grzbietowych (DRG) (faza) | Kultura embrionalnych zwojów korzeni grzbietowych (DRG) (fazokontrast) | NSC-34 (Faza) |
| Powiększenie | 20x | 20x | 10x |
| Tryb segmentacji | Jasność | Jasność | Jasność |
| Korekta segmentacji | 0.5 - 0.7 | 1.7 - 2 | 1 |
| Dostosuj rozmiar (piksele) | 0, +1, +2 | 0, +1 | 0 |
| Filtrowanie | Najlepszy | Najlepszy | Najlepszy |
| Czułość neurytów | 0.4 - 0.5 | 0.25 - 0.4 | 0.3 - 0.5 |
| Szerokość neurytu | 1 | 2 | 2 |
Tabela 1: Podsumowanie sugerowanych parametrów definicji analizy dla kultur dorosłych neuronów sensorycznych, kultur embrionalnych (E13.5) neuronów sensorycznych oraz kultur NSC-34 w obrazach w kontraście fazowym.
| Rodzaj hodowli | Kultura zwojów korzeni grzbietowych (DRG) osobników dorosłych (ICC) | Kultura embrionalnych zwojów korzeni grzbietowych (ICC) |
| Powiększenie | 20x | 20x |
| Tryb segmentacji | Jasność | Jasność |
| Korekta segmentacji | 0.5 - 0.7 | 1.7 - 2 |
| Dostosuj rozmiar (piksele) | 0, +1, +2 | 0, +1 |
| Filtrowanie | Najlepszy | Najlepszy |
| Gruba czułość neurytów | 8 - 9 | 8 - 9 |
| Wysoka czułość w obrazowaniu neurytów | do 0,75 | 0.5 - 0.75 |
| Szerokość neurytu | 1 | 2 |
Tabela 2: Podsumowanie sugerowanych parametrów definicji analizy dla kultur dorosłych neuronów sensorycznych, kultur embrionalnych (E13.5) neuronów sensorycznych oraz kultur NSC-34 na obrazach z immunocytochemii.
| NUMER | SUGESTIE |
| Kultura zanieczyszczona | Przesuń suwak segmentacji w stronę komórek |
| Zwiększ parametr regulacji rozmiaru (+1, +2…) | |
| Nieznacznie zmniejszyć wrażliwość neurytów | |
| Blade/cienkie neuryty | Zwiększyć czułość wykrywania neurytów (co najmniej 0,6) |
| Przesuń suwak segmentacji w stronę komórek. | |
| Cienkie neuryty w ICC | Zwiększenie czułości na cienkie neuryty (do 0,75) |
| Zmniejsz czułość wstępną (coarse sensitivity) neurytów (co najmniej do 8-9) | |
| Komórki glejowe | Przesuń suwak segmentacji w stronę komórek (1,7–2) |
| Szerokość neurytów w 2 |
Tabela 3: Podsumowanie sugerowanych parametrów definicji analizy w celu rozwiązania konkretnych problemów w różnych typach kultur.
Dyskusja
Dokładny pomiar wzrostu neuronów w zdrowych, uszkodzonych i chorych warunkach jest krytycznym parametrem w wielu konfiguracjach eksperymentalnych w dziedzinie neuronauki. Niezależnie od tego, czy pracujemy z organotypowymi kulturami całych eksplantatów DRG, czy z kulturami zdysocjowanymi, właściwy pomiar wzrostu aksonów był poważnym wyzwaniem w ciągu ostatnich 20 lat. Bez wiarygodnego i dokładnego określenia ilościowego wzrostu neurytów niemożliwe jest ocena, czy określone leczenie, takie jak kwas retinowy (przez 4 dni) dla komórek NSC-3434 lub neurotrofiny (przez 1-2 dni) dla embrionalnych neuronów DRG 14,35, było skuteczne. Neurony zazwyczaj wykazują ciągły wzrost, gdy są zdrowe; Jednak po urazie tempo wzrostu aksonów wzrastao 12,13. Czas ma kluczowe znaczenie przy pomiarze wzrostu aksonów; Dlatego przed rozpoczęciem eksperymentu konieczne jest przeprowadzenie testu próbnego w celu określenia optymalnego czasu na utrwalenie komórek na podstawie ich krzywej plateau szybkości wzrostu.
Wybór metody, ręcznej lub automatycznej, stanowi punkt zwrotny pod względem nakładu czasu i dokładności. Niektóre z najczęstszych metod ręcznych to NeuronJ18,20 i Metamorph (Visitron)2,22,28. Metody ręczne wymagają od użytkowników ręcznego śledzenia neurytów, co jest niezwykle czasochłonne i wymaga obrazów pojedynczych komórek. Przy ręcznej segmentacji neurytów sieci neuronowe są całkowicie poza zasięgiem. Zazwyczaj metodologie te mierzą tylko najdłuższy akson lub wykorzystują pomiar odległości wektorowej, tracąc w ten sposób ważne informacje, takie jak liczba punktów rozgałęzień i całkowita długość aksonu. Pewną poprawę zapewnia analiza Sholla30, która i tak ogranicza się do warunków jednokomórkowych. Analiza pojedynczych komórek wiąże się z kilkoma wyzwaniami, począwszy od wysiewu komórek. Neurony muszą być posiane w bardzo niskim stężeniu, co może nie być najbardziej odpowiednim warunkiem wzrostu dla każdego typu komórek. Kolejna kwestia wynika z pozyskiwania obrazu. Zazwyczaj mikroskop konfokalny jest wykorzystywany do obrazowania, co wymaga przeszkolonych użytkowników i neuronów fluorescencyjnych i nie jest ani efektywne czasowo, ani kosztowo. Za pomocą mikroskopu konfokalnego uzyskuje się obrazy o wysokiej rozdzielczości, ale bardzo niewiele neuronów jest obrazowanych w każdym eksperymencie. Stanowi to ograniczenie, ponieważ do osiągnięcia odpowiedniej liczby neuronów potrzeba więcej powtórzeń biologicznych.
Niektóre metodyki automatyczne, takie jak NeuroMath 2,28, rozwiązują problem czasochłonnej segmentacji neurytów, która jest wykonywana w sposób automatyczny.
Jednak ze względu na ograniczenia czasowe, ten moduł pomiaru wzrostu neurytów zapewnia szybsze wyniki podczas pozyskiwania obrazów za pomocą mikroskopii poklatkowej. To ostatnie, wraz z tym oprogramowaniem, znacznie poprawia efektywność czasową i kosztową zarówno dla studentów, jak i głównych badaczy.
Maszyna akwizycyjna pozwala na stworzenie dość kompletnej mapy studni, uzyskując zmienną liczbę obrazów w oparciu o średnicę studni. Stanowi to istotną zaletę, ponieważ wiele neuronów jest obrazowanych w tym samym czasie. Jednak osiągnięcie tylko 20-krotnego powiększenia jest wystarczające i odpowiednie do analizy obrazów za pomocą oprogramowania. Jego moc polega na zdolności do trenowania na zestawie obrazów i wykonywania półautomatycznego pomiaru całkowitej długości aksonów. Dodatkowo oprogramowanie może działać zarówno na pojedynczych neuronach, jak i sieciach neuronowych. Oprogramowanie jest w stanie segmentować neuryty i ciała komórkowe za pomocą dwóch różnych masek. Żółta maska dzieli na segmenty wszystkie obiekty obrazu o wysokim kontraście, takie jak obiekty komórek, szczątki komórek i cienie. Zamiast tego maska magenta dzieli neuryty. Precyzja i dokładność oprogramowania została udowodniona przez segmentację tych samych neuronów zarówno za pomocą oprogramowania, jak i NeuronJ. Z punktu widzenia analizy statystycznej wartości długości neurytów ładnie korelowały z wysokim współczynnikiem korelacji Spearmana.
Po ocenie wiarygodności metody przeszliśmy do analizy różnych warunków testowych. Aby uzyskać optymalną analizę, wymagane są pewne środki ostrożności. Po pierwsze, neurony muszą być równomiernie rozmieszczone w studni, unikając miejsc o wysokim stężeniu komórek. Grupowanie neuronów powoduje, że oprogramowanie traci precyzję w wykrywaniu neurytów. Kolejną zmienną, która wpływa na dokładność i precyzję analizy, jest czystość hodowli. Preferowana jest czysta kultura z niewielką ilością resztek komórkowych i martwych komórek. Jednak oprogramowanie jest w stanie skompensować takie problemy poprzez modulację wrażliwości neurytów i maski segmentacji ciała komórki. Jak wspomniano powyżej, żółta maska segmentuje obiekty o wysokim kontraście, wśród których znajdują się również cienie spowodowane ruchem medium w studni. Cienie mogą zakrywać neuryty, powodując w ten sposób utratę długości neurytów. Jednak taki problem można łatwo rozwiązać, pozwalając nośnikowi ustabilizować się przed pozyskaniem obrazu.
Algorytm jest w stanie przeprowadzić kwantyfikację długości neurytów zarówno na obrazach kontrastu fazowego, jak i na obrazach immunocytochemicznych. W przypadku fluorescencji należy podjąć inne środki ostrożności w celu uzyskania wiarygodnej analizy. Po pierwsze, jakość barwienia ma ogromny wpływ na wynik analizy. Jeśli neuryty są uszkodzone lub podzielone na segmenty, a ciała komórkowe są odrywane podczas mycia, analiza traci wytrzymałość i wiarygodność. Dodatkowo, sama fluorescencja stanowi potencjalnie niepokojący element dla analizy. Ponieważ ustawianie ostrości jest wykonywane automatycznie przez maszynę, obiektyw ustawia ostrość na bardzo jasnych obiektach, takich jak artefakty, ciała komórek lub grube neuryty. W rezultacie cieńsze i mniej jasne neuryty pozostają w tyle, co utrudnia użytkownikowi prawidłowy pomiar długości neurytu.
W związku z tym analiza obrazów fazowych może być bardziej uzasadniona w porównaniu z analizą obrazów immunocytochemicznych. Oprogramowanie jest w stanie pracować nad wieloma różnymi morfologiami neuronów, od najbardziej skomplikowanych i wyszukanych po najprostsze, zarówno jako pojedyncze komórki, jak i w sieciach neuronowych. Dlatego można go wykorzystać w wielu różnych dziedzinach badawczych, począwszy od pierwotnych kultur neuronów pochodzących z ośrodkowego lub obwodowego układu nerwowego na różnych etapach rozwoju, a skończywszy na neuronach i liniach komórkowych pochodzących z iPSC, takich jak NSC-34.
Pomimo znacznego potencjału oprogramowania, można zauważyć pewne ograniczenia. Po pierwsze, precyzja segmentacji ciała komórki jest nieoptymalna. W związku z tym parametry takie jak klaster ciała komórki i obszar klastra ciała komórki nie mogą być niezawodnie wykorzystywane do zliczania komórek. Po drugie, oprócz niezbędnych środków ostrożności dla optymalnej segmentacji neurytów, niewystarczająco grube aksony mogą zostać wyłączone z pomiaru długości neurytów, co spowoduje utratę danych.
Parametr punktu rozgałęzienia napotyka problemy związane z obydwoma typami segmentacji. Cienie, martwe komórki lub szczątki w kulturze, które lokalizują się w punktach rozgałęzień, zasłaniają je, gdy są pokrywane przez segmentację ciała komórki. Co więcej, w przypadku cienkich neurytów niezawodność parametru punktu rozgałęzienia jest ponownie poważnie zagrożona.
Co więcej, automatyczne ustawianie ostrości podczas akwizycji obrazu może czasami nie być optymalne. Maksymalne powiększenie urządzenia jest ograniczone do 20x, co może być niewystarczające do obserwacji drobniejszych szczegółów lub fluorescencji w smukłych strukturach, takich jak neuryty. Dodatkowo maszyna najlepiej radzi sobie z jednorodnymi podłożami z tworzyw sztucznych. Jeśli szklane szkiełko nakrywkowe zostanie włożone do studzienki, ostrość na szkle może się nie powieść, co spowoduje częściowo rozmyte obrazy. Jednak to oprogramowanie ma zastosowanie nie tylko do neuronów, ale także do zupełnie innych dziedzin badań, takich jak wzrost grzybów36.
Biorąc wszystko pod uwagę, uważamy, że ten moduł pomiaru wzrostu neurytów jest niezawodnym narzędziem do szybkiego, bezstronnego i skutecznego pomiaru neurytów.
Oświadczenia
Autorzy deklarują, że badanie zostało przeprowadzone bez jakichkolwiek powiązań handlowych lub finansowych, które mogłyby potencjalnie powodować konflikt interesów.
Podziękowania
Chcemy podziękować Alessandro Vercelli za krytyczne uwagi i wsparcie techniczne Sartoriusa za pomoc. Nasze badania na te tematy zostały hojnie wsparte grantem Rita-Levi Montalcini Grant 2021 (MIUR, Włochy). Badania te zostały sfinansowane przez Ministero dell'Istruzione dell'Università e della Ricerca MIUR project Dipartimenti di Eccellenza 2023-2027 dla Departamentu Neuronauki Rity Levi Montalcini. Badania D.M.R. były prowadzone w trakcie i przy wsparciu włoskiego narodowego międzyuniwersyteckiego studia doktoranckiego w zakresie zrównoważonego rozwoju i zmian klimatycznych (link: www.phd-sdc.it).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kolagenaza A | Merck / Roche 10103586001 | ||
| Dispase II (neutralna proteaza, stopień II) | Merck / Roche | 4942078001 | |
| Zmodyfikowana pożywka orła Dulbecco | Merck / Sigma | D5796 | |
| Surowica płodowa bovin | Merck / Sigma | F7524 | |
| Mieszanka odżywcza F-12 szynki (1X) | ThermoFisher Scientific | 21765029 | |
| Ham's F12 z L-glutaminą | Euroklon | ECM0135L | |
| Zbilansowany roztwór soli Hanksa | Euroklon | ECM0507L | |
| HBSS (10X), bez wapnia, bez magnezu, bez czerwieni fenolowej | ThermoFisher Scientific | 14185045 | |
| HyClone charakteryzuje płodową surowicę bydlęcą (USA) | Cytiva | SH30071.03 | |
| Incucyte, oprogramowanie do analizy Neurotrack | Sartorius | 9600-0010 | |
| L-15 Medium (Leibovitz) | Millipore/Sigma | L5520 | |
| Białko myszy Laminin, naturalne | ThermoFisher Scientific | 23017015 | |
| L-cysteina | Merck / Sigma | C7352 | |
| Leibovitz's L-15 bez L-glutaminy | Euroclone | ECB0020L | |
| myszy NGF 2.5S (>95%) | Alomone Labs | N-100 | |
| Podłoże neurobazalne [-] Glutamina | ThermoFisher Scientific | 21103049 | |
| NSC-34 | CELLutions Biosystems Inc (Ontario, Kanada) | CLU140 | |
| Papaina z lateksu papai | Sigma | P4762 | |
| Penicylina-Streptomycyna (5,000 U/ml) | ThermoFisher Scientific | 15070063 | |
| Percoll ( Gęstość 1,130 g / ml) | Cytiva | 17089101 | |
| Roztwór poli-D-lizyny (1 mg / ml) | EMD Milipore / Merck | A-003-E | |
| Roztwór poli-L-lizyny (0-01%) | Sigma | P4832 | |
| Rekombinowany człowiek NT-3 | PeproTech | 450-03 | |
| Kwas retinowy | Merck / Sigma | R2625 | |
| Roztwór trypsyny-EDTA | Sigma | Przeciwciało T3924 | |
| β-tubulina III (Tuj1) | Merck / Sigma | T8660 |
Bibliografia
- Terenzio, M., et al. Locally translated mTOR controls axonal local translation in nerve injury. Science. 359, 1416-1421 (2018).
- Marvaldi, L., et al. Enhanced axon outgrowth and improved long-distance axon regeneration in sprouty2 deficient mice. Dev Neurobiol. 75, 217-231 (2015).
- Kalinski, A. L., et al. Deacetylation of Miro1 by HDAC6 blocks mitochondrial transport and mediates axon growth inhibition. J Cell Biol. 218, 1871-1890 (2019).
- Marvaldi, L., et al. Importin α3 regulates chronic pain pathways in peripheral sensory neurons. Science. 369, 842-846 (2020).
- Gangadharan, V., et al. Neuropathic pain caused by miswiring and abnormal end organ targeting. Nature. 606, 137-145 (2022).
- Testa, L., Dotta, S., Vercelli, A., Marvaldi, L. Communicating pain: emerging axonal signaling in peripheral neuropathic pain. Front Neuroanat. 18, (2024).
- Thongrong, S., et al. Sprouty2 and -4 hypomorphism promotes neuronal survival and astrocytosis in a mouse model of kainic acid induced neuronal damage. Hippocampus. 26, 658-667 (2016).
- Yaron, A., Schuldiner, O. Common and divergent mechanisms in developmental neuronal remodeling and dying back neurodegeneration. Curr Biol. 26, R628-R639 (2016).
- Maor-Nof, M., et al. Axonal degeneration is regulated by a transcriptional program that coordinates expression of pro- and anti-degenerative factors. Neuron. 92, 991-1006 (2016).
- Bromberg, K. D. Regulation of neurite outgrowth by Gi/o signaling pathways. Front Biosci. 13, 4544-4557 (2008).
- Girouard, M. P., et al. Collapsin response mediator protein 4 (CRMP4) facilitates wallerian degeneration and axon regeneration following Sciatic nerve injury. eNeuro. 7, (2020).
- van Erp, S., et al. Age-related loss of axonal regeneration is reflected by the level of local translation. Exp Neurol. 339, 113594(2021).
- Wang, X., et al. Driving axon regeneration by orchestrating neuronal and non-neuronal innate immune responses via the IFNγ-cGAS-STING axis. Neuron. 111, 236-255 (2023).
- Kaselis, A., Treinys, R., Vosyliūtė, R., Šatkauskas, S. DRG axon elongation and growth cone collapse rate induced by Sema3A are differently dependent on NGF concentration. Cell Mol Neurobiol. 34, 289-296 (2014).
- Maier, O., et al. Differentiated NSC-34 motoneuron-like cells as experimental model for cholinergic neurodegeneration. Neurochem Int. 62, 1029-1038 (2013).
- Nango, H., et al. Highly efficient conversion of motor neuron-like NSC-34 cells into functional motor neurons by Prostaglandin E2. Cells. 9, 1741(2020).
- Kim, H., Caspar, W. T., Shah, S. B., Hsieh, A. H. Effects of proinflammatory cytokines on axonal outgrowth from adult rat lumbar dorsal root ganglia using a novel three-dimensional culture system. Spine J. 15, 1823-1831 (2015).
- Frey, E., et al. An in vitro assay to study induction of the regenerative state in sensory neurons. Exp Neurol. 263, 350-363 (2015).
- Zhang, Z., et al. Cerebellar injury and impaired function in a rabbit model of maternal inflammation induced neonatal brain injury. Neurobiol Learn Mem. 165, 106901(2019).
- Pemberton, K., Mersman, B., Xu, F. Using ImageJ to assess neurite outgrowth in mammalian cell cultures: Research data quantification exercises in undergraduate neuroscience lab. J Undergrad Neurosci Educ. 16, A186-A194 (2018).
- Marvaldi, L., Hausott, B., Auer, M., Leban, J., Klimaschewski, L. A Novel DRAK inhibitor, SC82510, promotes axon branching of adult sensory neurons in vitro. Neurochem Res. 39, 403-407 (2014).
- Quarta, S., et al. Peripheral nerve regeneration and NGF-dependent neurite outgrowth of adult sensory neurons converge on STAT3 phosphorylation downstream of neuropoietic cytokine receptor gp130. J Neurosci. 34, 13222-13233 (2014).
- Woitke, F., et al. Adult hippocampal neurogenesis poststroke: More new granule cells but aberrant morphology and impaired spatial memory. PLoS One. 12, e0183463(2017).
- Xiao, X., et al. Automated dendritic spine detection using convolutional neural networks on maximum intensity projected microscopic volumes. J Neurosci Meth. 309, 25-34 (2018).
- Pool, M., Thiemann, J., Bar-Or, A., Fournier, A. E. NeuriteTracer: A novel ImageJ plugin for automated quantification of neurite outgrowth. J Neurosci Meth. 168, 134-139 (2008).
- Wang, D., et al. HCA-Vision: Automated neurite outgrowth analysis. SLAS Disc. 15, 1165-1170 (2010).
- Whitlon, D. S., et al. Novel high content screen detects compounds that promote neurite regeneration from cochlear spiral ganglion neurons. Sci Rep. 5, 15960(2015).
- Rishal, I., et al. WIS-neuromath enables versatile high throughput analyses of neuronal processes. Dev Neurobiol. 73, 247-256 (2013).
- Smith, D. S., Pate Skene, J. H. A Transcription-dependent switch controls competence of adult neurons for distinct modes of axon growth. J Neurosci. 17, 646-658 (1997).
- Gardiner, N. J., et al. Preconditioning injury-induced neurite outgrowth of adult rat sensory neurons on fibronectin is mediated by mobilisation of axonal α5 integrin. Mol Cell Neurosci. 35, 249-260 (2007).
- Hauck, J. S., et al. Heat shock factor 1 directly regulates transsulfuration pathway to promote prostate cancer proliferation and survival. Commun Biol. 7, 9(2024).
- Zhu, Y., et al. Loss of WIPI4 in neurodegeneration causes autophagy-independent ferroptosis. Nat Cell Biol. 26, 542-551 (2024).
- Reggiani, F., et al. BET inhibitors drive Natural Killer activation in non-small cell lung cancer via BRD4 and SMAD3. Nat Commun. 15, 2567(2024).
- Ackerman, H. D., Gerhard, G. S. Bile acids induce neurite outgrowth in NSC-34 cells via TGR5 and a distinct transcriptional profile. Pharmaceuticals. 16, 174(2023).
- Tuttle, R., Matthew, W. D. Neurotrophins affect the pattern of DRG neurite growth in a bioassay that presents a choice of CNS and PNS substrates. Development. 121, 1301-1309 (1995).
- Wurster, S., et al. Live monitoring and analysis of fungal growth, viability, and mycelial morphology using the IncuCyte NeuroTrack processing module. mBio. 10 (3), e00673-e00719 (2019).
Przedruki i uprawnienia
