Oddychanie mitochondrialne w całych komórkach drożdży jest cennym wskaźnikiem bioenergetyki komórki. W tym miejscu przedstawiamy protokół ilościowego określenia tego fenotypu mający zastosowanie do różnych gatunków drożdży.
Artykuł metodologiczny
Kwantyfikacja oddychania mitochondrialnego w całych komórkach drożdży
W tym artykule
Podsumowanie
Streszczenie
Metabolizm jest głównie koordynowany przez dostępność energii komórkowej i warunki środowiskowe. Testy pozwalające dowiedzieć się, w jaki sposób komórki dostosowują metabolizm energetyczny do różnych warunków żywieniowych i środowiskowych, dostarczają cennych informacji w celu wyjaśnienia mechanizmów molekularnych. Fosforylacja oksydacyjna jest głównym źródłem ATP w większości komórek, a aktywność oddychania mitochondrialnego jest kluczowym składnikiem fosforylacji oksydacyjnej, utrzymując potencjał błony mitochondrialnej do syntezy ATP. Oddychanie mitochondrialne jest często badane w izolowanych mitochondriach, w których brakuje kontekstu komórkowego. W tym miejscu przedstawiamy metodę ilościowego określania oddychania mitochondrialnego w komórkach nienaruszonych przez drożdże. Metoda ta ma zastosowanie do wszystkich gatunków drożdży, chociaż jest zwykle stosowana do komórek Saccharomyces cerevisiae. W pierwszej kolejności badany jest wzrost drożdży w określonych warunkach. Następnie komórki są myte i ponownie zawieszane w wodzie dejonizowanej w stosunku 1:1 (w/v). Komórki są następnie umieszczane w komorze pulsoksymetru z ciągłym mieszaniem, a elektroda Clarka służy do ilościowego określenia zużycia tlenu. Niektóre cząsteczki są sekwencyjnie umieszczane w komorze i selekcjonowane zgodnie z tym wpływem na łańcuch transportu elektronów lub syntezę ATP. Inhibitor ATPazy oligomycyna jest najpierw dodawany w celu pomiaru oddychania sprzężonego z syntezą ATP. Następnie za pomocą rozłącznika mierzy się maksymalną wydolność oddechową. Na koniec dodaje się mieszaninę inhibitorów łańcucha transportu elektronów, aby wyeliminować zużycie tlenu niezwiązane z oddychaniem mitochondrialnym. Dane są analizowane przy użyciu regresji liniowej w celu uzyskania nachylenia reprezentującego wskaźnik zużycia tlenu. Zaletą tej metody jest to, że jest ona specyficzna dla oddychania mitochondrialnego drożdży, zachowując kontekst komórkowy. Należy podkreślić, że inhibitory stosowane w ilościowym określaniu oddechu mitochondrialnego mogą się różnić w zależności od gatunku drożdży.
Wprowadzenie
Mitochondria odgrywają fundamentalną rolę w bioenergetyce komórkowej, ponieważ są głównym źródłem ATP dla większości komórek, a kilka szlaków zbiega się i zależy od aktywności szlaków mitochondrialnych1. Fosforylacja oksydacyjna jest potrzebna do syntezy ATP, która łączy transport elektronów przez łańcuch transportu elektronów w celu zmniejszenia aktywności tlenu i F1F0- ATPazy, syntetyzując ATP przy użyciu potencjału błony mitochondrialnej wytwarzanego w wyniku strumienia elektronów2. Tak więc oddychanie mitochondrialne jest częścią fosforylacji oksydacyjnej3.
Łańcuch oddychania mitochondrialnego składa się z czterech kompleksów lub, w niektórych przypadkach, kompleksu drożdżowego z niedoborem I (np. Saccharomyces cerevisiae), trzech kompleksów i trzech białek dehydrogenazy4. Kompleksy oddechowe są zlokalizowane w wewnętrznej błonie mitochondrialnej; niektóre drożdże prezentują kanoniczny łańcuch transportu elektronów z kompleksem I (dehydrogenaza NADH) lub dehydrogenazą trzech NADH, ubichinonem (Co Q), kompleksem II (oksydoreduktaza ubichinonianu bursztynianu), kompleksem III (oksydoreduktaza ubichinonu), cytochromem c (Cyt c) i kompleksem IV (oksydaza cytochromu c)5,6. Transport elektronów przez kompleksy umożliwia pompowanie protonów z macierzy mitochondriów do przestrzeni międzybłonowej, tworząc potencjał błony mitochondrialnej7. Protony znajdujące się w przestrzeni międzybłonowej są pompowane w odwrotnej kolejności, w kierunku macierzy mitochondriów przez F1F0 -ATPazę w celu syntezy jednej cząsteczki ATP na cztery pompowane protony8.
Pomiary oddychania mitochondrialnego dostarczają cennych informacji na temat integralności mitochondriów, bioenergetyki komórek i zdolności oddechowej mitochondriów9. Funkcja oddychania mitochondrialnego może być analizowana in vitro lub in situ przy użyciu różnych technik. Jednak analiza oddychania mitochondrialnego w nienaruszonych komórkach może przynieść szereg korzyści, ponieważ obejmuje cały metabolizm komórkowy, ponieważ interakcje komórek z ich środowiskiem i metabolizm wewnątrzkomórkowy są brane pod uwagę przy zastosowaniu całych komórek10. Co więcej, użycie nienaruszonych komórek pozwala na łatwą ocenę różnych warunków eksperymentalnych i wykrywa minimalne zmiany, których nie można było zaobserwować w izolowanych mitochondriach10,11. Kolejną zaletą kwantyfikacji oddychania mitochondrialnego w nienaruszonych komórkach jest to, że efekty proliferacji i lokalizacji mitochondriów są zachowane12.
Oddychanie mitochondriów ssaków w nienaruszonych komórkach zostało opisane bardzo szczegółowo12, pomijając badania nad innymi organizmami eukariotycznymi, takimi jak drożdże. W tym miejscu proponujemy technikę ilościowego określania oddychania mitochondrialnego dostosowaną do drożdży na podstawie protokołów ssaków. W związku z tym w tej technice wykorzystano koncepcje z kwantyfikacji oddychania mitochondrialnego u ssaków. Na przykład technika ta jest podzielona na różne etapy jako protokół ssaków: 1) oddychanie podstawowe (zależne od substratu), 2) oddychanie sprzężone z ATP (poprzez hamowanie syntazy ATP), 3) maksymalna zdolność oddychania (zastosowanie rozłącznika, który umożliwia przepuszczalność protonów przez wewnętrzną błonę mitochondrialną), 4) hamowanie oddychania mitochondrialnego (wykorzystujące mieszankę inhibitorów łańcucha oddechowego w celu odrzucenia zużycia tlenu na rzecz innych źródeł niż Oddychanie mitochondrialne)11,13. W związku z tym niniejszy artykuł ma na celu przedstawienie protokołu ilościowego oznaczania oddychania mitochondrialnego u drożdży.
Protokół
1. Pożywki hodowlane i przygotowanie inokulum
- Przygotuj 100 ml pożywki z ekstraktem drożdżowym, peptonem i dekstrozą (YPD), dodając 1 g ekstraktu drożdżowego, 2 g peptonu kazeinowego i 2 g glukozy w 95 ml wody destylowanej. Rozprowadzić 3 ml do szklanych probówek o pojemności 10 ml, sterylizować w temperaturze 121 °C i 1,5 psi przez 15 min.
UWAGA: Pożywka może być przechowywana w temperaturze 4 - 8 °C przez okres do 1 miesiąca. - Zaszczepić szklaną probówkę o pojemności 10 ml zawierającą 3 ml pożywki YPD 250 μl komórek drożdży konserwowanych glicerolem w temperaturze -20 °C. Inkubować przez noc ze stałym mieszaniem przy 200 obr./min i temperaturze 30 °C.
UWAGA: Inkubacja w temperaturze może się różnić w przypadku niektórych gatunków drożdży (np. Kluyveromyces marxianus ma optymalną temperaturę wzrostu 37 °C). - Napełnić szalkę Petriego (60 x 15 mm2) sterylnym 2% agarem YPD (dodać 10 g ekstraktu drożdżowego, 20 g peptonu kazeinowego, 20 g glukozy i 20 g agaru bakteriologicznego do 950 ml wody destylowanej) i przetrzeć szalkę Petriego komórkami drożdży wyhodowanymi w szklanej probówce o pojemności 10 ml za pomocą sterylnej pętli. Inkubować szalkę Petriego w temperaturze 30 °C aż do pojawienia się odizolowanych kolonii.
- Przygotować inokulum wstępne, zaszczepiając sterylną szklaną probówkę o pojemności 10 ml zawierającą 3 ml pożywki YPD o stężeniu 2% glukozy dwiema lub trzema koloniami izolowanymi od drożdży z szalki Petriego. Inkubować przez noc przy ciągłym mieszaniu w temperaturze 30 °C.
2. Warunki wzrostu i projekt eksperymentu
- Zaszczepić 500 ml kolby Erlenmeyera zawierającej 100 ml sterylnej syntetycznej kompletnej pożywki (pożywka SC; 0,18 g drożdżowej zasady azotowej bez aminokwasów, 0,5 g siarczanu amonu, 0,2 g fosforanu dipotasowego, 1 g syntetycznych suplementów drożdżowych i glukozy zgodnie z planem doświadczalnym, w 98,02 ml wody destylowanej) kulturą drożdży przy początkowym OD600 ~ 0,1, to jest około 3 ml nocnego pre-inokulum (OD600 ~ 3). Ustaw warunki środowiskowe lub suplement za pomocą wyzwania chemicznego, które ma być testowane w oddychaniu mitochondrialnym (np. dodanie 100 μM resweratrolu). Przygotować kontrolę nośnika w oddzielnej kolbie na wyzwanie chemiczne. Przeprowadzić co najmniej trzy kontrpróby biologiczne.
UWAGA: Zaleca się użycie minimalnej pożywki w celu odrzucenia szumu odżywczego w teście, a minimalna pożywka proponowana w tym momencie jest stosowana w przypadku S. cerevisiae i może się różnić w przypadku innych gatunków drożdży. Wreszcie, stężenie glukozy uzupełnione w pożywce hodowlanej ma kluczowe znaczenie dla uniknięcia represji glukozy lub efektu Crabtree, który hamuje oddychanie mitochondrialne; stężenia poniżej 0,5% (w/v) dawały dobre odpowiedzi w oddychaniu mitochondrialnym, czemu towarzyszyło wysokie tempo wzrostu S. cerevisiae. U drożdży Crabtree-ujemnych wysokie stężenia glukozy nie wpływały na oddychanie mitochondrialne (np. K. marxianus). - Zważyć pustą probówkę stożkową o pojemności 50 ml i użyć jej do zebrania komórek w środkowej fazie logarytmu (OD600 ~ 0,5) przez odwirowanie przy 4000 x g przez 5 min.
UWAGA: Faza mid-log jest zalecana do testowania oddychania mitochondrialnego, ponieważ jest to faza wzrostu, w której metabolizm energetyczny jest bardziej aktywny. - Wyrzuć supernatant i przemyj osad 3x 25 ml wody dejonizowanej. Zważyć probówkę stożkową z komórkami osadu (masa mokra) i odjąć masę rurki stożkowej, aby uzyskać mokrą masę komórkową.
- Zawiesić osad w 2 ml wody dejonizowanej.
- Zapisać stężenie w komórkach, dzieląc mokrą masę przez 2, aby uzyskać mg komórek/ml. Wartość ta jest niezbędna do określenia, ile objętości należy dodać, aby uzyskać 50 mg komórek do testu.
3. Test zużycia tlenu (polarografia)
- Do pozyskiwania danych należy użyć elektrody tlenowej typu Clark podłączonej do monitora YSI5300A i komputera.
- Umieścić 5 ml kwasu sulfonowego morfoetanolu dostosowanego do pH 6 z trietanoloaminą (bufor MES-TEA; 10 mM) i 50 mg komórek (mokra masa) w komorze polarografu. Delikatnie umieść elektrodę, uważając, aby nie było pęcherzyków.
- Włącz monitor YSI5300A, komputer do zbierania danych i komorę do mieszania. Ustaw monitor YSI5300A, wybierając pokrętło ustawień kanału 1 w środowisku AIR. Dostosuj kanał 1 do 100% za pomocą pokrętła kalibracyjnego kanału 1 i ustabilizuj sygnał na 5 minut na 100%.
- Rozpocznij rejestrowanie danych w komputerze i mierzenie czasu za pomocą chronometru.
UWAGA: Monitor YSI5300A nie jest wyposażony w komputer ani program do akwizycji danych; Może to być zaimplementowane zewnętrznie przez użytkownika. - Użyj bocznego kanału elektrody w komorze pulsoksymetru, aby kolejno dodać utleniający się substrat, oligomycynę, rozprzęgacz i mieszaninę inhibitorów łańcucha oddechowego.
- Dodać substrat ulegający utlenieniu (glukozę, glicerol, L-mleczan lub inne źródło węgla zgodnie z projektem doświadczalnym) do końcowego stężenia 10 mM za pomocą strzykawki chromatograficznej. Utrzymuj komorę zamkniętą przez cały czas i z ciągłym mieszaniem. Rejestruj procentowe zużycie powietrza przez 2-3 minuty, aby określić oddychanie podstawowe.
UWAGA: Glukoza, glicerol i L-mleczan są używane do analizy łańcucha transportu elektronów w różnych miejscach łańcucha oddechowego: metabolizm glukozy zmniejsza NAD + do NADH i jest wykorzystywany do analizy całego łańcucha oddechowego; glicerol przenosi elektrony do ubichinonu i jest używany do oceny łańcucha oddechowego ubichinonu; na koniec L-mleczan oddaje swoje elektrony cytochromowi c i jest stosowany do określenia efektu z cytochromu C14. Substraty te mogą się różnić w zależności od zdolności enzymatycznych gatunków drożdży. - Dodać oligomycynę, aby uzyskać końcowe stężenie 0,01 mM w komorze pulsoksymetru za pomocą strzykawki chromatograficznej w celu oceny oddychania sprzężonego z ATP i zarejestrowania procentowego zużycia powietrza przez 2-3 minuty.
- Uzupełnić rozprzęgacz, cyjanek karbonylu 3-chlorofenylohydrazonu (CCCP) w celu uzyskania końcowego stężenia 0,015 mM w komorze pulsoksymetru za pomocą strzykawki chromatograficznej w celu określenia maksymalnej zdolności oddychania i zarejestrowania procentowego zużycia powietrza przez 2-3 minuty.
- Za pomocą strzykawki chromatograficznej dodać inhibitory łańcucha transportu elektronów: najpierw 2-tenoiltrifluoroaceton (TTFA), a następnie antymycynę A (AA) w końcowych stężeniach odpowiednio 1 mM i 1 mg/ml. Odmierzaj każdy inhibitor przez 2-3 min.
UWAGA: Inhibitory łańcucha transportu elektronów mogą się różnić w zależności od gatunku drożdży; Należy to wziąć pod uwagę na tym etapie. - Przesiewaj każde źródło węgla niezależnie (tj. glukozę, glicerol lub L-mleczan). Powtórz kroki od 3.3 do 3.5 dla każdego źródła węgla. Po każdym użyciu umyj komorę 3x 70% etanolem i 3x wodą dejonizowaną.
4. Przetwarzanie danych
- Użyj krzywych zużycia tlenu (wykreślając procent powietrza w funkcji czasu), aby obliczyć nachylenia ulegającego utlenieniu substratu (oddychanie podstawowe), oligomycyny (oddychanie sprzężone z ATP), CCCP (oddychanie maksymalne), AA i TTFA (nie oddychanie mitochondrialne; Rysunek 1). Oblicz indywidualne nachylenia dla każdego uzupełnionego związku za pomocą regresji liniowej, jak opisano poniżej.
- Utwórz nowy plik projektu w oprogramowaniu statystycznym. Wybierz XY w sekcji Utwórz. Wybierz opcję Wprowadź lub zaimportuj dane do nowej tabeli w sekcji Tabela danych.
- Wybierz pozycję Liczby w podsekcji X w sekcji Opcje. Kliknij Wprowadź 3 replikowane wartości w podkolumnach obok siebie w podsekcji Y w sekcji Opcje.
UWAGA: Format tabeli zawiera jedną kolumnę X i kilka kolumn Y, z których każda zawiera 3 podkolumny o nazwach A: Y1 i A: Y2. - Wprowadź dane czasowe w kolumnach X (np. 0, 2, 4, 6, 8 s lub 0, 1, 2, 3 min). Zapisz procentową zawartość powietrza w kolumnach Y.
- Wykonaj dopasowanie regresji liniowej. Kliknij Analizuj na pasku menu. W opcji Analiza wybierz Prosta regresja liniowa w analizach XY i kliknij OK.
- Uzyskaj wartość nachylenia z tabel Wyniki w danych po lewej stronie ekranu.
- Zapisz wartości nachylenia w arkuszu danych i odejmij wartość nachylenia uzyskaną z mieszaniny inhibitorów oddechowych (AA i TTFA) od nachyleń uzyskanych z utleniającego się substratu, oligomycyny i CCCP w celu odrzucenia zużycia tlenu ze źródeł innych niż oddychanie mitochondrialne.
- Pomnóż uzyskane wartości przez 237 μM z O2 . Za wartość tę uważa się rozpuszczalnośćO2 w buforowanym podłożu mitochondrialnym zrównoważonym powietrzem (20,9 %O2) w temperaturze 25 °C; Wartość ta zmienia się w zależności od temperatury, wysokości i zastosowanego bufora.
- Przelicz na minuty; uzyskane wartości to μM z O2 na czas, w zależności od tego, jak czas jest wykreślony, aby uzyskać μM O2 / min.
- Podziel przez 50, czyli mg użytych komórek; mg komórki może się różnić w zależności od projektu eksperymentalnego. Wreszcie zużycie tlenu wyraża się jako μM z O2 / mg komórek x min
Wyniki
Tę technikę badania oddychania mitochondrialnego można zastosować dla gatunków drożdży innych niż S. cerevisiae, takich jak Scheffersomyces stipitis15 oraz K. marxianus16. Jednakże w celach reprezentacyjnych przedstawiamy wyniki wyłącznie dla S. cerevisiae. Powszechnie wiadomo, że S. cerevisiae wykazuje dominujący metabolizm oddechowy przy niskich stężeniach glukozy (poniżej 0.8 mM)17,18. W związku z tym, aby potwierdzić fenotyp oddechowy S. cerevisiae, hodowano go w dwóch stężeniach glukozy stymulujących (0.5% glukozy) i ograniczających (5% glukozy) oddychanie mitochondrialne18,19. Zgodnie z oczekiwaniami, wyniki uzyskane dla oddychania podstawowego (substrat utlenialny), oddychania powiązanego z ATP (oligomycyna) oraz maksymalnej wydajności oddechowej (CCCP) potwierdzają charakterystyczny metabolizm energetyczny S. cerevisiae (Rysunek 2). Zaobserwowano wyższe wartości zużycia tlenu (oddychanie podstawowe, oddychanie powiązane z ATP oraz maksymalna wydajność oddechowa) w komórkach hodowanych na 0.5% glukozy w porównaniu do wartości uzyskanych w komórkach hodowanych na 5% glukozy (Rysunek 2).
Dodatkowo w testach wykorzystano trzy substraty: glukozę, glicerol oraz L-mleczan. Celem zastosowania różnych substratów była ocena różnych elementów mitochondrialnego łańcucha oddechowego. W tych warunkach oddychanie mitochondrialne nie wykazało istotnych zmian zależnych od substratu, ponieważ nie zastosowano żadnej obróbki zaburzającej łańcuch oddechowy (Rysunek 2).
W celu oceny wydajności techniki wykorzystaliśmy kwercetynę, związek negatywnie wpływający na oddychanie mitochondrialne20. Uzyskane dane wykazały, że kwercetyna znacząco obniżyła oddychanie mitochondrialne w komórkach hodowanych w pożywce uzupełnionej o 0,5% glukozy (Rysunek 3). Z drugiej strony, w komórkach hodowanych w pożywce uzupełnionej o 5% glukozy nie zaobserwowano istotnego negatywnego wpływu kwercetyny (Rysunek 4).

Rycina 1: Reprezentatywna krzywa zużycia tlenu. Krzywa zużycia tlenu uzyskana w komórkach S. cerevisiae hodowanych w pośrodku SC (0,5% glukozy). Kolory reprezentują różne nachylenia uzyskane po dodaniu substratu, odsprzęgaczy i inhibitorów. Zielony: wykorzystany substrat (glukoza) i odpowiadające mu nachylenie dla oddychania podstawowego. Niebieski: oligomycyna, inhibitor syntazy ATP, nachylenie wykorzystane do oznaczenia oddychania związanego z ATP. Żółty: CCCP, odsprzęgacz, nachylenie użyte do oceny oddychania maksymalnego. Szary i czerwony: inhibitory kompleksu II i III odpowiednio; nachylenie wykorzystane do oznaczenia zużycia tlenu niezależnego od mitochondriów. Skróty: CCCP = 3-chlorofenylhydrazona karbonylowy cyjanek; TTFA = 2-tenoiltrifluoroaceton; AA = antymycyna A. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
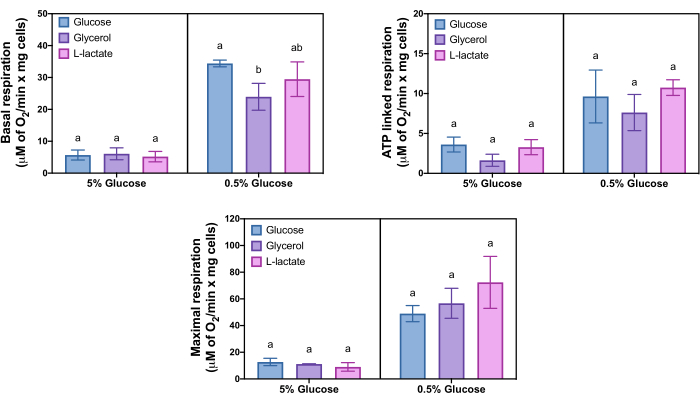
Rysunek 2: Badania zużycia tlenu w komórkach S. cerevisiae hodowlanych przy 0,5% i 5% glukozy.Oddychanie mitochondrialne oceniano poprzez pomiar zużycia tlenu podczas oddychania podstawowego, maksymalnej wydolności oddechowej oraz oddychania związanego z ATP w komórkach S. cerevisiae hodowlanych w pożywce SC uzupełnionej o 0,5% i 5% glukozy. W celu oceny specyficznego wpływu na łańcuch transportu elektronów zastosowano trzy substraty: glukozę (dehydrogenazy NADH), glicerol (pula ubichinonu) oraz L-mleczan (cytochrom c). (A) Oddychanie podstawowe przy 5% i 0,5% glukozy z glukozą, glicerolem i L-mleczanem jako substratami; (B) oddychanie maksymalne przy 5% i 0,5% glukozy z glukozą, glicerolem i L-mleczanem jako substratami; (C) oddychanie związane z ATP przy 5% i 0,5% glukozy z glukozą, glicerolem i L-mleczanem jako substratami. Wyniki przedstawiono jako średnia ± S.D. z trzech niezależnych eksperymentów, przy czym każdy eksperyment przeprowadzono w dwóch powtórzeniach technicznych. Do analizy statystycznej zastosowano jednoczynnikową analizę ANOVA, a następnie test Tukeya (p ≤ 0,05; różne litery: różnica istotna, te same litery: brak istotnej różnicy). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
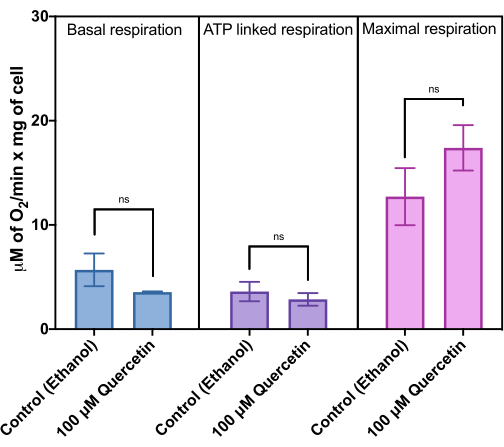
Rysunek 3Kwecetyna ograniczyła oddychanie mitochondrialne przy niskim stężeniu glukozy w S. cerevisiae wyhodowane komórki. Pomiar zużycia tlenu przeprowadzono dla oddychania spoczynkowego, maksymalnej wydolności oddechowej oraz oddychania powiązanego z syntezą ATP w S. cerevisiae komórki hodowane w pożywce SC (0,5% glukozy) z dodatkiem kwercetyny (100 μM). Do rozpuszczenia kwercetyny użyto etanolu. Wyniki przedstawiono jako średnia ± S.D. z trzech niezależnych eksperymentów, przy czym każdy eksperyment przeprowadzono w dwóch powtórzeniach technicznych. Analizy statystyczne wykonano za pomocą sparowanego testu t-Studenta (*, ** p ≤ 0,05). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Kwercetyna nie wpływa na oddychanie mitochondrialne przy wysokim stężeniu glukozy u S. cerevisiae. Zużycie tlenu zmierzono dla oddychania podstawowego, maksymalnej wydajności oddechowej oraz oddychania powiązanego z ATP w komórkach S. cerevisiae hodowanych w pożywce SC (5% glukozy) z dodatkiem kwercetyny (100 µM). Do rozpuszczenia kwercetyny użyto etanolu. Wyniki przedstawiają średnią ± S.D. z trzech niezależnych eksperymentów, z których każdy obejmował dwa powtórzenia techniczne. Analizy statystyczne wykonano za pomocą sparowanego testu t Studenta (p ≤ 0.05; ns: brak istotności statystycznej). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Fosforylacja oddychania mitochondrialnego odgrywa fundamentalną rolę w kilku szlakach, które zależą od potencjału błony mitochondrialnej i utrzymują poziom ATP poprzez fosforylację oksydacyjną. Zrozumienie, w jaki sposób warunki środowiskowe i żywieniowe wpływają na oddychanie mitochondrialne drożdży, służy jako narzędzie do wyjaśnienia mechanizmów molekularnych.
Aby uzyskać wiarygodne wyniki tej metody, należy wziąć pod uwagę następujące kluczowe kroki. Mieszanie >200 obr./min ma kluczowe znaczenie dla uzyskania wystarczającej ilości biomasy w warunkach wzrostu układu oddechowego w celu przetestowania oddychania mitochondrialnego; Warunki mieszania niższe niż 200 obr./min powodują słaby wzrost i tworzenie biomasy, co zajmuje więcej czasu, aby osiągnąć środkową fazę wzrostu i może wpływać na wskaźniki zużycia tlenu, ponieważ komórki przeżywają w mniej natlenionym środowisku. Stężenie glukozy w pożywce ustala się zgodnie z fenotypem drożdży (Crabtree-dodatni lub ujemny); ma to kluczowe znaczenie w przypadku drożdży Crabtree-dodatnich, ponieważ wysokie stężenie glukozy hamuje oddychanie mitochondrialne i może mieć wpływ na interpretację danych. Na przykład u S. cerevisiae glukoza powoduje represję kataboliczną, hamując oddychanie mitochondrialne przy wysokich stężeniach glukozy21,22. Na podstawie tych dowodów uzyskuje się niższe wartości oddychania podstawowego, oddychania sprzężonego z ATP i maksymalnego oddychania komórek wyhodowanych przy wysokim stężeniu glukozy (5%) w porównaniu z komórkami drożdży hodowanymi przy niskim stężeniu glukozy (0,5%). Inhibitory łańcucha oddechowego powinny być starannie dobrane w zależności od wrażliwości drożdży; Ma to kluczowe znaczenie dla odrzucenia źródeł zużycia tlenu przez komórki innych niż oddychanie mitochondrialne.
Substraty, rozprzęgacze mitochondriów i inhibitory służą do określania różnych parametrów oddychania mitochondrialnego w nienaruszonych komórkach. Niemniej jednak ich stosowanie ma pewne ograniczenia. Na przykład należy wziąć pod uwagę niespecyficzne cele poza mitochondriami inhibitorów mitochondriów i rozprzęgaczy w nienaruszonych komórkach, aby uniknąć stronniczości w interpretacji zużycia tlenu. Ponadto zastosowanie alternatywnych źródeł węgla do badań przesiewowych miejsca działania w łańcuchu oddechowym powinno być testowane bardziej szczegółowo, ponieważ produkty uboczne metabolizmu glicerolu lub L-mleczanu mogą zostać utlenione w celu redukcji NAD + lub FAD+, które oddają elektrony i aktywują łańcuch oddechowy odpowiednio od dehydrogenaz NADH i kompleksu II. Wreszcie, S. cerevisiae i inne drożdże zawierają transportery PDR, takie jak Yor1p (białko oporności na oligomycynę drożdży), co sugeruje wypływ oligomycyny z komórek23. Ponadto potrzebne są testy z wykorzystaniem komórek z niedoborem PDR, np. szczepu AD1-8, który ma usunięte główne transportery PDR i czynniki transkrypcyjne PDR1 / PDR3, aby potwierdzić zastosowanie oligomycyny w S. cerevisiae do ilościowego określenia oddychania mitochondrialnego.
Wykorzystanie nienaruszonych komórek do ilościowego oznaczania oddychania mitochondrialnego utrzymuje kontekst komórkowy, dając bardziej solidną technikę poznania odżywczego lub środowiskowego wpływu na bioenergetykę drożdży. Co więcej, wykorzystanie nienaruszonych komórek drożdży do ilościowego oznaczania oddychania mitochondrialnego jest bardziej ekonomiczne i na poziomie technicznym łatwiejsze niż izolowane mitochondria. Dodatkowo, podobnie jak w izolowanych testach mitochondriów, różne źródła węgla wskazują na miejsce działania niektórych cząsteczek w łańcuchu oddechowym. Jako dowód koncepcji, technika ta potwierdza, że suplementacja resweratrolem wpływa na łańcuch oddechowy na poziomie dehydrogenazy NADH, ponieważ hamowanie resweratrolu przy oddychaniu podstawowym obserwuje się tylko w przypadku glukozy, a nie glicerolu lub L-mleczanu24. Badania in vitro z rozpuszczonym kompleksem I wykazały, że resweratrol konkuruje z NAD +, wpływając na aktywność kompleksu I25. Potwierdza to fenotyp zaobserwowany w nienaruszonych komórkach za pomocą przedstawionej tutaj techniki. Poza tym technika ta jest również niezawodna w badaniu negatywnego wpływu chemikaliów na oddychanie mitochondrialne drożdży. Na przykład kwercetyna jest polifenolem szeroko badanym w ostatnich dziesięcioleciach. Wśród głównych znalezionych dowodów wykazano, że ogranicza oddychanie mitochondrialne w nienaruszonych komórkach, co zostało potwierdzone przez złożoną aktywność łańcucha oddechowego26,27. Co ważne, różne badania wykazały hamujący wpływ kwercetyny na oddychanie mitochondrialne w różnych badaniach modelowych28.
Ważne jest, aby mieć szczegółowy opis metabolizmu drożdży, w tym bioenergetyki, ponieważ mikroorganizmy te mogą być patogenami zwierzęcymi, w tym ludźmi, i są również wykorzystywane jako fabryki komórek lub w zastosowaniach biotechnologicznych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została wsparta przez Tecnológico Nacional de México (Grant 20026.24-PD) przyznany LAMP.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 2-thenoilotrifluoroaceton (TTFA) | Merck | T27006 | Inhibitor kompleksu II |
| 3-chlorofenylohydrazon cyjanek karbonylu (CCCP) | Merck | C2759 | Rozprzęgacz oddychania mitochondrialnego |
| Absolut etanol | Merck | 107017 | Do rozpuszczania kwercetyny |
| Agar | Merck | A1296 | YPD preparat agarowy |
| Siarczan amonu granulowany (NH4)2SO4 | J.T. Baker | 0792-05 | SC preparat bulionowy |
| Antymycyna A (AA) | Merck | A8674 | Inhibitor kompleks III |
| aYSI5300A | ---- | ---- | Monitor |
| Wirówka | Hermle | Z 206 A | Do wirowania komórek |
| Elektroda tlenowa | ---- | ---- | typu Clarka |
| Komputer | ---- | ---- | Do akwizycji danych |
| Fosforan dipotasowy K2HPO4 | J.T. Baker | 3252-05 | SC preparat bulionowy |
| Glukoza | Merck | G7021 | Preparat bulionu YPD |
| Glicerol | Merck | G5516 | Podłoże substratowe suplementacja |
| Mleczan | Merck | L1250 | Podłoże substratowe suplementacja |
| Oligomycyna z Streptomyces diastatochromogenes | Merck | O4876 | Hamowanie mitochondrialnej syntazy ATP |
| Wytrząsarka orbitalna | Thermo Fisher | SHKE6000 | Inokulum inkubacja szklane probówki i kolba |
| Pepton z kazeiny, trawienie enzymatyczne | Merck | 82303 | YPD preparat bulionowy |
| Kwercetyna | Merck | 337951 | Na zmniejszenie oddychania mitochondrialnego |
| Uracil | Preparat bulionowy | Merck | U0750 |
| Ekstrakt drożdżowy Preparat | Merck | Y1625 | YPD |
| Drożdżowa baza azotowa bez aminokwasów i siarczanu amonu | Preparat bulionowy | Merck | Y1251 |
| Syntetyczne podłoże Syntetyczne suplementy bez uracylu | Przygotowanie bulionu | Merck | Y1501 |
Bibliografia
- Jang, D. H., Seeger, S. C., Grady, M. E., Shofer, F. S., Eckmann, D. M. Mitochondrial dynamics and respiration within cells with increased open pore cytoskeletal meshes. Biol Open. 6 (12), 1831-1839 (2017).
- Duvezin-Caubet, S., Caron, M., Giraud, M. F., Velours, J., di Rago, J. P. The two rotor components of yeast mitochondrial ATP synthase are mechanically coupled by subunit delta. Proc Natl Acad Sci. 100 (23), 13235-13240 (2003).
- Vakifahmetoglu-Norberg, H., Ouchida, A. T., Norberg, E. The role of mitochondria in metabolism and cell death. Biochem Biophys Res Comm. 482 (3), 426-431 (2017).
- Matus-Ortega, M. G., et al. New complexes containing the internal alternative NADH dehydrogenase (Ndi1) in mitochondria of Saccharomyces cerevisiae. Yeast. 32 (10), 629-641 (2015).
- Avéret, N., Jobin, M. L., Devin, A., Rigoulet, M. Proton pumping complex I increases growth yield in Candida utilis. Biochim Biophys. 1847 (10), 1320-1326 (2015).
- Schägger, H. Respiratory chain supercomplexes. IUBMB Life. 52 (3-5), 119-128 (2001).
- Lasserre, J. P., et al. Yeast as a system for modeling mitochondrial disease mechanisms and discovering therapies. Dis Model Mech. 8 (6), 509-526 (2015).
- Turina, P., Samoray, D., Gräber, P. H+/ATP ratio of proton transport-coupled ATP synthesis and hydrolysis catalysed by CF0F1-liposomes. EMBO J. 22 (3), 418-426 (2003).
- Zhang, J., et al. Measuring energy metabolism in cultured cells, including human pluripotent stem cells and differentiated cells. Nat Prot. 7 (6), 1068-1085 (2012).
- Kuznetsov, A. V., Javadov, S., Margreiter, R., Hagenbuchner, J., Ausserlechner, M. J. Analysis of mitochondrial function, structure, and intracellular organization in situ in cardiomyocytes and skeletal muscles. Int J Mol Sci. 23 (4), 2252(2022).
- Divakaruni, A. S., Jastroch, M. A practical guide for the analysis, standardization and interpretation of oxygen consumption measurements. Nat Metab. 4 (8), 978-994 (2022).
- Brand, M. D., Nicholls, D. G. Assessing mitochondrial dysfunction in cells. Biochem J. 435 (2), 297-312 (2011).
- Mookerjee, S. A., Gerencser, A. A., Nicholls, D. G., Brand, M. D. Quantifying intracellular rates of glycolytic and oxidative ATP production and consumption using extracellular flux measurements. J Biol Chem. 292 (17), 7189-7207 (2017).
- Rosenfeld, E., Beauvoit, B. Role of the non-respiratory pathways in the utilization of molecular oxygen by Saccharomyces cerevisiae. Yeast. 20 (13), 1115-1144 (2003).
- Granados-Arvizu, J. A., Canizal-García, M., Madrigal-Pérez, L. A., González-Hernández, J. C., Regalado-González, C. Inhibition of alternative respiration system of Scheffersomyces stipitis and effect on glucose or xylose fermentation. FEMS Yeast Res. 21 (2), foab005(2021).
- Carrillo-Garmendia, A., et al. Snf1p/Hxk2p/Mig1p pathway regulates hexose transporters transcript levels, affecting the exponential growth and mitochondrial respiration of Saccharomyces cerevisiae. Fungal Genet Biol. 161, 103701(2022).
- Maslanka, R., Zadrag-Tecza, R. Reproductive potential of yeast cells depends on overall action of interconnected changes in central carbon metabolism, cellular biosynthetic capacity, and proteostasis. Int J Mol Sci. 21 (19), 7313(2020).
- Olivares-Marin, I. K., et al. Interactions between carbon and nitrogen sources depend on RIM15 and determine fermentative or respiratory growth in Saccharomyces cerevisiae. Appl Microbiol Biotechnol. 102 (10), 4535-4548 (2018).
- Malecki, M., Kamrad, S., Ralser, M., Bähler, J. Mitochondrial respiration is required to provide amino acids during fermentative proliferation of fission yeast. EMBO Rep. 21 (11), e50845(2020).
- Carrillo-Garmendia, A., et al. Cytotoxicity of quercetin is related to mitochondrial respiration impairment in Saccharomyces cerevisiae. Yeast. 39 (11-12), 617-628 (2022).
- Hagman, A., Sall, T., Piskur, J. Analysis of the yeast short-term Crabtree effect and its origin. FEBS J. 281 (21), 4805-4814 (2014).
- Gancedo, J. M. Yeast carbon catabolite repression. Microbiol Mol Biol Rev. 62 (2), 334-361 (1998).
- Katzmann, D. J., et al. Expression of an ATP-binding cassette transporter-encoding gene (YOR1) is required for oligomycin resistance in Saccharomyces cerevisiae. Mol Cell Biol. 15 (12), 6875-6883 (1995).
- Madrigal-Perez, L. A., Nava, G. M., Gonzalez-Hernandez, J. C., Ramos-Gomez, M. Resveratrol increases glycolytic flux in Saccharomyces cerevisiae via a SNF1-dependet mechanism. J Bioenerr Biomemb. 47 (4), 331-336 (2015).
- Gueguen, N., et al. Resveratrol directly binds to mitochondrial complex I and increases oxidative stress in brain mitochondria of aged mice. PloS One. 10 (12), e0144290(2015).
- Lagoa, R., Graziani, I., Lopez-Sanchez, C., Garcia-Martinez, V., Gutierrez-Merino, C. Complex I and cytochrome c are molecular targets of flavonoids that inhibit hydrogen peroxide production by mitochondria. Biochim Biophys Acta. 1807 (12), 1562-1572 (2011).
- de Oliveira, M. R., et al. Quercetin and the mitochondria: A mechanistic view. Biotechnol Adv. 34 (5), 532-549 (2016).
- Carrillo-Garmendia, A., Madrigal-Perez, L. A., Regalado-Gonzalez, C. The multifaceted role of quercetin derived from its mitochondrial mechanism. Mol Cell Biochem. , (2023).
Przedruki i uprawnienia
