Tutaj prezentujemy protokół charakteryzujący pozakomórkowy transfer elektronów za pośrednictwem (EET) u bakterii kwasu mlekowego za pomocą trzyelektrodowego, dwukomorowego systemu bioelektrochemicznego. Ilustrujemy tę metodę za pomocą Lactiplantibacillus plantarum i mediatora redoks kwasu 1,4-dihydroksy-2-naftoesowego i podajemy dokładny opis technik elektrochemicznych stosowanych do oceny EET, w którym pośredniczy.
Artykuł metodologiczny
Charakterystyka pośredniczonego zewnątrzkomórkowego transferu elektronów u bakterii kwasu mlekowego za pomocą trójelektrodowego, dwukomorowego układu bioelektrochemicznego
W tym artykule
Podsumowanie
Streszczenie
Wiele bakterii przeprowadza zewnątrzkomórkowy transfer elektronów (EET), dzięki któremu elektrony są przenoszone z komórki do zewnątrzkomórkowego końcowego akceptora elektronów. Ten akceptor elektronów może być elektrodą, a elektrony mogą być dostarczane pośrednio przez cząsteczkę mediatora aktywnego redoks. W tym miejscu przedstawiamy protokół badania EET za pośrednictwem Lactiplantibacillus plantarum, probiotycznej bakterii kwasu mlekowego szeroko stosowanej w przemyśle spożywczym, przy użyciu systemu bioelektrochemicznego. Szczegółowo opisujemy, jak zmontować trójelektrodowy, dwukomorowy system bioelektrochemiczny i udzielamy wskazówek dotyczących charakteryzowania EET w obecności rozpuszczalnego mediatora przy użyciu technik chronoamperometrii i woltamperometrii cyklicznej. Wykorzystujemy reprezentatywne dane z eksperymentów EET za pośrednictwem kwasu 1,4-dihydroksy-2-naftoesowego (DHNA) z L. plantarum, aby zademonstrować analizę i interpretację danych. Techniki opisane w tym protokole mogą otworzyć nowe możliwości dla elektrofermentacji i bioelektrokatalizy. Niedawne zastosowania tej techniki elektrochemicznej z L. plantarum wykazały przyspieszenie przepływu metabolicznego w kierunku wytwarzania końcowych produktów fermentacji, które są krytycznymi składnikami smakowymi w fermentacji żywności. W związku z tym system ten ma potencjał do dalszego rozwoju w celu zmiany smaków w produkcji żywności lub produkcji cennych substancji chemicznych.
Wprowadzenie
Systemy bioelektrochemiczne łączą mikroby z elektrodami, co pozwala na badanie mechanizmów pozakomórkowego transportu elektronów (EET) i dostarcza odnawialnych podejść do bioelektrokatalizy1,2,3. Mikroby, które naturalnie przeprowadzają EET, nazywane są egzoelektrogenami; przenoszą one elektrony pochodzące z metabolizmu do pozakomórkowych terminalnych akceptorów elektronów, np. (hydr)tlenków żelaza i elektrod1. Ścieżki EET, po raz pierwszy opisane u gatunków Geobacter i Shewanella4,5, zostały od tego czasu zidentyfikowane u wielu bakterii. Egzoelektrogeny te odgrywają kluczową rolę w wielu mikrobowych technologiach elektrochemicznych, takich jak generowanie energii elektrycznej ze strumieni odpadów, wiązanie CO2 oraz produkcja cennych chemikaliów poprzez elektrosyntezę1,6,7,8,9,10,11,12.
Jednym z takich egzoelektrogenów jest Lactiplantibacillus plantarum, gram-dodatnia bakteria kwasu mlekowego13. L. plantarum to koczująca bakteria probiotyczna, która bytuje w szerokim zakresie środowisk, w tym w jelitach ludzi i innych kręgowców, a także w wielu rodzajach żywności, takich jak mięso, zboża, warzywa oraz fermentowane produkty spożywcze i napoje14,15,16,17. Jej genom koduje elastyczny metabolizm heterofermentacyjny, co umożliwia skuteczną adaptację w tych zróżnicowanych środowiskach. Jest ona dobrze przebadana, szeroko stosowana w przemyśle spożywczym i zdrowotnym oraz ogólnie uznana za bezpieczną przez Food and Drug Administration18,19. W związku z tym L. plantarum ma potencjał, aby służyć jako użyteczna platforma dla technologii opartych na EET.
Niedawne badania nad L. plantarum zidentyfikowały wielogenowy operon kodujący złożoną ścieżkę EET, pierwotnie opisaną u Listeria monocytogenes13,20. W przypadku L. plantarum białka syntetyzowane z tego operonu ułatwiają EET w systemie bioelektrochemicznym (BES), gdy dostarczony zostanie chinon 1,4-dihydroksy-2-naftalowy (DHNA) jako mediator elektronów13. Pierwszym kluczowym białkiem w tej ścieżce jest związana z błoną reduktaza NADH-chinonowa (Ndh2), która utlenia NADH i redukuje DHNA. DHNA przekazuje elektrony bezpośrednio do elektrody lub pośrednio za pomocą białka akcesoryjnego PplA (Rysunek 1)13,21,22. Najnowsze badania wskazują, że L. plantarum może również wykorzystywać inne chinony, strukturalnie podobne do DHNA, jako mediatory elektronów; jednak L. plantarum nie jest w stanie produkować DHNA ani tych alternatywnych chinonów, zatem mediatory muszą być egzogenicznie obecne w środowisku, aby mogło dojść do procesu EET13,22,23.

Rysunek 1: Przepływ elektronów w EET Lactiplantibacillus plantarum. Ndh2 przekazuje elektrony z NADH do chinonu DHNA. Elektrony są transportowane do elektrody w celu wytworzenia prądu, albo bezpośrednio przez zredukowany chinon, albo pośrednio przez białko akcesoryjne PplA. Skróty: FAD = flawinoadeninodynukleotyd; FMN = flawinomononukleotyd; EET = zewnątrzkomórkowy transport elektronów; NADH = zredukowany nikotynamidoadeninodynukleotyd; Ndh2 = NADH-chinonowa oksydoreduktaza; DHNA = kwas 1,4-dihydroksy-2-naftowy; PplA = fosfolipaza A. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
W niniejszym artykule przedstawiamy szczegółowy protokół wykorzystania metody opartej na BES do charakterystyki EET pośredniczonego przez DHNA u L. plantarum. System trójelektrodowy z dwiema komorami ogranicza bakterie do elektrody roboczej, co pozwala na precyzyjną kontrolę potencjału przyłożonego do bakterii, zapobiegając jednocześnie interferencjom między elektrodą roboczą a przeciwelektrodą. Prezentujemy kompletny protokół obejmujący 5 dni, który obejmuje przygotowania przed eksperymentem, montaż BES, analizę EET z wykorzystaniem chronoamperometrii (CA) i woltamperometrii cyklicznej (CV) oraz analizę próbek po eksperymencie. Protokół ten można zastosować do wyjaśnienia mechanizmów ścieżek EET oraz do budowy systemów elektrofermentacji i elektrokatalizy.
Protokół
UWAGA: Dwukomorowe zestawy BES będą w poniższym protokole określane jako „reaktory”.
1. Przygotowanie pożywek
- Przygotowanie pożywek do hodowli L. plantarum.
- Przygotować komercyjną pożywkę MRS (de Man Rogosa Sharpe) zgodnie z instrukcją oraz pożywkę mMRS24 zgodnie z opisem w Tabeli 1. Dostosować pH pożywki mMRS do wartości 6,5. Obie pożywki wysterylizować przez filtrację, przepuszczając je przez filtr 0,22 µm, a następnie przechowywać w temperaturze 4 ˚C do momentu użycia.
- Przygotować chemicznie zdefiniowaną pożywkę z mannitolem (mCDM)13,25 zgodnie z opisem w Tabeli 2 i dostosować pH do wartości 6,5. Przygotować ilość pożywki wystarczającą do napełnienia komory anodowej każdego reaktora objętością 110 mL. Pożywkę mCDM wysterylizować przez filtrację przy użyciu filtra 0,22 µm.
UWAGA: Pożywkę mCDM należy przygotowywać na świeżo w dniu planowanego użycia. Roztwory poszczególnych składników można przygotować wcześniej. Wszystkie roztwory składników wysterylizować przez filtrację przy użyciu filtra 0,22 µm i przechowywać w temperaturze 4 ˚C. Podczas przygotowywania witamin Wolfe'a, przed sterylizacją dostosować pH do wartości 11 i przechowywać w ciemności lub owinięte folią. Podczas przygotowywania minerałów Wolfe'a, po dodaniu kwasu nitrylotrylooctowego (NTA) dostosować pH do wartości 8. Następnie dodać pozostałe składniki, wysterylizować i przechowywać w ciemności lub owinięte folią.
- Przygotować 1x PBS i wysterylizować w autoklawie. Przechowywać w temperaturze 4 ˚C do wykorzystania w niniejszym protokole.
- Przygotować komercyjną pożywkę M9 zgodnie z instrukcją (Tabela 3) i wysterylizować w autoklawie. Przygotować ilość pożywki wystarczającą do napełnienia komory katodowej każdego reaktora objętością 110 mL. Przechowywać w temperaturze pokojowej.
2. Dzień 1: Montaż reaktora BES i wstępne hodowanie L. plantarum
UWAGA: Patrz Rysunek 2, aby zapoznać się ze schematem reaktora BES oraz diagramem szczegółowo przedstawiającym elementy montażowe wskazane w protokole.

Rycina 2: Komponenty BES i schemat montażu. (A) Schemat dwukomorowego reaktora BES. Bakterie (kolor zielony) w komorze anodowej przekazują elektrony do elektrody roboczej (czarne koło) w obecności mediatora chinonowego. Elektrony przepływają przez obwód do komory katodowej, co umożliwia pomiar natężenia prądu między anodą a katodą za pomocą potencjostatu. (B) Zdjęcie przedstawiające w pełni zmontowany reaktor BES, w tym igły wlotowe i wylotowe N2 w komorze anodowej. (C) Zdjęcie przedstawiające wszystkie części rozmontowanego reaktora. Skrót: BES = bioelektrochemical system (system bioelektrochemiczny). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Złożenie i sterylizacja reaktorów.
- Przygotowanie elektrod roboczych i pomocniczych. Przecięte druty tytanowe o średnicy 1,0 mm dla elektrod roboczych i pomocniczych szlifować papierem ściernym z tlenku glinu, aż staną się równomiernie błyszczące. Za pomocą szczypiec zagiąć jeden koniec każdego drutu elektrody roboczej w mały haczyk. Na każdy drut elektrody roboczej nasunąć okrągły kawałek filcu węglowego o powierzchni 16 cm2, przeplatając drut przez filc raz i przesuwając go w dół drutu, aż zostanie zabezpieczony na haczyku. Zamocować elektrody robocze i pomocnicze w nakrętkach GL45, przebijając gumową septę drutem i przeciągając go przez kilka centymetrów.
- Aby złożyć sparowane reaktory, najpierw złożyć uszczelkę O-ring i umieścić w niej wcześniej namoczoną w wodzie, dociętą membranę wymiany kationowej. Umieścić O-ring z membraną pomiędzy dużymi dolnymi otworami dwóch sparowanych butelek reaktora. Zabezpieczyć parę butelek reaktora oraz O-ring z membraną za pomocą zacisku typu knuckle, dokręcając go palcami. Wrzucić magnetyczny mieszadło do każdej komory anodowej, a następnie zamknąć wszystkie małe otwory na górze każdej butelki nakrętkami GL14 z gumowymi septami.
UWAGA: Nie dokręcać zbyt mocno zacisków typu knuckle ani nakrętek, ponieważ może to doprowadzić do pęknięć lub stłuczenia butelek. - Napełnić każdą butelkę reaktora 110 mL wody dejonizowanej (DI), a następnie zamknąć każdą butelkę odpowiednią nakrętką GL45 z zamontowaną elektrodą. Włożyć nakrętki z elektrodą roboczą z filcu węglowego, delikatnie dociskając górę filcu, aby pozostał on na haczyku.
UWAGA: Świeży filc węglowy jest hydrofobowy i odpycha wodę w reaktorze podczas wstępnego montażu. Autoklawowanie sprawi, że filc węglowy stanie się odpowiednio hydrofilowy do przeprowadzenia eksperymentu. - Przygotować nakrętki GL14 na elektrody z silikonowymi pierścieniami uszczelniającymi.
- Przed autoklawowaniem delikatnie poluzować wszystkie nakrętki GL45. Autoklawować napełnione wodą reaktory oraz nakrętki na elektrody w celu sterylizacji. Po autoklawowaniu pozwolić reaktorom ostygnąć do temperatury pokojowej.
- Hodowla L. plantarum NCIMB8826. W warunkach sterylnych pobrać niewielką ilość bakterii z powierzchni banku w glicerolu i zaszczepić do 3 mL komercyjnej pożywki MRS. Hodować kulturę przez noc w temperaturze 37 ˚C bez wytrząsania.
UWAGA: L. plantarum nie wykorzystuje tlenu jako końcowego akceptora elektronów; dlatego nie jest konieczne natlenianie pożywki poprzez wytrząsanie26. Jednak warunki hodowli będą się różnić w przypadku zastosowania innych mikroorganizmów.
3. Dzień 2: Przygotowanie elektrod odniesienia, przygotowanie reaktorów do rozpoczęcia eksperymentu oraz pasażowanie L. plantarum
- Przygotuj elektrody odniesienia Ag/AgCl.
UWAGA: Kroki te opisują przygotowanie elektrod odniesienia Ag/AgCl wskazanych w Tabeli Materiałów. W przypadku użycia innej elektrody odniesienia należy postępować zgodnie z instrukcjami producenta.- Rozmontuj elektrody odniesienia Ag/AgCl i oszlifuj przewody. Delikatnie wyciągnij elektrodę z szklanej obudowy i potrząśnij obudową, aby opróżnić ją ze starego roztworu KCl. Delikatnie oszlifuj przewody elektrody papierem ściernym z tlenku glinu, aż staną się równomiernie błyszczące, aby usunąć utlenione materiały.
- Zbierz wszystkie oszlifowane przewody elektrod odniesienia w małym zlewce z małym mieszadełkiem magnetycznym i napełnij zlewkę 100% wybielaczem, aż przewody zostaną w pełni zanurzone. Przeprowadź chlorkowanie przewodów, pozostawiając je w wybielaczu na mieszalce przez 30 min, aż elektrody przybiorą ciemniejszy szary kolor. Po wybielaniu dokładnie opłucz przewody elektrod wodą DI.
- Aby ponownie złożyć elektrodę odniesienia, użyj strzykawki, aby całkowicie napełnić szklaną obudowę roztworem 3 M KCl nasyconym chlorkiem srebra, delikatnie stukując w bok, aby usunąć pęcherzyki powietrza. Za pomocą tej samej strzykawki napełnij roztworem KCl nasadkę przewodu elektrody, a następnie włóż przewód do obudowy. Przystaw dno szklanej obudowy do ręcznika papierowego na blacie, włóż elektrodę do szklanej obudowy, a następnie mocno dociśnij nasadkę, aby zamknąć elektrodę. Przechowuj elektrody odniesienia w zlewce płytko wypełnionej roztworem KCl do momentu ich użycia i powtórz czynność dla wszystkich pozostałych elektrod odniesienia.
- Użyj cyfrowego multimetru, aby zmierzyć napięcie wykonanych samodzielnie elektrod odniesienia Ag/AgCl.
- Zanurz płytko końce elektrod odniesienia Ag/AgCl (szacowane na 197 mV względem standardowej elektrody wodorowej, SHE) w zlewce wypełnionej 3 M KCl. Bezpiecznie podłącz multimetr do kupionej komercyjnie nasyconej elektrody kalomelewej (SCE, 241 mV względem SHE), która jest również zanurzona w tych samych elektrolitach KCl.
- Zmierz różnicę potencjałów między każdą elektrodą odniesienia a SCE. Potwierdź, że elektrody odniesienia różnią się od SCE o 44 ± 10 mV. Rozmontuj i ponownie złóż każdą elektrodę odniesienia, która znajduje się poza tym zakresem.
- Uszczelnij miejsce styku nasadki z szklaną obudową parafilmem.
- Przygotuj reaktory do eksperymentu.
- W sterylnej komorze bezpieczeństwa biologicznego wymień autoklawowaną wodę w reaktorach na odpowiednie pożywki. Wylej autoklawowaną wodę. Napełnij komory katodowe 110 mL autoklawowanej pożywki M9. Napełnij komory anodowe 110 mL świeżo przygotowanego mCDM.
- Zainstaluj elektrody odniesienia. Zdejmij jedną nasadkę GL14 z każdej komory anodowej i zastąp ją autoklawowaną nasadką elektrody (nasadka GL14 z silikonowym pierścieniem uszczelniającym). Spryskaj elektrody odniesienia 70% etanolem w celu sterylizacji, a następnie wprowadź jedną elektrodę odniesienia przez nasadkę elektrody do każdej komory anodowej.
UWAGA: Upewnij się, że elektroda odniesienia nie ma bezpośredniego kontaktu z filcem węglowym. - Przed wyjęciem reaktorów z komory bezpieczeństwa biologicznego dokręć wszystkie nasadki i zaciski palcami, aby uniknąć wycieków.
- Podłącz reaktory do systemu pompy wodnej. Postaw każdy reaktor na odpowiedniej platformie z mieszadełkiem. Połącz króćce płaszcza wodnego każdego reaktora z kolejnym za pomocą gumowych przewodów, łącząc reaktory końcowe z przewodami dopływowymi i odpływowymi pompy wodnej.
UWAGA: Upewnij się, że wszystkie połączenia są szczelne i nie ma wycieków, używając w razie potrzeby opasek zaciskowych do zabezpieczenia przewodów. - Napełnij pompę wodą i dodaj 4-6 kropli kondycjonera do wody. Włącz system pompy i ustaw temperaturę na 30 ˚C. Uruchom pompę i obserwuj przepływ wody przez wszystkie płaszcze wodne reaktorów, upewniając się, że w żadnym z połączeń nie ma wycieków.
- Włącz platformy mieszające i ustaw je na ciągłe mieszanie przy 220 RPM.
- Podłącz reaktory do linii gazowych do napowietrzania azotem. Przymocuj filtr powietrza do 4-calowej igły 22 G i wprowadź igłę przez górną septę komory anodowej reaktora do pożywki, aby służyła jako wlot azotu. Wprowadź drugą 1-calową igłę 18 G do górnej septy komory anodowej, aby służyła jako wylot azotu. Podłącz linie gazowe ze źródła azotu do filtra powietrza i otwórz zawór, aby gaz delikatnie bąblował przez reaktor. Upewnij się, że azot bąbluje przez wszystkie komory anodowe w sposób ciągły przez cały eksperyment, aby utrzymać warunki beztlenowe.
UWAGA: Upewnij się, że igła wlotowa jest ustawiona z dala od filcu węglowego. Strumień pęcherzyków nie powinien mieć kontaktu ani z filcem węglowym, ani z elektrodami odniesienia. - Podłącz bioreaktory do przewodów potencjostatu. Podłącz przewody z klipsami typu aligator elektrody roboczej, przeciwprądowej i odniesienia z potencjostatu do odpowiadających im elektrod.
UWAGA: Użyj multimetru, aby sprawdzić rezystancję między przewodem/kolektorem prądu a elektrodami, aby zapewnić prawidłowe połączenia elektryczne i zminimalizować potencjalne błędy pomiarowe.
- Wprowadź parametry potencjostatu dla przebiegu wstępnego.
UWAGA: Krytyczne ustawienia techniki podano poniżej. Zob. Tabelę 4 w celu uzyskania rozszerzonej listy ustawień oprogramowania dla każdej techniki.- Włącz potencjostat i uruchom oprogramowanie EC-lab na komputerze. Połącz potencjostat z komputerem, klikając przycisk symbol potencjostatu w górnym lewym panelu pod sekcją Devices. Po połączeniu nazwa urządzenia pojawi się wraz z zielonym kółkiem w polu tekstowym poniżej.
- Zsynchronizuj wszystkie kanały podłączone do bioreaktorów w jedną grupę, klikając kartę Edit , a następnie wybierając synchronize. Kliknij odpowiednie pola numeru kanału | ok.
- Dodaj technikę napięcie obwodu otwartego (OCV) do potencjostatu, klikając przycisk + w panelu Parameters Settings po lewej stronie. W niebieskim polu ustawień ustaw pomiar potencjału elektrody roboczej (EWE) względem elektrody odniesienia (RE), rejestrując czas w interwałach dt co 36 s przez łącznie 3 h.
- Następnie dodaj do potencjostatu technikę woltametrii cyklicznej (CV). Ustaw potencjał początkowy EWE na Ei wynoszący 0 V względem RE przy szybkości skanowania 2 mV/s. Przeskanuj do potencjału wierzchołkowego (E1) 0.4 V względem RE, wracając do potencjału wierzchołkowego (E2) -0.7 V względem RE. Powtórz skanowanie łącznie dla dwóch cykli.
UWAGA: W mikrobiologicznych systemach elektrochemicznych inokulacja mikrobiologiczna i tworzenie biofilmu indukują wysokie pojemności w porównaniu z materiałami metalicznymi lub cząsteczkami nieorganicznymi. Podczas skanowania woltametrii cyklicznej potencjał zmienia się, a prąd ładowania działa jako tło. Aby uzyskać wysoki stosunek sygnału do szumu, konieczne są niższe szybkości skanowania, choć zwiększa to czas trwania skanowania. Ponieważ skanujemy dwa cykle obejmujące szerokie okno elektrochemiczne 1,1 V, szybkość skanowania 2 mV/s skutkuje tym, że półcykl trwa do 9,1 min. W konsekwencji dwa cykle zajmują łącznie 36,4 min. Dalsza redukcja szybkości skanowania byłaby nadmiernie czasochłonna. - Dodaj technikę chronoamperometrii (CA). Zastosuj stały potencjał EWE wynoszący 0.2 V względem RE przez czas t = 200 h, rejestrując czas w interwałach dt co 25-40 s. Dostosuj interwał czasowy na podstawie oprogramowania potencjostatu, aby uzyskać pożądany poziom szczegółowości.
UWAGA: Potencjał środkowy DHNA wynosi około -0,093 V vs. Ag/AgCl; zatem zastosowany potencjał 0,2 V względem RE na elektrodzie roboczej jest wystarczający, aby umożliwić transfer elektronów z DHNA do elektrody. - Po wprowadzeniu wszystkich parametrów rozpocznij pomiar, naciskając zielony trójkąt startu. Zapisz plik zgodnie z instrukcjami oprogramowania, a następnie kliknij Save. Oprogramowanie rozpocznie technikę 1, „OCV”. Obserwuj przebiegi OCV przez kilka minut, aby upewnić się, że wszystkie reaktory wykazują wartości dodatnie i zbliżone do siebie przy stabilnym sygnale. Pozostaw eksperyment do pracy przez noc, aby ukończyć OCV i początkowe CV (zob. Dodatkową Rysunk S1 dla CV kontroli pożywek) i pozwól, aby CA działało aż do stabilizacji.
- W warunkach sterylnych wykonaj pasaż kultury MRS L. plantarum w stosunku 1:200 w 50 mL mMRS. Hoduj komórki przez noc w temperaturze 37 ˚C bez wstrząsania.
UWAGA: 50 mL kultury nocnej zazwyczaj produkuje więcej niż wystarczającą liczbę komórek dla sześciu reaktorów, przy założeniu końcowej wartości OD600 wynoszącej 0,2 w reaktorze. Dostosuj objętości kultur w zależności od skali eksperymentu.
4. Dzień 3: Iniekcja komórek oraz DHNA/DMSO
- Przemyć komórki i wprowadzić je do reaktorów.
- Wyjąć kulturę L. plantarum w mMRS z inkubatora rano. W warunkach sterylnych przenieść kulturę do probówki stożkowej o pojemności 50 mL i umieścić ją na lodzie.
- Przemyć komórki 2x w sterylnym, zimnym 1x PBS. W tym celu odwirować kulturę przy 4,000 × g przez 5 min w wirówce ustawionej na 4 ˚C, aby uzyskać osad komórkowy. W warunkach sterylnych delikatnie, ale dokładnie resuspender komórki w 50 mL PBS, a następnie ponownie odwirować w ten sam sposób; powtórzyć procedurę dla drugiego przemycia. Po końcowym wirowaniu resuspender komórki w zimnym PBS do uzyskania OD600 = 11.
- W warunkach sterylnych nabrać 2 mL resuspenderowanych komórek do strzykawki 3 mL z igłą dla każdego reaktora.
- Przy stanowisku z reaktorami zdjąć nasadkę strzykawki z komórkami i wprowadzić igłę do górnej części komory anodowej reaktora. Na tym etapie nie naciskać tłoka strzykawki; powtórzyć czynność dla wszystkich reaktorów. Gdy wszystkie strzykawki będą na miejscu, nacisnąć tłoki, aby wprowadzić komórki do reaktorów, i odnotować czas wstrzyknięcia na podstawie zapisu CA. Taka objętość komórek zapewnia końcową wartość OD600 wynoszącą 0,2 w reaktorach. Wszystkie strzykawki zutylizować w pojemnikach na odpady biologiczne, a igły w wyznaczonym pojemniku na ostre odpady biologiczne. Pozostawić prąd do czasu stabilizacji na zapisie CA przez 2-4 h.
UWAGA: Bezpośrednio po wstrzyknięciu na zapisie CA mogą być widoczne wahania prądu. Po 2-4 h wahania te ustabilizują się do stałego poziomu prądu (zmiana prądu <2 µA w ciągu godziny), w którym momencie można wstrzyknąć DHNA.
- Zmierzyć początkowe pH i wstrzyknąć DHNA.
- Przygotować roztwór DHNA. W probówce 1,5 mL przygotować 500 µL roztworu DHNA o stężeniu 20 mg/mL poprzez rozpuszczenie proszku DHNA w 100% DMSO. Napełnić 3 strzykawki insulinowe 110 µL roztworem DHNA oraz 3 strzykawki insulinowe 110 µL samym DMSO.
UWAGA: Choć DHNA jest słabo rozpuszczalne w wodzie, DMSO jest lepszym rozpuszczalnikiem dla roztworów stokowych DHNA przy tym stężeniu. Rozpuszczalnik mediatora może być inny w przypadku zastosowania innych mediatorów. - Przy stanowisku z reaktorami BES oznaczyć reaktory eksperymentalne jako + DHNA, a reaktory kontrolne z rozpuszczalnikiem jako - DHNA. Zdjąć nasadkę strzykawki z DHNA i wprowadzić strzykawkę do górnej części każdej komory anodowej oznaczonej jako + DHNA. Wprowadzić strzykawkę z samym DMSO do każdej komory anodowej oznaczonej jako - DHNA. Na tym etapie nie naciskać tłoków strzykawek.
- Pobrać próbki z punktu czasowego 0 h do analizy próbek. Używając strzykawki 3 mL z igłą 21 G o długości 2 cali, pobrać 2 mL próbki medium z każdej komory anodowej przez nieużywaną małą membranę nakrętki i przenieść próbki do 24-dołkowej płytki głębokiej w celu pomiaru pH dla punktu czasowego 0 h (moment wstrzyknięcia DHNA). W razie potrzeby pobrać 1 mL zużytego medium z każdej komory anodowej i przefiltrować przez filtr 0,2 µm do czystych, podpisanych probówek w celu ilościowego oznaczenia metabolitów za pomocą HPLC lub innych analiz. Próbki zużytego medium przechowywać w temperaturze -80 ˚C.
- Nacisnąć tłoki wszystkich strzykawek z DHNA i DMSO, aby wprowadzić treści do reaktorów. Odnotować czas wstrzyknięcia na podstawie zapisu CA. Utylizować wszystkie strzykawki i igły w odpowiedni sposób.
- Zmierzyć i odnotować wartości pH dla próbek z punktu 0 h dla każdego reaktora.
- Przygotować roztwór DHNA. W probówce 1,5 mL przygotować 500 µL roztworu DHNA o stężeniu 20 mg/mL poprzez rozpuszczenie proszku DHNA w 100% DMSO. Napełnić 3 strzykawki insulinowe 110 µL roztworem DHNA oraz 3 strzykawki insulinowe 110 µL samym DMSO.
5. Dzień 4: Zakończenie eksperymentu i pobieranie próbek
- Przeprowadzić analizę elektrochemiczną 24 h po wstrzyknięciu DHNA i pobrać końcowe próbki.
- Zakończyć pomiar CA 24 h po wstrzyknięciu DHNA.
- Pobrać próbki dla punktu czasowego 24 h do analizy zgodnie z krokiem 4.2.3.
- Ponownie wykonać pomiar CV dla punktu czasowego 24 h zgodnie z parametrami opisanymi w kroku 3.3.4.
- Zmierzyć i zapisać wartość pH dla próbek z każdego reaktora pobranych po 24 h.
- Zdemontować i wyczyścić reaktory.
- Wyłączyć potencjostat. Następnie odłączyć przewody elektrody roboczej, pomocniczej i odniesienia z każdego reaktora. Wytrzeć wilgoć z zacisków krokodylkowych przewodów potencjostatu.
- Wyłączyć przepływ azotu. Odłączyć przewody gazowe, a następnie wyjąć igły doprowadzające i odprowadzające gaz. Wszystkie igły zutylizować w odpowiednim pojemniku na odpady ostre.
- Wyłączyć pompę wodną. Odłączyć rurki doprowadzające i odprowadzające z pompy i pozwolić wodzie spłynąć do wiadra. Podczas odłączania trzymać końce rurek powyżej poziomu wody w pompie, aby zapobiec przelewaniu się wody na podłogę. Odłączać reaktory od rurek płaszcza wodnego jeden po drugim, zaczynając od ostatniego reaktora odpływowego, a kończąc na pierwszym reaktorze dopływowym.
- Wylać całą pożywkę z reaktorów do dużego pojemnika na odpady biologiczne. W celu utylizacji zastosować standardowe metody wybielania kultur.
- Po opróżnieniu zdemontować i wyczyścić wszystkie elementy reaktorów. Membrany wymiany kationowej i krążki z filcu węglowego zutylizować jako odpady biologiczne. Elektrody odniesienia i druty tytanowe wyczyścić 70% etanolem, a wyczyszczone elektrody odniesienia przechowywać w zlewce z niewielką ilością wody. Delikatnie wyczyścić butle reaktorowe, nakrętki, uszczelki O-ring i zaciski w ciepłej wodzie z detergentem laboratoryjnym, dokładnie wypłukać wodą DI i wysuszyć wszystkie części na powietrzu przed przechowywaniem.
6. Dzień 5: Analiza elektrochemiczna
UWAGA: Poniżej znajduje się ogólny opis wykreślania danych dla tego protokołu. Bardziej szczegółowe opisy dotyczące analizy i interpretacji danych zostaną przedstawione w sekcji Wyniki Reprezentatywne.
- W przypadku analizy CA: Przyjmij czas wtryskiwania DHNA jako punkt czasowy 0 h. Przedstaw średnią i odchylenie standardowe zmierzonej gęstości prądu (j w µA/cm2) rejestrowanej co 36 s dla wszystkich powtórzeń, począwszy od punktu 0 h, jako funkcję czasu (h). Oblicz gęstość prądu w zależności od powierzchni elektrody roboczej (16 cm2).
- W przypadku analizy CV: Przedstaw reprezentatywną krzywą CV dla każdego warunku eksperymentalnego (same pożywki, DMSO lub DHNA), obrazującą gęstość prądu (j w µA/cm2) jako funkcję potencjału elektrody roboczej (EWE w V). Przedstaw drugi cykl z wybranego pomiaru CV.
Wyniki
Analiza chronoamperometryczna
EET L. plantarum można zaobserwować na podstawie danych z chronoamperometrii (CA) przedstawionych na Rysunku 3, gdzie przebieg gęstości prądu wizualizuje transfer elektronów z L. plantarum do elektrody roboczej. Monitorowano gęstość prądu (j) w funkcji czasu, utrzymując stały potencjał +200 mV względem Ag/AgCl przez 24 h. Po wstrzyknięciu 20 µg/mL DHNA do mieszanego roztworu elektrolitu zaobserwowano skok związany z abiotycznym utlenianiem DHNA, po którym nastąpił szybki wzrost biotycznej gęstości prądu, osiągający szczyt 132,0 ± 2,47 µA/cm2 mniej więcej w 8. godzinie. W przeciwieństwie do tego, wstrzyknięcie DMSO spowodowało pomijalną gęstość prądu. Wyniki te podkreślają znaczenie DHNA jako niezbędnego i wydajnego mediatora ułatwiającego transfer elektronów pomiędzy L. plantarum a elektrodą. Użytkownicy mogą regulować natężenie prądu poprzez zmianę stężenia DHNA w BES. Wcześniejsze badania wskazują również, że L. plantarum reaguje na DHNA w sposób zależny od dawki w szerokim zakresie stężeń DHNA, generując znaczący prąd przy stężeniach DHNA tak niskich jak 0,01 µg/mL13,22.
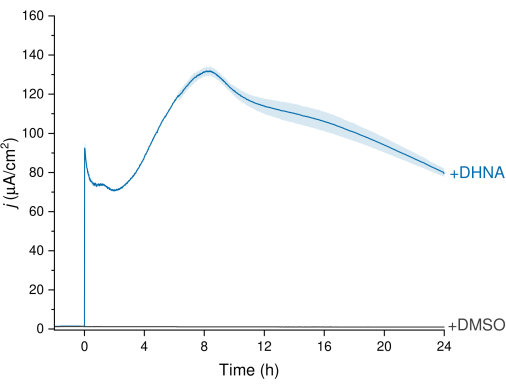
Rysunek 3: Analiza chronoamperometryczna EET Lactiplantibacillus plantarum pośredniczonego przez DHNA. DHNA (20 µg/mL) lub DMSO wstrzyknięto do elektrolitów mCDM (pH~ 6,5), przyjmując czas wstrzyknięcia jako t = 0. j oznacza gęstość prądu w funkcji powierzchni elektrody roboczej. Eksperymenty przeprowadzono przy potencjale 200 mV względem Ag/AgCl z zastosowaniem elektrody z filcu węglowego (16 cm2) oraz mieszaniem. Wartości przedstawiono jako średnia ± sd uzyskane w trzech powtórzeniach w reaktorach BES. Skróty: EET = pozakomórkowy transfer elektronów; DHNA = kwas 1,4-dihydroksy-2-naftoowy; DMSO = dimetylosulfoksyd; mCDM = chemicznie zdefiniowane pożywka z mannitolem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Analiza w woltamperometrii cyklicznej
Aby dalej ocenić EET indukowany przez DHNA w L. plantarumprzeprowadziliśmy woltamperometrię cykliczną 24 h po wstrzyknięciu DHNA. Poniżej przedstawiamy zapisy CV dla trzech warunków: *L. plantarum* z 20 µg/mL DHNA, L. plantarum z DMSO oraz pożywką z 20 µg/mL DHNA. Jak pokazano w Rycina 4Aobecność 20 µg/mL DHNA w reaktorach zawierających *L. plantarum* zaowocowało wyraźnym wzrostem prądu utleniania przy 50 mV, który nie wystąpił w obecności samego DMSO. Dane te potwierdzają, że dodanie mediatora redoks DHNA jest niezbędne do ułatwienia transferu elektronów pomiędzy *L. plantarum* oraz anoda. Podczas gdy zaobserwowaliśmy różne mniejsze piki redoks w *L. plantarum* + ślad DMSO, piki te były podobne do śladu kontrolnego z medium i prawdopodobnie wynikają z obecności komponentów aktywnych redoks w mCDM (Rysunek dodatkowy S1). W Rycina 4Bporównaliśmy ślady DHNA w warunkach biotycznych (*L. plantarum* + DHNA) w porównaniu z DHNA w warunkach abiotycznych (podłoże + DHNA). Choć na obu krzywych odnotowano wyraźny szczyt utleniania DHNA w okolicach 50 mV, trwały wzrost prądu powyżej 50 mV zaobserwowano wyłącznie w warunkach biotycznych. Szczyt katalityczny osiągnął gęstość prądu wynoszącą 129 µA/cm2 przy 300 mV, co stanowi wzrost o 256% w porównaniu ze śladem abiotycznym. Taki profil CV obrotu jest charakterystyczny dla mikrobiologicznego EET27, co wskazuje na ponowną redukcję DHNA przez *L. plantarum* komórki w obecności źródła elektronów (mannitolu) po utlenieniu DHNA na anodzie. Ponadto ślad abiotyczny wykazał nowe piki oksydacyjne w okolicach -240 mV i -180 mV. Wcześniejsze badania wskazują, że pojawienie się tych pików może wynikać z degradacji DHNA do ACNQ (2-amino-3-karboksy-1,4-naftochinonu)21,28Nie zaobserwowano tych pików w śladzie biotycznym, co wskazuje na to, że oddziaływanie L. plantarum komórki zawierające DHNA mogą stabilizować DHNA i zapobiegać jego degradacji. Warto zauważyć, że 24-godzinny ślad dla pożywek z 20 µg/mL DHNA przeprowadzono oddzielnie zgodnie z tym protokołem, bez dodawania komórek.
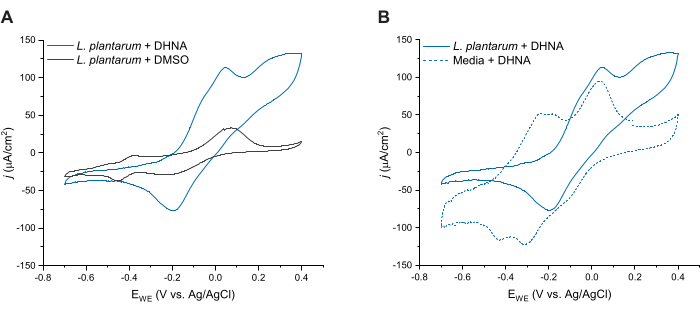
Rysunek 4: Reprezentatywne przebiegi woltamperometrii cyklicznej. Wszystkie eksperymenty CV przeprowadzono w mCDM, wykorzystując filc węglowy (16 cm2) jako elektrodę pracującą, przy szybkości skanowania 2 mV/s podczas mieszania roztworu. (A) Przebiegi CV dla Lactiplantibacillus plantarum z DHNA (20 µg/mL) lub DMSO w czasie t = 24 h. (B) Przebiegi CV dla 20 µg/mL DHNA w obecności L. plantarum (warunki biotyczne) lub w samym mCDM (warunki abiotyczne) w czasie t = 24 h. Skróty: CV = woltamperometria cykliczna; mCDM = chemicznie zdefiniowane podłoże z mannitolem; DHNA = kwas 1,4-dihydroksy-2-naftalowy; DMSO = dimetylosulfotlenek. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Analiza pH
Aktywność EET w L. plantarum spowodowała znaczny spadek pH w ciągu 24 h. Jak pokazano na Ryc. 5, średnie pH próbek L. plantarum eksponowanych na DHNA spadło do 3,33 ± 0,01 (p = 6,85 × 10⁻⁶, n = 3), podczas gdy średnie pH próbek L. plantarum eksponowanych na DMSO spadło do 6,50 ± 0,06 (p = 0,0409, n = 3). Jak wykazano w poprzednich badaniach, spadek ten przypisuje się zwiększeniu metabolizmu fermentacyjnego, który zachodzi, gdy L. plantarum wykazuje aktywność EET13. L. plantarum zazwyczaj metabolizuje mannitol poprzez glikolizę i szlaki fermentacyjne, które produkują octan, mleczan i etanol jako końcowe produkty fermentacji i generują ATP poprzez fosforylację na poziomie substratu29. W warunkach EET strumień metaboliczny poprzez fermentację wzrasta, co zwiększa produkcję końcowych produktów fermentacji w pożywce BES13. Ta zmiana metaboliczna powoduje szybszy spadek pH pożywki w reaktorach z DHNA w porównaniu do reaktorów kontrolnych z DMSO.
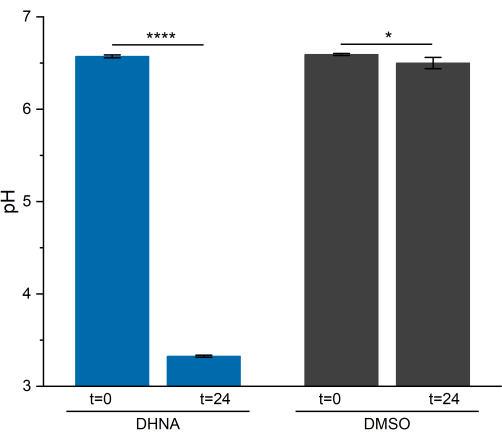
Rysunek 5: Analiza pH bioelektrochemicznego systemu z Lactiplantibacillus plantarum. Próbki pobrano w t = 0 i t = 24 h podczas chronoamperometrii. Wartości przedstawiono jako średnia ± sd uzyskana w trzech powtórzeniach w reaktorach BES. Istotność określono za pomocą jednostronnego testu t-. DHNA: P-value = 6,85 × 10⁻⁶. DMSO: P-value = 0,0409. Skróty: DHNA = kwas 1,4-dihydroksy-2-naftalowy; DMSO = dimetylosulfotlenek. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Tabela 1: Składniki do przygotowania pożywek mMRS24. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 2: Składniki do przygotowania pożywki mCDM. Tabela ta została opracowana na podstawie prac Tejedor-Sanz et al.13 oraz Aumiller et al.25. Kliknij tutaj, aby pobrać tę tabelę.
Tabela 3: Składniki do przygotowania pożywki M9. Proszę kliknąć tutaj, aby pobrać tę tabelę.
Tabela 4: Ustawienia parametrów EC-Lab dla technik OCV, CA i CV. Skróty: OCV = napięcie obwodu otwartego; CA = chronoamperometria; CV = woltamperometria cykliczna. Kliknij tutaj, aby pobrać tę tabelę.
Rycina dodatkowa S1: Reprezentatywne krzywe woltamperometrii cyklicznej dla Lactiplantibacillus plantarum z dodatkiem DMSO oraz samego mCDM. Krzywe CV dla L. plantarum z DMSO w czasie t = 24 h oraz samego mCDM w czasie t = 0 h. Wszystkie eksperymenty CV przeprowadzono z wykorzystaniem filcu węglowego (16 cm2) jako elektrody roboczej, przy szybkości skanowania 2 mV/s podczas mieszania roztworu. Skróty: CV = woltamperometria cykliczna; mCDM = chemicznie zdefiniowane podłoże z mannitolem; DHNA = kwas 1,4-dihydroksy-2-naftoowy; DMSO = dimetylosulfotlenek. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Korzystając z opisanego tutaj trójelektrodowego, dwukomorowego systemu bioelektrochemicznego, pokazaliśmy pomiar wytwarzania prądu z EET za pośrednictwem DHNA w L. plantarum. Te eksperymenty BES generują wysokiej jakości dane; jednak BES są wrażliwe. W związku z tym powodzenie protokołu zależy od precyzji użytkownika, szczególnie w zakresie montażu reaktora i elektrody referencyjnej, pozycjonowania igieł i elektrod w komorze anodowej oraz wymiany membrany kationowymiennej. Bardzo ważne jest, aby reaktory montować ostrożnie, upewniając się, że podczas autoklawowania lub eksperymentów nie dojdzie do wycieku wody/mediów. Wyciek wody można rozwiązać, upewniając się, że membrany kationitowe są przycięte tak, aby dokładnie pasowały do O-ringu i dokręcając zacisk zwrotnicy, aby dokręcił palec. Niezbędne jest również całkowite zanurzenie filcu węglowego w wodzie podczas autoklawowania, aby umożliwić mu uzyskanie hydrofilowości w celach eksperymentalnych. Zalecamy, aby nowi użytkownicy pozwolili, aby nowo zmontowane reaktory wypełnione wodą pozostały przez 2 godziny przed autoklawowaniem, sprawdzając, czy nie ma oznak powolnych wycieków poniżej głównych złączy butli. Co więcej, zapewnienie prawidłowego montażu elektrod referencyjnych gwarantuje spójną replikację danych między reaktorami. Jeśli fryta teflonowa wewnątrz szklanej obudowy zostanie odbarwiona, pęknięta lub wysuszona, może to spowodować wysoką rezystancję elektrody referencyjnej. Użytkownicy mogą wymienić szklaną obudowę, aby przywrócić wydajność elektrody referencyjnej.
Właściwa orientacja wszystkich igieł i elektrod w komorze anodowej podczas eksperymentowania ma kluczowe znaczenie dla powodzenia eksperymentu. Elektroda referencyjna nie może bezpośrednio stykać się z żadną częścią elektrody roboczej z filcu węglowego. Użytkownicy mogą regulować położenie filcu węglowego, delikatnie obracając drut tytanowy elektrody roboczej znad reaktora. Dodatkowo, umieszczenie igły do rozpylania azotu nie powinno mieć bezpośredniego kontaktu z elektrodami w komorze ani z żadnymi połączeniami elektroda/potencjostat nad komorą. Strumień azotu powinien być dostosowany tak, aby nie wpływał do żadnej elektrody. Na koniec użytkownicy powinni upewnić się, że mieszadło nie styka się z elektrodą roboczą, umieszczając elektrodę roboczą 1-2 cm nad mieszadłem. Jeśli w OCV zaobserwuje się nieregularny sygnał, można go zwykle rozwiązać, zapewniając prawidłowe rozmieszczenie elektrod i strumienia azotu w reaktorze oraz sprawdzając, czy połączenia między przewodami potencjostatu a elektrodami reaktora są prawidłowe i bezpieczne. Wreszcie, nasze doświadczenie pokazuje, że mediatory elektronów, takie jak DHNA, mogą być zatrzymywane w błonie kationowymiennej i powodować wysoki prąd tła, jeśli są ponownie używane zbyt wiele razy. Zalecamy wymianę membrany kationowymiennej po dwóch lub trzech użyciach, zwłaszcza w przypadku badania EET, w którym pośredniczy EET, aby zagwarantować wiarygodne wyniki eksperymentalne.
W przeciwieństwie do bezpośredniego EET, w którym bezpośrednie przyłączenie mikrobiologiczne do elektrody ułatwia przenoszenie elektronów, EET za pośrednictwem wymaga stałej dyfuzji wahadłowców elektronów przez błonę komórkową i elektrodę, co skutkuje unikalnymi ustawieniami BES opisanymi tutaj. Po pierwsze, wybraliśmy dwukomorowy BES zamiast jednokomorowego odpowiednika w naszym protokole, aby oddzielić reakcje anodowe i katodowe za pomocą membrany kationowymiennej. Ta separacja zapobiega swobodnej dyfuzji mediatorów elektronów (DHNA) i mikroorganizmom przed interakcją krzyżową z katodą, zapewniając, że mikrobiologiczny EET jest głównym źródłem elektronów do redukcji mediatorów elektronów i anody. Separacja umożliwia również precyzyjną kontrolę parametrów, takich jak stężenie/dystrybucja mediatora i potencjał przypadający na anodę. Dodatkowo wybraliśmy filc węglowy jako materiał anodowy spośród innych opcji, takich jak pręty grafitowe, elektrody metalowe, węgiel szklisty lub tlenek indu cyny (ITO). Dzieje się tak, ponieważ porowata struktura filcu węglowego 3D zapewnia znacznie większą powierzchnię niż te elektrody30, co pozwala na efektywne wykorzystanie mediatorów nawet przy wysokich stężeniach. Nasze trzyelektrodowe, dwukomorowe ustawienia BES zapewniają niezawodny i powtarzalny odczyt zapośredniczonego EET nawet w przypadku długotrwałego monitorowania; Jednak proces ten ma stosunkowo niską przepustowość. Protokół ten nadaje się do zrozumienia mechanizmów EET w skali laboratoryjnej lub do testowania prototypowych aplikacji EET. Alternatywne architektury BES, takie jak przenośne lub drukowane BESs31,32, komplementarne macierze półprzewodników z tlenku metalu (CMOS)33 lub ulepszone BESs34, mogą być rozważane przez badaczy do różnych celów podstawowych lub aplikacyjnych.
W protokole tym podajemy szczegółowe instrukcje dotyczące najczęściej stosowanych technik elektrochemicznych: chronoamperometrii (CA) i woltamperometrii cyklicznej (CV). Warto zauważyć, że inne techniki elektrochemiczne, takie jak elektrochemiczna spektroskopia impedancyjna (EIS) i woltamperometria impulsowa różnicowa (DPV), mogą zapewnić głębszy wgląd w BES poprzez analizę rezystancji przenoszenia ładunku i pojemności dwuwarstwowej 35,36,37. Chociaż ten protokół BES umożliwia pomiary EET, uzupełnienie danych elektrochemicznych o pomiary aktywności metabolicznej i biomasy komórek może być również niezbędne do kompleksowej analizy. Drobnoustroje, takie jak L. plantarum, angażują EET jako jeden z pochłaniaczy elektronów wraz z innymi produktami ubocznymi fermentacji, takimi jak mleczan i etanol. Ponadto warto zauważyć, że wzrost biomasy komórkowej służy również jako pochłaniacz elektronów13. Dlatego kwantyfikacja zużytych donorów elektronów (np. mannitolu), ocena wzrostu biomasy komórkowej i monitorowanie produktów ubocznych fermentacji zapewnia głębszy wgląd w wydajność i fizjologiczne konsekwencje EET. Metabolity komórkowe są zwykle oznaczane ilościowo za pomocą chromatografii i testów enzymatycznych, podczas gdy żywotność i wzrost komórek ocenia się, licząc jednostki tworzące kolonie i mierząc gęstość optyczną zużytych pożywek przy odpowiednio 600 nm13. Należy również zauważyć, że pomiary EET są wrażliwe na niewielkie zakłócenia w warunkach eksperymentalnych. Obejmuje to między innymi pH, temperaturę, prędkość mieszania i szybkość rozpryskiwania azotu38. Dlatego normalizacja mierzonych poziomów EET za pomocą pomiarów bioanalitycznych działa jak kontrola wewnętrzna, ułatwiając spójną ocenę w eksperymentach przeprowadzanych w różnych dniach.
Łącząc techniki elektrochemiczne z innymi pomiarami bioanalitycznymi, EET za pośrednictwem tej metody stwarza nowe możliwości dla elektrofermentacji i bioelektrokatalizy. Konwencjonalne stosowanie elektrokatalizatorów organicznych, nieorganicznych lub enzymatycznych stanowi wyzwanie ze względu na ich wysoki koszt i podatność na degradację. Alternatywnie, wykorzystanie mikroorganizmów jako żywych elektrokatalizatorów oferuje tańsze i bardziej skalowalne rozwiązanie ze względu na zdolność drobnoustrojów do samonaprawy i samoreplikacji39. L. plantarum, powszechnie uznawana za bezpieczną bakterię kwasu mlekowego, jest szczególnie intrygującym podwoziem. Korzystając z identycznych konfiguracji elektrochemicznych opisanych w tym protokole, wykazaliśmy wcześniej, że L. plantarum może fermentować sok z jarmużu w warunkach EET i przyspieszać przepływ metaboliczny w kierunku wytwarzania większej ilości produktów końcowych fermentacji, takich jak mleczan, octan i bursztynian13; Te kwasy organiczne są niezbędnymi związkami smakowymi w fermentacji żywności. Oznacza to, że przy użyciu technik elektrochemicznych EET za pośrednictwem L. plantarum może zostać potencjalnie przejęty w celu manipulowania strumieniem metabolicznym, zmiany smaków żywności lub wytwarzania cennych substancji chemicznych. Warto zauważyć, że techniki elektrochemiczne przedstawione w tym protokole mogą być stosowane nie tylko do L. plantarum, ale mogą być również ogólnie stosowane do innych rodzimych lub zmodyfikowanych drobnoustrojów, które wykonują EETza pośrednictwem 40,41. Różne mediatory elektronów, takie jak flawina, ferrocen, czerwień obojętna, żelazocyjanek, lawson i menadion, można wybrać na podstawie mechanizmu przenoszenia elektronów określonego drobnoustroju, który jest używany 22,42. Co więcej, protokół BES ustanowiony w tej pracy może zostać rozszerzony na egzoelektrogeny, które wykonują EET bez mediatora, jak wcześniej wykazano w przypadku gatunków Shewanella i Geobacter 43,44. Należy zastosować zoptymalizowaną pożywkę wzrostową, aby wspomóc aktywność komórkową danego drobnoustroju, aby ułatwić jego działanie EET. Protokół ten dostraja parametry EET za pośrednictwem DHNA w L. plantarum, ale oczekuje się modyfikacji, gdy stosuje się różne mikroorganizmy i mediatory elektronów.
Oświadczenia
Autorzy nie mają do zadeklarowania żadnych sprzecznych interesów.
Podziękowania
Dziękujemy członkom laboratorium Ajo-Franklin za wnikliwe dyskusje na temat montażu, konserwacji, krytycznych kroków i rozwiązywania problemów z BES. Badania były sponsorowane przez Wojskowe Biuro Badawcze i zostały zrealizowane w ramach grantu o numerze W911NF-22-1-0239 (dla C. M. A-F, wspierającego R. A.) oraz przez Cancer Prevention and Research Institute of Texas, grant # RR190063 (dla C. M. A-F, wspierającego R. C., S. L. i B. B. K.). Rysunek 1 został utworzony za pomocą BioRender.com.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas 1,4-dihydroksy-2-naftoesowy (DHNA) | Sigma-Aldrich | 281255-25G | |
| Drut tytanowy o średnicy 1,0 mm | Thermo Fisher Scientific | 045485.BY | Przycięty na wymiar do elektrod roboczych i przeciwelektrod |
| 120-C Arkusze tlenku glinu 9 "x 11" | Johnson Abrasives | 10108-15 | |
| 3 ml plastikowe strzykawki | Thermo Fisher Scientific | 14955457 | |
| Roztwór 3M KCl nasycony chlorkiem srebra | Millipore Sigma | 60137-250ML | |
| Filc węglowy o grubości 6,35 mm | Thermo Fisher Scientific | 043200.RF | Pocięty na 16 cm2 krążki |
| Ag/AgCl Elektroda referencyjna CH | Instruments | CH111 | |
| Igły podskórne Air-Tite Premium | Thermo Fisher Scientific | 14-817-102 | |
| AlK(SO)4 * 12H2O | Sigma-Aldrich | 237086-100G | |
| Cytrynian amonu trójzasadowy | Millipore Sigma | A1332 | |
| Avanti J-15R Wirówka | Beckman Coulter | B99517 | |
| BD Precyzyjna igła ślizgowa, 18 G x 1 cal | Thermo Fisher Scientific | 14-826-5G | |
| BD Precyzyjna igła ślizgowa, 21 G x 2 cale | Thermo Fisher Scientific | 14-821-13N | |
| Bel-Art SP Scienceware Cleanware Aqua-Clear Water Condtioner | Thermo Fisher Scientific | 23-278339 | |
| Biotyna | Millipore Sigma | B4639 | |
| CaCl2 | Millipore Sigma | C4901 | |
| D-(+)-pantotenian wapnia | Millipore Sigma | 1087009 | |
| Casaminokwasy | Millipore Sigma | 2240-OP | |
| membrana kationowymienna | Membrany International | CMI-7000 | Pocięte w krążki pasujące do O-ringu BES |
| CoCl2 * 6H2O | Millipore Sigma | C8661 | |
| CuSO4 * 5H2O | Millipore Sigma | C8027 | |
| Cysteina-HCl * H2O | Millipore Sigma | 30129 | |
| DMSO | Millipore Sigma | 5439001000 | |
| DS-11+ Spektrofotometr | Denovix | N/A | |
| EC-LAB Software | BioLogic | N/A | |
| ECO E 4 S cyrkulator grzewczy | Lauda-Brinkmann | Nr kat. Nr 115 V; 60 Hz : L001191 | |
| FeSO4 * 7H2O | Millipore Sigma | 215422 | |
| Kwas foliowy | Millipore Sigma | F8758 | |
| H3BO3 | Millipore Sigma | B6768 | |
| Strzykawki insulinowe z igłą BD Micro-Fine IV | Thermo Fisher Scientific | 14-829-1A | |
| Lactiplantibacillus plantarum NCIMB8826 | N/A | N/A | Indeks: Tejedor-Sanz et al., 2022 |
| Lactobacillus MRS Bulion | HiMedia | M369 | |
| M9 Rosół | Milliport Sigma | 63011 | |
| Siarczan magnezu bezwodny | Millipore Sigma | 208094 | |
| Siarczan manganu jednowodny | Millipore Sigma | 221287 | |
| mannitol | Millipore Sigma | M1902-1KG | |
| Mettler Toledo FiveEasy Laboratoryjny pH-metr | Hogentogler | F20-KIT | |
| MgCl2 * 6H2O | Millipore Sigma | M9272 | |
| MgSO4 * 7H2O | Millipore Sigma | M2773 | |
| Millex - GV 0.22 & Mikro; m Filtr membranowy PVDF | Millipore Sigma | SLGV004SL | |
| MnCl2 * 4H2O | Millipore Sigma | 203734 | |
| MnSO4 * H2O | Millipore Sigma | 221287 | |
| MOPS | Millipore Sigma | M1442 | |
| N2 | gaz Airgas | Filtr NI UHP300 | przed użyciem |
| Na2MoO4 * 2H2O | Millipore Sigma | 331058 | |
| Na2SO4 | Millipore Sigma | 238597 | |
| NaCl | Millipore Sigma | S9888 | |
| NH4Cl | Millipore Sigma | A9434 | |
| Kwas nikotynowy | Millipore Sigma | N-0761 | |
| Kwas nitrylotrioctowy (NTA)Kwas nitrolotrioctowy | Millipore Sigma | 72560 | |
| Kwas p-aminobenzoesowy | Millipore Sigma | P9879 | |
| Sól fizjologiczna buforowana fosforanem, 10x roztwór | Thermo Fisher Scientific | BP399-1 | |
| Fosforan potasu dwuzasadowy | Millipore Sigma | P8281 | |
| potencjostat | BioLogic | VMP-300 | |
| Pepton proteazy #3 | Bacto | 211693 | |
| Pirydoksyna HCl | Milipor Sigma | P6280 | |
| Ryboflawina | Milipor Sigma | 555682 | |
| Platforma mieszadła magnetycznego RO10 | IKA | 3691000 | |
| Octan sodu trójwodny | Millipore Sigma | 935700 | |
| Baton mieszający w kształcie jajka | Thermo Fisher Scientific | 14-512-121 | Miejsce w komorze anodowej BES |
| Tiamine HCl | Millipore Sigma | V-014 | |
| Kwas tioktowy (kwas &alfa;-liponowy) | Millipore Sigma | T-1395 | |
| Tryptofan | Millipore Sigma | 9136 | |
| Tween80 | Millipore Sigma | P4780 | |
| Witamina B12 | Millipore Sigma | V6629 | |
| Zestaw MCF z płaszczem, 100 ml, NW25, 2 x GL14 port | Adams & Chittenden Scientific Glass | NA | Dostosowany |
| ekstrakt drożdżowy | Millipore Sigma | Y1625 | |
| ZnSO4 * 7H2O | Millipore Sigma | Z0251 |
Bibliografia
- TerAvest, M. A., Ajo-Franklin, C. M. Transforming exoelectrogens for biotechnology using synthetic biology. Biotechnol Bioeng. 113 (4), 687-697 (2016).
- Chen, H., Dong, F., Minteer, S. D. The progress and outlook of bioelectrocatalysis for the production of chemicals, fuels and materials. Nat Catal. 3 (3), 225-244 (2020).
- Chen, H., et al. Fundamentals, applications, and future directions of bioelectrocatalysis. Chem Rev. 120 (23), 12903-12993 (2020).
- Lovley, D. R., Phillips, E. J. P. Novel mode of microbial energy metabolism: organic carbon oxidation coupled to dissimilatory reduction of iron or manganese. Appl Environ Microbiol. 54 (6), 1472-1480 (1988).
- Myers, C. R., Nealson, K. H. Bacterial manganese reduction and growth with manganese oxide as the sole electron acceptor. Science. 240 (4857), 1319-1321 (1988).
- Koch, C., Harnisch, F. Is there a specific ecological niche for electroactive Microorganisms. ChemElectroChem. 3 (9), 1282-1295 (2016).
- Zhao, J., et al. Microbial extracellular electron transfer and strategies for engineering electroactive microorganisms. Biotechnol Adv. 53, 107682(2021).
- Zhang, J., Li, F., Liu, D., Liu, Q., Song, H. Engineering extracellular electron transfer pathways of electroactive microorganisms by synthetic biology for energy and chemicals production. Chem Soc Rev. 53 (3), 1375-1446 (2024).
- Logan, B. E. Exoelectrogenic bacteria that power microbial fuel cells. Nat Rev Microbiol. 7 (5), 375-381 (2009).
- Logan, B. E., Rabaey, K. Conversion of wastes into bioelectricity and chemicals by using microbial electrochemical technologies. Science. 337 (6095), 686-690 (2012).
- Gu, L., Xiao, X., Yup Lee, S., Lai, B., Solem, C. Superior anodic electro-fermentation by enhancing capacity for extracellular electron transfer. Bioresour Technol. 389, 129813(2023).
- Boucher, D. G., et al. Bioelectrocatalytic synthesis: concepts and applications. Angew Chem Int Ed. 62 (46), e202307780(2023).
- Tejedor-Sanz, S., et al. Extracellular electron transfer increases fermentation in lactic acid bacteria via a hybrid metabolism. eLife. 11, e70684(2022).
- Martino, M. E., et al. Nomadic lifestyle of Lactobacillus plantarum revealed by comparative genomics of 54 strains isolated from different habitats. Environ Microbiol. 18 (12), 4974-4989 (2016).
- Fidanza, M., Panigrahi, P., Kollmann, T. R. Lactiplantibacillus plantarum-nomad and ideal probiotic. Front Microbiol. 12, 712236(2021).
- Duar, R. M., et al. Lifestyles in transition: evolution and natural history of the genus Lactobacillus. FEMS Microbiol Rev. 41 (Suppl_1), S27-S48 (2017).
- Kaushik, J. K., et al. Functional and probiotic attributes of an indigenous isolate of Lactobacillus plantarum. PLOS ONE. 4 (12), e8099(2009).
- Seddik, H. A., et al. Lactobacillus plantarum and its probiotic and food potentialities. Probiotics Antimicrob Proteins. 9 (2), 111-122 (2017).
- Siezen, R. J., et al. Phenotypic and genomic diversity of Lactobacillus plantarum strains isolated from various environmental niches. Environ Microbiol. 12 (3), 758-773 (2010).
- Light, S. H., et al. A flavin-based extracellular electron transfer mechanism in diverse Gram-positive bacteria. Nature. 562 (7725), 140-144 (2018).
- Tolar, J. G., Li, S., Ajo-Franklin, C. M. The differing roles of flavins and quinones in extracellular electron transfer in Lactiplantibacillus plantarum. Appl Environ Microbiol. 89 (1), e0131322(2023).
- Li, S., De Groote Tavares, C., Tolar, J. G., Ajo-Franklin, C. M. Selective bioelectronic sensing of pharmacologically relevant quinones using extracellular electron transfer in Lactiplantibacillus plantarum. Biosens Bioelectron. 243, 115762(2024).
- Blackburn, B., Alba, R., Hatch, A., Ajo-Franklin, C. M., Mevers, E. Understanding the Chemical Properties that Drive Extracellular Electron Shuttles. ChemRxiv. , (2024).
- De Man, J. C., Rogosa, M., Sharpe, M. E. A medium for the cultivation of Lactobacilli. J Appl Bacteriol. 23 (1), 130-135 (1960).
- Aumiller, K., et al. A chemically-defined growth medium to support Lactobacillus-Acetobacter sp. community analysis. PLOS ONE. 18 (10), e0292585(2023).
- Brooijmans, R. J. W., de Vos, W. M., Hugenholtz, J. Lactobacillus plantarum WCFS1 electron transport chains. Appl Environ Microbiol. 75 (11), 3580-3585 (2009).
- LaBelle, E., Bond, D. R. Cyclic voltammetry for the study of microbial electron transfer at electrodes. Bio-electrochemical systems: from extracellular electron transfer to biotechnological application. , (2009).
- Mevers, E., et al. An elusive electron shuttle from a facultative anaerobe. eLife. 8, e48054(2019).
- Dirar, H., Collins, E. B. End-products, Fermentation balances and molar growth yields of homofermentative Lactobacilli. Microbiology. 73 (2), 233-238 (1972).
- Huong Le, T. X., Bechelany, M., Cretin, M. Carbon felt based-electrodes for energy and environmental applications: A review. Carbon. 122, 564-591 (2017).
- Zhou, A. Y., Baruch, M., Ajo-Franklin, C. M., Maharbiz, M. M. A portable bioelectronic sensing system (BESSY) for environmental deployment incorporating differential microbial sensing in miniaturized reactors. PLOS ONE. 12 (9), e0184994(2017).
- Benjamin, S. R., de Lima, F., Nascimento, V. A. do, de Andrade, G. M., Oriá, R. B. Advancement in paper-based electrochemical biosensing and emerging diagnostic methods. Biosensors. 13 (7), 689(2023).
- Kumashi, S. R., et al. A CMOS multi-modal electrochemical and impedance cellular sensing array for massively paralleled exoelectrogen screening. IEEE Trans Biomed Circuits Syst. 15 (2), 221-234 (2021).
- Jadhav, D. A., et al. Scale-up of the bioelectrochemical system: Strategic perspectives and normalization of performance indices. Bioresour Technol. 363, 127935(2022).
- Kim, J., Cestellos-Blanco, S., Shen, Y., Cai, R., Yang, P. Enhancing biohybrid CO2 to multicarbon reduction via adapted whole-cell catalysts. Nano Lett. 22 (13), 5503-5509 (2022).
- He, Z., Mansfeld, F. Exploring the use of electrochemical impedance spectroscopy (EIS) in microbial fuel cell studies. Energy Environ Sci. 2 (2), 215-219 (2009).
- Okamoto, A., Hashimoto, K., Nealson, K. H., Nakamura, R. Rate enhancement of bacterial extracellular electron transport involves bound flavin semiquinones. Proc Natl Acad Sci U S A. 110 (19), 7856-7861 (2013).
- Zhang, X., Li, X., Zhao, X., Li, Y. Factors affecting the efficiency of a bioelectrochemical system: a review. RSC Adv. 9 (34), 19748-19761 (2019).
- Kornienko, N., Zhang, J. Z., Sakimoto, K. K., Yang, P., Reisner, E. Interfacing nature's catalytic machinery with synthetic materials for semi-artificial photosynthesis. Nat Nanotechnol. 13 (10), 890-899 (2018).
- Glasser, N. R., Saunders, S. H., Newman, D. K. The colorful world of extracellular electron shuttles. Annu Rev Microbiol. 71 (1), 731-751 (2017).
- Gemünde, A., Lai, B., Pause, L., Krömer, J., Holtmann, D. Redox mediators in microbial electrochemical systems. ChemElectroChem. 9 (13), e202200216(2022).
- Kundu, B. B., et al. Extracellular respiration is a latent energy metabolism in Escherichia coli. bioRxiv. , (2024).
- O'Brien, J. P., Malvankar, N. S. A simple and low-cost procedure for growing Geobacter sulfurreducens cell cultures and biofilms in bioelectrochemical systems. Curr Protoc Microbiol. 43 (1), A.4K.1-A.4K.27 (2016).
- Su, L., Fukushima, T., Ajo-Franklin, C. M. A hybrid cyt c maturation system enhances the bioelectrical performance of engineered Escherichia coli by improving the rate-limiting step. Biosens Bioelectron. 165, 112312(2020).
Przedruki i uprawnienia
