Tutaj prezentujemy protokół przeszczepiania komórek o wysokiej rozdzielczości przestrzennej i czasowej w zarodkach i larwach danio pręgowanego na każdym etapie, między co najmniej 1 a 7 dniem po zapłodnieniu.
Artykuł metodologiczny
Przeszczep komórek w wysokiej rozdzielczości u embrionów i larw danio pręgowanego
W tym artykule
Podsumowanie
Streszczenie
Rozwój i regeneracja zachodzą w procesie genetycznie kodowanych przestrzenno-czasowo dynamicznych interakcji komórkowych. Wykorzystanie przeszczepu komórek między zwierzętami w celu śledzenia losu komórek i wywoływania niezgodności we właściwościach genetycznych, przestrzennych lub czasowych komórek dawcy i gospodarza jest potężnym sposobem badania natury tych interakcji. Organizmy takie jak pisklęta i wniosły kluczowy wkład w nasze zrozumienie odpowiednio rozwoju i regeneracji, w dużej mierze ze względu na ich podatność na przeszczepy. Moc tych modeli jest jednak ograniczona przez niską podatność genetyczną. Podobnie, główne organizmy modeli genetycznych mają mniejszą podatność na przeszczepy.
Danio pręgowany jest głównym modelem genetycznym dla rozwoju i regeneracji, i chociaż przeszczep komórek jest powszechny u danio pręgowanego, zazwyczaj ogranicza się do transferu niezróżnicowanych komórek we wczesnych stadiach rozwoju blastuli i gastruli. W tym artykule przedstawiamy prostą i solidną metodę, która wydłuża okno przeszczepu danio pręgowanego do dowolnego stadium embrionalnego lub larwalnego między co najmniej 1 a 7 dniem po zapłodnieniu. Precyzja tego podejścia pozwala na przeszczepienie zaledwie jednej komórki z niemal idealną rozdzielczością przestrzenną i czasową zarówno u zwierząt dawców, jak i gospodarzy. Chociaż podkreślamy tutaj przeszczepianie neuronów embrionalnych i larwalnych w celu badania odpowiednio rozwoju i regeneracji nerwów, podejście to ma zastosowanie do szerokiego zakresu komórek progenitorowych i zróżnicowanych typów komórek i pytań badawczych.
Wprowadzenie
Transplantacja komórek ma długą i bogatą historię jako podstawowa technika w biologii rozwojowej. Na przełomie XIX i XX wieku podejścia wykorzystujące fizyczne manipulacje w celu zakłócenia procesu rozwojowego, w tym transplantacji, przekształciły embriologię z nauki obserwacyjnej w eksperymentalną1,2. W jednym z przełomowych eksperymentów Hans Spemann i Hilde Mangold ektopowo przeszczepili grzbietową wargę blastoporową zarodka salamandry na przeciwną stronę zarodka gospodarza, indukując pobliską tkankę do utworzenia wtórnej osi ciała3. Eksperyment ten wykazał, że komórki mogą indukować inne komórki do przyjmowania określonych losów, a następnie przeszczep rozwinął się jako potężna metoda zadawania krytycznych pytań w biologii rozwojowej dotyczących kompetencji i determinacji losu komórki, linii komórkowej, zdolności indukcyjnej, plastyczności i siły działania komórek macierzystych1,4,5.
Nowsze osiągnięcia naukowe poszerzyły możliwości metody transplantacji. W 1969 roku odkrycie Nicole Le Douarin, że barwienie jąder może rozróżnić gatunki pochodzenia w chimerach piskląt przepiórczych, pozwoliło na śledzenie przeszczepionych komórek i ich potomstwa6. Koncepcja ta została później wzmocniona przez pojawienie się transgenicznych markerów fluorescencyjnych i zaawansowanych technik obrazowania5, i została wykorzystana do śledzenia losu komórek6,7, identyfikuj komórki macierzyste i ich moc8,9 i śledź ruchy komórek podczas rozwoju mózgu10. Dodatkowo, rozwój genetyki molekularnej ułatwił przeszczepy między gospodarzami i dawcami różnych genotypów, wspierając precyzyjną analizę autonomicznych i nieautonomicznych funkcji czynników rozwojowych11.
Transplantacja również wniosła ważny wkład w badania nad regeneracją, szczególnie w organizmach o silnych zdolnościach regeneracyjnych, takich jak wypławki i aksolotl, poprzez wyjaśnienie tożsamości komórkowych i interakcji, które regulują wzrost i wzór regenerujących się tkanek. Badania transplantacyjne ujawniły zasady działania potencji12, spatial patterning13,14, wkład określonych tkanek15,16, oraz role dla pamięci komórkowej12,17 w regeneracji.
Danio pręgowany są wiodącym modelem kręgowców do badań nad rozwojem i regeneracją, w tym w układzie nerwowym, ze względu na ich konserwatywne programy genetyczne, wysoką podatność genetyczną, zewnętrzne nawożenie, duży rozmiar lęgu i przejrzystość optyczną18,19,20. Danio pręgowany jest również bardzo podatny na przeszczep we wczesnych stadiach rozwoju. Najbardziej znanym podejściem jest przeszczepienie komórek z oznakowanego zarodka dawcy do zarodka gospodarza w stadium blastuli lub gastruli w celu wytworzenia mozaikowych zwierząt. Komórki przeszczepione w stadium blastuli rozproszą się i rozproszą wraz z rozpoczęciem epibolii, tworząc mozaikę znakowanych komórek i tkanek w całym zarodku21. Przeszczepy Gastruli pozwalają na pewne celowanie w przeszczepione komórki zgodnie z przybliżoną mapą losu, gdy tworzy się tarcza i można określić osie A-P i D-V21. Uzyskane w ten sposób mozaiki były cenne w określaniu, czy geny działają autonomicznie w komórkach, testowaniu zaangażowania komórek oraz mapowaniu ruchu tkanek i migracji komórek podczas całego rozwoju5,11. Mozaikowy danio pręgowany może być generowany na kilka sposobów, w tym elektroporację22, recombination23 i transgenezę F024 i mutagenezę25, ale transplantacja zapewnia największą manipulację i precyzję w przestrzeni, czasie oraz liczbie i typach komórek. Obecny stan przeszczepu danio pręgowanego jest w dużej mierze ograniczony do komórek progenitorowych we wczesnych stadiach, z kilkoma wyjątkami, w tym przeszczepem rdzeniowych neuronów ruchowych26,27, komórek zwojowych siatkówki28,29 i komórek grzebienia nerwowego w pierwszych 10-30 godzinach po zapłodnieniu (HPF)30, oraz komórek krwiotwórczych i nowotworowych u dorosłego danio pręgowanego5,31. Rozszerzenie metod przeszczepiania na szeroki zakres wieku, etapów różnicowania i typów komórek znacznie zwiększyłoby możliwości tego podejścia w zakresie dostarczania wglądu w procesy rozwojowe i regeneracyjne.
Tutaj demonstrujemy elastyczną i solidną technikę przeszczepu komórek o wysokiej rozdzielczości, skuteczną w zarodkach i larwach danio pręgowanego do co najmniej 7 dni po zapłodnieniu. Transgeniczne ryby gospodarza i dawcy wykazujące ekspresję białek fluorescencyjnych w tkankach docelowych mogą być wykorzystywane do ekstrakcji pojedynczych komórek i przeszczepiania ich z niemal idealną rozdzielczością przestrzenną i czasową. Przejrzystość optyczna zarodków i larw danio pręgowanego pozwala na obrazowanie przeszczepionych komórek na żywo, gdy zwierzę gospodarza rozwija się lub regeneruje. Podejście to było wcześniej wykorzystywane do zbadania, w jaki sposób dynamika sygnalizacji czasoprzestrzennej wpływa na tożsamość neuronalną i prowadzenie aksonów w embryo32, oraz do zbadania logiki, za pomocą której czynniki wewnętrzne i zewnętrzne promują prowadzenie aksonów podczas regeneracji u larw ryb33. Chociaż skupiamy się tutaj na przeszczepianiu zróżnicowanych neuronów, nasza metoda ma szerokie zastosowanie zarówno do niezróżnicowanych, jak i zróżnicowanych typów komórek na wielu etapach i tkankach, aby odpowiedzieć na pytania dotyczące rozwoju i regeneracji.
Protokół
Wszystkie aspekty tej procedury, które odnoszą się do pracy z żywymi rybami pręgowanymi, zostały zatwierdzone przez University of Minnesota Institutional Animal Care and Use Committee (IACUC) i są wykonywane zgodnie z wytycznymi IACUC.
1. Jednorazowa wstępna konfiguracja aparatu do przeszczepu (Rysunek 1)
- Zmontuj mikroskop do przeszczepu zgodnie z instrukcjami producenta.
UWAGA: W tym protokole wykorzystuje pionowy mikroskop fluorescencyjny z 40-krotnym obiektywem do zanurzania w wodzie. - Zmontuj mikromanipulatory zgrubne i drobne i zamontuj je po prawej stronie mikroskopu zgodnie z instrukcjami producenta.
UWAGA: Ponieważ ważne jest, aby stolik nie poruszał się w wymiarze Z względem igły, używamy mikroskopu stałostolikowego z mikromanipulatorami zamontowanymi na podstawie mikroskopu. Jeśli mikroskop ze stałym stolikiem nie jest dostępny, mikromanipulator można zamontować na stoliku. - Przymocuj uchwyt mikroelektrody do uchwytu elektrody i zamontuj na mikromanipulatorze.
- Podłączyć jedną stronę trójdrogowego zaworu odcinającego do pompy mikrostrzykawkowej. Podłączyć drugą stronę kranu do rurki polietylenowej za pomocą adaptera chromatograficznego.
- Podłącz przeciwną stronę rurki polietylenowej do uchwytu mikroelektrody za pomocą adaptera chromatograficznego.
- Napełnij strzykawkę o pojemności 10 ml lekkim olejem mineralnym i zamontuj ją na górnej stronie zaworu odcinającego.
- Napełnij pompę mikrostrzykawki i rurkę (przewód hydrauliczny) olejem mineralnym ze zbiornika, upewniając się, że usunięto wszystkie pęcherzyki powietrza.
UWAGA: Po ustawieniu urządzenie będzie wymagało jedynie sporadycznej konserwacji przewodu hydraulicznego. W razie potrzeby strzykawkę ze zbiornikiem można wyjąć i ponownie napełnić olejem mineralnym.
2. Przygotuj popychacze do zarodków.
- Wytnij 2-centymetrowy kawałek żyłki i włóż go częściowo do wąskiego końca końcówki pipety P1000, pozostawiając odsłonięte ~1,5 cm. Zabezpiecz żyłkę niewielką kroplą superglue i pozostaw do wyschnięcia.
3. Przygotuj rozwiązania.
- Aby przygotować 1% agarozę o niskiej temperaturze topnienia rozpuszczoną w pożywce zarodkowej (LMA), należy rozpuścić agarozę we wrzącej pożywce dla zarodków34. Przygotować 1-2 ml porcji w probówkach z okrągłym dnem i przechowywać w temperaturze 4 °C.
- Przygotować roztwór Ringera z penicyliną-streptomycyną i trikainą (RPT), łącząc następujące składniki do końcowych stężeń 116 mM NaCl, 2,9 mM KCl, 1,8 mM CaCl2, 5 mM HEPES pH 7,2, 50 jednostek/ml penicyliny i 50ug/ml streptomycyny, mieszając do rozpuszczenia i przechodząc przez filtr próżniowy. Przechowywać w temperaturze pokojowej. Dodać tricainę bezpośrednio przed użyciem do stężenia 0,02%.
4. Przygotuj zwierzęta dawcy i gospodarza do przeszczepu.
- Wychowuj zwierzęta żywicielskie i dawcy o odpowiednich genotypach, z komórkami będącymi przedmiotem zainteresowania znakowanymi fluorescencyjnie, do pożądanego wieku.
UWAGA: Do tych przeszczepów użyliśmy Tg(isl1:EGFPCAAX)fh474 zwierząt dawcy 32 i Tg(isl1:mRFP)fh1 host animals35 i przeszczepiliśmy neurony od dawcy do jąder ruchowych nerwu błędnego gospodarza przy 3dpf. - Przygotuj preparaty do przeszczepu, nakładając prostokątny kontur przezroczystego lakieru do paznokci na każde szkiełko (Rysunek 2A). Lakier do paznokci tworzy hydrofobową barierę, która zatrzymuje RPT dodany w kroku 4.8. Pozostawić do całkowitego wyschnięcia przed użyciem.
UWAGA: Slajdy można przygotować z wyprzedzeniem i przechowywać przez czas nieokreślony. - Rozpuść jedną porcję LMA, umieszczając probówkę LMA w 50 ml zlewce zawierającej 40 ml wody i podgrzewając w kuchence mikrofalowej przez 1 minutę przy 50% mocy lub do momentu rozpuszczenia. Utrzymuj LMA na poziomie 40 °C w podgrzewaczu suchej kąpieli.
- Dekorionację zwierząt gospodarza i dawcy za pomocą kleszczy (jeśli dotyczy) i znieczulenie ich, umieszczając je na małych szalkach Petriego wypełnionych RPT o temperaturze pokojowej. Przed kontynuowaniem odczekaj 5 minut, aż zwierzęta zostaną w pełni znieczulone.
- Zamontuj indywidualne zwierzęta dawcy i gospodarza: Za pomocą pipety Pasteura i pompki do pipet przenieś zwierzęta z RPT do LMA, a następnie przenieś zwierzęta w małych kroplach LMA na szkiełka w obrysie lakieru do paznokci. Zminimalizuj ilość RPT przenoszonego do LMA, aby LMA nie uległ rozcieńczeniu. Zanim LMA zastygnie, użyj popychacza zarodków, aby zorientować zwierzęta, upewniając się, że każde zwierzę jest zamontowane w zamierzonym miejscu wprowadzenia igły po prawej stronie, a wszystkie zwierzęta są wyrównane pionowo (Rysunek 2B); Poczekaj, aż agaroza całkowicie stężeje (~5 min) przed kontynuowaniem.
UWAGA: Ponieważ od każdego zwierzęcia dawcy można pobrać wiele komórek, bardziej efektywne jest zamontowanie 2-4 zwierząt gospodarzy z jednym dawcą na każdym szkiełku. - Za pomocą skalpela przetnij prosty pionowy plasterek przez wszystkie krople agarozy tuż po prawej stronie dosiadanych zwierząt (Rysunek 2C). Usuń luźną agarozę ze szkiełka za pomocą chusteczek laboratoryjnych.
- Za pomocą skalpela wytnij kliny z agarozy, aby odsłonić miejsce wkłucia igły (Rysunek 2C). Usuń luźną agarozę ze szkiełka za pomocą chusteczek laboratoryjnych.
- Nakładaj RPT na szkiełko, aż krople agarozy zostaną całkowicie zanurzone (Rysunek 2D).
- Zamontuj przygotowane szkiełko na mikroskopie transplantacyjnym. Ustaw ostrość zwierzęcia dawcy pod obiektywem 40x. Aby to zrobić, opuść obiektyw, aż przebije się przez powierzchnię nośnika, a następnie podnieś obiektyw do żądanej płaszczyzny ogniskowej.
UWAGA: Kontakt obiektywu z płynem musi być utrzymany aż do zakończenia przeszczepu (Rysunek 3C). - Ustaw ostrość na znakowanych fluorescencyjnie komórkach dawcy będących przedmiotem zainteresowania, a następnie przesuń stolik w lewo, przygotowując się do zlokalizowania igły do przeszczepu.
UWAGA: W tym momencie nie ustawiaj mikroskopu na osi Y lub Z, aby zapewnić łatwe odnalezienie zwierzęcia dawcy w sekcji 5.
5. Przygotuj igłę do przeszczepu.
- Włóż mikropipetę do ściągacza do mikropipet i wyciągnij igłę do mikroiniekcji.
UWAGA: Kształt igły powinien być podobny do tych używanych do wstrzykiwań zarodków danio pręgowanego w stadium 1-komórkowym lub zaciskania łat. Używamy ściągacza do mikropipet z następującym programem: CIŚNIENIE = 500, CIEPŁO = rampa + 80, CIĄGNIĘCIE = 90, PRĘDKOŚĆ = 70, CZAS = 250 (patrz Tabela materiałów), chociaż prawidłowe ustawienia dla każdego ściągacza prawdopodobnie będą musiały zostać określone empirycznie. - Dopasuj końcówkę igły do podziałów mikrometru stage pod lunetą sekcyjną. Używając mikrometru jako przewodnika pomiarowego, użyj zaostrzonej pary kleszczyków, aby złamać igłę do rozmiaru otworu, który jest nieco większy niż średnica komórek będących przedmiotem zainteresowania (Rysunek 3A). Upewnij się, że przerwa jest tak czysta, jak to tylko możliwe, ponieważ postrzępione krawędzie mogą przyczynić się do zatkania igły. UWAGA: W przypadku neuronów ruchowych błędnych (średnica 5-7 μm) igły powinny być złamane do średnicy wewnętrznej 10 μm, co odpowiada średnicy zewnętrznej 20 μm. W razie potrzeby rozmiar, kształt i/lub kąt końcówki igły można dopracować za pomocą mikrokuźni lub mikroszlifierki36.
- Używając strzykawki o pojemności 50 ml wypełnionej lekkim olejem mineralnym i wyposażonej w napełniacz do pipet, całkowicie napełnij igłę olejem mineralnym (Rysunek 3B). Upewnij się, że nie ma pęcherzyków powietrza. Odłóż wypełnioną igłę na bok, aż będzie gotowa do montażu.
UWAGA: Aby upewnić się, że nie ma pęcherzyków powietrza, włóż wypełniacz do pipet do końca do igły i wypuść olej, powoli wyciągając wypełniacz z igły. - W aparacie do przeszczepu obrócić zawór trójdrogowy tak, aby jego długie ramię było skierowane w stronę pompy mikrostrzykawkowej i wcisnąć tłok strzykawki zbiornika, aby wypłukać wszystkie pęcherzyki powietrza z przewodu hydraulicznego. Utrzymać lekki nacisk na tłok (aby zapobiec cofaniu się powietrza do linii) i obrócić zawór trójdrogowy tak, aby jego długie ramię było skierowane w stronę strzykawki ze zbiornikiem.
- Włóż igłę do uchwytu, uważając, aby nie wprowadzić żadnych pęcherzyków powietrza. Dostosuj kąt igły tak, aby była skierowana bezpośrednio w lewo pod kątem 10-15° od poziomu (Rysunek 3C).
- Użyj mikromanipulatorów zgrubnych i precyzyjnych, aby manewrować końcówką igły pod obiektywem mikroskopu i ustawić na nim ostrość (Rysunek 3D).
UWAGA: Zgrubne ustawienie igły w płaszczyznach X i Y można wykonać, bezpośrednio obserwując obszar pod obiektywem podczas manewrowania igłą, ponieważ igła będzie odbijać wiązkę światła przechodzącego, gdy zostanie umieszczona pod obiektywem. Okulary mikroskopowe mogą być następnie używane do precyzyjnego pozycjonowania. Nie reguluj mikroskopu stage położenie lub ostrość podczas tego kroku. Użyj mikromanipulatorów, aby ustawić końcówkę igły w istniejącej pozycji ogniskowej. - Jeśli płyn wpływa lub wypływa z końcówki igły, wyreguluj ciśnienie za pomocą pompki strzykawkowej, aż do zaobserwowania stabilnej menisku między olejem mineralnym a roztworem Ringera (Rysunek 3D).
UWAGA: Jeśli po ustabilizowaniu na końcówce igły pozostanie pęcherzyk oleju, można go usunąć za pomocą regulacji płaszczyzny X na mikromanipulatorze zgrubnym, aby przesunąć igłę w prawo, aż jej końcówka zostanie wycofana z RPT, a następnie z powrotem w lewo, aż zostanie przesunięta pod obiektyw.
6. Transplantacja
UWAGA: Wszystkie ruchy igłą powinny być wykonywane za pomocą precyzyjnego mikromanipulatora dla tej sekcji.
- Przesuwaj stolik w prawo, aż zwierzę dawcy znajdzie się z powrotem w polu widzenia, zachowując ostrożność, aby uniknąć przypadkowego przebicia igłą.
- Ponownie wyśrodkuj i skup się na komórkach, które mają zostać przeszczepione, a następnie wyrównaj igłę z komórkami znajdującymi się tuż za zwierzęciem (Rysunek 4A).
UWAGA: Może być konieczne częste przełączanie między jasnym polem a fluorescencją, aby zapewnić prawidłowe wyrównanie. Zastosowanie filtra o neutralnej gęstości może pomóc w jednoczesnej wizualizacji obu. - Wbić igłę do zwierzęcia dawcy.
UWAGA: Powtarzające się ruchy igły do wewnątrz i na zewnątrz mogą pomóc w penetracji skóry. - Natychmiast ponownie ustabilizować menisk olejowy w końcówce igły za pomocą pompki mikrostrzykawki, jak opisano w kroku 5.7.
- Przyłóż końcówkę igły do interesujących komórek i delikatnie odsysaj za pomocą pompy mikrostrzykawkowej (Rysunek 4B).
UWAGA: Delikatne ruchy do wewnątrz i na zewnątrz podczas ssania mogą pomóc w rozluźnieniu komórek. - Po pobraniu odpowiedniej liczby komórek należy usunąć igłę od dawcy i natychmiast ponownie ustabilizować menisk olejowy w końcówce igły za pomocą pompy mikrostrzykawkowej.
- Uważając, aby nie kontaktować się z igłą zwierząt lub agarozy, zmień położenie sceny, aby zobaczyć pierwsze zwierzę żywiciela.
- Wyśrodkuj i skup się na obszarze, w którym mają zostać umieszczone komórki, a następnie wyrównaj igłę z tym obszarem tuż na zewnątrz zwierzęcia (Rysunek 4C).
- Wbić igłę w zwierzę żywiciela i natychmiast ponownie ustabilizować menisk olejowy w końcówce igły za pomocą pompki mikrostrzykawkowej.
- Umieść końcówkę igły w miejscu osadzania i delikatnie uciskaj pompką mikrostrzykawkową, aż prawidłowa liczba komórek dawcy zostanie uwolniona z igły (Rysunek 4D).
UWAGA: Jeśli komórki dawcy i gospodarza są znakowane różnymi fluoroforami, filtr wielopasmowy umożliwiający jednoczesną wizualizację może być bardzo pomocny na tym etapie. - Wyjąć igłę z żywiciela i natychmiast ponownie ustabilizować menisk olejowy w końcówce igły za pomocą pompki mikrostrzykawkowej.
- Powtórz kroki 6.7-6.11 dla wszystkich pozostałych hostów.
7. Odzyskiwanie zwierząt gospodarzy
- Podnieś obiektyw 40x i użyj zgrubnego mikromanipulatora, aby manewrować igłą z powrotem do pozycji ładowania.
UWAGA: Igła może być ponownie użyta do wielu szkiełek. - Wyjmij szkiełko z mikroskopu do przeszczepu i umieść je pod mikroskopem preparacyjnym .
- Zdemontuj zwierzęta żywicielskie, ostrożnie wyjmując je z kropli LMA za pomocą kleszczy. Za pomocą szklanej pipety Pasteura przenieś zwierzęta żywicielskie do naczynia ze świeżym roztworem Ringera z penicyliną/streptomycyną. Upewnij się, że zwierzęta dochodzą do siebie po znieczuleniu i trzymaj je w inkubatorze zarodków do czasu, gdy będą gotowe do obrazowania. Poddaj zwierzęta dawcy eutanazji zgodnie z zatwierdzonymi protokołami.
UWAGA: Nasza metoda eutanazji polega na zanurzeniu zwierząt w kąpieli lodowej na co najmniej 1 godzinę, a następnie zanurzeniu w podchlorynie sodu o stężeniu 500 mg/l.
Wyniki
Wyniki eksperymentów z transplantacją obserwuje się bezpośrednio poprzez wizualizację fluorescencyjnie znakowanych komórek dawcy w organizmach biorców w odpowiednich punktach czasowych po transplantacji, wykorzystując mikroskop fluorescencyjny. W niniejszym przypadku transplantowaliśmy pojedyncze przednie neurony nerwu błędnego w 3 dpf. Zwierzęta biorące były następnie inkubowane przez 12 lub 48 h, znieczulane, montowane w LMA na szkiełku podstawowym i obrazowane za pomocą mikroskopu konfokalnego (Rycina 5). W 12 h po transplantacji (hpt) obserwujemy pomyślnie przeszczepiony neuron dawcy (Rycina 5A). Możemy potwierdzić prawidłowe rozmieszczenie komórki, ponieważ znajduje się ona wśród neuronów nerwu błędnego biorcy w przednim regionie jądra ruchowego nerwu błędnego biorcy; komórka wydaje się również nienaruszona i zdrowa, o czym świadczy obecność kilku krótkich wypustek neurytów (Rycina 5A). W 2 dni po transplantacji (dpt) możemy ponownie potwierdzić, że pojedynczy neuron został pomyślnie przeszczepiony w prawidłowe miejsce w jądrze biorcy (Rycina 5B). Na tym etapie obserwujemy, że neuron wypuścił nowy akson do 4. łuku gardłowego (Rycina 5B). Bezpośrednia obserwacja pozwala również stwierdzić niepowodzenie procedury. W tym przykładzie obserwujemy biorcę w 2 dpt, w którym nie występuje neuron dawcy; zamiast tego widoczna jest mała zielona plamka, prawdopodobnie fragment neuronu dawcy, który obumarł po transplantacji (Rycina 5C). Chociaż wskaźniki sukcesu transplantacji będą się różnić w zależności od doświadczenia użytkownika oraz liczby i rodzaju przeszczepionych komórek, odnotowaliśmy wskaźnik sukcesu (zdefiniowany jako obecność przeżywającego neuronu, który wypuścił akson w organizmie biorcy w 2-3 dpt) na poziomie 66% (n = 453 transplantacji) dla przeszczepów neuronów ruchowych nerwu błędnego wykonanych w 3-4 dpf33.
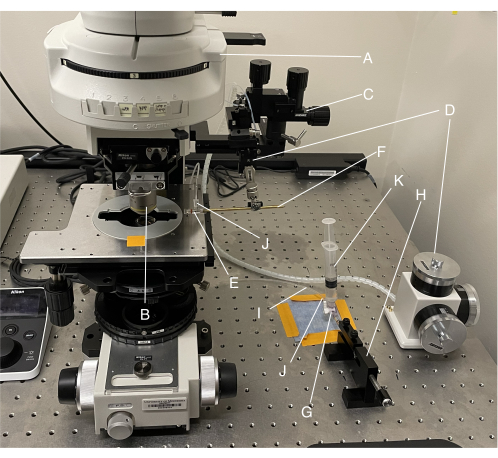
Rycina 1: Przegląd aparatury do transplantacji. (A) Pionowy mikroskop fluorescencyjny; (B) obiektyw imersyjny wodny 40x; (C) gruby mikromanipulator; (D) precyzyjny mikromanipulator; (E) uchwyt mikroelektrody; (F) rączka elektrody; (G) trójdrożny kranik; (H) pompa mikrosyrgowa; (I) rurki polietylenowe; (J) adaptery chromatograficzne; (K) strzykawka zbiornikowa 10 mL. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
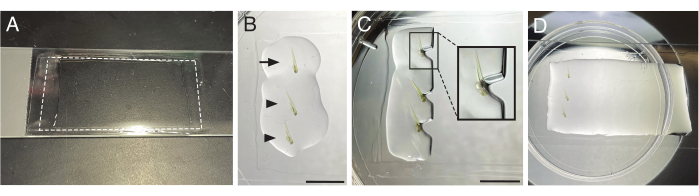
Rysunek 2: Mocowanie zwierząt do transplantacji. (A) Matowe szkiełko przedmiotowe o wymiarach 3 cali x 1 cal z nałożonym bezbarwnym lakierem do paznokci w kształcie prostokąta (linia przerywana). (B) Zwierzę dawca (strzałka) i biorca (grot strzałki) zamocowane w kroplach agarozy, ustawione pionowo z miejscem docelowym transplantacji (rdzeń przedłużony) skierowanym w prawo. (C) Agaroza z wyciętą prawą krawędzią i klinami w celu odsłonięcia miejsca docelowego transplantacji. Wstawka: powiększenie obszaru w ramce. (D) Szkiełko do transplantacji zalane roztworem Ringera z penicyliną-streptomycyną i tricainą. Paski skali = 5 mm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
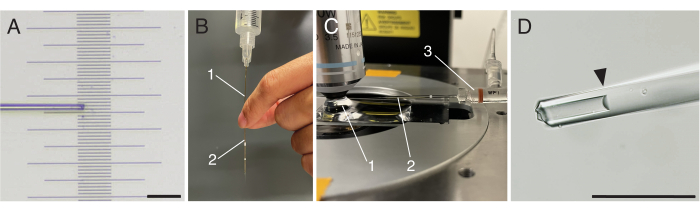
Rysunek 3: Przygotowanie igły do transplantacji. (A) Przełamana igła do transplantacji na mikrometr przedmiotu. (B) Wypełniacz pipety (1) włożony do igły do transplantacji (2) w celu napełnienia igły olejem mineralnym. (C) Przygotowany preparat do transplantacji i igła umieszczone w mikroskopie do transplantacji. 1: Menisk wody pomiędzy obiektywem zanurzającym 40x a zalanym preparatem 2: Igła do transplantacji 3: Uchwyt mikroelektrody. (D) Końcówka przełamanej igły do transplantacji ze stabilnym meniskiem oleju (grot strzałki) widziana przez mikroskop do transplantacji przy powiększeniu 40x. Paski skali = 100 µm Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
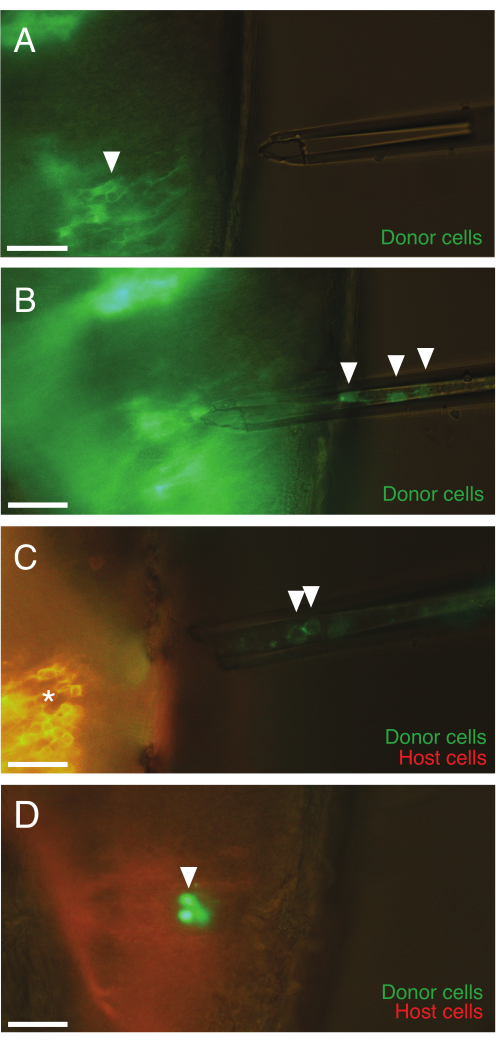
Rycina 4: Proces transplantacji pod mikroskopem. (A) Igła umieszczona poza organizmem zwierzęcia dawcy, skierowana w stronę motoneuronów nerwu błędnego (zielone, grot strzałki). (B) Igła umieszczona wewnątrz organizmu zwierzęcia dawcy po pobraniu fluorescencyjnie znakowanych neuronów dawcy (groty strzałek). (C) Igła zawierająca kilka neuronów dawcy (groty strzałek) umieszczona poza organizmem zwierzęcia biorcy, skierowana w stronę przednich motoneuronów nerwu błędnego biorcy (czerwone, gwiazdka). (D) Zwierzę biorca po transplantacji z wycofaną igłą. Grupa przeszczepionych neuronów dawcy wykazujących ekspresję GFP (grot strzałki) została wprowadzona do organizmu biorcy. Paski skali = 30 µm Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
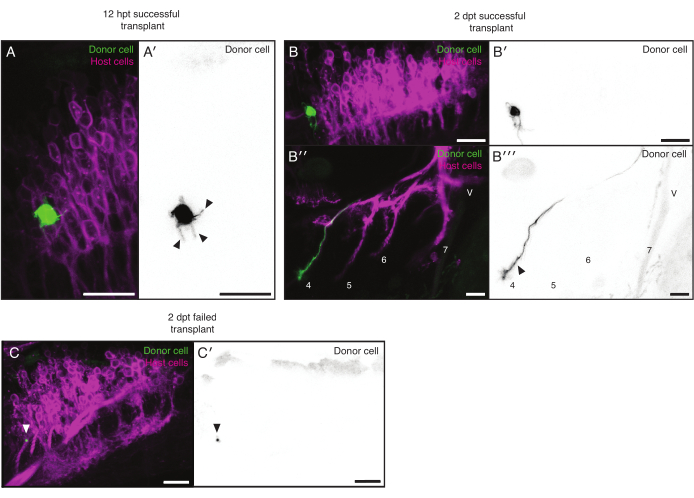
Rysunek 5Reprezentatywne wyniki. (A,B) Udane przeszczepy. (A) Przednia część jądra ruchowego nerwu błędnego gospodarza (magenta) w 12. godzinie po przeszczepieniu (hpt), zawierająca neuron donora (zielony, czarny w A'). Neuron donora wykształcił kilka neurytów (strzałki w A'). (B) jądro ruchowe nerwu błędnego (B-B') i gardzielne odgałęzienia aksonów (B''-B''', oznakowane odgałęzienia aksonu) gospodarza w 2. dniu po przeszczepie (magenta) zawierającego neuron donora (zielony, czarny w B', B'''). Neuron donora wyciągnął nowy akson do odgałęzienia 4 (groty strzałek). Rysunek 5A,B reprezentują różne zwierzęta. (C) Nieudany przeszczep. Jądro ruchowe nerwu błędnego gospodarza 2 dpt (magenta). Żaden neuron donora nie jest obecny; widoczna jest jedynie mała plamka (zielona, czarna w C'), prawdopodobnie reprezentujący fragment martwego neuronu donora (grot strzałki), jest obecny. Paski skali = 20 µmSkróty: dpt = dni po transplantacji; hpt = godziny po transplantacji. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Dyskusja
Biologia rozwojowa i regeneracyjna od ponad stu lat opiera się na eksperymentach transplantacyjnych w celu zbadania zasad sygnalizacji komórkowej i determinacji losu komórki. Model danio pręgowanego już teraz stanowi potężną fuzję podejść genetycznych i transplantacyjnych. Przeszczepianie w stadiach blastuli i gastruli w celu wygenerowania mozaiki zwierząt jest powszechne, ale ograniczone pod względem rodzajów pytań, na które może odpowiedzieć. Przeszczep w późniejszym etapie jest rzadki, chociaż opisano metody przeszczepiania embrionalnych neuronów ruchowych rdzenia kręgowego i komórek zwojowych siatkówki odpowiednio w 16-18 hpf i 30-33 hpf 26,27,28. Czerpiąc inspirację z tych wcześniejszych wysiłków, praca ta jeszcze bardziej zwiększa moc przeszczepu danio pręgowanego, opisując podejście, które ma zastosowanie do późnych stadiów embrionalnych i larwalnych, otwierając drzwi do jego wykorzystania w badaniach nad regeneracją, a także integrując nowoczesne fluorescencyjne podejścia transgeniczne w celu usprawnienia znakowania, transferu i długoterminowego śledzenia komórek.
Protokół ten stwarza nowe możliwości przeszczepiania komórek na wielu różnych etapach różnicowania i w różnym wieku, w tym w kontekście regeneracyjnym. Na przykład przeszczep zróżnicowanych neuronów wykorzystano do zbadania, w jaki sposób dynamika sygnalizacji wpływa na tożsamość neuronów poprzez zmianę kontekstów przestrzennych i czasowych, w których rozwijają się neurony32; zbadanie czasu determinacji neuronalnej26; jako sposób na uszkodzenie aksonów i śledzenie ich odrastania z rozdzielczościąpojedynczej komórki 33; zbadanie autonomicznej roli receptora w komórce podczas regeneracji aksonów poprzez przeszczepy typu zmutowanego do dzikiego33; oraz zbadanie roli pamięci docelowej w regeneracyjnym prowadzeniu aksonów33. Chociaż do tej pory skupialiśmy się na przeszczepie neuronów, nie znamy żadnej cechy neuronów, która czyniłaby je wyjątkowo dopasowanymi do tego podejścia; Uważamy raczej, że to podejście ma zastosowanie do wielu typów komórek. Mamy nadzieję i oczekujemy, że naukowcy znajdą kreatywne sposoby badania dynamiki rozwoju i regeneracji w wielu kontekstach za pomocą tej techniki.
Krytyczne kwestie w tym protokole obejmują wybór etykiet komórek, przydatność komórek do przeszczepu i dostępność tkanek. Jasna, stabilna, trwała etykieta fluorescencyjna dla komórek dawcy jest ważna dla ułatwienia zarówno przeszczepu, jak i późniejszego śledzenia. Można stosować zarówno wstrzyknięte barwniki, jak i transgeny, chociaż transgeny mogą być bardziej trwałe i bardziej specyficzne dla komórek będących przedmiotem zainteresowania. Odporność na fotowybielanie wydłuża również czas, jaki można poświęcić na wykonanie przeszczepu. Komórki dawcy muszą być wystarczająco luźno przylegające i mieć odpowiedni kształt, aby mogły zostać wciągnięte do igły z otaczającej tkanki/macierzy zewnątrzkomórkowej bez nadmiernego uszkodzenia. Modyfikacje dla różnych typów ogniw obejmują dostosowanie rozmiaru otworu igły, który powinien być nieco większy niż średnica interesującego ogniwa; właściwe ustawianie zwierzęcia podczas dosiadania, aby ułatwić dostęp do komórek będących przedmiotem zainteresowania; oraz optymalizacja poziomu ssania lub zakłóceń fizycznych wymaganych do poluzowania i podciągnięcia komórek. Wraz z wiekiem zwierzęcia niektóre tkanki mogą stać się niedostępne wizualnie i/lub fizycznie, chociaż nie jesteśmy świadomi żadnych konkretnych ograniczeń wiekowych. Na przykład czaszka prawdopodobnie w końcu ograniczy dostęp do neuronów. Modyfikacje mogą obejmować wykorzystanie niepigmentowanych zwierząt w celu łatwiejszej wizualizacji tkanek wewnętrznych lub wykonanie wstępnych małych nacięć, dostosowanie grubości rurki mikrokapilarnej lub kształt ciągniętej igły w celu ułatwienia wprowadzania igły.
Ograniczenia tego protokołu obejmują komórki pewnych typów i w pewnym wieku, które nie nadają się do przeszczepu, jak opisano powyżej, oraz trudności w utrzymaniu struktur na poziomie tkankowym podczas przeszczepu. Ponieważ procedura ta wymaga, aby poszczególne komórki zostały oddzielone od otoczenia podczas usuwania, interakcje komórka-komórka i struktury wyższego rzędu zostaną utracone. Wrodzony układ odpornościowy, który staje się funkcjonalny podczas embriogenezy, może reagować na uszkodzenie tkanek lub obecność martwych komórek i szczątków w miejscu przeszczepu, co może wpływać na przeżycie komórek dawcy37,38. W późniejszych stadiach komórki dawcy mogą również zostać odrzucone przez adaptacyjny układ odpornościowy, który zaczyna funkcjonować po 3-6 tygodniach od zapłodnienia39,40. Tego problemu można uniknąć, przesadzając do gospodarzy pozbawionych odporności adaptacyjnej lub wrodzonej 41,42,43,44.
Potencjalne trudności z protokołem, które mogą wymagać rozwiązania problemu, obejmują: Po pierwsze, materiał wewnątrz igły powinien poruszać się w sposób płynny i responsywny podczas ssania i nacisku. Skokowy i niespójny ruch jest prawdopodobnie spowodowany obecnością pęcherzyków powietrza w przewodzie hydraulicznym lub częściowym zatkaniem igły; Dlatego należy zachować ostrożność, aby usunąć wszystkie pęcherzyki powietrza z igły i przewodu hydraulicznego podczas konfiguracji. Jeśli zostaną znalezione pęcherzyki powietrza, przywróć igłę do pozycji ładowania za pomocą gruboziarnistego mikromanipulatora, wyjmij igłę z uchwytu i przepłucz igłę i żyłkę olejem mineralnym przed ponownym montażem. Zatykanie się igły można złagodzić, unikając postrzępionych pęknięć igły. Zatory można czasami rozwiązać, usuwając olej mineralny z końcówki igły w celu wypchnięcia zatoru lub całkowicie schując, a następnie ponownie wkładając igłę do RPT; W przeciwnym razie należy użyć nowej igły. Po drugie, mogą wystąpić trudności z rozluźnieniem komórek podczas usuwania. Złamanie końcówki igły pod kątem w celu uzyskania skośnego kształtu, przesuwanie igły do przodu iz powrotem podczas ssania oraz regulacja siły ssania może pomóc w rozluźnieniu komórek w celu oderwania się od tkanki. Mikromłynek może być również używany do przygotowania igieł skośnych o określonym rozmiarze otworu i kącie36. Wreszcie, podczas usuwania może dojść do uszkodzenia komórek. Poważnie uszkodzone komórki mogą stracić swój określony kształt i pojawić się jako małe fragmenty lub amorficzne fluorescencyjne plamki w igle do wstrzykiwań. Niezdolność komórek do przeżycia po przeszczepie może być również oznaką uszkodzenia i może być łatwo oznaczona przez brak fluorescencyjnie oznaczonych komórek w gospodarzu. Rozwiązywanie problemów związanych z powtarzającymi się uszkodzeniami ogniw może obejmować zwiększenie rozmiaru otworu igły i ograniczenie ilości zasysania w celu zmniejszenia siły ścinającej. Częściowo zatkana igła może również zwiększać siły ścinające, prowadząc do uszkodzenia.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Dziękujemy Cecilii Moens za szkolenie w zakresie transplantacji danio pręgowanego; Marc Tye za doskonałą opiekę nad rybami; oraz Emmie Carlson za opinie na temat rękopisu. Praca ta była wspierana przez grant NIH NS121595 dla A.J.I.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10 ml "strzykawka zbiornikowa" | Fisher Scientific | 14-955-459 | |
| 150 ml jednorazowy filtr próżniowy, .2 i mikro; m, PES | Corning | 431153 | |
| blok grzewczy 20 x 12 mm | Corning | 480122 | |
| 3-drogowy kran | Braun Medical Inc. | ||
| 3 x 1 Szkiełko z matowego szkła | VWR | 48312-004 | |
| 40x obiektyw do zanurzania w wodzie | Nikon | MRD07420 | |
| Dwuwodny chlorek wapnia | Sigma-Aldrich | C3306 | |
| Manipulator zgrubny | Narishige | MN-4 | |
| Niestandardowa pompka mikrostrzykawkowa | University of Oregon | N/A | Wyprodukowany przez warsztat mechaniczny Uniwersytetu Oregon (tsa.uoregon@gmail.com). Dostępna na rynku alternatywa jest wymieniona poniżej. |
| Dumont #5 Kleszcze | Narzędzia do nauki | 1129500 | |
| Eclipse FN1 "Mikroskop transplantacyjny" | Uchwyt | Nikon N/A | |
| World Precision Instruments | 5444 | ||
| Sterylne ostrze chirurgiczne z piór, #11 | VWR | 21899-530 | |
| Drobny mikromanipulator, trójosiowy olej hydrauliczny | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| Rękojeść skalpela w stylu High Precision #3 | Fisher Scientific | 12-000-163 | |
| Jednorazowa pipeta borokrzemianowa Pasteura Kimble, szeroka końcówka, 5,75 cala | DWK Adapter | 63A53WT | |
| DWK Nauki Przyrodnicze | 420408-0000 | ||
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Lekki olej mineralny | Sigma-Aldrich | M3516-1L | |
| Cyfrowa grzałka do suchej kąpieli LSE, 1 blok, 120 V | Corning | 6875SB | |
| Ręczna pompa mikrostrzykawkowa | World Precision Instruments | MMP | Komercyjna alternatywa dla niestandardowej pompy mikrostrzykawkowej |
| Uchwyt mikroelektrody | World Precision Instruments | MPH310 | |
| MicroFil Wypełniacz do pipet | World Precision Instruments | MF28G67-5 | |
| Lakier do paznokci | Electron MIcroscopy Sciences | 72180 | |
| Woda wolna od nukleaz | VWR | 82007-334 | |
| P-97 Ściągacz do mikropipet typu płomieniowego/brązowego | Sutter Instruments | P-97 | |
| Penicylina-streptomycyna | Sigma-Aldrich | p4458-100ML | 5,000 jednostek penicyliny i 5 mg streptomycyny/ml |
| pompka pipetowa 10 ml | Bel-Art | 37898-0000 | |
| Chlorek potasu | Sigma-Aldrich | P3911 | |
| Professional Super Glue | Loctite | LOC1365882 | |
| probówki z polistyrenu okrągłodennego | Falcon | 352054 | |
| Chlorek sodu | Sigma-Aldrich | S9888 | |
| Mikrometr stołowy | Meiji Techno America | MA285 | |
| Strzykawki bez igły, 50 ml | BD 309635 | ||
| medyczne Metanosulfonian trikainy | Syndel USA | SYNCMGAUS03 | |
| Trilene XL gładki odlew Żyłka wędkarska | Berkley | XLFS6-15 | |
| Rurka polietylenowa nr 205 | BD Medical | 427445 | |
| UltraPure Agaroza o niskiej temperaturze topnienia | Invitrogen | 16520050 | |
| Wiretrol II kalibrowane mikropipety | Drummond | 50002010 |
Bibliografia
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Przedruki i uprawnienia
