Tutaj przedstawiamy procedurę analizy przebiegu replikacji poprzez patogenne, podatne na struktury powtórzenia za pomocą dwuwymiarowej elektroforezy żelowej.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Analiza elektroforetyczna replikacji przez podatne na strukturę powtórzenia DNA w ludzkim episomie opartym na SV40
W tym artykule
Podsumowanie
Streszczenie
Dwuwymiarowa neutralna/neutralna elektroforeza żelowa (2DGE) pojawiła się jako technika wzorcowa do analizy replikacji DNA przez naturalne przeszkody. Protokół ten opisuje, jak analizować progresję widełek replikacyjnych przez podatne na strukturę, rozszerzalne powtórzenia DNA w episomie opartym na małpim wirusie 40 (SV40) w komórkach ludzkich. Krótko mówiąc, po transfekcji plazmidu do komórek ludzkich, produkty pośrednie replikacji są izolowane za pomocą zmodyfikowanego protokołu Hirta i traktowane enzymem restrykcyjnym DpnI w celu usunięcia niereplikowanego DNA. Produkty pośrednie są następnie trawione przez odpowiednie enzymy restrykcyjne, aby umieścić interesujące nas powtórzenie w początkowo-dystalnej połowie fragmentu DNA o długości 3-5 kb. Półprodukty replikacji są podzielone na dwa prostopadłe wymiary, najpierw według rozmiaru, a następnie według kształtu. Po hybrydyzacji Southern blot, podejście to pozwala naukowcom obserwować zacinanie się wideł w różnych powtórzeniach tworzenia struktury na opadającej połowie łuku replikacji Y. Co więcej, takie pozycjonowanie miejsca przeciągnięcia pozwala na wizualizację różnych wyników powtarzalnego przeciągania wideł, takich jak odwrócenie wideł, nadejście zbieżnego widelca i rekombinacyjne ponowne uruchomienie wideł.
Wprowadzenie
Krótkie sekwencje tandemowe (STR) to małe, zazwyczaj od 2 do 9 par zasad (bp), powtarzalne sekwencje DNA, które stanowią około 3% ludzkiego genomu1. STR odgrywają istotną rolę w regulacji genów2; jednak ich powtarzalna budowa sprawia, że są one podatne na tworzenie niekanonicznych struktur drugorzędowych DNA i wynikającą z tego niestabilność genetyczną3,4. Od helis lewoskrętnych, przez spinki do włosów/struktury krzyżowe, aż po helisy trój- i czteroniciowe – te alternatywne struktury DNA stanowią wewnętrzne wyzwanie dla replisomu. Naturalnym warunkiem tworzenia struktur drugorzędowych jest rozplatanie DNA, które samo w sobie jest niezbędne do replikacji DNA. Tworzy to swoisty paradoks w funkcjonowaniu genomu, ponieważ wiele z tych struktur może powstawać podczas replikacji, utrudniając postęp replisomu i ostatecznie prowadząc do zatrzymania widełek replikacyjnych5,6,7, a w ciężkich przypadkach do kolapsu widełek i pęknięć DNA8,9. Wykazano, że zarówno restart zatrzymanych widełek, jak i szlaki naprawy DNA mogą prowadzić do niestabilności powtórzeń, takiej jak ekspansje powtórzeń10,11 oraz złożone rearanżacje genomu (CGR)12,13. Zdarzenia te mogą skutkować rozwojem około 60 ludzkich chorób znanych jako zaburzenia ekspansji powtórzeń, w tym zespół łamliwego chromosomu X, choroba Huntingtona, ataxia Friedreicha i inne14,15, a także chorób związanych z CGR, takich jak zespół Emmanuela16. Dlatego, aby lepiej zrozumieć mechanizmy ludzkich chorób wywołanych niestabilnością powtórzeń, niezbędne jest szczegółowe zbadanie postępu widełek replikacyjnych przez te powtórzenia.
Technika badania postępu replikacji pojawiła się w połowie lat 80. XX wieku, gdy Brewer i Fangman dążyli do dostarczenia bezpośredniego dowodu na to, że inicjacja replikacji w Saccharomyces cerevisiae zachodzi w elementach autonomicznych sekwencji replikacyjnych (powszechnie znanych jako ARS)17. W tym celu rozdzielili struktury produktów pośrednich replikacji drożdży w agarozie, adaptując wcześniejszą metodę Bell i Byersa znaną jako dwuwymiarowa neutralna/neutralna elektroforeza żelowa (2DGE)18. Technika ta wykorzystywała fakt, że nieliniowe DNA przemieszcza się w żelu agarozowym inaczej niż jego liniowy odpowiednik o tej samej masie. Bardziej szczegółowo, w 2DGE izolowane DNA jest rozdzielane w dwóch prostopadłych wymiarach – najpierw głównie ze względu na wielkość, a następnie głównie ze względu na kształt – aby stworzyć kompleksową mapę replikacji w konkretnym regionie zainteresowania. W swojej oryginalnej pracy Brewer i Fangman przedstawili to jako łuk składający się ze struktur typu „proste Y” lub widełek replikacyjnych łączących niereplikowane DNA z ich replikowanymi odpowiednikami. Opisali oni ponadto inne zaobserwowane produkty pośrednie jako „bąble” oraz „podwójne Y”, reprezentujące odpowiednio miejsca inicjacji replikacji i zbiegające się widełki.
Metodę 2DGE można wykorzystać do badania względnej liczebności populacji produktów pośrednich replikacji DNA w określonym czasie. W związku z tym, jeśli jedna populacja produktów pośrednich dominuje nad inną, będzie to widoczne podczas wizualizacji. Dzięki temu 2DGE jest szczególnie użytecznym narzędziem do badania postępu replikacji przez trudne sekwencje, takie jak powtórzenia tworzące struktury. Na przykład, jeśli analizowany region zawiera sekwencję zdolną do indukowania zatrzymania widełek replikacyjnych, objawi się to jako wybrzuszenie na łuku (Rysunek 1A), co wskazuje na akumulację widełek replikacyjnych w tym locus. Można to zaobserwować podczas replikacji zarówno sekwencji powtórzeń tworzących spinki w drożdżach19,20,21, jak i powtórzeń tworzących tripleksy w komórkach ludzkich22,23,24. Oprócz zatrzymania widełek, 2DGE można wykorzystać do obserwacji struktur DNA, które nie odpowiadają standardowym prostym strukturom Y powstającym podczas replikacji, jak ma to miejsce w przypadku produktów pośrednich rekombinacji25. Produkty pośrednie te mają cięższą i bardziej rozgałęzioną strukturę w kształcie litery X i w związku z tym migrują wolniej zarówno w pierwszym, jak i drugim wymiarze niż standardowe widełki replikacyjne. Podobne wyniki można zaobserwować w odniesieniu do regresji widełek replikacyjnych20,24,26. Wykazano, że w odpowiedzi na silny stres replikacyjny komórki eukariotyczne wykorzystują regresję widełek replikacyjnych w celu ratowania zatrzymanych widełek. Widełki te mają podobną masę cząsteczkową co widełki zatrzymane, jednak ich struktura typu „kurza stopka” skutkuje wolniejszą ruchliwością elektroforetyczną w drugim wymiarze w stosunku do ich uzupełnień w kształcie Y, co objawia się jako wydłużenie łuku w górę i na zewnątrz.
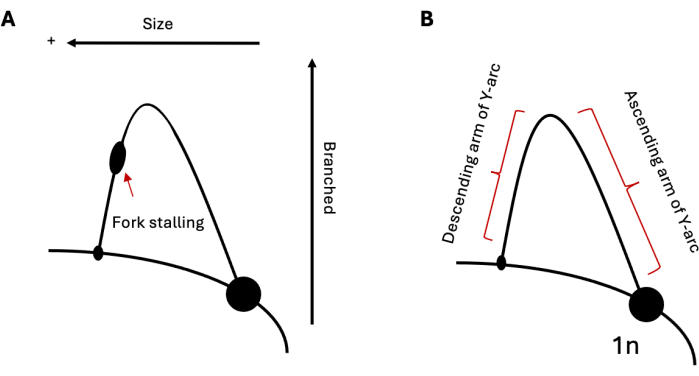
Rysunek 1: Analiza replikacji DNA za pomocą elektroforezy w żelu 2D. (A) Schemat typowej 2DGE przedstawiający replikację poprzez tworzącą strukturę sekwencję powtórzoną, zdolną do indukowania zatrzymania widełek. Rozmiar i struktura produktów pośrednich wpływają na mobilność elektroforetyczną. (B) Przykład łuku Y z odpowiednio oznakowanymi ramionami wznoszącym i opadającym. Skrót: 2DGE = dwuwymiarowa neutralna/neutralna elektroforeza żelowa. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Naturalnie jednym z najważniejszych aspektów 2DGE jest jakość i ilość produktów pośrednich replikacji. Jednakże rozdzielczość analizy 2DGE replikacji w obrębie locus endogennych w komórkach ssaków jest niewystarczająca dla pojedynczej kopii sekwencji docelowej w diploidalnym genomie ludzkim o wielkości 6 × 10⁹ bp, choć została ona zastosowana w przypadku genów wielokopiowych, takich jak silnie amplifikowane locus DHFR27 czy RNA rybosomalne28. Replikacja oparta na SV40 jest wydajnym i dobrze opisanym sposobem badania replikacji w komórkach eukariotycznych29. Stanowi ona wiarygodny model replikacji eukariotycznej, który wykorzystuje większość mechanizmów replisomu gospodarza do replikacji genomu wirusowego, który po infekcji zostaje zorganizowany w nukleosomy30,31. Dwiema istotnymi wyjątkami w obrębie replisomu ssaków są: antygen T (Tag), który zamiast kompleksu CMG gospodarza pełni funkcję replikacyjnej helikazy DNA, oraz polimeraza DNA delta, która syntetyzuje zarówno prowadzącą, jak i opóźnioną nić DNA32. Wykorzystaliśmy ten system, umieszczając patogenne odcinki powtórzeń tworzących struktury poniżej miejsca inicjacji replikacji SV40 w plazmidzie, który został pierwotnie stworzony w laboratorium Massimo Lopesa22. Co ważne, plazmid ten zawiera również gen kodujący sam Tag, co skutkuje jego konstytutywną i niezwykle intensywną replikacją po transfekcji do różnych hodowli ludzkich komórek. Cechą tą jest uzyskanie dużej ilości produktów, idealnych do analizy 2DGE produktów pośrednich powstających podczas i w odpowiedzi na replikację patogennych powtórzeń w ludzkich komórkach. W niniejszej pracy opisujemy szczegółową metodę wizualizacji replikacji powtórzeń tworzących struktury w ludzkim episomie opartym na SV40 przy użyciu dwuwymiarowej elektroforezy żelowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Plazmid zaprojektowany dla opisanego procesu analizy 2DGE w komórkach ssaków powinien zawierać replikacyjną sekwencję startową SV40 kilka kb powyżej powtórzeń podatnych na tworzenie struktur (Rysunek 2). Wybierając orientację powtórzeń w plazmidzie względem miejsca startu replikacji, należy wziąć pod uwagę syntezę nici wiodącej i opóźnionej.

Rysunek 2: Trawienie plazmidu zawierającego powtórzenia do analizy 2DGE. Powtórzenia podatne na tworzenie struktur przedstawiono kilka kb w dół strumienia od widłowej replikacji przesuwającej się w prawo. Trawienie unikalnymi enzymami tnącymi 1 i 2 umieści sekwencję powtórzeń na opadającym ramieniu łuku Y, biorąc pod uwagę sekwencję poza połową strawionego fragmentu. Skrót: 2DGE = dwuwymiarowa neutralna/neutralna elektroforeza żelowa. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.
1. Transfekcja plazmidowa komórek ssaków
- Przed transfekcją wysiać 600 000 komórek HEK293T na 10 cm płytce do hodowli tkanek. Pozostawić komórki do regeneracji w temperaturze 37 °C przez noc.
UWAGA: Do tego eksperymentu można użyć wielu linii komórkowych, choć dla uzyskania optymalnych wyników zaleca się stosowanie komórek zawierających Tag SV40. OSTROŻNIE: Komórki HEK293T są klasyfikowane jako BSL-2, a wszystkie prace związane z hodowlą powinny być prowadzone w komorze biologicznej z zachowaniem odpowiedniej techniki aseptycznej i stosowaniem właściwych środków ochrony osobistej (PPE). - Gdy komórki osiągną 60% konfluencji, przeprowadzić transfekcję 8 μg plazmidowego DNA zawierającego sekwencje powtórzeń do wysianych komórek, używając odpowiednich odczynników do transfekcji zgodnie z protokołem producenta.
- Jeśli w tym punkcie czasowym nie izoluje się intermediatów, po 24 h odessać stare medium i zastąpić je 10 mL świeżego medium.
- Rozpocząć zbieranie komórek od 24 do 48 h po transfekcji.
- Odessać medium i ostrożnie przemyć 10 mL soli fizjologicznej z buforem fosforanowym (PBS). Odkleić i zebrać komórki, używając 0,5 mL trypsyny, a następnie odwirować przy 340 × g przez 4 min.
- Odessać nadsącz i przemyć osad komórkowy PBS. Ponownie odwirować przy 340 × g przez 4 min i odessać nadsącz.
UWAGA: Eksperyment można w tym miejscu przerwać, zamrażając osady komórkowe w temperaturze -80 °C. Ustaliliśmy, że najlepszą rozdzielczość uzyskuje się, izolując intermediaty replikacji 48 h po transfekcji, jednak czas 24 h również dostarczył wiarygodnych wyników.
2. Izolacja produktów pośrednich replikacji
- Resuspenduj komórki w 1,5 mL zmodyfikowanego buforu lizującego Hirta [10 mM tris-HCl (pH 7,5), 10 mM kwasu etylenodiaminotetraoctowego (EDTA)] w stożkowych probówkach o pojemności 50 mL i rozpocznij lizę komórek.
- Dodaj dodecylosiarczan sodu (SDS) do stężenia końcowego 0,6% (około 650 μL roztworu stokowego 2% SDS) oraz proteinazę K do stężenia końcowego 100 μg/mL (około 10 μL roztworu stokowego 20 mg/mL proteinazy K), aby usunąć nukleazy.
- Mieszaj delikatnie za pomocą pipety aż do uzyskania homogennej zawiesiny, a następnie inkubuj mieszaninę w temperaturze 37 °C przez co najmniej 90 min.
- Zwiększ stężenie NaCl do 1 M (dodając około 540 μL roztworu stokowego 5 M NaCl) i mieszaj delikatnie aż do uzyskania homogenności. Inkubuj przez noc (18-24 h) w temperaturze 4 °C, aby umożliwić wytrącenie resztek komórkowych, RNA i białek poprzez efekt wysalania.
UWAGA: Mieszanina będzie bardzo lepka, dlatego należy zachować ostrożność i cierpliwość podczas dokładnego mieszania. - Następnego dnia oddziel DNA od resztek komórkowych, RNA i białek.
- Wirowarkuj mieszaninę przy 29 500 × g przez 45 min w temperaturze 4 °C.
- Przenieś nadsącz zawierający DNA, dodaj jedną objętość mieszaniny fenol:chloroform:alkohol izoamylowy 25:24:1 (v/v) i mieszaj krótko do uzyskania homogenności.
OSTROŻNIE: Fenol:chloroform:alkohol izoamylowy jest substancją niebezpieczną i należy z nim pracować w dygestorium chemicznym, stosując odpowiednie środki ochrony indywidualnej. - Wirowarkuj ponownie przy 15 000 × g przez 5 min w temperaturze pokojowej. Przenieś fazę wodną do nowej probówki stożkowej.
- Wytrąć i przemyj wyizolowane DNA.
- Dodaj jedną objętość czystego izopropanolu i inkubuj w temperaturze pokojowej przez co najmniej 5 min. Odwiruj DNA przy 15 000 × g przez 30 min w temperaturze 4 °C.
- Odlej nadsącz i przemyj osad zimnym 70% etanolem, aby usunąć nadmiar soli.
- Wiruj raz jeszcze przy 15 000 × g przez 30 min w temperaturze 4 °C, wysusz na powietrzu i delikatnie resuspenduj osad w buforze Tris-EDTA (TE) (10 mM Tris-HCl, 1 mM EDTA).
UWAGA: Eksperyment można w tym miejscu przerwać, a próbki zamrozić w temperaturze -20 °C; należy jednak unikać cykli zamrażania i rozmrażania, ponieważ może to obniżyć jakość intermediatów replikacji DNA.
3. Przygotowanie próbek i dwuwymiarowa elektroforeza w żelu
- Trawienie wyizolowanych produktów pośrednich replikacji plazmidu.
- Do próbki dodać 100 jednostek odpowiednich enzymów restrykcyjnych w celu trawienia DNA plazmidowego, tak aby sekwencja zawierająca powtórzenia znajdowała się na połowie fragmentu liniowego oddalonej od miejsca startu replikacji (Rysunek 2). Dodatkowo dodać DpnI w celu przecięcia zmetylowanego DNA, co usunie wszelkie DNA plazmidowe, które nie zostało w pełni zreplikowane w hodowanych komórkach ludzkich.
UWAGA: Dla uzyskania najlepszych wyników należy zastosować enzymy restrykcyjne tnące w jednym miejscu, które generują fragment o wielkości 3-5 kb, umieszczając sekwencję podatną na tworzenie struktur na ramieniu zstępującym łuku Y. - Próbki inkubować przy 37 °C przez 6-10 h, aby umożliwić pełne trawienie plazmidu.
- DNA wytrącić, dodając 2,5 objętości zimnego czystego etanolu i inkubując przy -20 °C przez noc, lub dodając jedną objętość izopropanolu i inkubując w temperaturze pokojowej przez 5 min.
- Próbki trawione i wytrącone wirować przy 15 000 × g przez 30 min przy 4 °C.
- Odlać supernatant i przemyć próbkę zimnym 70% etanolem. Ponownie wirować przy 15 000 × g przez 30 min przy 4 °C.
- Odlać supernatant, suszyć na powietrzu przez 10 min i resuspendować próbki w 15 μL buforu TE.
- Do próbki dodać 100 jednostek odpowiednich enzymów restrykcyjnych w celu trawienia DNA plazmidowego, tak aby sekwencja zawierająca powtórzenia znajdowała się na połowie fragmentu liniowego oddalonej od miejsca startu replikacji (Rysunek 2). Dodatkowo dodać DpnI w celu przecięcia zmetylowanego DNA, co usunie wszelkie DNA plazmidowe, które nie zostało w pełni zreplikowane w hodowanych komórkach ludzkich.
- Przygotować żel agarozowy pierwszego wymiaru o stężeniu 0,4-0,5% w 1x buforze Tris-boran-EDTA (TBE) (89 mM tris base, 89 mM kwas borowy, 2 mM EDTA). Pozostawić roztwór do zestalenia na co najmniej 1 h.
- Przystąpić do nakładania próbek do pierwszego wymiaru.
- Nałożyć marker wielkości w obrębie pierwszych 3 cm od lewej krawędzi żelu. Następnie nałożyć całość przygotowanych próbek, zachowując odstęp 3 cm między każdą parą.
- Elektroforezę żelu prowadzić w 1x TBE przez 19-24 h przy 0,85 V/cm, aby rozdzielić produkty pośrednie ze względu na ich wielkość. Należy upewnić się, że komora jest przykryta, aby chronić próbki przed światłem, które może uszkodzić DNA.
- Następnego dnia wyjąć żel z buforu i za pomocą linijki oszacować położenie trawionego fragmentu liniowego.
- Wyciąć pierwsze 3 cm żelu zawierające marker i barwić ten segment żelu w 1x TBE zawierającym 0,3 μg/mL bromku etydium przez 10-15 min. Wizualizować marker za pomocą systemu dokumentacji żeli.
- Do oszacowanego położenia dodać 1,3 cm, otrzymując wartość a. Następnie od wartości a odjąć 7,5 cm, otrzymując wartość b. Przyłożyć linijkę do żelu pierwszego wymiaru i przeciąć go poziomo na wysokościach a i b. Następnie przeciąć pionowo przestrzeń 3 cm zarezerwowaną dla każdej próbki. Schemat wizualny znajduje się na Rysunku 3.
- W nowej kasecie do odlewania obrócić segmenty zgodnie z ruchem wskazówek zegara i umieścić je w pozycji dolków na próbki (Rysunek 3).
- Przygotować żel agarozowy drugiego wymiaru o stężeniu 1-1,3% w 1x TBE z dodatkiem 0,3 μg/mL bromku etydium.
- Po ochłodzeniu do około 55 °C wylać żel drugiego wymiaru na obrócone segmenty pierwszego wymiaru i pozostawić do zestalenia na co najmniej 1 h.
- Przenieść żel drugiego wymiaru do komory z 1x TBE zawierającym 0,3 μg/mL bromku etydium i pozostawić do równowagowania przez co najmniej 30 min.
- Elektroforezę żelu prowadzić (ponownie pod przykryciem) przez 9-10 h przy 4,23 V/cm w temperaturze 4 °C, aby rozdzielić produkty pośrednie ze względu na ich kształt.
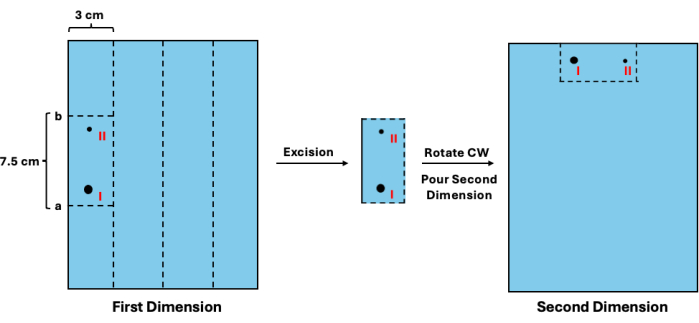
Rycina 3: Wycinanie produktów pośrednich z pierwszej wymiarowości przed rozdziałem w drugiej wymiarowości. Po wizualizacji drabiny można oszacować mobilność fragmentów niereplikowanych. (I) Wartość ta może następnie zostać wykorzystana do wyznaczenia odpowiednich miejsc cięcia (a i b) w celu wycięcia fragmentu oraz jego odpowiedników replikowanych (II). Odcinek żelu należy następnie obrócić i umieścić w pozycji studni do rozdziału w drugiej wymiarowości. Skrót: CW = zgodnie z ruchem wskazówek zegara. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Southern blotting i hybrydyzacja z użyciem znakowanej radioaktywnie sondy
- Wyjmij żel z drugiego wymiaru z komory i przeprowadź depurynację fragmentów DNA przez 10 min w 0,24 M roztworze HCl przy delikatnym kołysaniu. Przepłucz żel wodą dejonizowaną i namocz go w 0,4 M NaOH przez 10-15 min.
OSTRZEŻENIE: HCl i NaOH są substancjami żrącymi i należy z nimi pracować w dygestorium, stosując odpowiednie środki ochrony indywidualnej (ŚOI). - Zacznij składać układ do Southern blotu, aby umożliwić transfer rozdzielonych intermediatów z żelu na membranę. Szczegółowy schemat znajduje się na Rysunku 4.
- Napełnij odpowiednio duży pojemnik 1 L 0,4 M NaOH.
- Ułóż długą szklaną płytkę w poprzek pojemnika i złóż (wzdłuż długości) dwa długie arkusze papieru chromatograficznego prostopadle do płytki szklanej, tak aby zwisały do pojemnika z NaOH.
- Zmocz górną część papieru NaOH i ostrożnie usuń wszelkie pęcherzyki powietrza spod jego powierzchni.
- Namocz trzy arkusze papieru chromatograficznego w NaOH i połóż je na złożonym papierze, ponownie usuwając wszelkie pęcherzyki.
- Odwróć żel z drugiego wymiaru do góry nogami i przenieś go na papiery.
- Zmocz dodatnio naładowaną membranę nylonową (wielkość porów 0,45 μm) wodą DI i połóż ją na żelu.
- Na koniec dodaj trzy kolejne arkusze papieru, zmoczone wodą DI, na membranę.
- Przykryj każdą odsłoniętą powierzchnię NaOH w dolnym pojemniku folią spożywczą, aby zapobiec parowaniu. Na górze blotu połóż stos serwetek lub ręczników papierowych o wysokości 0,3-0,5 m. Umieść na górze obciążnik, dociskając cały blot, aby ułatwić działanie kapilarne. Pozostaw DNA na co najmniej 2 dni w celu transferu na membranę.
UWAGA: Długość i szerokość papieru chromatograficznego oraz membrany zależą od rozmiaru żelu agarozy użytego w drugim wymiarze. Dla uzyskania najefektywniejszego transferu należy używać papieru i membrany o tych samych wymiarach co żel.
- Po transferze utrwal DNA na membranie za pomocą naświetlacza UV przy 120 μJ/cm2 przez 1 min.
UWAGA: Eksperyment można w tym miejscu przerwać, umieszczając membranę w szczelnym, suchym i czystym koszulce na dokumenty w temperaturze pokojowej. - Przemyj membranę 2x przez 5 min 2x roztworem soli cytryniano-estrycznej (bufor SSC) (0,3 M NaCl, 0,03 M cytrynian sodu).
- Przeprowadź prehybrydyzację membrany z 0,18 mL/cm2 buforu do hybrydyzacji Churcha i Gilberta [1 mM EDTA, 1% albuminy surowicy bydlęcej (BSA), 0,5 M fosforanu sodu, 7% SDS] w 65 °C, rotując w inkubatorze do hybrydyzacji przez co najmniej 2 h.
UWAGA: Membrana może być poddawana prehybrydyzacji przez kilka dni. - Przygotuj znakowaną izotopowo sondę, używając α-32P dATP lub dCTP oraz zestawu do znakowania DNA zgodnie z protokołem producenta.
OSTRZEŻENIE: Znakowane izotopowo dNTP są niebezpieczne i podczas pracy z nimi należy stosować odpowiednie ŚOI. Wszystkie prace z materiałami radioaktywnymi powinny być wykonywane za osłoną, a przeszkolone osoby powinny być monitorowane pod kątem absorpcji promieniowania za pomocą dozymetrów.- Zaprojektuj liniowy fragment DNA o długości 400-900 bp komplementarny do sekwencji po trawieniu restrykcyjnym (Rysunek 2) i namnóż fragment za pomocą reakcji łańcuchowej polimerazy (PCR).
UWAGA: Zalecamy przygotowanie zapasu fragmentu PCR o stężeniu 50-100 ng/μL. - Połącz 100 ng komplementarnego fragmentu PCR z buforem dla DNA Pol I, fragmentu Klenowa (3' 5' exo-) oraz losowymi oligonukleotydami decanukleotydowymi.
- Zdenaturuj fragment w 100 °C przez 10 min.
- Dodaj do próbki 5 jednostek DNA Pol I, fragmentu Klenowa (3' 5' exo-), 50 μCi α-32P dNTP oraz 30-50 μmol mieszaniny dNTP pozbawionej znakowanego izotopowo typu dNTP.
- Inkubuj w 37 °C przez 10 min, aby umożliwić polimeryzację i wbudowanie znakowanych izotopowo dNTP.
- Dodaj do próbki 30-50 μmol wcześniej pominiętego typu dNTP i inkubuj w 37 °C przez 10 min.
- Oczyść znakowany izotopowo fragment za pomocą kolumny wirowkowej przy 3 000 × g przez 2 min.
- Zaprojektuj liniowy fragment DNA o długości 400-900 bp komplementarny do sekwencji po trawieniu restrykcyjnym (Rysunek 2) i namnóż fragment za pomocą reakcji łańcuchowej polimerazy (PCR).
- Dodaj znakowaną izotopowo sondę do 50 mL buforu do hybrydyzacji i inkubuj z membraną przez noc w 65 °C, rotując w inkubatorze do hybrydyzacji.
- Następnego dnia usuń sondę i przemyj membranę 2x buforem do mycia 1 (0,1x SSC, 0,1% SDS) w 42 °C oraz 2x buforem do mycia 2 (2x SSC, 0,1% SDS) w 65 °C.
UWAGA: Wszystkie mycia powinny być przeprowadzane przy szybkich obrotach przez 15 min w inkubatorze. - Wysusz membranę przez 10 min i umieść ją w cienkiej, przezroczystej koszulce. Przechowuj zamkniętą membranę w kontrolowanej, odpornej na promieniowanie kasecie z ekranem czułym na fosfor. Pozostaw membranę na ekranie na 1-10 dni.
- Wizualizuj wyniki za pomocą obrazownika biomolekularnego ustawionego na obrazowanie fosforowe. W razie potrzeby przemyj i naświetl ponownie.

Rycina 4: Złożenie układu do Southern blot. Szczegółowy schemat typowego aparatu wykorzystywanego do transferu produktów z drugiej wymiarowości na membranę nylonową metodą Southern blot. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W przypadku sukcesu, podczas wizualizacji można zaobserwować wyraźny łuk widełek replikacyjnych rozciągający się w górę i na zewnątrz od masywnej plamki 1n (Rysunek 5A). Rozmiar fragmentu lub procent zreplikowanej części determinuje mobilność fragmentu w pierwszym wymiarze. W miarę jak produkty pośrednie nabierają bardziej rozgałęzionej struktury, zaczynają poruszać się wolniej w drugim wymiarze. Zatem, jeśli produkt pośredni poruszał się powoli w obu wymiarach, można stwierdzić, że jest to ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
2DGE zapewnia półilościowy i kompleksowy obraz względnych populacji produktów pośrednich, które powstają podczas replikacji określonej sekwencji. Biorąc pod uwagę, że delikatne struktury molekularne widełek replikacyjnych muszą być utrzymywane przez cały czas trwania tej procedury, należy zachować szczególną ostrożność, aby zapobiec fizycznemu ścinaniu i denaturacji chemicznej. Dlatego zdecydowanie zaleca się unikanie wszelkich zabiegów alkalicznych podczas izolacji plazmidu. Aby tego uniknąć, my i inni wdrożyliśmy zmody...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Dziękujemy Jorge Cebrianowi i Anastasii Rastokinie, którzy rozpoczęli rozwój tego podejścia w naszym laboratorium, Massimo Lopesowi za dostarczenie nam plazmidu pML113 i bezcennych porad, Ylli Doksani za wnikliwe dyskusje, oraz członkom laboratorium Mirkin za ich wsparcie. Prace w laboratorium Mirkin są wspierane przez National Institute of General Medical Sciences [R35GM130322] oraz NSF-BSF [2153071].
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10x Bufor TBE | Bio Rad | 1610733 | |
| 20x Bufor SSC | Fisher Scientific | BP1325-1 | |
| Komórki 293T | ATCC | CRL-3216 | |
| a-32P dATP, 3000 Ci/mmol | Revvity | BLU512H250UC | |
| Agaroza Fisher | Scientific | BP160-500 | |
| Amersham Hybond-N+ | Fisher Scientific | RPN303B | |
| BAS Magazynowanie ekranów luminoforowych | Fisher Scientific | 28956482 | |
| Church i bufor hybrydyzacyjny Giberta | Fisher Scientific | 50-103-5408 | |
| Etykietowanie DNA DecaLabel zestaw | ThermoFisher Scientific | K0622 | |
| DMEM, wysoka gluktoza, suplement GltaMAX, pirogronian | ThermoFisher Scientific | 10569010 | |
| DpnI | New England Biolabs | R0176S | Należy również zakupić dodatkowe enzymy restrykcyjne |
| EDTA 0,5 M, pH 8 | Fisher Scientific | BP2482500 | |
| Etanol, 70% | Fisher Scientific | ||
| Płodowa surowica bydlęca | VWR | 97068-085 | |
| Roztwór kwasu solnego, 12 M | Millipore Sigma | 13-1683 | |
| Isopropanol | Fisher Scientific | BP26184 | |
| Odczynnik do transfekcji DNA i siRNA jetPRIME z buforem | VWR | 101000027 | |
| MycoZap Plus-CL | VWR | 75870-448 | |
| NaCl | Millipore Sigma | 746398-500G | |
| Probówki wirówkowe szybkoobrotowe Nalgene Oak Ridge | ThermoFisher Scientific | 3139-0050 | |
| Bufor fosforanowy Solanka, pH 7,4 | ThermoFisher Scientific | 10010023 | |
| Bufor fosforanowy sól fizjologiczna, pH 7,5 | ThermoFisher Scientific | 10010024 | |
| Proteinaza K | ThermoFisher Scientific | EO0491 | |
| Proteinaza K | ThermoFisher Scientific | EO0492 | |
| Bibuła do chromatografii z czystej celulozy | Fisher Scientific | 05-714-4 | |
| Bibuła do chromatografii z czystej celulozy | Fisher Scientific | 05-714-5 | |
| Linijka | Fisher Scientific | 09-016 | |
| Skalpel | Fisher Scientific | 12-460-451 | |
| Dodecylosiarczan | soduMillipore Sigma | 436143-25G | |
| Wodorotlenek sodu | Fisher Scientific | S25548 | |
| Wirówka superszybka Sorval LYNX 4000 | ThermoFisher Scientific | 75006580 | |
| Subkomórkowy system elektroforezy poziomej | Bio Rad | 1704401 | |
| TH13-6 x 50 Wahadłowy wirnik kubełkowy | ThermoFisher Scientific | 75003010 | |
| Tris-HCl 1 M, pH 7,5 | Fisher Scientific | BP1757-500 | |
| Trypsyna-EDTA (0,25%), czerwień fenolowa | ThermoFisher Scientific | 25200056 |
Bibliografia
- Liao, X., et al. Repetitive DNA sequence detection and its role in the human genome. Commun Biol. 6 (1), 1-21 (2023).
- Fotsing, S. F., et al. The impact of short tandem repeat variation on gene expression. Nat Genet. 51 (11), 1652-1659 (2019).
- Fan, H., Chu, J. -Y. A brief review of short tandem repeat mutation. GPB. 5 (1), 7-14 (2007).
- Khristich, A. N., Mirkin, S. M. On the wrong DNA track: Molecular mechanisms of repeat-mediated genome instability. J Biol Chem. 295 (13), 4134-4170 (2020).
- Samadashwily, G. M., Raca, G., Mirkin, S. M. Trinucleotide repeats affect DNA replication in vivo. Nat Genet. 17 (3), 298-304 (1997).
- Khristich, A. N., Armenia, J. F., Matera, R. M., Kolchinski, A. A., Mirkin, S. M. Large-scale contractions of Friedreich's ataxia GAA repeats in yeast occur during DNA replication due to their triplex-forming ability. Proc Natl Acad Sci USA. 117 (3), 1628-1637 (2020).
- Shishkin, A. A., et al. Large-scale expansions of Friedreich's ataxia GAA repeats in yeast. Mol Cell. 35 (1), 82-92 (2009).
- Sundararajan, R., Gellon, L., Zunder, R. M., Freudenreich, C. H. Double-strand break repair pathways protect against CAG/CTG repeat expansions, contractions and repeat-mediated chromosomal fragility in Saccharomyces cerevisiae. Genetics. 184 (1), 65-77 (2010).
- Kim, H. -M., et al. Chromosome fragility at GAA tracts in yeast depends on repeat orientation and requires mismatch repair. EMBO J. 27 (21), 2896-2906 (2008).
- Polleys, E. J., House, N. C. M., Freudenreich, C. H. Role of recombination and replication fork restart in repeat instability. DNA Repair. 56, 156-165 (2017).
- Gold, M. A., et al. Restarted replication forks are error-prone and cause CAG repeat expansions and contractions. PLoS Genet. 17 (10), e1009863(2021).
- Lambert, S., et al. Homologous recombination restarts blocked replication forks at the expense of genome rearrangements by template exchange. Mol Cell. 39 (3), 346-359 (2010).
- Burssed, B., Zamariolli, M., Bellucco, F. T., Melaragno, M. I. Mechanisms of structural chromosomal rearrangement formation. Mol Cytogenet. 15 (1), 23(2022).
- Paulson, H. Repeat expansion diseases. Handb Clin Neurol. 147, 105-123 (2018).
- Malik, I., Kelley, C. P., Wang, E., Todd, P. Molecular mechanisms underlying nucleotide repeat expansion disorders. Nat Rev Mol Cell Biol. 22 (9), 589-607 (2021).
- Emanuel, B. S., Zackai, E. H., Medne, L. Emanuel Syndrome. GeneReviews®. Adam, M. P. , University of Washington. Seattle, Seattle, WA. (1993).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Bell, L., Byers, B. Separation of branched from linear DNA by two-dimensional gel electrophoresis. Anal Biochem. 130 (2), 527-535 (1983).
- Voineagu, I., Narayanan, V., Lobachev, K. S., Mirkin, S. M. Replication stalling at unstable inverted repeats: Interplay between DNA hairpins and fork stabilizing proteins. Proc Natl Acad Sci USA. 105 (29), 9936-9941 (2008).
- Nguyen, J. H. G., et al. Differential requirement of Srs2 helicase and Rad51 displacement activities in replication of hairpin-forming CAG/CTG repeats. Nucleic Acids Res. 45 (8), 4519-4531 (2017).
- Krasilnikova, M. M., Mirkin, S. M. Analysis of triplet repeat replication by two-dimensional gel electrophoresis. Trinucleotide Repeat Protocols. Kohwi, Y. , Humana Press. Totowa, NJ. (2004).
- Follonier, C., Oehler, J., Herrador, R., Lopes, M. Friedreich's ataxia-associated GAA repeats induce replication-fork reversal and unusual molecular junctions. Nat Struct Mol Biol. 20 (4), 486-494 (2013).
- Chandok, G. S., Patel, M. P., Mirkin, S. M., Krasilnikova, M. M. Effects of Friedreich's ataxia GAA repeats on DNA replication in mammalian cells. Nucleic Acids Res. 40 (9), 3964-3974 (2012).
- Rastokina, A., et al. Large-scale expansions of Friedreich's ataxia GAA•TTC repeats in an experimental human system: role of DNA replication and prevention by LNA-DNA oligonucleotides and PNA oligomers. Nucleic Acids Res. 51 (16), 8532-8549 (2023).
- Giannattasio, M., et al. Visualization of recombination-mediated damage-bypass by template switching. Nat Struct Mol Biol. 21 (10), 884-892 (2014).
- Hisey, J. A., et al. Pathogenic CANVAS (AAGGG)n repeats stall DNA replication due to the formation of alternative DNA structures. Nucleic Acids Res. 52 (8), 4361-4374 (2024).
- Kalejta, R. F., Lin, H. B., Dijkwel, P. A., Hamlin, J. L. Characterizing replication intermediates in the amplified CHO dihydrofolate reductase domain by two novel gel electrophoretic techniques. Mol Cell Biol. 16 (9), 4923-4931 (1996).
- Little, R. D., Platt, T. H., Schildkraut, C. L. Initiation and termination of DNA replication in human rRNA genes. Mol Cell Biol. 13 (10), 6600-6613 (1993).
- Fanning, E., Zhao, K. SV40 DNA replication: From the A gene to a nanomachine. Virology. 384 (2), 352-359 (2009).
- Sogo, J. M., Stahl, H., Koller, T., Knippers, R. Structure of replicating simian virus 40 minichromosomes: The replication fork, core histone segregation and terminal structures. J Mol Biol. 189 (1), 189-204 (1986).
- Weisshart, K., Taneja, P., Fanning, E. The replication protein A binding site in simian virus 40 (SV40) T antigen and its role in the initial steps of SV40 DNA replication. J Virol. 72 (12), 9771-9781 (1998).
- Sowd, G. A., Fanning, E. A Wolf in sheep's clothing: SV40 co-opts host genome maintenance proteins to replicate viral DNA. PLoS Pathog. 8 (11), e1002994(2012).
- National Library of Medicine: National Center for Biotechnology Information. BLAST: Basic Local Alignment Search Tool. , https://blast.ncbi.nlm.nih.gov/Blast.cgi (2024).
- Hirt, B. Selective extraction of polyoma DNA from infected mouse cell cultures. J Mol Biol. 26 (2), 365-369 (1967).
- Lopes, M., Foiani, M., Sogo, J. M. Multiple mechanisms control chromosome integrity after replication fork uncoupling and restart at irreparable UV lesions. Mol Cell. 21 (1), 15-27 (2006).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
