Tutaj prezentujemy protokół izolowania egzosomów pochodzących z śledziony myszy za pomocą kombinacji trawienia z kolagenazą typu I i ultrawirowania.
Artykuł metodologiczny
Izolacja i charakterystyka egzosomów pochodzących z tkanek śledziony myszy
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Egzosomy (Exo) to dwuwarstwowe struktury lipidowe wydzielane przez różne komórki, w tym komórki zwierząt, roślin i prokariontów. Wcześniejsze badania wykazały, że egzo pochodzące z humoralu lub supernatantu komórkowego są obiecującymi celami dla nowych biomarkerów diagnostycznych lub prognostycznych, co podkreśla ich znaczącą rolę w patogenezie choroby. Egzo pochodzenia tkankowego (Ti-Exo) przyciąga coraz większą uwagę ze względu na jego zdolność do dokładnego odzwierciedlania specyfiki tkankowej i mikrośrodowiska. Ti-Exo, obecne w przestrzeni śródmiąższowej, odgrywają kluczową rolę w komunikacji międzykomórkowej i sygnalizacji międzynarządowej. Pomimo uznanej wartości w wyjaśnianiu mechanizmów chorobowych, izolowanie Ti-Exo pozostaje wyzwaniem ze względu na złożoność matryc tkankowych i zmienność metod ekstrakcji. W tym badaniu opracowaliśmy praktyczny protokół izolowania egzosomów z tkanki śledziony myszy, zapewniając powtarzalną technikę późniejszej analizy identyfikacyjnej i badań funkcjonalnych. Zastosowaliśmy trawienie kolagenazy typu I w połączeniu z ultrawirowaniem różnicowym, aby wyizolować Exo pochodzące ze śledziony. Charakterystykę wyizolowanego egzoenzymu określono za pomocą mikroskopii elektronowej, cytometru nanoprzepływowego i western blot. Wyizolowany Exo pochodzący ze śledziony wykazywał typową morfologię dwuwarstwowych pęcherzyków lipidowych, o rozmiarach cząstek od 30 nm do 150 nm. Ponadto profil ekspresji markerów egzosomów potwierdził obecność i czystość egzosomów. Podsumowując, udało nam się opracować praktyczny protokół izolowania egzo pochodzącego ze śledziony u myszy.
Wprowadzenie
Egzosomy (Exo) to podgrupa pęcherzyków zewnątrzkomórkowych (EV), o rozmiarach od 30 do 150 nm, obejmująca różnorodny wachlarz biomolekuł, w tym białka, kwasy nukleinowe i lipidy1. Te biomolekuły pochodzą z komórek rodzicielskich i są uwalniane do przestrzeni zewnątrzkomórkowej. Exo ułatwia wymianę informacji biomolekularnych między komórkami i otaczającym je mikrośrodowiskiem, odgrywając rolę zarówno w systemach prokariotycznych, jak i eukariotycznych2. Cechy egzosomów, takie jak zawartość, rozmiar, składniki błony i pochodzenie komórkowe, są bardzo zmienne i zależy od typu komórki źródłowej, stanu komórkowego i warunków środowiskowych.
Egzosomy są zwykle klasyfikowane do trzech kategorii w zależności od ich źródła: pochodzące z hodowli komórek, pochodzące z płynów ustrojowych i pochodzące z tkanek (Ti-Exo). Podczas gdy egzosomy pochodzące z hodowli komórkowych były szeroko badane ze względu na ich dostępność i stałą wydajność, ich zastosowanie jest ograniczone przez potencjalne zmiany w charakterystyce komórek po długotrwałej hodowli, które mogą błędnie przedstawiać ich funkcje biologiczne3,4,5. Co więcej, większość kultur komórkowych jest utrzymywana w dwuwymiarowych środowiskach, które nie naśladują złożonych interakcji międzykomórkowych in vivo, co może mieć wpływ na interpretację danych6. I odwrotnie, egzosomy wyizolowane z płynów biologicznych oferują minimalnie inwazyjną opcję monitorowania postępu choroby w czasie rzeczywistym7. Jednak próbki te często zawierają mieszaninę egzosomów różnego pochodzenia, co komplikuje dokładną identyfikację ich pierwotnego źródła8. Biorąc pod uwagę te wyzwania, rośnie zainteresowanie Ti-Exo, które znajdują się w śródmiąższu zewnątrzkomórkowym i są kluczowymi mediatorami sygnalizacji międzykomórkowej.
Śledziona odgrywa kluczową rolę w funkcjonowaniu układu odpornościowego i utrzymaniu wewnętrznej homeostazy. Pomimo istniejących protokołów izolowania Ti-Exo z narządów takich jak mózg, wątroba i nowotwory, praktyczne metody egzosomów pochodzących ze śledziony są ograniczone do raportowania9,10. Badanie to miało na celu ustanowienie praktycznego protokołu izolowania egzosomów z tkanki śledziony u myszy zmodyfikowanych w stosunku do poprzedniego raportu11. Szczegółowo opisujemy metodę polegającą na trawieniu kolagenazy, a następnie ultrawirowaniu, co minimalizuje przerwanie błony komórkowej i zapewnia wysoką czystość i wydajność Exo pochodzącego ze śledziony. Charakterystyka wyizolowanego egzo przy użyciu tego ustalonego protokołu została zwalidowana za pomocą mikroskopii elektronowej (TEM), cytometru nanoprzepływowego (Nano-FCM) i western blot, potwierdzając skuteczność protokołu w dalszych badaniach eksperymentalnych.
Protokół
Próbki pobrano od myszy po uzyskaniu zgody etycznej Komisji Etyki Guangdong Medical University. Szczegółowe opisy materiałów, sprzętu i oprogramowania wykorzystanego w niniejszym protokole znajdują się w Tabela materiałówSzczegóły przygotowania przed ekstrakcją zostały przedstawione w Rycina 1, natomiast proces ekstrakcji i wzbogacania Spleen-Exo opisano w Rysunek 2.
1. Przygotowanie
- Wstępnie schłodź wirówki wysokich i ultra-wysokich obrotów do 4 °C i ustaw temperaturę inkubatora wytrząsowego na 37 °C.
- Przygotuj naczynia hodowlane (
 100 mm), sterylne probówki wirówkowe o pojemności 50 mL, lód oraz sterylne sitko do komórek (70 µm), zgodnie z Rysunkiem 1A, B.
- Zdezynfekuj nożyczki i pincetę za pomocą sprayu z 75% alkoholem, a następnie poddaj je sterylizacji wysokotemperaturowej. Narzędzia te przedstawiono na Rysunku 1C.
- Umieść tkankę śledziony w sterylnej 100 mm szalce Petriego na lodzie i wypłucz krew z powierzchni za pomocą schłodzonego, sterylnego 1x roztworu soli fizjologicznej z buforem fosforanowym (PBS). Osusz tkankę śledziony sterylną gazą i zważ ją po osuszeniu.
UWAGA: Jeśli tkanka jest zamrożona, rozmrozić ją w szalce przez 15 min na lodzie przed kontynuowaniem procedury. - Nawilż sitko do komórek (70 µm), wlewając 1 mL sterylnego PBS do sitka za pomocą sterylnej pipety transferowej.
- Przygotuj bufor trawienny (0,1% kolagenazy typu I) w 1x PBS, mieszając go za pomocą wstrząsarki vortex.
UWAGA: Użyj 10 mL buforu trawiennego na każde 100 mg tkanki śledziony. Stężenie kolagenazy w niniejszym badaniu wybrano na podstawie instrukcji produktu. W przypadku innych rodzajów tkanek badacze mogą potrzebować dostosowania tych parametrów w zależności od gęstości i składu tkanki. W celu ustalenia optymalnych warunków dla każdego rodzaju tkanki zaleca się przeprowadzenie wstępnych eksperymentów z różnymi stężeniami i czasami trawienia.
2. Trawienie tkanek
- Posiekaj tkankę nożyczkami na jednorodne małe kawałki w naczyniu hodowlanym na lodzie (Ryc. 3A), a następnie przenieś ją do probówki wirówkowej o pojemności 50 mL za pomocą sterylnej pipety transferowej.
- Dodaj do probówki bufor do trawienia zgodnie z masą tkanki śledziony, jak wskazano powyżej (Ryc. 3B), a następnie inkubuj probówkę pod kątem 45° na wytrząsarce poziomej w temperaturze 37 °C. Monitoruj postępy trawienia i przerwij proces, gdy fragmenty tkanki ulegną rozproszeniu i większość z nich straci swój pierwotny kształt. Czas trawienia może się różnić w zależności od rodzaju tkanki. W warunkach eksperymentalnych zastosowanych w niniejszym badaniu czas trawienia wynosi około 30 min.
- Przenieś strawaną mieszaninę przez sitko komórkowe (Ф70 µm) w temperaturze pokojowej (RT), aby usunąć włókna i większe fragmenty tkanek.
UWAGA: Filtrację należy przeprowadzić niezwłocznie po zakończeniu trawienia. - Zbierz filtrat do nowej probówki wirówkowej o pojemności 50 mL.
3. Izolacja egzosomów metodą wirowania różnicowego
- Odwiruj filtraty przy 500 x g przez 10 min w temperaturze 4 °C. Po wirowaniu widoczny jest osad zawierający pozostałe komórki, szczątki komórkowe i jądra, jak pokazano na Rysunku 3C.
- Przenieś supernatant do nowej probówki i odwiruj przy 3000 x g przez 20 min w temperaturze 4 °C. Po wirowaniu widoczny jest osad zawierający ciałka apoptotyczne i mikrosomy, jak pokazano na Rysunku 3D.
- Przenieś supernatant do nowej probówki i odwiruj przy 10 000 x g przez 30 min w temperaturze 4 °C. Po wirowaniu widoczny jest osad zawierający mikropęcherzyki i błony plazmatyczne, jak pokazano na Rysunku 3E.
- Odwiruj otrzymany supernatant w ultrawirówce przy 120 000 x g przez 2 h w temperaturze 4 °C. Po wirowaniu na dnie probówki widoczny jest osad, jak pokazano na Rysunku 3F.
- Odlej supernatant, przemyj osad buforem PBS i ponownie odwiruj w ultrawirówce przy 120 000 x g przez 2 h w temperaturze 4 °C w celu wyizolowania egzosomów. Po wirowaniu na dnie probówki widoczny jest osad, jak pokazano na Rysunku 3G.
- Rozpuść wyizolowane egzosomy w sterylnym PBS (200 µL na śledzionę) i przechowuj je w nowej probówce wirówkowej o pojemności 2 mL w temperaturze -80 °C.
4. Charakterystyka egzosomów za pomocą transmisyjnej mikroskopii elektronowej (TEM)
UWAGA: TEM wykorzystano do ustalenia, czy wyekstrahowane Exo wykazują cechy pęcherzyków. Próbki Exo identyfikowane za pomocą mikroskopii elektronowej muszą być świeże lub przechowywane krótko w temperaturze 4 °C.
- Utrwal egzosomy (2-6 µg/µL) za pomocą 2% paraformaldehydu klasy EM (do mikroskopii elektronowej) w temperaturze pokojowej przez 2 h.
- Nanieś 10 µL roztworu egzosomów na siatkę miedzianą, inkubuj w temperaturze pokojowej przez 10 min, wypłucz sterylną wodą destylowaną i usuń nadmiar cieczy za pomocą papieru absorpcyjnego.
- Barwi siatkę miedzianą 2% octanem uranylu przez 1 min, usuń nadmiar płynu papierem filtrowanym i wysusz pod lampą żarową przez 2 min.
- Obserwuj przygotowaną próbkę pod transmisyjnym mikroskopem elektronowym przy napięciu 80 kV.
5. Pomiar rozkładu wielkości i stężenia cząsteczek egzosomów
- Wprowadź standardowe nanocząstki polistyrenowe (250 nm) do nano-cytometru przepływowego.
- Zmierz stężenie białka w próbkach Exo, korzystając z zestawu do analizy białek BCA. Rozcieńcz próbkę Exo w PBS zgodnie z wynikami analizy białek BCA (rozcieńcz egzosomy do stężenia 1-10 ng/µL), a następnie wprowadź próbki Exo do nano-cytometru w celu pomiaru intensywności rozproszenia bocznego (SSI).
- Oblicz stężenie Exo na podstawie stosunku SSI do stężenia cząstek w standardowych nanocząstkach polistyrenowych.
UWAGA: W celu pomiaru wielkości generowana jest krzywa wzorcowa poprzez wprowadzenie do nano-cytometru przepływowego standardowych nanocząstek krzemionkowych o stopniowanych rozmiarach (68 nm, 91 nm, 113 nm, 155 nm). Następnie wprowadza się próbkę Exo. Rozkład wielkości Exo obliczono na podstawie krzywej wzorcowej.
6. Lizacja i potwierdzenie obecności białek egzosomów za pomocą immunoblottingu
- Do osadu egzosomów przeznaczonego do analizy białek dodaj 100 µL buforu do lizy RIPA (radio immunoprecipitation assay).
- Wymieszaj energicznie w wirówce vortex, zabezpiecz parafilmem, inkubuj na wytrząsarku przez 20 min w RT, a następnie ponownie wymieszaj w wirówce vortex.
- Krótko odwiruj przy 1000 x g przez 30-60 s w celu zebrania próbki, przenieś do nowej probówki do mikrocentryfugi o pojemności 1,5 mL i przechowuj w temperaturze od -20 °C do -80 °C do czasu analizy.
- W przypadku immunoblottingu wymieszaj próbki z 5x buforem do nakładania, aby uzyskać stężenie 1x, i przygotuj do elektroforezy w żelu.
- Jeśli wymagane są kontrole z homogenatu całego tkanki, do lizy tkanki użyj silnego buforu do lizy z inhibitorem proteaz, zgodnie z opisem powyżej. Następnie odwiruj próbki przy 10 000 x g przez 10 min i odrzuć pozostałą macierz pozakomórkową, całe komórki lub nienaruszone szczątki komórkowe.
- Gotuj bufor z próbką zawierającą egzosomy lub homogenat tkanki w temperaturze 95 °C przez 5-10 min. Na żel 10% SDS-PAGE nałóż równą ilość białka na każdą ścieżkę. Jako kontrolę nałóż równą ilość białka z homogenatu tkanki.
- Przeprowadź elektroforezę żelową przy napięciu 80 V przez około 2 h, stosując konwencjonalny bufor do elektroforezy. Wykonaj analizę western blot, aby potwierdzić ekspresję białek Exo w oczyszczonych lizatach i porównać względną zawartość Exo w frakcjach.
Wyniki
Izolacja i oczyszczanie egzosomów pochodzących ze śledziony
W celu wyizolowania egzosomów z tkanki śledziony myszy zastosowano kombinację trawienia kolagenazą oraz różnicowego wirowania w ultrecentry fudze (Rycina 2). Pierwsze etapy obejmowały wstępne przygotowanie tkanki śledziony w celu usunięcia krwi z powierzchni, a następnie trawienie kolagenazą typu I. Ta obróbka enzymatyczna ułatwiła rozkład składników macierzy zewnątrzkomórkowej, uwalniając tym samym egzosomy przy jednoczesnym zachowaniu ich integralności. Po trawieniu zastosowano serię etapów wirowania w celu sekwencyjnego usunięcia szczątków komórkowych, ciał apoptotycznych oraz większych pęcherzyków, co zwieńczono ultrawirowaniem nadosadu przy 120 000 x g w celu spelletowania egzosomów. Następne procedury izolacji pozwoliły na uzyskanie rozpuszczalnych w PBS pelletów wzbogaconych o egzosomy pochodzące ze śledziony, co pokazano w Rycina 3G.
Wyniki TEM
Morfologię wyizolowanych egzosomów zbadano za pomocą transmisyjnej mikroskopii elektronowej, która jest złotym standardem w charakterystyce egzosomów. TEM jest powszechnie stosowana do potwierdzania obecności egzosomów, oceny ich jakości oraz obserwacji ich morfologii. Obrazy TEM (Rysunek 4A) wykazały obecność pęcherzyków w kształcie filiżanek, co jest charakterystyczne dla egzosomów. Pęcherzyki te wykazywały wyraźną strukturę dwuwarstwy lipidowej, co potwierdziło pomyślną izolację egzosomów z tkanki śledziony.
Rozkład wielkości Spleen-Exo
Rozkład wielkości i stężenie egzosomów określono przy użyciu nano-cytometru przepływowego. Wyniki (Rysunek 4B>) wykazały, że średnica wyizolowanych egzosomów mieściła się w zakresie 30-150 nm, z maksymalnym stężeniem przy około 60 nm. Średnica wyizolowanych cząstek dominowała w zakresie 50-80 nm, przy średnim stężeniu cząstek wynoszącym 4.6 x 10⁹ cząstek/mL. Ten zakres wielkości jest zgodny z wcześniej raportowaną charakterystyką egzosomów, co dodatkowo potwierdza prawidłowość protokołu izolacji.
Analiza Western blot
Aby potwierdzić obecność markerów egzosomalnych, przeprowadzono analizę Western blot. W próbkach Spleen-Exo wykryto markery egzosomalne TSG101 i CD9, natomiast nie wykryto białka GM130, będącego białkiem macierzy aparatu Golgiego używanym jako kontrola negatywna (Rycina 4C). Dla porównania, białka tych markerów były wykazane w tkankach śledziony myszy (Spleen-T). Wskazuje to na wysoką czystość wyizolowanych egzosomów, gdyż były one wolne od zanieczyszczeń komórkowych.

Rycina 1: Przygotowanie materiałów. (A) W komorze z laminarnym przepływem powietrza umieszczono probówki do wirowania o pojemności 50 mL, szalki Petriego, lód oraz narzędzia chirurgiczne. (B) Sterylne sitko do oddzielania komórek (70 µm). (C) Sterylne narzędzia chirurgiczne. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 2: Procedura izolacji egzosomów ze śledziony (Spleen-Exo). Przygotowanie tkanki śledziony i pokrojenie jej na małe kawałki w schłodzonym PBS, a następnie trawienie kolagenazą typu I i wirowanie zgodnie z opisem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 3: Reprezentatywne obrazy izolacji Spleen-Exo. (A) Małe bloki śledziony przygotowane do następnego etapu trawienia. (B) Bloki tkanki śledziony z buforem do trawienia. (C) Osady po wirowaniu przy 500 x g. (D) Osady po wirowaniu przy 3,000 x g. (E) Osady po wirowaniu przy 10,000 x g. (F) Osady po wirowaniu przy 120,000 x g. (G) Osady egzosomów po wirowaniu przy 120,000 x g. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
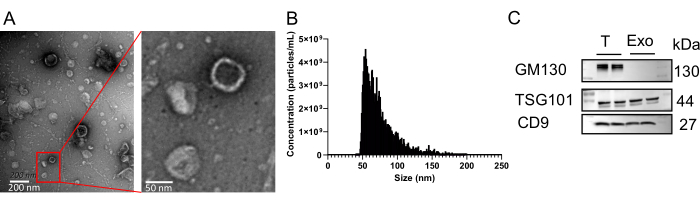
Rysunek 4: Identyfikacja Spleen-Exo. (A) Wyniki TEM pokazujące wyizolowane cząsteczki jako okrągłe lub owalne pęcherzyki błonowe o morfologii w kształcie filiżanki. Paski skali = odpowiednio 200 nm i 50 nm. (B) Analiza rozkładu wielkości za pomocą Flow Nano Analyzer wykazała, że średnica Spleen-Exo mieści się głównie w zakresie od 50 nm do 80 nm, przy średnim stężeniu cząsteczek 4,6 × 10⁹ cząsteczek/mL. (C) Analiza Western blot wykazująca ekspresję markerowych białek specyficznych dla egzosomów (TSG101 i CD9) w Spleen-Exo, przy braku ekspresji GM130. Markery te były wykrywalne w próbkach białek wyekstrahowanych ze śledzion świnek morskich (grupa Spleen-T). Przedstawiono reprezentatywne obrazy Western blot (n = 6 tkanek). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Ostatnie badania wykazały, że egzosomy pochodzące ze śledziony (Spleen-Exo) odgrywają kluczową rolę w leczeniu raka żołądka12. Aby dokładniej wyjaśnić funkcje Spleen-Exo, konieczne jest ustalenie powtarzalnej i optymalnej metody ich ekstrakcji z tkanki śledziony. Chociaż istnieją protokoły izolowania egzosomów z raka mózgu i wątroby13,14, metody dla innych tkanek pozostają słabo rozwinięte i wymagają dalszej walidacji. W tym badaniu przedstawiliśmy praktyczną metodę izolowania Exo z tkanki śledziony.
W ciągu ostatnich lat do ekstrakcji egzo w badaniach naukowych i zastosowaniach stosowano różne metody, w tym ultrawirowanie, wirowanie w gradiencie gęstości, immunoadsorpcję kulek magnetycznych, ultrafiltrację i wytrącanie polimerów15. Ultrawirowanie pozostaje złotym standardem w ekstrakcji egzo z różnych źródeł. Wcześniejsze badania koncentrowały się na rozbijaniu struktur tkankowych w celu uzyskania wyższych stężeń Exo, który składa się z wewnątrzkomórkowych i zewnątrzkomórkowych źródeł Exo16. Kolagenaza minimalizuje wpływ na integralność błony komórkowej, zapewniając czystość Ti-Exo3. Kolagenaza była stosowana do ekstrakcji pęcherzyków zewnątrzkomórkowych z ludzkich przerzutowych czerniaków, tkanki tłuszczowej, raka jelita grubego i raka wątroby 5,10,13,17. Jednak stężenie i czas trawienia kolagenazy różnią się w zależności od tkanki.
Ustaliliśmy specjalny protokół izolowania Spleen-Exo przy użyciu kolagenazy typu I do trawienia, a następnie filtracji przez różnicowe ultrawirowanie, aby uzyskać wysokiej jakości Spleen-Exo. Ultrawirowanie może skutecznie usunąć resztki komórek, duże pęcherzyki, szczątki komórkowe i ciała apoptotyczne z próbek16. Crescitelli i in. zastosowali kolagenazę D i ultrawirowanie gradientowe w celu wyizolowania małych pęcherzyków zewnątrzkomórkowych o średniej wielkości 75 nmśrednicy5. W porównaniu z ich protokołem, w naszym protokole wykorzystano kolagenazę typu I i dodatkowy etap ultrawirowania przy 120 000 x g, aby uzyskać optymalną czystość egzosomów. W przeciwieństwie do poprzednich doniesień wykorzystujących homogenizację tkanek w celu uzyskania zawiesiny tkankowej14,18, nasze podejście zachowuje integralność błony komórkowej w tkankach. Ponadto Vella i in. zastosowali wirowanie w gradionym spadku gęstości (potrójny gradient sacharozy) w celu wygenerowania trzech grup cząstek, co wymagało dodatkowego czasu na operację10. W wyniku tego podejścia powstały duże pęcherzyki o wielkości ponad 200 nm, niejednorodna populacja pęcherzyków o rozmiarach od 50 nm do 200 nm oraz małe pęcherzyki o wielkości około 20 nm. Protokół opisany w tym protokole badania obejmuje szereg etapów ultrawirowania w celu metodycznego eliminowania resztek komórek, szczątków komórkowych, ciał apoptotycznych i większych pęcherzyków, zwiększając w ten sposób czystość uzyskanego Exo. Kładziemy nacisk na ostrożne obchodzenie się z supernatantem, aby uniknąć naruszenia osadzonych granulek.
Oceniamy morfologię i czystość wyizolowanego Spleen-Exo za pomocą TEM i analizy śledzenia nanocząstek. Oba testy wykazały, że cząstki pochodzące ze śledziony wyizolowane za pomocą tego protokołu wykazywały dwuwarstwę lipidową i pęcherzyki w kształcie miseczki o rozmiarach od 30 nm do 150 nm, które są typowymi cechami egzosomów19. CD9 i TSG101 są markerami egzosomów19, a GM130, białko Golgiego, jest używane jako ujemny marker do identyfikacji egzosomów20. Wyniki wykazały, że Spleen-Exo były dodatnie dla CD9 i TSG101, podczas gdy GM130 nie został wykryty, co potwierdza udaną izolację wysokiej jakości Exo pochodzącego tkankowo ze śledziony.
Aby uzyskać wysokiej jakości Ti-Exo, niezbędny jest wybór odpowiedniego rodzaju enzymu, stężenia i czasu trawienia, a także prawidłowe przechowywanie w tkankach. Nie zaobserwowaliśmy znaczącej różnicy w stężeniach białek między Exo pochodzącym ze świeżych i mrożonych tkanek śledziony (dane nie pokazane), co wskazuje na możliwość przetwarzania dużych ilości zamrożonych tkanek w celu skrócenia przepływu pracy. Izolowanie Ti-Exo wymaga długiego czasu pracy ultrawirówki, co sprawia, że niepraktyczne jest wykonanie całego protokołu w odpowiednim czasie w przypadku stosowania świeżych tkanek w zastosowaniach klinicznych. Dlatego lepszym rozwiązaniem byłoby użycie zamrożonych tkanek do izolacji egzosomów. Rozmrażanie w temperaturze 37 °C nie jest odpowiednie dla zamrożonych tkanek ze względu na niepełną penetrację środków krioprotekcyjnych w tkankach. Doniesiono, że podczas izolacji egzosomów przy użyciu zamrożonych tkanek rozmrażających się na lodzie, wydajność egzosomów nie wykazała znaczenia w zawartości w porównaniu ze świeżymi tkankami21. W związku z tym rozmroziliśmy zamrożone tkanki śledziony na lodzie, aby przeprowadzić izolację egzosomów przy użyciu próbek do przechowywania w temperaturze -80 °C.
Jednak protokół opisany w tym badaniu ma kilka ograniczeń. Obszerne etapy związane z ekstrakcją i identyfikacją są czasochłonne. Biorąc pod uwagę ostateczny cel, jakim jest zastosowanie badań Exo w klinicznym leczeniu chorób, szybsze i bardziej opłacalne metody stają się coraz bardziej krytyczne. Ponadto, chociaż wyniki opierają się na próbkach tkanek myszy, zastosowanie do tkanek ludzkich pozostaje do ustalenia.
Podsumowując, protokół zapewnia metodę ekstrakcji wysoce czystego Exo z tkanki śledziony, odpowiednią do szczegółowej dalszej analizy. Egzo pochodzenia tkankowego dokładniej odzwierciedla mikrośrodowisko, z którego pochodzą, i ma znaczny potencjał w wyjaśnianiu procesów fizjologicznych i patologicznych zachodzących w organizmach żywych. Przyszłe badania mogą dostosować ten protokół do tkanek ludzkich, umożliwiając ekstrakcję klinicznie istotnych egzosomów do celów diagnostycznych i terapeutycznych. Technika ta może być szczególnie przydatna w badaniu roli egzosomów w odpowiedziach immunologicznych, biorąc pod uwagę krytyczną funkcję śledziony w układzie odpornościowym. Co więcej, protokół może zostać zmodyfikowany w celu wyizolowania egzosomów z innych tkanek, co potencjalnie pomoże w opracowaniu biomarkerów specyficznych dla tkanek i terapii celowanych. Pogłębiając naszą wiedzę na temat biologii egzosomów, protokół ten może przyczynić się do postępu w medycynie precyzyjnej i opracowania nowych strategii terapeutycznych.
Oświadczenia
Autorzy oświadczają, że nie mają sprzecznych interesów.
Podziękowania
Ta praca była wspierana przez Narodową Fundację Nauk Przyrodniczych Chin (82370281, 81870222), Fundację Nauk Przyrodniczych Prowincji Guangdong (2022A1515012103) oraz Naukę, Specjalny Fundusz Rozwoju Technologii Competitive Allocation Project of Zhanjiang City (2021A05086) oraz Fundację Startup z Drugiego Szpitala Stowarzyszonego Uniwersytetu Medycznego Guangdong (23H03).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 70 &mikro; m Cell Strainer | Biologix Group Co., Ltd.USA | 15-1070 | |
| Przeciwciało anty CD9 | Cell Signaling Technology, Inc (CST), USA | 983275 | |
| Przeciwciało anty GM130 | Proteintech Group, Inc.China | 66662-1-lg | |
| Przeciwciało anty TSG101 | Abcam Plc, Wielka Brytania | 125011 | |
| Naczynie do hodowli komórkowych | Wuxi NEST Biotechnology Co., Ltd, Chiny | 704001 | |
| Probówka wirówkowa | Wuxi NEST Biotechnology Co., Ltd, Chiny | 788211 | |
| Kolagenaza typu I | Sigma-Aldrich Corp., USA | C2674 | |
| Wytrząsarka | termostatyczna na biurkoShanghai bluepard instruments Co., Ltd., Chiny | THZ-100 | |
| Bufor do elektroforezy | Wuhan Servicebio Technology Co., Ltd., Chiny | G2081-1L | |
| Ulepszony zestaw do oznaczania białek BCA | Shanghai Beyotime Biotechnology Co., Ltd., Chiny | P0010S | |
| NanoAnalyzer przepływu | NanoFCM Inc., Chiny | N30E | |
| Guangzhou Biolight Biotechnology Co., Ltd., Chiny | GelView 6000Plus | ||
| HRP Koza anty-mysie IgG | Proteintech Group, Inc.Chiny | 15014 | |
| HRP Koza anty-królicza | IgG Proteintech Group, Inc.Chiny | 15015 | |
| czytnik mikropłytek | Molecular Devices, USA | CMax Plus | |
| Microscissors | Szanghaj Medyczne Instrumenty (grupa) Co., Ltd.,Chiny | WA1010 | |
| Pęseta mikroskopowa | Szanghaj Medyczne Instrumenty (grupa) Co., Ltd., Chiny | WA3010 | |
| Wirówka Multifuge X1R Pro | Thermo Fisher Scientific, USA | 75009750 | |
| Nożyczki okulistyczne | Szanghaj Medyczne Instrumenty (grupa) Co., Ltd.,Chiny | Y00030 | |
| Pęseta oftalmiczna | Szanghaj Medyczne Instrumenty (Grupa) Co., Ltd., Chiny | JD1060 | |
| Optima XPN-100 Wirówka ultrafiltracyjna | Beckman Coulter, USA | A94469 | |
| sól fizjologiczna buforowana fosforanami (PBS) | Beijing Solarbio Science & Technology Co., Ltd., Chiny | P1003 | |
| Bufor do lizy RIPA (silny, bez inhibitorów) | Shanghai Beyotime Biotechnology Co., Ltd., Chiny | P0013K | |
| Linijka | deli Produkcja Firma, Chiny | ||
| SDS-PAGE Bufor ładowania próbki, 5x | Shanghai Beyotime Biotechnology Co., Ltd., Chiny | P0015 | |
| Pipet transferowy | Biologix Group Co., Ltd.USA | 30-0238A1 | |
| Transmisyjny mikroskop elektronowy | Hitachi, Japonia | H-7650 | |
| Probówka do ultrawirowania | Beckman Coulter, USA | 355618 | |
| Zachodni bufor transferowy | Wuhan Servicebio Technology Co., Ltd., Chiny | G2028-1L |
Bibliografia
- Meldolesi, J. Exosomes and Ectosomes in Intercellular Communication. Curr Biol. 28 (8), R435-R444 (2018).
- Costa-Silva, B., et al. Pancreatic cancer exosomes initiate pre-metastatic niche formation in the liver. Nat Cell Biol. 17 (6), 816-826 (2015).
- Crescitelli, R., Lasser, C., Lotvall, J. Isolation and characterization of extracellular vesicle subpopulations from tissues. Nat Protoc. 16 (3), 1548-1580 (2021).
- de Jong, B., Barros, E. R., Hoenderop, J. G. J., Rigalli, J. P. Recent advances in extracellular vesicles as drug delivery systems and their potential in precision medicine. Pharmaceutics. 12 (11), 1006(2020).
- Crescitelli, R., et al. Subpopulations of extracellular vesicles from human metastatic melanoma tissue identified by quantitative proteomics after optimized isolation. J Extracell Vesicles. 9 (1), 1722433(2020).
- Jensen, C., Teng, Y. Is it time to start transitioning from 2D to 3D cell culture. Front Mol Biosci. 7, 33(2020).
- Leung, L. L., Riaz, M. K., Qu, X., Chan, J., Meehan, K. Profiling of extracellular vesicles in oral cancer, from transcriptomics to proteomics. Semin Cancer Biol. 74, 3-23 (2021).
- Shah, R., Patel, T., Freedman, J. E. Circulating extracellular vesicles in human disease. N Engl J Med. 379 (10), 958-966 (2018).
- Wang, X., et al. An enrichment method for small extracellular vesicles derived from liver cancer tissue. J Vis Exp. (192), e64499(2023).
- Vella, L. J., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Hoshino, A., et al. Extracellular vesicle and particle biomarkers define multiple human cancers. Cell. 182 (4), 1044-1061.e18 (2020).
- Chen, Y., et al. Yiwei decoction promotes apoptosis of gastric cancer cells through spleen-derived exosomes. Front Pharmacol. 14, 1144955(2023).
- Useckaite, Z., et al. Proteomic profiling of paired human liver homogenate and tissue-derived extracellular vesicles. Proteomics. 24 (11), e2300025(2023).
- Hurwitz, S. N., et al. An optimized method for enrichment of whole brain-derived extracellular vesicles reveals insight into neurodegenerative processes in a mouse model of Alzheimer's disease. J Neurosci Methods. 307, 210-220 (2018).
- Lai, J. J., et al. Exosome processing and characterization approaches for research and technology development. Adv Sci (Weinh). 9 (15), e2103222(2022).
- Zhang, Y., et al. Exosome: A review of its classification, isolation techniques, storage, diagnostic and targeted therapy applications. Int J Nanomedicine. 15, 6917-6934 (2020).
- Roh, Y. J., et al. Adipose tissue-derived exosomes alleviate particulate matter-induced inflammatory response and skin barrier damage in atopic dermatitis-like triple-cell model. PLoS One. 19 (1), e0292050(2024).
- Gallart-Palau, X., Serra, A., Sze, S. K. Enrichment of extracellular vesicles from tissues of the central nervous system by PROSPR. Mol Neurodegener. 11 (1), 41(2016).
- Kurian, T. K., Banik, S., Gopal, D., Chakrabarti, S., Mazumder, N. Elucidating methods for isolation and quantification of exosomes: A review. Mol Biotechnol. 63 (4), 249-266 (2021).
- Menu, E., Vanderkerken, K. Exosomes in multiple myeloma: from bench to bedside. Blood. 140 (23), 2429-2442 (2022).
- Shen, S., et al. Effects of lysate/tissue storage at -80 degrees C on subsequently extracted EVs of epithelial ovarian cancer tissue origins. iScience. 26 (4), 106521(2023).
Przedruki i uprawnienia
