Ten protokół szczegółowo opisuje przygotowanie pożywek o ograniczonym poziomie Zn2++, naczyń wzrostowych i kultur nasion do produkcji rybosomów z ograniczoną ilością Zn2+ w prątkach. Ślady Zn2+ prowadzą do wzrostu ograniczającego wzrost Zn2+ i opisujemy cechy morfogenne wykorzystywane jako bioindykatory do weryfikacji ograniczenia Zn2+ in vitro w modelowej bakterii Mycobacterium smegmatis i ludzkim patogenie M. tuberculosis.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Wykorzystanie Mycobacterium smegmatis jako biowskaźnika warunków wzrostu prątków ograniczonych oznaczeniem
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Wiele bakterii buduje alternatywne rybosomy w warunkach ograniczających wzrost Zn2+, zastępując białka rybosomalne wiążące Zn2+ paralogami niezależnymi od Zn2+. Zdefiniowanie systemu do badania tych alternatywnych rybosomów okazało się trudne, ponieważ zanieczyszczenie Zn2+ w laboratorium jest powszechne. Aby rozwiązać ten problem, czynniki chelatujące są czasami dodawane do pożywek wzrostowych, ale takie podejście zagmatwa biologiczną odpowiedź na stopniowe ograniczanie Zn2 + i wiąże się z hibernacją rybosomów. W tym miejscu przedstawiono szczegółowe instrukcje dotyczące przygotowania pożywek i kultur siewnych do ograniczonego wzrostu Zn2+ bez dodawania chelatorów. Zgodnie z tą metodą modelowa bakteria, Mycobacterium smegmatis, ulega morfogenezie, która zależy od alternatywnych rybosomów. Ponieważ morfogeneza jest możliwa do opanowania i zachodzi tylko w warunkach ograniczających Zn2+, M. smegmatis może być stosowany jako bioindykator do weryfikacji biologicznie istotnych warunków wzrostu. Opisano trzy fenotypy bioindykacyjne (gęstość komórek, długość komórek i fluorescencja koenzymu F420), które wskazują na ograniczenie Zn2 + w typie dzikim, a także przedstawiono zmiany w tych bioindykatorach dla mutanta delecji, który nie może budować alternatywnych rybosomów. Ponieważ śladowe zanieczyszczenie Zn2+ jest trudne do kontrolowania dla każdej partii pożywki, a precyzyjna kwantyfikacja Zn2+ w każdym preparacie pożywki jest nadmiernie uciążliwa, śledzenie tego fenotypu bioindykatora jest dostępnym sposobem walidacji przygotowania pożywek wzrostowych z ograniczoną ilością Zn2+. Aby pomóc w określeniu właściwych warunków dla wzrostu ograniczającego wzrost Zn2 + i alternatywnej produkcji rybosomów, zmiany w fenotypach bioindykatorów sprofilowano również pod kątem preparatów z ograniczoną zawartością Zn2 + lub poważnie zubożonych w Zn2 + pożywek o ograniczonej zawartości Zn2 +. Przedstawiono dalsze szczegóły w celu osiągnięcia wzrostu Zn2+ i alternatywnej produkcji rybosomów u M. tuberculosis, wraz z powiązanym fenotypem biowskaźnika. Ogólnie rzecz biorąc, opisane tutaj szczegółowe instrukcje i fenotypy bioindykatorów pomogą ustandaryzować produkcję translacyjnie aktywnych alternatywnych rybosomów w prątkach.
Wprowadzenie
Jon (Zn2+) jest niezbędnym mikroelementem i standardowym składnikiem pożywek mikrobiologicznych. Jednak wiele bakterii wytrzymuje ograniczenie Zn2+ w środowisku, ponieważ warunki ograniczające Zn2 + są szeroko rozpowszechnione; soil1, marine2, a nisze w obrębie host3 są często ograniczone do Zn2+. W związku z tym większość bakterii wyewoluowała mechanizmy przezwyciężające ograniczenie Zn2+ i zachowujące funkcje komórkowe4. Systemy zaangażowane w utrzymanie homeostazy Zn2+ są pod ścisłą kontrolą transkrypcji5 i są zaangażowane w wymiatanie Zn2+ przy użyciu systemów importu Zn2+ o wysokim powinowactwie, mobilizację rezerw komórkowych Zn2+ i zastępowanie niektórych białek wiążących Zn2+ alternatywnymi paralogami niezależnymi od Zn2+6. Przykładem tego ostatniego są paralogi białka rybosomalnego (RPs) niezależnego od Zn2+, które są wspólną cechą regulatorów reagujących na Zn2+ u bakterii4. Te wysoce rozbieżne, niezależne od Zn2+ RP różnią się od ich paralogów wiążących Zn2+ przez zakłócenie wiązania Zn2+ CXXC motif7. Ponad połowa zsekwencjonowanych genomów prokariotycznych zawiera co najmniej jedną parę zduplikowanych RP, gdzie w wielu z nich jeden RP wiąże Zn2+, podczas gdy jego paralog nie8. Podczas gdy notacja C+/C- (wskazująca na obecność/brak bogatego w cysteinę motywu wiążącego Zn2+) jest powszechnie używana w odniesieniu do tych paralogicznych par RP7, RP niezależne od Zn2+ zostały również opisane jako alternatywne (Alt) wersje pierwotnych (Prim), wiążących Zn2+ paralogów RP, ponieważ AltRP służą jako alternatywne RP dla biogenezy rybosomów w Zn2+-ograniczony stan u niektórych bakterii i jest to słowo kluczowe o lepszej wyszukiwalności9,10,11.
Ponieważ ekspresja AltRP jest ściśle regulowana przez Zn2+, logiczne jest założenie, że ekspresja AltRP oferuje funkcjonalną redundancję dla białek rybosomalnych zależnych od Zn2+ w obliczu ograniczenia Zn2+. Rzeczywiście, ta cecha AltRP została zademonstrowana dla modelowej bakterii glebowej Bacillus subtilis, w której wzrost jest ratowany podczas ograniczenia Zn2+ poprzez uwolnienie powierzchni PrimRP L31 i zastąpienie przez AltRP L3112,13. Jednak niektóre AltRP są paralogiczne do rdzeniowych PrimRP, np. S14, co oznacza, że ich włączenie jest wymagane podczas biogenezy rybosomów12,13. Odbudowa rybosomu za pomocą AltRP jest zaangażowanym, energochłonnym programem. Podczas gdy te rdzeniowe AltRP mogą służyć do uwalniania Zn2+ z rybosomu, możliwe jest również, że niektóre AltRP wyewoluowały dodatkową funkcję w środowisku ograniczonym przez Zn2+. Potwierdza to obserwacja, że AltRP różnią się od swoich paralogicznych PrimRP; homologia sekwencji genów AltRP jest często wyższa wśród homologów różnych gatunków niż w przypadku sekwencji genu PrimRP wiążącej Zn2+ w obrębie tego samego gatunku7,10. Ponieważ geny kodujące wysoce rozbieżne AltRP znajdują się pod kontrolą transkrypcyjną zależną odZn 2+, są one usuwane z selektywnego nacisku wywieranego na ściśle regulowane i wysoce konserwatywne superoperony rybosomalne14. Rozłączona presja selekcyjna na informację genetyczną kodującą maszynerię rybosomalną i AltRP naraża te RP na inne trajektorie ewolucyjne niż homologiczne PrimRP i może pozwolić na specyficzną dla linii ewolucję tego samego AltRP u różnych bakterii10,15. Powszechne istnienie AltRP w bakteriach i rozłączna regulacja genetyczna tych unikalnych RP rodzi interesujące pytanie, czy włączenie AltRP do rybosomów bakteryjnych nadaje specjalną właściwość rybosomom zawierającym AltRP (rybosomom Alt).
Prątki to idealna grupa bakterii do badania mechanistycznych właściwości alt-rybosomów. Po pierwsze, prątki posiadają wysoce konserwatywny operon altRP zawierający cztery geny kodujące AltRP: S14-2, S18-2, L28-2 i L33-28,9. Mykobakteryjne AltRP znacznie różnią się od ich paralogów PrimRP; we wszystkich czterech parach PrimRP/AltRP dany gen AltRP jest bardziej podobny u wszystkich gatunków prątków niż do genu PrimRP u tego samego gatunku10. Specyficzna dla linii ewolucja AltRP jest również widoczna w obrębie prątków, o czym świadczą AltRP S18-2 i L28-2 w Mycobacterium tuberculosis i M. bovis, które zawierają unikalne sekwencje na C-końcu, które nie są obecne u innych prątków10. Po drugie, ta grupa wysoce spokrewnionych bakterii zawiera niepatogennych i chorobotwórczych członków, którzy żyją w różnych środowiskach, od gleby (np. M. smegmatis) po niezliczonych żywicieli: ludzi (np. M. tuberculosis), bydła (np. M. bovis), wodnych (np. M. marinum) i ptaków (np. M. avium), żeby wymienić tylko kilka. Wysoce konserwatywny charakter operonu altRP u prątków, specyficzna dla linii ewolucja określonych genów AltRP oraz bardzo różne środowiska, w których żyją członkowie tej grupy, stanowią wyjątkową okazję do przeanalizowania konserwatywnej i specyficznej dla linii ewolucji funkcji AltRP i mechanistycznych właściwości rybosomów Alt. Pomimo obfitości AltRP w genomach prokariotycznych, rola AltRP i rybosomów Alt została zbadana tylko u kilku bakterii9,10,11,12,13,16,17,18,19. Ustanowienie ustandaryzowanego systemu z określonymi wskaźnikami w celu walidacji warunków wzrostu ograniczających Zn2+ w prątkach poprawiłoby wyniki eksperymentalne i pogłębiłoby zrozumienie rybosomów Alt w dziedzinie badań nad rybosomami.
Zn2+ jest mikroelementem; dlatego ślady zanieczyszczenia Zn2+ w chemikaliach i wodzie przyczyniają się do biodostępności Zn2+, nawet jeśli są pominięte w preparacie pożywki. Śladowe ilości Zn2+ obecne w wodzie lub chemikaliach mogą się drastycznie różnić w zależności od laboratorium, wpływając w ten sposób na wynik wzrostu ograniczającego Zn2+. Empiryczne ilościowe oznaczanie [Zn2+] w każdym niezależnym przygotowaniu pożywki jest nadmiernie uciążliwe dla większości laboratoriów przeprowadzających rutynowe testy wzrostu, ale mechanizm eliminujący możliwość zanieczyszczenia Zn2+ w pożywkach wzrostowych byłby sam w sobie cenny. W tym celu przedstawiono szczegółową metodę przygotowania chemicznie zdefiniowanej pożywki o ograniczonej zawartości Zn2+ (ZLM), naczyń wzrostowych i kultur nasion do ograniczania wzrostu Zn2+ i produkcji rybosomów Alt u M. smegmatis i M. tuberculosis. Kluczowe cechy morfogenne (gęstość komórek mierzona za pomocą OD600, długość komórki i fluorescencja koenzymu F420) po wzroście w ZLM są wykorzystywane do sprawdzenia, czy osiągnięto ograniczenie Zn2+. Koenzym F420 jest kofaktorem deazaflawiny, który odgrywa ważną rolę w katabolizmie i obronie przed stresem oksydacyjnym w metanogenach i prątkach20,21. Co ważne, prątki ulegają autofluorescencji po wzbudzeniu przy długości fali 420 nm ze względu na obfitość tego kofaktora22. Powiązanie molekularne między [Zn2+] a fluorescencją F420 pozostaje nierozwiązane, ale podążanie za fluorescencją F420 w kulturach jest wykonalnym i niezawodnym bioindykatorem.
U M. smegmatis, fenotypy bioindykacyjne występują u bakterii typu dzikiego, ale mutant delecji pozbawiony operonu altRP nie przechodzi tego samego programu morfogenicznego i może być używany jako bioindykator różnicowy10. Chociaż M. tuberculosis nie podlega temu samemu programowi morfogennemu co M. smegmatis podczas ograniczenia Zn2+, M. tuberculosis ma silną i globalną odpowiedź na ZnOgraniczenie 2+ i kluczowy fenotyp bioindykatora zgodny z tą metodą23. W ten sposób zdefiniowany tutaj system umożliwia wytwarzanie rybosomów pierwotnych i alt-rybosomów w tych samych warunkach wzrostu (tj. ograniczenie Zn2+), ułatwiając mechanistyczną analizę funkcji alt-rybosomów i ich roli w kształtowaniu fizjologii bakterii. Ta metoda wzrostu została wykorzystana do określenia struktury aktywnych rybosomów Alt i wykazania ich aktywności translacyjnej u M. smegmatis24. Co więcej, potwierdzając, że ta metoda wzrostu i fenotyp bioindykacyjny podkreślają biologiczną funkcjonalność AltRP podczas ograniczenia Zn2 +, ekspresja AltRP jest wymagana do morfogenezy zależnej od Zn2 + i ma głęboki wpływ na transkryptom i proteom M. ograniczony do Zn2 + s10,25. Ta sama metoda, z niewielkimi modyfikacjami ilości inokulum i czasu inkubacji, jest używana do generowania kultur M. tuberculosis2+ class="xref">9,23. W tym miejscu szczegółowo opisano protokoły i fenotypy bioindykacyjne umożliwiające osiągnięcie wzrostu ograniczającego wzrost Zn2+ zarówno u M. smegmatis, jak i M. tuberculosis, ze szczególnym uwzględnieniem M. smegmatis, ponieważ bakteria ta jest bardziej wrażliwa na zanieczyszczenie Zn2+ w pożywce i jest szerzej dostępna niż wolno rosnący patogen.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Szczepy wykorzystane w niniejszym badaniu to dziki szczep M. smegmatis mc2 155 (dar od dr. Roberta Hussona z Boston Children's Hospital) oraz szczep z delecją ΔaltRP (pochodzący z laboratorium Prisic10). Mogą one być hodowane w laboratorium poziomu bezpieczeństwa biologicznego 1 (BSL1) lub BSL2, w zależności od lokalnych przepisów dotyczących bezpieczeństwa biologicznego i dostępnych zasobów. W niniejszym dokumencie protokół został opracowany dla laboratorium BSL2. W przypadku prowadzenia prac w laboratorium BSL1, technikę aseptyczną z użyciem palnika Bunsena można zastosować zamiast komory z laminarnym przepływem powietrza. Ponadto badacze chcący uwzględnić inne szczepy lub warunki będą musieli obliczyć objętość potrzebnej pożywki w zależności od całkowitej liczby analizowanych kultur. Prace z patogennym szczepem M. tuberculosis H37Rv (Mtb-H37Rv; dar od dr. Roberta Hussona z Boston Children's Hospital) należy prowadzić w laboratorium BSL3, używając maski ochronnej (np. PAPR lub N95). Nie należy ponownie używać kolb podczas hodowli wysokowirulentnych prątków, takich jak Mtb-H37Rv. Auksotroficzny szczep M. tuberculosis mc26206 (Mtb-Aux) jest atenuowany i może być hodowany w laboratorium BSL2 (dar od dr. Williama R. Jacobsa Jr. z Albert Einstein College of Medicine).
1. Przygotowanie kolb
UWAGA: Warunki wzrostu z ograniczeniem Zn2+ uzyskuje się w wielorazowych (autoklawowalnych) poliwęglanowych kolbach Erlenmeyera o pojemności 250 mL. Do hodowli w warunkach ograniczenia Zn2+ nie należy używać kolb szklanych; w celu porównania wyników z przedstawionymi w niniejszym protokole można zbadać rygorystyczne procedury mycia kwasem19. Nowe kolby są wystarczające do uzyskania warunków wzrostu z ograniczeniem Zn2+, jednak w jednym eksperymencie nigdy nie należy mieszać kolb nowych ze starymi. Należy utylizować kolby wykazujące oznaki osłabienia (zazwyczaj na szwach) lub takie, które były używane więcej niż około 20 razy. Należy regularnie sprawdzać filtry w zakrętkach pod kątem degradacji i utylizować je w przypadku uszkodzenia. Jeśli występują, należy usunąć nakrętki wkręcane na górę zakrętek, które zakrywają filtry. Niniejsza metoda opisuje środki ostrożności podjęte w celu oczyszczenia kolb i przygotowania ich do ponownego użycia.
- Trwale oznakuj kolby, aby ten sam zestaw był używany wyłącznie do warunków ograniczonych w Zn2+. Oznakuj inny zestaw kolb do wzrostu w warunkach nasyconych Zn2+. Użycie różnych kolorów przy oznakowaniu jest pomocne w zapobieganiu pomyleniu kolb.
- Nigdy nie dopuszczaj do wyschnięcia pozostałości kultury w kolbach. Dolewaj wodę do kolb natychmiast po odlaniu kultury (np. 100 mL). Jeśli kultura nie jest zbierana po zakończeniu wzrostu, opróżnij kolby, wlewając całą kulturę do pojemnika na odpady ciekłe z końcowym stężeniem wybielacza 10%, po uprzednim zarejestrowaniu fenotypów bioindykatorów zgodnie z opisem w niniejszym protokole.
- Autoklawuj kolby w cyklu dla cieczy (co najmniej 121 °C przy 15 psi) przez 20 min z wodą wewnątrz i zamkniętymi pokrywkami.
- Po autoklawowaniu umyj kolby niejonowym, niskopieniącym detergentem i dokładnie wyszoruj miękką szczotką. Wyznacz osobną szczotkę do mycia wyłącznie kolb używanych do wzrostu w warunkach ograniczonych w Zn2+. Upewnij się, że kolby są czyste i nie zawierają żadnych pozostałości ani zanieczyszczeń. Nie szoruj i nie używaj mydła na nakrętkach, płucz je delikatnie wodą dejonizowaną.
- Dokładnie wypłucz kolby wodą z kranu, a następnie trzykrotnie wodą dejonizowaną (typu II lub III) i co najmniej raz wodą ultrapurystyczną (typu I) (18.2 MΩ-cm przy 25 °C i ≤ 5 ppb całkowitego węgla organicznego).
- Ustaw kolby pionowo do góry dnem, aby woda nie mogła gromadzić się na dnie. Nie używaj standardowych laboratoryjnych suszarek ściennych, ponieważ trzymają one kolby pod kątem, co pozwala na gromadzenie się niewielkiej ilości wody. Wystarczą standardowe stojaki do naczyń. Pozostaw kolby i pokrywki do całkowitego wyschnięcia.
- Po wyschnięciu zakręć nakrętki na kolbach i przykryj je folią aluminiową. Przyklej kawałek taśmy wskaźnika autoklawowania do folii, aby zasygnalizować stan sterylności oraz chronić filtry w nakrętkach przed kurzem.
- Autoklawuj oczyszczone kolby (co najmniej 121 °C przy 15 psi) przez 20 min, a następnie zastosuj próżnię po cyklu w celu osuszenia ładunku (jeśli autoklaw jest wyposażony w tę funkcję). Przechowuj kolby w stanie suchym i chronione przed kurzem.
2. Przygotowanie pożywki z ograniczoną zawartością Zn2+ (ZLM)
UWAGA: Do przygotowywania pożywek należy używać wyłącznie plastikowych zlewków, cylindrów miarowych i innych akcesoriów z tworzyw sztucznych. Wyznaczyć zestaw sprzętu laboratoryjnego służącego wyłącznie do przygotowywania pożywek z ograniczoną zawartością Zn2+. Wszystkie naczynia należy dokładnie wypłukać wodą ultrapure (typu I) przed i po użyciu. Należy stosować odczynniki o wysokiej czystości, kupowane w miarę możliwości od tych samych dostawców.
- Przygotować pożywkę Sautona z ograniczoną zawartością Zn2+ bez dodatku soli Zn2+26, mieszając następujące odczynniki z ok. 950 mL wody ultrapurej w plastikowym zlewce o pojemności 1 L z mieszadłem magnetycznym:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g kwasu cytrynowego, bezwodnego (0.2%; MW: 192.12)
4 g L-asparaginy, 99% (0.4%; MW: 132.12)
60 mL glicerolu (6%)
189 µL 1 M cytrynianu żelaza(III) i amonu (0.005%; MW: 265)- Dodać glicerol za pomocą jednorazowej, plastikowej pipety serologicznej 50 mL. Dokładnie wypłukać pipetę, aspirując i wydmuchując ciecz ok. 10 razy w pożywce, aż do całkowitego usunięcia pozostałości glicerolu.
UWAGA: Glicerol jest bardzo lepki i trudny do odmierzenia. Alternatywnie można go nalać do cylindra miarowego i kilkukrotnie wypłukać ok. 30 mL wody ultrapurej, którą następnie dodaje się do pożywki. W przypadku zastosowania tej metody należy zacząć od mniejszej objętości (~600 mL), aby objętość końcowa po dodaniu glicerolu i wód wypłukujących z cylindra nie przekroczyła ~950 mL.
- Dodać glicerol za pomocą jednorazowej, plastikowej pipety serologicznej 50 mL. Dokładnie wypłukać pipetę, aspirując i wydmuchując ciecz ok. 10 razy w pożywce, aż do całkowitego usunięcia pozostałości glicerolu.
- Dopełnić objętość pożywki do ok. 950 mL i dobrze wymieszać. L-asparagina rozpuszcza się przez kilka minut; należy poczekać do całkowitego zniknięcia białych płatków przed kontynuacją.
UWAGA: Roztwór cytrynianu żelaza(III) i amonu nadaje pożywce jasną, żółtą barwę. - Przygotować 15 mL świeżego roztworu NaOH (~10% m/v) w wodzie ultrapurej w plastikowym pojemniku (np. w probówce stożkowej 15 mL).
- Przed użyciem dokładnie wypłukać pH-metr wodą ultrapurej i zanurzyć w pożywce tylko elektrodę pH-metru. Pozostawić pH-metr w pożywce przy delikatnym mieszaniu podczas regulacji pH. Za pomocą plastikowej jednorazowej pipety transferowej dodawać świeżo przygotowany NaOH do osiągnięcia końcowego pH 7.4.
UWAGA: Wartość pH początkowego pożywki jest bardzo niska (silnie kwasowa). Do podniesienia pH do zakresu neutralnego wymagana jest duża objętość roztworu NaOH. Na początku dodać 4-6 mL roztworu NaOH; gdy pH osiągnie ok. 6.5, dodawać roztwór NaOH kroplami. Należy uważać, aby nie przekroczyć docelowego pH 7.4. W przypadku przekroczenia tej wartości nie należy próbować korygować pH za pomocą HCl ani innych kwasów – taką pożywkę należy wylać. Dobrą praktyką jest przeznaczenie osobnego pH-metru do przygotowywania ZLM, aby uniknąć zanieczyszczenia elektrody innymi pożywkami i buforami. - Przenieść pożywkę do cylindra miarowego i dopełnić wodą ultrapurej do objętości końcowej 1 L. Sterylizować pożywkę przez filtrację za pomocą jednorazowej kolby filtrującej 0.2 µm.
- Aseptycznie dodać 2.5 mL sterylizowanego przez filtr 20% roztworu Tween-80 (stężenie końcowe 0.05%). Przechowywać w temperaturze 4 °C, w ciemności, przez maksymalnie 6 miesięcy.
3. Wzrost M. smegmatis w warunkach ograniczonej dostępności Zn2+
UWAGA: Ze względu na zmienność między partiami w ilości Zn2+ obecnego w ZLM, niezbędne jest stosowanie tej samej partii pożywki lub wielu partii, które zostały dobrze wymieszane, dla wszystkich kultur w danym eksperymencie. Oprócz pożywki wymaganej do przygotowania kultur, potrzeba około 100 mL dodatkowej objętości do przemywania i normalizacji kultur startowych.
- Wszystkie etapy należy przeprowadzić w komorze z laminarnym przepływem powietrza. Kultury zasiewne należy przygotować na 18 h przed rozpoczęciem eksperymentu wzrostowego. Nie należy używać kultur zasiewnych przerośniętych lub tworzących agregaty. Wystarczy jedna kultura zasiewna na szczep.
- Aseptycznie dodać 5 mL pożywki 7H9-ADC (bulion Middlebrook 7H9 z 0,05% Tween 80 i 10% wzbogacenia ADC [stężenie końcowe: 0,5% albuminy surowicy bydlęcej, 0,2% dekstrozy, 0,085% NaCl i opcjonalnie 0,0003% katalazy]) do probówki bioreaktora o pojemności 50 mL.
- Aseptycznie dodać 10 µL rozmrożonych komórek z zapasu w glicerolu (przygotowanych zgodnie z26) bezpośrednio do pożywki. Zakręcić probówkę pokrywką.
- Umieścić probówki stabilnie w inkubatorze z wytrząsaniem pod kątem około 45°, tak aby podczas wytrząsania ciecz wypełniała probówkę mniej więcej do połowy.
- Inkubować probówki w temperaturze 37 °C przy wytrząsaniu z prędkością 120 rpm przez około 18 h.
- Sprawdzić nocne kultury zasiewne, aby upewnić się, że kultura jest równomiernie mętna i nie tworzy istotnych agregatów. Gęstość optyczna przy 600 nm (OD600) nocnej kultury powinna wynosić idealnie od 0,5 do 0,8.
- Osadzić nocne kultury w probówkach bioreaktora użytych do wzrostu nocnego poprzez wirowanie przy 3,000 x g przez 5 min w temperaturze pokojowej.
- Odlać lub odessać nadsącz i resuspendować w 5 mL ZLM. Powtórzyć etapy wirowania i resuspensji 2x, aby łącznie przeprowadzić trzy przemycia.
- Podczas etapów wirowania wypełnić kuwetę aż do przelania 70% etanolem w celu sterylizacji. Pozostawić wypełnioną kuwetę w komorze z laminarnym przepływem powietrza na 10 min, a następnie przemyć dokładnie 3x za pomocą pipety pożywką ZLM.
UWAGA: Proces normalizacji komórek wymaga czasu i praktyki, aby osiągnąć wysoką wydajność. Normalizacja komórek bezpośrednio w kuwecie wysterylizowanej etanolem znacznie przyspiesza ten proces. - Przygotować odpowiednią liczbę kuwet dla liczby szczepów uwzględnionych w badaniu, np. niniejszy protokół wymaga dwóch wysterylizowanych kuwet, jednej dla typu dzikiego i jednej dla mutanta ΔaltRP.
- Podczas etapów wirowania wypełnić kuwetę aż do przelania 70% etanolem w celu sterylizacji. Pozostawić wypełnioną kuwetę w komorze z laminarnym przepływem powietrza na 10 min, a następnie przemyć dokładnie 3x za pomocą pipety pożywką ZLM.
- Po trzech przemyciach pożywką ZLM resuspendować każdy osad komórkowy w 2 mL ZLM.
- Wyzerować spektrofotometr, używając 600 µL ZLM w kuwecie. Kuweta do zerowania nie musi być sterylizowana. Odstawić kuwetę i używać jej do zerowania spektrofotometru przed normalizacją każdej kultury (tj. szczepu).
- Pracując z jednym szczepem na raz, przenieść 600 µL przemytych komórek z etapu 3.5 do wysterylizowanej kuwety przygotowanej w etapie 3.4.1 i zmierzyć początkową wartość OD600. Jeśli OD600 jest powyżej 1, przejść do etapu 3.8. Jeśli OD600 jest poniżej 1, postępować zgodnie z podkrokami 3.7.1 i 3.7.2.
- Jeśli odczyt początkowej wartości OD600 z etapu 3.7 jest poniżej 1, zebrać całą kulturę z kuwety, dodać ją z powrotem do pozostałych przemytych komórek zasiewnych w probówce do wirowania i ponownie odwirować kulturę tak jak w etapie 3.3. Resuspendować kulturę w mniejszej objętości niż użyta w etapie 3.5 (np. 1 mL), aby uzyskać wyższą gęstość komórek, i powtórzyć etap 3.7.
- Jeśli po etapie 3.7.1 wartość OD600 nadal jest poniżej 1, kultura nie jest wystarczająco gęsta; należy rozpocząć procedurę ponownie od etapu 3.1. Inkubować kultury dłużej lub zwiększyć ilość inokulum przy przygotowywaniu kultur nocnych tak, aby końcowa gęstość kultury nocnej wynosiła około OD600 = 0,5-0,8, jak opisano w etapie 3.2.
- Obliczyć objętość ZLM, którą należy dodać do 600 µL przemytych komórek w kuwecie, aby uzyskać OD600 równą 1, korzystając z poniższego równania i wartości OD600 zmierzonej w etapie 3.7:
Objętość ZLM (μL) = (początkowa OD600 - 1) × 600 μL - Dodać objętość ZLM obliczoną w etapie 3.8 do kuwety przygotowanej w etapie 3.7, wymieszać dokładnie pipetując 5-10 razy i ponownie zmierzyć OD600.
- Dostosować OD600 tak, aby mieściła się w granicach 5% wartości OD600 = 1, postępując zgodnie z poniższymi podkrokami. Należy użyć dwóch pipet, z których jedna (rozmiar P1000) jest przeznaczona wyłącznie do mieszania kultury, aby uniknąć zużywania zbyt wielu końcówek przy każdej korekcie.
- Jeśli OD600 jest powyżej 1, dodawać ZLM kroplami (~50 µL naraz), mieszać dokładnie pipetując w górę i w dół 5-10 razy i mierzyć OD600. Powtarzać ten proces w razie potrzeby, aż kultura znajdzie się w granicach 5% wartości OD600 = 1.
- Jeśli podczas normalizacji OD600 spadnie poniżej 1, dodać więcej przemytych komórek (~20 µL na początek) z etapu 3.5, wymieszać dokładnie pipetując w górę i w dół 5-10 razy i zmierzyć OD600. Powtarzać ten proces w razie potrzeby (lub dodać więcej ZLM, jak opisano w etapie 3.10.1, jeśli OD600 przekroczy 1), aż kultura znajdzie się w granicach 5% wartości OD600 = 1.
- Upewnić się, że objętość w kuwecie nie przekracza ~1,5 mL podczas normalizacji komórek, aby uniknąć rozlania kultury w spektrofotometrze. W razie potrzeby usunąć część kultury z kuwety podczas rozcieńczania. Należy również upewnić się, że objętość kultury w kuwecie jest powyżej minimum wymaganego do dokładnego pomiaru OD600 przez spektrofotometr. Większość spektrofotometrów wymaga co najmniej 600 µL.
- Powtórzyć etapy normalizacji komórek (3.6 - 3.10) dla wszystkich szczepów i warunków uwzględnionych w badaniu.
- Przygotować całkowitą liczbę kolb wymaganą do eksperymentu, aseptycznie dodając 50 mL ZLM do plastikowych kolb Erlenmeyera o pojemności 250 mL przygotowanych zgodnie z opisem w etapie 1.
- Zaszczepić kolby, aseptycznie dodając 50 µL znormalizowanej kultury o OD600 = 1 bezpośrednio z kuwety, aby uzyskać końcową wartość OD600 wynoszącą 0,001 (rozcieńczenie znormalizowanego inokulum 1:1000).
- Dla kultur hodowanych bez ograniczenia Zn2+ (tj. w pożywkach z odpowiednią zawartością Zn2+, ZRM), dodać 30 µL sterylnego 10 mM ZnSO4 (świeżo przygotowanego z 1M sterylnego roztworu zapasowego) bezpośrednio do kolb z kulturą do stężenia końcowego 6 µM ZnSO4.
- Inkubować kolby w temperaturze 37 °C przy wytrząsaniu z prędkością 100 rpm przez 3 dni aż do osiągnięcia fazy stacjonarnej (Dzień 0 to dzień szczepienia).
- Każdego dnia wzrostu użyć czytnika mikropłytek z monochromatorem lub filtrami, aby zmierzyć następujące parametry wzrostu, używając 200 µL kultury w 96-dołkowej mikropłytce z płaskim dnem. Odczyty z płytki należy wykonać natychmiast po rozdzieleniu komórek, aby nie zdążyły one osiąść.
UWAGA: Podgrzewanie wstępne czytnika płytek nie jest konieczne, ponieważ bezwzględne wartości fluorescencji nie są tak informacyjne jak stosunki i skany fluorescencji, a mała mierzona objętość szybko wyrównuje temperaturę do temperatury pokojowej podczas przygotowania płytki. Fluorescencję można mierzyć z góry lub z dołu płytki, jeśli kondensacja na pokrywce jest problematyczna, choć wartości intensywności fluorescencji są ogólnie niższe przy odczycie z dołu.- Gęstość komórek (tj. OD600): Aby zgłosić wartość OD600 uzyskaną z czytnika mikropłytek, należy wygenerować krzywą wzorcową w celu przeliczenia odczytu z drogi optycznej mikropłytki przy określonej objętości (np. 200 µL) na standardową drogę optyczną 1 cm.
- Fluorescencja kofaktora F420 (ex 420 nm/em 475 nm): W przypadku czytników mikropłytek opartych na filtrach należy użyć najbliższego zestawu filtrów (np. ex 430 nm/em 488 nm) i czarnych mikropłytek 96-dołkowych.
- Zmierzyć fluorescencję tła przy 375 nm (ex 375 nm/em 475 nm)
- W przypadku użycia monochromatora wygenerować skan intensywności fluorescencji od ex 230 - 440 nm w krokach co 5 nm i stałej emisji przy 475 nm.
- W przypadku użycia monochromatora obliczyć procent intensywności fluorescencji przy 375 nm w stosunku do 420 nm, korzystając z równania:
F375/420 (%) = (F375/F420) x 100
4. Rejestracja i pomiar długości komórek
- W 3. dniu przeprowadź wizualizację i pomiar długości komórek. Oczyść szkiełko przedmiotowe i nakrywkowe za pomocą niepozostawiającej włókien chusteczki. Nanieś pipetą kroplę 10 µL hodowli na szkiełko i nałóż nakrywkę bezpośrednio na kulturę. Delikatnie dociśnij nakrywkę, aby hodowla rozprowadziła się i niemal całkowicie wypełniła obszar pod nią. Przygotuj preparaty i dokonaj wizualizacji niezwłocznie, aby zapobiec wysychaniu.
UWAGA: Jeśli hodowla nie rozprowadza się łatwo, zanieczyszczenia uniemożliwiają dobry kontakt, a ruch wody utrudni uchwycenie komórek w ostrości. Przygotuj nowe szkiełko. - Używając mikroskopu złożonego (lub DIC, patrz poniżej) z obiektywem imersyjnym 100x i okularami 10x (całkowite powiększenie 1000x) oraz załączoną kamerą, dokonaj wizualizacji przygotowanego preparatu.
UWAGA: Komórki są znacznie łatwiejsze do zaobserwowania dzięki kontrastowi uzyskiwanemu w mikroskopii interferencyjnej z kontrastem różnicowym (DIC)10. Jeśli to możliwe, użyj tego typu mikroskopu do uzyskania wysokiej jakości obrazów. Do rutynowej analizy i weryfikacji stanu wzrostu ograniczonego przez Zn2+ wystarczający jest standardowy mikroskop świetlny złożony. - Wykonaj zdjęcia obszarów szkiełka z wieloma komórkami, które są w ostrości, znajdują się w jednej płaszczyźnie (tj. widoczna jest cała długość komórki) i nie poruszają się. Zrób wystarczającą liczbę zdjęć w różnych obszarach szkiełka (lub na wielu szkiełkach z tej samej hodowli), aby zmierzyć co najmniej 100 komórek.
- Używając tego samego mikroskopu i obiektywu, wykonaj obraz szkiełka kalibracyjnego.
- W programie Fiji27 użyj narzędzia linii prostej, aby narysować linię wzdłuż długości szkiełka kalibracyjnego. Wybierz Analyze > Set scale i wpisz znaną odległość oraz jednostkę paska skali. Wybierz Global, aby zastosować skalę do wszystkich przyszłych obrazów i pomiarów.
- Otwórz zdjęcie mikroskopowe. Użyj narzędzia linii prostej, aby narysować linię wzdłuż długości komórki, a następnie naciśnij klawisz M na klawiaturze, aby zmierzyć komórkę. Zmierz co najmniej 100 komórek z każdej hodowli.
- Skopiuj dane dotyczące długości wygenerowane w oknie pop-up w programie Fiji do arkusza kalkulacyjnego lub zapisz je jako plik wartości rozdzielonych przecinkami (.csv) do analizy statystycznej.
5. Modyfikacje w celu hodowli M. tuberculosis (Mtb) w warunkach ograniczonej dostępności Zn2+
UWAGA: W przeciwieństwie do szczepu Mtb-H37Rv, Mtb-Aux nie potrafi syntetyzować L-leucyny i D-pantotenianu, dlatego suplementy te są dodawane do pożywek28. Suplementacja w przypadku Mtb-Aux nie wpływa na ograniczenie Zn2+, a oba szczepy wykazują podobne fenotypy w ZLM23. Niniejszy protokół został zmodyfikowany na podstawie wcześniej opublikowanego protokołu23; główną różnicą jest to, że kultury są hodowane przez 8 dni zamiast 10 dni, aby zmniejszyć tendencję do agregacji i umożliwić wzbogacenie w pojedyncze komórki, co jest niezbędne w dalszych zastosowaniach, takich jak infekcje makrofagów. W kwestii innych niewielkich różnic należy odnieść się do oryginalnej publikacji23. Metoda inokulacji różni się od metody stosowanej dla M. smegmatis ze względu na znacznie wyższą dawkę inokulum wymaganą do zainicjowania wzrostu M. tuberculosis.
- W przypadku Mtb-Aux należy zapewnić dodatkową suplementację 50 µg/mL L-leucine oraz 48 µg/mL D-pantothenate we wszystkich pożywkach. Roztwory stokowe 1000x o stężeniu 50 mg/mL L-leucine i 48 mg/mL calcium D-pantothenate należy wysterylizować przez filtr 0,2 µm i dodać do wysterylizowanych pożywek.
- Aseptycznie przenieść 1 mL rozmrożonych komórek z zamrażarki (stoki glicerolowe) do 4 mL pożywki 7H9-ADC w 14 mL probówce z okrągłym dnem i zakrętką typu snap-cap (dla Mtb-Aux) lub do 50 mL probówki do bioreaktora (dla Mtb-H37Rv).
- Inkubować w 37 °C bez wytrząsania, aż kultura osiągnie OD600 ~1. Zajmie to około 1 tygodnia. Napowietrzać kulturę raz dziennie, otwierając probówkę w komorze z laminarnym przepływem powietrza i pipetując kilka razy w celu wymieszania kultury.
- Zaszczepić 1 mL kultury stacjonarnej do 50 mL pożywki 7H9-ADC w 250 mL wentylowanej kolbie plastikowej. Jedna kultura 50 mL w 7H9-ADC jest wystarczająca do wykonania powtórzeń biologicznych dla danego szczepu i warunków (np. szczepu typu dzikiego w ZLM i ZRM). Należy zadbać o uniknięcie dużych grudek (tj. dużych agregatów komórek), pozostawiając kulturę na 5–10 min przed zaszczepieniem, aby grudki osiadły na dnie probówki, a następnie pobierając kulturę z górnej części.
UWAGA: Zaszczepienie dużymi grudkami prowadzi do powstania kultur grudkowatych, co wpływa na normalizację kultury i powtarzalność wyników. - Inkubować w 37 °C przy wytrząsaniu z prędkością 100 rpm, aż kultura osiągnie OD600 0,5–0,8 (środkowa faza logarytmiczna). Zajmie to 3–5 dni.
- Przenieść kulturę do 50 mL probówki stożkowej it społonić komórki przez wirowanie przy 3 000 x g przez 10 min w temperaturze pokojowej. Usunąć nadsącz, odsysając 40 mL pipetą serologiczną, a pozostałą część nadsączu mikropipetą P1000.
UWAGA: Krok ten jest krytyczny dla zmniejszenia przeniesienia Zn2+ z pożywki 7H9-ADC. - Resuspendować osad w 5 mL ZLM i uzupełnić całkowitą objętość kultury w probówce stożkowej do 50 mL za pomocą ZLM.
- Powtórzyć wirowanie przy 3 000 x g przez 10 min w temperaturze pokojowej w celut społoniowania komórek. Usunąć nadsącz. Resuspendować osad komórkowy do końcowej objętości 50 mL zgodnie z opisem w kroku 5.7.
- Zmierzyć OD600 wypłukanych komórek nasion i obliczyć objętość wymaganą do uzyskania początkowej wartości OD600 wynoszącej 0,05 (Mtb-H37Rv) lub 0,08 (Mtb-Aux) w 50 mL, korzystając z poniższego równania:
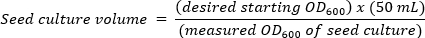
UWAGA: Wzrost Mtb-Aux przy początkowej wartości OD600 0,05 jest niespójny; dlatego w celu zapewnienia powtarzalnego wzrostu stosuje się wyższą wartość OD600 wynoszącą 0,08. - Odmierzyć objętość kultury nasion obliczoną w kroku 5.9 do nowej 50 mL probówki stożkowej i uzupełnić objętość do 50 mL za pomocą ZLM. Przelać wypłukaną i znormalizowaną kulturę z probówki stożkowej do plastikowych kolb Erlenmeyera przygotowanych zgodnie z opisem w kroku 1. Powtórzyć procedurę, używając tej samej probówki stożkowej dla wszystkich powtórzeń biologicznych dla każdego szczepu i warunku.
- W przypadku kultur hodowanych bez ograniczenia Zn2+ (tj. pożywki nasycone Zn2+, ZRM), dodać 30 µL sterylnego 10 mM ZnSO4 bezpośrednio do kolb z kulturą do końcowego stężenia 6 µM ZnSO4.
- Inkubować kolby z kulturą w 37 °C przy wytrząsaniu z prędkością 100 rpm przez 8 dni. Pomiar OD600 oraz fluorescencji F420 przeprowadzać w trakcie wzrostu zgodnie z opisem w kroku 3. Jeśli w ciągu pierwszych kilku dni wzrostu kultury pojawią się grudki (tj. kultura nie wygląda na mętną, a w całej objętości widoczne są grudki), należy taką kulturę utylizować.
UWAGA: Idealnie kultury powinny być w większości planktoniczne (tj. wolne od dużych grudek widocznych gołym okiem) podczas pierwszych kilku dni wzrostu. Kultury Mtb, zwłaszcza w ZLM, stają się progresywnie bardziej grudkowate w trakcie wzrostu; w późnej fazie logarytmicznej spodziewane jest pojawienie się płatków grudek pływających na powierzchni pożywki23.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Fenotypy bioindykacyjneของ M. smegmatis
typ dziki M. smegmatis kultury hodowane w pożywce ZLM, które osiągają Zn2+–ograniczającym wzrost wykazują trzy główne fenotypy bioindykacyjne w porównaniu z komórkami hodowanymi w obecności Zn2+-warunki nasycenia: [1] zmniejszona gęstość optyczna (OD)600, [2] wydłużone komórki oraz [3] obniżoną maksymalną fluorescencję przy 420 nm. Mutant pozbawiony AltRP (ΔaltRP) nie posiada tej samej...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Głównym wkładem w lukę w wiedzy na temat mechanistycznych podstaw alt-rybosomów jest trudność w osiągnięciu warunków ograniczających Zn2+ in vitro. Śladowe zanieczyszczenie Zn2+ w warunkach laboratoryjnych jest powszechne; w związku z tym osiągnięcie powtarzalnych warunków wzrostu z ograniczeniem Zn2+ jest wyzwaniem. Zanieczyszczenie Zn2+ może pochodzić z kilku źródeł, chociaż najbardziej znaczącym i powszechnym źródłem zanieczyszczenia i zmienności jest ultraczysta wo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
To badanie zostało sfinansowane przez National Science Foundation (NSF) CAREER Award 1844854, American Lung Association Innovation Award IA -937538, oraz National Institute of Health (NIH) NIAID R21 AI109293 to S.P. Aktualny adres Allexa D. Burger to Pacific Biosciences Research Center, University of Hawai'i at Mānoa, Honolulu, Hawaje, USA.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Systemy filtracji próżniowej 1000 ml, linia standardowa | VWR | 10040-440 | |
| 125 ml Erlenmeyer Shaker | hodowlane Greiner Bio-One | 679501 | |
| 14 mL, plastikowe, z dwupozycyjnymi nasadkami | VWR | 60818-725 | |
| 250 mL Erlenmeyer Shaker Kolby | Greiner Bio-One | 679502 | |
| 40X-1000X Lab Laboratoryjny związek biologiczny Mikroskop | Omax | M82EZ | |
| 50 ml probówki do reakcji biologicznych, sterylne | VWR | 76211-286 | |
| 50 ml wysokowydajne probówki wirówkowe z nasadkami flagowymi | VWR | 89039-656 | |
| Alcojet Niskopienny detergent w proszku | Alconox | 1404 | |
| Cytrynian amonu (III), brązowy | Thermo Scientific | AAA1119930 | MW: 265 g/mol, dla 1M roztworu dodać 1,325 g do 5 ml ultraczystej wody; przechowywać w chronić przed światłem w temperaturze 4 C |
| Albumina surowicy bydlęcej | Thermo Scientific | J10857-A1 | |
| D-Pantotenian wapnia | Thermo Scientific AC243300050 | ||
| Katalaza | Sigma-Aldrich | C1345-10G | |
| Kwas cytrynowy bezwodny, krystaliczny | Fisher Scientific | BP339-500 | |
| Dekstroza bezwodna | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Bulion | BD Diagnostics | 271310 | |
| DiluPhotometer OD600 do oznaczania gęstości komórek i testów Bradforda | Implen | OD600-10 | |
| GENios FL Czytnik mikropłytek | Tecan | wycofany | |
| Glicerol | Fisher Scientific | G33-4 | |
| Infinite M200 PRO Wielomodowy czytnik mikropłytek | Tecan | LGE140213-20BL | |
| L-Asparagine | Thermo Scientific | AAB2147336 | |
| Kamera CCD L-Leucine | Thermo Scientific | A1231122 | |
| Macrofire SP | Optoelektronika | Do użytku z mikroskopem Olympus | |
| Siarczan magnezu siedmiowodny | VWR | 97062-134 | |
| Milli-Q Direct 8 System oczyszczania wody | Millipore | C85358 | |
| Moticam X3 | Motic | Wycofane, zastąpione przez Moticam X5 Plus; do użytku z mikroskopem złożonym | |
| Kwas oleinowy | Thermo Scientific | 031997-14 | |
| Mikroskop pionowy Olympus BX51 | Olympus | Wycofany, zastąpiony przez BX53M | |
| Fosforan potasu, monopodstawowy | Fisher Scientific | BP362-500 | |
| Półmikro dwustronne jednorazowe kuwety plastikowe | VWR | 97000-590 | |
| Chlorek sodu, kryształ | VWR | VW1494-01 | |
| Wodorotlenek sodu | Fisher Scientific | S318-500 | |
| Tween 80 | MP Biomedicals | 103170 | |
| Siarczek siedmiowodny, krystaliczny/ACS | MP Biomedicals | 219145290 |
Bibliografia
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
