Ten artykuł omawia procedury wywoływania reakcji stresowych za pomocą fizycznego stresu powściągliwości u myszy i szczurów. Omówiono dodatkowe kwestie, które należy wziąć pod uwagę przy wyborze i stosowaniu naprężenia utwierdzenia w modelach gryzoni
.Artykuł metodologiczny
Powściągliwość w wywoływaniu stresu u myszy i szczurów
W tym artykule
Podsumowanie
Streszczenie
U wszystkich gatunków zwierząt, narażenie na stresujące warunki wywołuje reakcje stresowe. Jedną z metod badania skutków stresu przy użyciu modeli gryzoni jest procedura stresu związanego z unieruchomieniem. Stres związany z powściągliwością jest stosowany od dziesięcioleci do badania zmian w fizjologii, genetyce, neurobiologii, immunologii i innych systemach, na które ma wpływ stres. Ze względu na łatwość wykonania zabiegu, niski koszt i liczne modyfikacje skali intensywności i czasu trwania ekspozycji na stres, w obszernej literaturze badań zastosowano stres ograniczający u myszy i szczurów. Jako jeden z przykładów, badanie to przedstawia wcześniej opublikowane dane pokazujące wpływ stresu związanego z powściągliwością u myszy transgenicznych na poziom kortykosteronu w osoczu i optogenetycznie indukowane uwalnianie noradrenaliny. Ostry stres związany z powściągliwością zwiększał poziom kortykosteronu w osoczu, jednak efekt ten został stępiony u myszy po powtarzającym się stresie związanym z powściągliwością. Jednak stymulowane uwalnianie noradrenaliny w jądrze łożyska prążka końcowego było zwiększone tylko w grupie powtarzającego się stresu powściągliwości. Dane te podkreślają ważne kwestie związane z parametrami unieruchomienia w odniesieniu do miar zależnych. Dla porównania dołączono również dodatkowe opisy stresu związanego z powściągliwością u szczurów. Na koniec omówiono wpływ parametrów unieruchomienia (np. ostry vs. przewlekły) oraz charakterystyki badanych zwierząt (szczep, płeć, wiek).
Wprowadzenie
Ze względu na powszechne doświadczanie stresu, badania nad mechanizmami zmienionych reakcji po ekspozycji na stres są stałym obszarem badań od kilkudziesięciu lat1. Badania te zaczęły analizować aspekty stresu, które mogą być korzystne dla zwiększenia zdolności adaptacyjnych i reagowania na ostre stresory wynikające z doświadczeń stresowych, które wywołują nieprzystosowawcze zmiany funkcji fizjologicznych i behawioralnych, często wynikające z długotrwałego narażenia na powtarzające się i/lub nieprzewidywalne czynniki stresogenne. Wiele z tych reakcji na stresory wpływa na funkcjonowanie mózgu, oś podwzgórze-przysadka-nadnercza (HPA), współczulne i przywspółczulne gałęzie autonomicznego układu nerwowego oraz układ odpornościowy. Narażenie na czynniki stresogenne inicjuje zwiększone uwalnianie czynnika uwalniającego kortykotropinę (CRF) w celu zwiększenia hormonu adrenokortykotropowego (ACTH) i hormonów glikokortykosteroidowych, takich jak kortyzol u naczelnych i wielu innych ssaków oraz kortykosteron u gryzoni2. Dodatkowo, epinefryna i noradrenalina są uwalniane na całym obwodzie i w mózgu w ramach odpowiedzi współczulnego układu nerwowego3. Te sygnały chemiczne oddziałują następnie z wieloma układami fizjologicznymi, takimi jak funkcje odpornościowe, metabolizm, reprodukcja i reaktywność neuronów4.
Stresujące doświadczenia są związane z niezliczonymi warunkami, w tym między innymi wzrostem lęku i depresji, zmianami w uczeniu się i pamięci, upośledzeniem w podejmowaniu decyzji i funkcjach wykonawczych oraz podatnością na zaburzenia związane z używaniem substancji. Każdy z tych efektów jest zależny zarówno od parametrów stresora, jak i od cech osoby doświadczającej stresu4. Charakter stresora, jako ostry lub przewlekły, możliwy do kontrolowania lub nieprzewidywalny, znacząco zmienia obserwowane wyniki. Te aspekty stresu wydają się spójne między ludzkimi doświadczeniami a modelami zwierzęcymi. W związku z tym, aby modelować stres w badaniach na zwierzętach, należy starannie rozważyć wybór parametrów ekspozycji na stres, które są odpowiednie dla gatunku, płci i stanu.
Chociaż wiele stresorów jest dostępnych do badań na gryzoniach (w tym stresory psychospołeczne, takie jak izolacja społeczna, stres lub porażka społeczna, stresory farmakologiczne, takie jak podawanie kortyzolu lub johimbiny, stresory fizyczne, takie jak wstrząs stopy i powściągliwość, oraz stresory multimodalne, które łączą się lub zmieniają warunki), ten manuskrypt skupi się na zastosowaniu stresu ograniczającego u myszy i szczurów. Stres związany z ograniczeniem może być wybrany zamiast innych stresorów, ponieważ jest łatwy do wykonania, niedrogi, dostosowuje się do różnych rozmiarów gryzoni, jest skalowalny zarówno do ostrych, jak i długotrwałych okresów i rzadko powoduje niekorzystne szkody dla podmiotu5. Chociaż ten manuskrypt koncentruje się na trwałych zmianach wywołanych ekspozycją na stres związany z ograniczeniami, niektóre badania wykorzystują powściągliwość u gryzoni do zbadania mechanizmów i zachowań, które występują podczas ograniczania, w tym aktywnych zachowań radzenia sobie związanych z ucieczką przed stresorem6,7,8,9. Celem tego manuskryptu jest przedstawienie rozważań metodologicznych w celu oceny wpływu stresu związanego z powściągliwością na myszy lub szczury.
Protokół
Eksperymenty i protokoły zostały zatwierdzone przez Institutional Animal Care and Use Committee (IACUC) na Uniwersytecie Północnej Karoliny w Chapel Hill (myszy) i Fairfield University (szczury) i są zgodne z wytycznymi NIH10.
1. Stres ograniczający u myszy
UWAGA: Myszy oferują szereg korzyści podczas badania wpływu stresu na fizjologię i systemy neuronalne. Wraz z rozpowszechnieniem się transgenicznych linii myszy, badania mechanistyczne nad interakcjami między genami a ekspozycją na stres są łatwo wykonalne. Niezależnie od tego, czy używasz myszy transgenicznych, czy dzikich, zaleca się rozważenie szczepu tła. Dodatkowo, ze względu na swoje rozmiary i warunki socjalne, myszy mają przewagę w wykorzystaniu przestrzeni nad innymi gatunkami.
- Narażenie na naprężenia związane z ograniczeniem
- Losowo przypisz myszy do grup kontrolnych w klatce domowej, ostrego stresu związanego z powściągliwością lub przewlekłego stresu związanego z powściągliwością.
- Określ długość ekspozycji na stres. W przypadku ostrych czynników stresogennych należy zastosować pojedynczą sesję trwającą od 5 minut do 12 godzin w zamknięciu w aparacie przytrzymującym. W przypadku przewlekłych stresorów upewnij się, że sesja odpowiada długości ostrego stresora, ale jest powtarzana codziennie przez zaledwie 3 dni i nawet 21 dni.
UWAGA: Ponieważ myszy nie będą miały dostępu do jedzenia i wody w warunkach ograniczenia, rozważ, czy zwierzęta kontrolne w klatkach domowych również powinny nie mieć dostępu do jedzenia i wody. - Zmodyfikuj stożkowe rurki o pojemności 50 ml, aby dodać otwory wentylacyjne.
- Użyj wiertarki z wiertłem 1/8", aby równomiernie rozmieścić otwory wokół każdej stożkowej rurki, aby zapewnić przepływ powietrza we wszystkich obszarach rury.
- Umieść te otwory, aby umożliwić myszowi dostęp powietrza niezależnie od tego, w którą stronę myszy jest skierowana w rurce. Upewnij się, że po modyfikacji nie pozostały żadne ostre krawędzie.
UWAGA: Te zmodyfikowane stożkowe rurki powinny być skuteczne dla większości dorosłych myszy (~ 20-40 g), ale mogą nie ograniczać małych/młodych myszy lub większych szczepów.
- W pomieszczeniu testowym, oddzielonym od pomieszczeń dla zwierząt i testów behawioralnych, umieść zwierzę przypisane do unieruchomienia w zmodyfikowanej stożkowej rurze z przymocowaną nasadką, aby uwięzić mysz w rurze na wyznaczoną długość krępowania.
UWAGA: Specyfika projektu pomieszczenia testowego może się różnić w zależności od dostępnej przestrzeni w obiekcie; W pomieszczeniu mogą znajdować się dygestorium i inny sprzęt laboratoryjny i/lub stoły/stoły laboratoryjne lub pusta sala zabiegowa. Jednak niezależnie od konfiguracji pomieszczenia, środowisko pomieszczenia unieruchamiającego powinno pozostać spójne przy powtarzających się ekspozycjach na ograniczenia, aby uniknąć zmian wywołanych kontekstem w reakcjach na stres 11. - Umieść rurkę przytrzymującą poziomo na płaskiej powierzchni. W razie potrzeby zabezpiecz probówkę taśmą laboratoryjną lub miską na pipety/zbiornikiem na odczynnik, aby nie toczyła się z myszą w środku.
UWAGA: W warunkach stresu myszy wytwarzają wokalizacje ultradźwiękowe. Zastanów się, czy projekt badania wymaga izolacji akustycznej od innych ograniczonych obiektów12. Kortykosteron i inne markery reakcji na stres są zgodne z rytmem okołodobowym. W związku z tym należy wziąć pod uwagę warunki oświetleniowe i czas wystąpienia stresora. We wszystkich grupach stresu powściągliwość powinna następować o stałej porze dnia, najlepiej na początku cyklu świetlnego13,14,15. W przedstawionym tutaj badaniu myszy były skrępowane przez około 3 godziny po zapaleniu światła. - Monitoruj każde zwierzę podczas stresu związanego z krępowaniem co najmniej co 20 minut. Wizualnie określ, czy zwierzę wykazuje nietypowe reakcje (powolny oddech, brak ruchu). W przypadku zaobserwowania objawów należy wyjąć mysz z rurki przytrzymującej, skontaktować się z lekarzem weterynarii i wykluczyć mysz z badania.
- Umieść mysz z powrotem w klatce domowej i zapewnij dostęp do jedzenia i wody.
2. Stres związany z powściągliwością u szczurów
UWAGA: Jako większe gryzonie, szczury mają zalety do rozważenia podczas badania skutków stresu. Podobnie jak myszy, szczury mają różne szczepy o zróżnicowanych reakcjach na ekspozycję na stres16,17. Dodatkowo, zwiększony rozmiar szczurów sprawia, że szczury są łatwiejsze w użyciu przy niektórych środkach behawioralnych, np. Samodzielnym podawaniu leków.
- Narażenie na naprężenia związane z ograniczeniem
- Losowo przypisz szczura do grupy kontrolnej w klatce domowej, ostrego stresu związanego z powściągliwością lub przewlekłego stresu związanego z powściągliwością.
- Określ długość ekspozycji na stres. W przypadku ostrych czynników stresogennych należy zastosować pojedynczą sesję trwającą od 5 minut do 12 godzin w zamknięciu w aparacie przytrzymującym. W przypadku przewlekłych stresorów upewnij się, że sesja odpowiada długości ostrego stresora, ale jest powtarzana codziennie przez zaledwie 3 dni i nawet 21 dni.
UWAGA: Ponieważ szczury nie będą miały dostępu do jedzenia i wody w stanie ograniczenia, zastanów się, czy zwierzęta kontrolne w klatkach domowych również powinny nie mieć dostępu do jedzenia i wody. - W przypadku dostępnej na rynku rurki przytrzymującej należy postępować zgodnie z instrukcjami opisanymi poniżej.
UWAGA: Dostępne na rynku rurki przytrzymujące dla szczurów są dostępne. Urządzenia te mają różne konstrukcje, w tym drut metalowy, pojemniki i rurki z tworzywa sztucznego/pleksi z zaokrąglonym i płaskim dnem. Każda opcja jest prosta w użyciu.- Włóż szczura do urządzenia, a następnie dodaj wtyczkę dostosowaną do rozmiaru obiektu i zablokuj go na miejscu. Po umieszczeniu w rurze przytrzymującej upewnij się, że szczur jest ciasno zamknięty, aby zapobiec obracaniu się od głowy do ogona, ale może swobodnie oddychać.
UWAGA: Urządzenia te są przeznaczone do krępowania szczurów i nie wymagają modyfikacji do oddychania. W tym badaniu wykorzystano ogranicznik żył ogonowych (tabela materiałów), który obejmuje przyssawki na platformie pod rurką w celu zabezpieczenia urządzenia. Dodatkową zaletą tego urządzenia jest to, że ogon jest dostępny na zewnątrz urządzenia w celu kontrolowania obiektu podczas wprowadzania i wyjmowania z rurki lub pobierania krwi z żyły ogonowej podczas krępowania.
- Włóż szczura do urządzenia, a następnie dodaj wtyczkę dostosowaną do rozmiaru obiektu i zablokuj go na miejscu. Po umieszczeniu w rurze przytrzymującej upewnij się, że szczur jest ciasno zamknięty, aby zapobiec obracaniu się od głowy do ogona, ale może swobodnie oddychać.
- W pomieszczeniu testowym oddzielonym od pomieszczeń dla zwierząt i testów behawioralnych, umieść animy przypisane do unieruchomienia w rurze unieruchamiającej na wyznaczony czas unieruchomienia. Umieść rurkę przytrzymującą poziomo na płaskiej powierzchni.
UWAGA: W warunkach stresu szczury wytwarzają również wokalizacje ultradźwiękowe. Zastanów się, czy projekt badania wymaga izolacji akustycznej od innych osób ograniczonych. - Monitoruj każde zwierzę podczas stresu związanego z krępowaniem co najmniej co 20 minut. Wizualnie określ, czy zwierzę wykazuje nietypowe reakcje (powolny oddech, brak ruchu). W przypadku zaobserwowania zaobserwowanych objawów należy wyjąć szczura z rurki przytrzymującej, skontaktować się z lekarzem weterynarii i wykluczyć szczura z badania.
- Wróć szczura do klatki domowej i zapewnij mu dostęp do jedzenia i wody.
3. Oceny stresu
- Pomiar aktywacji HPA
- Jeśli to konieczne, po ekspozycji na stres unieruchamiający lub usunięciu z klatki domowej, szybko odetnij głowy testerom, aby zebrać krew z tułowia do heparynizowanych probówek.
- Wyizolować osocze przez wirowanie i przechowywać próbki osocza w temperaturze -80 °C. Analizować kortykosteron we krwi za pomocą zestawu do testu immunoenzymatycznego (ELISA).
UWAGA: Chociaż kortykosteron jest często używany jako odczyt nasilenia ekspozycji na stres, zwłaszcza ostry stres, poziomy kortykosteronu nie zawsze korelują ze zmianami zachowania wywołanymi stresem6. Co więcej, odpowiedź osi HPA regulująca uwalnianie kortykosteronu przyzwyczaja się do wielokrotnego narażenia na ten sam stresor18. Alternatywnie, hormon adrenokortykotropowy (ACTH) może być bardziej wiarygodną miarą intensywności ostrego stresora4. Utrzymuje się na podwyższonym poziomie przez około godzinę po ustaniu ekspozycji na stresor, ale silny i długotrwały (około > 2 h) stres może zmęczyć jego produkcję.
- Efekty behawioralne
- W razie potrzeby, po ekspozycji na stres związany z krępowaniem lub usunięciu z klatki domowej, oceń wydajność behawioralną gryzonia za pomocą odpowiedniego zadania behawioralnego.
UWAGA: Więcej informacji na temat wpływu powściągliwości na różne modele zachowań można znaleźć w sekcji dyskusji.
- W razie potrzeby, po ekspozycji na stres związany z krępowaniem lub usunięciu z klatki domowej, oceń wydajność behawioralną gryzonia za pomocą odpowiedniego zadania behawioralnego.
- Neurobiologia
- Alternatywnie lub dodatkowo, oceń funkcję neurobiologiczną po ekspozycji na stres ograniczający lub kontroli. Szeroka gama testów może badać wpływ stresu ograniczającego na komórki, synaptyki i obwody. W zależności od testu, wszczepić urządzenie do pomiaru in vivo lub pobrać tkankę mózgową, aby wykonać wybraną analizę.
UWAGA: Wpływ stresu na specyficzne dla typu komórki zmiany w syntezie białek i modyfikacjach epigenetycznych został dokładnie przeanalizowany przez McEwena i współpracowników1. Te modyfikacje genetyczne i białkowe indukują plastyczność, aby zmienić połączenia synaptyczne i obwody. Aby przeprowadzić te badania, należy pobrać tkankę mózgową po ekspozycji na stres i przeprowadzić analizy genomiczne, proteomiczne, fizjologię ex vivo i inne. Alternatywnie można ocenić zmiany neurobiologiczne za pomocą pomiarów in vivo, takich jak mikrodializa, woltamperometria cykliczna szybkiego skanowania (FSCV), fotometria światłowodowa i inne. Podejścia te rejestrują uwalnianie neurochemiczne i aktywację neuronów, obie po ekspozycji na stres ograniczający2,19, a teraz podczas krępowania8,9,20. Zestaw narzędzi do oceny mechanizmów neurobiologicznych leżących u podstaw skutków stresu związanego z ograniczeniami szybko się rozwija, umożliwiając nowy wgląd w złożoność stresu.
- Alternatywnie lub dodatkowo, oceń funkcję neurobiologiczną po ekspozycji na stres ograniczający lub kontroli. Szeroka gama testów może badać wpływ stresu ograniczającego na komórki, synaptyki i obwody. W zależności od testu, wszczepić urządzenie do pomiaru in vivo lub pobrać tkankę mózgową, aby wykonać wybraną analizę.
Wyniki
W poprzednio opublikowanym badaniu21 procedury stresu związanego z unieruchomieniem opisane w niniejszym manuskrypcie zostały wykorzystane do oceny wpływu stresu z unieruchomienia na regulację kortyzolu i norepinefryny, co mieści się w szerokim zakresie możliwości zmian w neurobiologii indukowanych przez stres, wspomnianych w protokole 3.3. W niniejszym badaniu zastosowaliśmy opisany powyżej protokół unieruchamiania myszy. Dodatkowe szczegóły wykraczające poza zakres unieruchamiania będący tematem tego artykułu, np. uzasadnienie wyboru obszaru mózgu, parametry stymulacji optogenetycznej lub FSCV, można znaleźć w cytowanym manuskrypcie.
Użyliśmy samców i samic myszy transgenicznych (DBH:Cre+/-::Ai32+/-) wykazujących selektywną ekspresję channelropsyny w neuronach noradrenergicznych i zmierzyliśmy stymulowane uwalnianie norepinefryny w jądrze dna paska końcowego (BNST) za pomocą ex vivo FSCV21. Myszy poddano unieruchomieniu zgodnie z opisem w protokole 1 w sposób ostry (2 h) i przewlekły (2 h/dobę przez 5 dni) lub utrzymywano w klatkach jako grupę kontrolną. Po ekspozycji od niektórych osobników pobrano krew do analizy poziomu kortykosteronu, zgodnie z opisem w protokole 3.1. Bezpośrednio po ostrym stresie wywołanym unieruchomieniem u myszy zaobserwowano podwyższone poziomy kortykosteronu, jednak odpowiedź ta była stłumiona po powtarzanym stresie (patrz Rycina 1). Dodatkowe myszy wykorzystano do oceny wpływu stresu związanego z unieruchomieniem na uwalnianie norepinefryny. 24 h po ostatniej ekspozycji na stres szybko pobrano i pocięto tkankę mózgową, aby zarejestrować uwalnianie norepinefryny w BNST. Co ciekawe, ostre unieruchomienie nie wpłynęło na stymulowane uwalnianie norepinefryny, natomiast powtarzana ekspozycja na stres spowodowała istotny wzrost stymulowanego uwalniania norepinefryny we wszystkich parametrach stymulacji (patrz Rycina 2). Wyniki te są zbieżne z wcześniejszymi badaniami nad wpływem stresu związanego z unieruchomieniem na uwalnianie norepinefryny u szczurów, przeprowadzonymi z zastosowaniem podejść opisanych w protokole 217,22.

Rysunek 1: Poziom kortykosteronu w osoczu kontroli przebywających w klatkach domowych (naiwnych) oraz po ostrym (pojedynczym) i przewlekłym (powtarzalnym) stresie związanym z unieruchomieniem. Po pojedynczej 2 h sesji ostrego stresu związanego z unieruchomieniem poziomy kortykosteronu w osoczu były podwyższone w porównaniu zarówno do grupy naiwnej, jak i grupy z powtarzalnym stresem. Wyniki przedstawiono jako średnia ± SEM. N = 5-6 myszy na grupę. **p < 0.05, ***p < 0.005. Rysunek zmodyfikowany za zgodą Schmidt i wsp.21. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
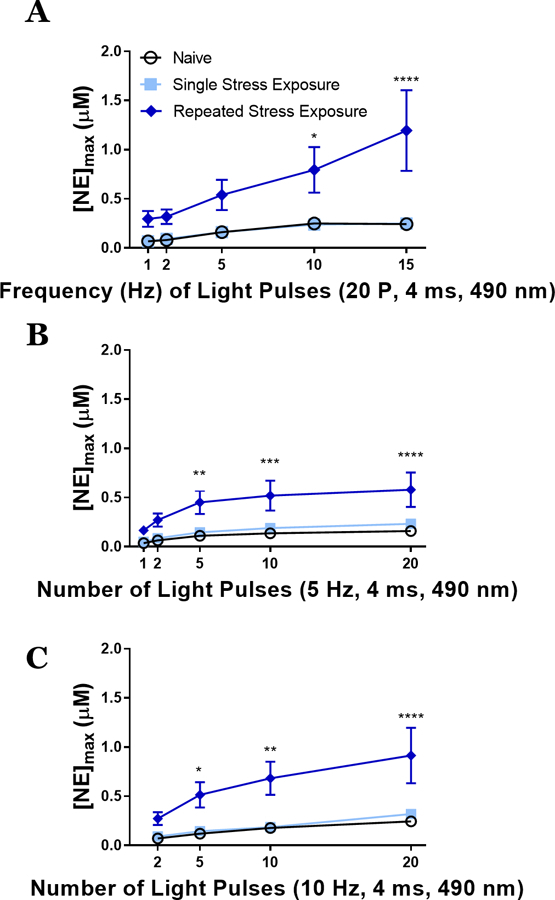
Rycina 2: Optogenetycznie stymulowane uwalnianie norepinefryny wzrasta po chronicznym (powtarzanym) stresie związanym z unieruchomieniem. Dzień po ostatniej ekspozycji na stres przeprowadzono ex vivo szybką cykliczną woltamperometrię w celu pomiaru optogenetycznie stymulowanego uwalniania norepinefryny w jądrze dna stria terminalis u myszy. (A) Zmiany częstotliwości (Hz) stymulacji składającej się z 20 impulsów (20 P) spowodowały uwolnienie większej ilości norepinefryny w grupie z powtarzanym stresem. (B, C) Zmiany liczby impulsów (2-20) przy częstotliwości stymulacji 5 Hz (B) lub 10 Hz (C) wskazały na większe uwalnianie norepinefryny w grupie z powtarzanym stresem. Średnia ± SEM; n = 5−6 myszy/grupa, co dostarczyło 7−8 skrawków/grupa. *p < 0.05, **p < 0.05, ***p < 0.005 i ****p < 0.0001. Rycina została zmodyfikowana za zgodą Schmidt et al.21. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Aby zbadać wpływ stresu na funkcje fizjologiczne, neurobiologiczne i behawioralne w modelach gryzoni, należy zastosować warunki, które wywołują stres u gryzoni. Wśród tych rozważań znajdują się warunki, które wywołują reakcje stresowe u pacjenta. Unieruchomienie jest zwalidowaną procedurą wywoływania reakcji fizjologicznych i behawioralnych u gryzoni, odpowiadających efektom stresu u ludzi. Stosując metodologię podobną do tego protokołu, powściągliwość została wykorzystana do oceny szeregu reakcji molekularnych, komórkowych, endokrynologicznych i fizjologicznych związanych z modelami zaburzeń psychicznych, w tym lęku, depresji, bólu i zaburzeń związanych z używaniem substancji 1,19. W tym przypadku dane z jednego opublikowanego badania są przedstawione jako przykład powściągliwości u gryzoni, ale skutki powściągliwości wykraczają poza ten konkretny przykład i obejmują szeroki zakres zależnych środków. Powściągliwość może być wybrana do stosowania jako stresor, ponieważ jest łatwa do wykonania u myszy i szczurów, niedroga do ustanowienia i może przystosować się do wywoływania różnych poziomów reakcji na stres w zależności od zastosowanych parametrów.
W porównaniu z innymi podejściami wywołującymi stres, powściągliwość ma pewne ograniczenia, które należy wziąć pod uwagę podczas projektowania badania 4,23. Warto zauważyć, że stres związany z powściągliwością nie zawsze wywołuje zmiany w zachowaniu obserwowane w przypadku innych stresorów fizycznych, takich jak przerywany wstrząs stopy24. Niespójności te mogą wynikać z zalet unieruchomienia, że może ono wystąpić w różnych środowiskach, podczas gdy wstrząsy nożne są bardziej ograniczone do komory testowej wyposażonej w podłogi z siatką przeciwwstrząsową. Konteksty stresowe mają ogromny wpływ na wynikające z nich efekty11. Dodatkowo, zamknięcie w tradycyjnej rurce lub urządzeniu krępującym jest wadą, ponieważ ogranicza dostęp do osoby podczas krępowania. Opracowano nowsze urządzenia krępujące, np. "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)", aby przezwyciężyć to ograniczenie i umożliwić wiązanie w celu zbierania danych neurobiologicznych podczas sesji krępowania 8,9,20. Inne podejście do rozwiązania tej przeszkody wykorzystuje stres unieruchamiający jako technikę podobną do unieruchomienia - często unieruchomienie i unieruchomienie są używane jako synonimy, ale z istotnymi różnicami25. Stres związany z unieruchomieniem polega na przymocowaniu rąk, nóg i głowy zwierzęcia do powierzchni, podczas gdy krępowanie polega na umieszczeniu wewnątrz urządzenia ograniczającego. W związku z tym stres unieruchamiający ogranicza ruch, zapewniając jednocześnie dostęp do pacjenta w celu pobrania krwi, płynu mózgowo-rdzeniowego, reakcji źrenic lub innych efektów fizjologicznych, które mogą być interesujące dla badań nad stresem. Dodatkowe czynniki stresogenne, które zostały wykorzystane do wywołania stresu u gryzoni, obejmują stres związany z zimnem środowiskowym, podawanie środków farmakologicznych, takich jak kortykosteron lub johimbina, etologicznie istotne doświadczenia porażki społecznej lub narażenia na zapach drapieżnika oraz stres multimodalny, taki jak przewlekły nieprzewidywalny stres (CUS). Te alternatywne metody naprężeń są wybierane do użytku ze względu na ich zalety w modelowaniu określonych aspektów stresu. Na przykład, pomimo tego, że unieruchomienie jest aspektem modeli CUS u myszy i szczurów26, efekty CUS mogą różnić się od tych wywołanych przez równoważną ekspozycję na przewlekły stres związany z powściągliwością 27,28. Przewidywalność powtarzających się ograniczeń zmniejsza reakcję na przyszłe epizody powściągliwości, co ogranicza skuteczność homotypowego stresu powściągliwości. Alternatywnie, CUS i inne heterotypowe modele stresu obracają stresory lub konteksty, aby zminimalizować habituację11,18. Te nieprzewidywalne modele stresu mogą lepiej modelować aspekty ludzkich schorzeń psychicznych, aby w pełni uchwycić utratę kontroli i oczekiwania. Inną wadą powściągliwości, z którą inne metody stresu lepiej sobie radzą, jest społeczny wpływ na podatność na stres i buforowanie stresu 29,30,31. Gryzonie i ludzie są zwierzętami społecznymi o współgatunkowych relacjach i hierarchiach. Chociaż stres związany z powściągliwością nie obejmuje socjalizacji, stresory psychospołeczne, takie jak stres porażki społecznej, stanowią etologicznie istotny stresor dla gryzoni 32,33,34.
W przypadku stosowania stresu powściągliwości intensywność i powtarzalność podawania jest parametrem, którym można manipulować5. Aby wytworzyć bardziej wytrzymałe naprężenie unieruchamiające, projekt badania może wymagać dłuższego czasu w urządzeniu przytrzymującym. Tak krótkie, jak 5 minut lub tak długie, jak 12 godzin są możliwymi parametrami odpowiednio dla ostrych lub przedłużonych sesji krępowania,35,36. Po ustaleniu długości ekspozycji na ograniczenie, powtarzanie się stresora może być również czynnikiem wywołującym różne poziomy stresu35,37. Należy zauważyć, że powtarzający się stres związany z ograniczeniem niekoniecznie oznacza wzrost obserwowanych efektów. Często powtarzający się stres związany z ograniczeniami przyzwyczaja lub w inny sposób zmniejsza reakcje na stres18. W przedstawionych tutaj danych zaobserwowaliśmy habituację z reakcją kortykosteronu na powtarzający się stres związany z powściągliwością, podczas gdy jednocześnie zmierzyliśmy różnice w stymulowanym uwalnianiu noradrenaliny tylko w grupie narażonej na powtarzający się stres. W związku z tym skutki powtarzającego się unieruchamiania muszą być dokładnie zbadane przed określeniem skutków przyzwyczajenia35.
Dodatkowo należy wziąć pod uwagę konsekwencje warunków przetrzymywania stosowanych w badaniach z wykorzystaniem naprężeń unieruchamiających. Interakcja ze zestresowanymi współplemieńcami wpływa na reakcje stresowe u gryzoni 30,38,39. Tak więc, aby utrzymać spójne odpowiedzi w grupach eksperymentalnych, badani powinni być albo trzymani indywidualnie, albo w grupie, w której wszyscy współpracownicy klatki doświadczają tego samego stanu stresu37. Krytyczną wadą tego podejścia do izolacji społecznej wszystkich podmiotów jest to, że izolacja społeczna jest również stresorem40,41. Jednak niezależnie od warunków mieszkaniowych, narażenie na stres powinno odbywać się w izolacji, jeśli to możliwe, aby zapobiec społecznemu buforowaniu stresu wpływającemu na pomiary wyników30. Wraz z tymi warunkami w pomieszczeniach mieszkalnych należy wziąć pod uwagę czas narażenia na stres w odniesieniu do środowiskowych cykli świetlnych14,15. Jak zauważają niektórebadania37, poziomy kortykosteroidów są zgodne z rytmem okołodobowym, więc podawanie stresorów w różnych momentach cyklu świetlnego może powodować niespójne skutki. W związku z tym niezbędne jest ustalenie i utrzymanie jednolitego czasu rozpoczęcia stosowania środków ograniczających. Na przykład jedna z prac badających wpływ stresu związanego z wysiłkiem fizycznym na okołodobową kontrolę kortykosteronu pokazuje, że u myszy kontrolnych kortykosteron osiąga szczyt pod koniec cyklu świetlnego, ale u myszy zestresowanych kortykosteron pozostaje podwyższony bez stabilnego szczytu13. W świetle tych ustaleń zaleca się stresowanie gryzoni na wczesnym etapie cyklu świetlnego, aby uzyskać największe efekty.
Poza parametrami warunków krępowania, w badaniach z użyciem stresorów związanych z unieruchomieniem ważne były również cechy zwierzęcia poddanego próbie. Na przykład liczne badania wykazały różnice płci przy użyciu stresu powściągliwości 12,35,37,42,43,44. Zrozumienie mechanizmów leżących u podstaw tych różnic jest warte zbadania i może prowadzić do lepszych wyników sprawiedliwego leczenia, gdy ludzie doświadczają stresu. Być może kobiety i mężczyźni inaczej doświadczają i przetwarzają stresory, co prowadzi do wzrostu lęku i depresji u kobiet44. Na przykład stres związany z powściągliwością zmniejsza wydajność uczenia się u mężczyzn, ale zwiększa wydajność uczenia się u kobiet45. Historycznie rzecz biorąc, badania nad stresem powściągliwości u gryzoni ograniczały swoje obiekty do samców, ale idąc naprzód, powinniśmy zaprojektować eksperymenty tak, aby obejmowały obie płcie. Inną cechą przedmiotu, którą należy wziąć pod uwagę podczas projektowania eksperymentów z użyciem stresorów ograniczających (i innych) u gatunków myszy lub szczurów, jest szczep 46,47,48,49,50,51. Efekty odkształceń zaobserwowano w wielu paradygmatach, przy czym niektóre szczepy wykazywały zaostrzone reakcje na stres związany z ograniczeniem. Wreszcie, wiek podmiotu powinien być brany pod uwagę przy stosowaniu stresu związanego z powściągliwością. Od prenatalnej ekspozycji na stres poprzez krępowanie ciężarnej matki po powściągliwość w starzejących się populacjach, stres związany z ograniczeniami można dostosować do dowolnego punktu czasowego. Różnice w reakcji na stres wykazano w ciągu całego życia 45,52,53,54,55,56. Oprócz wymagania różnych urządzeń krępujących, aby dostosować się do zmian wielkości ciała w miarę starzenia się, podczas stosowania stresorów ograniczających należy wziąć pod uwagę doświadczenia stresu związane z wiekiem.
Wybór odpowiedniego pomiaru wyniku, niezależnie od tego, czy jest to zadanie behawioralne opisane w 3.2, czy zmienna neurobiologiczna opisana w 3.3, wymaga rozważenia. Po pierwsze, wykazano, że ostra, łagodna ekspozycja na stres poprawia wydajność w niektórych zadaniach związanych z uczeniem się, ale intensywna lub przewlekła ekspozycja na stres pogarsza wydajnośćw zadaniach związanych z uczeniem się i pamięcią. Uważa się, że te zmiany w wydajności poznawczej są regulowane przez rozregulowanie obwodów między korą przedczołową, ciałem migdałowatym i hipokampem. Jednak wpływ stresu związanego z powściągliwością na elastyczność poznawczą jest bardziej mieszany, a niespójne wyniki utrudniają jasny obraz tego, jak różne parametry powściągliwości wpływają na uczenie się odwrócone lub zmianę zestawu58. Jeśli chodzi o behawioralne skutki narkotyków, wykazano, że stres związany z powściągliwością, podobnie jak inne stresory, zwiększa zachowania związane z zaburzeniami związanymi z używaniem substancji wwielu klasach narkotyków. Efekty te są jednak nieco selektywne, ponieważ nie zgłasza się, że stres związany z powściągliwością napędza poszukiwanie narkotyków w modelach nawrotu warunkowania instrumentalnego, ale zwiększa asocjacyjne uczenie się efektów narkotyków mierzone za pomocą zadań warunkowej preferencji miejsca, w tym przywrócenia60. Uważa się, że ta rozbieżność występuje, ponieważ urządzenia przytrzymujące tworzą odrębny kontekst niż komory kondycjonujące instrumentalnie, podczas gdy stres związany z uderzeniem stopy może wystąpić w środowisku operacyjnym. Aby przezwyciężyć to ograniczenie, połączenie ekspozycji na stres ze wskazówkami, które mogą być prezentowane podczas sesji samodzielnego podawania przez aktorów, wykazało wywołany stresem wzrost przyjmowania narkotyków i poszukiwania narkotyków61. Wpływ chronicznej powściągliwości na zachowania związane z narkotykami jest słabiej scharakteryzowany. Biorąc pod uwagę modele zaburzeń afektywnych, takich jak lęk i depresja, zarówno u ludzi, jak i na modelach zwierzęcych, narażenie na stres zwiększa wskaźniki lęku. U gryzoni ocena lęku związana ze stresem związanym z powściągliwością obejmuje reakcje thigmotaxis w aparacie otwartego pola, mierzone poprzez śledzenie reakcji lokomotorycznej zwierzęcia wzdłuż ścian na arenie w porównaniu do środka. Zwierzęta wykazujące zachowania podobne do lęku po unieruchomieniu będą spędzać więcej czasu w pobliżu boków i będą miały mniej przejść środkowych. Innym podejściem do pomiaru lęku jest podwyższony labirynt plus. W tym zadaniu wykorzystuje się aparat w kształcie krzyża umieszczony około 3 stóp nad podłogą. Dwa ramiona aparatu obejmują bariery ścienne; Dwa ramiona mają otwarte boki. Zwierzęta wykazujące zachowania podobne do lęku będą spędzać więcej czasu w zamkniętych ramionach niż w otwartych ramionach 62,63. Zachowania podobne do depresji są oceniane za pomocą zadania wymuszonego pływania, w którym gryzonie są umieszczane w cylindrze z wodą i mierzone pod kątem reakcji zmagających się w porównaniuz reakcjami unoszącymi się na wodzie. To, czy zaprzestanie walki o ucieczkę rzeczywiście reprezentuje zachowanie podobne do depresji, zostało poddane w wątpliwość, jednak zadanie to okazało się użyteczne jako badanie przesiewowe dla leków przeciwdepresyjnych. Zachowania podobne do depresji można również ocenić poprzez wywołane stresem zmniejszenie preferencji sacharozy66. Te zmiany w spożyciu słodkich płynów są traktowane jako ocena aspektów anhedonii w depresji klinicznej.
Podsumowując, powściągliwość u myszy i szczurów jest zwalidowaną procedurą wywoływania reakcji na stres i lęk w badaniach nad fizjologią, genetyką, immunologią i neurobiologią. W porównaniu z innymi podejściami wywołującymi stres, powściągliwość jest niedroga, łatwa do wykonania, przydatna do modelowania aspektów zaburzeń u ludzi, w tym lęku, depresji, zaburzeń związanych z używaniem substancji i zespołu stresu pourazowego, i może być dostosowywana do szerokiego zakresu parametrów. Z tych powodów stres związany z unieruchomieniem nadal jest użyteczną metodą określania wpływu stresu na gryzonie.
Oświadczenia
Brak konfliktów interesów do zgłoszenia.
Podziękowania
Doceniam opinie redakcyjne dostarczone przez Holly Rahurahu i Sama Shaffera.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 50 ml Nakrętka ogólnego przeznaczenia Stożkowa rurka | Globe Scientific | 6288 | |
| Jednorazowa umywalka na pipety | Fisher Scientific | 13-681-500 | |
| Zestaw ELISA do testów trzpienia kortykosteronu | K014-H | ||
| Rurka ograniczająca żyły ogonowe | Braintree Scientific | RTV |
Bibliografia
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
Przedruki i uprawnienia
