Nadużywanie alkoholu osłabia odporność makrofagów pęcherzykowych (AM) z powodu stłumionego oddychania mitochondrialnego i bioenergetyki. Niedawno wykazaliśmy, że ekspozycja na etanol (EtOH) zwiększa zależność od glutaminy w oddychaniu mitochondrialnym u AM. W niniejszym artykule przedstawiono metody określania zastosowania glutaminy do oddychania mitochondrialnego w AM traktowanych EtOH przy użyciu bioanalizatora strumienia zewnątrzkomórkowego.
Artykuł metodologiczny
Ocena glutaminy jako źródła paliwa dla makrofagów pęcherzykowych narażonych na przewlekłe działanie etanolu przy użyciu bioanalizatora strumienia zewnątrzkomórkowego
W tym artykule
Podsumowanie
Streszczenie
Makrofagi pęcherzykowe (AM) są pierwszą linią obrony komórkowej w dolnych drogach oddechowych przed patogenami. Jednak przewlekłe i nadmierne spożywanie alkoholu upośledza zdolność AM do fagocytacji i usuwania patogenów z przestrzeni pęcherzykowej, częściowo poprzez rozregulowany metabolizm paliw i bioenergetykę. Nasze wcześniejsze prace wykazały, że przewlekłe spożywanie etanolu (EtOH) upośledza bioenergetykę mitochondriów i zwiększa poziom mleczanu w AM. Co więcej, niedawno wykazaliśmy, że EtOH zwiększa zależność od glutaminy i maksymalne oddychanie zależne od glutaminy, jednocześnie zmniejszając elastyczność, odchodząc od oddychania zależnego od pirogronianu w kierunku oddychania zależnego od glutaminy. Glutaminoliza jest ważną ścieżką kompensacyjną dla oddychania mitochondrialnego, gdy pirogronian jest używany do produkcji kwasu mlekowego lub gdy inne źródła paliwa są niewystarczające. Korzystając z mysiej linii komórkowej AM, komórek MH-S, wystawionych na działanie braku EtOH lub EtOH (0,08%) przez 72 godziny, określiliśmy zależność oddychania mitochondrialnego i bioenergetyki od glutaminy jako źródła paliwa za pomocą bioanalizatora strumienia zewnątrzkomórkowego. Pomiary w czasie rzeczywistym przeprowadzono w odpowiedzi na siarczek etylu bis-2-(5-fenyloacetamido-1,3,4-tiadiazol-2-ylo) etylu (BPTES), inhibitor glutaminazy 1, który zapobiega enzymatycznej konwersji glutaminy do glutaminianu, w nośniku pożywki lub w odpowiedzi na sam nośnik, a następnie przeprowadzono badanie stresu mitochondrialnego. Protokół krok po kroku przedstawiony w niniejszym dokumencie opisuje nasze metody i obliczenia do analizy średnich poziomów podstawowego oddychania mitochondrialnego zależnego od glutaminy, mitochondrialnego oddychania związanego z ATP, maksymalnego oddychania mitochondrialnego i wolnej pojemności oddechowej mitochondriów w wielu powtórzeniach biologicznych i eksperymentalnych.
Wprowadzenie
Zaburzenie związane z używaniem alkoholu (AUD) dotyka ponad 28 milionów ludzi w Stanach Zjednoczonych1. Osoby z AUD są 2-4 razy bardziej narażone na rozwój infekcji dróg oddechowych2,3, zwiększając ryzyko przedwczesnej zachorowalności i śmiertelności3,4,5. Nadużywanie alkoholu zwiększa podatność na infekcje dróg oddechowych, częściowo poprzez tłumienie funkcji immunologicznych płuc. Makrofagi pęcherzykowe (AM) są pierwszą linią obrony komórkowej przed patogenami w dolnym płucu, gdzie fagocytują i usuwają wdychane drobnoustroje. Jednak przewlekłe spożywanie alkoholu upośledza zdolność AM do pochłaniania i zabijania patogenów6,7.
Funkcje immunologiczne AMs, takie jak fagocytoza, są procesami wymagającymi energii, które wymagają metabolicznie aktywnych szlaków niezbędnych do wytwarzania wysokiego poziomu adenozynotrójfosforanu (ATP). Mitochondrialna fosforylacja oksydacyjna jest najbardziej wydajnym procesem komórkowym do wytwarzania ATP, ale przewlekła ekspozycja na etanol (EtOH) zwiększa stres oksydacyjny pochodzenia mitochondrialnego, co może skutkować dysfunkcją mitochondriów w AMs8,9,10. Oddychanie mitochondrialne mierzone za pomocą wskaźnika zużycia tlenu przez komórki (OCR) można określić ilościowo za pomocą bioanalizatora strumienia zewnątrzkomórkowego w czasie rzeczywistym. Do określenia bioenergetyki mitochondriów wykorzystuje się profile oddychania mitochondrialnego oceniane w odpowiedzi na oligomycynę (inhibitor syntazy ATP), cyjanek karbonylu-p-trifluorometoksyfenylohydrazon (FCCP, rozprzęgacz protonów) oraz rotenon/antymycynę A (R/A, odpowiednio inhibitory kompleksu mitochondrialnego I i III). Przewlekłe EtOH zmniejsza bioenergetykę mitochondriów w AMs, o czym świadczy zmniejszone mitochondrialne oddychanie podstawowe, oddychanie sprzężone z ATP, maksymalne oddychanie i zapasowa pojemność oddechowa10.
Komórki mają różne poziomy zależności od źródeł paliw, takich jak pirogronian, glutamina, czy kwasy tłuszczowe, do produkcji ATP. Mają również poziom elastyczności, dzięki któremu mogą przełączać zużycie paliwa w celu regulacji bioenergetyki komórkowej. Glutaminoliza jest kluczowym szlakiem oddychania mitochondrialnego, szczególnie gdy pirogronian jest przetaczany w kierunku produkcji kwasu mlekowego lub gdy kwasy tłuszczowe są niewystarczające. Nasze ostatnie badanie wykazało, że przewlekła ekspozycja na EtOH zwiększa zależność AM od glutaminy i zmniejsza elastyczność AM w korzystaniu z glutaminy i innych źródeł paliwa do oddychania mitochondrialnego11. Wyniki te, wraz z danymi wykazującymi, że leczenie komórek MH-S narażonych na EtOH inhibitorem utleniania pirogronianu UK5099 nie zmieniło bioenergetyki mitochondriów w porównaniu z komórkami MH-S narażonymi na kontrolę pożywki leczonych UK5099, sugerują odejście od oddychania zależnego od pirogronianu w kierunku oddychania zależnego od glutaminy w komórkach EtOH MH-S. Jednak ta zmiana jest niewystarczająca, aby sprostać wymaganiom bioenergetycznym AM11. W niniejszym artykule opisano metody oceny glutaminy jako źródła paliwa do oddychania mitochondrialnego w przewlekłych AM narażonych na EtOH za pomocą bioanalizatora strumienia zewnątrzkomórkowego. Protokół ten został stworzony i zoptymalizowany dla formatu 96 dołków (obszar 11,04 mm2) i powinien być dostosowany do większych rozmiarów dołków do hodowli komórkowych. Zależność od glutaminy w bioenergetyce mitochondriów określa się za pomocą siarczku etylu bis-2-(5-fenyloacetamido-1,3,4-tiadiazol-2-ylo) (BPTES, inhibitor glutaminazy 1) w celu selektywnego hamowania enzymatycznej konwersji glutaminy do glutaminianu. Dane przedstawione w tym badaniu są dodatkowymi powtórzeniami biologicznymi dla grup eksperymentalnych traktowanych pożywką kontrolną i BPTES nieleczonej kontrolnej i przewlekłej linii komórkowej myszy AM narażonej na EtOH, komórek MH-S, które są publikowane w Crotty et al.11.
Protokół
1. Przewlekłe narażenie na EtOH in vitro
- Hodowla komórek MH-S, linii komórkowej makrofagów pęcherzykowych myszy, w kompletnej pożywce zawierającej RPMI-1640 z 10% płodową surowicą bydlęcą, 1% penicyliną/streptomycyną, 11,9 mM wodorowęglanem sodu, 40 mg/ml gentamycyny i 50 μM 2-merkaptoetanolem w temperaturze 37°C z 5% CO2 w wilgotnym inkubatorze.
- Hodowlane komórki MH-S należy traktować z EtOH lub bez EtOH (0,8 mg/ml lub 0,08%) przez 72 godziny, przy czym EtOH należy wymieniać co 24 godziny. Komórki MH-S poddane działaniu EtOH inkubować w temperaturze 37 °C z 5% CO2 w oddzielnym nawilżanym inkubatorze zawierającym 0,08% EtOH w wodzie inkubatora.
2. Posiewanie komórek MH-S do oceny glutaminy jako źródła paliwa za pomocą bioanalizatora strumienia zewnątrzkomórkowego
- Upewnij się, że nieleczone komórki kontrolne (Con) i przewlekłe MH-S traktowane EtOH są hodowane do co najmniej 50% konfluencji (70% -90% konfluencji jest idealne) w kolbach T-75 w celu przejścia do 96-dołkowej płytki mikrokultury strumienia zewnątrzkomórkowego. Przygotować mapę płytową dla 5-6 kontrprób technicznych na kontrpróbę biologiczną warunków eksperymentalnych Con i EtOH oraz kontroli pożywek dla każdego z nich w celu porównania z iniekcjami BPTES (łącznie cztery grupy dla biologicznych n = 1).
- Przepłukać komórki pożywką lub solą fizjologiczną buforowaną fosforanami.
- Dodać 6 ml pożywki zawierającej surowicę do kolby.
- Zeskrob komórki, aż zostaną odłączone, a spód płytki będzie czysty. Trypsyna nie jest potrzebna do odwarstwienia komórek MH-S, ale może być pomocna w innych typach komórek.
- Oddzielić komórki za pomocą pipety serologicznej lub pipety o pojemności 1 ml.
- Przenieść zawieszone komórki do stożkowej probówki o pojemności 15 ml i odwirować je przy 200 x g przez 6 minut.
- Odessać supernatant.
- Dodać 1 ml pożywki i dokładnie zawiesić komórki.
- Przenieść 10 μl do probówki mikrowirówkowej i dodać 10 μl błękitu trypanowego. Dobrze wymieszaj.
- Przenieść 10 μl mieszaniny komórek i błękitu trypanowego na jedną stronę hemocytometru lub licznika komórek.
- Policz liczbę komórek za pomocą mikroskopu świetlnego lub licznika komórek.
- Oblicz gęstość komórek jako średnią liczbę żywych komórek na mililitr.
- Wykonaj obliczenia dla potrzebnych rozcieńczeń:
Liczba potrzebnych studzienek x 10000-15000 komórek = całkowita liczba potrzebnych komórek.
Liczba potrzebnych studzienek x 80 μL = całkowita objętość potrzebnych zawieszonych komórek. - Nałożyć 80 μl komórek do niezbędnych studzienek 96-dołkowej płytki mikrokultury strumienia zewnątrzkomórkowego.
- Pozostaw studzienki narożne całkowicie pozbawione jakichkolwiek komórek lub pożywek. Studnie te będą wykorzystywane do pomiarów tła.
- Inkubować komórki w nawilżanym inkubatorze o temperaturze 37 °C z 5% CO2 przez noc, aby umożliwić komórkom przyleganie i równowagę na płytce mikrokultury strumienia zewnątrzkomórkowego.
- Traktuj komórki MH-S na 96-dołkowej płytce mikrokultury strumienia zewnątrzkomórkowego przez 72 godziny, wykonując krok 1.
- Co najmniej 4 godziny i do 24 godzin przed uruchomieniem eksperymentu z bioanalizatorem strumienia zewnątrzkomórkowego należy nawodnić 96-dołkowy wkład z płynem zewnątrzkomórkowym.
- Usuń górną część pakietu strumienia zewnątrzkomórkowego i umieść sondowaną część pakietu strumienia ekranem do góry na stole. Nanieść 200 μl roztworu kalibru strumienia zewnątrzkomórkowego do każdej studzienki w dolnej części wkładu z przepływem zewnątrzkomórkowym.
- Złóż skrawki razem i owiń wkład zewnątrzkomórkowy flux pak w parafilm. Umieść go w inkubatorze z nawilżonym dodatkiemCO2 o temperaturze 37 °C lub kąpieli perełkowej o temperaturze 37 °C.
- Włącz komputer zawierający projekt testu i otwórz uruchomione/analityczne oprogramowanie dołączone do instrumentu do bioanalizatora strumienia zewnątrzkomórkowego, aby umożliwić mu rozgrzanie się co najmniej 4 godziny przed wykonaniem eksperymentu.
3. Wykorzystanie bioanalizatora strumienia zewnątrzkomórkowego do oceny glutaminy jako źródła paliwa do oddychania mitochondrialnego w komórkach MH-S
UWAGA: Ogólny przegląd tej procedury jest pokazany w Rysunek 1.
- Sprawdź hodowane komórki MH-S poddane działaniu Con- i EtOH pod mikroskopem świetlnym i upewnij się, że komórki są zdrowe i przylegają do studzienek w monowarstwie. Upewnij się, że komórki są co najmniej w 70% zlewające się (90% zbieżności jest idealne), aby niezawodnie wykonać test.
- Przygotuj pożywkę bazową strumienia zewnątrzkomórkowego z następującymi dodatkami:
- Podwielokrotność 35 ml pożywki bazowej strumienia zewnątrzkomórkowego do probówki o pojemności 50 ml.
- Dodaj 350 μl 100 mM pirogronianu sodu (1 mM stężenie końcowe), 350 μL D-glukozy (10 mM stężenie końcowe) i 350 μL GlutaMAX, który jest bardziej stabilny na półce w porównaniu z L-glutaminą (2 mM stężenie końcowe).
UWAGA: W tym samym stężeniu można również stosować świeżą L-glutaminę. - Podgrzać roztwór do temperatury 37 °C i upewnić się, że pH wynosi 7,4 ± 0,05 w temperaturze 37 °C.
- Delikatnie odessać pożywkę wzrostową z zewnątrzkomórkowej płytki mikrokultury. Pozostaw jak najmniej pożywki bez zasysania komórek od dołu. Przemyć jednorazowo maksymalnie 50 μl pożywki bazowej uzupełnionej topnikiem zewnątrzkomórkowym.
- Dodać 180 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym do każdej studzienki i inkubować płytkę mikrokultury zewnątrzkomórkowej w inkubatorze z wilgotnością 37 °C bez zawartości CO2 przez 30 minut do 1 godziny, aby umożliwić równowagę.
- Rozpuść odczynniki do testu utleniania glutaminy:
- Do probówki BPTES dodać 700 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym, aby uzyskać roztwór podstawowy o stężeniu 120 mM. Pipetuj w górę i w dół 10 razy, aby prawidłowo rozpuścić związek.
UWAGA: BPTES powoduje podrażnienie skóry i oczu oraz może powodować podrażnienie dróg oddechowych. Podczas obsługi należy nosić rękawice ochronne, ochronę oczu i ochronę twarzy. Zawartość i pojemniki należy usunąć do zatwierdzonego zakładu utylizacji odpadów. - Do probówki z oligomycyną dodać 630 μl pożywki zasadowej uzupełnionej strumieniem zewnątrzkomórkowym, aby uzyskać roztwór podstawowy o stężeniu 100 mM. Pipetuj w górę i w dół 10 razy, aby prawidłowo rozpuścić związek.
- Do probówki FCCP dodać 720 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym, aby uzyskać 100 mM roztwór podstawowy. Pipetuj w górę i w dół 10 razy, aby prawidłowo rozpuścić związek.
UWAGA: FCCP jest szkodliwy w przypadku połknięcia, powoduje poważne oparzenia skóry i uszkodzenie oczu, może powodować reakcję alergiczną skóry i może powodować długotrwałe szkodliwe skutki dla organizmów wodnych. Podczas obsługi należy nosić rękawice ochronne, odzież ochronną, ochronę oczu i ochronę twarzy. Zawartość i pojemniki należy usunąć do zatwierdzonego zakładu utylizacji odpadów. - Do probówki R/A dodać 540 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym, aby uzyskać roztwór podstawowy o stężeniu 50 mM. Pipetuj w górę i w dół 10 razy, aby prawidłowo rozpuścić związek.
UWAGA: Rotenon jest śmiertelny w przypadku połknięcia lub wdychania, powoduje podrażnienie skóry, powoduje poważne podrażnienie oczu, może powodować podrażnienie dróg oddechowych i jest bardzo toksyczny dla organizmów wodnych, powodując długotrwałe skutki. Nosić rękawice ochronne, ochronę oczu, ochronę twarzy i ochronę dróg oddechowych. Zawartość i pojemniki należy usunąć do zatwierdzonego zakładu utylizacji odpadów. Antymycyna A jest śmiertelna w przypadku połknięcia i jest bardzo toksyczna dla organizmów wodnych, powodując długotrwałe skutki. Zawartość i pojemniki należy usunąć do zatwierdzonego zakładu utylizacji odpadów.
- Do probówki BPTES dodać 700 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym, aby uzyskać roztwór podstawowy o stężeniu 120 mM. Pipetuj w górę i w dół 10 razy, aby prawidłowo rozpuścić związek.
- Przygotować stężenia robocze odczynników do utleniania substratu i mitochondrialnych testów wysiłkowych:
- W przypadku BPTES zmieszaj 1 500 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym z 500 μl 120 mM roztworu podstawowego BPTES, aby uzyskać roztwór roboczy 30 μM BPTES.
- W przypadku oligomycyny zmieszać 2,520 μl pożywki zasadowej uzupełnionej strumieniem zewnątrzkomórkowym z 480 μl 100 mM oligomycyny, aby uzyskać 16 mM oligomycyny roztwór roboczy.
- W przypadku FCCP zmieszaj 2,865 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym ze 135 μl 100 mM FCCP, aby uzyskać roztwór roboczy FCCP o stężeniu 4,5 mM.
- W przypadku R/A zmieszać 2,700 μl pożywki bazowej uzupełnionej strumieniem zewnątrzkomórkowym z 300 μl 50 mM R/A, aby uzyskać roztwór roboczy o stężeniu 5 mM R/A.
- Załaduj porty górnej części wkładu zewnątrzkomórkowego flux pak za pomocą następujących elementów:
- Załaduj do studzienek kontrolnych tła i pożywki kontrolnej 20 μl pożywki zasadowej uzupełnionej strumieniem zewnątrzkomórkowym do portu A, 22 μl oligomycyny do portu B, 25 μl FCCP do portu C i 27 μl R/A do portu D.
- Załadować do studzienek zawierających komórki 20 μl pożywki kontrolnej lub BPTES do portu A (stężenie końcowe 3 μM dla BPTES), 22 μl oligomycyny do portu B (stężenie końcowe 2 μM dla oligomycyny), 25 μL FCCP do portu C (stężenie końcowe 0,5 μM dla FCCP), i 27 μl R/A (końcowe stężenie 0,5 μM dla R/A) do portu D.
- Przeprowadzić eksperyment z bioanalizatorem strumienia zewnątrzkomórkowego przy użyciu oprogramowania komputerowego do projektowania i analizy testów, który jest dołączony do instrumentu, przy użyciu następującego czasu i strategii wstrzykiwania:
- W przypadku iniekcji z portem A dla BPTES należy ustawić liczbę pomiarów na 6. Ustaw czas mieszania na 3 minuty, z czasem oczekiwania 0 minut i 3 minutami pomiaru.
- W przypadku wstrzyknięcia z portem B dla oligomycyny należy ustawić liczbę pomiarów na 3. Ustaw czas mieszania na 3 minuty, z czasem oczekiwania 0 minut i 3 minutami pomiaru.
- W przypadku iniekcji z portem C dla FCCP ustaw liczbę pomiarów na 3. Ustaw czas mieszania na 3 minuty, z 6-minutowym czasem oczekiwania i 3-minutowym czasem pomiaru.
- W przypadku iniekcji z portem D dla R/A należy ustawić liczbę pomiarów na 3. Ustaw czas mieszania na 3 minuty, z czasem oczekiwania 0 minut i 3 minutami pomiaru.
- Przejrzyj wszystkie zestawy tła, kontrolki multimediów i eksperymentalne studnie grupowe. Zapisz i uruchom test. Najpierw załaduj pakiet strumienia zewnątrzkomórkowego zastrzykami A-D. Kalibracja będzie następować, dopóki płytka ogniwa nie będzie gotowa do załadowania.
- Usuń płytkę komórkową natychmiast po zakończeniu testu. Zapisz wyniki, aby przeanalizować je później na innym urządzeniu.
- Sprawdź, czy komórki są nadal przylegające za pomocą mikroskopu świetlnego. Przemyć 1x solą fizjologiczną buforowaną fosforanami i lizować komórki preferowanym buforem do lizy komórek. Przechowywać w temperaturze -80 °C lub natychmiast oznaczyć stężenie białka.
4. Analiza wyników w celu oceny glutaminy jako źródła paliwa do oddychania mitochondrialnego w komórkach MH-S
- Wyodrębnij białko z komórek w każdym dołku, aby znormalizować dane dotyczące wskaźnika zużycia tlenu (OCR) do białka:
- Obliczyć stężenie (nanogramy/mikrolitr [ng/μl]) białka na studzienkę.
- Obliczyć średnie stężenie białka (ng/μl) dla całej płytki mikrokultury strumienia zewnątrzkomórkowego.
- Podziel stężenie białka w każdym dołku przez średnie stężenie białka na płytce, aby uzyskać współczynnik normalizacji.
- Zastosuj współczynnik normalizacji do pliku danych będącego przedmiotem zainteresowania za pomocą oprogramowania komputerowego do projektowania i analizy testu.
- Upewnij się, że wartości OCR wszystkich studzienek tła są bliskie 0.
- Usuń zaznaczenie wszystkich dołków komórek, w których OCR wynosi < 10 na linii bazowej. Dane nie zostaną usunięte, ale w wyeksportowanym pliku danych pojawią się podświetlone dołki.
- Eksportuj dane z programu komputerowego do projektowania i analizy testów do komputerowego arkusza kalkulacyjnego.
- Otwórz plik w komputerowym programie arkusza kalkulacyjnego i posortuj wszystkie dane, zmniejszając wartości OCR. Usuń studzienki tła, studzienki, które zostały wcześniej odznaczone (i nie zostały usunięte), wszelkie studzienki o niskiej żywotności komórek, studzienki o niskiej konfluencji komórek, studzienki bez pełnego ukończenia strategii wstrzykiwania, studzienki z niedokładnymi odczytami stężenia białka, studzienki z wyjściowym OCR < 10 i wszelkie inne z góry określone kryteria.
- Posortuj wszystkie pozostałe dane według pomiaru, następnie według grupy, a następnie według OCR.
- Uśrednić techniczne powtórzenia każdego biologicznego N niezależnie za pomocą pomiaru. Upewnij się, że istnieje co najmniej 18 różnych wartości (3 na poziomie podstawowym, 3 po pożywce/BPTES, 3 po oligomycynie, 3 po FCCP i 6 po rotenonie/antymycynie A) na grupę eksperymentalną na biologiczny N po uśrednieniu kontrprób technicznych. Należy to zrobić osobno dla każdego biologicznego N, aby odchylenie standardowe lub błąd standardowy średniej można było obliczyć później dla analizowanych danych.
- Skopiuj wszystkie uśrednione wartości do nowego arkusza kalkulacyjnego, rozdzielając je grupami eksperymentalnymi.
- Uśrednić wartości OCR według strategii iniekcji w każdej grupie eksperymentalnej.
- Obliczać parametry bioenergetyki mitochondrialnej na podstawie zużycia tlenu:
- Oblicz oddychanie podstawowe:
- Oblicz podstawowe oddychanie mitochondrialne w następujący sposób:
Podstawowe oddychanie mitochondrialne (zużyty pmol O2) = ([Pomiary AVG OCR #1, 2, 3 - Pomiary AVG OCR #16, 17, 18] x [Czas #3 - Czas #1])
UWAGA: Oddychanie podstawowe powinno być podobne w grupach kontrolnych i BPTES, ponieważ ma to miejsce przed wstrzyknięciem inhibitora. - Oblicz podstawowe oddychanie mitochondrialne niezależne od glutaminy w następujący sposób:
Podstawowe oddychanie mitochondrialne niezależne: glutamina (spożyty pmolO2) = ([Pomiary AVG OCR #4, 5, 6, 7, 8, 9 - Pomiary AVG OCR #16, 17, 18] x [Czas #9 - Czas #4])
UWAGA: Podstawowe oddychanie mitochondrialne niezależne od glutaminy powinno być mniejsze niż podstawowe oddychanie mitochondrialne, chyba że komórki nie są silnie zależne od glutaminy. - Oblicz podstawowe oddychanie mitochondrialne zależne od glutaminy w następujący sposób:
Podstawowe oddychanie mitochondrialne zależne od glutaminy (zużyty pmolO2) = ([Pomiary AVG OCR #1, 2, 3 - Pomiary AVG OCR #4, 5, 6, 7, 8, 9] x [Czas #9 - Czas #4])
UWAGA: Całkowite podstawowe oddychanie mitochondrialne nie powinno być odejmowane od podstawowego oddychania mitochondrialnego i nie powinno być zależne od glutaminy, ponieważ są one obliczane w różnych punktach czasowych.
- Oblicz podstawowe oddychanie mitochondrialne w następujący sposób:
- Oblicz oddychanie związane z ATP w następujący sposób:
- Oblicz całkowite mitochondrialne oddychanie sprzężone z ATP ze wszystkich paliw w następujący sposób:
Całkowite mitochondrialne oddychanie związane z ATP ze wszystkich paliw (zużyty pmolO2) = ([Pomiary AVG OCR #1, 2, 3 - Pomiary AVG OCR #10, 11, 12] x [Czas #12 - Czas #10])
UWAGA: Średni OCR dla pomiarów #10, 11 i 12 powinien być podobny między grupami kontrolnymi pożywek i BPTES, ponieważ oligomycyna powinna silnie hamować syntazę ATP, a hamowanie jednego szlaku paliwowego nie powinno zmieniać całkowitego oddychania związanego z ATP. - Oblicz oddychanie mitochondrialne związane z ATP, które nie jest zależne od glutaminy, w następujący sposób:
Oddychanie mitochondrialne związane z ATP niezależne od glutaminy (spożyty pmolO2) = ([Pomiary AVG OCR #4, 5, 6, 7, 8, 9 - Pomiary AVG OCR #10, 11, 12] x [Czas #12 - Czas #10])
UWAGA: Oddychanie mitochondrialne związane z ATP, które nie jest zależne od glutaminy, powinno być mniejsze niż oddychanie mitochondrialne połączone z ATP, chyba że komórki nie są silnie zależne od glutaminy. - Oblicz oddychanie mitochondrialne związane z ATP zależne od glutaminy w następujący sposób:
Oddychanie mitochondrialne związane z ATP zależne od glutaminy (zużyty pmolO2) = całkowite oddychanie mitochondrialne związane z ATP ze wszystkich paliw - Oddychanie mitochondrialne związane z ATP niezależne od glutaminy
- Oblicz całkowite mitochondrialne oddychanie sprzężone z ATP ze wszystkich paliw w następujący sposób:
- Oblicz maksymalne oddychanie w następujący sposób:
- Oblicz całkowite maksymalne oddychanie mitochondrialne w następujący sposób:
Całkowite maksymalne oddychanie mitochondrialne (zużyty pmol O2) = ([Pomiary AVG OCR #13, 14, 15 - Pomiary AVG OCR #16, 17, 18] x [Czas #15 - Czas #13]) - Oblicz maksymalne oddychanie mitochondrialne niezależne od glutaminy w następujący sposób:
Maksymalne oddychanie mitochondrialne niezależne od glutaminy (zużyty pmolO2) = ([Pomiary AVG OCR #13, 14, 15 grup BPTES - Pomiary AVG OCR #16, 17, 18 grup BPTES] x [Czas #15 - #Time 13]) - Oblicz maksymalne oddychanie mitochondrialne zależne od glutaminy w następujący sposób:
Maksymalne oddychanie mitochondrialne zależne od glutaminy (zużyty pmolO2) = Całkowite maksymalne oddychanie mitochondrialne ze wszystkich paliw - Maksymalne oddychanie mitochondrialne niezależne od glutaminy
UWAGA: Obliczenia te można wykorzystać do określenia zależności komórek od wolnej pojemności glutaminy w porównaniu z innymi paliwami. Im większe maksymalne oddychanie mitochondrialne, tym większa zależność od glutaminy, co można wyrazić jako grupy BPTES - grupy kontrolne wykazujące ubytek w maksymalnym oddychaniu mitochondrialnym lub jako procent całkowitego oddychania.
- Oblicz całkowite maksymalne oddychanie mitochondrialne w następujący sposób:
- Oblicz wolną wydolność oddechową w następujący sposób:
- Oblicz całkowitą wolną pojemność oddechową w następujący sposób:
Całkowita zapasowa pojemność oddechowa (zużyty pmolO2) = ([Pomiary AVG OCR #13, 14, 15 - Pomiary AVG OCR #1, 2, 3] x [Czas #15 - Czas #13]) - Oblicz wolną wydolność oddechową niezależną od glutaminy w następujący sposób:
Wolna pojemność oddechowa niezależna od glutaminy (spożyty pmolO2) = ([Pomiary AVG OCR #13, 14, 15 grup BPTES - Pomiary AVG OCR #1, 2, 3 grup BPTES] x [Czas #15 - Czas #13]) - Oblicz wolną pojemność oddechową zależną od glutaminy w następujący sposób:
Wolna pojemność oddechowa zależna od glutaminy (zużyty pmolO2) = Całkowita wolna pojemność oddechowa ze wszystkich paliw - Wolna pojemność oddechowa niezależna od glutaminy
UWAGA: To obliczenie przedstawia elastyczność komórek zależnych od glutaminy i czy mogą osiągnąć lepsze oddychanie bez glutaminy, gdy jest to potrzebne.
- Oblicz całkowitą wolną pojemność oddechową w następujący sposób:
- Oblicz oddychanie podstawowe:
- Odejmij kontrole pożywek według grup inhibitorów i w razie potrzeby znormalizuj pmol O2 spożywany w stosunku do grupy kontrolnej.
- Twórz wykresy profili bioenergetycznych OCR (pmol O2/min), oddychania podstawowego (pmol O2), oddychania sprzężonego z ATP (pmol O2), maksymalnego oddychania (pmol O2) i wolnej pojemności oddechowej (pmol O2) zależnej od glutaminy.
- Przedstaw wartości bioenergetycznych punktów końcowych mitochondriów na wykresach słupkowych lub wyraź je jako średnie grup inhibitorów w stosunku do grup kontrolnych pożywki. Jeśli każde biologiczne N jest obliczane oddzielnie, należy obliczyć odchylenie standardowe lub błąd standardowy średniej dla analizowanych danych dla wszystkich biologicznych N .
5. Analiza statystyczna
- Wykonuj wszystkie analizy statystyczne za pomocą odpowiedniego oprogramowania do analizy danych.
- Dla punktów liniowych profili bioenergetycznych OCR należy przeprowadzić dwukierunkową ANOVA, a następnie analizy post hoc Tukeya, aby porównać dane z tych czterech grup eksperymentalnych z dwoma czynnikami (strategia leczenia i wstrzykiwania): Con + media, Con + BPTES, pożywki EtOH + i EtOH + BPTES.
- W przypadku wykresów słupkowych oddychania podstawowego, oddychania sprzężonego z ATP, maksymalnego oddychania i wolnej pojemności oddechowej zależnej od glutaminy, przeprowadź analizy testu t Studenta, aby porównać dane z dwóch grup eksperymentalnych, Con + BPTES i EtOH + BPTES.
- Przedstaw dane jako średnią ± błędu standardowego średniej (SEM). Rozważmy, że p < 0,05 jest statystycznie istotne.
Wyniki
Przewlekła ekspozycja na EtOH zmniejsza zależność komórek MH-S od glutaminy.
Glutaminoliza jest kluczowym szlakiem oddychania mitochondrialnego, w którym glutamina służy jako istotne źródło paliwa dla bioenergetyki komórkowej. Aby określić, czy przewlekła ekspozycja na EtOH zmienia zależność komórek MH-S od glutaminy jako źródła paliwa dla oddychania mitochondrialnego, komórki MH-S traktowano kontrolnie bez EtOH (Con) lub EtOH, a następnie mierzono OCR w czasie w odpowiedzi na seryjne iniekcje odczynników związanych z oddychaniem mitochondrialnym. Profile bioenergetyczne OCR w odpowiedzi na seryjne iniekcje oligomycyny (inhibitor syntazy ATP), FCCP (odsprzęgacz protonowy) oraz R/A (odpowiednio inhibitory kompleksu I i kompleksu III mitochondriów) są wykorzystywane do obliczenia innych parametrów bioenergetyki mitochondrialnej, takich jak oddychanie powiązane z ATP, oddychanie maksymalne i rezerwowa wydolność oddechowa. Wszystkie przedstawione dane stanowią dodatkowe powtórzenia biologiczne grup eksperymentalnych komórek MH-S Con + media, Con + BPTES oraz EtOH + media, EtOH + BPTES, które zostały opublikowane w pracy Crotty et al.11. Jak pokazano na Ryc. 2A, oligomycyna zmniejszyła OCR z powodu inhibicji kompleksu V, FCCP zwiększył OCR z powodu mitochondrialnego odsprzężenia potencjału błonowego i zależnej od mitochondriów generacji ATP12, a R/A skutecznie zahamował zależny od mitochondriów OCR. Przedstawione profile odpowiedzi bioenergetycznych OCR na seryjne iniekcje są zgodne z instrukcją oceny stresu mitochondrialnego przy użyciu analizatora przepływu zewnątrzkomórkowego13,14.
Po pomiarze bazowego OCR w komórkach MH-S traktowanych kontrolnie (Con) oraz EtOH, wstrzyknięto kontrolne medium lub BPTES, inhibitor glutaminazy 1. Między komórkami MH-S w grupach Con + medium a Con + BPTES oraz EtOH + medium a EtOH + BPTES nie stwierdzono różnic w bioenergetycznych profilach OCR (Rycina 2A). Komórki MH-S w grupie EtOH + BPTES wykazały spadek zależnej od glutaminy respiracji bazowej w porównaniu z grupą Con + BPTES (pomiar #4 w porównaniu z pomiarem #3 na Rycynie 2A i Rycynie 2B), co sugeruje, że EtOH zmniejsza bazowe utlenianie glutaminy w komórkach MH-S, które przyczynia się do respiracji mitochondrialnej. Komórki MH-S w grupie EtOH + BPTES wykazały utratę zależnej od glutaminy respiracji mitochondrialnej sprzężonej z produkcją ATP w porównaniu z grupą Con + BPTES (Rycina 2C). Chociaż komórki MH-S w grupie EtOH + BPTES wykazały mniejszy spadek zależnej od glutaminy respiracji maksymalnej w porównaniu z grupą Con + BPTES (Rycina 2D), to w grupie EtOH + BPTES odnotowano spadek zależnej od glutaminy zapasowej wydolności oddechowej w porównaniu z grupą Con + BPTES (Rycina 2E). Wyniki te sugerują, że komórki MH-S traktowane EtOH mają zdolność do większej zależności od glutaminy w procesach respiracji, na przykład podczas stresu wywołanego przez FCCP, jednak mogą być one niezdolne do realizacji tego procesu ze względu na to, że zwiększony popyt na glutaminę przewyższa jej biodostępność.
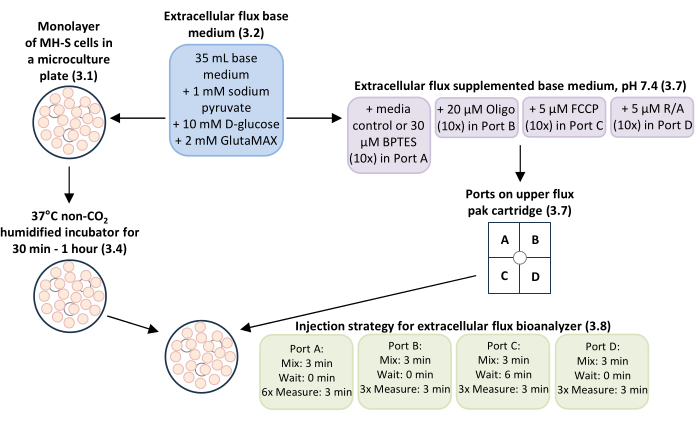
Rysunek 1: Ogólny przegląd schematu pomiaru mitochondrialnej respiracji i bioenergetyki zależnej od glutaminy w komórkach MH-S, linii makrofagów pęcherzykowych myszy. Monowarstwy komórek MH-S hodowanych w dołkach płytki do mikrokultur przepływu zewnątrzkomórkowego (krok 3.1) inkubowano w podstawowej pożywce do analizy przepływu zewnątrzkomórkowego z dodatkami (krok 3.2) w temperaturze 37°C w inkubatorze bezzwrotowym (bez CO2) z nawilżaniem przez 30 min-1 h (krok 3.4). Podstawową pożywkę do analizy przepływu zewnątrzkomórkowego z dodatkami (krok 3.2) zastosowano jako kontrolę pożywki oraz do rozcieńczenia stężeń roboczych inhibitora utleniania glutaminy BPTES do stężenia końcowego 3 µM, inhibitora kompleksu V mitochondriów oligomycyny (Oligo) do stężenia końcowego 0.5 µM, odsprzęgacza mitochondrialnego karbonylowego cyjanku p-trifluorometoksyfenylohydrazonu (FCCP) do stężenia końcowego 0.5 µM oraz inhibitorów kompleksu I i kompleksu III mitochondriów rotenonu/antmycyny A (R/A) do stężenia końcowego 0.5 µM w portach załadunkowych A-D w górnym kartridżu extracellular flux pak (krok 3.7). Strategia wstrzykiwania obejmująca czasy mieszania, oczekiwania i pomiaru dla serii eksperymentalnej z użyciem analizatora przepływu zewnątrzkomórkowego była następująca: 3 min mieszania, 0 min oczekiwania i 6 pomiarów po 3 min dla portu A (kontrola pożywki lub BPTES); 3 min mieszania, 0 min oczekiwania i 3 pomiary po 3 min dla portu B (Oligo); 3 min mieszania, 6 min oczekiwania i 3 pomiary po 3 min dla portu C (FCCP); oraz 3 min mieszania, 0 min oczekiwania i 3 pomiary po 3 min dla portu D (R/A). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
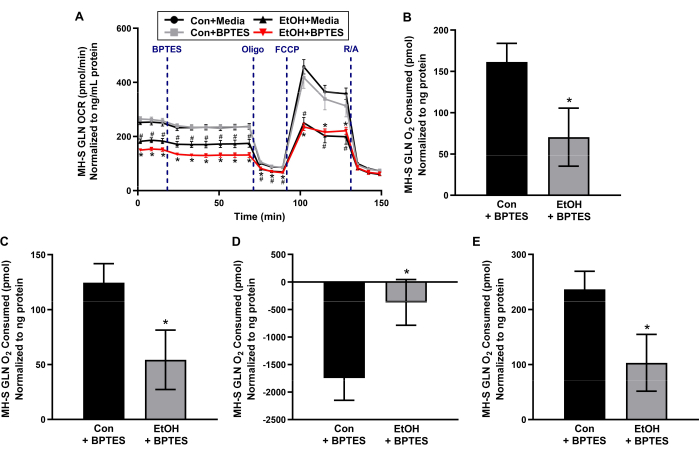
Rycina 2Przewlekłe podawanie etanolu (EtOH) obniża zależną od glutaminy respirację mitochondrialną w komórkach MH-S, linii komórkowej makrofagów pęcherzykowych myszy. Komórki MH-S pozostawiono nieleczone (Con) lub poddano działaniu EtOH (0,08%, 72 h), a następnie mierzono tempo zużycia tlenu (OCR) w czasie za pomocą bioanalizatora przepływu zewnątrzkomórkowego przed i po iniekcji kontrolnego medium lub inhibitora utleniania glutaminy (GLN) (3 µM BPTES), a następnie seryjnych iniekcji inhibitora kompleksu V mitochondriów (0.5 µM oligomycyny (Oligo), odsprzęgacza mitochondrialnego (0.5 µM cyjanurku karbonylowego p-trifluorometoksyfenylohydrazonu, FCCP), a także inhibitorów kompleksu I i kompleksu III mitochondriów (0.5 µM rotenonu/0.5 µM antymycyny A, R/A). (A) Profile bioenergetyczne OCR wykorzystano do obliczenia zależności od glutaminy (B) oddychanie podstawowe, (C) oddychanie powiązane z ATP, (D) maksymalne oddychanie oraz (E) rezerwowa zdolność oddechowa. Punkty liniowe reprezentują średnie ± SEM (n = 4, #p < 0,05 w porównaniu do Con + media oraz *p < 0,05 w porównaniu z grupą Con + BPTES, jednoczynnikowa analiza wariancji ANOVA z testem post hoc Tukeya). Słupki przedstawiają średnie ± SEM (n = 4, *p < 0,05 w porównaniu z Con + BPTES, test t Studenta t-test). Przedstawione dane stanowią dodatkowe powtórzenia biologiczne dla grup kontrolnych (medium) oraz grup eksperymentalnych traktowanych BPTES w przypadku nieleczonych komórek kontrolnych oraz komórek MH-S eksponowanych na przewlekłe działanie EtOH, które zostały opublikowane w pracy Crotty i wsp.11. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Dane przedstawione w niniejszym dokumencie są dodatkowymi kontrpróbami biologicznymi dla nieleczonych i przewlekle narażonych na EtOH komórek MH-S poddanych kontroli pożywki lub BPTES, które zostały opublikowane w Crotty et al.11. Opisany protokół służy do oceny zależności komórek MH-S narażonych na EtOH od glutaminy jako źródła paliwa do oddychania mitochondrialnego i bioenergetyki przy użyciu bioanalizatora strumienia zewnątrzkomórkowego. W protokole znajduje się kilka krytycznych kroków. Po pierwsze, ważne jest tworzenie i zbieganie się komórek MH-S. Komórki MH-S są początkowo hodowane w studzienkach mikrokultur strumienia zewnątrzkomórkowego przy niskiej konfluencji i stosowane, gdy komórki znajdują się w monowarstwie przy końcowej konfluencji 90%. Ponieważ ekspozycja komórek MH-S na EtOH trwała 72 godziny, końcowa konfluencja 90% została osiągnięta przed przebiegiem eksperymentalnym na bioanalizatorze strumienia zewnątrzkomórkowego. Jest to zgodne z innymi doniesieniami o tworzeniu się monowarstw komórkowych i 90%-100% konfluencji przed przeprowadzeniem tych eksperymentów 15,16,17. Po drugie, krytyczna jest normalizacja wartości oddychania mitochondriów do białka w każdej próbce. Niektóre badania normalizują bioenergetykę mitochondriów do liczby komórek 18,19,20. Jednak strategia seryjnego wstrzykiwania w tym teście ma na celu sekwencyjne obciążanie mitochondriów. W komórkach, które opierają się głównie na fosforylacji oksydacyjnej, takich jak AM, może to prowadzić do śmierci komórki podczas eksperymentu na bioanalizatorze strumienia zewnątrzkomórkowego. W związku z tym liczba komórek może nie być spójna od początku eksperymentu do końca przebiegu eksperymentalnego, a normalizacja wartości oddychania mitochondrialnego do białka jest optymalna21,22. W tym miejscu sugerowany jest współczynnik normalizacji białka wykorzystujący średnie białko we wszystkich dołkach w celu uzyskania dokładniejszych profili OCR specyficznych dla komórki. Po trzecie, kluczowe znaczenie ma analiza wyników dotyczących replik biologicznych. Czasami prezentowane są reprezentatywne obrazy mitochondrialnych profili bioenergetycznych22,23, a nie przeciętnego oddychania mitochondrialnego w wielu powtórzeniach biologicznych 10,11,24. Jednak te reprezentatywne obrazy nie dają pełnego obrazu różnic między eksperymentami. Obliczając każdą kontrpróbę biologiczną oddzielnie, błąd standardowy średniej może pokazać zmienność średnich wartości oddychania mitochondrialnego we wszystkich kontrpróbach biologicznych i być wykorzystany do obliczenia różnic statystycznych między mitochondrialnymi profilami bioenergetycznymi.
Przed przeprowadzeniem testu na bioanalizatorze strumienia zewnątrzkomórkowego należało określić optymalną gęstość komórek MH-S do hodowli na płytce mikrokultury strumienia zewnątrzkomórkowego w celu uzyskania monowarstwy komórek w każdym dołku. Ponieważ konieczne było również ustalenie odpowiednich stężeń Oligo i FCCP dla komórek MH-S, przeprowadzono badania różnych gęstości komórek MH-S z seryjnymi rozcieńczeniami Oligo i FCCP21,25. Początkowa hodowla 10 000-15 000 komórek MH-S spowodowała uzyskanie monowarstwy komórek o 90% zbiegu po 72 godzinach ekspozycji z EtOH10 i bez niego. Na podstawie tych eksperymentów optymalizacyjnych określono 2 μM Oligo i 0,5 μM FCCP jako minimalne stężenia tych odczynników, które spowodowały zmiany w oddychaniu mitochondrialnym10.
Pomiary oddychania mitochondrialnego w czasie rzeczywistym na początku badania i po leczeniu BPTES, inhibitorem glutaminazy 1, który zapobiega enzymatycznej konwersji glutaminy do glutaminianu, są wykorzystywane do określenia zależności od glutaminy w oddychaniu podstawowym w komórkach MH-S narażonych na Cons- i EtOH. Ograniczeniem danych przedstawionych w tym badaniu jest to, że nie zbadano roli krótko- i średniołańcuchowych kwasów tłuszczowych jako źródeł paliwa dla oddychania mitochondrialnego i bioenergetyki, oprócz glutaminy w komórkach MH-S narażonych na EtOH. Wyniki poprzedniego badania przeprowadzonego przez Crotty'ego i wsp.11 sugerowały, że komórki EtOH MH-S wykazywały przejście od oddychania zależnego od pirogronianu w kierunku oddychania zależnego od glutaminy bez pełnej kompensacji utraty całkowitego oddychania mitochondrialnego. Ponadto, przeprowadzając ten sam eksperyment z połączonym wstrzyknięciem UK5099 (inhibitor utleniania pirogronianu) i etomosiru (inhibitor utleniania długołańcuchowych kwasów tłuszczowych), można określić udział glutaminy przy braku zarówno pirogronianu, jak i kwasów tłuszczowych jako źródeł paliwa dla oddychania mitochondrialnego w komórkach MH-S narażonych na działanie EtOH.
Oddychanie mitochondrialne jest mierzone za pomocą elektrody Clarka od prawie siedemdziesięciu lat26, a istnieją również testy fluorescencyjne na płytkach do pomiaru oddychania mitochondrialnego27. Metody te są jednak znacznie bardziej czasochłonne i/lub brakuje im czułości pomiarów, które można uzyskać za pomocą bioanalizatora strumienia zewnątrzkomórkowego. Zaletą stosowania bioanalizatora strumienia zewnątrzkomórkowego do oceny glutaminy jako źródła paliwa dla oddychania mitochondrialnego i bioenergetyki jest to, że eksperymenty z wieloma kontrpróbami biologicznymi mogą być prowadzone w tym samym czasie. Dodatkowo, bioanalizator strumienia zewnątrzkomórkowego pozwala na elastyczność eksperymentowania na izolowanych mitochondriach lub nienaruszonych komórkach. W przypadku komórek, które nie mają wysokiego stężenia mitochondriów, takich jak komórki mięśni gładkich tętnicy płucnej, wyizolowanie wystarczającej liczby mitochondriów z ograniczonych próbek jest trudne. Za pomocą bioanalizatora strumienia zewnątrzkomórkowego można zmierzyć oddychanie mitochondrialne w nienaruszonych komórkach mięśni gładkich tętnicy płucnej28 lub pierwotnych mysich AM10,11. Protokół zastosowany w tym badaniu może być wykorzystany do oceny glutaminy jako źródła paliwa dla oddychania mitochondrialnego i bioenergetyki innych próbek o ograniczonej wielkości próby, takich jak pierwotne ludzkie AM. Wcześniej wykazaliśmy, że stres oksydacyjny i zaburzenia wywołane przez EtOH pochodzenia mitochondrialnego w komórkach MH-S wykazują podobny profil dysregulacji mitochondrialnej w pierwotnych myszach AM i ludzkich AM 6,7,11,28,29,30. Podsumowując, badania przemawiają za stosowaniem tej metody oceny glutaminy jako źródła paliwa dla oddychania mitochondrialnego i bioenergetyki w AM w stanach patologicznych, które charakteryzują się stresem oksydacyjnym pochodzącym z mitochondriów.
Oświadczenia
Wszyscy autorzy nie mają do zgłoszenia żadnych istotnych finansowych konfliktów interesów.
Podziękowania
Doceniamy wkład Sarah S. Chang, BS, w początkową hodowlę komórkową i przygotowanie komórek MH-S do eksperymentów. Prace te były wspierane przez NIAAA R01-AA026086 do SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 do KMC oraz NIGMS T32-GM008602 do Randy'ego Halla, Wydziału Farmakologii i Biologii Chemicznej, Emory University. Treść niniejszego raportu nie odzwierciedla poglądów Departamentu ds. Weteranów ani rządu Stanów Zjednoczonych.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Rurka stożkowa 15 ml | VWR International, Inc. | 21008-670 | Służy do przygotowywania podstawowych stężeń odczynników związanych z mitochondriami. |
| 2-merkaptoetanol | Sigma Aldrich Co. | M6250 | Służy do hodowli komórek MH-S. |
| Skrobak do komórek | Dot Scientific, Inc. | 70-1180 | Służy do skrobania ogniw MH-S z kolb T-75. |
| Countess 3 FL Instrument: licznik komórek | Fisher Scientific Company | AMQAF2000 | Służy do liczenia liczby komórek MH-S do płytki do eksperymentów. |
| D-glukoza | Sigma Aldrich Co. | G8270 | Używany do ośrodka bazowego strumienia zewnątrzkomórkowego. |
| Ethanol | Fisher Scientific Company | 4355720 | Eksperymentalne leczenie komórek MH-S. |
| Surowica bydlęca | płodu Sciencell Research Laboratories | 500 | Służy do hodowli komórek MH-S. |
| Gentamycyna | Sigma Aldrich Co. | G1397 | Służy do hodowli komórek MH-S. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | Stosowany do podłoża bazowego strumienia zewnątrzkomórkowego. |
| GraphPad Prism 10.2.3 | GraphPad Software | N/A | Oprogramowanie do analizy statystycznej. Do pobrania po zakupie na https://www.graphpad.com/features. |
| Komórki MH-S | Kolekcja kultur typu amerykańskiego | CRL-2019 | Linia komórkowa makrofagów pęcherzykowych myszy. |
| Probówka do mikrowirówek | Stany Zjednoczone Naukowe, Inc. | 4036-3212 | Służy do przygotowywania stężeń roboczych odczynników związanych z mitochondriami. |
| Microsoft 365 Excel: komputerowy arkusz kalkulacyjny | Microsoft | N/A | Software do organizacji danych i obliczeń bioenergetyki mitochondrialnej. Do pobrania po zakupie na https://www.microsoft.com/en-us/microsoft-365/excel. |
| Penicylina/streptomycyna | Fisher Scientific Company | 15140122 | Służy do hodowli komórek MH-S. |
| Sól fizjologiczna buforowana fosforanami | VWR International, Inc. | 45000-446 | Służy do mycia ogniw MH-S. |
| RPMI-1640 | VWR International, Inc. | 45000-396 | Służy do hodowli komórek MH-S. |
| Oprogramowanie Seahorse Wave Pro: oprogramowanie komputerowe do projektowania i analizy testów | firmy Agilent Technologies, Inc. | Nie dotyczy | Komputer jest podłączony do urządzenia Seahorse XF Pro Analyzer. Do pobrania z https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| Seahorse XF Base Medium: podłoże bazowe strumienia zewnątrzkomórkowego, pH 7,4 | Agilent Technologies, Inc. | 103334-100 | Służy do przygotowywania stężeń podstawowych i roboczych odczynników związanych z mitochondriami oraz hodowli komórek MH-S przed seriami doświadczalnymi. |
| Seahorse XF Zestaw do testów warunków skrajnych związanych z utlenianiem glutaminy | Agilent Technologies, Inc. | 103674-100 | Zawiera zapas BPTES, oligomycynę, FCCP i rotenon/antymycynę A. |
| Seahorse XF Pro Analyzer: bioanalizator strumienia zewnątrzkomórkowego | Agilent Technologies, Inc. | Nie dotyczy | Bioanalizator strumienia zewnątrzkomórkowego. |
| Seahorse XFe96 FluxPak: 96-dołkowe wkłady z zewnątrzkomórkowym topnikiem, 96-dołkowe płytki do mikrohodowli strumienia zewnątrzkomórkowego i roztwór kalibru | Agilent Technologies, Inc. | 102416-100 | Służy do przygotowania komórek MH-S do testów przy użyciu bioanalizatora strumienia zewnątrzkomórkowego. |
| Pipipeta serologiczna | Santa Cruz Biotechnology, Inc. | sc-550678 | Służy do usuwania mediów z ogniw MH-S. |
| Wodorowęglan sodu | Sigma Aldrich Co. | S6014 | Służy do hodowli komórek MH-S. |
| Pirogronian sodu | Sigma Aldrich Co. | P4562 | Używany do pożywki bazowej strumienia zewnątrzkomórkowego. |
| Kolby T-75 | Santa Cruz Biotechnology, Inc. | sc-200263 | Służy do hodowli komórek MH-S. |
Bibliografia
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
Przedruki i uprawnienia
