Ten protokół zapewnia ustandaryzowane podejście do obrazowania morfologii mitochondriów w wielu tkankach C. elegans podczas starzenia.
Artykuł metodologiczny
Obrazowanie i ilościowe określanie morfologii mitochondriów u C. elegans podczas starzenia
W tym artykule
Podsumowanie
Streszczenie
Mitochondria, ważne organelle komórkowe znajdujące się w większości komórek eukariotycznych, są głównymi miejscami produkcji energii poprzez oddychanie tlenowe. Poza tą dobrze znaną rolą "komórkowej elektrowni", mitochondria są również zaangażowane w wiele innych istotnych procesów komórkowych, w tym w regulację metabolizmu komórkowego, proliferację, sygnalizację immunologiczną i sygnalizację hormonalną. Pogorszenie funkcji mitochondriów podczas starzenia się lub pod wpływem stresu mitochondrialnego często charakteryzuje się wyraźnymi zmianami w morfologii i objętości mitochondriów. Nicień C. elegans jest idealnym modelem do badania tych zmian ze względu na swoje przezroczyste ciało i krótką żywotność, które ułatwiają mikroskopię na żywo przez cały okres jego życia. Jednak nawet w obrębie C. elegans dostępnych jest wiele transgenicznych konstruktów i metod obrazowania mitochondriów, z których każda ma swoje własne ograniczenia. W tym przypadku jednokopijne, zlokalizowane w macierzy konstrukty GFP są prezentowane jako solidna i niezawodna metoda obrazowania morfologii mitochondriów u C. elegans. Badanie to koncentruje się w szczególności na czynnikach kontrolowanych eksperymentalnie w celu zminimalizowania błędów i zmniejszenia zmienności między powtórzeniami i między badaniami podczas wykonywania obrazowania mitochondriów podczas procesu starzenia. Ponadto mitoMAPR jest zalecany jako solidna metoda ilościowego określania zmian w morfologii mitochondriów w różnych typach tkanek podczas starzenia.
Wprowadzenie
Mitochondria to organelle komórkowe otoczone podwójną błoną fosfolipidową i odgrywają ważną rolę w utrzymaniu bioenergetyki komórkowej jako kluczowe miejsce dla metabolizmu i produkcji energii1. Duża liczba mitochondriów w sposób ciągły wytwarza energię w postaci ATP, aby zaspokoić zapotrzebowanie komórek2. Oprócz tych ważnych ról, mitochondria uczestniczą również w złożonych procesach komórkowych, takich jak transdukcja sygnału, autofagia, odporność wrodzona, cykl komórkowy i szlaki śmierci komórki2,3. Mitochondria wykazują różnorodną morfologię, od małych pojedynczych organelli po rozległe połączone ze sobą sieci rurkowe, w zależności od różnych wymagań energetycznych i zdrowia mitochondriów4.
Kluczową cechą mitochondriów jest ich dynamiczna natura, dzięki której mogą one przechodzić między różnymi formami poprzez ściśle skoordynowaną i ciągłą sekwencję zdarzeń rozszczepienia i fuzji4. Precyzyjna równowaga między tymi przeciwstawnymi procesami reguluje morfologię, liczbę, rozmiar i położenie mitochondriów w cytoplazmie5. Ponadto te procesy fuzji i rozszczepienia są ważne dla utrzymania kontroli jakości mitochondriów5. Na przykład, rozszczepienie mitochondriów jest niezbędnym elementem usuwania uszkodzonych mitochondriów poprzez mitofagię i selektywne usuwanie mitochondriów poprzez autofagię2. Dynamika mitochondriów odgrywa również ważną rolę w podziale komórek, rozwoju, odporności na różne czynniki stresogenne i utrzymaniu metabolizmu komórkowego6.
Zakłócenie dynamiki mitochondriów jest związane z wieloma chorobami, w tym zaburzeniami neurodegeneracyjnymi, chorobami metabolicznymi, chorobami układu krążenia i nowotworami4. Ponadto starzenie się wiąże się z dramatyczną przebudową mitochondriów, głównie z powodu zmian w dynamice fuzji i rozszczepienia7. Dlatego wizualizacja i monitorowanie zmian w morfologii mitochondriów w różnych warunkach stresowych lub chorobowych oraz w całym procesie starzenia się dostarcza cennych informacji na temat funkcji komórkowych, mechanizmu choroby i potencjalnych strategii terapeutycznych.
Podobnie jak wiele szlaków molekularnych, dynamika i funkcja mitochondriów są również wysoce konserwatywne u eukariontów, w tym w organizmach modelowych, takich jak nicienie Caenorhabditis elegans. Podobnie jak w komórkach ludzkich, fuzja mitochondrialna u C. elegans jest osiągana przez funkcję białek trifosfatazy guaninowej (GTPazy) związanych z dynaminą, w tym FZO-1 (ortolog ssaków Mfn1/2) i EAT-3 (ortolog ssaków Opa1), które kontrolują fuzję odpowiednio zewnętrznej błony mitochondrialnej (OMM) i wewnętrznej błony mitochondrialnej (IMM)8. Rozszczepienie mitochondriów jest regulowane przez białko związane z dynaminą (DRP-1, ortolog ludzkiego Drp1), które wspomaga rozszczepienie mitochondriów poprzez tworzenie pierścieniowych kompleksów wokół zewnętrznej błony mitochondrialnej, które zwężają i ostatecznie oddzielają błony mitochondrialne9. Fuzja mitochondriów odgrywa kluczową rolę w kontroli jakości mitochondriów, umożliwiając mieszanie zawartości mitochondriów, w tym mitochondrialnego DNA, białek i lipidów, umożliwiając uzupełnienie częściowo uszkodzonych mitochondriów zawartością ze zdrowych mitochondriów9. Z drugiej strony, rozszczepienie mitochondriów umożliwia mitochondriom podział, tworząc nowe mitochondria i ułatwiając ich dystrybucję nie tylko w cytoplazmie, ale także do komórek potomnych podczas podziału komórki, zapewniając prawidłowe dziedziczenie i funkcję mitochondriów9. Zdarzenie to jest również niezbędne do segregacji uszkodzonych lub dysfunkcyjnych segmentów mitochondriów, które następnie mogą być celem degradacji poprzez mitofagię9.
C. elegans od dawna uważany jest za jeden z najpotężniejszych systemów modeli genetycznych ze względu na kompletny genom i dostępność różnorodnych narzędzi genetycznych, w tym CRISPR/Cas9, który ułatwia modyfikacje genetyczne10, liczne metody nadekspresji genów oraz bakteryjna metoda interferencji RNA oparta na żywności (RNAi)11. Ponadto ich przezroczysta anatomia umożliwia obrazowanie mikroskopowe w żywych organizmach12. Wreszcie, ich stosunkowo krótka żywotność, niskie koszty utrzymania i łatwość produkcji dużej liczby zwierząt dopasowanych do wieku sprawiają, że są doskonałym systemem modelowym dla biologii starzenia się13. Korzyści te, w połączeniu ze znaną ochroną głównych mitochondrialnych szlaków regulacyjnych, sprawiają, że C. elegans jest bardzo atrakcyjnym systemem modelowym do badania dynamiki mitochondriów podczas starzenia.
Markery fluorescencyjne są szeroko stosowane w badaniach biologicznych do wizualizacji i badania składników komórkowych, w tym mitochondriów. Istnieją specyficzne barwniki przepuszczalne dla komórek, takie jak MitoTracker i ester etylowy tetrametylorodaminy (TMRE), które są powszechnie stosowane14. Pierwszy z nich służy do barwienia całej ujemnie naładowanej macierzy mitochondrialnej15, podczas gdy drugi służy do oceny względnego potencjału błony mitochondrialnej za pomocą dodatnio naładowanego jonu trifenylofosfoniowego16. Chociaż czerpią korzyści z tego, że nie wymagają transgeników, gruby naskórek robaków, który zmienia strukturę i przepuszczalność podczas starzenia, oraz zmienność infiltracji barwnika w różnych tkankach sprawiają, że podejścia oparte na barwnikach są trudne w C. elegans17. Co więcej, ocena morfologii mitochondriów jest zakłócona przez potencjalne efekty barwników poza celem, takie jak agregacja barwników17. Zamiast tego metody genetyczne do ekspresji fluoroforów zlokalizowanych w mitochondriach są powszechnie stosowane w modelu robaka.
Tutaj to badanie skupia się na podkreśleniu szczepów wyrażających zlokalizowany w macierzy mitochondrialnej GFP (odtąd określany jako MLS::GFP) pod promotorami specyficznymi dla typu komórki. Co ważne, te transgeniczne linie zostały stworzone przy użyciu metody MosSCI, aby zapewnić ekspresję reportera w jednej kopii w znanym locus genomowym, co pozwala uniknąć problemów z innymi dostępnymi szczepami. Na przykład ekspresja niektórych białek ukierunkowanych na mitochondria o wysokiej liczbie kopii prowadzi do zmienności poziomów ekspresji wynikającej z integracji pozachromosomalnych układów plazmidowych w losowy locus o nieznanym numerze kopii18. Ponadto wcześniej wykazano, że wywołują one uszkodzenia mitochondriów, ponieważ prawidłowe lokalizowanie nadekspresji białek mitochondrialnych stanowi duże obciążenie dla komórek19. Dlatego precyzyjna, stabilna i niska ekspresja genów oraz łatwość krzyżowania do znanych loci sprawiają, że te transgeniczne MosSCI są preferowaną metodą. Wykorzystując te szczepy, badanie to standaryzuje metody obrazowania mitochondriów w mięśniach, jelicie i tkance podskórnej C. elegans. Ponadto podkreślono ważne zastosowania techniczne i metody rozwiązywania problemów, które należy wziąć pod uwagę i zapewnić powtarzalną analizę eksperymentalną mitochondriów podczas starzenia się C. elegans.
Protokół
Szczegóły dotyczące odczynników i sprzętu użytego w tym badaniu znajdują się w Tabeli Materiałów.
1. Wzrost i utrzymanie C. elegans
- Przygotowanie pożywek do hodowli nicieni (NGM)
- Do hodowli C. elegans należy użyć standardowych 2% płytek agarowych z NGM zawierających 1 mM CaCl2, 12,93 μM (5 μg/ml) cholesterolu, 25 mM KPO4 (pH 6,0), 1 mMMgSO4, 2,5 mM (0,25% w/v) peptonu i 51,3 mM NaCl. Zobacz szczegółową metodę nalewania płytek NGM opisaną w Castro Torres et al.20.
UWAGA: W przypadku eksperymentów z interferencją RNA (RNAi) dodaj 1 ml 1 M IPTG i 1 ml 100 mg / ml karbenicyliny na 1 l płytek agarowych NGM. - Po zestaleniu się płytek NGM hodować kulturę OP50 w bulionie lizogenicznym (LB) przez 24-48 godzin w temperaturze pokojowej lub hodować kulturę HT115 przenoszącą pusty plazmid wektorowy pL4440 w LB z antybiotykami (ampicylina/karbenicylina 100 μg/ml + tetracyklina 5 μg/ml) z wytrząsaniem w temperaturze 37 °C przez 12-16 h.
UWAGA: Ten plazmid jest dostępny ze źródeł komercyjnych (patrz tabela materiałów). - Wysiewać 200 μl kultury OP50 lub HT115 na płytkach 60 mm lub 1 ml na płytkach 100 mm.
- Wysuszyć płytki do momentu, gdy przestaną być mokre i przechowywać je w szczelnie zamkniętych pojemnikach w temperaturze 4 °C przez okres do 2 miesięcy.
- Opcjonalnie: Dodaj 100 μl 10 mg/ml 5-fluoro-2'-deoksyurydyny (FUDR) bezpośrednio na płytki agarowe NGM, które są wysiewane bakteriami, aby chemicznie sterylizować L4/dorosłe robaki i zapobiec rozwojowi młodszych robaków.
UWAGA: Szczepy opracowane i użyte w tym badaniu to:
(1) RHS191 - uthSi17[myo3p::MLS::GFP::unc-54 3'UTR::cb-unc-119(+)] I
(2) RHS192 - uthSi83[col19p:: MLS::GFP::unc-54 3'UTR::cb-unc-119(+)]I
(3) RHS193 - uthSi80[vha-6p:: MLS::GFP::unc-54 3'UTR::cb-unc-119(+)] IV
- Do hodowli C. elegans należy użyć standardowych 2% płytek agarowych z NGM zawierających 1 mM CaCl2, 12,93 μM (5 μg/ml) cholesterolu, 25 mM KPO4 (pH 6,0), 1 mMMgSO4, 2,5 mM (0,25% w/v) peptonu i 51,3 mM NaCl. Zobacz szczegółową metodę nalewania płytek NGM opisaną w Castro Torres et al.20.
- Synchronizacja C. elegans przez bielenie
- W przypadku testu na dużą skalę, który wymaga dużej liczby nicieni, pokrój 60-milimetrową płytkę z agarem NGM pełną zwierząt na małe kawałki i pokrój je na płytki o średnicy 100 mm, które są obsiane bakteriami w celu ekspansji. Odczekaj 2-3 dni, aż 100-milimetrowe płytki będą pełne robaków, gdy rosną w temperaturze 20 °C po rozdrobnieniu. Aby uzyskać bardziej szczegółowe zalecenia dotyczące zwierząt do rozbudowy, zapoznaj się z Castro Torres et al.20.
- Aby zebrać robaki do synchronizacji, wlej 5-10 ml roztworu M9 (22 mM KH2PO4 monobasic, 42,3 mM Na2HPO4, 85,6 mM NaCl, 1 mM MgSO4) na 100 mm płytki agarowe NGM z robakami i delikatnie zamieszaj roztwór M9, aby poluzować robaki z trawników bakteryjnych.
- Pobrać robaki za pomocą pipety serologicznej i przenieść je do stożkowych probówek o pojemności 15 ml.
UWAGA: Zalecane są szklane pipety serologiczne, ponieważ plastikowe pipety serologiczne mają tendencję do przyklejania się robaków do wewnętrznej ścianki plastikowych pipet. - Wirować przez 30 s przy 1 100 x g w temperaturze pokojowej w celu osadzenia robaków i zasysania supernatantu za pomocą pompy próżniowej.
- Przygotować 5 ml roztworu wybielającego zawierającego 1,5 ml 6% podchlorynu sodu, 0,75 ml 5 M NaOH lub KOH i 2,75 ml dH2O. Wlej 5 ml roztworu wybielającego do granulki robaka.
UWAGA: Na tym etapie zaleca się noszenie rękawic i fartucha laboratoryjnego, ponieważ roztwory podchlorynu sodu i wodorotlenku są. - Inkubować mieszaninę robaka + roztworu wybielającego przez ~ 4-6 minut, aż wszystkie ciała zwierząt całkowicie się rozpuszczą i pozostaną tylko jaja. Energicznie wstrząśnij mieszanką, aby wspomóc proces rozpuszczania.
UWAGA: Sprawdzaj robaki co minutę pod mikroskopem preparacyjnym. Skróć lub wydłuż czas bielenia w zależności od tego, jak bardzo rozpuszczone są ciała dorosłych robaków. Pozostawienie jaj w roztworze wybielającym przez dłuższy czas spowoduje uszkodzenie jaj i wpłynie na żywotność nicieni. - Odwirować mieszaninę jaj i roztworu wybielającego przez 30 s w temperaturze 1 100 x g w temperaturze pokojowej, aby ogrzać jaja, a następnie ostrożnie zassać supernatant za pomocą pompy próżniowej, uważając, aby nie zasysać osadu jajowego.
UWAGA: Zaleca się szybkie wykonanie mycia, aby zapobiec długotrwałemu narażeniu jaj na działanie roztworu wybielającego. - Umyj jajka 5-10 ml roztworu M9 4 razy.
- Zawiesić jaja w małej objętości roztworu M9 i umieścić je na płytkach NGM wysianych bakteriami, pipetując do 50 μl. Obliczyć przybliżone oszacowanie liczby jaj, odmierzając 3-5 μl mieszanki jajecznej na talerz i licząc liczbę jaj w tej objętości. Dodać M9, aby rozcieńczyć masę jajeczną do policzalnej liczby jaj w tej objętości.
UWAGA: Zaleca się posiewanie mniej niż 100 robaków na płytkę, ponieważ robaki mogą umrzeć z głodu przed 1. dniem dorosłości, gdy na platerowaniu jest zbyt wiele zwierząt. Aby uzyskać bardziej szczegółowe zalecenia dotyczące liczby poszycia zwierząt, zapoznaj się z Castro Torres et al.20. - Alternatywnie, L1-zatrzymaj nicienie w celu ściślejszej synchronizacji wieku. W celu zatrzymania L1 dodać odpowiednią objętość roztworu M9 do osadu jaj w stożkowej probówce o pojemności 15 ml do objętości 10-12 ml. Pozwól robakom wirować w rotatorze przez 16-24 godziny w temperaturze 20 °C. Odwirować (jak w kroku 1.2.7) i zassać supernatant. Obliczyć stężenie zwierząt L1 i umieścić je na płytkach NGM, jak opisano dla jaj w kroku 1.2.9.
- Starzenie populacji C. elegans do pożądanego wieku: Przenieść L4/dorosłe zwierzęta na płytki zawierające 5-fluoro-2'-deoksyurydynę (FUDR), jak opisano w kroku 1.1.6, aby zapobiec potomstwu i wyeliminować już wyprodukowane potomstwo. Alternatywne metody usuwania robaków bez użycia FUDR można znaleźć w Castro Torres et al.20.
UWAGA: Przed wyborem bielenia jako metody synchronizacji robaków w pierwszym stadium larwalnym należy wziąć pod uwagę kilka ważnych czynników. Jak podkreślono wcześniej, nadmierna ekspozycja na wybielacz może uszkodzić zarodki, zmniejszyć wskaźnik wylęgu i wytworzyć presję selekcyjną na szczepy odporne na wybielanie, potencjalnie zmieniając genetykę populacji. Ponadto, jeśli zarodki nie są karmione przez dłuższy czas, niedobór składników odżywczych może upośledzać metabolizm i rozwój. Dlatego metody składania jaj lub NemaSync mogą być stosowane jako alternatywa dla metod bielenia. Metoda procedury składania jaj została opisana krok po kroku w cytowanym badaniu przeprowadzonym przez Castro Torres et al.20. NemaSync to nowsza i droższa metoda komercyjna, w której ręczny synchronizator robaków jest używany do synchronizacji robaków bez użycia chemikaliów21.
2. Obrazowanie mitochondriów u C. elegans
- Przygotowanie preparatów do obrazowania C. elegans
- Dodać 10-20 μl roztworu M9 na szkiełka podstawowe i przenieść żądaną liczbę dorosłych robaków w określonym wieku do roztworu na szkiełku. Zalecanych jest około 25 robaków.
UWAGA: Stosowanie tradycyjnych metod paraliżowania robaków (np. tetraizolu lub azydku sodu) może w pewnych warunkach powodować fragmentację mitochondriów (patrz poniżej). Zamiast tego zaleca się tutaj stosowanie preparatów HistoBond, które mają powierzchnię ze stałym dodatnim ładunkiem powierzchniowym, co ograniczy ruch robaków bez użycia leków, które mogą wprowadzać artefakty. Ważne jest, aby zastosować odpowiedni stosunek robaków do roztworu M9, ponieważ małe objętości mogą spowodować zmiażdżenie zwierząt między szkiełkiem podstawowym a szkiełkiem nakrywkowym, podczas gdy duże objętości spowodują, że zwierzęta będą się poruszać podczas akwizycji obrazu. Zalecenia znajdują się w tabeli 1. - Alternatywnie, aby uzyskać informacje na temat stosowania leków paraliżujących robaki, zapoznaj się z reprezentatywnymi wynikami tego manuskryptu, aby zapoznać się z zakresem stężeń i punktów czasowych, które można zastosować przy ograniczonej fragmentacji mitochondriów.
UWAGA: Chociaż nie stwierdzono dużej fragmentacji u zdrowych, dzikich zwierząt, ważne jest, aby pamiętać, że niektóre mutanty lub stany mogą doświadczać fragmentacji mitochondriów przy tym samym stężeniu tych leków, dlatego wymagane są pewne testy podczas stosowania tych leków. - Przykryj robaki w roztworze M9 na szkiełku nakrywkowym i użyj lakieru do paznokci, aby uszczelnić boki i zapobiec parowaniu roztworu M9.
- Opcjonalnie: W celu obrazowania mięśni zwiń robaki, delikatnie popychając szkiełko nakrywkowe. Dzięki temu mięśnie ściany ciała po bokach robaków są lepiej wyrównane z płaszczyzną ogniskową w celu uzyskania obrazów o wyższej jakości.
- Dodać 10-20 μl roztworu M9 na szkiełka podstawowe i przenieść żądaną liczbę dorosłych robaków w określonym wieku do roztworu na szkiełku. Zalecanych jest około 25 robaków.
- Obrazowanie mitochondriów za pomocą mikroskopu złożonego
- Użyj standardowego mikroskopu szerokokątnego do badania mitochondriów mięśniowych i podskórnych (myo-3p::MLS::GFP i col-19p::MLS::GFP).
UWAGA: Użyto dostępnego na rynku imagera wyposażonego w obiektyw Plan Aprochromat 63x/1,4, filtr GFP (11525314), kamerę DFC9000 GT i źródło światła LED5 oraz kompatybilne oprogramowanie mikroskopowe. - Zoptymalizuj ustawienia obrazowania dla każdego mikroskopu i konfiguracji eksperymentalnej.
UWAGA: Jednak jako punkt wyjścia, parametry obrazowania za pomocą imagera użytego w tym manuskrypcie są następujące: Wymiary to 2048 (x) * 2048(y) pikseli o rozmiarze kroku 0,50 μm dla mitochondriów podskórnych i "zoptymalizowane pod kątem systemu" automatycznie obliczane przez oprogramowanie dla mitochondriów mięśniowych. Czas ekspozycji wynosi 50 ms dla mitochondriów mięśniowych i 50 ms dla mitochondriów podskórnych. Dioda LED 475 nm została ustawiona na 50% mocy, a filtr o neutralnej gęstości został ustawiony na 30% dla mitochondriów mięśniowych i 17% dla mitochondriów podskórnych. Zakres Z zaczyna się od miejsca, w którym sygnał GFP jest widoczny, do miejsca, w którym się kończy. Aby zminimalizować szum w projekcji maksymalnej, można zmniejszyć liczbę płaszczyzn z używanych do projekcji maksymalnej. - Do obrazowania mitochondriów jelitowych (vha-6p::MLS::GFP) należy użyć mikroskopu konfokalnego.
UWAGA: Obrazowanie wykonano na dostępnym na rynku mikroskopie konfokalnym wyposażonym w obiektyw 63x/1,4 Plan ApoChromat, laser światła białego (WLL), akustyczno-optyczny rozdzielacz wiązki, detektory HyD S i uruchomiono na oprogramowaniu mikroskopowym. Jak wspomniano wcześniej, należy zoptymalizować każdą indywidualną konfigurację eksperymentalną, ale jako punkt wyjścia parametry obrazowania za pomocą Stellaris użytego w tym badaniu są następujące: Wysokość dźwięku ustawiono na 85,00 % mocy maksymalnej i linię laserową 485 nm o intensywności 3,00 %. Detektor HyD S został ustawiony na 490-590 nm ze wzmocnieniem 25 w ustawieniu analogowym. Jednokierunkowo zeskanowaliśmy obszar 1024 (x) * 1024(y) lub 82,01 μm (x) * 82,01 μm (y) z 5 (z) pikselami o rozmiarze kroku 0,495 μm (wymiar z jest zmienny w zależności od wielkości robaków lub tkanek) z prędkością skanowania 1,000 Hz, powiększenie 2,25, średnia linii 2, i otworek o średnicy 1 AU (95,5 μm). Zakres Z zaczyna się od miejsca, w którym sygnał GFP jest widoczny, do miejsca, w którym się kończy. Aby zminimalizować szum w projekcji maksymalnej, można zmniejszyć liczbę płaszczyzn z używanych do projekcji maksymalnej.
- Użyj standardowego mikroskopu szerokokątnego do badania mitochondriów mięśniowych i podskórnych (myo-3p::MLS::GFP i col-19p::MLS::GFP).
- Kwantyfikacja morfologii mitochondriów
UWAGA: Aby uzyskać szczegółowe informacje, zapoznaj się z Schindelin et al.22 i zobacz rysunek uzupełniający 1A-D.- Pobierz i zainstaluj oprogramowanie FIJI (Fiji to tylko ImageJ, https://fiji.sc/). Następnie otwórz FIDŻI.
- Aby pobrać i zainstalować makro MitoMAPR, pobierz kod źródłowy 1 ze strony https://doi.org/10.7554/eLife.49158.033. Następnie skopiuj cały kod wymieniony w sekcji "A.). Kod IJM dla MitoMAPR-1.0." Następnie otwórz Fiji, przejdź do Wtyczki > Nowe makro > i wklej wcześniej skopiowany kod do okna makra. Przejdź do opcji Plik > Zapisz jako i zapisz makro do wykorzystania w przyszłości.
- Otwórz mikroskopijny obraz 3D ze stosami Z na FIDŻI, przeciągając i upuszczając pliki na pasek narzędzi Fidżi lub przechodząc do opcji Plik > Otwórz.
- Utwórz maksymalną projekcję obrazu, przechodząc do opcji Stosy obrazów > > Z Project, a następnie wybierając zakres plasterków z ostrymi obrazami, które mają być maksymalnie rzutowane, i wybierając opcję Maksymalna intensywność jako typ projekcji.
- Zapisz obraz jako TIFF, przechodząc do Plik > Zapisz jako > Tiff.
- Przytnij obszary zainteresowania (ROI) z pełnych obrazów za pomocą narzędzia "Prostokąt", rysując ROI, a następnie przechodząc do opcji Obraz > Przytnij.
- Zapisz obraz jako TIFF, przechodząc do Plik > Zapisz jako > Tiff.
- Uruchom zapisane wcześniej makro MitoMAPR, przeciągając i upuszczając plik makra na pasek narzędzi Fidżi, a następnie kliknij Uruchom. W nowym oknie pojawi się monit o wybranie folderu, w którym plik Tiff został zapisany w wersji 2.3.6.
- W nowym oknie pojawi się monit o wybranie obszaru; utwórz prostokąt na obrazie za pomocą narzędzia prostokąt, jak wspomniano wcześniej w kroku 2.3.4, a następnie naciśnij Ok.
UWAGA: Można wybrać cały obraz, jeśli został on wcześniej przycięty zgodnie z opisem w kroku 2.3.6. Zapisz okno "Dane" ze wszystkimi wartościami związanymi z morfologią mitochondriów jako plik Excel, przechodząc do Plik > Zapisz jako > Zapisz.
- Przetwarzanie wsadowe próbek przy użyciu makr FIJI
- Utwórz makro do określania regionu obrazów, które mają być analizowane. Otwórz Fidżi i przejdź do Wtyczki > Nowe makro >. Wklej następujący kod w polu tekstowym i zapisz makro zgodnie z opisem w 2.3.2 (Rysunek uzupełniający 1E-H).
UWAGA: Utwórz prostokąt (100, 100, 200, 200); run (Określ..., szerokość = 100, wysokość = 100, x = 100, y = 100 skalowane). - Utwórz makro do zapisywania wszystkich otwartych obrazów jako plików TIFF. W oknie makra przejdź do pozycji Plik > Nowy i wklej następujący kod w polu tekstowym. Zapisz makro zgodnie z opisem w 2.3.2.
UWAGA: dir = getDirectory("Wybierz folder"); ids=newArray(nImages); dla (i=0; i - Utwórz makro dla partii MitoMAPR. Przejdź do kodu źródłowego https://doi.org/10.7554/eLife.49158.033 1 i skopiuj wszystkie kody wymienione w sekcji B.). Kod IJM dla MitoMAPR-1.0_Batch". W oknie makra przejdź do pozycji Plik > Nowy, wklej kod z kodu źródłowego 1 w polu tekstowym i zapisz makro zgodnie z opisem w kroku 2.3.2.
- Utwórz makro do iteracyjnego przycinania. Przejdź do kodu źródłowego https://doi.org/10.7554/eLife.49158.033 1 i skopiuj wszystkie kody wymienione w C.) Kod IJM dla CropR". W oknie makra przejdź do pozycji Plik > nowy, wklej kod z kodu źródłowego 1 w polu tekstowym i zapisz makro zgodnie z opisem w kroku 2.3.2.
- Aby rozpocząć przetwarzanie wsadowe, najpierw zapisz wszystkie obrazy do przetworzenia w formacie TIFF, otwierając wszystkie obrazy i uruchamiając makro zapisane w kroku 2.4.2. Wszystkie obrazy zostaną zapisane w formacie TIFF w określonym folderze. Zamknij wszystkie zapisane obrazy.
- Jeśli obrazy zapisane w kroku 2.4.5 są obrazami 3D (obrazami zawierającymi stosy z), przekonwertuj je na obrazy 2D, tworząc z nich projekcje Z. Aby wsadowo projektować obrazy metodą Z, otwórz okno przetwarzania wsadowego, przechodząc do opcji Przetwarzaj > Makro > wsadowej w głównym oknie FIJI.
- W polu "Wejście" wybierz lokalizację folderu zawierającego wszystkie obrazy 3D do przetworzenia od wersji 2.4.5. W polu "Wyjście" wybierz żądaną lokalizację dla zapisanych obrazów po przetworzeniu. Wybierz format wyjściowy jako TIFF. Wklej następujący kod w dużym polu tekstowym w oknie i naciśnij przycisk procesu: run("Z Project... ", "projection=[Maksymalna intensywność]").
- Przytnij ROI o identycznych wymiarach ze wszystkich obrazów 2D do przetworzenia przy użyciu makra iteracyjnego kadrowania z kroku 2.4.4 w połączeniu z makrom określającym region z kroku 2.4.3. Uruchom makro iteracyjnego przycinania od kroku 2.4.4. Pojawi się okno z prośbą o katalog.
- Wybierz folder zawierający tylko obrazy 2D z kroku 2.4.5 lub obrazy rzutowane 2D z kroku 2.4.6 i naciśnij przycisk Wybierz. Makro otworzy jeden z obrazów w wybranym folderze i pojawi się okno oznaczone "dokonaj wyboru" z dwoma przyciskami.
- Uruchom określone makro wyboru z kroku 2.4.3. Zmodyfikuj wartości szerokości i wysokości w tym polu tekstowym makra zgodnie z wymaganiami, aby zmienić wymiar zaznaczenia, a następnie naciśnij Uruchom, aby obserwować nowe zaznaczenie. Zmiana wartości X i Y w makrze spowoduje modyfikację położenia lewego górnego rogu zaznaczenia.
- Gdy wymiary zaznaczenia są zadowalające, przeciągnij prostokąt do żądanego obszaru, a następnie naciśnij przycisk OK w oknie "dokonaj wyboru". Przycięty region zostanie zapisany w folderze wybranym w kroku 2.4.7.
- Makro będzie iterować po wszystkich pozostałych obrazach w folderze. Dla każdego obrazu uruchom makro z kroku 2.4.8 bez zmiany wartości wymiarów, aby upewnić się, że te same wymiary są przycinane dla wszystkich obrazów. Dla każdego obrazu przeciągnij prostokąt zaznaczenia w żądane miejsce i naciśnij przycisk OK w oknie "dokonaj wyboru".
- Otwórz folder zawierający przycięte obrazy z kroków 2.4.8-2.4.9 i przenieś wszystkie przycięte obrazy do nowego folderu.
- Przeanalizuj wszystkie przycięte obrazy, uruchamiając wsadowe makro MitoMAPR z kroku 2.4.3. W nowym oknie zostaniesz poproszony o wybranie katalogu. Wybierz folder ze wszystkimi przyciętymi obrazami z kroku 2.4.10. Po zakończeniu pojawi się okno o nazwie "Dane" ze wszystkimi wartościami związanymi z morfologią mitochondriów. Zapisz wszystkie dane jako plik programu Excel zgodnie z opisem w kroku 2.3.9.
- Utwórz makro do określania regionu obrazów, które mają być analizowane. Otwórz Fidżi i przejdź do Wtyczki > Nowe makro >. Wklej następujący kod w polu tekstowym i zapisz makro zgodnie z opisem w 2.3.2 (Rysunek uzupełniający 1E-H).
Wyniki
C. elegans jest doskonałym modelem do obrazowania mitochondriów ze względu na przezroczyste ciało, co pozwala na łatwe obrazowanie całego żywego zwierzęcia bez nadmiernego przygotowania próbki. Ponadto morfologię mitochondriów w różnych tkankach można łatwo zwizualizować, wykorzystując promotory specyficzne dla danej tkanki do ekspresji białek fluorescencyjnych targetowanych do mitochondriów. W niniejszym przypadku wykorzystano myo-3p (dla mitochondriów mięśniowych), vha-6p (dla mitochondriów jelitowych) oraz col-19p (dla mitochondriów hipodermy) do sterowania ekspresją GFP targetowanego do mitochondriów (sekwencja lokalizacji mitochondrialnej białka ATP-1). Mitochondria mięśni ściany ciała C. elegans wykazują morfologię rurkowatą, ustawiając się wzdłuż włókien mięśniowych (miofibryli) (Rysunek 1A); mitochondria jelitowe tworzą silnie połączone, sieciowe struktury o mniej jednolitym ustawieniu (Rysunek 1B); natomiast hipoderma posiada mitochondria rurkowate, które wydają się bardziej zaokrąglone lub owalne w porównaniu do jelita lub mięśni (Rysunek 1C). Morfologia mitochondriów jest zazwyczaj spójna na całej długości robaka w mięśniach i jelitach, ale w hipodermie występują pewne niewielkie różnice w stopniu połączenia mitochondriów między końcem proksymalnym a dystalnym zwierzęcia. Aby zatem uzyskać powtarzalne wyniki eksperymentalne, zaleca się skupienie na konkretnym regionie ich ciała. W tej procedurze konsekwentnie obrazowany jest obszar między gardłem a vulvą, około 100-200 μm poniżej gardła.
W przypadku mitochondriów mięśniowych i podskórnych obrazowanie przy użyciu mikroskopu świetlnego zapewnia wystarczającą rozdzielczość ze względu na płaskość komórek i niski poziom światła poza ogniskiem. Jednak mitochondria jelitowe są trudne do obserwacji za pomocą mikroskopu świetlnego, ponieważ duża objętość jelita ogranicza rozdzielczość z powodu znacznej ilości światła poza ogniskiem pochodzącego z innych przekrojów jelita (Rysunek 2). Dlatego zaleca się obrazowanie mitochondriów jelitowych przy użyciu mikroskopu konfokalnego, aby zredukować światło poza ogniskiem i zwizualizować prawidłową morfologię mitochondriów.
Kształt mitochondriów jest wysoce dynamiczny i zmienia się w zależności od środowiska metabolicznego zwierząt23, a nawet pod wpływem ekspozycji na zmienną sztywność podłoża24. W związku z tym pozostawienie zwierząt na szkiełkach mikroskopowych przez dłuższy czas, w warunkach braku źródła pokarmu i na sztywnym szklanym podłożu, może potencjalnie wpływać na morfologię mitochondriów. W niniejszym badaniu stwierdzono, że mitochondria nicieni fragmentują po około 30 min na szkiełku w roztworze M9, przy czym największą fragmentację wykazują mitochondria hipodermy (Rycina 3). Z tego względu obrazowanie mitochondriów powinno być wykonywane niezwłocznie po przygotowaniu próbki.
Substancje chemiczne ograniczające ruchliwość nicieni, takie jak azydek sodu i tetramizol, są powszechnie stosowane podczas obrazowania na żywo C. elegans, ponieważ unieruchomienie zwierząt jest niezbędne do wykonania wielu sekcji osi Z w celu obrazowania 3D. Poprzednie badania wykazały, że ekspozycja na azydek sodu lub tetramizol może prowadzić do fragmentacji mitochondriów25. Co zaskakujące, stwierdzono, że azydek sodu – nawet w wysokich stężeniach – miał ograniczony wpływ na morfologię mitochondriów w mięśniach lub jelitach. Jednak w skórze (hypodermis) zaobserwowano wcześniejszą fragmentację mitochondriów w porównaniu z kontrolą w buforze M9 (Rysunek 3). Co istotne, wysokie stężenia tetramizolu (100 mM) spowodowały znaczną fragmentację mitochondriów we wszystkich typach komórek natychmiast po ekspozycji. W porównaniu z tym średnie stężenia (10 mM) doprowadziły do szybszej fragmentacji niż w kontroli M9. Niskie stężenia (1 mM) miały ograniczony wpływ na morfologię mitochondriów. Dane te sugerują, że zastosowanie azydku sodu może być właściwą opcją przy szybkim obrazowaniu mitochondriów, podczas gdy stosowania tetramizolu należy zazwyczaj unikać.
Zgodnie z oczekiwaniami, mitochondria we wszystkich tkankach C. elegans wykazują fragmentację podczas naturalnego procesu starzenia (Rysunek 4A). Fragmentację można zaobserwować jako mitochondria przyjmujące bardziej skrócone i sferyczne kształty, które znacząco różnią się od liniowych, rurkowatych mitochondriów występujących u młodych osobników. Należy zauważyć, że w jelicie wraz z wiekiem przybywa sferycznych struktur autofluorescencyjnych, dlatego należy uważać, aby nie pomylić autofluorescencji z rzeczywistymi strukturami mitochondrialnymi. Ze względu na możliwą zmienność zmian w strukturze mitochondriów między poszczególnymi nicieniami, istotne jest przeprowadzenie ilościowej oceny morfologii mitochondriów na znaczącej liczbie próbek, a nie tylko obrazowanie kilku osobników. W tym celu zastosowano oprogramowanie mitoMAPR, które umożliwia zautomatyzowaną analizę ilościową morfologii mitochondriów przy użyciu różnorodnego zestawu parametrów, w tym obiektów, sieci, liczby złączy na sieć, punktów złączeń, długości obiektów, śladu mitochondrialnego, stopnia pokrycia mitochondrialnego oraz powierzchni obiektów (Tabela uzupełniająca 1 oraz Tabela uzupełniająca 2). Automatyzacja eliminuje subiektywne błędy użytkownika. Wykazujemy tutaj, że parametr długości obiektów jest optymalny do ilościowego pomiaru zmian w morfologii mitochondriów mięśniowych i jelitowych podczas starzenia, natomiast parametr punktów złączeń służy do pomiaru zmian w morfologii mitochondriów hipodermy podczas starzenia (Rysunek 4B).
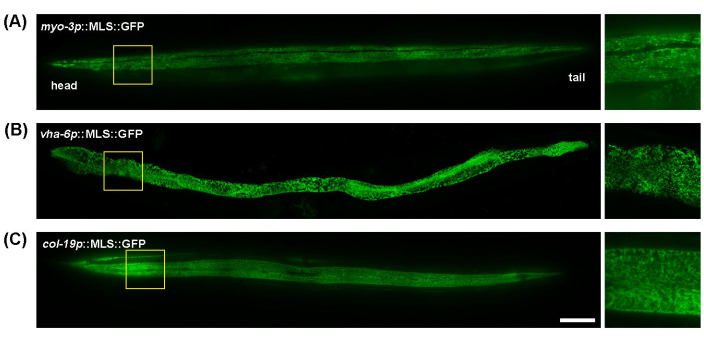
Rycina 1: Obrazy mitochondriów w całym ciele C. elegans. Obrazowanie mitochondriów przeprowadzono na całej długości 5-dniowych osobników dorosłych, hodowanych na EV od stadium L1, u zwierząt transgenicznych z ekspresją MLS::GFP w mięśniach (A), jelicie (B) oraz hipodermie (C). Pasek skali: 100 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
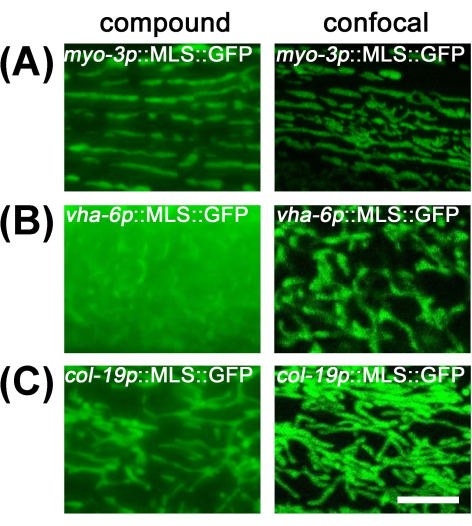
Rysunek 2: Porównanie obrazowania mitochondriów za pomocą mikroskopu światłowego i mikroskopu konfokalnego. Obrazowanie mitochondriów przeprowadzono u dorosłych zwierząt w 1. dniu, hodowanych na EV od stadium L1, u zwierząt transgenicznych z ekspresją MLS::GFP w mięśniach (A), jelicie (B) i hipodermie (C). Pasek skali: 5 μm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
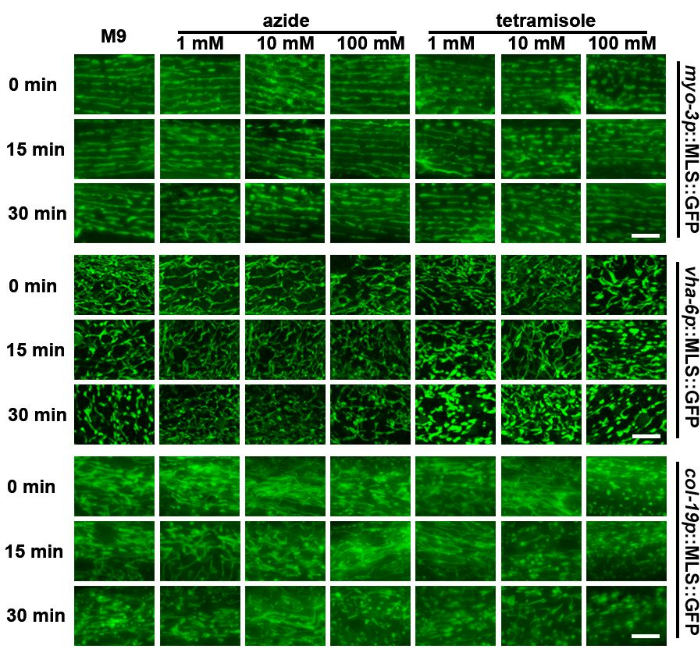
Rycina 3: Ocena fragmentacji mitochondriów w różnych tkankach po traktowaniu M9, azotynem sodu i tetramizolem. Obrazowanie mitochondriów przeprowadzono u dorosłych zwierząt w 1. dniu z ekspresją MLS::GFP w mięśniach, jelitach i hipodermie. Zwierzęta hodowano na EV od stadium L1. Zwierzęta umieszczono na szkiełkach zawierających M9, azotyn sodu (1 mM, 10 mM i 100 mM) lub tetramizol (1 mM, 10 mM i 100 mM), a obrazowanie wykonano bezpośrednio po przygotowaniu preparatu (0 min) lub 15 min bądź 30 min po przygotowaniu preparatu. Przedstawiono reprezentatywne obrazy dla n > 5 zwierząt na szczep dla 2 powtórzeń biologicznych. Paski skali: 5 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
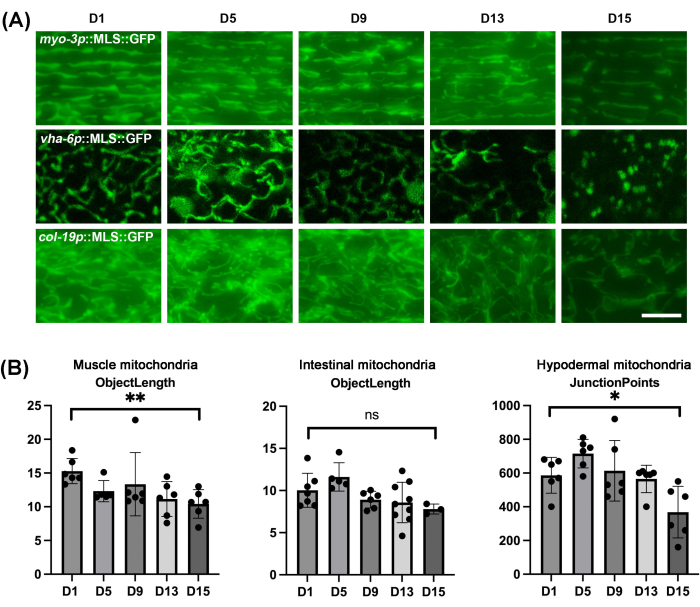
Rysunek 4Obrazowanie mitochondriów w C. elegans podczas starzenia się w różnych tkankach oraz kwantyfikacja morfologii mitochondriów z wykorzystaniem MitoMAPR. (AObrazowanie mitochondriów przeprowadzono u dorosłych zwierząt w 1., 5., 9., 13. i 15. dniu dorosłości przy ekspresji MLS::GFP w mięśniach, jelitach i skórze właściwej. Zwierzęta hodowano na pożywce EV od stadium L1, a od 1. dnia dorosłości przeniesiono na płytki EV zawierające FUDR. Obrazy są reprezentatywne dla n ≥ 5 zwierząt na szczep dla ≥ 3 powtórzeń biologicznych. Pasek skali: 5 μm. (BIlościowe oznaczenie długości obiektów mitochondriów mięśniowych oraz mitochondriów jelitowych u nicimieni w dniach 1, 5, 9, 13 i 15, a także ilościowe oznaczenie punktów połączeń mitochondriów hipodermy u nicimieni w dniach 1, 5, 9, 13 i 15. Wszystkie pojedyncze punkty danych zestawiono ze średnią ± SD. Wykresy sporządzono i analizowano statystycznie za pomocą testu studenta test t-Studenta. ns = brak istotności, *p < 0.03; **p < 0.002; ***p < 0.0002; ****p < 0.0001. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
| Wiek nicieni (dni) | Liczba nicieni | Objętość buforu (mL) |
| 1 | 25 | 13 |
| 5 | 25 | 14 |
| 9 | 20 | 15 |
| 13 | 20 | 15 |
Tabela 1: Zalecana liczba nicieni i objętości buforu podczas przygotowywania preparatów.
Rysunek uzupełniający 1: Schematy procedur ilościowej analizy pojedynczego obrazu przy użyciu MitoMAPR oraz przetwarzania seryjnego dla wielu obrazów. (A) Schemat ilościowej analizy morfologii mitochondriów z pojedynczego obrazu przy użyciu makra MitoMAPR. (B) Projekcja Z surowego pliku obrazu 3D wykonana w programie Fiji (projekcja maksymalna). (C) Wycinanie obszaru zainteresowania z obrazu po projekcji Z. (D) Obrazy szkieletowe (Skeletor) uzyskane za pomocą makra MitoMAPR. Paski skali: 5 μm. (E) Schemat ilościowej analizy morfologii mitochondriów z wielu obrazów przy użyciu przetwarzania seryjnego z makrem MitoMAPR. (F) Zrzut ekranu makra do wycinania. (G) Zrzut ekranu procesu seryjnego dla projekcji Z. (H) Zrzut ekranu okna potwierdzania wyboru w makrze do seryjnego wycinania. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 1: Analiza ilościowa parametrów morfologii mitochondriów w tkance mięśniowej C. elegans.Zapisane parametry obejmują liczbę obiektów, sieci, złączy na sieć, punktów złącza, długość obiektów, ślad mitochondrialny, powierzchnię obiektów oraz stopień pokrycia mitochondriami, mierzone w różnych dniach. Dane stanowią podstawę do oceny zmian w morfologii mitochondriów wraz z wiekiem. Kliknij tutaj, aby pobrać ten plik.
Tabela uzupełniająca 2: Wpływ substancji unieruchamiających na morfologię mitochondriów u C. elegans.Dane obejmują pomiary takie jak liczba obiektów, sieci, złączy na sieć, punktów złącza, długość obiektu, odcisk mitochondrialny, powierzchnię obiektu oraz pokrycie mitochondrialne przy różnych stężeniach i punktach czasowych po przygotowaniu próbek z użyciem buforu M9 lub różnych stężeń tetramizolu i azotku sodu. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Obrazowanie fluorescencyjne morfologii mitochondriów jest najczęstszym sposobem określania zmian w mitochondriach. Podczas gdy zaawansowane techniki mikroskopii, takie jak transmisyjna mikroskopia elektronowa (TEM), mikroskopia sił atomowych i mikroskopia krioelektronowa, oferują wyższą rozdzielczość, mikroskopia fluorescencyjna pozostaje bardziej przystępna cenowo i dostępna dla większości badaczy. Ponadto mikroskopię fluorescencyjną można przeprowadzić na żywych komórkach, a w czystych organizmach modelowych, takich jak C. elegans, obrazowanie można przeprowadzić na całych zwierzętach26,27. Obrazowanie transgenicznych C. elegans jest dość proste, a genetycznie kodowane markery fluorescencyjne pozwalają na bardziej wiarygodne i solidne obrazowanie mitochondriów, ponieważ nie wymagają skomplikowanego przetwarzania próbek ani nie cierpią z powodu zmiennego barwienia w różnych typach komórek lub warunkach z konwencjonalnych barwników mitochondrialnych, takich jak MitoTracker lub TMRE 28,29,30. Genetycznie kodowane markery fluorescencyjne zwykle obejmują bezpośrednie znakowanie białek mitochondrialnych za pomocą fluoroforów lub koniugację fluoroforów z minimalną sekwencją lokalizacji mitochondrialnej. Konstrukty te są często napędzane przez promotory specyficzne dla tkanki, umożliwiając wizualizację mitochondriów w różnych tkankach, takich jak tkanki mięśni, jelit lub tkanki podskórne31. Ogólnie rzecz biorąc, te fluorescencyjnie znakowane białka są nadmiernie eksprymowane, co może mieć potencjalnie niepożądane skutki fizjologiczne, jeśli białka mitochondrialne o pełnej długości są nadmiernie eksprymowane; w związku z tym minimalne sekwencje MLS są lepszą opcją32. Jednak nawet przy nadekspresji minimalnych fuzji białek fluorescencyjnych MLS należy unikać wysokiej nadekspresji, ponieważ import dużej ilości białka do mitochondriów może załamać potencjał błony mitochondrialnej i wpłynąć na zdrowie zwierząt33. Chociaż wyczerpująca charakterystyka wszystkich obecnie dostępnych szczepów C. elegans wykracza poza zakres tego manuskryptu, szczegółową analizę porównawczą licznych reporterów mitochondrialnych oraz zalety i wady każdego z nich możnaznaleźć tutaj.
W przypadku obrazowania mitochondriów żywych komórek u C. elegans preferowaną opcją może być standardowa mikroskopia złożona lub szerokokątna ze względu na dużą szybkość i łatwość tych metod w porównaniu z mikroskopią konfokalną. W tym badaniu wykazano, że płaskie komórki, takie jak mięsień i tkanka podskórna, w minimalnym stopniu odnoszą korzyści z mikroskopii konfokalnej, a mikroskopia złożona umożliwia akwizycję z wystarczającą rozdzielczością, aby uwidocznić prawidłową morfologię mitochondriów. Większe komórki, takie jak jelito, utrudniają mikroskopię złożoną ze względu na nieostre światło. Dlatego mikroskopia konfokalna jest niezbędna do wiarygodnego obrazowania morfologii mitochondriów jelitowych.
Ważną kwestią przy obrazowaniu 3D na całej grubości tkanki u żywych zwierząt jest zapobieganie ruchowi robaków podczas akwizycji obrazu. Naukowcy często stosują metody paraliżowania robaków, takie jak tetramizol lub azydek sodu34. Azydek sodu hamuje oksydazę cytochromu c (kompleks IV), krytyczny enzym w łańcuchu transportu elektronów mitochondriów, prowadząc do ogólnego paraliżu z powodu braku ATP potrzebnego do skurczów mięśni i innych funkcji komórkowych34,35. Tetramizol działa naśladując acetylocholinę w połączeniach nerwowo-mięśniowych, powodując trwałą depolaryzację i skurcz mięśni36. Jednak narażenie na te leki może indukować fragmentację mitochondriów, powodując stres oksydacyjny23. W tym badaniu stwierdzono, że tetramizol bardzo szybko indukował fragmentację mitochondriów, ale azydek sodu miał znacznie bardziej ograniczony efekt.
C. elegans oferuje bardzo prosty i łatwy sposób badania wpływu starzenia się na morfologię mitochondriów ze względu na krótką żywotność i łatwość starzenia się zwierząt. W tym przypadku zdecydowaliśmy się na użycie ekspozycji na FUDR, który jest solidną metodą chemicznej sterylizacji zwierząt poprzez zapobieganie replikacji DNA 20,37,38. Jednak FUDR może mieć niepożądany wpływ na określone parametry starzenia, a dla osób zaniepokojonych niezamierzonymi skutkami FUDR można zastosować inne strategie usuwania potomstwa39. Na przykład istnieją sterylne mutanty, w tym wrażliwy na temperaturę mutant linii zarodkowej glp-4 lub mutanty z niedoborem plemników, takie jak CF512 40,41,42. Alternatywnie, zwierzęta mogą być również naturalnie postarzane, poprzez codzienne ręczne wybieranie dorosłych osobników z ich potomstwa.
Kwantyfikacja zmian w morfologii mitochondriów jest również bardzo ważną kwestią, ponieważ może występować znaczna zmienność morfologii mitochondriów u zwierząt. W związku z tym przeprowadzenie analizy ilościowej i statystyk na wystarczającej wielkości próby jest niezbędne do wyciągnięcia istotnych wniosków na temat zmian w morfologii mitochondriów. Jednak analiza obrazu i kwantyfikacja mogą znacznie ucierpieć z powodu subiektywnych uprzedzeń i wyzwań związanych z obrazowaniem bardzo złożonych struktur, takich jak połączone mitochondria. W tym celu poniżej znajduje się podsumowanie zautomatyzowanej metody ilościowego określania morfologii mitochondriów przy użyciu licznych wskaźników opracowanych przez laboratorium Mair. MitoMAPR umożliwia obiektywną, zautomatyzowaną kwantyfikację morfologii mitochondriów, mierząc różne aspekty mitochondriów, w tym sieć mitochondrialną, długość obiektu, dystrybucję, zasięg sieci i ślad mitochondrialny. MitoMAPR jest darmowym makrem dla ImageJ i dlatego jest dostępny dla wszystkich laboratoriów z funkcjonalnym komputerem. Jednym z ważnych aspektów stosowania MitoMAPR jest przeprowadzenie kwantyfikacji na dużej próbie w celu określenia, która metryka morfologii mitochondriów jest najbardziej wiarygodna w celu określenia zmian w testowanych warunkach eksperymentalnych43,44. W tym przypadku stwierdzono, że długość obiektu i punkty połączeniowe są najlepszymi wskaźnikami do określania zmian podczas starzenia się mięśni, jelit i tkanki podskórnej. Alternatywnym podejściem do analizy zmian w morfologii mitochondriów jest generowanie reprezentacji 3D mitochondriów z obrazów z-stack, a następnie analiza 3D16,45. Można to osiągnąć za pomocą dostępnego na rynku oprogramowania, takiego jak Image-Pro Plus z modułami SharpStack Total Deconvolution i 3D Constructor. Wykazano, że kwantyfikacja reprezentacji mitochondriów 3D zapewnia dokładniejszy wgląd w kształt mitochondriów i właściwości sieci46. Jednak ta metoda jest technicznie bardziej złożona i kosztowna w porównaniu z podejściem pół-3D, które polega na składaniu wielu sekcji obrazu z szerokokątnego lub konfokalnego stosu Z w jedną projekcję 2D i analizowaniu ich za pomocą narzędzi takich jak mitoMAPR. Badanie to podsumowuje wykorzystanie ekspresji pojedynczej kopii GFP ukierunkowanego na macierz mitochondrialną i wyszczególnia kilka pułapek, których należy unikać podczas obrazowania.
Ograniczenia i względy czasowe
Chociaż mikroskopia konfokalna jest zalecana w przypadku dużych i grubych tkanek, takich jak tkanka jelitowa, standardowe techniki mikroskopii konfokalnej ze skanowaniem liniowym mogą być zbyt wolne, aby wykonać szybkie obrazowanie mitochondriów. Jest to szczególnie prawdziwe, biorąc pod uwagę nasze dane, które pokazują, że trzymanie robaków na szkiełkach przez długi czas może spowodować fragmentację mitochondriów. Chociaż technologia mikroskopii konfokalnej znacznie się rozwinęła, mikroskopy, które mogą wykonywać szybkie obrazowanie, takie jak wirujący dysk, Airyscan lub ten użyty w tym badaniu, mogą być zbyt kosztowne dla niektórych laboratoriów. W takich przypadkach mikroskopia złożona może być połączona z metodami obliczeniowego klirensu w celu usunięcia nieostrego światła, takimi jak dekonwolucja47.
Ponadto, jak opisano, MitoMAPR jest potężnym zautomatyzowanym makro do ilościowego pomiaru długości mitochondriów i wzajemnych połączeń sieci mitochondrialnej. Należy go jednak używać ostrożnie, biorąc pod uwagę wymienione tutaj ograniczenia. Po pierwsze, użycie GFP ukierunkowanego na matrycę obserwuje tylko mitochondrialną fragmentację błony wewnętrznej, która może nie w pełni podsumować morfologię mitochondriów błony zewnętrznej, ponieważ zdarzenia rozszczepienia błony wewnętrznej mogą wystąpić przy braku rozszczepienia błony zewnętrznej. W związku z tym, w celu bardziej wyrafinowanego obrazowania obu błon, należy użyć zarówno fluoroforu ukierunkowanego na matrycę, jak i mitochondrialnego fluoroforu ukierunkowanego na błonę zewnętrzną. Ponieważ zewnętrzne markery błony mitochondrialnej mogą cierpieć takie same konsekwencje, jak białka zlokalizowane w macierzy, jeśli mają wysoką nadekspresję, zaleca się stosowanie markerów jednokopijnych, zwłaszcza tych wykorzystujących minimalne sekwencje lokalizacji mitochondriów zamiast pełnych białek, takich jak te stosowane tutaj31.
Jak opisano na rysunku 3, mitochondria mogą szybko ulegać fragmentacji pod mikroskopem, a różne metody przygotowania preparatów próbek mogą w dużym stopniu wpływać na morfologię w zależności od używanego buforu. Reprezentatywne dane opisane w tym manuskrypcie pokazują, że mitochondria robaków ulegają minimalnej fragmentacji pod wpływem M9 i niskich stężeń azydku sodu. Tetramizol, inna szeroko stosowana substancja chemiczna do paraliżowania robaków, szybko fragmentuje mitochondria, co wskazuje, że należy generalnie unikać jej stosowania. Chociaż M9 i azydek sodu nie wykazały znaczącej fragmentacji mitochondriów, ważne jest, aby pamiętać, że różne szczepy mogą reagować inaczej niż pokazane tutaj wyniki. Podczas gdy inne badania wykazały, że azydek sodu może fragmentować mitochondria, możliwe jest, że nasze szczepy nie wykazują znaczącej fragmentacji mitochondriów przy ekspozycji na azydek sodu ze względu na niski poziom ekspresji naszych konstruktów. Wysoka ekspresja białek zlokalizowanych w mitochondriach może załamywać potencjał błonowy, a zatem różne szczepy stosowane w innych badaniach mogą sprawić, że mitochondria będą bardziej podatne na fragmentację od tych samych stężeń azydku sodu, które zastosowano w tym badaniu. Niezależnie od tego, należy zadbać o to, aby substancje chemiczne paraliżujące robaki nie powodowały fragmentacji mitochondriów w określonych warunkach, które mają być testowane przed użyciem we wszystkich badaniach, ponieważ określone mutanty lub stany mogą być bardziej podatne na fragmentację mitochondriów wywołaną przez leki. Co więcej, nawet trzymanie robaków w M9 może powodować zmiany w ich naturalnej morfologii i aktywności mitochondriów, ponieważ wcześniej wykazano, że ich aktywność pływania w buforze M9 wpływa na dynamikę rozszczepienia mitochondriów i fuzji. Ponadto pozostawienie robaków w M9 przez długi czas może aktywować reakcje niedotlenienia, które znacząco wpływają na mitochondria, powodując zakłócenia proteostazy mitochondriów48,49.
Wreszcie, inną ważną kwestią jest to, że chociaż zmiany w morfologii mitochondriów są często skorelowane ze zmianami funkcji mitochondriów, nie zawsze istnieje bezpośrednia korelacja między nimi. Dlatego zalecana jest dokładniejsza analiza funkcji mitochondriów. Na przykład wskaźnik zużycia tlenu można zmierzyć za pomocą instrumentu Seahorse50, potencjał błony mitochondrialnej można zmierzyć za pomocą barwników potencjału błonowego, takich jak JC9 lub TMRE51, mitochondrialny stan utlenienia można zmierzyć za pomocą barwników wrażliwych na redoks, takich jak roGFP52, a odporność mitochondriów na stres można zmierzyć za pomocą wrażliwości na stresory, takie jak rotenon53. Ponieważ obrazowanie mitochondriów może być dość szybkie, oferujemy te metody jako łatwe pierwsze podejście do określenia, czy warunki eksperymentalne wpływają na morfologię mitochondriów. Metody te są podatne nawet na badania przesiewowe leków lub genów na dużą skalę, z zalecaną kontynuacją bardziej dokładnej analizy mitochondrialnej przy użyciu dodatkowych wskaźników. Podsumowując, tutaj dokonujemy przeglądu tego, co uważa się za najprostsze metody obrazowania morfologii mitochondriów u C. elegans przy minimalnych błędach eksperymentalnych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
J.K. jest wspierany przez USC Provost Fellowship; M.A. i G.G. są wspierane przez T32AG052374; M.V. jest wspierany przez 1R25AG076400; a R.H.S. jest wspierany przez R01AG079806 z National Institute on Aging i 2022-A-010-SUP z Larry L. Hillblom Foundation. Niektóre szczepy zostały dostarczone przez CGC, które jest finansowane przez Biuro Programów Infrastruktury Badawczej NIH w ramach grantu P40 OD010440. Część analizy genów przeprowadzono przy użyciu programu Wormbase, który jest finansowany z grantu U41 HG002223.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 5-fluoro-2'-deoksyurydyna (FUDR) | Spectrum Chemical | F2026-10GMBL | do hamowania proliferacji |
| APEX IPTG | Genesee | 18-242 | do RNAi |
| Bacto Agar | VWR | 90000-764 | do płytek NGM |
| Bacto Peptone | VWR | 97064-330 | do płytek NGM |
| Chlorek wapnia dwuwodny | VWR | 97061-904 | do płyt NGM |
| Karbenicylina | VWR | 76345-522 | RNAi |
| VWR | 80057-932 | do płytek NGM | |
| Mikroskop konfokalny | Stellaris 5 | ||
| DMSO | VWR | BDH1115-1LP | rozpuszczalnik do leków |
| Szkiełka mikroskopowe HistoBond | VWR | 16005-110 | do przygotowania preparatów |
| LB Bulion VWR | 95020-778 | do | |
| lunety prosektoryjnej LB LEICA S7E | Leica | 10450840 | Standardowy mikroskop preparacyjny |
| LEICA STELLARIS 5 | Leica | 158101100 | Mikroskop konfokalny |
| LEICA THUNDER | Mikroskop złożony | Leica | 11525679 |
| Siarczan magnezu siedmiowodny | VWR | 97062-132 | do płytek NGM, M9 |
| pL4440 pusty plazmid wektorowy | addgene | plazmid #1654 | do pustego plazmidu wektorowego |
| Chlorek potasu | VWR | 97061-566 | do roztworu wybielacza |
| Potas dwuzasadowy fosforan | VWR | EM-PX1570-2 | do płytek NGM |
| Jednozasadowy fosforan potasu | VWR | EM-PX1565-5 | do M9 |
| Azydek sodu | VWR | 97064-646 | do paraliżowania robaków |
| Chlorek sodu | VWR | EM-SX0420-5 | do płytek NGM, M9 |
| Podchloryn sodu | VWR | RC7495.7-32 | do roztworu |
| wybielaczaFosforan sodu dwuzasadowy | VWR | 71003-472 | do M9 |
| Chlorowodorek tetracykliny | VWR | 97061-638 | do RNAi |
| WOB-L⫬ Æ Suche pompy próżniowe, do standardowych obciążeń, Welch¬ Æ | VWR | 80077-612 | do zasysania |
Bibliografia
- Protasoni, M., Zeviani, M. Mitochondrial structure and bioenergetics in normal and disease conditions. Int J Mol Sci. 22 (2), 586(2021).
- Wang, Y., et al. The role of mitochondrial dynamics in disease. MedComm. 4 (6), e462(2023).
- Kamer, K. J., Mootha, V. K. The molecular era of the mitochondrial calcium uniporter. Nat Rev Mol Cell Biol. 16 (9), 545-553 (2015).
- Chen, W., Zhao, H., Li, Y. Mitochondrial dynamics in health and disease: mechanisms and potential targets. Signal Transduct Target Ther. 8 (1), 333(2023).
- Adebayo, M., Singh, S., Singh, A. P., Dasgupta, S. Mitochondrial fusion and fission: The fine-tune balance for cellular homeostasis. FASEB J. 35 (6), e21620(2021).
- Madan, S., Uttekar, B., Chowdhary, S., Rikhy, R. Mitochondria lead the way: mitochondrial dynamics and function in cellular movements in development and disease. Front Cell Dev Biol. 9, 781933(2021).
- Sharma, A., Smith, H. J., Yao, P., Mair, W. B. Causal roles of mitochondrial dynamics in longevity and healthy aging. EMBO Rep. 20 (12), e48395(2019).
- Rolland, S. G., Lu, Y., David, C. N., Conradt, B. The BCL-2-like protein CED-9 of C. elegans promotes FZO-1/Mfn1,2- and EAT-3/Opa1-dependent mitochondrial fusion. J Cell Biol. 186 (4), 525-540 (2009).
- Labrousse, A. M., Zappaterra, M. D., Rube, D. A., van der Bliek, A. M. C. elegans dynamin-related protein DRP-1 controls severing of the mitochondrial outer membrane. Mol Cell. 4 (5), 815-826 (1999).
- Dickinson, D. J., Pani, A. M., Heppert, J. K., Higgins, C. D., Goldstein, B. Streamlined genome engineering with a self-excising drug selection cassette. Genetics. 200 (4), 1035-1049 (2015).
- Bosher, J. M., Labouesse, M. RNA interference: Genetic wand and genetic watchdog. Nat Cell Biol. 2 (2), E31-E36 (2000).
- Yu, C. C. J., et al. Expansion microscopy of C. elegans. eLife. 9, e46249(2020).
- Zhang, S., Li, F., Zhou, T., Wang, G., Li, Z. Caenorhabditis elegans as a useful model for studying aging mutations. Front Endocrinol. 11, 554994(2020).
- Dingley, S., et al. Mitochondrial respiratory chain dysfunction variably increases oxidant stress in Caenorhabditis elegans. Mitochondrion. 10 (2), 125-136 (2010).
- Presley, A. D., Fuller, K. M., Arriaga, E. A. MitoTracker Green labeling of mitochondrial proteins and their subsequent analysis by capillary electrophoresis with laser-induced fluorescence detection. J Chromatogr B Anal Technol Biomed Life Sci. 793 (1), 141-150 (2003).
- Mitra, K., Lippincott-Schwartz, J. Analysis of mitochondrial dynamics and functions using imaging approaches. Curr Protoc Cell Biol. Chapter 4, Unit 4.25.1-Unit 4.25.21 (2010).
- Valera-Alberni, M., Yao, P., Romero-Sanz, S., Lanjuin, A., Mair, W. B. Novel imaging tools to study mitochondrial morphology in Caenorhabditis elegans. Life Sci Alliance. 7 (11), e202402918(2024).
- Benedetti, C., Haynes, C. M., Yang, Y., Harding, H. P., Ron, D. Ubiquitin-like protein 5 positively regulates chaperone gene expression in the mitochondrial unfolded protein response. Genetics. 174 (1), 229-239 (2006).
- Begelman, D. V., et al. An aco-2::gfp knock-in enables the monitoring of mitochondrial morphology throughout C. elegans lifespan. microPublication Biol. 2022, (2022).
- Castro Torres, T., et al. Surveying low-cost methods to measure lifespan and healthspan in Caenorhabditis elegans. J Vis Exp. 183, e64091(2022).
- Rasmussen, N. R., Reiner, D. J. Nuclear translocation of the tagged endogenous MAPK MPK-1 denotes a subset of activation events in C. elegans development. J Cell Sci. 134 (17), jcs258456(2021).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Luz, A. L., et al. Mitochondrial morphology and fundamental parameters of the mitochondrial respiratory chain are altered in Caenorhabditis elegans strains deficient in mitochondrial dynamics and homeostasis processes. PLoS One. 10 (6), e0130940(2015).
- Oorloff, M., et al. Mechanical stress through growth on stiffer substrates impacts animal health and longevity in C. elegans. bioRxiv. , (2024).
- Chu, X., Wu, S., Raju, R. NLRX1 regulation following acute mitochondrial injury. Front Immunol. 10, 2431(2019).
- Shah, P., Bao, Z., Zaidel-Bar, R. Visualizing and quantifying molecular and cellular processes in Caenorhabditis elegans using light microscopy. Genetics. 221 (4), iyac068(2022).
- Wang, Y., Wang, P., Li, C. Fluorescence microscopic platforms imaging mitochondrial abnormalities in neurodegenerative diseases. Adv Drug Deliv Rev. 197, 114841(2023).
- Ding, J., et al. An expanded GCaMP reporter toolkit for functional imaging in Caenorhabditis elegans. G3 (Bethesda, Md). 13 (10), jkad183(2023).
- Sarasija, S., Norman, K. R. Analysis of mitochondrial structure in the body wall muscle of Caenorhabditis elegans. Bio-Protocol. 8 (7), e2801(2018).
- Chaweeborisuit, P., Suriyonplengsaeng, C., Suphamungmee, W., Sobhon, P., Meemon, K. Nematicidal effect of plumbagin on Caenorhabditis elegans: A model for testing a nematicidal drug. Z Naturforsch C J Biosci. 71 (5-6), 121-131 (2016).
- Valera-Alberni, M., Yao, P., Romero-Sanz, S., Lanjuin, A., Mair, W. B. Novel imaging tools to study mitochondrial dynamics in Caenorhabditis elegans. 7, 11(2024).
- Bolognesi, B., Lehner, B. Reaching the limit. eLife. 7, e39804(2018).
- Jishi, A., Qi, X. Altered mitochondrial protein homeostasis and proteinopathies. Front Mol Neurosci. 15, 867935(2022).
- Morton, K. S., Wahl, A. K., Meyer, J. N. The effect of common paralytic agents used for fluorescence imaging on redox tone and ATP levels in Caenorhabditis elegans. PLoS One. 19 (4), e0292415(2024).
- Noumi, T., Maeda, M., Futai, M. Mode of inhibition of sodium azide on H+-ATPase of Escherichia coli. FEBS Lett. 213 (2), 381-384 (1987).
- Siete, C., Xiong, R., Khalid, A., Hsieh, Y. -W., Chuang, C. -F. Immobilization of C. elegans with different concentrations of an anesthetic for time-lapse imaging of dynamic protein trafficking in neurons. microPublication Biology. 2024, (2024).
- Mitchell, D. H., Stiles, J. W., Santelli, J., Sanadi, D. R. Synchronous growth and aging of Caenorhabditis elegans in the presence of fluorodeoxyuridine. J Gerontol. 34 (1), 28-36 (1979).
- Santi, D. V., McHenry, C. S. 5-Fluoro-2'-deoxyuridylate: covalent complex with thymidylate synthetase. Proc Natl Acad Sci U S A. 69 (7), 1855-1857 (1972).
- Wang, H., Zhao, Y., Zhang, Z. Age-dependent effects of floxuridine (FUdR) on senescent pathology and mortality in the nematode Caenorhabditis elegans. Biochem Biophys Res Commun. 509 (3), 694-699 (2019).
- Beanan, M. J., Strome, S. Characterization of a germ-line proliferation mutation in C. elegans. Development (Cambridge, England). 116 (3), 755-766 (1992).
- Austin, J., Kimble, J. glp-1 is required in the germ line for regulation of the decision between mitosis and meiosis in C. elegans. Cell. 51 (4), 589-599 (1987).
- Garigan, D., et al. Genetic analysis of tissue aging in Caenorhabditis elegans: A role for heat-shock factor and bacterial proliferation. Genetics. 161 (3), 1101-1112 (2002).
- Zhang, Y., et al. Neuronal TORC1 modulates longevity via AMPK and cell nonautonomous regulation of mitochondrial dynamics in C. elegans. eLife. 8, e49158(2019).
- Dutta, N., et al. Investigating impacts of the mycothiazole chemotype as a chemical probe for the study of mitochondrial function and aging. GeroScience. 46 (6), 6009-6028 (2024).
- Tronstad, K., et al. Regulation and quantification of cellular mitochondrial morphology and content. Curr Pharm Des. 20 (35), 5634-5652 (2014).
- Nikolaisen, J., et al. Automated quantification and integrative analysis of 2D and 3D mitochondrial shape and network properties. PLoS One. 9 (7), e101365(2014).
- Lee, J. S., Wee, T. L. E., Brown, C. M. Calibration of wide-field deconvolution microscopy for quantitative fluorescence imaging. J Biomol Tech. 25 (1), 31-40 (2014).
- Hong, M., Kwon, J. Y., Shim, J., Lee, J. Differential hypoxia response of hsp-16 genes in the nematode. J Mol Biol. 344 (2), 369-381 (2004).
- Yan, J., Sun, C. L., Shin, S., Van Gilst, M., Crowder, C. M. Effect of the mitochondrial unfolded protein response on hypoxic death and mitochondrial protein aggregation. Cell Death Dis. 12 (7), 711(2021).
- Koopman, M., et al. A screening-based platform for the assessment of cellular respiration in Caenorhabditis elegans. Nat Protoc. 11 (10), 1798-1816 (2016).
- Shpilka, T., et al. UPRmt scales mitochondrial network expansion with protein synthesis via mitochondrial import in Caenorhabditis elegans. Nat Comm. 12 (1), 479(2021).
- Braeckman, B. P., Smolders, A., Back, P., De Henau, S. In vivo detection of reactive oxygen species and redox status in Caenorhabditis elegans. antioxidants & redox signaling. 25 (10), 577-592 (2016).
- Bar-Ziv, R., et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 159, e61001(2020).
Przedruki i uprawnienia
