Seryjna tomografia dwufotonowa (STPT) to technika obrazowania masy tkanki w jej trójwymiarowym kształcie poprzez połączenie obrazowania dwufotonowego z automatyczną kontrolą etapu i krojeniem mikrotomów. Tutaj opisujemy protokół jego implementacji dla mózgów marmozet, aby lepiej zrozumieć ich cechy strukturalne.
Artykuł metodologiczny
Seryjna tomografia dwufotonowa całego mózgu marmozety do analiz neuroanatomicznych
W tym artykule
Podsumowanie
Streszczenie
Seryjna tomografia dwufotonowa (STPT) to technika obrazowania masy tkanki w jej trójwymiarowym kształcie poprzez połączenie obrazowania dwufotonowego z automatyczną kontrolą etapu i krojeniem mikrotomów. Z powodzeniem wdrożyliśmy tę technikę do śledzenia projekcji aksonalnych w mózgu marmozety. W tym miejscu opisano szczegółowe procedury eksperymentalne, które doprowadziły do wiarygodnego obrazowania wolumetrycznego całego mózgu marmozety. Kluczowym procesem dla udanego obrazowania było usunięcie opon mózgowych otaczających mózg, które zakłócają krojenie. Dużą zaletą tej metodologii jest to, że pokrojone odcinki można wykorzystać do dodatkowego barwienia. W pierwotnej konfiguracji pokrojone sekcje są mieszane w kąpieli wodnej. Sekcje te mogą być prawidłowo wyrównane w ich pierwotnej kolejności zgodnie z wzorcami naczyń krwionośnych w korze. Przykładem skutecznej histologii jest wizualizacja struktury mieliny za pomocą prostego odbicia światła, które można połączyć z barwieniem Nissl w celu zdefiniowania granic anatomicznych. Sekcje te mogą być również wykorzystywane do immunologicznego wykrywania niefluorescencyjnych znaczników następczych i wstecznych, które można zarejestrować w danych STPT w celu nakładania warstw wielu danych.
Wprowadzenie
W badaniach neuroanatomicznych badacze muszą obserwować struktury rzędu mikrometrowego (np. aksony i butony) w kontekście całego mózgu. Do tego trudnego zadania zwykle podchodzi się poprzez wizualne oględziny sekcji seryjnych i szukanie obszaru zainteresowania do szczegółowego obrazowania, analiz i rejestrowania zdjęć. Jednak wraz z postępem technologicznym możliwe staje się obrazowanie całego mózgu w wysokiej rozdzielczości w celu analizy całego mózgu. W przełomowym badaniu przeprowadzonym przez Oh et al.1, setki mózgów myszy otrzymało zastrzyki znacznikowe do analizy konektommicznej, które zostały przetworzone za pomocą techniki obrazowania seryjnej tomografii dwufotonowej (STPT)2. Cechą charakterystyczną tego badania było to, że wybrano znaczniki następcze do ilościowego określenia "łączności". Podczas gdy znaczniki następcze dostarczają bardzo szczegółowych informacji przestrzennych na temat rozmieszczenia aksonów, neuroanatomowie polegali na pracochłonnej ręcznej segmentacji do jej analizy. Dzięki automatyzacji różnych procedur analitycznych, w tym tego etapu segmentacji, udało im się "wyprodukować masowo" gotowe do użycia dane znacznikowe o wysokiej rozdzielczości do wielofunkcyjnych zastosowań. Skuteczność ich podejścia jest oczywista, biorąc pod uwagę różnorodność badań, w których wykorzystano ich dane śledzące3,4,5 i ich standardowy brain6.
Historycznie rzecz biorąc, połączenia neuronalne mózgów naczelnych innych niż ludzkie przyciągały uwagę wielu neuroanatomów od czasu opracowania metody degeneracji w latach 50., przez metody transportu substancji następczych/wstecznych w latach 70., aż po obecną strategię wirusową7,8. W związku z tym istnieje ogromna literatura, która bada połączenia neuronalne naczelnych. W szczególności wielu badaczy badało złożone połączenia korowo-korowe mózgu makaków, a ich wyniki zostały wyselekcjonowane do tabelaryzacji (np. CoCoMac9). Chociaż te klasyczne badania były przydatne, miały kilka ograniczeń. Po pierwsze, ponieważ każde badanie skupia się tylko na ograniczonych obszarach mózgu, uzyskane informacje nieuchronnie stają się fragmentaryczne. Po drugie, każde badanie wykorzystuje inne metody i warunki. W związku z tym ocena ilościowa w różnych badaniach staje się skomplikowana. Po trzecie, łączność jest zwykle pokazywana albo jako camera lucida reprezentatywnych sekcji, albo jako półilościowa tabela/wykres dla zdefiniowanych przez autora regionów mózgu. Innymi słowy, tylko bardzo ograniczone informacje ze złożonej struktury mózgu są wyodrębniane do prezentacji w opublikowanej literaturze. Wraz z rozwojem technik obrazowania metodą rezonansu magnetycznego (MRI) badania całego mózgu w niskiej rozdzielczości stały się popularne. Istnieje jednak duża rozbieżność między poziomami szczegółowości między tym, co wiemy o połączeniach nerwowych u myszy i naczelnych.
Mając na uwadze takie tło, postanowiliśmy przeprowadzić kompleksowe śledzenie następcze mózgów marmozet pospolitych10,11. Chociaż znacznie mniejszy i gładszy niż mózg makaka, jego odpowiednik marmozety wykazuje wyraźne oznaki naczelnych, takie jak obecność obszaru MT i ziarnistych obszarów przedczołowych, z których żaden nie jest wyraźnie zdefiniowany u gryzoni12,13. Tutaj mały rozmiar był dużą zaletą, ponieważ nawet mózg marmozety waży dziesięć razy więcej niż mózg myszy. Na szczęście udało nam się zobrazować cały mózg marmozety przy minimalnych aktualizacjach oryginalnej wersji oprogramowania operacyjnego TissueCyte1000 (odtąd nazywanego systemem obrazowania całych tkanek), dostępnego na rynku mikroskopu do obrazowania STPT 2. Ta aktualizacja miała na celu umożliwienie dodatkowego ruchu sceny przed krojeniem. Obecna wersja jest teraz wystarczająca do przetworzenia mózgu marmozety. W tym artykule przedstawiono protokół obsługi mózgu marmozety do obrazowania STPT. Dostępny jest również protokół po obrazowaniu, który dodatkowo zwiększa użyteczność tej metody.
Protokół
Wszystkie procedury eksperymentalne zostały przeprowadzone zgodnie z Przewodnikiem Narodowego Instytutu Zdrowia dotyczącym opieki i użytkowania zwierząt laboratoryjnych (Publikacje NIH nr 80-23) poprawionym w 1996 roku oraz "Wytycznymi Zasad Opieki i Użytkowania Zwierząt w Dziedzinie Nauk Fizjologicznych" Japońskiego Towarzystwa Fizjologicznego i zostały zatwierdzone przez Komitet ds. Zwierząt Doświadczalnych RIKEN (W2020-2-009(2)).
1. Wstrzyknięcie znacznika
- Wykonaj wstrzyknięcia fluorescencyjnych i niefluorescencyjnych znaczników do mózgu marmozety zgodnie z wcześniej opisanymi procedurami14.
- W odniesieniu do połączenia z metodą STPT, należy upewnić się, że fluorescencja znaczników jest wystarczająco silna, aby można ją było wykryć bez wzmacniania. Zastosuj dwuwektorowy system TET-Off10 w celu zwiększenia wyrażenia.
UWAGA: Znaczniki niefluorescencyjne mogą być również wstrzykiwane i wykrywane po zakończeniu STPT przy użyciu wytworzonych plasterków. Przykłady znaczników niefluorescencyjnych obejmują biotynylowaną aminę dekstranu (BDA), AAV z ekspresją cre w retro AAV2 do wstecznego wykrywania jąder komórek wejściowych10, a także AAV oparte na GFP ze znacznikiem smFP (patrz poniżej).
- W odniesieniu do połączenia z metodą STPT, należy upewnić się, że fluorescencja znaczników jest wystarczająco silna, aby można ją było wykryć bez wzmacniania. Zastosuj dwuwektorowy system TET-Off10 w celu zwiększenia wyrażenia.
- Utrwal perfuzję i uzyskaj mózg marmozety po 4 tygodniach.
- Aby znieczulić marmozetę, należy podać medetomidynę (0,04 mg/kg), midazolam (0,4 mg/kg) i butorfanol (0,4 mg/kg), zwany MMB, domięśniowo, a następnie dootrzewnowe wstrzyknięcie tiopentalu sodu (100 mg/kg).
- Po potwierdzeniu, że odruch bólowy został utracony, rozetnij jamę klatki piersiowej, aby odsłonić serce i przeciąć prawe przedsionek, aby umożliwić wydostanie się krwi i utrwalacza.
- Następnie przeciąć lewą komorę, aby wprowadzić igłę perfuzyjną do pierwszego przepłukania krwi roztworem prefiksowym (250 mM sacharozy, 5 mM MgCl2 w 0,02 M buforze fosforanowym [PB, pH 7,4]) przez kilka minut (~ 50-100 ml), a następnie utrwalanie 4% paraformaldehydem / 0,1 M buforem fosforanowym (PB; 2-3 razy więcej niż waga zwierzęcia w ciągu ~20 min).
- Dobra perfuzja ma kluczowe znaczenie dla dobrego wyniku. Podczas wprowadzania igły perfuzyjnej należy przesunąć ją wzdłuż przegrody w kierunku aorty, aby zapewnić dobry przepływ utrwalacza. Końcówka igły staje się widoczna, gdy dotrze do aorty. Cofnij się, aż końcówka będzie ledwo widoczna, aby nie ominęła tętnicy szyjnej.
- Utrzymuj mózg w 4% paraformaldehydzie/0,1 M PB przez 48 godzin w temperaturze 4 °C i przenieś do 50 mM PB. Jeśli nie zostanie natychmiast użyty, przechowuj mózg w 0,75% glicyny/0,1 M PB, aby zapobiec autofluorescencji z powodu nadmiernej fiksacji.
2. Przygotowanie próbki (Rysunek 1)
- Inkubować utrwalony mózg z kolagenazą (1 mg / ml w 3 mM CaCl2 w 10 ml soli fizjologicznej buforowanej tris [TBS]) w temperaturze 37 °C przez 1 h.
UWAGA: Przed inkubacją rozgrzej mózg w temperaturze 37 °C przez 5 minut. - Ostrożnie przetrzyj powierzchnię mózgu bawełnianym wacikiem, aby odkleić materię pia i inne opony mózgowe (Rysunek 1A, dodatkowe wideo). Użyj cienkich kleszczyków, aby obrać oderwane opony mózgowe.
UWAGA: Ważne jest, aby usunąć opony mózgowe otaczające śródmózgowie, w tym wzgórek górny lub te w górnej części wzgórza. Trudno jest wyeksponować te konstrukcje, które są ukryte głęboko w środku. Jednak usuń opony mózgowe tak bardzo, jak to możliwe. W przeciwnym razie często pozostają niepocięte, unoszą się w górę i przeszkadzają w obrazowaniu i krojeniu (Rysunek 2A). - Zachowaj szczególną ostrożność, gdy mózg jest poddawany rezonansowi magnetycznemu ex vivo przed osadzaniem, podczas którego mózg jest zanurzany w roztworze fluoru15. Resztki fluoru, jeśli zostaną osadzone razem, mogą tworzyć maleńkie pęcherzyki powietrza pod obiektywem podczas obrazowania. Aby tego uniknąć, utrzymuj mózg w PB przez 1 tydzień przed osadzeniem.
UWAGA: Ten etap oczekiwania zwykle nie jest konieczny, ale ma kluczowe znaczenie w połączeniu z rezonansem magnetycznym ex vivo. - Przygotować bufor NaBH4, rozpuszczając 0,2 g NaBH4 w 100 ml 50 mM buforu boranowego (pH 9,2) ogrzanego do 40°C. Pozostawić nakrętkę luźną, aby wypuścić gaz CO2 . Roztwór należy przechowywać przez noc z poluzowaną nakrętką. Zawiń butelkę w folię aluminiową, aby chronić ją przed światłem do czasu użycia.
- Przygotować utlenioną agarozę, mieszając 2,25 g agarozy i 0,21 g NaIO4 w 100 ml PB przez 2-3 godziny. Przefiltrować roztwór przez odsysanie próżniowe i przemyć go trzema zmianami PB. Zawiesić agarozę w 50 ml PB.
- Całkowicie rozpuść agarozę w kuchence mikrofalowej i ostudź do 60-65 °C.
- Umieść mózg w specjalnie przygotowanej komorze i osadź mózg w agarozie. Uważaj, aby wprowadzić agarozę do jamy poniżej ciała modzelowatego (Rysunek 1B).
UWAGA: Najpierw ogrzej mózg w temperaturze pokojowej, a następnie w 65 °C przez 5 minut, aby agaroza mogła osiąść na powierzchni mózgu bez krzepnięcia. - Zdemontować komorę i zanurzyć blok agarozy w buforze NaBH4 na noc w temperaturze 4 °C.
- Kilkakrotnie w ciągu 1-2 tygodni w temperaturze 4 °C należy kilkakrotnie zmienić bufor na PB w temperaturze 4 °C.
UWAGA: Autofluorescencja tkanek staje się bardzo słaba, jeśli wymiana buforu jest niepełna. - Stwórz szklaną scenę przesuwną, mocując cztery magnesy neodymowe z natychmiastową mieszanką epoksydową.
- Zamontuj blok agarozy na stoliku za pomocą mocnego kleju (np. super kleju) (Rysunek 1C).
3. Przetwarzanie tkanek
- Cały system obrazowania tkanek należy obsługiwać zgodnie z instrukcjami producenta. Opublikowano również szczegółowy protokół16. Obecna procedura jest stosowana głównie w przypadku TissueCyte1000, ale może być stosowana do innych modeli, takich jak TissueCyte 1600FC.
- Operacja różni się nieco w zależności od modelu, ale postępuj zgodnie z poniższymi punktami, które są zwykle ważne.
- Cały mózg marmozety może być przetwarzany koronalnie od przedniego do tylnego końca bez żadnych zmian w sprzęcie. Upewnij się, że limity ruchu etapu nie zostały przekroczone podczas umieszczania mózgu.
- Dostosuj kąt ostrzy, aby upewnić się, że głębokość powierzchni na obu końcach ostrza mieści się w granicach 10 μm. Ze względu na gęstą mielinizację, nawet różnica głębokości 10 μm może prowadzić do różnych penetracji laserowych przez dorosłą istotę białą marmozety. Z tego samego powodu ustaw płaszczyznę obrazowania na około 25-35 μm od powierzchni.
- Użyj ostrza ceramicznego (zalecane), aby przeciąć cały mózg w odstępach 50 μm (~ponad 650 plastrów).
- Opony mózgowe pozostają nieobcięte i przeszkadzają w krojeniu, jeśli nie zostaną odpowiednio usunięte (Rysunek 2). Niektóre opony mózgowe (np. te otaczające hipokamp lub pulvinar) są trudne do usunięcia. Ręcznie usuń te opony za pomocą cienkich kleszczy, gdy zostanie zauważony.
4. Pomocnicze techniki histologiczne
- Wyszukiwanie sekcji
- Odzyskaj wycinki tkanki, aby wykonać różne barwienia histologiczne. Dokładnie wyrównaj te sekcje w kolejności krojenia. Prześledź naczynia krwionośne w warstwach kory mózgowej w celu wyrównania (Rysunek 3).
- Odetnij nadmiar agarozy z każdej sekcji, aby zapewnić lepszą obsługę.
UWAGA: Ten proces nie musi być nadmierny. Agaroza służy do utrzymywania segmentów tkanek na miejscu bez zakłócania przetwarzania histologicznego. - Obrazowanie pod światło
- Zamontuj sekcje na szklanej szkle i wysusz.
- Ponownie nawodnij wycinek za pomocą PBS i umieść szkiełko nakrywkowe do obrazowania.
- Obserwuj wzór mielinizacji bez barwienia, gdy przekrój jest obrazowany przez mikroskop fluorescencyjny (Rysunek 4) w trybie jasnego pola. Dostosuj czas naświetlania tak, aby odbicie światła było widoczne.
UWAGA: Można użyć dowolnego mikroskopu, jeśli można w nim korzystać z oświetlenia ciemnego pola. - Usuń szkiełko nakrywkowe i przystąp do barwienia Nissl lub innego barwienia. Wystarczy każda standardowa procedura barwienia.
- Użyj tej metody, aby bezpośrednio porównać różne wzorce barwienia ze wzorcami mielinizacji (Rysunek 4).
- Obrazowanie BDA
- Szczegółowa procedura znajduje się w tabeli 1.
- Najpierw potraktuj skrawki roztworem Denta (20% DMSO, 80% metanolu). Metanol zawarty w roztworze Denta radykalnie wzmacnia sygnały BDA w aksonach.
- Użyj metody wzmocnienia sygnału tyramidu (TSA), aby wzmocnić sygnał BDA, który ma być wykrywany fluorescencyjnie17.
UWAGA: Roztwór TSA-biotyny można kupić u sprzedawcy, ale odczynnik In-House jest znacznie tańszy i skuteczniejszy. - Aby zarejestrować się na obrazie STPT, należy wykonać zdjęcie podświetlone po zamontowaniu sekcji do szkła przesuwnego za pomocą nośnika montażowego.
- Barwienie białkiem fluorescencyjnym Spaghetti Monster (smFP)
UWAGA: Białka fluorescencyjne "spaghetti monster" (smFPs) to rodzina niefluorescencyjnych wariantów GFP z wieloma znacznikami epitopów18. Zapewniają doskonałe sygnały fluorescencyjne po wykryciu przez immuno i nadają się jako znaczniki towarzyszące znacznikom fluorescencyjnym. Patrz Tabela 2, aby zapoznać się z konstruktami AAV dostępnymi w firmie Addgene.- Postępuj zgodnie ze szczegółową procedurą przedstawioną w tabeli 1.
5. Przetwarzanie danych po obrazowaniu
- Test integralności danych
UWAGA: STPT generuje ogromną liczbę plików graficznych. Kiedy mózg dorosłego marmozety jest podzielony na sekcje koronalne w odstępach 50 μm, zwykle potrzeba ponad 650 sekcji, aby pokryć cały mózg. Dane każdej sekcji składają się z serii kafelkujących obrazów przechwyconych w trzech kanałach. Te pliki obrazów są przechowywane w jednym folderze wraz z plikiem metadanych, który rejestruje położenie każdego kafelka. Aby zminimalizować całkowitą ilość danych i czas przetwarzania, obrazowanie przeprowadza się w blokach przebiegów, podczas których liczba kroków X i Y dla kafelkowania stopniowo się zmienia. Zazwyczaj 20-30 bloków przebiegów, z których każdy składa się z obrazowania 30-50 sekcji, stanowi kompletny zestaw danych dla pojedynczego mózgu. Aby wykorzystać te dane, wymaganych jest kilka etapów przetwarzania obrazu, w tym między innymi zszywanie obrazów kafelkowych, segmentacja sygnałów fluorescencyjnych i rejestracja danych wolumetrycznych do standardowego szablonu.- Etapy przetwarzania obrazu można wykonywać indywidualnie przy użyciu różnych narzędzi programowych lub za pośrednictwem dedykowanych potoków dostosowanych do konkretnych potrzeb badaczy. Szczegóły dotyczące przetwarzania obrazu wykraczają poza zakres tego artykułu i można je znaleźć w innych publikacjach11,19.
- Niezależnie od zastosowanej procedury upewnij się, że dane są spójnie zorganizowane.
UWAGA: Ponieważ cały proces obrazowania obejmuje wiele bloków przebiegów i obejmuje kilka dni, nierzadko zdarza się, że przebieg jest anulowany w połowie i ponownie rozpoczęty. W takich przypadkach struktura danych może zostać zakłócona, co utrudni prawidłowe wykonanie potoku przetwarzania obrazu. - Aby zminimalizować ryzyko zakłócenia struktury danych, uruchom skrypt języka Python w celu sprawdzenia integralności struktury danych (kn_pipeline_check_mosaic.py) dostępnej w usłudze GitHub (github.com/watkarbey/STPT_depo).
- Rejestracja zabarwionego obrazu do STPT image
UWAGA: Nieliniową transformację zabarwionego obrazu na obraz STPT można wykonać za pomocą wtyczki bUnwarpJ ImageJ.- Dostosuj rozmiar obrazów obrazu docelowego (STPT) i obrazu źródłowego (poplamionego) tak, aby były w przybliżeniu równe.
- Podziel każdy obraz na binaryzację, aby zwizualizować kształty sekcji.
- Uruchom bUnwarpJ. Pamiętaj, aby zaznaczyć opcję Zapisz transformacje.
- Uruchom ponownie bUnwarpJ. Wybierz oryginalny obraz przed binaryzacją jako obraz źródłowy. Następnie kliknij Załaduj transformację elastyczną i wybierz zapisaną transformację.
Wyniki
W typowej konfiguracji zastosowanej w tej metodzie, cały mózg dorosłego marmoseta może zostać zobrazowany (Rycina 5) z rozdzielczością ~1.3 x 1.3 µm/pixel przy odstępie między przekrojami wynoszącym 50 µm w ciągu około 1 tygodnia. Po zszyciu obrazów daje to około 650 obrazów koronalnych w trzech kanałach. Przy zastosowaniu obiektywu 16x (Nikon 16xW CFI75 LWD; NA = 0.80), pole widzenia pojedynczego ujęcia wynosi około 1 x 1 mm. Obraz całej powierzchni koronalnej uzyskuje się poprzez zszycie tych ujęć (Rycina 5A). Dopasowanie w kierunku Z jest doskonałe, a wysokiej jakości obraz 3D otrzymuje się poprzez proste nakładanie danych obrazów koronalnych (Rycina 5B,E). W celu standaryzacji do rejestracji 3D-3D można wykorzystać szablon STPT dla mózgu marmoseta11 (Rycina 5F). Ta transformacja danych jest jednym z kluczowych aspektów neuroanatomii całego mózgu, w której obszar zainteresowania otrzymuje absolutną współrzędną przestrzenną niezależną od adnotacji anatomicznej. Po zarejestrowaniu próbki mózgu w przestrzeni standardowej można łatwo wyodrębnić interesujące podregiony do dalszej analizy (Rycina 5F,G). W szczególności regiony kory mogą zostać przekształcone w mapę płaską przy użyciu określonego parametru (Rycina 5H).
Przekroje uzyskane podczas obrazowania mogą być wykorzystane do różnych celów histologicznych. Jak pokazano na Rycynie 4A,B, obrazowanie z podświetleniem tylnym bez barwienia daje wzór bardzo zbliżony do autentycznego barwienia mieliny. Może to stanowić doskonałą alternatywę dla barwienia mieliny. Co więcej, jeśli obraz z podświetleniem tylnym zostanie uzyskany przed barwieniem Nissla, ten sam przekrój można wykorzystać do uzyskania wzorów zarówno barwienia mieliny, jak i Nissla, co dostarcza przydatnych informacji do identyfikacji obszarów i warstw (Rycyna 5C-E). Przekroje te mogą być również stosowane do barwienia immunologicznego. Na Rycynie 5J przekrój wokół centrum iniekcji został zabarwiony przeciwciałem NeuN w celu oszacowania wydajności transdukcji wirusa AAV. Dobrą strategią jest również wstrzykiwanie znaczników niefluorescencyjnych oprócz znaczników fluorescencyjnych i wykrywanie ich histologicznie po odzyskaniu przekrojów. W naszym poprzednim badaniu połączyliśmy anterogradne znaczniki zielone z retrogradnym wektorem „cre”, który później wykryto za pomocą przeciwciała anty-cre10. W przykładzie na Rycynie 6A-E, BDA wstrzyknięto na stronę przeciwległą do zielonego znacznika (clover) i wykryto go fluorescencyjnie. Należy zauważyć, że czerwone sygnały BDA mogą zostać zarejestrowane w obrazie TissueCyte, aby zlokalizować je w układzie współrzędnych całego mózgu. W innym przykładzie na Rycynie 6F-I, smFP-myc wstrzyknięto do obszaru ciemieniowego (Rycyna 6G), podczas gdy zielony znacznik wstrzyknięto do obszaru czołowego. W ten sposób wiele znaczników można wstrzyknąć temu samemu zwierzęciu bez zakłócania obrazowania. Dużą zaletą wykorzystania przekrojów STPT do dodatkowego barwienia jest możliwość określenia relacji między znacznikami fluorescencyjnymi a niefluorescencyjnymi w tym samym mózgu. Dzięki temu mogliśmy z wysoką precyzją określić wzajemność projekcji korowo-korowych10. Kolejną zaletą jest to, że współrzędne 3D zabarwionych przekrojów mogą zostać przeniesione z powrotem do danych STPT, a następnie do standardowego szablonu. W związku z tym niekoniecznie trzeba wykorzystywać wszystkie odzyskane przekroje do barwienia. W celu lepszej interpretacji można wybrać konkretne przekroje do zabarwienia, aby dodać dodatkowy kontekst do danych STPT.

Rysunek 1: Przygotowanie próbek do STPT. (A) Usuwanie opon za pomocą patyczków watowych. Opony otaczające pień mózgu można usunąć za pomocą pęsety z cienkimi końcówkami. Opony otaczające mózg marmosety usuwa się ręcznie, pocierając patyczkami watowymi. Zdjęcie przedstawia opony oddzielone w obrębie bruzdy bocznej. (B) Pudełko akrylowe używane do zatapiania w agarozie. Piny są ruchome i służą do regulacji kąta ustawienia mózgu tak, aby zbliżyć go do pozycji ustalonej stereotaktycznie20. (C) Slajd magnetyczny wykonany ze szkła przedmiotowego o wymiarach 76 mm x 52 mm i czterech magnesów neodymowych przymocowanych klejem epoksydowym. Blok agarozy jest przytwierdzony do platformy magnetycznej za pomocą superglue. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Wpływ opon mózgowych na obrazowanie. (A) Nieprzecięte opony mózgowe wypływają na powierzchnię, co wskazuje biała strzałka. W tym przykładzie widoczne jest znaczne uwypuklenie opon mózgowych, ponieważ nie zostały one usunięte przed zatapianiem w agarozie. Zazwyczaj opony pozostają nieprzecięte tylko w kilku trudnych obszarach. (B) Przykład błędnego cięcia spowodowanego obecnością opon mózgowych między ciałem całyhaben i górną częścią wzgórza. W tym przypadku błędne cięcie doprowadziło do naprzemienności przekroju głębokiego (329) i przekroju stosunkowo prawidłowego (330). #78-329 oznacza próbkę nr 78, przekrój nr 329 w portalu danych Brain/MINDS (C) Kolejny przykład błędnego obrazowania. W gorszym przypadku jądro pulwinar, wskazane czerwoną strzałką, może całkowicie się oddzielić. Paski skali: 0,5 mm (panel górny), 0,5 µm (panel dolny). (D) Kolejny przykład błędnego obrazowania. Opony mózgowe znajdujące się głęboko w bruzdzie kory wzrokowej są trudne do usunięcia. Cienie widoczne w przekrojach 469 i 470 są spowodowane wypływającymi oponami mózgowymi, które znalazły się pod obiektywem. Paski skali: 0,5 mm (panel górny), 0,5 µm (panel dolny). Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.

Rysunek 3: Sekwencyjne dopasowanie przekrojów tkanek. (A) Do 50 coronalnych przekrojów marmosety można prawidłowo ustawić w kolejności w plastikowym pojemniku (31 cm x 22,5 cm). Aby zwizualizować szczegółowe struktury, pojemnik umieszcza się na czarnym papierze i oświetla z boku. Przekroje te są najpierw wstępnie ustawione w kolejności, a następnie poddawane precyzyjnemu dopasowaniu. (B) Precyzyjne dopasowanie wykorzystuje naczynia krwionośne jako punkty orientacyjne. Kora mózgowa zawiera wiele naczyń krwionośnych przebiegających pionowo przez warstwy korowe. Są one identyfikowane jako wydłużone otwory, które systematycznie zmieniają swoje położenie w obrębie warstw korowych (białe strzałki). Dzięki tej metodzie można dokładnie dopasować nawet przekroje w odstępach 50 µm. Otwory po naczyniach krwionośnych można zidentyfikować na obrazach przekrojów SPTP w celu potwierdzenia. Pasek skali: 5 mm (panel górny), 1 mm (panel dolny). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.

Rysunek 4: Obraz backlit jako zamiennik barwienia mieliny. (A,B) Do obrazowania backlit i barwienia mieliny wykorzystano ten sam przekrój. Najpierw przekrój zamocowano na szkiełku przedmiotowym, wysuszono, nawodniono ponownie za pomocą PBS, przykryto szkiełkiem i obrazowano przy użyciu mikroskopu świetlnego (Tabela materiałów). Po usunięciu szkiełka pierwszego ten sam przekrój wykorzystano do barwienia mieliny21 i obrazowania za pomocą mikroskopu fluorescencyjnego. Obraz backlit został zarejestrowany względem obrazu mieliny przy użyciu wtyczki bUnwarpJ programu ImageJ. Zielone ramki pokazują powiększone widoki każdego obrazu. Należy zauważyć, że obrazy te wykazują niemal identyczne wzory, z wyjątkiem tego, że barwienie mieliny lepiej wizualizuje struktury włókniste. (C-E) Do obrazowania backlit i barwienia metodą Nissla wykorzystano ten sam przekrój. Maska niskiego progu dla obrazu backlit została najpierw zarejestrowana z maską niskiego progu dla obrazu Nissla przy użyciu wtyczki bUnwarpJ, a następnie oryginalny obraz został przekształcony przy użyciu tych samych parametrów. Zauważalna jest dobra zgodność naczyń krwionośnych (białe groty strzałek) pomiędzy obydwoma obrazami. Ponieważ oba obrazy dotyczą tego samego przekroju, dopasowanie jest niemal idealne, co pozwala na bezpośrednie porównanie wzorów mieliny i Nissla w celu identyfikacji warstw kory. Paski skali: 5 mm (panele A-E). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
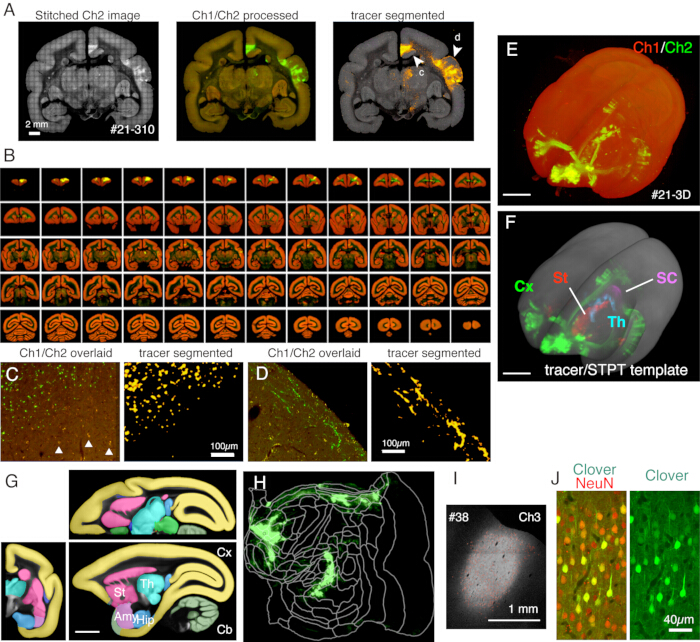
Rysunek 5: Typowy wynik obrazowania STPT. (A) Proste zestawienie kafelków obrazów Ch2 (zielony) z przykładowego przekroju (przekrój 310 próbki nr 21). Bez korekcji tła widoczne są granice poszczególnych kafelków. W środkowej kolumnie kafelki zostały połączone z zastosowaniem korekcji tła odpowiednio dla Ch1 (czerwony) i Ch2 (zielony). Aby zredukować sygnały lipofuscyny (patrz panel C), sygnały Ch1 odjęto od Ch2 i przedstawiono w kolorze zielonym. W celu zmniejszenia sygnałów lipofuscyny w Ch1, przed łączeniem w programie ImageJ zastosowano polecenie „Remove Outliers...”. W prawej kolumnie sygnały znacznika zostały poddane segmentacji za pomocą potoku przetwarzania obrazów11. Groty strzałek (c, d) wskazują miejsca, w których przedstawiono powiększone widoki w panelach C i D. Pasek skali: 2 mm. (B) Przegląd seryjnych przekrojów dla próbki nr 21. STPT wygenerowało 635 wysokorozdzielczych obrazów czołowych dla tej próbki. (C) Widok przy dużym powiększeniu wskazany grotem strzałki c w panelu A. Jest to prosta nałożka obrazów Ch1 (czerwony) i Ch2 (zielony) bez dalszego przetwarzania. Trójkąty wskazują sygnały fluorescencji lipofuscyny, które wykazują szerokie spektrum. Algorytm segmentacji znacznika dokładnie odróżnia sygnały znacznika od tła lipofuscyny mimo bardzo podobnego kształtu (panel prawy). Pasek skali: 100 µm. (D) Kolejny przykład widoku przy dużym powiększeniu. Zauważmy, że cienkie włókna aksonalne w warstwie 1 są dobrze widoczne. Pasek skali: 100 µm. (E) Rekonstrukcja 3D oryginalnych obrazów STPT. 635 niskorozdzielczych obrazów czołowych, pokazanych w panelu B, posłużyło jako stos plików tiff do wizualizacji 3D przy użyciu fluorender22. Pasek skali: 5 mm. (F) Rekonstrukcja 3D segmentowanych sygnałów znacznika zarejestrowanych względem szablonu STPT (szary). Sygnały znacznika w różnych obszarach mózgu przedstawiono za pomocą różnych kolorów. Obszary te zostały wycięte z wykorzystaniem adnotacji pokazanej w panelu G. Pasek skali: 5 mm. (G) Szablon STPT z nałożoną adnotacją różnych obszarów mózgu. Pasek skali: 5 mm. (H) Sygnał znacznika korowego pokazany w panelu F przedstawiono w formie mapy płaskiej (flatmap). (I) Identyfikacja miejsca iniekcji za pomocą fluorescencji Ch3, która jest mniej czuła na fluorescencję znacznika i pozostaje nienasycona. Pasek skali: 1 mm. (J) Barwienie przekroju wokół centrum iniekcji przeciwciałem NeuN wykazało, że około 30% neuronów wykazuje silną ekspresję zielonej fluorescencji Clover. Pasek skali: 40 µm. Skróty: Cx; kora, St; prążkowie, Th; wzgórze, SC; kolliculus superior. Amy; ciało migdałowate, Hip; hipokamp, Cb; móżdżek. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
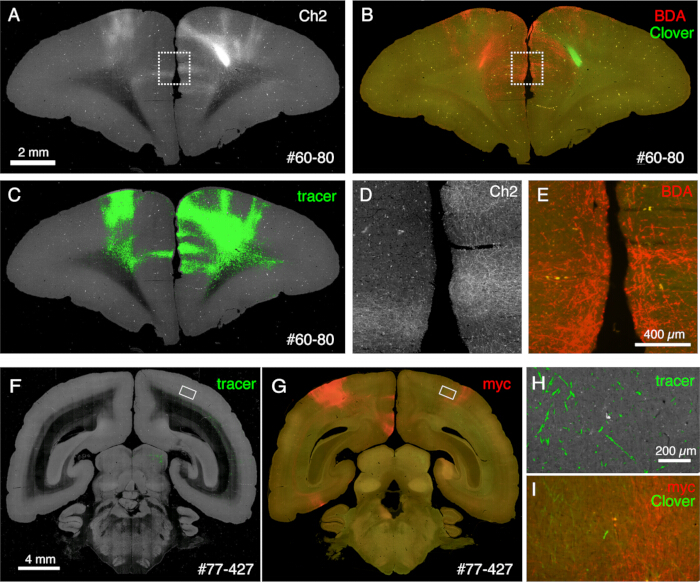
Rysunek 6: Histologia po STPT wykazująca wiele niefluorescencyjnych tracerów. (A-C) Porównanie obrazu STPT z obrazem barwionym BDA. W tej próbce BDA został wstrzyknięty po przeciwnej stronie niż wstrzyknięcie Clover. Panele A i C przedstawiają obraz Ch2 oraz segmentację tracerów danych STPT. Panel B przedstawia barwienie BDA po STPT. Fluorescencja Clover jest osłabiona z powodu traktowania przekroju metanolem. Pasek skali: 2 mm. (D,E) Powiększenie obszarów zaznaczonych przerywanymi ramkami w panelach A i B. Pasek skali: 100 µm. (F,G) Porównanie obrazu STPT z barwieniem przeciwciałami przeciwko znacznikowi myc. W tej próbce Clover wstrzyknięto do PFC, natomiast AAV-smFP-myc wstrzyknięto do przeciwstawnej kory ciemieniowej. Białe prostokąty zostały powiększone w panelach H i I. Pasek skali: 4 mm. (H) Segmentacja tracerów przedstawiona na zielono. Pasek skali: 200 µm. (I) Barwienie myc przedstawiono na czerwono. Fluorescencja Clover przedstawiona jest na zielono. Pasek skali: 200 µm. Zielone sygnały w panelach H i I znajdują się w podobnej pozycji, ale nie są identyczne, ponieważ STPT odzyskuje jedynie przekrój optyczny o grubości ~10 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
| Protokół fluorescencyjnego barwienia BDA | |
| Usuwanie agarozy | |
| Płukanie buforem TBS | 10 min (2x) |
| 1% H2O2 w roztworze Denta | 10 min |
| płukanie w TBS | Streszczenie |
| blokowanie w 0,5% TNB | 1 h |
| StAvHRP (1:4000) w TNB | 2 przez noc |
| płukanie TNT | 10 min (3x) |
| Biotynowana TSA (1:4000) w 0,1 M boratanie (pH 8,5) + 0,003% H2O2 | 2 h |
| Płukanie TNT | 10 min (3x) |
| streptawidyna-Cy3 (1:1000) w TNT | 3 h |
| płukanie TNT | 10 min (2x) |
| płukanie w buforze TBS | Zachować sekcję do czasu montowania |
| Zamocuj przekrój na szkiełku przedmiotowym, używając medium montażowego z inhibitorem blaknięcia (antifade) | |
| protokół fluorescencyjnego barwienia przeciwciałem anty-myc | |
| Usuń agarozę | |
| płukanie buforem TBS | 10 min (2x) |
| blokowanie w IB | 1 h |
| Przeciwciała anty-Myc (1:4000) w IB | 2 przez noc |
| Płukanie TNT | 10 min (3x) |
| przeciwciała anty-mysie Cy3 (1:1000) w buforze TNT | 3 h |
| płukanie TNT | 10 min (2x) |
| płukanie w TBS | Zachować sekcję do momentu montowania |
| Zamocuj przekrój na szkiełku przedmiotowym, używając medium montażowego z inhibitorem blaknięcia. | |
| Bufory/roztwory | Skład |
| 0,5% TNB | Odczyn blokujący TSA 0,5% w TS7,5 |
| Roztwór Denta | 20% DMSO, 80% metanol |
| Bufor immersyjny (IB) | 10% FBS, 2% BSA, 0,5% TritonX100 w TBS |
| TBS (bufor soli Tris) | 25 mM Tris, 137 mM NaCl, 2,7 mM KCl (pH 7,4) |
| TNT | 0,05% Tween20 w TS7,5 |
| TS7.5 | 0,1 M TRIS-HCl, pH 7,5, 0,15 M NaCl |
Tabela 1: Protokół fluorescencyjnego barwienia BDA oraz fluorescencyjnego barwienia anty-myc
| Plazmid do znacznika AAV | Nr Addgene | Zalecane przeciwciało | Sugerowane rozcieńczenie | Oczekiwany wynik |
| pAAV-EF1_Cre | 201198 | klon Millipore 2D8 | 1:1000 | korzystne dla komórek |
| pAAVCam1.3_smFP_Myc | 201205 | MBL M192 My3 (mysz) | 1:4000 | doskonały |
| pAAVCam1.3_smFP_HA | 201206 | CST C29F4 (królik) | 1:1000 | korzystne dla komórek |
| pAAVCam1.3_smFP_FLAG | 201207 | MBL PM020B (królik) | 1:1000 | Proszę podać tekst źródłowy do przetłumaczenia. |
| AAVTRE3_smFP_Myc | 201208 | |||
| AAVTRE3_smFP_HA | 201209 | |||
| AAVTRE3_smFP_FLAG | 201210 |
Tabela 2: Lista plazmidów Addgene dostępnych do produkcji tracerów niefluorescencyjnych. Konstrukt cre celuje w jądro komórkowe i jest odpowiedni do śledzenia retrogradnego przy użyciu AAV2 retro. Konstrukt smFP_HA jest odpowiedni do detekcji ciała komórki (oraz śledzenia retrogradnego).
Wideo uzupełniające: Widok pod mikroskopem podczas usuwania opon mózgowych. Kliknij tutaj, aby pobrać to wideo.
Dyskusja
W tym artykule wyjaśniono praktyczne rozwiązania w zakresie przetwarzania mózgów marmozet w całym mózgu, a także pomocnicze techniki histologiczne, które zwiększają użyteczność techniki STPT. Mocną stroną "neuroanatomii całego mózgu" za pomocą STPT jest to, że można uzyskać współrzędne 3D dowolnego obszaru zainteresowania, niezależnie od tego, czy jest on anatomicznie opisany, czy nie. Dzięki precyzyjnej rejestracji 3D do 3D możliwe jest przekształcenie tych współrzędnych w standardowy szablon do nakładania wielu zestawów danych. W ten sposób standardowy szablon służy jako medium do integracji danych. Był to istotny aspekt naszego projektu mapowania kory przedczołowej (PFC)10, w ramach którego analizowano dane uzyskane od wielu osób. Ponadto informacje odwzorowane do standardowego szablonu można porównać z różnymi danymi, które zostały już zmapowane, niezależnie od tego, czy są to Nissl, wzorce mielinowe, dane znacznikowe, dane MRI (w tym dyfuzyjne MRI) czy adnotacje anatomiczne11. Co ważne, można je również porównać z przyszłymi danymi, które zostaną pozyskane przez technologię, która jeszcze się nie pojawiła. Obecnie istnieje wiele szablonów dla mózgu marmozety, które są oparte na barwieniu Nissl23, MRI 23,24,25,26,27,28 i STPT 11. Ale mogą być przekształcane do swoich współrzędnych na podstawie kontrastów obrazu i wstępnie obliczonych parametrów11. Integracja danych w całej skali mózgu we wszystkich badaniach przyczynia się do lepszego zrozumienia mózgu jako systemu. Warunkiem wstępnym działania tej strategii jest niezawodne gromadzenie danych w mózgu. Poniżej omówiono krytyczne kroki i potencjalne problemy związane z obecnym protokołem.
Jednym z najbardziej wrażliwych procesów obrazowania STPT jest krojenie tkanek. Jak wspomniano powyżej, opony mózgowe często pozostają nieobcięte i mogą przeszkadzać w krojeniu. W szczególności jądro płucne i wzgórek górny to dwa najbardziej dotknięte obszary mózgu: w zależności od dokładności usuwania opon mózgowych i osadzania w agarozie, mogą one zostać usunięte z bloku tkankowego podczas krojenia. Te głębokie obszary są trudne do zdobycia z zewnątrz i mogą łatwo pęknąć podczas usuwania opon mózgowych. Staranne, ale dokładne usunięcie opon mózgowych ma kluczowe znaczenie dla udanego obrazowania. Innym problemem jest odwrócenie pokrojonych odcinków na blok tkanki, co czasami występuje, gdy sekcje pozostają połączone nawet po pokrojeniu. Można go zminimalizować poprzez ukształtowanie bloku tak, aby ostrze na samym końcu cięło ukośnie.
Dzięki obrazowaniu w głąb bloku tkankowego, STPT pozwala uniknąć nierówności jego powierzchni. Podczas gdy sygnały fluorescencyjne mogą dość łatwo przechodzić przez obszar korowy, są one znacznie zmniejszone w obszarach mielinizowanych. W związku z tym głębokość obrazowania musi być dokładnie określona, aby zrównoważyć spójne obrazowanie na całej powierzchni bloku a jasnością sygnałów w obszarze bogatym w mielinę, takim jak istota biała. W zastosowanym tutaj ustawieniu zwykle celujemy w 25-35 μm od powierzchni. Należy również zwrócić uwagę, że powierzchnia cięcia może ulec nierównomiernemu skurczeniu po długich godzinach przechowywania. Aby zminimalizować obszar obrazowania, podzieliliśmy sesję obrazowania na 20-30 przebiegów z różnymi ustawieniami etapu przez 5-6 dni. Albo robimy odstęp między biegami krótszy niż 2 godziny, albo potwierdzamy głębokość nawierzchni i dostosowujemy wysokość etapu przed każdym biegiem.
W tym protokole sygnał BDA został wzmocniony metodą TSA. Metoda ta jest bardzo skuteczna i może wykrywać sygnały BDA transportowane w kierunku następczym nawet w stosunkowo niskiej rozdzielczości (np. Rysunek 6B). Biotyna TSA jest dostępna na rynku w Akoya Biosciences, ale domowe rozwiązanie wykazuje znacznie lepsze ulepszenie. Z drugiej strony rozcieńczenie przeciwciała i roztworu wymaga starannego dostosowania w celu uzyskania optymalnego wyniku. Wstępna obróbka przekroju roztworem metanolu ma kluczowe znaczenie. Bez wstępnej obróbki sygnały BDA są ledwo wykrywalne w mielinizowanych aksonach.
W przypadku stosowania znacznika następczego często trudno jest zidentyfikować dokładne miejsce wstrzyknięcia ze względu na nasycenie sygnałów fluorescencyjnych. W całej konfiguracji systemu obrazowania tkanek zastosowanego w tym badaniu używamy niebieskiego kanału do identyfikacji zakażonych komórek (Figura 5I). Nawet gdy kanały czerwony i zielony są nasycone, każdy pojedynczy zainfekowany neuron jest zwykle wykrywalny w kanale niebieskim. Dotyczy to również atlasu łączności mózgu myszy Allen Mouse Atlas1. Badanie komórek pochodzenia jest ważne, ponieważ infekcja czasami obejmuje tylko określone warstwy. Z takimi częściowymi infekcjami spotykaliśmy się dość często w przypadku Atlasu Połączeń Mózgu Myszy, być może z powodu zastosowania metody jonoforezy29. Boczne rozprzestrzenianie się znaczników wirusa może być mniej lub bardziej zmienne w zależności od wstrzyknięć. Ta zmienność może potencjalnie wpływać na wynik śledzenia i wymaga starannej normalizacji.
Pomyślna rejestracja uzyskanego obrazu 3D do standardowego szablonu jest kluczowym procesem całej neuroanatomii mózgu. Rejestracja obrazu STPT do szablonu STPT może być dość dokładna i zaobserwowaliśmy tylko odchylenia kilku wokseli (50 μm izosześciennych) dla granic o wysokim kontraścieobrazu 10. Mimo to istnieje ograniczenie tego, co może zrobić rejestracja. Ze względu na proces usuwania opon mózgowych, próbki STPT na ogół mają przerwy między półkulami i między korą a śródmózgowiem / tyłomózgowiem, podczas gdy tkanki mózgowe są ciasno upakowane na obrazach MRI in vivo . Takie różnice są trudne do skorygowania przez rejestrację. Kora marmozety jest w większości pozbawiona bruzd, ale bruzda śródciemieniowa jest bardzo głęboka u niektórych osób. Takie bruzdy zostaną utracone (następuje fuzja od góry do góry) po rejestracji. Chociaż rejestracja jest potężną techniką, konieczne jest powrót do surowych danych w celu potwierdzenia uzyskanego wyniku.
Generowanie ogromnych ilości danych obrazowych jest zarówno mocną stroną, jak i ograniczeniem tej techniki. Chociaż zwiększa to kompletność zbioru danych, wymaga starannego zarządzania pozyskanymi danymi i opracowania zautomatyzowanego potoku przetwarzania obrazów w celu efektywnej interpretacji danych. W przyszłości zastosowanie generatywnej sztucznej inteligencji (AI) w budowie potoków przetwarzania obrazu może znacznie uprościć ten proces. Systematyczne obrazowanie całego mózgu przeprowadzono również przy użyciu metod opartych na skanerze slajdów21,30. W porównaniu z takimi metodami, STPT nie wymaga dodatkowych obliczeń do rekonstrukcji 3D. W połączeniu z sekcją optyczną wykazaliśmy, że STPT ma potencjał do rekonstrukcji równych segmentów aksonów w sekcjach31. Dzięki dalszemu połączeniu technik usuwania tkanek, Economo i wsp. opracowali metodę obrazowania całości słabo znakowanych neuronów32,33. Najnowsze wersje TissueCyte oferują teraz opcje dodatkowego lasera w celu zwiększenia wzbudzenia białek czerwonej fluorescencji lub jednostki wychwytywania sekcji do automatycznego odzyskiwania skrawków. Dzięki tym postępom podejście obejmujące cały mózg stanie się bardziej wydajne, zapewniając podstawę do kompleksowego zrozumienia mózgu naczelnych, w tym człowieka.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Serdecznie dziękujemy personelowi technicznemu w laboratorium i obiektach dla zwierząt Yamamori (RRD) za pomoc. Dziękujemy Centrum Współpracy RIKEN CBS-Olympus za pomoc techniczną w zakresie akwizycji obrazu konfokalnego. Praca ta była wspierana przez program badań naukowych w obszarach innowacyjnych (grant numer 22123009) z MEXT w Japonii, przez Brain/MINDS i Brain/MINDS2.0 z AMED w Japonii (JP15dm0207001, JP23wm0625001 i JP24wm0625218) oraz przez grant JSPS KAKENHI o numerze 24K09678 dla A.W.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agaroza typu I | Sigma | A6013 | |
| Wielofunkcyjny mikroskop fluorescencyjny | serii Keyence | BZ-X | W badaniu wykorzystano BZ-X710 |
| anty-mysi Cy3 | Jackson Immuno Research Laboratories, Inc. | 115-165-003 | |
| przeciwciało anty-myc | MBL | M192 | mysi monoklonalny |
| butorfanol | Meiji Animal Health | Vetorphale | |
| Ceramiczne ostrze | TissueVision | Nie dotyczy | |
| Kolagenaza typu I | Wako Chemical | #031-17601 | Podwielokrotność na 100 i mikro; L x 10 ze 100 mg/ml w PBS |
| Wacik bawełniany (HUBY-340) | HUBY | BB-013SP | mikrowaciki bawełniane |
| Komora na zamówienie | NIE DOTYCZY | NIE DOTYCZY Komora składa się z czterech płyt bocznych i jednej płyty dolnej, wszystkie wykonane z płyt akrylowych o grubości 1 cm, które można bezpiecznie przymocować ze sobą za pomocą śrubowych. Wewnątrz komory umieszczono dodatkową płytę akrylową, na której znajdują się trzy metalowe słupki Wkłada się przez niego, aby utrzymać mózg marmozety w odwróconej pozycji. | |
| Cy3-Streptawidyna | Jackson Immuno Research Laboratories, Inc. | 016-160-084 | |
| Kleszcze Dumont #5, Inox | N/A | /A | |
| Epoksydowa mieszanka instant | Locktite | N/A | |
| FIJI | NIH | ||
| kn_pipeline_check_mosaic.py | N/A | N/A | ; Jest to skrypt sprawdzający dane TissueCyte. |
| Medetomidyna | Zenoaq | Domitor | |
| Midazolam | Sandoz | N/A | |
| NaBH4 | Sigma | #452882 | |
| NaIO4 | Sigma | S1878 | |
| Igła perfuzyjna | Natsume Seisakusho Co., Sp. z o.o | . KN-348, 20G-50 | |
| Szkło przesuwne (76 mm x 52 mm) | Matsunami | S9111 | |
| StAvHRP | Jackson Immuno Research Laboratories, Inc. | 016-030-084 | HRP-streptawidyna (miareczkowanie należy dokładnie określić) |
| TissueCyte1000 | TissueVision | ||
| Odczynnik blokujący TSA | Kiko Tech | FP1012 | Patrz zestaw TSA-biotyna (Akoya Biosciences) |
| TSA-biotyna | Domowe | N/A | Patrz Okamoto i inni (ref. 16) |
| VECTASHIELD HardSet Mounting Medium | Vector laboratories Inc | N/A | Medium montażowe zapobiegające blaknięciu |
Bibliografia
- Oh, S. W., Harris, J. A., Ng, L., Winslow, B., Cain, N., et al. A mesoscale connectome of the mouse brain. Nature. 508 (7495), 207-214 (2014).
- Ragan, T., et al. Serial two-photon tomography for automated ex vivo mouse brain imaging. Nat Methods. 9 (3), 255-258 (2012).
- Liang, Z., Arefin, T. M., Lee, C. H., Zhang, J. Using mesoscopic tract-tracing data to guide the estimation of fiber orientation distributions in the mouse brain from diffusion MRI. Neuroimage. 270, 119999(2023).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Ypma, R. J. F., Bullmore, E. T. Statistical analysis of tract-tracing experiments demonstrates a dense, complex cortical network in the mouse. PLoS Comput Biol. 12 (9), e1005104(2016).
- Wang, Q., et al. The Allen mouse brain common coordinate framework: A 3D reference atlas. Cell. 181 (4), 936-953.e20 (2020).
- Köbbert, C., Apps, R., Bechmann, I., Lanciego, J. L., Mey, J., Thanos, S. Current concepts in neuroanatomical tracing. Prog Neurobiol. 62 (4), 327-351 (2000).
- Lanciego, J. L., Wouterlood, F. G. Neuroanatomical tract-tracing techniques that did go viral. Brain Struct Funct. 225 (4), 1193-1224 (2020).
- Bakker, R., Wachtler, T., Diesmann, M. CoCoMac 2.0 and the future of tract-tracing databases. Front Neuroinform. 6, (2012).
- Watakabe, A., et al. Local and long-distance organization of prefrontal cortex circuits in the marmoset brain. Neuron. 111 (14), 2258-2273.e10 (2023).
- Skibbe, H., et al. The Brain/MINDS marmoset connectivity resource: An open-access platform for cellular-level tracing and tractography in the primate brain. PLoS Biol. 21 (6), e3002158(2023).
- Mitchell, J. F., Leopold, D. A. The marmoset monkey as a model for visual neuroscience. Neurosci Res. 93, 20-46 (2015).
- Okano, H. Current status of and perspectives on the application of marmosets in neurobiology. Annu Rev Neurosci. 44, 27-48 (2021).
- Watakabe, A., et al. Comparative analyses of adeno-associated viral vector serotypes 1, 2, 5, 8 and 9 in marmoset, mouse and macaque cerebral cortex. Neurosci Res. 93, 144-157 (2015).
- Hata, J., et al. Multi-modal brain magnetic resonance imaging database covering marmosets with a wide age range. Sci Data. 10, 221(2023).
- Liwang, J. K., Bennett, H. C., Pi, H. -J., Kim, Y. Protocol for using serial two-photon tomography to map cell types and cerebrovasculature at single-cell resolution in the whole adult mouse brain. STAR Protoc. 4 (1), 102048(2023).
- Okamoto, S., et al. Exclusive labeling of direct and indirect pathway neurons in the mouse neostriatum by an adeno-associated virus vector with Cre/lox system. STAR Protoc. 2 (1), 100230(2021).
- Viswanathan, S., et al. High-performance probes for light and electron microscopy. Nat Methods. 12 (6), 568-576 (2015).
- Kuan, L., et al. Neuroinformatics of the Allen mouse brain connectivity atlas. Methods. 73, 4-17 (2015).
- Paxinos, G., Watson, C., Petrides, M., Rosa, M., Tokuno, H. The Marmoset Brain in Stereotaxic Coordinates. , Academic Press. London, Waltham, MA. (2012).
- Abe, H., et al. 3D reconstruction of brain section images for creating axonal projection maps in marmosets. J Neurosci Methods. 286, 102-113 (2017).
- Wan, Y., et al. FluoRender: Joint freehand segmentation and visualization for many-channel fluorescence data analysis. BMC Bioinformatics. 18 (1), 280(2017).
- Majka, P., et al. Towards a comprehensive atlas of cortical connections in a primate brain: Mapping tracer injection studies of the common marmoset into a reference digital template. J Comp Neurol. 524 (11), 2161-2181 (2016).
- Liu, C., Yen, C. C. -C., Szczupak, D., Tian, X., Glen, D., Silva, A. C. Marmoset brain mapping V3: Population multi-modal standard volumetric and surface-based templates. Neuroimage. 226, 117620(2021).
- Liu, C., et al. A digital 3D atlas of the marmoset brain based on multi-modal MRI. Neuroimage. 169, 106-116 (2018).
- Liu, C., et al. A resource for the detailed 3D mapping of white matter pathways in the marmoset brain. Nat Neurosci. 23 (2), 271-280 (2020).
- Woodward, A., et al. The Brain/MINDS 3D digital marmoset brain atlas. Sci Data. 5, 180009(2018).
- Saleem, K. S., Avram, A. V., Glen, D., Schram, V., Basser, P. J. The subcortical atlas of the marmoset ("SAM") monkey based on high-resolution MRI and histology. Cereb Cortex. 34 (4), bhae120(2024).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Lin, M. K., et al. A high-throughput neurohistological pipeline for brain-wide mesoscale connectivity mapping of the common marmoset. eLife. 8, e40042(2019).
- Skibbe, H., et al. PAT-probabilistic axon tracking for densely labeled neurons in large 3-D micrographs. IEEE Trans Med Imaging. 38 (1), 69-78 (2019).
- Economo, M. N., et al. A platform for brain-wide imaging and reconstruction of individual neurons. eLife. 5, e10566(2016).
- Winnubst, J., et al. Reconstruction of 1,000 projection neurons reveals new cell types and organization of long-range connectivity in the mouse brain. Cell. 179 (1), 268-281.e13 (2019).
Przedruki i uprawnienia
